본 프로토콜은 상동 재조합 수선(homology-directed repair) 및 GFP 기반 스크리닝을 이용하여 Mesorhizobium ciceri의 nodC 유전자좌를 CRISPR-Cas9으로 파괴함으로써, 병아리콩 관련 뿌리혹균의 기능 유전체학 연구를 위한 공생 결핍 돌연변이체를 생성하는 방법을 설명합니다.
방법 논문
병아리콩 공생 연구를 위한 nodC 유전자 파괴를 통한 Mesorhizobium ciceri의 CRISPR-Cas9 게놈 편집
* These authors contributed equally
이 논문에서
요약
초록
Mesorhizobium ciceri병아리콩의 질소 고정 공생균인Cicer arietinum), 기존의 상동 재조합 방식으로는 유전적 조작이 여전히 까다롭다. 이러한 방식은 노동 집약적이며 종종 원치 않는 선택 마커를 남기기 때문이다. 본 프로토콜에서는 특정 대상에 맞게 조정된 광범위 숙주 범위의 CRISPR(Clustered Regularly Interspaced Short Palindromic Repeats)-associated protein 9 (Cas9) 시스템을 이용한 효율적인 게놈 편집 전략을 설명한다. M. ciceri우리는 ~을 타겟팅함으로써 이 방법의 효능을 입증합니다. nodC, 이는 공생 분자 소통에 관여하는 주요 신호 분자인 Nod 인자의 키틴 골격 합성에 필요한 N-아세틸글루코사민전이효소(N-acetylglucosaminyltransferase)를 인코딩합니다. 본 프로토콜에서는 단일 가이드 RNA(sgRNA)의 체계적인 설계와 상동성 유도 복구(HDR) 템플릿의 구축 방법을 상세히 설명합니다. HDR 템플릿은 다음을 둘러싼 녹색 형광 단백질(GFP) 리포터의 부위 특이적 통합을 용이하게 하도록 설계되었습니다. nodC 절단 부위. 양친 교배를 통해 Cas9/sgRNA/HDR 컨스트럭트를 전달한 후, 형광 기반 스크리닝 방법을 사용하여 추정 돌연변이체를 식별하였습니다. 1.3 kb 부위의 성공적인 파괴는 nodC 결절 형성(nodulation) 내의 유전자좌(locus)끄덕임카세트는 우선 형광 현미경을 사용하여 돌연변이 콜로니의 GFP 발현을 시각화함으로써 1차 스크리닝을 진행하였다. 이후 제한효소 절단, 게놈 DNA로부터 통합된 카세트의 증폭 및 생거 시퀀싱을 통해 결손을 추가로 검증하였다. GFP 발현은 역전사 정량 PCR을 통해 추가로 정량화하였다. 돌연변이의 기능적 영향을 검증하기 위해 병아리콩 감염 분석을 수행하였으며, 이를 통해 특정 균주를 접종한 식물에서 근절 형성 저해 현상을 확인하였다. Δ*M. ciceri* nodC 야생형 균주와 비교하여. 전반적으로, 본 프로토콜은 정밀한 유전자 파괴 및 기능 유전체학 연구를 위한 효율적이고 재현 가능한 체계를 제공한다. 메소리조비움.
서론
원래 원핵생물의 적응 면역 기전으로 확인된 Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR)-associated protein 9 (Cas9) 뉴클레아제 시스템은 효율적이고 신뢰할 수 있는 유전체 편집 도구로 응용되었습니다1,2. 이 시스템은 합성 가이드 RNA (sgRNA)를 사용하여 Watson-Crick 염기 쌍 결합을 통해 표적 DNA 서열을 식별합니다. sgRNA는 protospacer adjacent motif (PAM) 서열인 NGG에 인접한 유전체 영역과 상보적인 20개 뉴클레오타이드로 구성됩니다. Cas9은 표적 서열 내의 지정된 부위, 일반적으로 PAM 부위의 3 base pairs (bp) 상류에서 이중 가닥 절단 (DSB)을 생성합니다1. 이렇게 생성된 DSB는 비상동 말단 연결이나 공여 템플릿을 이용한 상동 재조합 복구 (HDR)를 통해 복구될 수 있습니다3,4. 이러한 전략은 박테리아의 유전자 파괴, 넉인(knock-in) 및 넉아웃(knock-out) 접근법에 널리 적용되어 왔습니다5,6,7,8. 본 프로토콜의 주요 목적은 광범위 숙주 범위 CRISPR-Cas9 시스템을 사용하여 Mesorhizobium ciceri를 위한 효율적인 유전체 편집 방법을 개발하는 것입니다.
M. ciceri는 병아리콩(Cicer arietinum)의 필수적인 질소 고정 내생 공생균으로 작용하는 그람 음성 토양 박테리아이다9. M. ciceri CC1192 균주는 높은 뿌리혹 형성 효율을 보이며, 그 게놈 서열이 분석되었다10. 농업적 중요성에도 불구하고, Mesorhizobium 종의 유전적 조작은 여전히 제한적이다. CRISPR 기반 시스템은 이전에 Rhizobium etli의 CRISPR 간섭(CRISPRi)11, Sinorhizobium meliloti의 게놈 편집12, 그리고 S. meliloti의 염기 편집13을 포함한 다른 뿌리혹박테리아에서 구현된 바 있다. 하지만 M. ciceri를 위한 강력한 게놈 편집 플랫폼은 보고되지 않았다. 기존의 접근 방식은 자살 플라스미드 매개 상동 재조합에 의존하는데, 이는 노동 집약적이고 여러 차례의 선별 과정이 필요하며, 게놈에 항생제 내성 마커가 흉터처럼 남는 경우가 많다14.
이러한 한계점을 해결하기 위해, 원래 Paenibacillus polymyxa를 위해 개발된 pCasPP 벡터 시스템을 M. ciceri에 사용할 수 있도록 최적화하였습니다15. pCasPP 프레임워크는 고-GC 방선균에 맞게 코돈 최적화된 Streptococcus pyogenes Cas9을 이용하며, 구성적 gapdh 프로모터 하에서 sgRNA 클로닝의 청백 선별(blue-white screening)을 위한 lacZ 카세트를 포함하고 있습니다8. 공여체 Escherichia coli 균주와 수용체 Mesorhizobium 균주 간의 양친 교배(biparental mating)를 통해 편집 벡터를 전달하였습니다16. 선별 효율을 높이기 위해, 본래 Bradyrhizobium diazoefficiens에 맞게 코돈 최적화된 녹색 형광 단백질(GFP) 변이체인 bjGFP를 HDR 공여체 템플릿에 통합하였습니다16. 이러한 형광 기반 선별 전략을 박테리아와 병아리콩 사이의 공생 신호 전달 초기 단계에 필수적인 nodC 유전자좌를 표적으로 하는 데 적용하였습니다17,18.
본 프로토콜은 무작위 화학적 또는 자외선(UV) 돌연변이 유발 방식에 대한 정밀하고 효율적인 대안을 제공합니다. 검증 실험에서 회수된 콜로니의 80% 이상이 GFP 형광을 나타냈으며, 대표적인 편집 콜로니들은 중합효소 연쇄 반응(PCR)과 Sanger 시퀀싱을 통해 추가로 확인되었습니다. 이렇게 생성된 ΔnodC M. ciceri 돌연변이체는 공생 신호 전달 및 숙주-미생물 상호작용 연구를 위한 유용한 자원이 됩니다. 전반적으로, 이 프레임워크는 리조비움 연구 커뮤니티에 Mesorhizobium의 기능 유전체학 연구를 위한 효율적이고 확장 가능한 접근법을 제공합니다.
프로토콜
식물 성장, 미생물 접종 및 유전자 변형 박테리아 취급을 포함하는 모든 실험 프로토콜은 기관의 지침 및 규정에 따라 수행되었습니다. 식물 배양 및 박테리아 접종은 제어된 성장 챔버 조건 하에서 이루어졌습니다. M. ciceri 본 연구에 사용된 균주는 생물안전등급 1등급(BSL-1) 미생물로 분류됩니다. 모든 실험은 야외 방출 없이 밀폐된 실험실 조건에서 수행되었으므로, 기관 생물안전 정책에 따라 공식적인 기관 생물안전 승인은 필요하지 않았습니다. 연구 과정에서 발생한 모든 생물학적 폐기물은 폐기 전 오토클레이브(고압증기멸균) 처리되었습니다.
1. 컴피턴트 세포 준비
화학적 형질전환 능력을 가진 E. coli DH5α 및 E. coli S17-1λpir 세포는 보충 파일 1에 설명된 절차에 따라 준비 및 검증되었습니다.
2. 가이드 RNA 설계
- 가이드 RNA 설계
- Benchling 플랫폼(https://benchling.com/)을 엽니다. 기존 Benchling 계정에 로그인하거나 새 계정을 생성하십시오.
- 새 프로젝트를 생성하고 CRISPR 가이드 설계 도구를 여십시오.
- 가이드 RNA 설계를 위해 전체 표적 DNA 서열을 업로드하거나 붙여넣으십시오. “단일 가이드(Single Guide)” 설계 옵션을 선택하고 가이드 길이를 20 bp로 설정하십시오.
- 사용 가능한 옵션 중에서 참조 게놈을 선택하십시오. 타겟팅을 위한 가이드 RNA 설계 시 M. ciceri, Bradyrhizobium diazoefficiens USDA 110를 참조 게놈으로 선택하십시오. Streptococcus pyogenes Cas9 (SpCas9) 활성에 필요한 프로토스페이서 인접 모티프 (PAM) 서열로 NGG를 사용하십시오.
- Hsu 등의 방법을 사용하십시오.19 예측된 오프타겟 절단 빈도를 계산하는 알고리즘. 참조 게놈 배경 전반에서 비특이적 절단을 최소화하기 위해 임계값 점수를 50점 이상으로 유지하십시오.
- Doench-Root 알고리즘을 사용하십시오20 예측 온타겟 효율 점수를 계산합니다. 표적 유전자좌에서 유리한 예측 Cas9 절단 효율을 가진 가이드를 식별하기 위해 표적 선택 임계값을 60 이상으로 설정합니다.
- “완료”를 클릭하여 후보 가이드 RNA 목록을 생성하십시오.
- 가이드 RNA의 선택
- 가이드 RNA 출력 패널을 여십시오.
- 번역 시작 코돈(ATG)으로부터 100bp 이내에서 이중 가닥 절단을 생성하는 것으로 예측된 후보 sgRNA를 우선적으로 선택하여, 기능이 없는 단백질이 생성될 가능성을 높이십시오.
- 오프타겟 및 온타겟 점수를 평가하십시오. 의도하지 않은 오프타겟 절단 위험을 줄이기 위해, 온타겟 점수가 약간 더 높은 것보다 오프타겟 점수가 더 높은 것을 우선시하십시오.
- 모든 선택 기준을 충족하는 하나 또는 두 개의 후보 단일 가이드 RNA(sgRNA)를 선택하십시오.
- gRNA 올리고뉴클레오타이드 준비
- 선택한 가이드 RNA의 역상보 서열을 생성하십시오.
- 서열 5를 추가하십시오′5' 말단에 -ACGC′ 가이드 RNA의 끝에 서열 5를 추가합니다′5' 말단에 -AAAC′ 역상보 가닥의 끝.
- 두 올리고뉴클레오타이드를 모두 5' 말단에 주문하십시오.′ 25 nmol 합성 규모에서의 인산화 및 PAGE 정제.
- gRNA 올리고뉴클레오타이드의 어닐링
- 약 800 mL의 증류수에 HEPES 유리산을 7.15 g 녹여 30 mM HEPES 완충액을 준비한다. 수산화나트륨을 사용하여 pH를 7.8로 조정한 후, 최종 부피를 1 L로 맞춘다.
- 각 인산화된 올리고뉴클레오타이드를 핵산 분해 효소 제거수에 다시 현탁하여 최종 농도를 다음으로 맞춥니다. 100 µM결합하십시오. 5 µL 각 올리고뉴클레오타이드의 90 µL 멸균된 마이크로원심분리 튜브에 30 mM HEPES 완충액을 넣습니다.
- 짧게 볼텍싱한 후 원심분리하여 액체를 모읍니다. 서모사이클러를 사용하여 다음 온도에서 배양함으로써 올리고뉴클레오타이드를 어닐링합니다. 95°C 5분 동안 유지하고 ~로 냉각하며 4°C 승온 속도(또는 강온 속도)로 0.1°C/s.
- 어닐링된 올리고뉴클레오타이드를 누클레아제 프리 워터(nuclease-free water)를 사용하여 10배 희석하십시오.
- pCasPP 벡터로의 gRNA 조립
- Rütering 등이 이전에 기술한 pCasPP 벡터를 확보하십시오.15.
- 플라스미드 서열은 Jochen Schmid가 제공하였으며, 본 연구에 사용된 컨스트럭트는 Syed Shams Yazdani 박사(ICGEB)를 통해 입수하였습니다.
- 100 ng의 pCasPP 벡터를 포함하는 Golden Gate 반응액을 조제하십시오. 0.3 µL 어닐링된 올리고뉴클레오타이드 삽입편, 2 µL 10× T4 DNA 연결효소 완충액, 1 µL T4 DNA 리가아제, 1 µL BbsI 제한 효소 및 뉴클레아제 제거수를 최종 부피가 되도록 추가하여 20 µL.
- 인서트를 뉴클레아제 프리 워터로 대체하여 음성 대조군 반응액을 준비하십시오.
- 반응물을 부드럽게 혼합하고 짧게 원심 분리하십시오.
- 골든 게이트 조립 사이클링 조건
- 반응 튜브를 써모사이클러에 넣습니다. 다음으로 구성된 9회 사이클을 수행합니다. 37°C 10분 동안 처리한 후 이어서 16°C 10분 동안.
- 반응물을 다음 온도에서 배양하십시오. 50°C 5분 동안 처리한 후 다음의 온도에서 65°C 20분 동안 유지합니다. 반응물을 다음 온도에서 유지하십시오. 4°C 사용 전까지.
- 어셈블리 반응의 형질전환
- 해동 50 µL 컴피턴트 Escherichia coli DH5$\alpha$α 세포를 얼음 위에서 10~15분 동안 보관하십시오.
- 추가 3 µL 각 Golden Gate 조립 반응액을 컴피턴트 세포에 처리합니다. 음성 대조군 반응액을 병행하여 처리하십시오. 혼합물을 얼음 위에서 30분 동안 배양합니다.
- 세포를 다음 온도에서 열충격 처리하십시오. 42°C 45초 동안 처리하고 즉시 튜브를 얼음에 2분간 보관하십시오. 다음을 추가하십시오. 950 µL 카타볼라이트 억제제가 포함된 초최적 배지(SOC medium).
- 0.5% 효모 추출물, 2% 트립톤, 10 mM NaCl, 2.5 mM KCl, 10 mM MgCl₂를 함유한 SOC 배지를 준비하십시오.₂, 10 mM MgSO₄₄, 그리고 20 mM 포도당. 다음을 사용하여 배지를 여과 멸균한다. 0.4 µm 무균 조건 하의 시린지 필터링.
- 배양물을 다음 조건에서 배양하십시오. 37°C 그리고 180 rpm으로 1시간 동안 원심분리합니다.
- 양성 형질전환체의 선택
- ~가 첨가된 LB 한천 배지를 준비하십시오. 50 µg/mL 네오마이신, 0.2 mM 이소프로필 β-D-1-티오갈락토피라노사이드 (IPTG) 및 32 mg/L 5-브로모-4-클로로-3-인돌릴 β-D-갈락토피라노사이드(X-gal). 플레이트 100 µL 회복 배양액을 선택 배지에 도말합니다. 배지를 다음 온도에서 배양하십시오. 37°C 12~16시간 동안.
- 흰색 콜로니를 선택하고 파란색 콜로니는 폐기하십시오. 음성 대조군 플레이어에 콜로니가 5개 미만인지 확인하십시오.
- 양성 클론의 스크리닝 및 확장
- 3~4개의 독립된 흰색 콜로니를 신선한 선택 LB 한천 배지에 도말하십시오.
- 플레이트를 다음 조건에서 배양하십시오. 37°C 12~16시간 동안 배양한다. 개별 콜로니를 다음이 첨가된 10 mL LB 배지에 접종한다. 50 µg/mL 네오마이신
- 후속 워크플로우 전반에 걸쳐 각 가이드 RNA 컨스트럭트를 독립적으로 처리하십시오.
- pCasPP-gRNA 구성체의 검증
- 원심분리를 통해 박테리아 배양액을 수확하십시오. 실리카 컬럼 플라스미드 정제 키트를 사용하여 플라스미드 DNA를 분리하십시오.
- 분리된 플라스미드 DNA를 적절한 반응 버퍼에서 XbaI 및 EcoRI으로 1시간 동안 소화하십시오. 37°C.
- 1X TAE 버퍼로 제조한 1% 아가로스 겔에서 소화 산물을 분리하십시오.× 최종 농도가 다음인 에티듐 브로마이드(ethidium bromide) 함유 Tris-acetate-EDTA (TAE) 완충액 0.5 µg/mL.
- 염료 전선이 겔 길이의 약 70~80%까지 이동할 때까지 90~110 V에서 겔 전기영동을 수행하십시오. UV 투과조명기를 사용하여 DNA 단편을 시각화하십시오.
- 1,280 bp 조각을 검출하여 양성 클론을 확인하고, 1,630 bp 조각을 검출하여 공벡터 대조군을 식별하십시오. 공 pCasPP 벡터는 약 9,663 bp이며 lacZ 유전자를 포함하고 있습니다. 24 bp gRNA 올리고뉴클레오타이드가 삽입되면 lacZ 조각이 제거되어, 크기가 더 작은 gRNA 포함 pCasPP 컨스트럭트가 생성됩니다. lacZ 영역의 양 끝에 위치한 XbaI 및 EcoRI 제한 효소 부위는 gRNA 클로닝의 진단적 확인을 위해 사용됩니다.
- 글리세롤 스톡 준비
- 선택 LB 배지에서 확인된 양성 클론을 배양하십시오.
- 혼합하여 글리세롤 스톡을 준비하십시오 700 µL ~를 이용한 대수 증식기 배양 300 µL 멸균된 50% 글리세롤. 혼합물을 멸균된 냉동 보존용 튜브(cryovials)에 옮긴다. 글리세롤 스톡을 −80°C.
주의: 반복적인 동결-해동 주기를 피하십시오. 플라스미드 안정성과 박테리아 생존력을 유지하기 위해 여러 개의 소분량(aliquot)을 준비하십시오. 완료된 Golden Gate 조립 반응물은 다음 온도에서 보관할 수 있습니다. 4°C 하룻밤 동안 또는 −에서20°C 형질전환 1~2주 전까지.
3. 상동성 유도 수선 템플릿의 조립
- 녹색 형광 단백질(GFP) 삽입물(Insert) 준비
- 형광 리포터 카세트를 포함하는 플라스미드 pRJPaph-bjGFP를 확보한다16 (표 1)10,15,16,21,22,23. 해당 플라스미드는 Prof. Hans-Martin Fischer (ETH Zurich, Switzerland)가 제공하였으며, Addgene (Plasmid #67032)을 통해 이용 가능하다.
- 보조 파일 2(단계 3.1)에 기술된 대로 SacI 및 KpnI 제한효소 절단을 통해 pRJPaph-bjGFP에서 gfp 카세트를 절제한다. pRJPaph-bjGFP의 gfp 서열은 Bradyrhizobium diazoefficiens에 최적화된 합성 bjGFP 유전자이다.
- 예상 크기인 1081 bp의 gfp 단편을 정제한다.
- pUC18-gfp 구축
- pUC18 백본(Addgene plasmid #50004)을 확보한다21.
- 보조 파일 2(단계 3.2)에 기술된 대로 SacI 및 KpnI를 사용하여 pUC18을 선형화한다.
- 보조 파일 2(단계 3.2)에 기술된 대로 정제된 gfp 단편을 선형화된 pUC18 벡터에 결합(ligation)시킨다.
- 단계 2.7에 기술된 형질전환 절차를 사용하되, Golden Gate 어셈블리 반응 대신 단계 3.2.3에서 생성된 결합 혼합물을 사용하여 컴피턴트 E. coli DH5α 세포를 형질전환한다.
- 양성 형질전환체를 선택하고, 보조 파일 2(단계 3.2)에 기술된 대로 콜로니 중합효소 연쇄 반응(PCR)을 통해 gfp 삽입을 확인한다.
- 상동 팔(Homology Arms) 증폭
- M. ciceri 게놈 DNA로부터 약 400–500 bp의 상류(UHA) 및 하류(DHA) 상동 팔을 증폭하기 위한 프라이머를 설계한다(표 2).
- UHA 프라이머에는 SacI/EcoRI 제한효소 부위를, DHA 프라이머에는 XbaI/KpnI 제한효소 부위를 포함시킨다. UHA 증폭에는 F_nodC_Up_EcoRI 및 R_nodC_Up_SacI 프라이머를 사용하고, DHA 증폭에는 F_nodCdown_KpnI 및 R_nodCdown_XbaI 프라이머를 사용한다(표 2).
- Weerakkody 등이 보고한 방법25에 따라 M. ciceri 게놈 DNA를 분리한다.
- 보조 파일 2(단계 3.3)에 기술된 대로 UHA 및 DHA 단편을 증폭하고 정제한다.
- pUC18-UHA-gfp 구축
- 보조 파일 2(단계 3.4)에 기술된 대로 EcoRI 및 SacI를 사용하여 UHA 단편을 pUC18-gfp에 클로닝한다.
- XbaI 및 KpnI 제한효소 절단을 통해 플라스미드 어셈블리가 올바르게 되었는지 확인한다. 성공적으로 어셈블리된 경우 약 500 bp 및 3725 bp의 단편이 생성되어야 한다.
- 검증된 클론 하나를 선택하여 진행한다.
- pUC18-UHA-gfp-DHA 구축
- 보조 파일 2(단계 3.5)에 기술된 대로 KpnI 및 XbaI를 사용하여 DHA 단편을 pUC18-UHA-gfp에 클로닝한다.
- SacI 및 EcoRI 제한효소 절단을 통해 올바른 어셈블리를 확인한다. 성공적으로 어셈블리된 경우 약 400 bp 및 4271 bp의 단편이 생성되어야 한다.
- 상동성 유도 수선(HDR) 카세트 서열의 대부분을 함께 커버하는 F_nodC_Up_EcoRI, BjGFP_BP_F1, R_nodCdown_XbaI 프라이머(표 2)를 사용하여 Sanger 시퀀싱으로 5–6개의 후보 클론을 검증한다.
- 최종 HDR 템플릿의 증폭 및 정제
- F_FL_nodCgfp_XbaI 및 R_nodCdown_XbaI 프라이머(표 2)를 사용하여 전체 HDR 카세트를 증폭한다.
- 예상 크기인 2012 bp의 HDR 단편을 정제하고, 보조 파일 2(단계 3.6)에 기술된 대로 정제된 PCR 산물을 XbaI로 절단한다.
- pCasPP-gRNA 벡터 준비
- 단계 2에서 생성된 pCasPP-gRNA1 및 pCasPP-gRNA2 플라스미드를 준비한다.
- 보조 파일 2(단계 3.7)에 기술된 대로 XbaI로 플라스미드를 선형화하고 벡터 백본을 탈인산화한다.
- pCasPP-gRNA 벡터로의 HDR 템플릿 클로닝
- 보조 파일 2(단계 3.8)에 기술된 대로 XbaI로 선형화된 pCasPP-gRNA1 또는 pCasPP-gRNA2에 HDR 카세트를 결합시킨다.
- 컴피턴트 E. coli DH5α 세포를 형질전환하고, 50 µg/mL neomycin이 포함된 LB 한천 배지에서 형질전환체를 선택한다.
- HDR 함유 클론 스크리닝
- 표준 GFP 필터 세트(들뜸 파장 470–488 nm, 방출 파장 507–510 nm)가 장착된 형광 실체현미경을 사용하여 형질전환체의 GFP 형광을 스크리닝한다.
- 편집되지 않은 음성 대조군 콜로니에서 관찰되는 약한 자가 형광을 명확히 초과하는, 뚜렷하고 균일한 녹색 형광의 존재 여부에 따라 콜로니를 GFP 양성으로 분류한다.
- GFP 양성 클론을 배양 및 확장하고 플라스미드 DNA를 분리한다.
- HDR 벡터 어셈블리 검증
- XbaI 제한효소 절단을 통해 HDR 삽입을 확인한다.
- 예상 크기인 2012 bp의 HDR 단편과 약 9,300 bp의 pCasPP-gRNA 벡터 백본이 함께 분리되는지 확인하여 어셈블리 성공 여부를 검증한다.
참고: 제한효소와 탈인산효소를 열 불활성화시킨 후, 반응 혼합물은 4°C에서 하룻밤 동안 또는 −20°C에서 최대 1개월까지 보관할 수 있다. 확인된 플라스미드 구축물은 장기 보존을 위해 −20°C에 보관한다.
| 균주 또는 플라스미드 | 설명 | 참고문헌 | ||||
| Mesorhizobium ciceri CC1192 | CRISPR-Cas9 게놈 편집 및 병아리콩 뿌리혹 형성 분석에 사용된 수용 균주 | Haskett 외.10 | ||||
| pCasPP | 가이드 RNA 클로닝 및 HDR 템플릿 전달에 사용되는 CRISPR-Cas9 게놈 편집 벡터 | Rütering 등15 | ||||
| pRJPaph-bjGFP | GFP 카세트의 소스로 사용된 GFP 리포터 플라스미드 (Addgene 플라스미드 #67032) | Ledermann 등16 | ||||
| pUC18 | HDR 템플릿 어셈블리에 사용되는 일반 클로닝 벡터 (Addgene 플라스미드 #50004) | Norrander 등21 | ||||
| Escherichia coli S17-1λpir | 양부모 접합에 사용된 공여 균주 | Simon 등22 | ||||
| Escherichia coli DH5$\alpha$α | 플라스미드 증식에 사용되는 클로닝 호스트 | Hanahan 외.23 | ||||
표 1: 본 연구에 사용된 세균 균주 및 플라스미드. 이 표에는 플라스미드 증식, CRISPR-Cas9 매개 게놈 편집, 상동 재조합 복구(HDR) 템플릿 조립, 양친 교배 및 Mesorhizobium ciceri CC1192의 형광 표지에 사용된 세균 균주와 플라스미드가 나열되어 있습니다.
| 카테고리 | 이름 | 서열 (5′  3′) 또는 설명 |
| 세균 균주 | Escherichia coli DH5α | 클로닝 숙주 균주 |
| 세균 균주 | Escherichia coli S17-1λpir | 양측 부모 교배용 공여 균주 |
| 클로닝 벡터 | pUC18 | 클로닝 백본 벡터 |
| CRISPR 벡터 | pCasPP | 광범위 숙주 범위 CRISPR-Cas9 벡터 |
| 리포터 플라스미드 | pRJPaph-bjGFP | GFP 리포터 플라스미드 |
| 프라이머 | F_guide1_BbsI | pACGCTGTTTACAGAGGCATGCAAG |
| 프라이머 | R_guide1_BbsI | pAAACCTTGCATGCCTCTGTAAACA |
| 프라이머 | F_guide2_BbsI | pACGCGCTTGTTCGGATCCGACCGT |
| 프라이머 | R_guide2_BbsI | pAAACACGGTCGGATCCGAACAAGC |
| 프라이머 | F_nodC_Up_EcoRI | AAAGAATTCCTCATTGCAAGCCAGCAGT |
| 프라이머 | R_nodC_Up_SacI | AAAGAGCTCCGGAAAGCTTGTTTCGGATCC |
| 프라이머 | F_nodCdown_KpnI | AAAGGTACCTCGAGAGCACCGCATAAGAC |
| 프라이머 | R_nodCdown_XbaI | AATTCTAGATGGTTCGGTACTTTCGTGCA |
| 프라이머 | F_FL_nodCgfp_XbaI | AAATTCTAGACTCATTGCAAGCCAGCCAGT |
| 프라이머 | BjGFP_BP_F1 | GAAGTTCATCTGCACCACCG |
| 프라이머 | BjGFP_BP_R1 | GTCCTTGAACGAGATGGTGC |
| 프라이머 | BjGFP_BP_F2 | CCAACTTCAAGATCCGCCAC |
| 프라이머 | GFP_R | CCAACTTCAAGATCCGCCAC |
| 프라이머 | BjGFP_BP_R2 | CTTGTACAGCTCGTCCATGC |
| 프라이머 | 16S_F1 | ATCCTGGCTCAGAACGAACG |
| 프라이머 | 16S_R1 | ATTCCCACGCGTTACTCACC |
| 프라이머 | 16S_F2 | AGTCCGAGAGGGTGAGTGG |
| 프라이머 | 16S_R2 | GTCAGTACCGAGCCAGTGAG |
| 프라이머 | F1_nodC | CGATTTCCAGAACCGTCGTC |
| 프라이머 | nodC_R | CGATTTCCAGAACCGTCGTC |
| 프라이머 | R1_nodC | TCCCCTGCTACAATGAGGAC |
| 프라이머 | F2_nodC | AGTGACTCCGCAATTCCAGA |
| 프라이머 | R2_nodC | TGTCGGTAAAAGTGTTTCCC |
| 프라이머 | F1_nodB | TGGTTCGGTACTTTCGTGCA |
| 프라이머 | R1_nodB | AGTCGCGTGGATCAATGGAC |
| 프라이머 | F1_nodA | TGATCGTCGCTGAATTGGGC |
| 프라이머 | R1_nodA | CAACTGATGGAGCACTGGGT |
| 프라이머 | F1_nodD | TGGCCTTAAGAGACGTGTCG |
| 프라이머 | R1_nodD | AAATGCCTGACCAGCCGTAA |
표 2: 본 연구에 사용된 세균 균주, 플라스미드 및 올리고뉴클레오타이드 프라이머.이 표는 단일 가이드 RNA(sgRNA) 구축, 상동 재조합 복구(HDR) 템플릿 조립, 진단 중합효소 연쇄 반응(PCR), 생거 시퀀싱 및 역전사 정량 중합효소 연쇄 반응(RT-qPCR)에 사용된 세균 균주, 플라스미드 및 올리고뉴클레오타이드 프라이머를 나열합니다. 프라이머 서열은 5′ 3′ 방향으로 표시되었습니다. 참고: BjGFP_BP_F2와 GFP_R은 동일한 올리고뉴클레오타이드 서열을 나타내지만, 서로 다른 실험 분석에 사용되었으므로 다른 프라이머 이름으로 기재되었습니다.
4. M. ciceri CC1192로의 플라스미드 전이를 위한 양친 교배
- 공여체 E. coli 세포의 형질전환
- 보충 파일 3(단계 4.1)에 설명된 절차에 따라 pCasPP-gRNA1-HDR 또는 pCasPP-gRNA2-HDR 구축물을 E. coli S17-1λpir 세포에 형질전환한다.
- 50 µg/mL neomycin이 포함된 LB agar에서 형질전환체를 선택한다.
- 약 488 nm에서 여기시키고 약 510–520 nm에서 방출을 검출하여 형질전환체의 GFP 형광을 스크리닝한다.
- 동일한 현미경 설정으로 관찰했을 때, 형질전환되지 않은 E. coli S17-1λpir 대조군 콜로니에서는 나타나지 않는 균일하고 뚜렷한 녹색 형광을 보이는 콜로니를 GFP 양성으로 분류한다.
- 확인된 GFP 양성 공여체 클론으로 글리세롤 스톡을 제작한다.
- 종균 및 스타터 배양액의 준비
- 보충 파일 3(단계 4.2)에 따라 공여체 E. coli S17-1λpir 및 수용체 M. ciceri 스타터 배양액을 준비한다.
- 스타터 배양액을 OD₆₀₀ 0.3–0.4(추정 세포 밀도 약 1 × 10⁸ CFU/mL에 해당)까지 배양한다.
- 양친 교배용 하위 배양액의 준비
- 보충 파일 3(단계 4.3)에 따라 공여체 및 수용체 하위 배양액을 준비하고 필요한 대수 성장기까지 배양한다.
- 보충 파일 1(단계 1.2.3)에 설명된 광학 밀도 측정 절차에 따라 UV-visible 분광광도계를 사용하여 600 nm에서의 광학 밀도(OD600)를 측정한다.
- 양친 교배 절차
- 보충 파일 3(단계 4.4)에 따라 막 여과 양친 교배를 수행한다.
- 교배 현탁액 4개의 분주량을 멸균된 0.22 µm polyvinylidene fluoride (PVDF) 막 여과지(지름 47 mm) 위에 점적하며, 혼합을 방지하기 위해 점적 지점 사이에 충분한 간격을 둔다.
- 접합전환체의 회복 및 선택
- 보충 파일 3(단계 4.5)에 따라 접합전환체를 회복시키고 이중 항생제 선택을 수행한다.
- 잔류 플라스미드를 제거하기 위해 carbenicillin 단독 배지에서 접합전환체를 반복적으로 계대 배양한다.
- 콜로니가 neomycin 포함 배지에서 성장하지 않는 것과, 진단 PCR을 통해 염색체에 통합된 HDR 카세트는 유지하면서 pCasPP 백본은 소실되었음을 확인함으로써 플라스미드 큐어링을 확인한다.
참고: 통합된 변이의 안정성을 검증하고 잔류 에피솜 플라스미드를 제거하기 위해 연속적인 계대 배양이 필요하다.
- GFP 양성 콜로니의 스크리닝
- 보충 파일 3(단계 4.6)에 따라 정제된 접합전환체의 GFP 형광을 스크리닝하고 야생형 M. ciceri 대조군과 비교한다.
- 형광 콜로니를 추정 HDR 양성 균주로 선택한다.
- 동일한 현미경 설정 및 노출 조건에서 야생형 M. ciceri 콜로니에서는 나타나지 않는 균일하고 뚜렷한 녹색 형광을 보이는 콜로니를 GFP 양성으로 분류한다.
- 후속 검증 단계로 넘어가기 전, 진단 PCR로 GFP 양성 콜로니를 확인한다.
- 확인된 콜로니는 단기 보관을 위해 yeast mannitol (YM) agar에서 4°C로 보관하거나, 장기 보존을 위해 20%–25% 글리세롤을 포함하는 글리세롤 스톡으로 제작하여 −80°C에 보관한다.
5. nodC 돌연변이체의 검증
- nodC 유전자좌에서의 GFP 삽입 검증
- GFP를 발현하는 단일 균주를 접종하십시오. *M. ciceri* 콜로니를 ~가 첨가된 10 mL의 효모 만니톨 브로스(YMB)에 접종하여 100 µg/mL 카르베니실린24배양물을 다음 조건에서 배양한다. 28°C 180 rpm으로 흔들어주며 20~24시간 동안 배양한다.
- 8,000 rpm에서 원심분리하여 세균 세포를 회수하십시오. × at에서 10분간 원심분리합니다. 25°C세포 펠릿을 수집하고 Weerakkody 등의 방법에 따라 게놈 DNA를 분리하십시오.25.
- 유전체 DNA를 템플릿으로 하여 진단 PCR을 수행합니다 (표 2). 다음을 준비하십시오. 10 µL 다음을 포함하는 PCR 반응액 5 µL 2× PCR 마스터 믹스, 0.2 µM F1_nodB 및 nodC_R 프라이머 또는 F1_nodB 및 gfp_R 프라이머, 그리고 50 ng의 게놈 DNA.
- 써모사이클러(thermocycler)의 초기 변성 단계를 다음과 같이 설정하십시오. 95°C 5분 동안 수행한 후, 다음으로 35회 반복합니다. 95°C 1분 동안, 62°C 30초 동안 처리하고, 72°C 45초 동안 수행하며, 최종 신장 단계는 72°C 5분 동안.
- 이전 설명과 같이 1% (w/v) 아가로스 겔에서 PCR 산물을 전기영동하여 분리한다. F1_nodB/nodC_R 프라이머를 사용하여 야생형(WT)에서는 약 430 bp, 파괴 돌연변이체(disrupted mutant)에서는 약 1500 bp의 산물이 검출되는지 확인하고, F1_nodB/gfp_R 프라이머를 사용하여 돌연변이체에서는 약 1000 bp의 산물이 검출되는지(WT에서는 산물 없음) 확인하여 GFP 삽입을 확인한다.
- PCR 검증 과정에서 적절한 대조군을 포함하십시오. 표적 서열을 포함하는 플라스미드 DNA를 양성 대조군으로 사용하고, nuclease-free water가 포함된 무형 템플릿 대조군(NTC)을 음성 대조군으로 사용하십시오.
- 역전사 정량 중합효소 연쇄 반응(RT-qPCR)을 이용한 GFP 발현량 정량 분석
- WT 및 돌연변이체로부터 총 RNA 분리 M. ciceri 제조사의 지침에 따라 TRIzol 시약을 사용하여 배양물을 처리하십시오.
- 제조사의 지침에 따라 RNA를 DNase I로 처리하여 오염된 게놈 DNA를 제거하십시오. qPCR 과정 중 역전사 효소 미첨가(−RT) 대조군을 사용하여 DNA가 완전히 제거되었는지 확인하십시오.
- ~로부터 1차 가닥 cDNA를 합성하십시오. 1 µg 제조사의 지침에 따라 시판되는 1차 가닥 cDNA 합성 키트를 사용하여 전체 RNA를 준비합니다. 다음을 준비하십시오. 20 µL RNA, oligo(dT) 프라이머, dNTPs, 반응 버퍼, RNase 억제제 및 역전사 효소를 포함하는 반응액.
- cDNA 합성 반응물을 다음 온도에서 배양하십시오. 42°C 60분 동안 반응시킨 후, 다음의 온도에서 열불활성화합니다. 70°C 5분 동안 보관하십시오. cDNA를 −에서 보관하십시오.20°C 사용 전까지 보관하십시오.
- RT-qPCR 반응액을 기술적 삼중항(technical triplicate)으로 준비합니다. 조립하십시오. 10 µL ~을 포함하는 반응 5 µL 2× SYBR Green 마스터 믹스, 0.2 µM GFP 증폭을 위한 BjGFP_BP_F1 및 BjGFP_BP_R1 프라이머, 또는 참조 유전자 증폭을 위한 16S_F1 및 16S_R1 프라이머(표 2), 2 µL cDNA 템플릿(약 20 ng) 및 뉴클레이스 프리 워터(nuclease-free water).
- 다음의 사이클 조건을 사용하여 RT-qPCR을 수행하십시오: 초기 변성 단계의 온도는 95°C 2분 동안 수행한 후, 다음의 과정을 40회 반복합니다. 95°C 15초 동안, 그리고 58°C 45초 동안 수행한 후, 다음으로 ~부터 멜팅 커브 분석(melt-curve analysis)을 실시한다. 65°C ~로/에게 95°C.
- Bio-Rad CFX96 Real-Time PCR Detection System을 사용하여 qRT-PCR을 수행하십시오. 증폭 곡선과 Ct 값을 분석하십시오.t 값 및 융해 곡선을 Bio-Rad CFX Manager 소프트웨어를 사용하여 분석하였습니다.
- 2^-ΔΔCt 방법을 이용한 상대적 유전자 발현량 계산−ΔΔ임계 사이클(Ct) 방법. 16S rRNA 참조 유전자로 발현량을 표준화하고 WT를 사용한다. *M. ciceri* 해당 균주를 교정 샘플로 사용하십시오. 각각 기술적 반복 실험을 3회 실시한 3개의 생물학적 반복 시료를 분석하십시오.
- 근류 형성 능력 평가
- 세균 접종원 준비
- WT 및 돌연변이 균주의 단일 콜로니를 다음과 같은 성분이 포함된 선택 YMB 배지에 접종합니다. 100 µg/mL 카베니실린(carbenicillin). 배양물을 다음 조건에서 배양하십시오. 28°C 180 rpm으로 진탕하며 30~36시간 동안 배양한다.
- 배양액을 신선한 선택 YMB 배지에 1:100 비율로 희석하고, OD를 측정하여 성장을 모니터링한다.600 UV-Vis 분광광도계를 사용하여 측정합니다. 접종하지 않은 YMB로 기기의 바탕값을 설정하고, 배양액의 $\text{OD}_{600}$ 값이 약 1에 해당하는 0.3~0.4에 도달할 때까지 배양을 계속합니다. × 108 CFU/mL.
- 각 식물의 접종을 위해 표준화된 세균 현탁액 3mL를 사용하십시오.
- 병아리콩 식물 감염 분석
- ~의 종자를 확보하십시오. *C. arietinum* 품종 BDG25618,24 인도 뉴델리에 위치한 ICAR-인도 농업연구소(IARI) 소속.
- 종자를 흐르는 수돗물로 충분히 세척한 후 Milli-Q 초순수로 헹굽니다. 1% 차아염소산나트륨 용액에 종자를 넣고 5분 동안 교반하며 표면 멸균한 뒤, 멸균된 초순수로 5회 세척합니다.
- 종자를 0.1% Bavistin 살균제(50% carbendazim 수화제)로 실온에서 2~3시간 동안 처리하십시오. 처리된 종자를 멸균 정제수로 2회 세척하십시오.
- 멸균된 페트리 접시(110 mm) 내의 젖은 멸균 여과지에 종자를 놓습니다. × 40 mm), Parafilm으로 밀봉하고 암소에서 다음 온도에서 배양한다. 28°C ± 2°C 3일 동안.
- 발아된 유묘를 멸균된 모래에 개별적으로 옮겨 심습니다. 모래를 다음 온도에서 멸균하십시오. 121°C 그리고 사용 전 15 psi에서 20분간 처리합니다.
- 6.0 g의 CaSO4를 용해하여 질소 제거 McKnight 영양액을 준비하십시오.₄, 1.0 g MgSO4₄·7H₂O, 1.0 g KH₂PO₄, 1.5 g KCl, 14.3 mg H₃BO₃, 0.4 mg CuSO₄₄·5H₂O, 0.08 mg MnSO4₄·4시간₂O, 0.45 mg H₂산화 몰리브덴₄, 그리고 1.1 mg ZnSO₄₄·7H₂멸균 증류수를 사용하여 최종 부피가 5 L가 되도록 맞춥니다.
- 멸균된 모래가 담긴 지름 10cm 화분에서 묘목을 재배하며, 화분당 4그루의 식물을 유지한다. 각 화분에 질소가 제거된 McKnight 용액 20mL를 주 2회 관수한다.
- 다음의 제어된 조건 하에 식물을 유지하십시오. 22°C ± 2°C (일), 18°C ± 2°C (야간), 상대 습도 55%–60%, 16시간 광주기/8시간 암주기, 그리고 다음의 광도 200 µmol 광자 m⁻2 s⁻1접종 전 6~7일 동안 유묘를 배양합니다.
- 각 묘목에 박테리아 현탁액 3 mL를 직접 처리한다. 멸균된 YMB 3 mL를 처리하여 모의 처리 대조군(mock-treated controls)을 유지한다. 처리군당 16개체의 생물학적 반복 식물을 사용한다.
- 접종 20일 후 뿌리와 지상부를 수확하십시오. 뿌리혹의 수를 수동으로 세고, 수확 직후 생체중을 기록하십시오.
- 조직을 다음 조건에서 건조하십시오. 65°C 항량에 도달할 때까지 건조합니다. 항량은 24시간 간격으로 건조 후 측정한 두 번의 연속적인 측정값의 차이가 다음 값 이하인 경우로 정의합니다. <0.01 g이며, 이후 건조 바이오매스를 기록한다.
- 결과를 평균값으로 표기하십시오. ± 표준 오차(SE). GraphPad Prism 버전 10.0을 사용하여 일원 분산 분석(one-way ANOVA)을 수행한 후 Tukey의 다중 비교 검정을 실시하였으며, P-값을 고려하여 < 0.05 통계적으로 유의함.
주의: 종자 살균, 발아, 접종 및 식물 성장 전 과정 동안 무균 상태를 유지하십시오.
주의: 차아염소산나트륨 및 살균제 용액을 취급할 때는 장갑과 보안경을 포함한 적절한 개인 보호 장비를 사용하십시오.
- 세균 접종원 준비
결과
본 프로토콜에서는 nodC 유전자좌를 타겟팅하여 M. ciceri CC1192에 적합한 CRISPR-Cas9 게놈 편집 기술을 적용하였습니다. 기능 상실을 유도하기 위해, nodC 코딩 서열의 5′ 근접 영역을 타겟팅하도록 sgRNA를 설계하였으며, 이를 통해 초기 코딩 영역 내에 DSB를 도입함으로써 인코딩된 단백질의 번역을 중단시켰습니다(그림 1A).
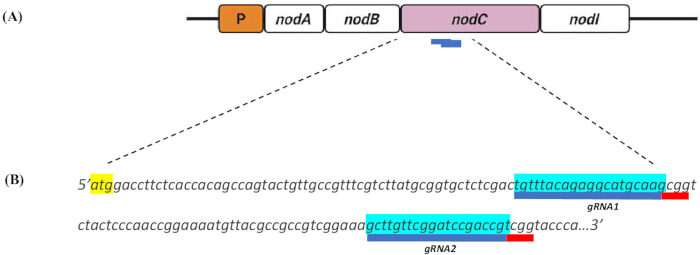
그림 1. Mesorhizobium ciceri의 nodC 유전자좌를 표적으로 하는 단일 가이드 RNA(sgRNA) 설계. (A) CRISPR-Cas9 매개 표적화를 위해 설계된 두 개의 20-bp sgRNA 위치를 보여주는 M. ciceri nodC 유전자좌의 모식도. sgRNA 표적 부위는 파란색으로 표시됨. (B) nodC 유전자좌를 표적으로 하는 sgRNA1 및 sgRNA2의 뉴클레오타이드 서열. 프로토스페이서 인접 모티프(PAM; 5′-NGG-3′)는 빨간색으로 표시되었으며, nodC 번역 개시 코돈(ATG)은 노란색으로 강조됨. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
5′-NGG-3′ PAM 서열의 바로 상류에서 두 개의 20 bp 표적 서열이 확인되었습니다(그림 1B). Hsu 등의 알고리즘19을 사용하여 이러한 후보 sgRNA를 in silico 분석한 결과, 특이성 점수가 100으로 나타났으며, 이는 M. ciceri 게놈 내에서 유의미한 오프타겟 상보성이 검출되지 않아 표적 특이성이 높을 것으로 예측됨을 나타냅니다. 선택된 sgRNA들의 예측 온타겟 효율 점수에서 약간의 차이가 관찰되었으며(표 3), 이를 바탕으로 후속 실험적 평가를 위한 가이드를 선택하였습니다.
| 표적 위치 (bp) | 가닥 | sgRNA 서열 (5′ 3′) | PAM | 특이성 점수 | 효율 점수 | |
| 77 | + | TGTTTACAGAGGCATGCAAG | CGG | 100 | 43.58 | |
| 139 | + | GCTTGTTCGGATCCGACCGT | TGG | 99.7 | 47.63 | |
표 3: Mesorhizobium ciceri의 nodC 유전자를 CRISPR-Cas9 매개로 편집하기 위해 설계된 후보 단일 가이드 RNA(sgRNA).후보 sgRNA는 Bradyrhizobium diazoefficiens USDA 110을 참조 게놈으로 하여 Benchling CRISPR Guide Design Tool을 통해 설계되었습니다. 예측된 특이성 및 온타겟 효율성 점수에 따라 가이드를 순위 매겼으며, nodC 번역 개시 코돈에 인접한 서열을 표적으로 하고 Streptococcus pyogenes Cas9 (SpCas9)에 필요한 NGG 프로토스페이서 인접 모티프(PAM)를 포함하는 가이드를 선택하였습니다.
추정 돌연변이체의 HDR 및 형광 기반 스크리닝을 용이하게 하기 위해, pUC18 클로닝 벡터를 사용하여 HDR 카세트를 조립하였다.그림 2). 그/그녀/이것 (문맥에 따라 적절한 지시어 선택) 녹색 형광 단백질(GFP) 리포터 카세트를 SacI 및 KpnI 제한효소 절단으로 pRJPaph-bjGFP에서 절제하여 선형화된 pUC18 백본에 연결하였다.그림 2A). 이후 ~로 형질전환한 후 E. coli, 청백 선별법(blue-white screening)을 통해 양성 추정 클론을 확인하였습니다. 다음의 통합 과정은 녹색 형광 단백질(gfp) pUC18 백본으로의 삽입 여부는 유전자 특이적 프라이머를 이용한 PCR 증폭으로 추가 검증하였으며, 양성 클론에서 예상되는 500 bp 크기의 앰플리콘이 생성되었다(그림 2A).
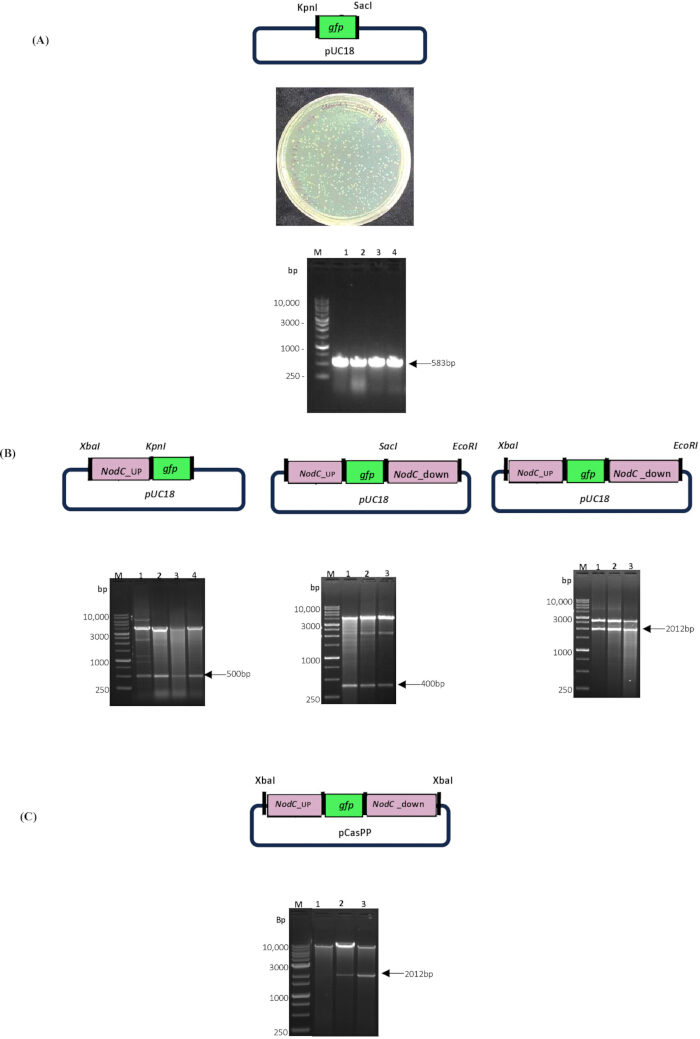
그림 2~을 위한 CRISPR-Cas9 상동성 유도 수복(HDR) 시스템 구축 nodC 파쇄 (A) pUC18-gfp 중간 플라스미드의 구축 및 검증. 상단 패널은 녹색 형광 단백질(green fluorescent protein)의 삽입으로 생성된 pUC18-gfp의 플라스미드 지도를 보여줍니다.녹색 형광 단백질) 카세트를 pUC18 백본에 삽입하였다. 중간 패널은 블루-화이트 스크리닝 후의 대표적인 콜로니들을 보여준다. 하단 패널은 BjGFP_BP_F1 및 BjGFP_BP_R2 프라이머 쌍을 이용한 콜로니 중합효소 연쇄 반응(PCR) 검증 결과를 보여준다. (B) pUC18 백본 내 HDR 템플릿의 순차적 조립. 플라스미드 맵과 제한 효소 절단 분석을 통해 상위 상동 팔(UHA), 하위 상동 팔(DHA) 및 전체 UHA-gfp-DHA HDR 카세트의 삽입을 확인한다. (C) pCasPP CRISPR-Cas9 벡터로의 UHA-gfp-DHA HDR 카세트 클로닝 및 검증. 상단 패널은 최종 pCasPP-HDR 플라스미드 맵을 나타내며, 하단 패널은 HDR 카세트 삽입을 확인하는 제한효소 절단 결과를 보여준다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
이후 HDR 컨스트럭트는 다음과 같은 도입을 통해 조립되었습니다. nodC ~를 측면으로 둘러싼 상동 팔(homology arms) 녹색 형광 단백질 카세트. 예측된 Cas9 절단 부위 인접하게 위치한 500 bp의 UHA와 400 bp의 DHA를 제한효소 처리 및 라이게이션을 통해 pUC18-gfp 구축물에 순차적으로 클로닝하였다(그림 2B). UHA-gfp-DHA 카세트의 조립은 제한효소 절단 분석을 통해 확인되었으며, 분석 결과 예상된 2012 bp 크기의 단편이 생성되었다 (그림 2B). 그 후 완성된 HDR 카세트를 광범위 숙주 범위 CRISPR 벡터인 pCasPP에 서브클로닝하였습니다(그림 2C). 제한 효소 절단 분석을 통해 최종 제작물의 무결성과 게놈 편집 전달 벡터의 성공적인 조립을 확인하였다. M. ciceri (그림 2C).
pCasPP-gRNA-HDR 컨스트럭트를 M. ciceri에 전달하기 위해 공여체 E. coli S17-1λpir와 수용체 M. ciceri 균주 간의 양친 교배를 수행하였습니다(그림 3A). 그림 3B는 nod 오페론의 구성과 HDR 템플릿을 이용한 상동 재조합을 통해 nodC 유전자좌가 gfp 카세트로 대체될 것으로 예측되는 과정을 보여줍니다. 양친 교배 후, GFP 형광 스크리닝을 통해 접합 전이체 콜로니를 일차적으로 식별하였습니다(그림 3B 및 3C). gRNA2를 사용했을 때 회수된 콜로니의 80% 이상이 GFP 형광을 나타냈으며, gRNA1 도입 후에는 콜로니의 65% 이상이 형광을 보였습니다(그림 3C). 형광 스크리닝만으로는 플라스미드 유래의 GFP 발현과 성공적인 게놈 통합을 구별할 수 없으므로, 리포터 카세트가 해당 유전자좌에 특이적으로 삽입되었는지 확인하기 위해 후속 분자 생물학적 검증을 수행하였습니다.
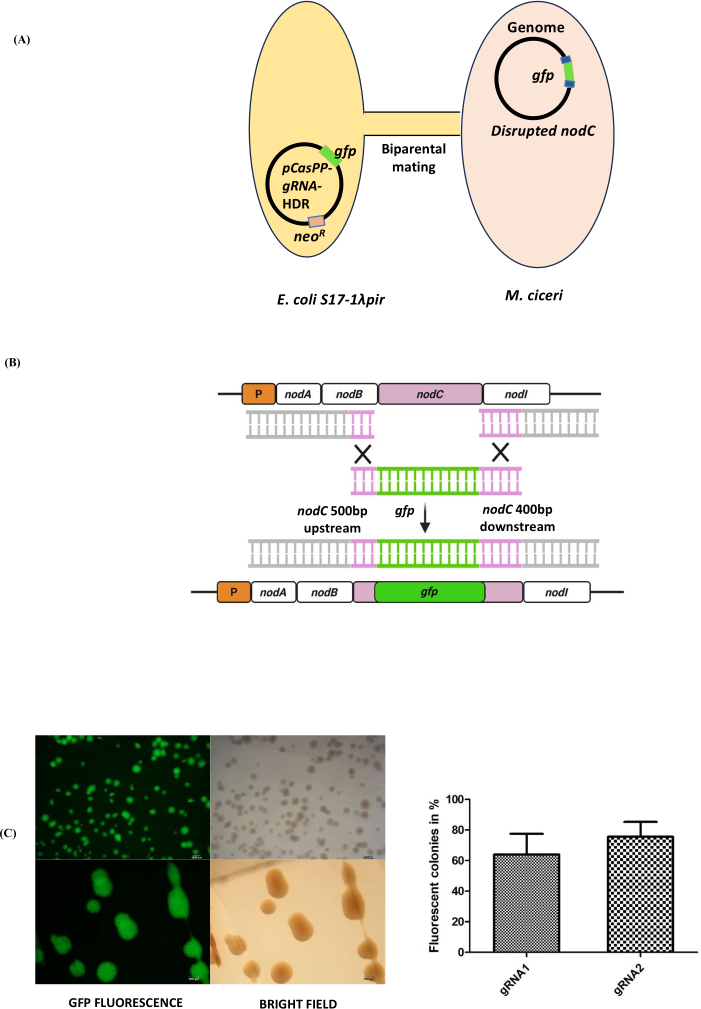
그림 3. Mesorhizobium ciceri에서 CRISPR-Cas9 매개 nodC 궤적(locus)의 파괴. (A) Escherichia coli S17-1λpir 공여 세포에서 M. ciceri 수용 세포로 pCasPP-gRNA-HDR 컨스트럭트를 전달하기 위해 사용된 양친 교배(biparental mating)의 모식도. (B) CRISPR-Cas9 절단 후 상동 재조합 수선(HDR) 매개를 통해 nodC 궤적을 gfp 카세트로 치환하는 과정을 나타낸 도식. HDR 템플릿은 gfp 카세트를 중심으로 상류 약 500 bp 및 하류 약 400 bp의 상동 팔(homology arms)을 포함하고 있다. (C) 접합 전이된 M. ciceri 콜로니의 형광 기반 스크리닝. GFP 양성 콜로니의 대표적인 형광 및 명시야 입체현미경 이미지가 sgRNA1 또는 sgRNA2를 포함하는 컨스트럭트를 이용한 양친 교배 후 회수된 형광 전이체의 백분율과 함께 제시되어 있다. 오차 막대는 표준 편차를 나타낸다. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
~의 통합을 검증하기 위해 녹색 형광 단백질(GFP) ~에 있는 카세트 nodC 궤적, 대표적인 GFP 양성 콜로니를 대상으로 PCR 분석을 수행하였다. 다음 영역을 포함하는 게놈 부위의 증폭은 nodB 및 nodC 편집된 클론에서는 리포터 카세트의 삽입과 일치하는 1511 bp 조각이 생성된 반면, 야생형(WT) 균주에서는 430 bp 앰플리콘이 생성되었다(그림 4A). 다음을 이용한 PCR 증폭 녹색 형광 단백질 (GFP)-특이적이며 nodC-측면 프라이머(flanking primers)를 사용하여 편집된 클론에서 997bp의 뚜렷한 단편이 생성된 반면, WT 대조군에서는 증폭이 검출되지 않아 유전자좌 특이적 삽입(locus-specific insertion)이 확인되었다. 리포터 카세트의 방향은 생거 시퀀싱(Sanger sequencing)을 통해 확인하였다. 또한, 편집된 균주에서 GFP 발현을 RT-qPCR로 평가한 결과, WT 균주에 비해 GFP 전사체 축적이 증가한 것으로 나타났다.그림 4B). 발현 값은 2를 사용하여 계산되었습니다.−ΔΔ임계 주기 (Ct) 방법을 사용하였으며, WT 균주를 대조군으로 하여 참조 16s 유전자로 정규화하였다. 데이터는 평균값을 나타낸다. ± 3회 생물학적 반복 실험의 표준편차(n = 3). 통계적 유의성은 일원분산분석(one-way ANOVA) 후 WT 대조군에 대한 Dunnett 검정으로 결정하였다.
본 연구의 현재 한계점은 기저 재조합 계수를 설정하기 위한 공백 gRNA pCasPP-HDR과 같은 대조군 벡터가 없다는 점입니다. 향후 연구에서는 이러한 대조군을 포함해야 합니다.
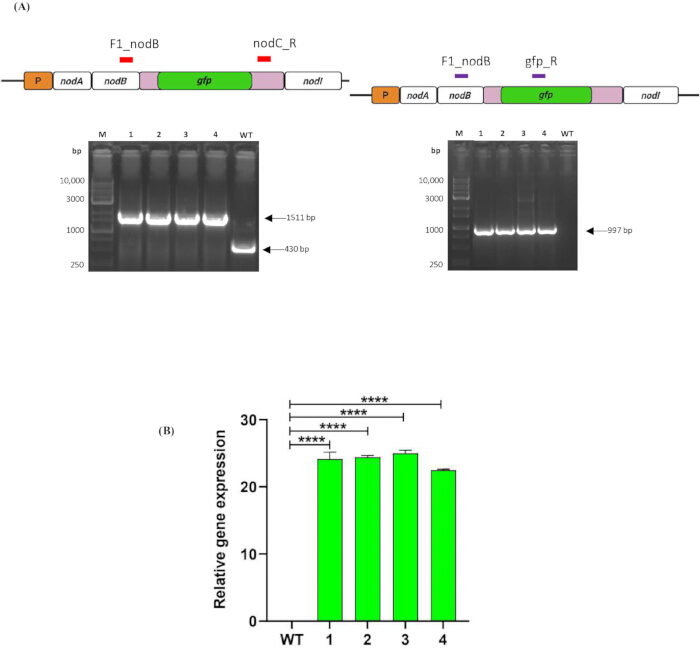
그림 4. ΔnodC Mesorhizobium ciceri 돌연변이체의 분자적 검증. (A) PCR 기반의 nodC 결손 확인. 왼쪽 패널은 F1_nodB 및 nodC_R 프라이머 쌍을 이용한 증폭 결과를 보여준다. Lane M, DNA 래더; lane 1–4, ΔnodC M. ciceri 돌연변이체; lane WT, 야생형 M. ciceri. 오른쪽 패널은 F1_nodB 및 gfp_R 프라이머 쌍을 이용한 증폭 결과를 보여준다. Lane M, DNA 래더; lane 1–4, ΔnodC M. ciceri 돌연변이체; lane WT, 야생형 M. ciceri. 예상 앰플리콘 크기가 표시되어 있다. (B) 역전사 정량 PCR(RT-qPCR)로 측정된 ΔnodC M. ciceri 돌연변이체의 상대적 녹색 형광 단백질(GFP) 발현량. 유전자 발현은 M. ciceri 16S 리보솜 RNA(16S rRNA) 참조 유전자로 표준화하였으며, 2^−ΔΔCt 방법을 사용하여 야생형(WT) 대조군에 대한 상대적 값으로 나타내었다. 오차 막대는 표준 편차를 나타낸다. 통계적 유의성은 WT 대조군을 기준으로 결정되었다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
nodC 결손의 생물학적 영향은 병아리콩 감염 분석을 통해 평가되었습니다. WT M. ciceri를 접종한 식물은 육안으로 확인 가능한 뿌리 결절을 형성한 반면, ΔnodC M. ciceri를 접종한 식물은 결절 형성이 현저히 감소하거나 나타나지 않았습니다(Figure 5A). 접종하지 않은 대조군 식물은 결절이 형성되지 않은 상태로 유지되어, 무균 실험 조건이 유지되었음을 뒷받침했습니다(Figure 5A). 식물 성장 파라미터에 대한 정량 분석 결과, 뿌리 길이, 뿌리 생체중, 뿌리 건조중, 줄기 길이, 줄기 생체중, 줄기 건조중 및 결절 수를 포함하여 WT 및 ΔnodC M. ciceri 접종 식물 간의 차이가 추가로 입증되었습니다(Figure 5B). WT 접종 식물은 ΔnodC M. ciceri 접종 식물 및 무접종 대조군 식물에 비해 더 많은 결절 수와 개선된 성장 관련 파라미터를 나타냈습니다. 이러한 결과는 nodC 관련 결절 형성 기능의 결손과 일치하며, M. ciceri의 기능 유전학 연구에 있어 이 CRISPR-Cas9 기반 워크플로우의 적용 가능성을 뒷받침합니다. 처리군 간의 차이를 비교하기 위해 정량적 식물 표현형 데이터를 평가하였습니다. 분석에는 총 90개의 생물학적 반복구가 포함되었습니다(처리군당 n = 30개 식물). 데이터는 평균 ± SD로 표시되었습니다. 통계적 유의성은 일원 분산 분석(one-way ANOVA) 후 Tukey의 사후 다중 비교 검정을 사용하여 평가하였습니다. P < 0.05일 때 통계적으로 유의미한 차이가 있는 것으로 간주하였습니다.
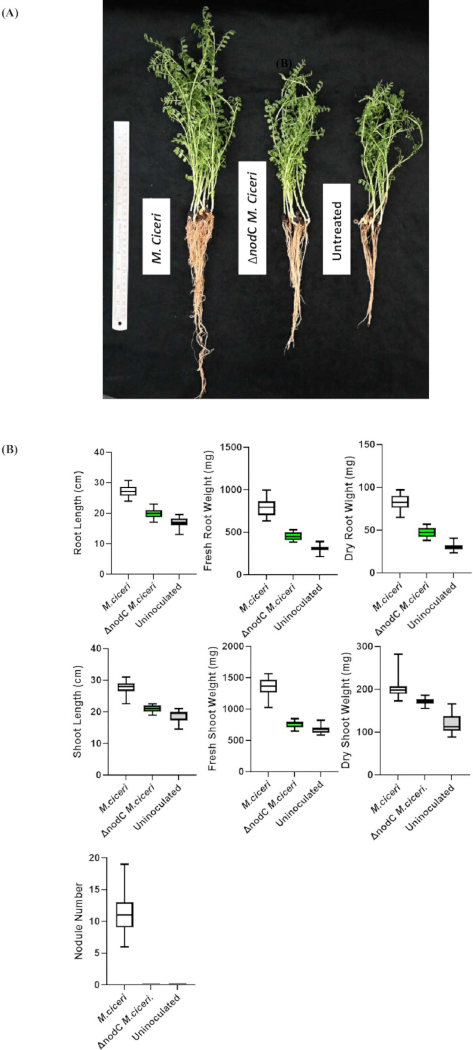
그림 5. 병아리콩 감염 분석을 이용한 ΔnodC Mesorhizobium ciceri 돌연변이체의 기능적 검증. (A) 야생형 M. ciceri, ΔnodC M. ciceri 또는 접종하지 않은 대조군을 접종하고 20일이 경과한 대표적인 병아리콩 (Cicer arietinum) 식물. (B) 뿌리 길이, 뿌리 생중량, 뿌리 건중량, 지상부 길이, 지상부 생중량, 지상부 건중량 및 뿌리혹 수를 포함한 식물 성장 및 뿌리혹 형성 파라미터의 정량 분석. 데이터는 야생형 M. ciceri, ΔnodC M. ciceri 또는 접종하지 않은 대조군을 접종한 식물에 대해 제시되었다. 오차 막대는 표준 편차를 나타낸다. 통계적 유의성은 일원 분산 분석(ANOVA) 후 Tukey의 다중 비교 검정을 통해 결정되었다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
보충 파일 1. 화학적 컴피턴스 Escherichia coli 세포의 조제 및 검증을 위한 상세 프로토콜.이 보충 파일은 박테리아 배양 준비, 컴피턴스 유도, 세포 수확, CaCl₂-글리세롤 버퍼를 이용한 세척, 분주, 냉동 보존 및 형질전환 효율 테스트를 통한 검증을 포함하여, 화학적 컴피턴스 Escherichia coli DH5α 및 E. coli S17-1λpir 세포를 조제하고 검증하는 전체 절차를 제공합니다. 또한 중요한 품질 관리 조치, 보관 권장 사항 및 컴피턴스 수용 기준이 포함되어 있습니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 2. 상동 재조합 수선(HDR) 템플릿 구축 및 CRISPR-Cas9 게놈 편집 벡터 조립을 위한 상세 프로토콜.이 보충 파일은 녹색 형광 단백질(GFP) 카세트의 절제, pUC18-gfp 중간 플라스미드 구축, 상류 및 하류 상동 암(homology arms)의 증폭 및 클로닝, 완전한 상동 재조합 수선(HDR) 템플릿의 조립, pCasPP-가이드 RNA(gRNA) 벡터 준비, CRISPR-Cas9 플라스미드 내 HDR 템플릿 삽입, 형광 기반 클론 스크리닝, 그리고 제한효소 분석 및 Sanger 시퀀싱을 통한 재조합 플라스미드의 검증에 대한 상세 절차를 제공합니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 3. 양친 교배 및 GFP 태그가 부착된 Mesorhizobium ciceri 접합전이체의 생성에 관한 상세 프로토콜.이 보충 파일에서는 공여균 및 수용균주 준비, 막 여과 양친 교배, 접합전이체의 회복 및 항생제 선택, 플라스미드 제거 절차, 재조합 콜로니의 형광 기반 스크리닝, 게놈 편집 균주의 분자적 확인, 그리고 확인된 GFP 양성 M. ciceri 접합전이체의 단기 및 장기 보존 방법을 설명합니다. 상세한 배양 조건, 교배 매개변수 및 선택 절차가 제공됩니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
~에서의 CRISPR-Cas9 게놈 편집 시스템 구축 M. ciceri 농업적으로 중요한 이 질소 고정 공생균의 유전적 조작에 있어 주요한 기술적 한계점을 해결합니다. 다음을 파괴함으로써 nodC a를 이용한 유전자좌(locus) 녹색 형광 단백질 리포터 및 HDR(상동 재조합 수선)을 통해, 이 워크플로우는 다음과 같은 표적 게놈 편집을 위한 형광 보조 프레임워크를 제공합니다. *M. ciceri*.
뿌리혹박테리아의 전통적인 유전 조작 방식은 주로 Tn5 기반의 무작위 돌연변이 유발이나 sacB 매개 대립유전자 교환에 의존해 왔습니다19,26,27. 이러한 방식들은 여전히 가치가 있지만, 노동 집약적이고 여러 차례의 역선택 과정이 필요한 경우가 많으며, 게놈 내에 항생제 내성 마커가 남아 후속 편집 과정을 복잡하게 만들 수 있습니다. 이에 반해, CRISPR-Cas9 매개 게놈 편집은 게놈 공학을 위한 보다 정밀하고 효율적인 대안을 제공합니다. 최근 연구에서는 Cas9 관련 독성을 줄이기 위해 S. meliloti에서 CRISPR 매개 염기 편집 및 Cas12e 기반 시스템이 보고되었으며12,13, R. etli에서는 dCas9 매개 전사 억제가 탐구되었습니다11. 저희가 알기로, 본 연구는 M. ciceri에서 CRISPR-Cas9 매개 염색체 파괴를 적용한 첫 번째 사례 중 하나입니다. 이 프로토콜은 sgRNA 가이드 타겟팅, 양부모 플라스미드 전달 및 HDR 매개 재조합을 통합하여 특정 유전자좌를 편집합니다. 또한 HDR 카세트 내에 gfp 리포터를 통합함으로써 편집된 것으로 추정되는 콜로니를 형광 기반으로 빠르게 스크리닝할 수 있어, 후속 분자 생물학적 검증이 필요한 콜로니 수를 줄일 수 있습니다.
워크플로우의 성공적인 구현을 위해 여러 요인이 중요하게 작용하였습니다. 예측 특이성이 높은 sgRNA를 선택함으로써 M. ciceri 게놈 내의 잠재적인 오프타겟 효과를 최소화하였으며, 상동성 암(homology arm)의 무결성을 유지하여 HDR 매개 재조합 효율을 높였습니다. 또한, 양친 교배(biparental mating) 중 공여자 및 수용자의 성장 조건을 최적화하여 트랜스컨쥬전트(transconjugants)의 회수율을 개선하였습니다. 형광 기반 스크리닝을 통해 추정 돌연변이체를 신속하게 식별할 수 있었으나, 리포터 카세트의 로커스 특이적 통합을 확인하기 위해서는 PCR 및 Sanger 시퀀싱을 이용한 분자적 검증이 여전히 필요하였습니다. 향후 연구에서는 빈 gRNA pCasPP-HDR 벡터 대조군을 활용하여 기저 재조합 계수를 정량화할 수 있을 것입니다.
방법론적 발전을 넘어, 이 플랫폼은 병아리콩 관련 리조비아의 공생 신호 전달 및 기능 유전체학을 조사하는 향후 연구를 지원할 수 있습니다28. 병아리콩(Cicer arietinum L.)은 전 세계적으로 중요한 콩과 작물이며 지속 가능한 농업 시스템의 주요 기여 요소입니다29,30. 본 연구에서 생성된 ΔnodC M. ciceri 균주는 숙주-미생물 호환성 및 뿌리혹 형성 관련 신호 전달 경로를 조사하는 데 잠재적으로 유용한 유전적 배경을 제공합니다. 이전 연구들은 sRNA가 초기 뿌리혹 공생 과정에서 조절 이펙터로 기능한다는 점을 시사했습니다31. 따라서 여기서 설명한 뿌리혹 형성 결핍 ΔnodC M. ciceri 균주는 근권 통신 및 질소 고정 공생의 기저에 있는 분자적 메커니즘에 초점을 맞춘 향후 연구를 촉진할 수 있습니다.
공개 사항
저자들은 경쟁 관계에 있는 재정적 이익이나 이해 상충이 없음을 선언합니다.
감사의 글
본 연구는 Nandita Pasari 박사를 대상으로 한 생명공학부(DBT)-MK Bhan Grant HRD-16016/15/2023-AFS-DBT의 지원을 받았습니다. 또한, 본 연구는 인도 뉴델리에 위치한 국립식물유전체연구소(National Institute of Plant Genome Research)에서 Senjuti Sinharoy 박사에게 제공한 핵심 연구비(Core Grant)의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 아가로스 | 제네틱스 | PG-40005 | 겔 전기영동 |
| 알루미늄 호일 | 롤리아’s | GF83048115 | 일반 실험실 사용 |
| 세균용 한천 배지 | HiMedia | GRM026 | 배지 조제 |
| Benchling CRISPR 가이드 설계 플랫폼 | Benchling | 입력된 텍스트가 없습니다. 번역할 내용을 제공해 주시기 바랍니다. | 가이드 RNA 설계 |
| 붕산 | HiMedia | PCT0102 | 맥나이트’용액 조제 |
| 붕규산 유리 삼각 플라스크 | 시그마 | CLS5100500 | 배양 준비 |
| 붕규산 유리관 | 시그마 | DWK73500-1075 | 배양 준비 |
| 염화칼슘 이수화물 | HiMedia | MB034 | 수용성 세포 제조 |
| 황산칼슘 이수화물 | HiMedia | GRM328 | 맥나이트’용액 조제 |
| 카르베니실린 이나트륨 | Duchefa Biochemie | DUC-C0109.005-18 | 사용처 100 µg/mL |
| cDNA 합성 키트 | Thermo Fisher Scientific | AB1543A | cDNA 합성 |
| 랩 (Cling wrap) | 골관절염 | 10954049 | 일반 실험실 용도 |
| 클로닝 키트/T4 DNA 연결효소 | Thermo Fisher Scientific | K1422 | 결합 반응 |
| 콩고 레드 | HiMedia | 573-58-0 | 미생물 배양 작업 |
| 황산구리(II) 오수화물 | HiMedia | PCT0104 | 맥나이트’용액 제조 |
| 배양 시험관 | Borosil | 9800U08 | 1차 세균 배양; 15 cm × 2.5 cm |
| 디지털 pH 미터 | Eutech Instruments | EC pH 튜터 DS | pH 조절 |
| 인산이칼륨 | HiMedia | TC596M | YMB 조제 |
| DNA 래더 | BIO-HELIX | DM015-R500 | 겔 전기영동 |
| DNase 제거 키트 | Invitrogen | AM1907 | 분리된 RNA로부터의 DNA 제거 |
| dNTP 믹스 | Thermo Scientific | R0181 | PCR 증폭 |
| 에탄올 | Sigma-Aldrich | 1.00983.0511 | 75% 농도로 사용됨 |
| 에티듐 브로마이드 | Sigma-Aldrich | E1510 | DNA 겔 염색 |
| FastAP 열민감성 알칼리성 인산분해효소 | Thermo Fisher Scientific | EF0651 | 클로닝 과정 중 벡터의 탈인산화 |
| FastDigest 완충액 | Thermo Fisher Scientific | B64 | 제한효소 절단 |
| 무수 염화철(III) | HiMedia | TC583 | 맥나이트’용액 조제 |
| 형광 실체 현미경 | Nikon | SMZ25 | GFP 스크리닝 |
| 살균제, Bavistin | 결정형 작물 보호제 | Bavistin Carbendazim 50% WP | 종자 처리 |
| 겔 추출 키트 | QIAGEN | 28704 | DNA 정제 |
| 글리세롤 | Thermo Fisher Scientific | Q24505 | 컴피턴트 세포/글리세롤 스탁 |
| 오비탈 쉐이커가 장착된 배양 배양기 | MRC | LOM-150 | 세균 배양 |
| 실험용 장갑 | Kimtech | 97612 | 개인 보호구 |
| HEPES | HiMedia | MB016 | 올리고뉴클레오타이드 어닐링 |
| IPTG | G Biosciences | RC1113D | 청백 선별법 |
| 층류 작업대 | 바이오링크 | BL-H1300 | 무균 취급 |
| LB 한천 배지 | HiMedia | M1151 | 세균 배양 플레이트 |
| LB 배지 | HiMedia | G1245 | 세균 배양 |
| 황산마그네슘 | HiMedia | GRM1281-500G | YMB 제조 |
| 황산마그네슘 칠수화물 | HiMedia | PCT0008 | McKnight’용액 조제 |
| 황산망간(II) 사수화물 | Sigma-Aldrich | M3634 | 맥나이트’용액 제조 |
| 만니톨 | HiMedia | MB198 | YMB 조제 |
| 맥나이트’용액 | 실험실 조제 | 제공된 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 식물 배양액 |
| 마이크로 팁, 0.2–10 µL | Tarsons | 521000 | 액체 핸들링 |
| 마이크로 팁, 2–200 µL | Tarsons | 521010 | 액체 핸들링 |
| 마이크로 팁, 200–1000 µL | Tarsons | 521020X | 액체 핸들링 |
| 마이크로원심분리관, 0.5 mL | Tarsons | 500000 | 시료 처리 |
| 마이크로원심분리관, 1.5 mL | Tarsons | 500010 | 시료 처리 |
| 마이크로원심분리관, 2.0 mL | Tarsons | 500020 | 시료 처리 |
| 몰리브덴산 | Sigma-Aldrich | 232084 | 맥나이트’용액 조제 |
| NanoDrop 분광광도계 | Thermo Fisher Scientific | 13-400-519 | DNA/RNA 정량 분석 |
| 네오마이신 | Duchefa Biochemie | M0135 | 사용된 위치 50 µg/mL |
| 뉴클레아제 프리 워터 | HiMedia | ML064-100ML | 분자생물학적 용도 |
| PCR 마스터 믹스 | Thermo Fisher Scientific | K0171 | 2× 마스터 믹스 |
| PCR 튜브 스트립, 0.2 mL | Tarsons | 610040 | PCR 설정 |
| 페트리 접시, 90 mm | 다능성 줄기세포 | 2041 | 한천 배지 플레이트 |
| 피펫, 0.1–2.5 µL | Eppendorf | N10178M | 액체 핸들링 |
| 피펫, 0.5–10 µL | Eppendorf | H40069L | 액체 핸들링 |
| 피펫, 2–20 µL | Eppendorf | H30046M | 액체 핸들링 |
| 피펫, 10–100 µL | Eppendorf | I00395M | 액체 핸들링 |
| 피펫, 20–200 µL | Eppendorf | M38186M | 액체 핸들링 |
| 피펫, 100–1000 µL | Eppendorf | N20610M | 액체 핸들링 |
| 플라스미드 DNA 추출 키트 | QIAGEN | 12143 | 플라스미드 분리 |
| 염화칼륨 | HiMedia | TC010 | 맥나이트’용액 조제 |
| 무수 인산이수소칼륨 | HiMedia | TC011M | 맥나이트’용액 조제 |
| PVDF 멤브레인 필터, 0.22 µm, 47 mm | MilliporeSigma | GVWP04700 | 양친 교배 |
| 정량 실시간 PCR 기기 | Bio-Rad | CFX96 | 역전사 정량 PCR (RT-qPCR) |
| 냉장 벤치탑 원심분리기 | Eppendorf | 04-987-373 | 세포 수확 |
| 제한 효소, BbsI | Thermo Fisher Scientific | ER1011 | gRNA 클로닝 |
| 제한 효소, EcoRI | Thermo Fisher Scientific | FD0274 | 클로닝 |
| 제한 효소, KpnI | Thermo Fisher Scientific | FD0524 | 클로닝 |
| 제한 효소, SacI | Thermo Fisher Scientific | FD1133 | 클로닝 |
| 제한 효소, XbaI | Thermo Fisher Scientific | FD0684 | 클로닝 |
| RNase-free DNase | QIAGEN | 79254 | RNA 정제 |
| 모래 | 람 수라트 | 모래 | 식물 성장 기질 |
| 시퀀서 | Applied Biosystems | ABI3730xl DNA 분석기 | 생거 서열 분석 |
| SOC 배지 | 실험실 조제 | 제공된 소스 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 형질전환 회복 |
| 염화나트륨 | HiMedia | TC046 | 배지 준비 |
| 수산화나트륨 | HiMedia | PCT1325 | HEPES pH 조절 |
| 멸균 수술용 메스 날 | 메디케어 외과 | 16020 | 겔 절단/조직 처리 |
| 멸균 주사기 | HMD Dispovan | 바늘 없는 10ml 주사기 | 멸균 여과 |
| 멸균 시린지 필터, 0.22 µm | Merck Millex Durapore | 12766842 | 여과 멸균 |
| SYBR Green 마스터 믹스 | New England Biolabs | M3003E | 실시간 역전사 정량 PCR (RT-qPCR) |
| 테트라사이클린 | Duchefa Biochemie | T01050 | 사용 위치 5 µg/mL |
| 열 순환기 | Applied Biosystems | A24811 | PCR 증폭 |
| 조직 롤 | 롤리아’s | 07AAECR4885K1ZT | 일반 실험실 사용 |
| TRIzol 시약 | Invitrogen | 15596026 | RNA 분리 |
| UV 투과 조명기 | Analytik Jena | TW-43 | 겔 시각화 |
| UV-Vis 분광광도계 | Eppendorf | D30 | OD600 측정 |
| 가시광선 큐벳 | Eppendorf | 30079345 | OD600 측정 |
| 볼텍스 믹서 | 중화 | iSWIX-VT | 시료 혼합 |
| X-gal | G Biosciences | RC1233 | 청백 선별법 |
| 효모 추출물 | HiMedia | RM668-500G | 배지 준비 |
| 황산아연 칠수화물 | Sigma-Aldrich | Z0251 | 맥나이트’용액 조제 |
참고문헌
- Doudna JA, Charpentier E. The new frontier of genome engineering with CRISPR-Cas9. Science. 2014;346(6213):1258096.
- Jiang W, Bikard D, Cox D, Zhang F, Marraffini LA. RNA-guided editing of bacterial genomes using CRISPR-Cas systems. Nature biotechnology. 2013;31(3):233-9.
- Bertrand C, Thibessard A, Bruand C, Lecointe F, Leblond P. Bacterial NHEJ: a never ending story. Molecular microbiology. 2019;111(5):1139-51.
- Loureiro A, da Silva GJ. Crispr-cas: Converting a bacterial defence mechanism into a state-of-the-art genetic manipulation tool. Antibiotics. 2019;8(1):18.
- Altenbuchner J. Editing of the Bacillus subtilis genome by the CRISPR-Cas9 system. Applied and environmental microbiology. 2016;82(17):5421-7.
- Wang Y, et al. Bacterial genome editing with CRISPR-Cas9: deletion, integration, single nucleotide modification, and desirable “clean” mutant selection in Clostridium beijerinckii as an example. ACS synthetic biology. 2016;5(7):721-32.
- Oh J-H, van Pijkeren J-P. CRISPR–Cas9-assisted recombineering in Lactobacillus reuteri. Nucleic acids research. 2014;42(17):e131-e.
- Cobb RE, Wang Y, Zhao H. High-efficiency multiplex genome editing of Streptomyces species using an engineered CRISPR/Cas system. ACS synthetic biology. 2015;4(6):723-8.
- Wanjofu EI, et al. Nodulation and growth promotion of chickpea by Mesorhizobium isolates from diverse sources. Microorganisms. 2022;10(12):2467.
- Haskett T, et al. Complete genome sequence of Mesorhizobium ciceri strain CC1192, an efficient nitrogen-fixing microsymbiont of Cicer arietinum. Genome Announcements. 2016;4(3):10.1128/genomea. 00516-16.
- Bellahsen O, Díaz-Méndez R, Romero D. Genomic engineering in Rhizobium etli: implementation and evaluation of systems based on dCas9. Frontiers in Microbiology. 2025;16:1604430.
- Liu G, et al. An efficient CRISPR/Cas12e system for genome editing in Sinorhizobium meliloti. ACS Synthetic Biology. 2023;12(3):898-903.
- Wang L, Xiao Y, Wei X, Pan J, Duanmu D. Highly efficient CRISPR-mediated base editing in Sinorhizobium meliloti. Frontiers in Microbiology. 2021;12:686008.
- Schäfer A, et al. Small mobilizable multi-purpose cloning vectors derived from the Escherichia coli plasmids pK18 and pK19: selection of defined deletions in the chromosome of Corynebacterium glutamicum. Gene. 1994;145(1):69-73.
- Rütering M, et al. Tailor-made exopolysaccharides—CRISPR-Cas9 mediated genome editing in Paenibacillus polymyxa. Synthetic Biology. 2017;2(1):ysx007.
- Ledermann R, Bartsch I, Remus-Emsermann MN, Vorholt JA, Fischer H-M. Stable fluorescent and enzymatic tagging of Bradyrhizobium diazoefficiens to analyze host-plant infection and colonization. Molecular Plant-Microbe Interactions. 2015;28(9):959-67.
- Göttfert M. Regulation and function of rhizobial nodulation genes. FEMS microbiology reviews. 1993;10(1-2):39-63.
- Kant C, Pradhan S, Bhatia S. Dissecting the root nodule transcriptome of chickpea (Cicer arietinum L.). PLoS One. 2016;11(6):e0157908.
- Hsu PD, et al. DNA targeting specificity of RNA-guided Cas9 nucleases. Nature biotechnology. 2013;31(9):827-32.
- Doench JG, et al. Optimized sgRNA design to maximize activity and minimize off-target effects of CRISPR-Cas9. Nature biotechnology. 2016;34(2):184-91.
- Norrander J, Kempe T, Messing J. Construction of improved M13 vectors using oligodeoxynucleotide-directed mutagenesis. Gene. 1983;26(1):101-6.
- Simon R, Priefer U, Pühler A. A broad host range mobilization system for in vivo genetic engineering: transposon mutagenesis in gram negative bacteria. Bio/technology. 1983;1(9):784-91.
- Hanahan D, Jessee J, Bloom FR. [4] Plasmid transformation of Escherichia coli and other bacteria. Methods in enzymology. 1991;204:63-113.
- Alexandre A, et al. Natural populations of chickpea rhizobia evaluated by antibiotic resistance profiles and molecular methods. Microbial Ecology. 2006:128-36.
- Weerakkody LR, et al. A rapid, inexpensive and effective method for the efficient isolation of genomic DNA from Gram-negative bacteria. Molecular Genetics and Genomics. 2024;299(1):26.
- Selbitschka W, Niemann S, Pühler A. Construction of gene replacement vectors for Gram− bacteria using a genetically modified sacRB gene as a positve selection marker. Applied microbiology and biotechnology. 1993;38(5):615-8.
- Yadav A, Singh RP, Singh AL, Singh M. Identification of genes involved in phosphate solubilization and drought stress tolerance in chickpea symbiont Mesorhizobium ciceri Ca181. Archives of microbiology. 2021;203(3):1167-74.
- Dicenzo GC, et al. Multidisciplinary approaches for studying rhizobium–legume symbioses. Canadian Journal of Microbiology. 2019;65(1):1-33.
- Calia C, et al. A bibliometric analysis of chickpea agronomic practices in the world during 45 years of scientific research. Legume Science. 2024;6(1):e219.
- Sandhu J, Tripathi S, Chaturvedi S. Chickpea nutritional status and value chain for sustainable development. Sustainable food value chain development: Perspectives from developing and emerging economies: Springer; 2023. p. 175-83.
- Ren B, Wang X, Duan J, Ma J. Rhizobial tRNA-derived small RNAs are signal molecules regulating plant nodulation. Science. 2019;365(6456):919-22.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공