이 프로토콜은 생 체 내 전자 자기 공명(분광법으로 멜라닌 라디칼을 검출 및 분석)하여 제브라피시 이종이식에서 흑색종 발생을 평가하는 것을 목표로 하며, 전임상 흑색종 연구 및 치료 평가에 새로운 접근법을 제시합니다.
이 논문에서
요약
초록
이 프로토콜은 제브라피시(Danio rerio) 흑색종 이종이식 모델에서 멜라닌 관련 라디컬 역학을 모니터링하기 위한 X-밴드(9.5 GHz) 전자 참자성 공명 분광법의 새로운 생체 내 적용을 제시합니다. 이 방법의 목표는 생리학적으로 중요한 척추동물 모델에서 배아 발달 중 멜라닌 관련 산화환원 변화와 종양-숙주 상호작용을 직접적이고 라벨 없이 정량적으로 평가할 수 있도록 하는 것입니다.
멜라닌의 내재적 패러자성 특성을 활용하여 이 접근법은 기존 형광 기반 영상으로는 얻을 수 없는 보완적인 생화학적 정보를 제공합니다. 중요한 점은, 검출된 전자 패러자기 공명 신호가 멜라닌 고분자의 산화환원 활성 비율을 반영하여, 전체 색소 풍부도를 직접 측정하는 것이 아니라 산화환원 민감성 판독값 역할을 한다는 것입니다.
방법적 성능은 색소가 있는 야생형 배아에서 멜라닌 관련 라디칼의 선택적 검출, 알비노 대조군에서 신호 부재, 독립적인 생물학적 복제 간 정규화된 전자 자기 공명 신호의 통계적으로 유의미한 발달 변화, 그리고 대체 샘플 홀더와 냉동 샘플을 사용한 유사한 결과를 통해 검증되었습니다.
X-밴드 전자 패러자기 공명 분광법과 제브라피시 이종이식 모델을 결합함으로써, 이 프로토콜은 전임상 흑색종 연구, 산화환원 생물학 연구, 흑색생성 조절 중재 평가를 위한 확장 가능하고 윤리적으로 유리하며 이전 가능한 플랫폼을 제공합니다.
서론
본 연구의 전반적인 목표는 X-밴드(9.5 GHz) 전자자기 공명 분광법과 결합된 제브라피시(Danio rerio) 배아 이종이식 모델에서 멜라닌 라디칼을 검출하고 정량하는 신뢰할 수 있는 생체 내 방법을 개발하고 검증하는 것입니다. 이 접근법은 흑색종 발생 및 약리학적 개입에 대한 반응으로 멜라닌 관련 산화환원 과정을 직접적이고 정량적으로 평가할 수 있도록 하는 것을 목표로 합니다.
멜라닌은 다양한 생물체에서 피부, 모발, 눈의 색소침착을 담당하는 이질적인 생체 고분자 그룹입니다. 유멜라닌과 페오메라닌은 생물학에서 뚜렷한 역할을 합니다. 유멜라닌은 항산화 및 광보호 특성을 보이는 반면, 페오멜라닌은 특히 자외선 노출 하에서 활성 산소종(ROS) 생성을 촉진할 수 있습니다 1,2,3. 항산화 및 촉진 작용 모두 멜라닌 라디칼 형성과 관련이 있습니다. 분자 수준에서 멜라닌은 인돌릭과 퀴논 함유 소단위체로 구성된 이질적인 산화환원 활성 고분자로, 완전히 산화된 퀴논, 부분 환원 세미퀴논, 완전 환원 하이드로퀴논 형태등 여러 물리화학적 상태에서 존재할 수 있습니다. 세미퀴논 라디칼 종의 상대적 풍부도는 동적이며, 산소 가용성, 활성산소종(ROS), 금속 이온 상호작용, pH, 중합 정도, 멜라노좀 성숙 7,8,9 등 국부적인 물리화학적 조건에 따라 달라집니다.
따라서 멜라닌의 산화환원 상태 변화를 더 잘 이해하기 위해 이러한 급재 농도의 정량적 평가를 가능하게 하는 방법이 필요합니다. 흑색종에서는 멜라닌세포의 멜라노생성 조절 이상이 흑색종의 시작과 진행에 기여합니다. 이러한 조절 이상은 종종 국소 미세 환경 조건에 따라 산화환원 상태 이동과 관련이 있습니다. 이로 인해 멜라닌 산화환원 활성은 종양 생물학에서 중요한 요인이 됩니다10. 따라서 멜라닌 라디칼을 직접 평가할 수 있는 방법은 흑색종 발병 기전과 치료 반응을 이해하는 데 필수적입니다.
제브라피시 배아는 색소침착과 흑색종을 연구하는 강력한 생체 내 모델을 대표합니다. 수정 후 최대 5일(수정 후 120시간, hpf)까지는 지침 2010/63/EU에 따라 보호 동물로 분류되지 않아 공식적인 윤리 승인 없이도 고처리량 실험이 허용됩니다. 빠른 개발, 광학 투명성, 확립된 프로토콜 덕분에 제브라피시는 독성학 및 약리학 연구에 매우 적합하다11,12. 중요한 점은 이 물고기가 인간과 유전적·생리적으로 상당한 유사성을 가지고 있으며, 멜라노 생성에 관여하는 주요 경로가 보존되어 있다는 점이다. 야생형 제브라피시는 주로 유멜라닌을 생성하며 생리학적 색소 침착의 모델로 활용되지만, 유멜라닌과 페오멜라닌을 생성하는 흑색종 세포주를 이식하는 이종이식 모델은 생리적으로 중요한 미세환경에서 포유류 종양의 진행과 약물 반응을 조사할 수 있게 합니다14,15.
현재 형광 기반 영상은 제브라피시 흑색종 이종이식 연구에서 표준 방법으로 사용되고 있습니다. 이 접근법은 형광 염료(예: 디클로로디하이드로플루오레세인 디아세테이트(DCFDA) 또는 형질전환 계통(Grx1-roGFP2, HyPer)을 통해 종양의 성장, 이동 및 치료 반응을 실시간으로 시각화할 수 있게 합니다16,17. 그러나 형광 기법은 주로 형태학적 및 공간적 정보를 제공하며, 생화학적 및 산화환원 관련 과정을 포착하는 데는 한계가 있습니다. 또한, 표지값은 광표백, 염료 누출, 형광 약물 화합물 간섭, 표지로 인한 세포 생리 변화 등으로 인해 영향을 받을 수 있습니다. 중요한 점은, 형광 기반 방법은 멜라닌 라디칼이나 그 동적 산화환원 거동에 대한 직접적인 정보를 제공하지 않는다는 것입니다.
전자 참자성 공명 분광법은 안정적인 멜라닌 관련 라디칼을 포함한 참자성 종을 직접 검출하고 정량화할 수 있게 하여 독특하고 강력한 분석 접근법을 제공합니다. 유멜라닌과 페오멜라닌 모두 특징적인 전자 참자기 공명 신호를 생성하는 세미퀴논 모이에티를 포함하고 있으며, 이 신호들의 상대적 기여도는 색소 상태와 흑색종 진행의 바이오마커로서 탐구되어 왔습니다18,19. 중요한 점은, 산화환원 활성 세미퀴논 분획만이 검출된 신호에 직접 기여하기 때문에, 전자 참자성 공명 분광법은 멜라닌 함량 정량, 티로시나제 활성, 색소 분석 등 기존의 멜라노생성 관련 분석법에 상호 보완적인 정보를 제공합니다. 따라서 전자 참자성 공명 신호 세기는 전체 색소 풍부도를 직접 측정하는 지표가 아니라 국소 물리화학적 조건에 의해 영향을 받는 멜라닌 기능 상태의 산화환원 민감성 판독으로 해석되어야 합니다.
대부분의 생체 내 전자 참자성 공명 연구는 L-밴드 시스템(저주파 마이크로파(약 1–2 GHz)를 사용하여 더 깊은 신호 투입이 필요한 대형 시료에서 참자성 종을 연구하는 전자 참자성 공명 분광법의 한 형태)를 사용하여 수행되었습니다.20— X-밴드 전자 패러자기 공명은 소부피 시료에 대해 더 높은 스펙트럼 해상도와 감도를 제공합니다. 특히 제브라피시 배아에 적합합니다. 더 나아가, 다중고조파 검출 시스템을 포함한 최근 기술 발전은 신호 품질을 크게 향상시키고 까다롭고 수분 농도가 높은 생물학적 샘플에서 신뢰할 수 있는 측정을 가능하게 합니다21,22. X-밴드 공진기 크기는 소수의 제브라피시 배아에 적합한 크기이며, L-밴드 시스템보다 해상도가 높으므로 사용되는 동물 수를 줄일 수 있습니다. 특히 이종이식 모델을 다룰 때 이 점이 중요합니다.
이러한 장점에도 불구하고, 이 모델에서 살아있는 제브라피시 배아와 흑색종 이종이식에 X-밴드 전자 참자성 공명을 적용하는 것은 아직 거의 탐구되지 않았습니다. B16F10과 같은 흑색종 세포주를 이용한 시험관 내 연구는 멜라닌 라디칼 특성에 대한 귀중한 통찰을 제공했으며; 하지만 이들은 살아있는 유기체의 복잡한 생리학적 맥락이 부족하다23,24. 특히, 제브라피시 미세환경은 산소 구배, 세포 간 상호작용, 동적 대사 활동과 같은 중요한 요인을 도입하여 멜라닌 라디칼 행동에 큰 영향을 미칠 수 있다25,26. 따라서 생리학적으로 중요한 조건에서 멜라닌 라디칼을 직접 측정할 수 있는 생체 내 방법론을 개발하고 검증할 필요가 명확히 필요합니다.
본 연구에서는 B16F10 및 B16F1 흑색종 세포주를 포함한 외계이식 모델을 포함하여 제브라피시 배아에 X-밴드 전자 참자기 공명 분광법을 적용하는 상세 프로토콜을 제시합니다. 이 방법은 멜라닌 라디칼 함량의 정량적 평가를 가능하게 하여 형광 기반 영상에 보완적인 접근법을 제공하여 산화환원 역학에 대한 통찰을 제공합니다. 형광 기법의 구조 및 공간 정보와 전자 참자기 공명에서 얻은 생화학적 통찰을 통합함으로써, 이 통합 전략은 전임상 흑색종 연구를 위한 제브라피시 모델의 분석 능력을 향상시킵니다. 중요한 점은, 이 프로토콜에서 검출된 전자 참자성 공명 신호가 멜라닌 고분자의 산화환원 활성 비율을 반영한다는 것입니다. 따라서 신호 강도는 전체 멜라닌 함량의 직접적인 측정이 아니라 산화환원 민감성 측정으로 해석되어야 하며, 전체 색소 함량과 함께 멜라닌 관련 산화환원 이동의 지표로 간주되어야 합니다. 전체 생물체 측정 접근법과 주입된 흑색종 세포 수가 제한적이기 때문에, 검출된 신호는 주로 제브라피시 배아/유생 전체에서 전반적으로 멜라닌과 관련된 근진적 변화를 나타내며, 이종이식편에서만 유래한 흑색종 특이적 신호는 아닙니다. 이 구분은 멜라닌 산화 상태의 변화가 전체 색소 양의 변화와 독립적으로 일어날 수 있는 역동적인 생물학적 시스템에서 특히 중요합니다.
프로토콜
제브라피시(Danio rerio) 배아는 수정 후 최대 5일(120 hpf)까지 사용되었습니다. 이 발달 단계에서 배아는 2010/63/EU 지침에 따라 보호 동물로 간주되지 않으므로 실험은 윤리 위원회의 공식 승인이 필요하지 않습니다. 그럼에도 불구하고 모든 작업은 제브라피시 관리 및 사용에 관한 우수한 실험실 관행과 기관 지침에 따라 수행되었습니다.
1. 시약 제조 및 B16F10 마우스 흑색종 세포주 유지
- 완전 배지 준비
- 500mL의 Dulbecco's Modified Eagle Medium(DMEM)에 50mL의 태아 소 혈청(FBS)과 5.5mL의 페니실린-스트렙토마이신 용액을 첨가합니다.
- 사용 전에 전체 매개체를 37°C로 데웁니다.
참고: 셀 취급 시 열 스트레스를 최소화하기 위해 미리 가열된 용액을 사용하세요.
- 냉동 세포에서 해동 및 배양 시작
- 세포와 함께 냉동 바이알을 37°C 수조(~1–2분)에서 빠르게 해동합니다.
- 바이알 외부를 70% 에탄올로 소독하세요. 이후 모든 단계는 무균 조건에서 수행하세요.
- 세포 현탁액을 15mL 원뿔형 튜브에 9mL의 미리 예열된 완전 배지를 넣습니다. 마이코플라즈마 검사를 위해 원래 현탁액의 일부를 소량 남겨두세요.
- 원심분리기 튜브 내 원심분리기 셀은 200 × g에서 실온에서 5 분간 보관 합니다.
- 상정액을 흡입하여 냉동 배지에서 남은 디메틸설폭화물(DMSO)을 제거합니다.
- 세포 펠릿을 신선하고 미리 가열한 10mL 배지에 재현탁합니다.
- 세포를 ⌀9cm 크기의 페트리 접시에 옮기고, 세포를 고르게 분포시키기 위해 부드럽게 8자 모양으로 돌립니다.
- 세포를 37°C, 5% CO₂, ≥95% 습도에서 하룻밤 배양합니다.
- 16–24시간 후 배양지를 신선한 미리 데운 완전 배지로 교체하세요.
- 세포가 >80% 합당할 때까지 계속 인큐베이션을 진행하세요. 서브컬처링(서브컬처링)으로 진행하세요(1.3단계 참조).
참고: 페트리 접시 대신 멸균 배양 용기(예: T-플라스크)를 사용할 수 있습니다. 작은 접시나 플라스크가 선호된다면, 세포를 비례적으로 분할하여 상대적 배양 면적을 동일하게 유지하세요.
- 세포 하부 배양
- 세포 단층에서 배양지를 제거하세요. 마이코플라즈마 검사용으로 소량의 알리코트를 보관하세요.
- 배양 접시에 인산염 완충 식염수(PBS) 10mL를 추가합니다.
- PBS를 상온에서 세포 위에 3–5분간 두어 혈청 단백질이 완전히 제거되도록 합니다.
- PBS를 부드럽게 흡인하되, 세포가 떨어지지 않도록 주의하세요.
- 세포 해리 시약 1mL를 추가하고 37°C에서 배양하여 세포가 반올려져 분리될 때까지 배양합니다(5분 이상 배양 시간 제한).
- 효소 해리를 멈추기 위해 미리 가열된 완전 배지 1mL를 추가하세요.
- 세포 현탁액을 부드럽게 위아래로 여러 번 피펫팅하여 단일 세포 현탁액을 얻으세요.
- 세포를 1:4에서 1:10 비율로 미리 가열한 완전한 배지가 담긴 새로운 페트리 접시 또는 T-플라스크로 옮깁니다. 세포를 고르게 분포시키기 위해 부드럽게 8자 모양으로 돌리세요.
- 세포를 37°C, 5% CO₂, ≥95% 습도에서 배양합니다.
참고: 미리 가열된 용액(37 °C)을 사용하고, 모든 시술은 클래스 II 생물학적 안전 캐비닛 내에서 적절한 개인 보호 장비를 착용한 채 무균 조건 하에 수행하십시오. 아배양 세포는 2–3일마다 또는 80–90% 합류 시점에서 이루어집니다. 저통도 세포(해동 후
- 세포의 냉동 보존(뱅킹)
- 건강하고 기하급수적으로 성장하는 세포(~70%–80% 합류)를 사용하세요.
- 1.3.1–1.3.7 단계에 설명된 대로 세포를 채취한 후 세포 현탁액을 15 mL 원뿔형 튜브로 옮깁니다.
- 셀을 300 × g 에서 2분간 원심분리하세요.
- 상청액을 제거하고 세포를 1–5 × 10⁶ cells/mL의 냉동 보존 배지에 재현탁합니다.
- 세포 부탁을 표지된 냉동보관(세포주, 통과 번호, 연대)으로 분리합니다.
- 바이알은 -80°C에서 하룻밤 동안 조절 속도 냉동 용기를 사용해 냉동하세요.
- 대안으로는 중첩형 단열 방식을 사용하세요: 바이알을 1.5/2.0 mL 튜브용으로 설계된 작은 스티로폼 선반에 넣고, 이 선반은 더 큰 폴리스티렌 상자 안에 배치됩니다.
참고: 이 이중 층 구성은 점진적인 냉각 속도를 달성하기 위해 필요한 열 완충을 제공하도록 설계되었으며, 이는 성공적인 냉동 보존에 필수적입니다.
참고: 극저온 물질은 단열 장갑과 얼굴 보호구를 착용하여 다뤄야 합니다. 액체 질소 및 유해 폐기물 취급에 관한 기관 지침을 준수하세요.
- 대안으로는 중첩형 단열 방식을 사용하세요: 바이알을 1.5/2.0 mL 튜브용으로 설계된 작은 스티로폼 선반에 넣고, 이 선반은 더 큰 폴리스티렌 상자 안에 배치됩니다.
- -80 °C에서 하룻밤 배양한 후, 바이알을 액체 질소로 옮겨 장기 보관합니다. 크라이오바이얼은 단기 보관을 위해 -80 °C에서 보관할 수 있습니다.
- 마이코플라즈마 검사
- 해동, 아배양 또는 냉동 보존 중에 배양지 또는 세포 현탁액을 소량 채취하세요.
- 제조사의 지침에 따라 검증된 PCR 기반 또는 효소 마이코플라즈마 검출 키트를 사용하여 마이코플라즈마 오염을 평가하세요.
- 마이코플라즈마 음성 배양을 실험이나 세포주 뱅크에 사용하세요.
- 결과를 기록하고 오염된 배양은 폐기하거나 격리하여 제거될 때까지 보관하세요.
참고: 마이코플라즈마 오염 검사를 정기적으로 하세요.
2. 제브라피시 유충으로의 암세포 이식
- 암세포 이식 준비
- 세포를 ~80% 합류율로 성장시킵니다.
- 1.3.1–1.3.7 단계에 설명된 대로 셀을 수확합니다.
- 세포 현탁액을 2mL 마이크로 원심분리관으로 옮깁니다.
- 셀을 300 × g 에서 실온에서 2분간 원심분리하세요.
- 상원액을 제거하고 세포 펠릿을 1mL 멸균 PBS로 세척합니다.
- 2.1.4–2.1.5 단계를 반복하고 남은 PBS에 세포를 다시 현지합니다. 더 조밀한 현탁은 침전을 덜 유발합니다.
- 현탁액을 부드럽게 위아래로 피펫팅하여 균질한 단일 세포 현탁액을 얻습니다.
참고: 200 μL 피펫 팁을 45% 폴리비닐피롤리돈(PVP) 용액으로 미리 습지(프라이밍)하여 주입 마이크로바늘 내 세포 침전을 방지하는 데 도움이 됩니다. - 주사 전까지 세포 현탁액을 얼음 위에 보관하세요.
참고: 세포 응집이 발생하면 35–40 μm 세포 체를 통과시키거나 0.01–0.05 mg/mL DNase I로 세포를 처리하십시오.
- 제브라피시 알 생산
- 알 채취 전날 저녁, 성체 제브라피시를 산란을 위한 시스템이 담긴 번식 수조에 넣으세요.
- 탱크는 밤새 완전한 어둠 속에 두세요; 이렇게 하면 다음 날 아침, 조명이 켜진 상태에서 스폰이 활성화됩니다.
- 물고기는 다음 날 빛이 시작된 후에 산란할 것입니다. 달걀은 차 체를 통해 탱크 물을 부어 채취하세요.
- 계란을 E3 배지(5 mM NaCl, 0.17 mM KCl, 0.33 mM CaCl2, 0.33 mM MgSO4)로 꼼꼼히 헹군 것입니다.
- 수정란을 20–25mL E3 배지가 들어 있는 9cm 페트리 접시에 옮깁니다. 각 접시에 50개를 넘지 않게 배치하세요.
- 배아를 28°C에서 배양하다가 추가 사용.
참고: 계란은 항상 촉촉하게 유지하세요.
- 제브라피시 배아 준비
- 배아에서 약 36 hpf의 온도에서 머리 머리를 수동으로 제거하세요.
- 초가운 보석 No. 5 겸자 두 쌍을 사용하세요. 한 쌍으로는 코리온을 단단하지만 부드럽게 꼬집어 달걀을 안정시키세요. 두 번째 겸자를 사용해 첫 번째 부위 융합 부위를 잡으세요.
- 겸자를 반대 방향으로 부드럽게 당겨 작은 찢어짐을 만듭니다. 배아가 미끄러져 나올 때까지 조심스럽게 입구를 넓혀 주세요.
- 제브라피시 프로토콜에 따라 신선하게 준비된 트리카인 용액으로 탈코리온 유충을 마취합니다27.
참고: 코리온이 없는 배아는 연약하고 끈적거리기 때문에 공기에 노출되지 않도록 해야 합니다. 제브라피시 <3 dpf를 다룰 때는 유리 피펫과 아가로스 코팅된 페트리 접시를 사용하세요.
- 배아에서 약 36 hpf의 온도에서 머리 머리를 수동으로 제거하세요.
- 미세 주사 바늘 준비
- 제조사 지침에 따라 매개변수를 설정한 풀러를 사용해 필라멘트 프리 유리 모세관을 뽑아내세요.
- 가는 겸자를 사용해 바늘 끝을 두 단계로 부릅니다: 먼저, 바늘 끝을 살짝 부러뜨립니다. 그 다음, 세포가 갇힌 바로 그 지점에 두 번째 브레이크를 수행합니다. 이렇게 하면 세포가 통과할 수 있을 만큼 적당한 최적의 개구부가 생기면서도 가능한 한 작게 유지됩니다.
- 긴 마이크로라더(유리 미세모세관을 채우는 팁)를 사용해 바늘에 세포 현탁액을 다시 채우세요. 기포 유입을 피하세요.
- 현탁액에는 가능한 가장 높은 셀 밀도(최대 농도)를 사용하세요; 특정 셀 용량은 인젝터 설정을 통해 조절됩니다.
- 바늘에 작은 알리코트를 자주 장전하여 바늘 내 서스펜션 컬럼 높이를 최대 2mm로 제한합니다. 이로 인해 바늘 내 세포 침전이 최소화되어 주사 시 더 균일한 분포와 일관된 전달이 가능합니다.
- 적재된 바늘을 마이크로 주입 장치의 홀더에 장착합니다.
- 주입 압력과 펄스 시간을 조절하여 주사당 원하는 세포 수를 전달하는데(주입 시 세포 현탁액의 총 부피가 주사 시점에 제브라피시 배아의 눈 크기보다 커서는 안 됩니다).
참고: 제브라피시 이종이식 미세주입 방법의 상세한 예시는 이전에 다른 저자들에 의해 설명되었습니다28.
- 미세주입 절차
- 실험 설계에 따라 세포 현탁액을 노른자 주머니 또는 순환계에 주입하세요.
- 보정된 주사 조건에서 배아당 1000개 이상의 세포를 전달하세요.
참고: 인산염 완충 식염수(PBS) 주입 배아를 음성 대조군으로 포함하세요.
- 주입 후 핸들링
- 주입된 배아/유충은 28-32 °C로 유지하세요
- 해부 내시경 아래에서 유충의 생존과 발달 진행을 매일 모니터링하세요.
- 선택한 실험 시점에서 종양 세포의 증식과 이동을 평가합니다.
- 3.1절에 설명된 전자 파라자성 공명(EPR) 측정을 진행하거나 2.7절에 설명된 샘플을 저장하세요
참고: 주사 손상이나 부적절한 주사가 있는 유충은 폐기하세요. 모든 기관의 생물안전 및 동물 관리 지침을 준수하세요. 트리카인과 생물학적 폐기물은 안전 프로토콜에 따라 처리하세요. 유해물질은 규정에 따라 폐기하세요.
- 냉동을 위한 샘플 채취
- 유충을 차가운 트리카인 용액에 최소 3분간 담가 안락사시키세요.
- 10마리의 유충을 1.5mL 마이크로 원심분리관으로 옮깁니다. 각 튜브에서 과도한 배지를 제거하세요.
- 전자 참자성 공명 분석까지 -20 °C에서 샘플을 보관합니다.
3. 전자 참자성 공명 분광법에 의한 멜라닌 라디칼 검출
- 생체 내 제브라피시 유충에서의 멜라닌 근본 검출
- X-밴드 전자 패러자기 공명 분광기를 켜고 제조사 지침에 따라 시스템이 안정화되도록 하세요.
- 수정 후 3–5일 후, dpf 시점에 20–30마리의 제브라피시 유충을 1.5mL 마이크로 원심분리관으로 옮깁니다.
- 제브라피시 유충의 평평한 모세혈관에 100μL E3 배지를 채웁니다.
- 모세관 한쪽 끝을 플라스틱 캡으로 밀봉하고 액체 컬럼이 평평한 챔버 안에 갇히도록 하세요.
- 여러 유충과 소량의 E3 배지를 100 μL 헤마토크릿 모세혈관에 옮깁니다.
- 평평한 부분 상단에 헤마토크릿 모세혈관에서 유충을 부드럽게 분포합니다.
참고: 해결책의 연속성을 유지하도록 주의하세요. 평평한 부분이나 평평한 부분 상단 근처에 기포가 없어야 합니다. - 모세혈관의 외부 관 부분에서 과도한 액체를 제거하면서도 평평한 챔버 내에서 지속적인 액체 접촉을 유지하세요.
- 3.1.5–3.1.7 단계를 반복하여 20–30마리의 유충이 평평한 모세혈관에 적재될 때까지 반복합니다.
- 모세관의 관 모양 구간에서 잔여 액체를 제거하세요.
- 모세관을 전자 참자성 공명 분광기에 삽입하고 시료를 공진관 중앙에 위치시킵니다.
- 분광기 소프트웨어에서 획득 매개변수를 다음과 같이 설정하세요: 중심 필드 = 335 mT; 스윕 폭 = 10 mT; 변조 진폭 = 500 μT; 마이크로파 전력 = 1.6 mW; 스캔 횟수 = 32; 스윕 시간 = 11초; 시간 상수 = 0.
- 전자 준자기 공명 스펙트럼을 획득하세요.
- 공명기에서 모세혈관을 제거하고 유충을 페트리 접시의 신선한 E3 배지에 방출하세요.
참고: 시료 장전 시 공기 방울을 도입하지 마세요. 액체 컬럼의 불연속은 신호 재현성을 저하시킬 수 있습니다. 다중고조파 검출이 불가능하다면 변조 진폭을 줄이고 획득 매개변수를 최적화하여 스펙트럼 왜곡 없이 신호 세기를 극대화합니다.
- 얼린 제브라피시 유충에서 멜라닌 근본 검출
- 안락사된 제브라피시 유충 10마리의 냉동 샘플을 실온에서 5–10분간 해동합니다.
- 해동된 샘플에 E3 배지 100 μL을 추가합니다.
- 유충과 배지를 함께 100 μL 헤마토크릿 모세혈관으로 옮깁니다.
- 모세관에서 과도한 액체를 제거하여 샘플이 활성 공명체 부피(약 1cm 길이)만 차지할 때까지 유지합니다.
- 모세혈관을 밀봉 컴파운드로 밀봉하세요.
- 모세관을 전자 참자성 공명 분광기에 삽입하고 시료를 공진관 중앙에 위치시킵니다.
- 분광기 소프트웨어에서 획득 매개변수를 다음과 같이 설정하세요: 중심 필드 = 335 mT; 스윕 폭 = 10 mT; 변조 진폭 = 500 μT; 마이크로파 전력 = 1.6 mW; 스캔 횟수 = 32; 스윕 시간 = 11초; 시간 상수 = 0.
- 전자 참자성 공명 스펙트럼을 획득하고 저장하세요.
참고: 시료의 윗부분이 공진기 상단 가장자리보다 아래에 있도록 하여 신호 왜곡을 방지하세요. 다중 고조파 검출이 불가능할 경우, 변조 진폭을 줄이고 마이크로파 출력을 최적화하여 스펙트럼 왜곡 없이 신호 세기를 극대화합니다.
- 다중고조파 분석기 소프트웨어에서 전자 파라자기 공명 데이터 추출 및 스펙트럼 후처리
- 다중 고조파 분석 소프트웨어에서 기록된 전자 패러자기 공명 스펙트럼을 열어보세요.
- 듀얼 채널 신호 처리를 활성화하려면 '두 채널 사용'을 선택하세요.
- 처리된 고조파 수를 30개로 설정하세요.
- 마이크로파 위상/도 매개변수를 조정하여 흡광과 분산 성분이 대칭적으로 달성됩니다.
- 변조 위상/배도 매개변수를 조정하여 채널 1이 순수 흡수 신호를, 채널 2가 순수 분산 신호를 표시할 때까지 유지합니다.
- 변조 진폭/G 매개변수를 조정하여 가장 좁고 왜곡되지 않은 스펙트럼 선을 얻습니다.
- 스펙트럼 선의 형태를 유지하면서 고주파 잡음을 줄이기 위해 Low pass/Hz 파라미터를 설정하세요.
- 소음 억제 탭을 선택하고 소음 억제 활성화를 클릭하세요. 스펙트럼 선의 가시적 왜곡 없이 신호 대 잡음비가 개선될 때까지 평탄화 계수와 좁은 선 정제화 매개변수를 조정합니다.
- 아티팩트 탭을 선택하고 이상치 보정과 대역폭 보정을 활성화하세요.
- 스펙트럼은 추가 분석을 위해 데이터 분석 소프트웨어에서 사용하는 형식으로 저장하세요.
- 적절한 데이터 분석 소프트웨어에서 수치 적분을 사용하여 이중 적분 신호 세기를 계산합니다.
참고: 고Q 공진기를 사용할 때, 대역폭 보정은 고조파 성분의 재구성을 향상시킵니다. 다중고조파 재구성은 과변조된 원시 데이터에서 왜곡되지 않은 스펙트럼을 복원할 수 있게 하며, 저강도 생물학적 샘플에서 신호 대 잡음비를 향상시킵니다.
결과
실험 워크플로우의 개요는 그림 1에 제시되어 있습니다. 제브라피시 배아는 채취되어 B16F10 흑색종 세포로 이식되었으며, 통제된 조건에서 배양된 후 X-밴드 전자 참자성 공명 분석을 위해 밝은 필드 현미경 또는 형광 현미경으로 모니터링되었습니다. 이후 살아있는 배아는 평평한 모세관/샘플 홀더에 적재되어 전체 생물의 전자 패러자기 공명 측정을 수행하여, 멜라닌 관련 라디칼 신호의 비침습적 검출이 가능해졌습니다. 전자 준자성 공명 획득 후, 배아는 신선한 E3 배지에 방출되어 동일한 생물 표본에서 종방향 측정이 가능해졌습니다.
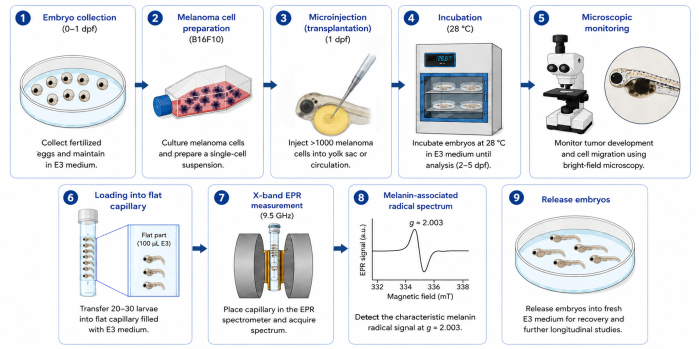
그림 1: X-밴드 전자 패러자기 공명(EPR) 분광법을 이용한 제브라피시 흑색종 이종이식에서 멜라닌 관련 라디칼의 생체 내 모니터링 실험 워크플로우를 그래픽으로 개요. 제브라피시 배아는 채취되어 흑색종 세포와 함께 이식된 후 배양 및 현미경으로 모니터링한 후 맞춤형 평평 모세혈관에 적재되어 전체 생물체 EPR 측정을 수행합니다. 특징적인 멜라닌 관련 라디칼 신호(g ≈ 2.003)가 검출된 후, 유충은 종방향 추적 측정을 위해 방출됩니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
방법의 특이성을 검증하기 위해 야생형(WT) 및 백색 제브라피시 배아에서 측정이 수행되었습니다. WT 배아는 약 27 hpf에서 눈에 띄는 색소침착이 나타나기 시작합니다. 이에 대응하여, WT 배아에서 획득한 전자 준자성 공명 스펙트럼은 g≈ 2.003을 중심으로 한 특징적인 단일 선 신호를 보이며, 이는 유멜라닌 유래 세미퀴논 라디칼(예: DHI/DHICA)과 일치합니다. 반면, 기능적 멜라닌 합성이 없는 백색 배아는 수정 후 5일(dpf) 시점에도 동일한 스펙트럼 영역에서 전자 겸자성 공명 신호를 감지하지 못합니다. 이는 관찰된 신호가 멜라닌 라디칼에서 유래함을 확인시켜 주며, 방법 선택성을 검증하는 음성 대조군을 나타냅니다(그림 2).
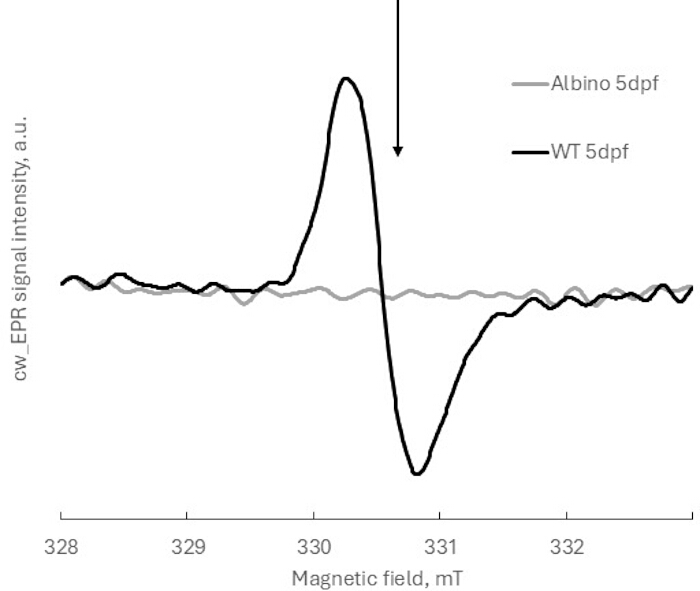
그림 2: 5dpf에서 야생형(WT) 및 알비노 제브라피시 배아의 대표적인 X-밴드 전자 참자기 공명 스펙트럼. 화살표는 5dpf WT 제브라피시 배아에서 멜라닌 관련 라디컬 신호의 공명 위치(g ≈ 2.003)를 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
이 방법은 발달 중 멜라닌 라디칼 형성을 정량적으로 모니터링할 수 있게 합니다. 색소가 진행됨에 따라 전자 참자성 공명 신호 세기가 뚜렷하게 증가하는 것이 관찰됩니다. 2 dpf에서 5 dpf의 WT 배아를 비교했을 때, 배아당 정규화된 이중 통합 전자 패러자기 공명 신호가 크게 증가한 것으로 나타났습니다. 정규화는 이중 적분을 계산하기 전에 샘플 내 배아 수로 원시 전자 파라자기 공명 신호 세기를 나누어 수행했습니다(그림 3A).
통계 분석은 크루스칼-월리스 검정을 사용한 후 던의 다중 비교 검정을 사용했습니다. 6개의 독립적인 생물학적 복제(각 7–10개의 배아로 구성됨)에 대한 분석에서 발달 단계 간 정규화된 전자 참자성 공명 신호에 통계적으로 유의미한 차이가 나타나 이 방법의 민감도를 확인했습니다(p < 0.05).
전자 참자성 공명 스펙트럼의 이중 적분은 쌍이 없는 전자 스핀의 수에 비례합니다. 따라서 증가는 발달 과정에서 멜라닌 관련 라디칼 개체 수가 증가했음을 나타냅니다. 중요한 점은, 이 증가는 색소 축적만이 아니라 진행적 멜라닌 생성과 관련된 멜라닌 산화환원 평형 변화를 반영하는 것으로 보인다는 것입니다.
프로토콜의 재현성은 동일한 발달 단계(5 dpf)에서 서로 다른 수의 배아(7개 대 10개)를 포함한 샘플에서 얻은 대표적인 전자 파라자기 공명 스펙트럼을 비교하여 추가로 평가되었습니다. 예상대로, 원시 스펙트럼은 표본 크기에 비례하는 신호 진폭 차이를 나타냈습니다(그림 3B). 각 스펙트럼이 샘플당 배아 수로 정규화된 후, 스펙트럼은 거의 완전히 겹쳐졌고(그림 3C), 배치 간 변동성은 10% 미만으로 유지되었습니다. 이 결과들은 배아별 정규화의 중요성을 강조하며, 비교 연구에서 이 방법의 견고함을 확인시켜 줍니다.
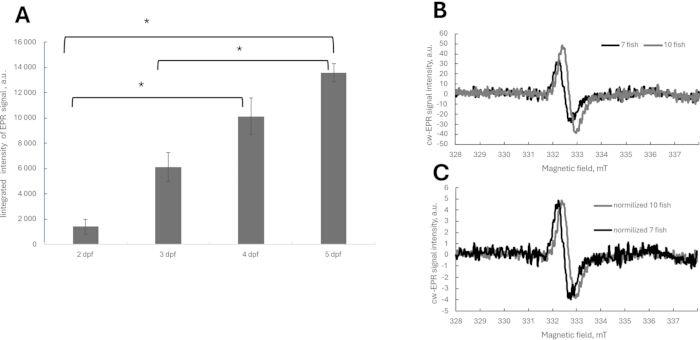
그림 3: 발생 멜라닌 관련 라디칼 역학의 정량적 모니터링과 전자 참자성 공명 스펙트럼의 정규화. (A) 야생형(WT) 제브라피시 배아로부터 수정 후 2, 3, 4, 5일(dpf)에 얻은 이중 통합 X-밴드 전자 참자성 공명 신호. 신호 강도는 샘플당 배아 수에 정규화되었습니다. 데이터는 6개의 독립적인 생물학적 복제체의 평균 ± SD를 나타내며, 각 복제체는 7–10개의 배아로 구성되어 있습니다. 통계적으로 유의한 차이 - *p < 0.05. (B) 7개 및 10개 배아를 포함한 샘플을 사용하여 5 dpf WT 배아에서 획득한 대표적인 원시 전자 파라자성 공명 스펙트럼. 신호 진폭은 샘플 내 배아 수에 비례하여 증가합니다. (C) 정규화 후 패널 B에 표시된 동일한 전자 참자성 공명 스펙트럼, 즉 원시 스펙트럼 강도를 모세관 내 배아 수로 나눈다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
프로토콜이 체내 제브라피시 측정에 사용되는 맞춤형 평면 모세혈관에 의존하는지 평가하기 위해, 멜라닌 관련 라디칼 검출을 맞춤 평평 모세혈관과 상용 표준 모세혈관을 모두 사용하여 체 외 분석에 수행하였습니다. 두 샘플 홀더를 이용해 획득한 대표적인 전자 자성 공명 스펙트럼은 선의 형태와 공명 위치가 매우 유사함을 보여주었으며(그림 4A), 멜라닌 관련 라디칼의 신뢰성 높은 검출이 맞춤형 모세관 설계에만 국한되지 않음을 나타냅니다. 평평한 모세혈관에서 나오는 신호는 배아당 정규화 후 표준 모세혈관에서 재계산된 신호보다 2배 낮았다.
샘플 취급 유연성을 추가로 평가하기 위해, 제브라피시 배아는 채취 직후 냉동 후 측정한 후 표준 모세혈관을 이용한 체외 분석을 수행하였습니다. 신선한 샘플과 냉동 샘플 간에 6개의 독립적인 생물학적 복제 간에 통계적으로 유의미한 차이는 관찰되지 않았습니다(그림 4B). 이 결과는 프로토콜이 일반적으로 사용되는 전자 참자기 공명 샘플 홀더에 적용할 수 있으며, 지연된 외부 시험 분석을 지원하여 다양한 전자 참자기 공명 분광기를 사용하는 실험실 간에 접근성, 유연성, 재현성을 크게 높여준다는 것을 보여줍니다.
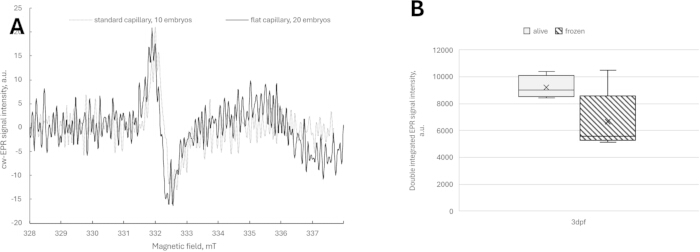
그림 4: 프로토콜의 호환성. (A) 2dpf WT 제브라피시의 표준 및 평면 모세혈관에서 측정한 원시 전자 참자성 공명 스펙트럼. (B) 표준 모세혈관에서 살아 있거나, 동결된 동일한 생물학적 복제체(3 dpf WT 제브라피시)의 비교. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
검출된 전자 참자성 공명 신호가 흑색종 유래 멜라닌 라디칼에 직접 귀속될 수 있는지 확인하기 위해, 백색 제브라피시 배아를 멜라닌 없는 배경으로 사용하고 B16F10 흑색종 세포를 주입했습니다. 전자 준자성 공명 측정은 수정 4일(dpf) 시점에 야생형 배아에 적용된 동일한 획득 조건에서 수행되었습니다. 예상대로 주입되지 않은 백색증 배아는 멜라닌 특이적 스펙트럼 영역에서 검출 가능한 전자 참자성 공명 신호를 못했습니다. 중요하게도, 밝은 현미경으로 성공적인 세포 착상이 확인되었음에도 불구하고 B16F10 세포를 주입한 백색 배아에서는 검출 가능한 멜라닌 관련 전자 자기 공명 신호가 관찰되지 않았습니다(그림 5A).
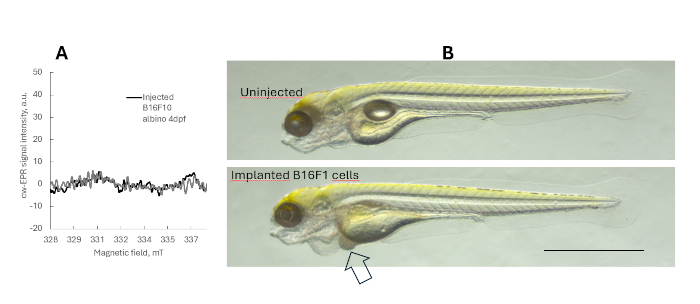
그림 5: 백색종 제브라피시 B16F10 이종이식에서 멜라닌 관련 라디칼 직접 검출 평가. (A) X-밴드 전자 참자성 공명 분광기로 측정한 4df 알비노 및 알비노 B16F10 이종이식 측정에서 멜라닌 관련 전자 참자성 공명 신호. 각 10개의 배아에 대한 생물학적 복제 3개가 사용되었습니다. (B) 암세포 착상 3일 후 B16F10을 이용한 4 dpf 알비노 백야장 및 백색 이종이식편의 밝야 이미지. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
이 결과들은 현재 실험 조건에서 주입된 흑색종 세포 수가 X-밴드 전자 참자기 공명의 직접 검출 임계값 이하임을 나타냅니다. 따라서 전체 생물체 측정에서 검출되는 멜라닌 관련 신호는 주로 제브라피시 배아/유생의 멜라닌 산화환원 상태의 전반적 변화를 반영하며, 이종이식편에서만 유래한 흑색종 특이적 신호는 아닙니다.
이종이식 실험에서 흑색종 세포 착착과 성장의 효율은 주입 부위에 크게 의존했습니다. 혈류(혈류)에 주입하면 종양이 더 일관되게 발생했고, 흑색종 세포와 관련된 전자 참자기 공명 신호를 신뢰성 있게 검출할 수 있게 되었습니다. 반면, 난황낭에 주입하면 배아 발달이 저하되고 종양 성장이 불안정하여 신호가 약하거나 불안정해졌습니다. 따라서 강력하고 해석 가능한 결과를 얻기 위해서는 혈류 주사가 권장됩니다(그림 6).
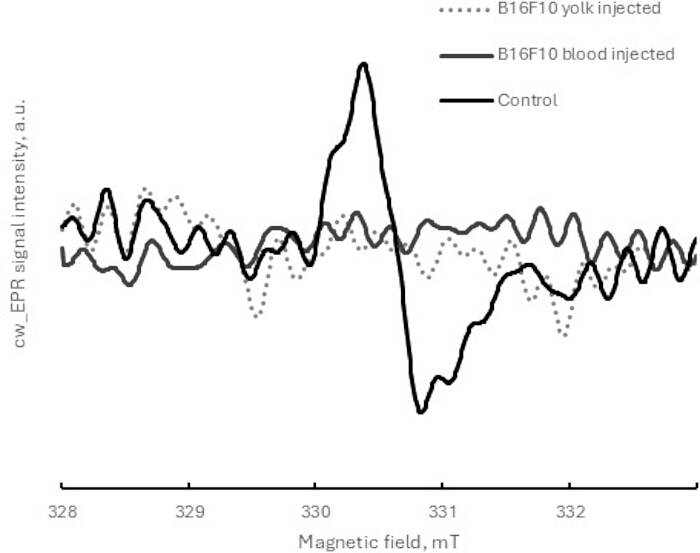
그림 6: 흑색종 세포 주입 부위가 2 dpf 제브라피시 배아와 X-밴드 전자 자기 공명으로 측정한 이종이식 발달에 미치는 영향. B16F10 흑색종 세포를 주입한 제브라피시 배아의 대표적인 전자자기 공명 스펙트럼. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
흑색종 모델에서의 적용 가능성을 더욱 입증하기 위해, 우리는 야생형(WT) 제브라피시 배아와 B16F10 흑색종 세포를 주입한 WT 배아에서 얻은 전자 참자기 공명 신호를 서로 다른 발달 시점에 걸쳐 비교하였습니다.
WT 배아에서는 전자성 상자성 공명 신호가 시간이 지남에 따라 점진적으로 증가하여 발달 과정에서 유멜라닌의 자연 축적을 반영했습니다. 반면, B16F10 이종이식편을 가진 배아는 해당 시점에서 WT와 비교해 전자 참자성 공명 신호가 수정되어 신호 역학이 변화했습니다(그림 7). 이러한 차이는 흑색종 유래 멜라닌 라디칼의 직접적 검출보다는, 숙주 멜라닌 형성과 전신 산화환원 질환의 종양 유도 조절을 반영하는 것으로 보입니다. B16F10 세포는 주로 유멜라닌을 생성하기 때문에 페오멜라닌 신호는 검출되지 않았습니다.
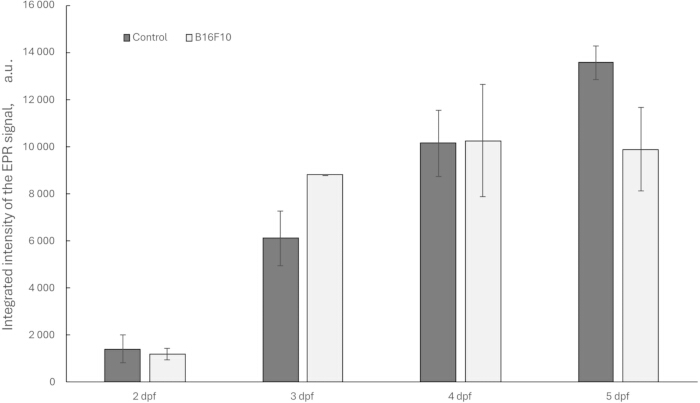
그림 7: 대조군 WT 및 WT B16F10 제브라피시 배아에서 전체 생물체 EPR 신호 역학의 대표적 비교. 대조군 야생형(WT) 제브라피시와 WT B16F10 이종이식 배아에서 수정 후 2일, 3일, 4일, 5일(dpf)에 얻은 이중 통합 X-밴드 전자 자기 공명 신호. 신호 강도는 샘플당 배아 수에 정규화되었습니다. 데이터는 6개의 독립 생물학적 복제(대조군용)와 3개의 B16F10 이종이식 3개의 평균 ±정 기준 SD를 나타내며, 각 복제본은 7–10개의 배아로 구성되어 있습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
전반적으로 이 프로토콜의 성공적인 구현은 다음과 같이 나타난다: (i) 색소 배아에서 g ≈ 2에서 명확한 단일 선 전자 참자성 공명 신호 검출, (ii) 백화증 대조군에서 신호 부재, (iii) 발달 단계에 따른 신호 강도 증가, (iv) 정규화 후 생물학적 복제 간 재현성.
토론
본 연구는 X-밴드 전자 참자성 공명 분광법을 이용해 제브라피시 배아에서 멜라닌 관련 라디칼을 생 체 내에서 검출하기 위한 견고하고 민감한 프로토콜을 제시합니다. 이 방법은 생리학적 흑색 생성, 흑색종 이종이식 발달, 약리학적 개입 과정에서 멜라닌 관련 산화환원 변화를 비침습적이고 라벨 없이 모니터링할 수 있게 합니다. X-밴드 전자 참자기 공명 분광법의 높은 감도와 제브라피시 이종이식 플랫폼을 결합함으로써, 이 접근법은 기존 제브라피시 흑색종 모델의 분석 능력을 기존 형태학적 영상을 넘어 산화환원 활성 멜라닌 종의 직접적인 생화학적 특성화로 확장합니다. 주로 구조 및 공간 정보를 제공하는 형광 기반 영상과 달리, 전자 참자성 공명 분광법은 안정적인 패러자성 세미퀴논 라디칼을 직접 검출하여 멜라닌 산화환원 생물학에 대한 상호 보완적인 기능적 통찰을 제공합니다.
제시된 워크플로우는 색소침착 및 흑색종 연구에 폭넓게 적용 가능합니다. 잠재적 응용 분야로는 항흑색종 치료 평가, 약물 유발 산화환원 균형 변화 조사, 탈색소 또는 자외선 반응제와 같은 멜라노형성 조절 화합물 평가, 그리고 종양-숙주 상호작용 생 체 내 분석 등이 있습니다. 더 나아가, 형광 영상 및 기타 표현형 검사와의 통합은 공간적, 형태학적, 생화학적 정보를 결합한 다중 모달 플랫폼을 제공하여 전임상 연구 및 치료 개발에서 제브라피시 모델의 예측 가치를 높일 수 있습니다.
신뢰할 수 있는 결과를 얻기 위해서는 여러 실험 매개변수가 매우 중요합니다. 이종이식 실험에서는 순환 내 주입이 난황낭 주입보다 더 일관된 부착과 전자 참자성 공명 측정을 제공했으며, 이는 이전 연구들과 일치한다29,30. 배양 온도 선택이 중요한 역할을 합니다. 제브라피시 이종이식은 일반적으로 포유류 세포 반응 반응을 위해 32 °C에서 유지될 수있지만, 본 연구에서 사용된 쥐 B16F10 흑색종 계통은 28 °C에서 강력한 증식 및 이동 능력을 보일 만큼 충분히 공격적인 것으로 보입니다. 32 °C 환경은 제브라피시 발달을 크게 가속화하여 수정 후 5일 전에 독립적인 먹이 행동으로 이어질 수 있기 때문에, 유충을 28 °C로 유지하면 생물이 보호받지 못한 발달 단계(32)에 머무르도록 할 수 있습니다. 따라서 이 온도 선택은 유충이 독립적으로 먹이 단계에 도달한 후 보호하는 동물 복지 규정을 준수하면서도 종양의 진행과 전이를 성공적으로 관찰할 수 있게 할 수 있습니다. 또 다른 중요한 점은 배아 수에 대한 정확한 정규화와 일관된 발달 단계가 생물학적 변이를 최소화하는 데 필수적이라는 점입니다. 약하거나 불규칙한 신호는 색소 침착 부족, 낮은 종양 부담, 공명관 내 샘플 위치가 최적이 아니거나 모세관 충전이 불완전할 때 발생할 수 있습니다. 이런 경우에는 샘플당 배아 수를 늘리고, 이식 효율을 최적화하며, 활성 공명체 부피 내 샘플 위치 확인이 신호 검출을 향상시킬 수 있습니다. 수성 생물 샘플에서 유전체 유전체 측정과 함께 발생하는 충만성 계수 감소로 인해 평면 모세혈관에서 생체 내 측정을 위해서는 더 많은 배아가 필요합니다. 그럼에도 불구하고 이 방법은 표준 모세혈관과 체외에서 사용할 수 있습니다. 이 결과는 프로토콜이 일반적으로 사용되는 X-밴드 전자 자기 공명 분광 구성과 호환되며, 지연된 외부 체외 분석을 지원하여 다양한 장비를 사용하는 실험실 간 접근성과 재현성을 높인다는 것을 보여줍니다.
장점에도 불구하고 이 방법은 몇 가지 한계가 있습니다. 중요한 생물학적 고려사항은 검출된 전자 참자기 공명 신호가 전체 색소 함량이 아니라 멜라닌 고분자의 산화환원 활성 비율을 반영한다는 점입니다 15,21,33. 따라서 전자 참자기 공명 신호 강도의 변화는 멜라닌 풍부도를 직접적으로 대체하는 것이 아니라 멜라닌 관련 산화환원 평형 변화로 해석되어야 합니다. 또한 백색증 이종이식 실험은 현재 실험 조건 하에서 주입된 흑색종 세포 수가 X-밴드 전자 참자성 공명 분광법의 직접 검출 임계값 이하임을 보여주었다. 따라서 이종이식 유충에서 검출되는 전체 생물 신호는 주로 종양-숙주 상호작용에 의해 유도된 숙주 멜라닌 관련 산화환원 상태의 전반적 변화를 반영하며, 이종이식편에서만 유래한 흑색종 특이적 신호는 아닙니다. 중요한 점은, 제브라피시 미세환경이 동적 산소 구배, 대사 상호작용, 산화 스트레스 조건을 도입하여 생체 내에서 멜라닌 라디칼 집단을 추가로 조절할 수 있다는 점이다 19,20. 이종이식 응용에서는 신뢰할 수 있는 신호 검출을 위해 충분한 멜라닌 농도가 필요하기 때문에 현재 이 방법은 고색소 흑색종 모델에 한정되어 있습니다. 암흑적성 또는 약한 색소 종양은 감지 가능한 신호를 내지 못할 수 있습니다27. 또한, 본 연구에 사용된 흑색종 세포주(B16F10)는 주로 유멜라닌을 생성하여 단일 전자 파라자기 공명 선을 형성합니다. 페오멜라닌 기여가 유의미한 모델에서는 스펙트럼 중복이 발생할 수있습니다. 이러한 경우에는 유멜라닌과 페오멜라닌 신호를 구분하기 위해 고급 스펙트럼 시뮬레이션과 디컨볼루션이 필요합니다.
그럼에도 불구하고, 제시된 워크플로우는 흑색종 생물학, 약물 유도 멜라노형성 조절, 산화 스트레스, 종양-숙주 상호작용 등 생 체 내 연구에 폭넓은 잠재력을 제공합니다. 전자 패러자기 공명 분광법과 형광 영상, 유전 리포터 및 기타 표현형 분석법의 통합은 전임상 흑색종 연구 및 치료 개발에서 제브라피시 모델의 예측 가치를 더욱 높일 수 있습니다.
공개 사항
저자 미코와이 바라노프스키는 이 연구에 사용되는 분광기(다중고조파 분석기)의 부품을 제조하는 노빌렛에 고용되어 있습니다. 나머지 저자들은 상반되는 이해관계가 없다고 선언한다.
감사의 글
" 다니오 레리오 배아 모델에서 흑색종 잠재적 약물의 전임상 연구에 사용되는 멜라닌 라디칼 결정 방법" FENG.02.07-IP.05-0059/23 프로젝트는 유럽연합이 유럽 스마트 경제 기금 2021–2027(FENG) 하에 공동 자금을 지원한 폴란드 과학재단의 FENG POC 프로그램 내에서 수행되었습니다. 이 연구는 스마트 성장 운영 프로그램(프로젝트 번호 POIR.01.02.00-00-0077/18)의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 1.5 mL 또는 0.5 mL 에펜도르프 튜브 | Eppendorf | 0030120086, 0030121023 | 절치어 유생을 모세관으로 이동시키기 위해 |
| 3 mL 일회용 파스퇴르 파이펫 | Medlab Products | 76-1303-2 | 배아 및 유생 분류 및 이동을 위해 |
| 벤치탑 X-밴드 EPR 분광계 MiniScope MS200 | Magnettech | Bruker.com | EPR 스펙트럼 등록 |
| 칼슘 염화물, 이수화물 | Chempur | 363-118748706 | E3 배지 준비 |
| 세포 계수 슬라이드(예: EVE 또는 EVE PLUS) | Nanoentek Inc | NC2200445 | 세포 계수기 |
| CellTracker Green | Thermo Fisher | C2925 | 세포 표지용 형광 세포 추적자 염료 |
| CM-DiI | Thermo Fisher | C7000 | 세포 표지용 형광 세포 추적자 염료 |
| CO2 인큐베이터 ICO240med | Memmert | N/A | 세포 유지, 37°C, 5% CO2, 95% 이상의 습도 설정 |
| Countess II 자동 세포 계수기 | Invitrogen | AMQAX1000 | 세포 계수 및 세포 밀도 |
| 극저온 저장 박스 CryoKING | Biologix | BGX-ID81 | 절치어 기저 저장 |
| 동결 보존 배지 CM-1 | Cytion | #800150 | 암 세포 동결 |
| 듈베코의 수정된 이글 배지(DMEM), 고 포도당, 글루타민, 나트륨 피루브산 제외 | Gibco | #11965-092 | 세포 배양 유지 |
| E3 배지 | 사내 | N/A | 절치어 배아/유생 유지, Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449에 따라 준비 |
| 난자 인큐베이터 | Incubato | 10130024 | 절치어 배아/유생 인큐베이션, 28-32°C 설정 |
| eSpect+ 소프트웨어 | Novilet | https://novilet.eu/products/espect/ | 다중 조화 분석기 |
| 태아 우 혈청(FBS) | Gibco | A5256701 | DMEM 보충제 |
| 세라믹 코팅 미세 포셉, 세라믹 코팅 두몽 #5, 11 cm | Dumont SA | 11252-50 | 절치어 배아 탈각 |
| 절치어용 플랫 유리 모세관(출원 번호: 21 736) | N/A | N/A | 절치어 배아의 EPR 측정 |
| 유리 모세관 바늘 | Harvard Apparatus | GB100-10 | 미세 주입용, 필라멘트 없음 |
| 헤마토크리트 모세관 (BRAND 일회용 BLAUBRAND 마이크로 파이펫), 50 및 100 μL 용량 | BRAND | 41121500 | EPR 측정 또는 평면 모세관으로 절치어 유생 이동 |
| 마그네슘 염화물, 6수화물 | Chempur | 363-116120500 | E3 배지 준비 |
| 마이크로 조작기 FemtoJet이 장착된 마이크로 주입 시스템 | Eppendorf | EPE5252000021 | 마이크로 바늘에 세포 로드 |
| 바늘 로드용 마이크로 로더 팁 | Eppendorf | #5242956003 | 마이크로 주입 시스템 |
| 마우스 흑색 종 세포주 B16-F1 | Cytion | CLS-400122 | 기저 |
| 마우스 흑색 종 세포주 B16-F10 | Cytion | 305157 | 기저 |
| 다중 조화 분석기 eSpect+ | Novilet | https://novilet.eu/products/espect/ | EPR 분광계, 감도 증가 |
| 페니실린-스트렙토마이신 용액 | Sigma | P0781-50ml | 옵션, 세포 배양을 위한 DMEM 보충제 |
| 페트리 접시, 55 mm | Medlab Products | 51-0056-0A-NX | 절치어 알, 배아 및 유생 인큐베이션 |
| 칼슘 및 마그네슘 무첨가 인산염 완충액(PBS) | Sigma | D8537-500ml | 세포 세척 |
| 칼륨 염화물 | Chempur | 363-117397402 | E3 배지 준비 |
| 헤마토크리트 모세관 용 밀봉 키트 - Critoseal | Noxygen | NOX-A.3-VPC | 절치어 배아의 EPR 측정 |
| 나트륨 염화물 | Chempur | 363-117941 |
참고문헌
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공