당뇨병성 신증(DN)은 미토콘드리아 기능 장애를 동반합니다. 전사체학, 네트워크 약리학 및 머신러닝을 이용하여, 우리는 CAT, FABP1, MAOA 및 MAOB를 광나무 열매(Ligustri Lucidi Fructus)의 미토콘드리아 관련 후보 바이오마커로 선정하였습니다. db/db 생쥐 모델에서 LLF는 CAT과 MAOA의 발현을 상향 조절하였으며, 이는 향후 기전 연구의 근거를 제공합니다.
이 논문에서
요약
초록
미토콘드리아 기능 장애와 미토콘드리아 내의 과도한 산화 스트레스는 당뇨병성 신증(DN)에서 신세뇨관 손상을 유발하는 핵심 병리적 요인입니다. 비록 광나무 열매 (LLF)는 전통적으로 당뇨병성 신증(DN) 치료에 사용되어 왔으나, 그와 관련된 기전, 특히 미토콘드리아 관련 유전자 및 경로와 관련된 기전은 여전히 충분히 밝혀지지 않았습니다. 본 연구에서는 GSE142025 데이터셋의 차별 발현 분석을 통해 DN과 관련된 차별 발현 유전자(DEG)를 식별하였습니다. 네 가지 머신러닝 모델의 결과물을 교차 참조하여 특징 유전자를 선정하였습니다. 두 데이터셋 모두에서 유의미한 차별 발현과 일관된 발현 패턴을 보인 유전자들을 수신자 조작 특성(ROC) 곡선 분석을 통해 추가로 평가하였습니다. 곡선 아래 면적(AUC)이 > 두 데이터세트 모두에서 0.7로 정의된 항목들을 후보 바이오마커로 선정하였습니다. 기능적 풍부도 분석, 면역 침윤 분석, 네트워크 구축 및 분자 도킹 분석을 수행하였습니다. DN 마우스 모델을 이용하여 후보 바이오마커의 혈당, 요중 미세알부민, 조직병리학적 소견 및 RT-qPCR 발현량을 평가하였습니다. 고양이 그리고 MAOA 유의미하게 상향 조절되었습니다 인 비보 (in vivo)후보 바이오마커들은 리보솜 기능, 발린, 류신 및 이소류신 분해, 사이토카인-사이토카인 수용체 상호작용 및 퍼옥시좀과 관련된 경로에서 농축되었습니다. 이들은 CD8+ T 세포 및 활성화된 비만 세포와 음의 상관관계를 보였으며, 활성화된 NK 세포 및 나이브 B 세포와 양의 상관관계를 보였습니다. Taxifolin, beta-sitosterol 및 eriodictyol은 후보 바이오마커들과 -5 kcal/mol 미만의 결합 에너지를 나타냈습니다. CAT와 MAOA는 추가적인 기전 연구가 필요한 유망한 후보 물질입니다.
서론
전 세계적으로 말기 신질환의 주요 원인 당뇨병성 신증(DN)은 당뇨병의 가장 흔한 합병증 중 하나입니다. 병리학적으로 이는 사구체와 세뇨관 구획 모두에서 과도한 세포외 기질 축적과 함께 신장 내 혈관의 비후 및 경화가 특징입니다2. DN은 일반적으로 단백뇨 및 고혈압과 연관되어 있습니다3. DN의 발생은 지속적인 고혈당으로 인한 혈관 내피세포 손상, 악화된 염증 반응 및 증가된 산화 스트레스와 밀접하게 연결되어 있습니다4. DN의 발생률은 전 세계적으로, 특히 중장년 및 고령 당뇨병 환자 사이에서 증가하고 있습니다. 질환이 진행됨에 따라 말기 신부전 및 심혈관 합병증으로 이어질 수 있으며, 이는 환자의 삶의 질과 예후를 현저히 저하시킵니다5. DN에 대한 진단 및 치료 접근법의 발전에도 불구하고, 진단을 위한 조기 및 정확한 후보 바이오마커는 여전히 찾기 어려우며, 병리적 과정을 되돌릴 수 있는 효과적인 치료 전략 또한 부족한 실정입니다. 따라서 새로운 표적 항-DN 약물 개발이 시급히 필요합니다.
미토콘드리아는 세포 생체 에너지학, 대사 전구체 합성, 칼슘 항상성, 활성 산소종(ROS) 생성, 면역 신호 전달 및 세포 사멸에 결정적인 역할을 하며, 이 모든 과정은 세포와 유기체의 안정성을 유지하는 데 필수적입니다6. 세포의 발전소로서 미토콘드리아는 당분해, 트리카르복실산 회로 및 산화적 인산화와 같은 기본 과정에서 중추적인 역할을 수행합니다7. 비만은 크렙스 회로와 미토콘드리아 호흡 연쇄를 방해하여 미토콘드리아 기능 장애와 ROS 생성 증가를 유발합니다. 미토콘드리아 호흡 연쇄 내의 ROS 수준 상승은 산화적 스트레스를 유도할 수 있으며, 이는 비만과 관련된 염증 반응을 악화시키고 세포 사멸을 촉진합니다8. 최근 연구에 따르면 에너지 대사 장애, 과도한 ROS 생성 및 세포 사멸 신호 증가를 포함하여, 미토콘드리아 기능 장애가 당뇨병성 신증(DN)의 병인 및 진행에 중요한 역할을 한다는 점이 강조되었습니다9. 만성적인 미토콘드리아 기능 장애는 신장 질환의 진행을 가속화합니다10. 따라서 미토콘드리아 기능을 개선하는 것은 DN에 대한 핵심적인 보호 전략이 될 수 있습니다.
Ligustri Lucidi Fructus (LLF)는 Luteaceae과에 속하는 말린 익은 열매로, 간과 신장을 보하고 머리카락을 검게 하며 시력을 개선하는 효능으로 잘 알려져 있습니다. LLF에서 추출한 천연 헤테로다당류가 확인되었으며, 이는 신장 섬유화로부터 신장을 보호할 가능성이 있음이 밝혀졌습니다1. 최근 몇 년 동안 당뇨병성 신증(DN) 치료에 LLF를 사용하는 것에 대한 관심이 높아졌으며, 주목할 만한 신장 보호 효과가 입증되었습니다1,12,13. 또한, LLF와 미토콘드리아 사이의 복잡한 관계에 대해 광범위한 연구와 검증이 이루어졌습니다. 특히, 한 연구에서는 LLF가 AMPK 신호 전달 경로의 활성화를 통해 미토콘드리아 기능을 조절함으로써 유익한 효과를 나타낸다는 것을 보여주었습니다14. 이 기전은 산화 스트레스로 인해 발생하는 손상으로부터 미토콘드리아를 효과적으로 보호합니다. 이러한 결과는 세포 에너지 대사를 유지하고 산화 스트레스에 대한 세포의 회복력을 향상시키는 데 있어 LLF의 중요한 역할을 더욱 강조합니다. 그러나 특히 미토콘드리아 기능의 회복과 관련된 정확한 치료 기전은 여전히 충분히 밝혀지지 않았습니다.
본 연구의 목적은 당뇨병성 신증(DN)에서 LLF가 미토콘드리아 기능에 미치는 치료 효과의 생물학적 메커니즘을 규명하는 것이었습니다. 전사체 데이터와 활성 성분 정보를 통합하여, 생물정보학 도구를 이용해 공공 데이터베이스를 검색함으로써 LLF의 신장 보호 효과와 관련된 후보 바이오마커를 식별하였습니다. 면역 침윤, 임상적 특징과의 연관성, m6A RNA 수정, 기능적 풍부도 분석, 조절 네트워크 구축 및 분자 도킹을 포함한 추가 분석 결과, 이러한 후보 바이오마커들이 DN 치료 중 미토콘드리아 기능을 조절하는 데 핵심적인 역할을 한다는 것이 시사되었습니다. In vivo 검증을 통해 그 중요성이 추가로 확인되었습니다. 이러한 종합적인 분석은 LLF가 DN을 치료하는 메커니즘에 대한 이해를 심화시키며, 미토콘드리아 기능 장애에 기반한 새로운 치료 표적 개발을 위한 견고한 기초를 제공합니다.
프로토콜
데이터 수집
DN과 관련된 GSE142025 및 GSE96804 데이터 세트의 유전자 발현 매트릭스와 해당 임상 데이터를 Gene Expression Omnibus (GEO) 데이터베이스(https://www.ncbi.nlm.nih.gov/geo/)에서 검색하였습니다15. 훈련 세트(GSE142025)에는 GPL20301 플랫폼을 사용하여 시퀀싱한 DN 환자 27명과 대조군 9명의 신장 조직 샘플이 포함되었습니다. 검증 세트(GSE96804)는 GPL17586 플랫폼을 사용하여 처리한 DN 환자 41명과 대조군 20명의 시퀀싱 데이터로 구성되었습니다. 두 데이터 세트 모두 신장 조직에 중점을 두었으며, 특히 GSE96804 데이터 세트는 신장의 주요 여과 단위인 사구체를 조사하였습니다 (그림 1). GSE142025 데이터 세트(훈련 세트)는 전체 신장 조직 샘플로 구성되어 DN의 전사체 경관에 대한 광범위한 개요를 제공합니다. 반면, GSE96804 데이터 세트(검증 세트)는 사구체 여과 손상의 주요 부위인 사구체 조직에 구체적으로 집중합니다. 이 두 데이터 세트는 플랫폼과 조직의 차이로 인해 직접적으로 병합되지 않았으므로, 배치 효과 보정을 적용하지 않았습니다. 대신, 데이터 세트 간 검증을 독립적으로 수행하였습니다. 두 데이터 세트 모두에서 일관된 방향성 변화를 보이고 곡선 아래 면적(AUC)이 0.7보다 큰 유전자를 강력한 후보로 선정하여, 신장 구획 전반에 걸친 일반화 가능성을 뒷받침하였습니다.
MitoCarta3.0 데이터베이스(https://www.broadinstitute.org/mitocarta)로부터 총 1,136개의 미토콘드리아 관련 유전자(MRGs)를 추출하였습니다. LLF의 활성 성분은 경구 생체이용률(OB) 임계값 ≥30% 및 약물 유사성(DL) 임계값 ≥0.18을 기준으로 Traditional Chinese Medicine Systems Pharmacology (TCMSP) 데이터베이스(http://sm.nwsuaf.edu.cn/lsp/tcmsp.php)를 사용하여 예측하였습니다. 이후, 활성 성분에 대한 잠재적 표적 유전자를 Swiss Target Prediction 데이터베이스(http://www.swisstargetprediction.ch/)를 통해 예측하였습니다.
차등 발현 분석
GSE142025 (DN vs. 대조군)의 차등 발현 분석은 limma 패키지 (v3.54.1)를 사용하여 수행되었으며, 유의성 기준은 P.adj < 0.05 및 |log2FoldChange| > 0.5로 설정하였다16. Volcano plot과 히트맵은 각각 ggplot2 (v 3.3.6) 및 ComplexHeatmap (v 2.14.0) 패키지를 사용하여 시각화하였다17,18. DEG, MRG 및 활성 성분의 잠재적 표적 유전자를 교차 분석하여 중첩되는 유전자를 후보 유전자로 정의하였다. 활성 성분과 후보 유전자를 연결하는 네트워크는 Cytoscape 소프트웨어 (v 3.9.0)를 사용하여 구축하였다19.
기능적 풍부도 분석 및 단백질-단백질 상호작용(PPI) 네트워크 구축
후보 유전자의 생물학적 기능과 관련 신호 전달 경로를 탐색하기 위해 clusterProfiler 패키지(v 4.6.2)를 사용하여 Gene Ontology (GO) 및 Kyoto Encyclopedia of Genes and Genomes (KEGG) 풍부도 분석을 수행하였다 (P.adjust < 0.05). 이후 후보 유전자를 STRING 데이터베이스(https://cn.string-db.org/)에 입력하여 PPI 관계(신뢰 수준 ≥ 0.4)를 검색하였으며, Cytoscape (v 3.9.0)20를 사용하여 PPI 네트워크를 구축하였다.
머신러닝
GSE142025 데이터셋을 기반으로 caret 패키지(v6.0-93)를 사용하여 랜덤 포레스트(RF), k-최근접 이웃(KNN), 부분 최소 제곱(PLS), 방사 기저 커널 기반 서포트 벡터 머신(SVM)을 포함한 4가지 머신러닝 알고리즘을 구현하였다. 이전 분석에서 식별된 후보 유전자를 예측 변수로 사용하였으며, 질환 상태(DN 또는 대조군)를 결과 변수로 사용하였다. KNN 모델의 경우, tuneLength = 10으로 설정하고 trainControl 함수를 사용하여 10-겹 교차 검증을 수행하였다. RF 모델은 20개의 나무(ntree = 20)로 적합시켰으며, PLS 및 SVM 모델은 기존 caret 워크플로우에 구현된 설정을 사용하여 적합시켰다.
모델 잔차 분포는 DALEX 패키지(v2.4.3)를 사용하여 평가하였다. 이어서 DALEX의 variable_importance 함수를 사용하여 순열 기반 변수 평가를 수행하였으며, 손실 함수로는 평균 제곱근 오차(RMSE)를 지정하였다. 결과로 도출된 dropout_loss는 해당 변수를 순열 처리한 후 얻은 RMSE를 나타낸다.21,22기존의 분석 워크플로에서, 드롭아웃 손실(dropout loss)이 있는 변수들은 < 모든 모델에서 0.281 이상인 값들이 유지되었으며, 4가지 모든 모델에 공통적으로 나타난 유전자는 이후 검증을 위한 컨센서스 특성 유전자(consensus feature genes)로 정의되었다.
네 가지 머신러닝 모델은 최종 임상 분류기를 구축하기보다는 주로 특성 우선순위 지정에 사용되었습니다. 이에 따라, 발견 데이터셋과 검증 데이터셋 모두에서 ROC 분석을 사용하여 개별 유전자 수준에서 진단 변별력을 후속 평가하였습니다.
후보 바이오마커의 식별
GSE142025 및 GSE96804에서 DN 군과 대조군 샘플 간의 특징 유전자 발현 차이를 Wilcoxon 검정을 사용하여 평가하였다. 유의미한 차별 발현(P < 0.05)을 보이고 두 데이터 세트 전체에서 일치하는 발현 경향을 나타내는 유전자만을 수신자 조작 특성(ROC) 곡선 분석 대상으로 선정하였다. ROC 곡선 생성 및 곡선 아래 면적(AUC) 계산에는 pROC 패키지(v1.18.0)가 사용되었으며, 두 데이터 세트 모두에서 AUC > 0.7을 보인 유전자를 후보 바이오마커로 분류하였다23.
유전자 세트 풍부성 분석 (GSEA)
후보 바이오마커와 관련된 생물학적 기능 및 신호 전달 경로는 GSE142025 데이터 세트에 대한 GSEA를 사용하여 추가로 탐색하였습니다. 먼저, psych 패키지(v2.2.9)를 사용하여 후보 바이오마커와 다른 모든 유전자 간의 스피어만 상관 분석을 수행하였습니다.24상관계수를 계산하고 (높은 순에서 낮은 순으로) 순위를 매겼습니다. 참조 유전자 세트는 Molecular Signatures Database (MSigDB, https://www.gsea-msigdb.org/gsea/msigdb/)의 c2.cp.kegg.v2023.1.Hs.symbols.gmt를 사용하였습니다. 이후 clusterProfiler 패키지 (v4.6.2)를 사용하여 배경 유전자 세트에서 순위가 매겨진 유전자들의 농축도를 평가하기 위해 GSEA를 수행하였습니다. 다중 검정 보정이 적용되었습니다. ~을 통해 FDR 방법 및 보정된 P-값(다음과 같이 표시됨) P.adjust)의 경우, 다음의 조건일 때 유의미한 것으로 간주하였습니다. < 0.05.
M6A 수식 분석
후보 바이오마커의 RNA 메틸화 수식을 조사하기 위해, SRAMP 데이터베이스(http://www.cuilab.cn/sramp/)를 활용하여 후보 바이오마커의 이차 구조 내 고신뢰도 위치에 초점을 맞춰 m6A 수식 부위를 예측하였다. 그 다음, ENCORI 데이터베이스(https://starbase.sysu.edu.cn/)를 사용하여 |HepG2 (shRNA)| > 1 파라미터로 핵심 단백질을 선별함으로써 후보 바이오마커와 상호작용하는 m6A 수식 단백질을 식별하였다. 이어 RPISeq 데이터베이스(http://pridb.gdcb.iastate.edu/RPISeq/)를 사용하여 핵심 단백질과 후보 바이오마커 간의 상호작용 가능성을 예측하였다. 두 대상의 RNA 서열을 일반 텍스트 형식으로 업로드하여 RF 및 SVM 분류기 예측 점수를 생성하였다. 점수가 0.5를 초과하는 경우 상호작용이 유의미한 것으로 간주하였다25. SRAMP 분석은 'Transcript' 모드와 기본 파라미터를 사용하여 m6A 부위 예측을 위한 'High' 임계값으로 수행되었다. ENCORI 분석은 'HepG2 (shRNA)' 파라미터 > 1 조건으로 'miRNA-mRNA' 상호작용 기능을 사용하였다. RPISeq 분석은 기본 파라미터의 RF 분류기를 사용하였으며, 점수 > 0.5는 양성 상호작용을 나타냈다. 이는 계산적 예측이며, 신장 조직 내 m6A 수식이나 RNA-단백질 상호작용에 대한 실험적 증거는 아니다. HepG2 shRNA 기준은 ENCORI의 사전 계산된 데이터 세트에서 도출되었으므로 신장 특이적 조절을 반영하지 않을 수 있다.
면역 침윤 분석
CIBERSORT 알고리즘을 적용하여 GSE142025의 대조군 및 DN 샘플 모두에서 22가지 면역 세포 유형의 비율을 추정하였으며, ggplot2 패키지(v3.3.6)26를 사용하여 생성한 히트맵으로 시각화하였다. CIBERSORT는 LM2 시그니처 행렬을 사용하고, 1,0회의 순열(permutation)을 수행하였으며, 마이크로어레이 데이터에 권장되는 대로 분위수 정규화(quantile normalization)는 비활성화하여 실행하였다. CIBERSORT p < 0.05인 샘플을 선정하여 추가 분석을 진행하였다. CIBERSORT는 벌크 신장 조직 발현량을 통해 면역 세포 분율을 추정하므로, 구획별 침윤(예: 사구체 대 세뇨관 간질)을 구분하거나 침윤된 백혈구와 상주 면역 세포를 구별할 수 없다. 따라서 보고된 상관관계는 조직 수준에서의 결과이며, 공간 분석법을 통해 검증되어야 한다. 유의미하게 풍부한 면역 세포와 후보 바이오마커 간의 Spearman 상관관계 분석은 psych 패키지를 사용하여 수행하였다.
네트워크 구축 및 분자 도킹
후보 바이오마커와 상호작용하는 microRNA(miRNA)는 miRNet 데이터베이스(https://www.mirnet.ca)를 사용하여 예측하였다. 이어서, 식별된 miRNA를 표적으로 하는 긴 비부호화 RNA(lncRNA)를 TarBase(http://www.diana.pcbi.upenn.edu/tarbase) 및 starbase(http://starbase.sysu.edu.cn/) 데이터베이스를 통해 예측하였다. 두 데이터베이스에 공통적으로 존재하는 lncRNA를 선택하여 네트워크를 구축하였다. 이후 Cytoscape 소프트웨어를 사용하여 lncRNA-miRNA-mRNA 조절 네트워크를 구축하였다. 후보 바이오마커를 표적으로 하는 잠재적 활성 성분을 선정하여 활성 성분-바이오마커 네트워크를 구축하였다. 또한, 활성 성분, 후보 바이오마커 및 GSEA에서 식별된 경로를 Cytoscape에 통합하여 활성 성분-바이오마커-경로 네트워크를 생성하였다.
잠재적 활성 성분과 후보 바이오마커 사이의 결합 친화도를 평가하기 위해 분자 도킹 분석을 수행하였다. 바이오마커 단백질의 3D 구조는 Research Collaboratory for Structural Bioinformatics Protein Data Bank(RCSB PDB, https://www.rscb.org/pdb)에서 PDB 파일 형식으로 확보하였다. 잠재적 활성 성분의 2D 구조는 PubChem 데이터베이스(http://pubchem.ncbi.nlm.nih.gov)에서 SDF 형식으로 검색하여 수집하였다. 분자 도킹은 CB-Dock 플랫폼(http://clab.labshare.cn/cb-dock/php/blinddock.php)을 사용하여 진행하였다. 결합 에너지가 -5 kcal/mol 미만인 경우 강한 결합 친화도를 나타내는 것으로 간주하였다27.
Ligustri Lucidi Fructus의 준비 및 인증
여기서 Ligustri Lucidi Fructus (LLF)는 Ligustrum lucidum W. T. Aiton (Oleaceae)의 건조된 익은 열매를 의미합니다. 식물 재료는 중국 약전(Chinese Pharmacopoeia)에 따라 인증되었으며, 증거 표본 번호 20240506, 2024091, 2024103을 산시 중의약 대학교(Shanxi University of Traditional Chinese Medicine)에 기탁하였습니다.
전탕액 제조를 위해, 적격 판정을 받은 LLF 절편 20 g을 증류수 1,0 mL에 넣고 상온에서 30분 동안 침출시켰습니다. 혼합물을 강하게 끓인 후 60분 동안 약불로 서서히 달였습니다. 여과액을 수집하고, 남은 약재를 다시 증류수 1,00 mL와 함께 60분 동안 반복해서 전탕하였습니다. 두 번의 여과액을 합친 후, 여과 및 원심분리 과정을 거쳐 감압 농축함으로써 최종 스톡 농도를 1 g of crude drug/mL(총 부피 10 mL)로 맞추었습니다. 제조된 전탕액은 단기 사용을 위해 4 °C에, 장기 보관을 위해 −20 °C에 저장하였습니다. 실험의 신뢰성과 재현성을 보장하기 위해 LLF 및 전탕액의 품질을 중국 약전(Chinese Pharmacopoeia) 표준에 따라 엄격히 확인하고 검증하였습니다.
정성적 확인을 위해 박층 크로마토그래피를 수행하였다. 간단히 설명하면, 준비된 전탕액의 적절한 부피를 원심분리한 후 상층액을 메탄올로 추출하였다. 여과 후, 시료 용액과 specnuezhenide 표준 물질 용액을 동일한 silica gel G 플레이트에 점적하였다. 전개, 건조 및 자외선 조사 하에서 확인한 결과, 시료 용액의 반점이 표준 화합물과 일치하는 색상 및 위치를 나타내어 LLF의 특성 생성 활성 성분이 존재함이 확인되었다.
정량적 품질 관리를 위해 고성능 액체 크로마토그래피 검출을 수행하였다. 분석은 메탄올-물 혼합액을 이동상으로 하여 C18 컬럼을 사용하여 수행되었다. 검출 파장은 24 nm로 설정하였다. 전탕액 내 specnuezhenide의 함량은 표준 곡선을 기반으로 결정하였다. 결과는 제조된 전탕액의 화학적 조성이 안정적이고 균일함을 보여주었으며, 이를 통해 동물 중재 실험 전반에 걸쳐 일관된 약물 품질을 확보하였다.
동물 실험
SPF 등급의 수컷 db/db 마우스 12마리(8~9주령)와 연령이 일치하는 db/m 마우스 6마리를 산서중의약대학교의 SPF 동물 시설에서 사육하였다. 실험 전, 동물들을 12시간 명기/12시간 암기 주기의 환경에서 7일간 적응시켰으며 자유 섭취 음식과 물을 자유롭게 섭취할 수 있도록 하였다. 본 연구는 산서중의약대학교 윤리위원회의 승인을 받았다(승인 번호 202DW167). 다음과 같은 증상을 보이는 동물들은 >체중의 20% 감소, 빈사 상태, 또는 음식이나 물을 섭취할 수 없는 상태가 된 개체는 계획된 연구 종료 시점 이전에 인도적으로 안락사시켰다. 연구 종료 시, 남은 모든 마우스는 기관 프로토콜에 따라 펜토바르비탈 나트륨(pentobarbital sodium)의 복강 내 주사 후 경추 탈구를 통해 안락사시켰다.
순화 기간 후, db/db 마우스에서 당뇨병성 신증(DN) 모델의 구축은 미미혈당 수치 ≥ 16 mmol/L 및 소변 미세알부민 테스트 스트립의 양성 반응으로 확인된 미세알부민뇨를 통해 확인되었다. DN 모델이 성공적으로 구축된 후, db/db 마우스를 두 그룹(그룹당 n = 6)으로 무작위 배정하였다: DN 모델 그룹(DN)과 LLF 처리 그룹(Treatment). 또한, db/m 마우스(n = 6)를 대조군(Control)으로 사용하였다. 투여량은 당뇨병 쥐를 대상으로 한 LLF의 이전 약력학 연구를 기반으로 선택되었으며, 체표면적 정규화를 통해 인간 등가 용량으로 변환되었다28. 대조군과 DN 그룹에는 증류수를 투여하였고, 처리 그룹에는 8주 동안 3.5 g/kg의 LLF를 투여하였다. 8주간의 투여 후, 모든 마우스를 안락사시켜 후속 테스트를 위한 혈청, 소변 및 신장 조직을 수집하였다.
혈액 및 소변 지표
완전 자동 혈액 생화학 분석기를 사용하여 혈청 포도당 수치를 분석하였습니다. 소변 마이크로알부민 농도는 키트 설명서(보충 파일 1)에 따라 측정하였습니다.
마우스 신장 조직의 병리학적 관찰
조직병리학적 검사를 위해 신장 조직을 처리하였다. 4% paraformaldehyde로 고정한 후, 조직을 세척, 탈수, 파라핀 포매 및 절편 제작하였다. 이어서 Hematoxylin and eosin (HE) 염색을 수행하였으며, 염색된 절편을 광학 현미경으로 관찰하여 병리학적 변화를 평가하였다.
역전사 정량 실시간 중합효소 연쇄반응 (RT-qPCR)
마우스 신장 조직 내 후보 바이오마커의 발현을 결정하기 위해 RT-qPCR을 사용하였다. 제조사의 지침에 따라 총 RNA를 추출한 후, RNA 농도와 품질을 평가하였다(표 1). 추출된 RNA로부터 cDNA Synthesis Kit를 사용하여 cDNA를 합성하였습니다. 증폭은 다음의 프라이머 쌍을 사용하여 수행되었습니다. 표 1, 사용하여 GAPDH 기준 유전자로 사용하였다. 상대적 발현 수준은 2^-ΔCt 방법으로 계산하였다.−ΔΔ임계 주기 (Ct) 방법13,26.
통계 분석
모든 통계 분석은 R 소프트웨어(version 4.2.2) 및 해당 실험 절차에 필요한 소프트웨어를 사용하여 수행되었습니다. 별도로 명시되지 않는 한, 모든 통계 검정은 양측 검정으로 수행되었으며, P < 0.05일 때 통계적으로 유의미한 차이가 있는 것으로 간주하였습니다. 전사체 차등 발현 분석은 limma 패키지를 사용하여 수행되었습니다. 보정된 P < 0.05이며 절대 log2fold change 값이 0.5보다 큰 유전자를 차등 발현된 것으로 정의하였습니다.
독립적인 DN 샘플과 대조군 샘플 간의 후보 유전자 발현을 비교하기 위해, 원래의 분석 워크플로우에 명시된 대로 비모수적 Wilcoxon 순위합 검정을 사용하였습니다. 후보 바이오마커와 면역 세포 분획 간의 상관관계는 Spearman 순위 상관계수를 사용하여 평가하였습니다.
실험 데이터는 평균 ± SD로 나타냈습니다. 모수 분석 가정이 충족된 경우, 세 개의 독립적인 동물 그룹 간의 비교는 일원 분산 분석(one-way analysis of variance)을 사용하여 수행했습니다. 사후 비교를 위해, 분산이 균일할 때는 최소 유의차 검정(least significant difference test)을 사용하였고, 분산이 균일하지 않을 때는 Dunnett's T3 검정을 사용했습니다. 기저치 및 8주 차의 약동학적 측정값은 각각 별도로 분석하고 제시하였으며, 그룹과 시간 간의 상호작용에 관한 추론은 하지 않았습니다. 생물정보학 및 머신러닝 분석에 사용된 R 스크립트와 소스 데이터는 Supplemental File 1에 제공됩니다.
결과
DN 치료에 있어 LLF와 관련된 잠재적인 미토콘드리아 관련 후보 바이오마커를 체계적으로 조사하기 위해, 당사는 4단계 분석 워크플로우를 설계하였습니다(그림 1). 1단계에서는 GSE142025 데이터셋(훈련 세트, 신장 전체, n=36) 및 GSE96804(검증 세트, 사구체, n=61)의 전사체 데이터와 MitoCarta 3.0 데이터베이스의 1,136개 미토콘드리아 관련 유전자, 그리고 TCMSP 데이터베이스의 9가지 활성 성분으로부터 예측된 517개 타겟 유전자를 통합하였습니다. 이 세 가지 유전자 세트의 교집합을 통해 9개의 후보 유전자를 도출하였습니다. 2단계에서는 RMSE < 0.281을 임계값으로 사용하여 특성 유전자의 우선순위를 정하기 위해 4가지 머신러닝 모델(RF, KNN, PLS, SVM)을 적용하였습니다. ROC 분석(두 데이터셋 모두 AUC > 0.7)을 이용한 교차 데이터셋 검증을 통해 CAT, FABP1, MAOB, MAOA의 4가지 후보 바이오마커를 식별하였습니다. 3단계에서는 GSEA를 수행하여 농축된 KEGG 경로를 식별하고, CIBERSORT를 사용하여 면역 침윤 분석과 m6A 수식 예측을 수행하였으며, lncRNA-miRNA-mRNA, 활성 성분-바이오마커, 활성 성분-바이오마커-경로 네트워크를 구축한 후 분자 도킹을 수행하였습니다. 4단계에서는 DN의 db/db 마우스 모델에서 LLF의 약력학적 효과와 4가지 후보 바이오마커의 mRNA 발현 변화를 평가하였습니다.
DN 치료를 위한 LLF 후보 유전자 스크리닝
GSE142025 데이터셋에서 DN 그룹과 대조군 사이에서 1,904개의 상향 조절된 DEG와 1,906개의 하향 조절된 DEG를 포함하여 총 3,810개의 DEG가 확인되었다 (그림 2A,B). TCMSP 데이터베이스를 사용하여 LLF의 13가지 활성 성분인 beta-sitosterol, kaempferol, taxifolin, Lucidumoside D, Lucidumoside D_qt, (20S)-24-ene-3,20-diol-3-acetate, eriodictyol, syringaresinol diglucoside_qt, Lucidusculine, Olitoriside, Olitoriside_qt, luteolin, quercetin을 예측하였다 (표 2). 4가지 활성 성분인 Lucidumoside D_qt, (20S)-24-ene-3,20-diol-3-acetate, syringaresinol diglucoside_qt, Olitoriside_qt는 잠재적 표적 유전자가 예측되지 않았으며, 나머지 9가지 성분에서는 517개의 잠재적 표적 유전자가 예측되었다. 3,810개의 DEG, 1,136개의 MRG, 517개의 잠재적 표적 유전자를 중첩하여 GPX1, BAX, CASP8, MAOA, MAOB, CAT, AKR1B10, ALDH2, FABP1의 9가지 후보 유전자를 식별하였다 (그림 2C). 이후 활성 성분-후보 유전자 네트워크를 구축하였다 (그림 2D). 이 9가지 후보 유전자는 독성 물질에 대한 반응, 유기 하이드록시 화합물 이화 과정, 세포 해독을 포함한 341개의 GO 용어에서 농축되었다 (그림 2E). 또한, 이들은 tryptophan metabolism, 신경퇴행 경로 및 histidine metabolism과 같은 52개의 KEGG 경로와 연관되어 있었다 (그림 2F).
LLF 내 DN 치료를 위한 후보 바이오마커 스크리닝
PPI 네트워크 분석 결과 7개의 노드와 8개의 엣지가 나타났으며, MAOA, ALDH2, MAOB, 그리고 AKR1B10 이 상호작용하는 것으로 확인되었다(Figure 3A). 4가지 머신러닝 모델에서 RMSE 값이 0.281 미만인 유전자인 CAT, MAOB, MAOA, BAX, 그리고 FABP1 이 특징 유전자로 식별되었다(Figure 3B-E). 발현 분석 결과, CAT, FABP1, MAOB, 그리고 MAOA 는 DN 그룹과 대조군 사이에 유의미한 차이를 보였으며, GSE142025 및 GSE96804 데이터셋 모두에서 일관된 결과를 나타냈다(Figure 3F,G). 또한, ROC 곡선 분석에서 이들 유전자의 AUC 값이 두 데이터셋 모두에서 0.7을 초과하여, 해당 유전자들이 DN 샘플을 대조군 샘플과 효과적으로 구별할 수 있으며 LLF 내 DN 치료를 위한 후보 바이오마커로 활용될 수 있음을 시사하였다 (Figure 4A-H).
염증 및 면역 관련 경로에서 후보 바이오마커의 유의미한 농축
GSEA를 통해 케모카인 신호 전달 경로와 사이토카인-사이토카인 수용체 상호작용에서 두드러지게 농축된 4가지 후보 바이오마커를 확인하였습니다 (Figure 5A-D). 이 중 peroxidase 신호 전달 경로는 CAT, MAOA, 및 MAOB와 유의미한 연관성을 보였습니다.
후보 바이오마커와 면역 세포의 상관관계
DN 샘플과 대조군 샘플 사이에 9가지 면역 세포 유형-naive B cells, M0 Macrophage, M1 Macrophage, M2 Macrophage, activated Mast cell, activated NK cell, resting memory CD4+ T cell, naive CD4+ T cell, 그리고 CD8+ T cell—의 발현에서 주목할 만한 차이가 관찰되었다 (P < 0.05) (그림 6A,B). naive B cells와 activated NK cells 사이에는 유의미한 양의 상관관계(cor = 0.6)가 발견되었으며, naive B cells와 activated Mast cells 사이에는 유의미한 음의 상관관계(cor = -0.69)가 검출되었다 (그림 6C). 모든 후보 바이오마커는 CD8+ T cells 및 activated Mast cells와 강한 음의 상관관계를 보였으며, activated NK cells 및 naive B cells와는 양의 상관관계를 나타냈다 (그림 6D).
주요 변형 m6A 단백질과 후보 바이오마커의 상호작용
m6A RNA 메틸화 변형은 RNA 합성 및 대사에 깊은 영향을 미치며 다양한 질환의 병인과 연관되어 있습니다29. 후보 바이오마커 내 m6A 변형 부위의 위치와 이차 구조에서의 높은 신뢰도 위치는 그림 7A-H에 나타나 있습니다. 추가 분석 결과, CAT와 상호작용하는 주요 m6A 변형 단백질에는 AQR 및 RBM2가 포함되었으며, FABP1은 SF3A3 및 AQR 모두와 상호작용했습니다. MAOA는 IGF2BP3 및 IGF2BP2와, MAOB는 TIA1과 상호작용하는 것으로 나타났습니다 (표 3).
DN을 치료하는 LLF 내 taxifolin, beta-sitosterol 및 eriodictyol의 유리한 in silico 결합 예측
miRNet에서 CAT 는 24개의 miRNA와 상호작용하는 것으로 예측되었으며, FABP1 은 5개의 miRNA와 연관된 것으로 나타났다. 또한, MAOB 와 MAOA 는 각각 29개와 26개의 miRNA와 연결되었다. 이들 중 23개의 lncRNA가 TarBase와 Starbase 데이터베이스 모두에서 확인되었다. 이후 4개의 후보 바이오마커, 74개의 miRNA 및 23개의 lncRNA를 포함하는 lncRNA-miRNA-mRNA 조절 네트워크가 구축되었다 (Figure 8A). 후보 바이오마커를 표적으로 하는 잠재적 활성 성분으로는 luteolin, beta-sitosterol, eriodictyol, kaempferol, quercetin 및 taxifolin이 포함되었다 (Figure 8B). 또한, 활성 성분, 후보 바이오마커 및 GSEA에서 확인된 상위 5개 경로를 기반으로 활성 성분-바이오마커-경로 네트워크가 수립되었다 (Figure 8C). 예를 들어, taxifolin은 peroxisome 경로에서 CAT 를 표적으로 하였다. CAT 와 taxifolin (-8.8 kcal/mol), FABP1 와 beta-sitosterol (-8.1 kcal/mol), 그리고 MAOB 와 eriodictyol (-9.8 kcal/mol) 간의 결합 에너지는 모두 -5 kcal/mol 미만이었으며, 이는 이러한 후보 바이오마커와 각각의 활성 성분 사이에 강한 친화력이 있음을 시사한다27. Taxifolin, beta-sitosterol 및 eriodictyol은 DN을 치료하는 LLF에서 유리한 in silico 결합 예측을 보이는 잠재적 활성 성분으로 확인되었다 (Figure 8D-F). 다만, 이들은 관찰된 in vivo 효과의 확인된 생물활성 중간체가 아니라 데이터베이스에서 예측된 성분으로 제시된 것이다.
DN 마우스 모델에서 후보 바이오마커 검증
DN 마우스 치료 시 LLF의 약력학적 평가
투여 기간 동안 마우스의 혈당 및 요중 미세알부민 수치를 모니터링하였다 (Figure 9A-D). 대조군과 비교하여 DN 모델군의 혈당 및 요중 미세알부민은 유의하게 증가하였다(P < 0.01). DN 모델군과 비교했을 때, 치료군 마우스의 혈당은 4주 투여 후 유의하게 감소하였으며(P < 0.01), 요중 미세알부민은 8주 투여 후 유의하게 감소하였다(P < 0.05). 이러한 결과는 LLF가 DN 치료에 유익할 수 있음을 시사한다.
DN 마우스 치료 시 LLF의 병리학적 평가
HE 염색 결과, 대조군은 신장 조직에서 뚜렷한 사구체 구조를 보였다. 이와 대조적으로, DN 모델군은 정상군과 비교하여 사구체 핵의 응축 및 과염색과 함께 사구체 주변의 염증 세포 침윤을 나타냈다. LLF 치료는 db/db 마우스 신장의 병리학적 손상을 개선했다 (그림 9E).
DN 마우스 내 후보 바이오마커 발현의 RT-PCR 분석
DN 마우스 모델의 성공적인 구축과 LLF 치료에 따른 증상의 유의미한 개선 관찰 이후, 후보 바이오마커의 변화를 분석하기 위해 RT-qPCR을 추가로 사용하였다. 대조군과 비교하여, DN군은 CAT 및 MAOA의 발현이 유의하게 감소한 것으로 나타났다(P < 0.05 또는 P < 0.01). 반대로, 치료군은 DN군보다 CAT 및 MAOA 발현이 유의하게 더 높았다(P < 0.05). 그러나 각 군 간에 MAOB 및 FABP1의 발현에서는 통계적으로 유의미한 차이가 관찰되지 않았다(그림 9F-I).
데이터 가용성
본 연구에서 분석된 유전자 발현 데이터 세트는 Gene Expression Omnibus (GEO)의 등록 번호 GSE142025 및 GSE96804를 통해 공개적으로 이용 가능합니다. 생물정보학 분석에 사용된 R 스크립트와 실험 소스 데이터(혈당, 요중 미세알부민 및 RT-qPCR 데이터)는 보충 파일 1에 제공됩니다. 본 연구에서 사용된 기타 모든 데이터베이스, 소프트웨어 및 웹 리소스는 재료 표에 나열되어 있습니다.
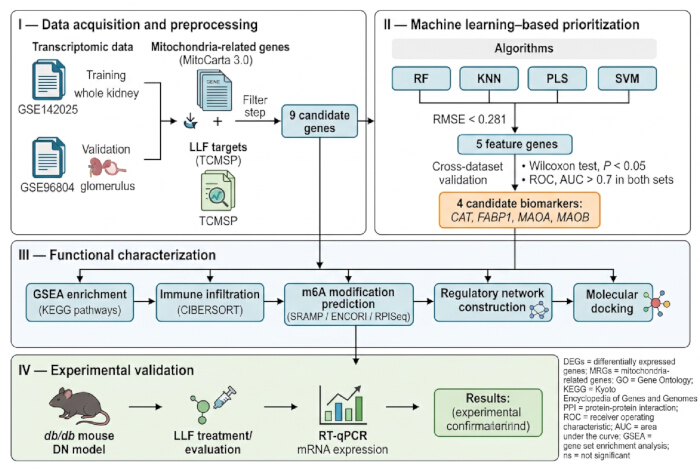
그림 1: 연구 워크플로우. 후보 유전자를 식별하기 위해 전사체 데이터셋, 미토콘드리아 관련 유전자 및 Ligustri Lucidi Fructus의 예측 표적을 통합하였다. 이후 4가지 머신러닝 알고리즘을 사용하여 특징 유전자의 우선순위를 정하고, 데이터셋 간 교차 검증, 기능적 특성 분석 및 db/db 마우스에서의 실험적 검증을 수행하였다. 약어: DN = 당뇨병성 신병증; DEGs = 차등 발현 유전자; MRGs = 미토콘드리아 관련 유전자; LLF = Ligustri Lucidi Fructus; RF = 랜덤 포레스트; KNN = k-최근접 이웃; PLS = 부분 최소 제곱; SVM = 서포트 벡터 머신; RMSE = 평균 제곱근 오차; GSEA = 유전자 세트 풍부성 분석; RT-qPCR = 역전사 정량 PCR. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
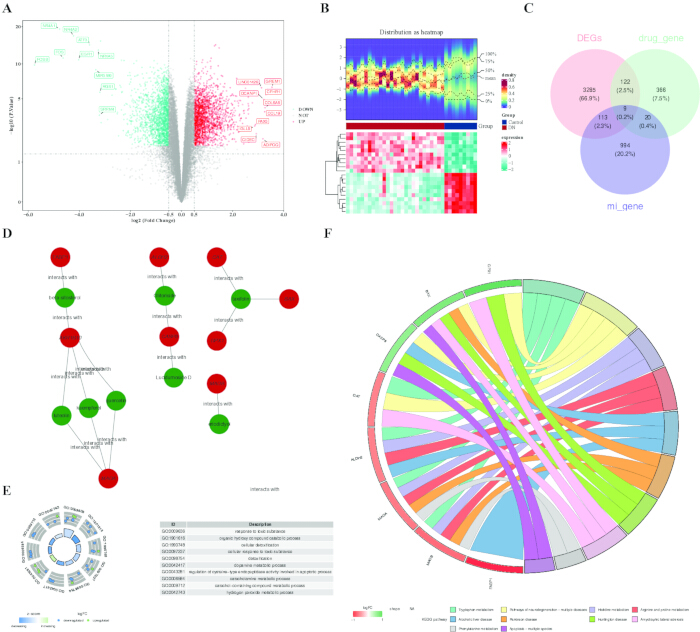
그림 2: DN의 LLF 치료를 위한 후보 유전자의 스크리닝 및 기능적 특성 분석. (A) GSE142025에서 DN 샘플과 대조군 샘플 간의 차별 발현 유전자를 나타내는 화산 플롯. (B) |log2FC| 기준으로 순위를 매긴 상위 10개 상향 조절 유전자 및 상위 10개 하향 조절 유전자의 히트맵. (C) DEG, MRG 및 예측된 LLF 표적 유전자의 교집합을 보여주는 벤 다이어그램. (D) 활성 성분-후보 유전자 네트워크. (E) 후보 유전자의 유전자 온톨로지(Gene Ontology) 농축 분석. 막대 높이는 농축 유의성을 나타내며, z-score는 기능적 조절의 예측 방향을 나타낸다. (F) 후보 유전자의 Kyoto Encyclopedia of Genes and Genomes 경로 농축 분석. 약어: DN = 당뇨병성 신증; LLF = Ligustri Lucidi Fructus; DEGs = 차별 발현 유전자; MRGs = 미토콘드리아 관련 유전자; GO = Gene Ontology; KEGG = Kyoto Encyclopedia of Genes and Genomes. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
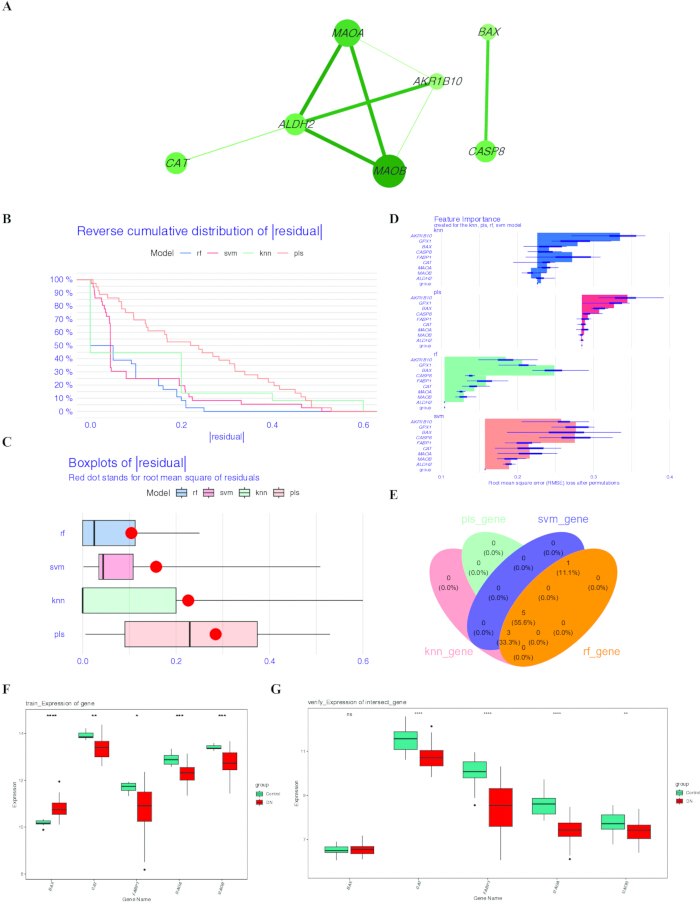
그림 3: 머신러닝 기반의 후보 바이오마커 식별. (A) 후보 유전자에 의해 인코딩된 단백질들의 단백질-단백질 상호작용 네트워크. (B) RF, KNN, PLS 및 SVM 모델의 잔차에 대한 역누적분포. (C) 4가지 모델의 잔차 분포를 나타내는 박스플롯; 빨간색 점은 평균 제곱근 오차를 나타냄. (D) 4가지 머신러닝 모델 전반에 걸친 후보 유전자의 RMSE 기반 중요도. (E) 4가지 모델 모두에서 RMSE < 0.281 기준을 충족하는 특성 유전자들의 교집합. (F,G) 각각 GSE142025 및 GSE96804에서의 선택된 특성 유전자 발현. 약어: RF = random forest; KNN = k-nearest neighbor; PLS = partial least squares; SVM = support vector machine; RMSE = root mean square error. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
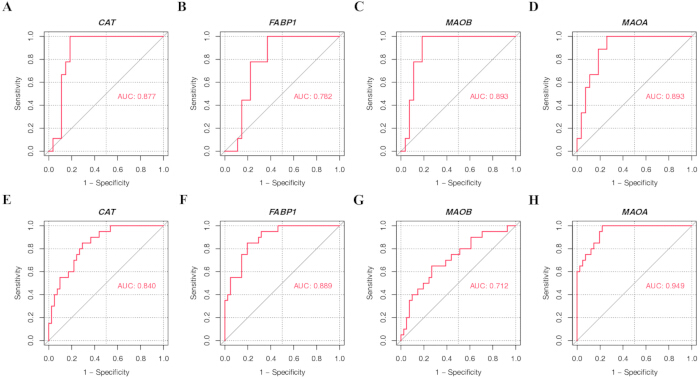
그림 44가지 후보 바이오마커의 수신자 조작 특성 곡선. ( 내 CAT, FABP1, MAOB 및 MAOA에 대한 ROC 곡선A-D) GSE142025 훈련 데이터 세트 및 (E-H) GSE96804 검증 데이터셋. AUC는 수신기 작동 특성 곡선 아래 면적을 나타냄. 약어: ROC = 수신기 작동 특성; AUC = 곡선 아래 면적. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
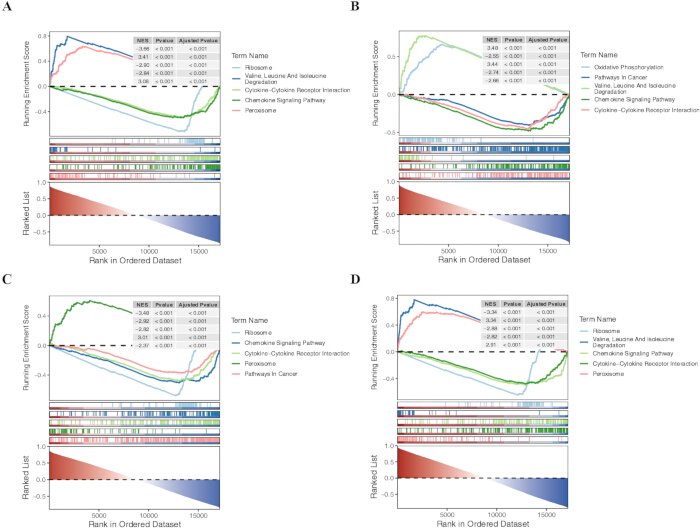
그림 5: 후보 바이오마커의 유전자 세트 농축 분석. GSE142025 데이터셋에서 (A) CAT, (B) FABP1, (C) MAOA, 및 (D) MAOB와 관련하여 유의하게 농축된 KEGG 경로를 보여주는 GSEA. 약어: GSEA = 유전자 세트 농축 분석; KEGG = 교토 유전자 및 게놈 백과사전. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
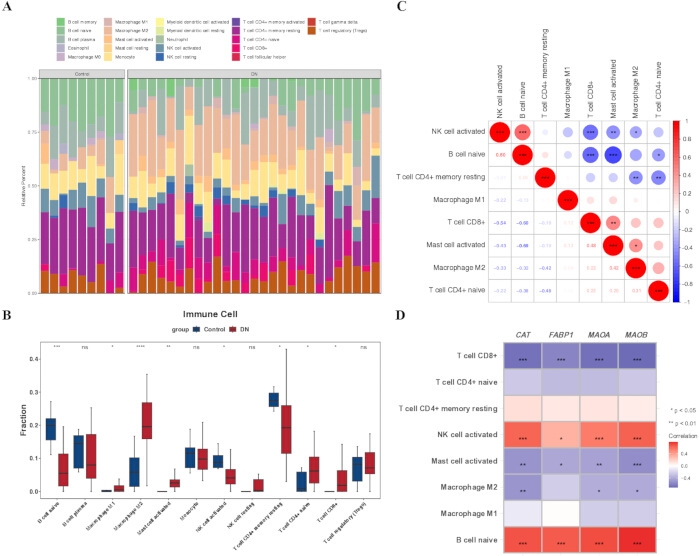
그림 6: DN에서의 면역 세포 침윤 및 후보 바이오마커와의 연관성. (A) DN 및 대조군 샘플에서 CIBERSORT로 추정한 2가지 면역 세포 유형의 상대적 비율. (B) DN 군과 대조군 간에 유의미한 차이를 보이는 면역 세포 분획의 비교. (C) 유의미하게 차이 나는 면역 세포 유형 간의 상관관계 행렬. (D) CAT, FABP1, MAOA, MAOB의 발현량과 유의미하게 차이 나는 면역 세포 유형 간의 Spearman 상관관계. 약어: DN = 당뇨병성 신증. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
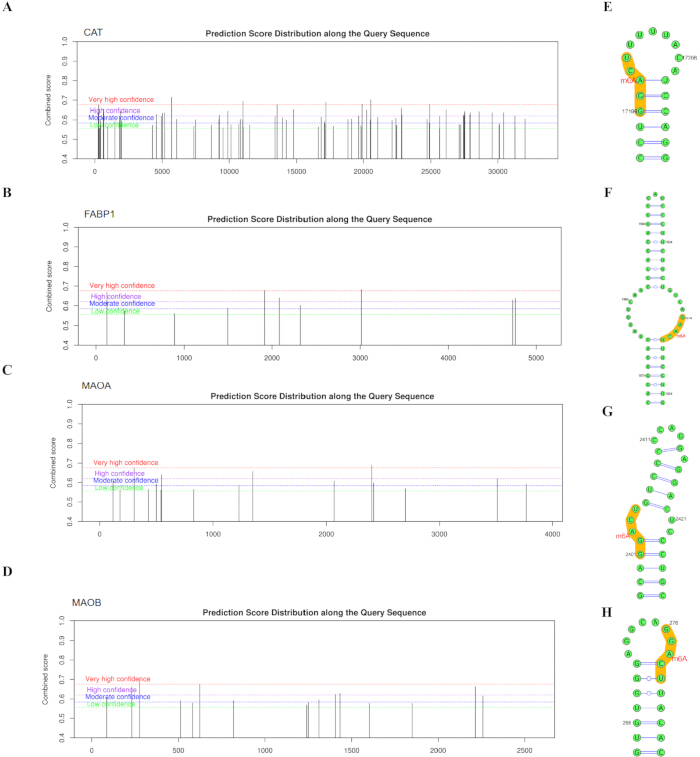
그림 7: 후보 바이오마커 전사체의 예측 m6A 수식 부위 및 RNA 2차 구조. (A) CAT, (B) FABP1, (C) MAOA, (D) MAOB의 예측 m6A 수식 부위. (E) CAT, (F) FABP1, (G) MAOA, (H) MAOB의 신뢰도가 높은 m6A 관련 영역을 보여주는 예측 RNA 2차 구조. 노란색으로 강조된 영역은 m6A 수식 부위를 포함하는 것으로 예측되는 서열 영역을 나타냄. 약어: m6A = N6-methyladenosine. 그림의 확대 버전을 보려면 여기를 클릭하십시오.
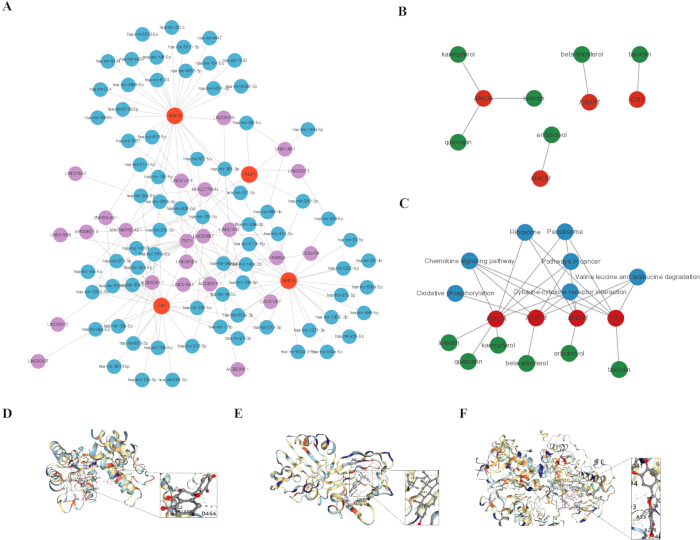
그림 8: LLF의 잠재적 활성 성분의 조절 네트워크 및 분자 도킹. (A) 후보 바이오마커가 포함된 예측 lncRNA–miRNA–mRNA 조절 네트워크. (B) LLF의 잠재적 활성 성분과 후보 바이오마커의 네트워크. (C) GSEA 결과에 기반한 활성 성분–바이오마커–경로 네트워크. (D-F) (D) taxifolin과 CAT, (E) beta-sitosterol과 FABP1, 그리고 (F) eriodictyol과 MAOB의 예측 분자 도킹 형태. 약어: LLF = Ligustri Lucidi Fructus; lncRNA = long noncoding RNA; miRNA = microRNA; GSEA = gene set enrichment analysis. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
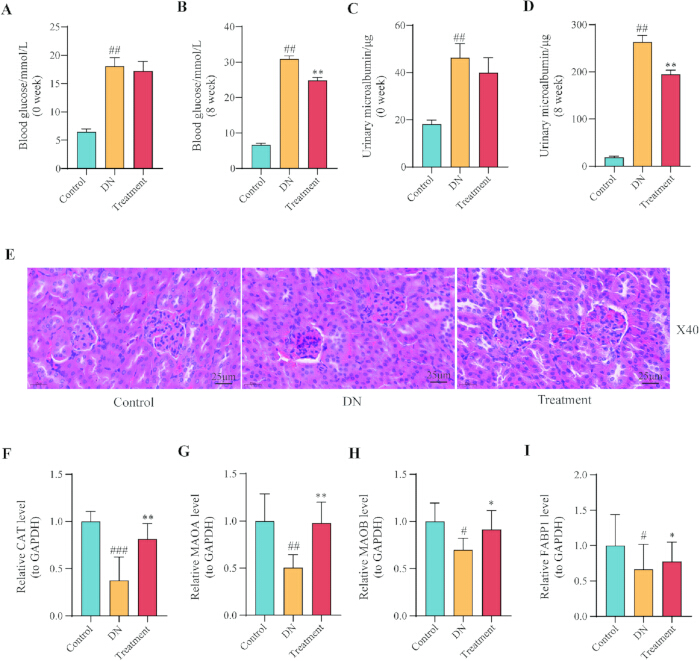
그림 9: db/db 마우스의 생화학적 지표, 신장 조직병리 및 후보 바이오마커 발현에 미치는 LLF 처리의 효과. (A,B) 각각 기저치와 8주 차의 혈당 수치. (C,D) 각각 기저치와 8주 차의 요중 미세알부민 수치. (E) 대조군(Control), DN군 및 처리군(Treatment)의 대표적인 hematoxylin and eosin 염색 신장 절편 (배율, ×40; 스케일 바 = 25 µm). (F-I) RT-qPCR로 측정한 Cat, Maoa, Maob 및 Fabp1의 상대적 신장 mRNA 발현 수준. #P < 0.05, ##P < 0.01, ###P < 0.01 대조군 대비; *P < 0.05, **P < 0.01, ***P < 0.01 DN군 대비. 약어: LLF = Ligustri Lucidi Fructus; DN = 당뇨병성 신증; RT-qPCR = 역전사 정량 PCR. 그림의 확대 버전을 보려면 여기를 클릭하십시오.
| 프라이머 | 서열 |
| 촉매(CAT) F | TCACTGACGAGATGGCAC |
| 고양이 R | ATCGAACGGCAATAGGGGTC |
| FABP1 F | CAATAGGTCTGCCCGAGGAC |
| 지방산 결합 단백질 1 (FABP1) R | GTCATGGTCTCCAGTTCGCA |
| 모노아민 산화효소 B(MAOB) F | GCACTGAAACAGCCTCACAC |
| 모노아민 산화효소 B (MAOB) R | TCGTGCAGGGACATCCAAAG |
| 모노아민 산화효소 A (MAOA) F | ACTTACCCATTCCGTGGTGC |
| 모노아민 산화효소 A R | ACCACAGGGCAGATACCTCA |
| M-GAPDH F | CCTTCCGTTCCTACCCC |
| M-GAPDH R | GCCCAAGATGCCCTTCAGT |
표 1: 생쥐 신장 조직의 RT-qPCR 분석에 사용된 프라이머 서열. 약어: F = 정방향 프라이머; R = 역방향 프라이머; RT-qPCR = 역전사 정량 중합효소 연쇄 반응.
| 분자 ID | 분자명 | OB (%) | 심층 학습(Deep Learning) | 대상 번호 |
| MOL00358 | 베타-시토스테롤 | 36.91 | 0.75 | 100 |
| MOL0042 | 캠페롤 | 41.88 | 0.24 | 103 |
| MOL04576 | 택시폴린 | 57.84 | 0.27 | 92 |
| MOL05146 | 루시두모사이드 D | 48.87 | 0.71 | 104 |
| MOL05147 | 루시두모사이드 D_qt | 54.41 | 0.47 | 0 |
| MOL05169 | (20S)-24-ene-3,20-diol-3-acetate | 40.23 | 0.82 | 0 |
| MOL05190 | 에리오딕티올 | 71.79 | 0.24 | 101 |
| MOL05195 | 시링가레시놀 디글루코사이드_qt | 83.12 | 0.8 | 0 |
| MOL05209 | 루시더스쿨린 | 30.11 | 0.75 | 105 |
| MOL0521 | 올리토리사이드(Olitoriside) | 65.45 | 0.23 | 100 |
| MOL05212 | 올리토리사이드_qt | 103.23 | 0.78 | 0 |
| MOL006 | 루테올린 | 36.16 | 0.25 | 102 |
| MOL0098 | 퀘르세틴 | 46.43 | 0.28 | 103 |
표 2: TCMSP 데이터베이스를 사용하여 확인한 Ligustri Lucidi Fructus의 13가지 활성 성분. 약어: OB = 경구 생체 이용률; DL = 약물 유사성.
| 메신저 RNA | 단백질 | 무선 주파수 | 서포트 벡터 머신(SVM) |
| 컴퓨터 단층촬영(CAT) | AQR | 0.7 | 0.98 |
| 컴퓨터 단층촬영(CAT) | RBM2 | 0.8 | 0.97 |
| 지방산 결합 단백질 1 (FABP1) | AQR | 0.65 | 0.94 |
| 지방산 결합 단백질 1 (FABP1) | SF3A3 | 0.7 | 0.8 |
| MAOA | IGF2BP2 | 0.75 | 0.97 |
| 모노아민 산화효소 A | IGF2BP3 | 0.75 | 0.97 |
| 모노아민 산화효소 B (MAOB) | TIA1 | 0.85 | 0.89 |
표 3: 4종의 미토콘드리아 바이오마커 mRNA와 m6A 관련 RNA 결합 단백질 간의 예측 상호작용. CAT, FABP1, MAOA 및 MAOB는 인간 바이오마커 mRNA를 나타내며, AQR, RBM2, SF3A3, IGF2BP2, IGF2BP3 및 TIA1은 RNA 결합 단백질을 나타낸다. RF 및 SVM 점수 > 0.5는 예측된 RNA-단백질 상호작용을 나타냅니다. 약어: RF = 랜덤 포레스트; SVM = 서포트 벡터 머신.
보충 파일 1. 생물정보학 스크립트 및 실험 소스 데이터. 이 아카이브에는 데이터 처리, 차등 발현 분석, 기능적 농축 분석, 머신 러닝, 수신자 조작 특성(ROC) 분석, 유전자 세트 농축 분석, Spearman 상관관계 분석 및 CIBERSORT 면역 세포 침윤 분석에 사용된 R 스크립트와 혈당, 요중 미세 알부민 및 RT-qPCR 실험의 소스 데이터가 포함되어 있습니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
LLF는 간과 신장을 보하고 당뇨병 및 그 합병증을 치료하는 데 주로 사용되는 일반적인 전통 중약입니다. 현재 DN에 대한 특정 약물이나 치료법은 없으며, 그 관리는 주로 혈당 강하, 혈중 지질 강하 및 항고혈압 치료에 의존하고 있습니다30,31,32. 그러나 이러한 치료법은 소수의 환자에게서만 신장 손상 진행을 늦출 수 있습니다3. LLF는 포도당 및 지질 대사 장애를 교정하고 산화 스트레스를 완화함으로써 DN 쥐 모델에서 신장 보호 효과를 나타내는 것으로 입증되었습니다34. 특히, 미토콘드리아 함량과 산소 소비량이 매우 높은 기관인 신장에서 비정상적인 미토콘드리아 역동성은 DN의 병태생리에 중추적인 역할을 합니다35. 본 연구는 DN 치료 시 LLF가 특정 후보 바이오마커(CAT, FABP1, MAOB, MAOA)를 통해 미토콘드리아 기능에 영향을 미칠 수 있는 새로운 메커니즘을 밝힙니다.
이전 연구들에 따르면 catalase (CAT), fatty acid-binding protein 1 (FABP1), monoamine oxidase B (MAOB), 그리고 monoamine oxidase A (MAOA)가 다양한 정도로 DN에 관여하는 것으로 나타났습니다. CAT 은 항산화 방어 체계에 관여하여 산화 스트레스로 인한 손상으로부터 신장을 보호합니다36. 체내의 핵심 항산화 효소인 CAT는 미토콘드리아 관련 생리적 과정을 조절함으로써 DN의 발생과 진행을 조절하는 데 참여합니다37. CAT는 특히 과산화수소(H₂O₂)를 물과 산소로 분해하는 반응을 촉매하여 미토콘드리아에서 유래하는 ROS를 효과적으로 제거합니다. 이는 산화 스트레스로 인한 미토콘드리아 구조 및 기능의 손상을 줄이고, 미토콘드리아 막 전위의 안정성과 산화적 인산화 효율을 유지함으로써 고혈당으로 유발된 신장 세포 손상을 완화하고 DN의 진행을 지연시킵니다38. 또한, CAT 발현의 하향 조절은 미토콘드리아 ROS 제거의 부족으로 이어져 미토콘드리아 분절화와 크리스테(cristae) 붕괴를 악화시킵니다. 이는 미토콘드리아 융합을 억제하는 동시에 분열을 촉진하여 미토콘드리아 역동성을 더욱 불안정하게 만듭니다. 결과적으로 메산지움 세포 및 족세포와 같은 고유 세포들에 대사 장애가 발생하며, 이로 인해 신장 조직의 섬유화가 가속화됩니다39.
FABP1은 지방산 결합 단백질 가족의 일원으로, 주로 장쇄 지방산의 수송, 대사 및 세포 내 신호 전달에 관여합니다. FABP1의 비정상적인 발현은 다양한 대사 질환 및 신장 손상과 밀접한 관련이 있는 것으로 입증되었으며, 당뇨병성 신증(DN)40의 발생과 진행에서 중요한 조절 역할을 합니다. 연구에 따르면 FABP1은 지질 대사를 방해함으로써 DN의 진행을 조절합니다. 당뇨병 상태에서 FABP1의 비정상적인 발현은 지방산 수송과 대사를 교란합니다. 과도한 유리 지방산과 그 대사물이 신장 조직에 축적되어 사구체 내피세포와 세뇨관 상피세포를 직접적으로 손상시키며, 이로 인해 신장 염증과 섬유화가 악화됩니다41. 동시에, FABP1은 산화 스트레스와 저산소증 유발 손상을 매개하여 신장 조직 손상을 심화시킵니다. FABP1의 요중 배설은 요중 알부민 수치가 비정상적으로 변하기 전에 증가할 수 있어, DN의 조기 스크리닝 및 진단을 위한 새로운 표적을 제공합니다41,42. 또한, FABP1은 미토콘드리아 지방산 대사에서 중심적인 조절 역할을 합니다43. 연구 결과에 따르면 FABP1의 상향 조절은 미토콘드리아로의 지방산 수송 효율을 유의하게 향상시키고, 미토콘드리아 β-산화 활성 및 트리카르복실산 회로 효소 활성을 증가시켜 세포 에너지 대사를 개선합니다4. 그러나 FABP1이 미토콘드리아 관련 과정에 관여하여 DN 발병 기전에 영향을 미치는 메커니즘은 아직 명확하지 않습니다. 다른 DN 관련 조건에서 신경전달물질 대사에 관여하는 효소인 MAOB와 MAOA는 DN 진행과 연관되어 조직의 산화환원 상태 불균형에 기여하는 것으로 알려져 있습니다. 본 연구는 DN에서 이 네 가지 후보 바이오마커의 핵심적인 역할을 추가로 확인하였으며, 이들의 발현 수준은 DN 군에서 감소하는 것으로 나타났습니다. 이러한 후보 바이오마커의 발현을 조절함으로써 DN의 염증과 산화 스트레스를 줄이는 데 도움이 될 수 있을 것으로 가설을 세웠습니다.
GSEA 농축 분석 결과, CAT, FABP1, MAOB, MAOA의 네 가지 후보 바이오마커가 케모카인 신호 전달 경로, 사이토카인-사이토카인 수용체 상호작용 및 퍼옥시좀 경로를 포함한 여러 경로에서 농축된 것으로 나타났다. 케모카인은 면역 반응의 핵심 구성 요소로서 염증을 촉진한다. peroxidase (POD) 경로는 산화 스트레스와 연관되어 있다45. Baicalin은 산화 스트레스와 염증을 감소시켜 당뇨병성 신증(DN)을 완화하는 것으로 보고되었으며, 그 기전은 NrF2 매개 항산화 신호 전달 경로의 활성화 및 MAPK 매개 염증 경로의 억제를 포함할 가능성이 있다45. 또한, 지질 대사에서 FABP1의 조절 장애는 DN의 사구체 경화증 및 간질성 섬유화에 기여할 수 있다9. 이러한 결과는 후보 바이오마커들이 DN의 염증 및 산화 스트레스 과정에서 중요한 역할을 한다는 것을 시사한다. 이러한 후보 바이오마커를 표적으로 하여 이들이 영향을 미치는 경로를 조절함으로써 DN과 관련된 염증 및 산화 스트레스를 완화하고, 결과적으로 질환의 진행을 늦출 수 있을 것이다.
생물정보학 분석 결과, DN 신장 조직 내 CD8+ T 세포와 같은 면역 하위 집단의 침윤 수준이 유의하게 변화했으며, CD8+ T 세포의 증가는 4가지 미토콘드리아 관련 후보 바이오마커(CAT, FABP1, MAOB, MAOA)의 발현과 유의미한 음의 상관관계를 보였습니다. 이러한 전산 예측은 동물 실험의 병리학적 관찰 결과와 일치합니다. DN 모델군 쥐의 신장 HE 염색 절편에서는 사구체 주변으로 뚜렷한 염증 세포 침윤이 관찰되었으나, LLF 중재 후 치료군의 신장 염증 세포 침윤은 유의하게 감소하였고 병리학적 손상이 개선되었습니다. 이는 염증 세포 침윤의 증가가 DN 신장 손상의 핵심 특징이며, LLF가 면역 침윤을 조절함으로써 보호 역할을 할 수 있음을 시사합니다. 이러한 발견은 CD8+ T 세포의 침윤이 DN의 진행과 관련이 있으며, 그 반응을 억제하면 질병을 완화할 수 있다는 이전 연구들46 및 Adriamycin 신병증에서 신장 손상을 악화시킨다는 결과47와 일치합니다. 또한, DN 병리 과정에서 B 세포, M1 / M2 대식세포, NK 세포와 같은 다양한 면역 세포의 변화가 나타납니다48. 바이오마커 CAT는 DN에서 면역 세포의 기능에 영향을 줄 수 있으며49, MAOA 또한 대식세포 분극화를 조절하여 면역 미세환경에 영향을 줄 수 있습니다. 이러한 결과는 LLF의 신장 보호 효과가 CD8+ T 세포를 포함한 비정상적인 면역 침윤을 조절하여 염증성 손상을 줄이는 것과 밀접한 관련이 있음을 나타냅니다. 4가지 후보 바이오마커와 CD8+ T 세포 및 활성화된 비만 세포 간의 음의 상관관계는 이들 유전자가 신장 면역 미세환경을 조절할 수 있음을 시사합니다. CAT 발현은 대사 조직 내 대식세포 분극화 및 T 세포 활성과 연관된 바 있습니다. 그러나 본 연구의 CIBERSORT 추정치는 벌크 신장 조직 전사체에서 도출되었으므로, 사구체와 세뇨관-간질 구획에 침윤된 면역 세포 하위 유형을 구분할 수 없습니다. 따라서 관찰된 상관관계는 인과적 면역 조절의 증거라기보다 가설 생성적 연관성으로 해석되어야 합니다. 이러한 면역-바이오마커 상호작용의 위치를 특정하기 위해서는 다중 면역조직화학 염색 또는 단일 세포 RNA-seq을 이용한 향후 연구가 필요합니다.
이전 연구들은 OPA1, MFN2, DRP1, PGC-1α 및 SOD2를 포함하여 당뇨병성 신증(DN)에서 미토콘드리아 관련 바이오마커들을 보고한 바 있습니다. 본 연구의 CAT 및 MAOA 결과는 DN의 미토콘드리아 맥락에서 상대적으로 관심이 적었던 퍼옥시좀 및 모노아민 산화효소 경로를 강조함으로써 기존 문헌을 보완합니다. 특히, SOD2와 GPX1은 전형적인 ROS 제거 효소인 반면, CAT는 특히 퍼옥시좀의 H2O2를 표적으로 한다는 점에서 산화 스트레스 조절의 뚜렷한 세포 내 구획을 시사합니다.
천연 플라보노이드인 Taxifolin (TA)은 당뇨병 쥐의 혈당, 요산, 크레아티닌 및 혈청 인슐린 수치를 유의하게 감소시키는 동시에, 이러한 동물들의 병리적 신장 변화를 완화하는 것으로 나타났습니다50. β-sitosterol은 지질 균형을 조절하고 항염증 효과를 나타냄으로써 당뇨병성 신증(DN)을 간접적으로 개선할 수 있습니다. 황기갈근탕(HGD)의 β-sitosterol 성분은 Vascular Endothelial Growth Factor A (VEGFA) 및 Interleukin-6 (IL-6)와 같은 분자를 표적으로 하여 DN 관련 경로에 관여합니다. 이러한 효과에는 항염증, 항세포사멸, 항산화 및 자가포식 작용이 포함되며, 이는 신섬유화와 신피질 손상을 줄이고 신기능을 개선하여 결과적으로 DN의 진행을 지연시킵니다51. 또 다른 천연 플라보노이드인 Eriodictyol은 산화 스트레스와 염증의 균형을 맞춤으로써 허혈성 뇌졸중(IS)을 보호하는 것으로 나타났습니다52. DN 맥락에서 eriodictyol에 대한 연구는 제한적이지만, 해당 질환이 염증 및 산화 스트레스와 연관되어 있다는 점을 고려할 때, 유사한 메커니즘을 통해 DN을 완화할 수 있을 것이라는 가설을 세울 수 있습니다. 본 연구의 약물 예측 또한 Taxifolin, β-sitosterol 및 eriodictyol이 DN에서 잠재적인 치료 효과를 가짐을 시사합니다. 분자 도킹은 가능한 결합 형태와 친화도를 예측하지만, in vivo 표적 결합, 생체 이용률 또는 약리학적 활성을 확립하는 것은 아닙니다. 이러한 결과는 확증적인 것이 아니라 가설 생성 단계로 해석되어야 합니다.
당뇨병성 신증(DN)에 관한 이전의 네트워크 약리학 연구들은 주로 개별 신호 전달 경로(예: AGE-RAGE, PI3K-AKT 및 MAPK)에 집중해 왔으며, 미토콘드리아 기능 장애를 고려하거나 바이오마커의 우선순위를 정하기 위해 다중 모델 머신러닝을 적용하지 않았습니다. 본 연구는 세 가지 방법론적 및 생물학적 진전을 제시합니다: (1) 전사체 전반의 차등 발현 유전자(DEG)를 미토콘드리아 유전자 세트 및 약물-표적 예측과 통합하였으며, (2) 네 가지의 서로 다른 머신러닝 모델과 교차 데이터셋 검증을 적용하여 강건한 후보군을 우선적으로 선정하였고, (3) DN의 미토콘드리아 맥락에서 상대적으로 덜 연구되었던 퍼옥시좀(CAT) 및 모노아민 산화효소(MAOA/MAOB) 경로를 잠재적 치료 축으로 식별하였습니다.
마우스 신장에서 MaoB 및 Fabp1 발현의 통계적으로 유의미한 변화가 나타나지 않은 것은 몇 가지 요인 때문일 수 있습니다. 첫째, 후보군 우선순위 선정에 사용된 두 개의 Gene Expression Omnibus (GEO) 데이터셋은 인간 신장 샘플(각 전체 신장 및 사구체)에서 유래한 반면, 본 동물 실험에서는 마우스 신장 조직을 사용했습니다. 유전자 조절의 종 특이적 차이가 기저 발현 수준과 약물 반응성에 영향을 미쳤을 수 있습니다. 둘째, 상대적으로 작은 표본 크기(그룹당 n = 6)로 인해 중간 정도의 효과 크기를 검출하기 위한 통계적 검정력이 제한되었을 수 있습니다. 셋째, 조직을 처치 8주 후에 수집했는데, 이는 MaoB 및 Fabp1의 전사체 변화를 검출하기 위한 최적의 시기를 놓쳤을 가능성이 있으며, 해당 유전자들이 mRNA 수준보다는 단백질 또는 활성 수준에서 조절될 수 있습니다. 넷째, 전체 신장과 특정 구획 간의 조직 이질성이 불일치에 기여했을 수 있습니다. 이러한 가능성들에 대한 추가적인 조사가 필요합니다.
본 연구에서는 통합 생물정보학 및 머신러닝 접근 방식을 사용하여 DN의 LLF에 대한 잠재적 미토콘드리아 후보 유전자로 CAT, FABP1, MAOA 및 MAOB를 식별하였습니다. In vivo 실험을 통해 LLF가 신장 조직에서 CAT와 MAOA를 유의하게 상향 조절함을 확인하였으며, 이는 해당 유전자들이 향후 기전 및 치료 연구를 위한 유망한 표적임을 시사합니다. 반면, MAOB와 FABP1은 동일한 방향으로 유의하지 않은 경향을 보여, 계산적 예측의 우선순위를 정할 때 실험적 검증의 중요성을 강조하였습니다. 이러한 결과는 DN에서 미토콘드리아 관련 치료 전략을 탐구하기 위한 향후 연구의 근거를 제공합니다.
공개 사항
저자들은 선언할 이해상충 관계가 없습니다.
감사의 글
본 연구 전 과정에서 지원과 도움을 주신 모든 개인과 기관에 진심으로 감사를 표합니다. 본 연구는 중국 국가자연과학재단(No.81973486 및 82173974), 산시성 중의약 관리국의 연구 프로젝트(No.2024ZYYA021), 산시 중의약 대학교의 학과 프로젝트(No.2026XK24), 그리고 산둥 중의약 대학교의 과학 연구 기금 프로젝트(No. KYZK2024Q13)의 지원을 받아 수행되었습니다. 식물 재료의 인증을 도와주신 산시 중의약 대학교의 Qinqing Li 부교수님께 감사드립니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 4% 파라포름알데히드 조직 고정액 | Saiyin Biotechnology Co., Ltd. | 71033600 | |
| 무수 에탄올 | Sinopharm Chemical Reagent Co., Ltd. | 10009218 | |
| 혈당 측정기 | Sinocare Inc. | GA-3 | |
| 혈중 요소 질소(BUN) 측정 키트 | Nanjing Jianwei Bioengineering Institute | C03-2-1 | |
| C57BLKS/J db/db 마우스 | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-0013 | |
| C57BLKS/J db/m 마우스 | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-0013 | |
| 원심분리기 | Hunan Xiangyi Laboratory Instrument Development Co., Ltd. | HI650 | |
| 클로랄 하이드레이트 | Shanghai Aladdin Biochemical Technology Co., Ltd. | 302-17-0 | |
| Cytoscape (v3.9.0) | https://cytoscape.org | ||
| m6A 수정 예측 데이터베이스 | http://www.cuilab.cn/sramp/ | ||
| 한약재 활성 성분 데이터베이스 | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| ENCORI / Starbase | https://starbase.sysu.edu.cn/ | ||
| 유전자 발현 옴니버스(GEO) | https://www.ncbi.nlm.nih.gov/geo/ | ||
| 헤마톡실린-에오신(HE) 염색 키트 | Servicebio | C0105S | |
| 고속 원심분리기 | Labnet, USA | C2500-R-230V | |
| 면역 침윤 분석 도구 | https://cibersort.stanford.edu/ | ||
| 작약류루치과 | Sichuan Quanyirun Biotechnology Co., Ltd. | 20240506 | |
| 자석 교반기 | Jintan Zhongtian Instrument Factory, Jiangsu | T8-1 | |
| 현미경 | Olympus | BX53 | |
| 마이크로톰 | Leica, Germany | RM 2016 | |
| 소량 분광광도계 | Hangzhou Aosheng Instrument Co., Ltd. | Nano-300 | |
| miRNet | https://www.mirnet.ca | ||
| MitoCarta 3.0 | https://www.broadinstitute.org/mitocarta | ||
| 모델 해석용 R 패키지 | https://cran.r-project.org/package=DALEX | ||
| 분자 도킹 플랫폼 | http://clab.labshare.cn/cb-dock/ | ||
| 마우스 미세알부민뇨 ELISA 키트 | Fine Test | EM0632 | |
| 마우스 미세알부민뇨 검사지 | Guangzhou Huadu Gaoerbao Biotechnology Co., Ltd. | 20211203 | |
| 마우스 혈청 크레아티닌 ELISA 키트 | Abmart | AB5990A | |
| MSigDB | https://www.gsea-msigdb.org/gsea/msigdb/ | ||
| PCR 열 사이클러 | Roche | Roche LightCycler 480 | |
| R 소프트웨어(v4.2.2) + R 패키지 | https://www.r-project.org / CRAN/Bioconductor | ||
| RCSB PDB | https://www.rcsb.org | ||
| RNA 추출 키트 | Beijing Jumei Biotech Co., Ltd. | MF-036-01 | |
| RPISeq | http://pridb.gdcb.iastate.edu/RPISeq/ | ||
| RT-qPCR 키트 | Beijing Jumei Biotech Co., Ltd. | MF949-T | |
| 살리도사이드 | Sichuan Quanyirun Biotechnology Co., Ltd. | 20211009 | |
| 혈청 크레아티닌 측정 키트 | Nanjing Jianwei Bioengineering Institute | C011-2-1 | |
| SPF 동물 시설 | Shanxi University of TCM | ||
| SRAMP | http://www.cuilab.cn/sramp/ | ||
| STRING | https://cn.string-db.org/ | ||
| SwissTargetPrediction | http://www.swisstargetprediction.ch/ | ||
| TCMSP | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| Tezhi Pigan | Sichuan Quanyirun Biotechnology Co., Ltd. | 20210602 | |
| 조직 부유수조 | Wuhan Junjie | JK-6 |
참고문헌
- Thipsawat S. Early detection of diabetic nephropathy in patient with type 2 diabetes mellitus: a review of the literature. Diabetes Vasc Dis Res. 2021;18(6):14791641211058856.
- Kanwar YS, Sun L, Xie P, Liu FY, Chen S. A glimpse of various pathogenetic mechanisms of diabetic nephropathy. Annu Rev Pathol. 2011;6:395-423.
- Santulli G, et al. Prediabetes increases the risk of frailty in prefrail older adults with hypertension: beneficial effects of metformin. Hypertension. 2024;81(7):1637-43.
- Jin Q, et al. Oxidative stress and inflammation in diabetic nephropathy: role of polyphenols. Front Immunol. 2023;14:1185317.
- Alicic RZ, Rooney MT, Tuttle KR. Diabetic kidney disease: challenges, progress, and possibilities. Clin J Am Soc Nephrol. 2017;12(12):2032-45.
- Harrington JS, et al. Mitochondria in health, disease, and aging. Physiol Rev. 2023;103(4):2349-422.
- Peña FJ, et al. An integrated overview on the regulation of sperm metabolism (glycolysis-Krebs cycle-oxidative phosphorylation). Anim Reprod Sci. 2022;246:106805.
- de Mello AH, Costa AB, Engel JDG, Rezin GT. Mitochondrial dysfunction in obesity. Life Sci. 2018;192:26-32.
- Shen Y, et al. Notoginsenoside Fc, a novel renoprotective agent, ameliorates glomerular endothelial cells pyroptosis and mitochondrial dysfunction in diabetic nephropathy through regulating HMGCS2 pathway. Phytomedicine. 2024;126:155445.
- Zhang PN, et al. Mitochondrial dysfunction and diabetic nephropathy: nontraditional therapeutic opportunities. J Diabetes Res. 2021;2021:1010268.
- Zhang JL, et al. Structural characterization and protective effect against renal fibrosis of polysaccharide from Ligustrum lucidum Ait. J Ethnopharmacol. 2023;302(Pt A):115898.
- Luan R, et al. The protective effect of ethyl acetate and n-butanol fractions of wine-steamed Ligustri Lucidi Fructus on diabetic nephropathy in rats. Evid Based Complement Alternat Med. 2021;2021:6512242.
- Luan R, et al. Pharmacodynamics, pharmacokinetics, and kidney distribution of raw and wine-steamed Ligustri Lucidi Fructus extracts in diabetic nephropathy rats. Molecules. 2023;28(2):791.
- Seo HL, et al. Liqustri lucidi Fructus inhibits hepatic injury and functions as an antioxidant by activation of AMP-activated protein kinase in vivo and in vitro. Chem Biol Interact. 2017;262:57-68.
- Yan M, et al. Identification of pyroptosis-related genes and potential drugs in diabetic nephropathy. J Transl Med. 2023;21(1):490.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Gustavsson EK, et al. ggtranscript: an R package for the visualization and interpretation of transcript isoforms using ggplot2. Bioinformatics. 2022;38(15):3844-6.
- Gu Z, Eils R, Schlesner M. Complex heatmaps reveal patterns and correlations in multidimensional genomic data. Bioinformatics. 2016;32(18):2847-9.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-504.
- Wu T, et al. clusterProfiler 4.0: a universal enrichment tool for interpreting omics data. Innovation (Camb). 2021;2(3):100141.
- Dong H, et al. Identification through machine learning of potential immune-related gene biomarkers associated with immune cell infiltration in myocardial infarction. BMC Cardiovasc Disord. 2023;23(1):163.
- Pei B, et al. The development of prediction model for cuffed tracheal tube size from the middle finger in pediatrics: a concise and feasible approach. Transl Pediatr. 2023;12(12):2222-31.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77.
- Robles-Jimenez LE, et al. Worldwide traceability of antibiotic residues from livestock in wastewater and soil: a systematic review. Animals (Basel). 2021;12(1):60.
- Wang Y, et al. Bioinformatics analysis combined with clinical sample screening reveals that leptin may be a biomarker of preeclampsia. Front Physiol. 2022;13:1031950.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2^−ΔΔCT method. Methods. 2001;25(4):402-8.
- Klejborowska G, et al. Synthesis, anticancer activity and molecular docking studies of N-deacetylthiocolchicine and 4-iodo-N-deacetylthiocolchicine derivatives. Bioorg Med Chem. 2021;32:116014.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659-61.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Mazzieri A, Porcellati F, Timio F, Reboldi G. Molecular targets of novel therapeutics for diabetic kidney disease: a new era of nephroprotection. Int J Mol Sci. 2024;25(7):3969.
- Breyer MD, Susztak K. The next generation of therapeutics for chronic kidney disease. Nat Rev Drug Discov. 2016;15(8):568-88.
- Leoncini G, et al. Blood pressure reduction and RAAS inhibition in diabetic kidney disease: therapeutic potentials and limitations. J Nephrol. 2020;33(5):949-63.
- Pofi R, et al. Diabetic nephropathy: focus on current and future therapeutic strategies. Curr Drug Metab. 2016;17(5):497-502.
- Arellano Buendía AS, et al. Immunomodulatory effects of the nutraceutical garlic derivative allicin in the progression of diabetic nephropathy. Int J Mol Sci. 2018;19(10):3107.
- Zhang X, Agborbesong E, Li X. The role of mitochondria in acute kidney injury and chronic kidney disease and its therapeutic potential. Int J Mol Sci. 2021;22(20):11253.
- Liu Y, et al. DsbA-L interacting with catalase in peroxisome improves tubular oxidative damage in diabetic nephropathy. Redox Biol. 2023;66:102855.
- Zhong Y, et al. Jujuboside A ameliorates high fat diet and streptozotocin induced diabetic nephropathy via suppressing oxidative stress, apoptosis, and enhancing autophagy. Food Chem Toxicol. 2022;159:112697.
- Zhong Y, et al. Dioscin relieves diabetic nephropathy via suppressing oxidative stress and apoptosis, and improving mitochondrial quality and quantity control. Food Funct. 2022;13(6):3660-73.
- Issac PK, et al. Protective effect of morin by targeting mitochondrial reactive oxygen species induced by hydrogen peroxide demonstrated at a molecular level in MDCK epithelial cells. Mol Biol Rep. 2022;49(6):4269-79.
- Abo El-Asrar M, Ismail EAR, Elnhrawy AM, Thabet RA. Fatty acid binding protein 1 (FABP1) and fatty acid binding protein 2 (FABP2) as a link between diabetic nephropathy and subclinical atherosclerosis in children and adolescents with type 1 diabetes. J Diabetes Complications. 2023;37(3):108414.
- Gholaminejad A, Fathalipour M, Roointan A. Comprehensive analysis of diabetic nephropathy expression profile based on weighted gene co-expression network analysis algorithm. BMC Nephrol. 2021;22(1):245.
- Tanaka M, et al. Urinary fatty acid-binding protein 4 is a promising biomarker for glomerular damage in patients with diabetes mellitus. J Diabetes Investig. 2025;16(4):670-9.
- Liu Y, et al. Gastric cancer adapts high lipid microenvironment via suppressing PPARG-FABP1 axis after arriving in the lymph node. Redox Biol. 2025;85:103759.
- Borús DL, et al. Fatty acid binding protein 1 (FABP1) depletion promotes an oxidative metabolic shift in Caco-2 colorectal cancer cells. Biochim Biophys Acta Mol Cell Biol Lipids. 2025;1870(7):159661.
- Chu Y, et al. Glutathione peroxidase-1 overexpression reduces oxidative stress, and improves pathology and proteome remodeling in the kidneys of old mice. Aging Cell. 2020;19(6):e13154.
- Zhang F, et al. Mesenchymal stem cells alleviate rat diabetic nephropathy by suppressing CD103+ DCs-mediated CD8+ T cell responses. J Cell Mol Med. 2020;24(10):5817-31.
- Cao Q, et al. Renal F4/80+ CD11c+ mononuclear phagocytes display phenotypic and functional characteristics of macrophages in health and in adriamycin nephropathy. J Am Soc Nephrol. 2015;26(2):349-63.
- Zhou W, et al. The landscape of immune cell infiltration in the glomerulus of diabetic nephropathy: evidence based on bioinformatics. BMC Nephrol. 2022;23(1):303.
- Bloch K, Shichman E, Vorobeychik M, Bloch D, Vardi P. Catalase expression in pancreatic alpha cells of diabetic and non-diabetic mice. Histochem Cell Biol. 2007;127(2):227-32.
- Zhao Y, et al. Taxifolin attenuates diabetic nephropathy in streptozotocin-induced diabetic rats. Am J Transl Res. 2018;10(4):1205-10.
- Ding S, Wang W, Song X, Ma H. Based on network pharmacology and molecular docking to explore the underlying mechanism of Huangqi Gegen Decoction for treating diabetic nephropathy. Evid Based Complement Alternat Med. 2021;2021:9928282.
- Guo S, et al. Correction: Eriodictyol: a review of its pharmacological activities and molecular mechanisms related to ischemic stroke. Food Funct. 2023;14(10):4949.