LC3 면역블롯팅은 오토파지를 모니터링하는 데 널리 사용되는 방법이지만 세심한 최적화가 필요합니다. 본 프로토콜은 KPC 유래 췌장암 세포에서 LC3-II를 검출하고 정량화하기 위한 견고한 접근 방식과 주요 기술적 고려 사항, 그리고 Fiji를 이용한 밀도 분석의 표준화된 워크플로우를 설명합니다.
방법 논문
마우스 유래 췌장암 세포 내 오토파고솜 역학 모니터링을 위한 Microtubule-Associated Protein Light Chain 3의 웨스턴 블롯 분석
이 논문에서
요약
초록
자가포식(Autophagy)은 췌장관 선암종(PDAC)에서 종양 진행, 스트레스 적응 및 치료 저항성에 기여하며 복잡한 역할을 수행합니다. 따라서 자가포식소(autophagosomal) 역동성을 정확하게 평가하는 것은 암 생물학 연구에 필수적입니다. 사용 가능한 방법 중, microtubule-associated protein light chain 3 (LC3)의 면역블롯팅은 세포질 형태(LC3-I)와 지질화되어 자가포식소와 결합된 형태(LC3-II)를 구분함으로써 자가포식소 역동성을 모니터링하는 데 널리 사용됩니다. 하지만 LC3의 낮은 분자량과 이들 이소형(isoform) 간의 전기영동 이동도 차이가 매우 적다는 점은 세심한 최적화가 필요한 기술적 어려움을 야기합니다. 본 논문에서는 KPC 유래 마우스 췌장암 세포에서 웨스턴 블롯을 통해 LC3-II 수준을 반정량적으로 분석하기 위한 재현 가능한 프로토콜을 제시합니다. 이 방법은 LC3 이소형의 신뢰할 수 있는 분리와 검출을 보장하기 위해 세포 용해, 전기영동, 단백질 이동 및 항체 기반 검출에 최적화된 조건을 포함합니다. 또한, Fiji (ImageJ)를 이용한 LC3-II 밴드의 밀도 분석을 위한 표준화된 워크플로우를 제공합니다. 본 방법의 민감도는 자가포식 유도 조건(gemcitabine 처리) 및 자가포식 흐름(autophagic flux) 저해 조건(VMP1 knockdown)에서 증가된 LC3-II 수준의 검출을 통해 입증되었습니다. 용해 버퍼 조성 및 항체 특이성을 포함하여 데이터 해석에 영향을 미치는 주요 기술적 매개변수와 일반적인 실험적 오류 또한 함께 검토되었습니다. LC3 면역블롯팅만으로는 자가포식 흐름을 완전히 정의하기에 불충분하지만, 보완적인 분석법과 결합하면 자가포식 활성을 모니터링하기 위한 강력하고 접근 가능한 접근 방식을 제공합니다. 이 프로토콜은 다른 실험적 상황에도 적용 가능하여, 암 모델에서 자가포식의 메커니즘 연구를 용이하게 할 수 있습니다.
서론
거대 자가포식(Macroautophagy, 이하 자가포식으로 지칭)은 세포가 단백질과 기능 이상 소기관을 포함한 세포질 물질을 분해하는 조절된 분해 경로입니다. 자가포식의 특징은 오토파고좀(autophagosome)이라고 알려진 이중막 구조의 형성으로, 이는 세포 내 화물을 격리한 후 분해를 위해 리소좀으로 전달합니다1,2,3. 정상 세포에서 자가포식은 단백질과 소기관의 조절된 회전율(turnover)에 기여하여 산화 스트레스를 제한하고 종양 발생 위험을 낮춥니다. 그러나 암세포에서 이 과정은 높은 대사 수요, 영양 결핍 및 저산소 상태의 조건에서 생존을 지원하기 위해 이용될 수 있습니다. 자가포식은 적대적인 미세환경에 대한 적응을 촉진함으로써, 부분적으로 치료로 인한 세포 손상을 완화하여 화학요법 내성에 기여합니다4,5.
췌장암은 미국 내 암 관련 사망 원인 중 세 번째로 높은 순위를 차지합니다. 췌장암의 약 90%는 췌관선암종(PDAC)으로 분류됩니다. 조기 발견과 치료 기술의 발전으로 환자 생존율이 향상된 다른 여러 악성 종양들과 달리, PDAC의 경우 80% 이상의 사례가 진행된 단계에서 진단됩니다. 이러한 늦은 진단 시점은 공격적인 종양 생물학과 뚜렷한 치료 저항성과 결합되어, 5년 전체 생존율이 약 11%6에 머무르는 결과를 초래합니다.
췌장 특이적 oncogenic Kras 활성화와 Cre recombinase에 의한 Trp53의 조건부 결실을 기반으로 하는 KPC 마우스 모델은 췌관선암의 가장 널리 사용되는 유전자 변형 모델 중 하나입니다. 이 마우스들은 췌장 상피내 종양(PanIN)에서 침습성 암으로 진행하며 인간의 질환과 매우 유사한 종양을 자연적으로 발생시킵니다. 특히, 이 모델은 조밀한 결합조직형 기질과 면역 억제성 종양 미세환경을 포함한 췌장암의 주요 특징들을 그대로 재현합니다. KPC 마우스에서 분리한 종양 세포(KPC 유래 세포)는 원래 종양의 유전적 및 표현형적 특성을 상당 부분 유지하는 보완적인 in vitro 시스템을 제공하여, 기전 연구 및 치료 반응에 대한 통제된 평가를 가능하게 합니다7,8.
VMP1은 Beclin-1과의 상호작용 및 PI3KC3 복합체의 보충을 통해 오토파지를 개시하는 필수적인 오토파지 관련 단백질입니다9,10. 개시 단계 외에도 VMP1은 오토파고솜 형성10, 폐쇄11, 그리고 미토파지12 및 자이모파지13와 같은 선택적 과정 등 오토파지의 여러 단계에 참여합니다. VMP1은 오토파지 흐름 전반에 걸쳐 관여하며, 인지질 스크램블레이스(phospholipid scramblase)로서 추가적인 기능을 수행할 수 있습니다14. 췌장에서 VMP1의 발현은 일반적으로 낮으나, 췌장염 및 종양성 변환을 포함한 스트레스 조건 하에서는 강하게 유도되며, 이때 돌연변이 KRAS 신호 전달의 하위 단계에서 오토파지를 촉진합니다15,16. VMP1은 췌장암에서 과발현되며17, 실험적 마우스 모델을 통해 VMP1 의존적 오토파지가 KRAS와 협력하여 종양 개시 및 PanIN 형성을 촉진한다는 것이 밝혀졌습니다18. 또한, 젬시타빈(gemcitabine)19과 같은 약물에 의해 VMP1이 상향 조절되면 오토파지가 자극되어19 종양 세포의 생존을 지원함으로써17 화학요법 내성에 기여하며, 이는 VMP1의 친종양성 역할을 강조합니다15.
자가포식소체는 자가포식 관련 단백질인 microtubule-associated protein light chain 3 (LC3)의 존재로 특징지어집니다20. 기저 상태에서 LC3는 주로 세포질과 핵 전체에 분포하는 가용성 형태(LC3-I)로 존재합니다. 자가포식이 활성화되면 LC3는 phosphatidylethanolamine과의 결합을 통해 지질화를 거쳐 막 결합 형태인 LC3-II가 됩니다1,21. 이러한 변형으로 인해 LC3-II는 LC3-I보다 분자량이 더 높음에도 불구하고, 소수성이 증가하여 SDS-PAGE 시 더 빠르게 이동합니다. 결과적으로 LC3-I에서 LC3-II로의 전환은 단백질 분해 과정이 아닌 지질화를 반영하며, 일반적으로 LC3-I는 약 16 kDa에서, LC3-II는 약 14 kDa에서 검출됩니다. LC3-II의 수준은 자가포식소체의 풍부함과 상관관계가 있으므로, LC3 면역블롯팅은 자가포식 활성을 모니터링하는 데 널리 사용됩니다22. 따라서 LC3 동역학을 정확하게 평가하는 것은 자가포식 관련 실험 결과를 해석하는 데 필수적입니다.
본 연구에서는 KPC 유래 췌장암 세포주에서 전형적인 LC3 면역블롯 프로토콜의 표준화 및 기술적 최적화 과정을 상세히 다룹니다. LC3는 저분자량 단백질이며, LC3-I과 LC3-II 형태의 전기영동 이동도 차이가 약 2 kDa에 불과하고, LC3-II는 지질화된 종이라는 점 때문에 최적화가 특히 중요합니다21,22. 따라서 절차상의 미세한 차이가 LC3 검출에 영향을 주어 최적이지 않은 결과로 이어질 수 있습니다. 또한, 최적의 면역 반응성을 얻기 위해서는 샘플의 종 기원을 고려하는 것이 중요합니다. 최적화된 프로토콜은 화학요법제인 gemcitabine 처리 후 및 VMP1 녹다운 후의 LC3-II 수준 증가를 검출할 수 있을 만큼 충분한 민감도를 가지며, 이 조건들은 각각 오토파지를 자극하고 오토파지 흐름(autophagic flux)을 저해하는 것으로 알려져 있습니다. 마지막으로, 데이터 품질과 결과 해석에 미치는 영향을 보여주기 위해 두 가지 잠재적인 기술적 함정을 강조합니다. 이 실험 워크플로우의 개요는 그림 1에 예시되어 있습니다.
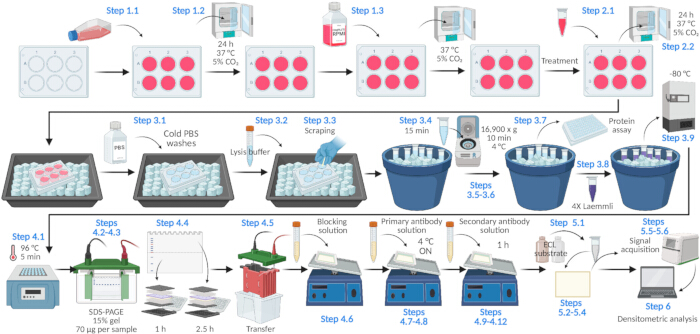
그림 1: KPC 유래 세포에서의 LC3 면역블롯 프로토콜 모식도.면역블롯팅을 통해 LC3-II 수준을 검출하고 정량화하는 데 사용된 프로토콜의 모식도 개요. KPC 유래 췌장암 세포를 배양하고 실험적 처리를 수행한 후, 세포 용해, 단백질 정량, SDS–PAGE, 막 전이, 항체 기반의 LC3 검출, 화학발광 신호 획득, 그리고 로딩 컨트롤로 정규화한 LC3-II 밴드의 밀도 분석을 진행한다. 이 워크플로우는 LC3 역동성을 신뢰성 있게 평가하는 데 필요한 주요 절차적 단계와 핵심 단계를 강조한다. BioRender.com으로 제작됨. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
프로토콜
동물을 대상으로 하는 모든 절차는 기관 지침에 따라 수행되었으며, 프로토콜 #2019N000111 하에 Massachusetts General Hospital의 기관동물관리사용위원회(IACUC)의 승인을 받았습니다. 본 연구에 사용된 KPC 유래 췌장암 세포주는 이 승인된 프로토콜에 따라 Mostoslavsky 실험실에서 이전에 확립되었습니다. 시약, 화학 물질 및 장비 정보 목록은 재료 표에 제공되어 있습니다.
1. 세포 준비
- 10% fetal bovine serum, 100 U/mL penicillin 및 100 µg/mL streptomycin이 포함된 Roswell Park Memorial Institute 배지(RPMI 1640)를 사용하여 low-passage KrasG12D; Trp53f/+; p48-Cre(이하 KPC로 표기) 유래 췌장 종양 세포를 6-well plate에 접종한다. 세포 용해 당일에 70%–90%의 합쳐짐(confluence)이 되도록 접종 밀도를 조절한다.
참고: well당 3.5 × 10⁵ cells의 접종 밀도로 접종했을 때 72시간 후 약 80%의 합쳐짐이 관찰되었다. 실험실 및 KPC 모델마다 성장 속도가 다를 수 있으므로, 실험 수행 전 경험적으로 최적의 접종 밀도를 결정한다.
참고: 안정적인 VMP1-knockdown 세포주를 생성하려면, polyethylenimine(PEI)을 사용하여 HEK293T 세포에 패키징 플라스미드와 해당 렌티바이러스 벡터를 공동 형질전환(co-transfection)하여 렌티바이러스 입자를 생성한다. 형질전환 72시간 후 렌티바이러스 상층액을 수확하고, 4 °C에서 300 × g로 10분간 원심분리하여 세포 잔해를 제거한 후 0.45 µm 시린지 필터로 여과한다. 수확한 바이러스 상층액을 사용하여 KPC 세포를 1회 형질도입(transduction)한다. 2.5 µg/mL puromycin(10 mg/mL 스톡 용액을 1:4,000으로 희석)을 72시간 동안 처리하여 안정적으로 형질도입된 세포를 선별한다. - 5% 이산화탄소(CO₂)가 포함된 습윤 인큐베이터에서 37 °C로 세포를 배양한다.
- 배지를 신선한 배지로 교체하고 동일한 조건에서 배양을 지속한다.
2. 20 µM gemcitabine 처리
- 세포 용해 하루 전, RPMI 배지에 10 mM gemcitabine 용액을 준비합니다. 최종 농도가 20 µM이 되도록 각 웰에 10 mM 용액 4 µL를 처리합니다.
- 5% 이산화탄소(CO₂)가 포함된 가습 배양기에서 37 °C로 24시간 동안 세포를 배양합니다.
3. 세포 용해물
- 플레이트를 얼음 위에 두고 차가운 인산염 완충 식염수(PBS; 137 mM NaCl, 2.7 mM KCl, 8 mM Na₂HPO₄ 및 2 mM KH₂PO₄)로 3회 세척한다.
- 프로테아제 억제제가 첨가된 용해 버퍼(lysis buffer; 50 mM Tris-HCl, pH 8.0, 150 mM NaCl, 1% Triton X-100 및 0.1% SDS) 80 µL를 첨가한다.
참고: 웰 간의 세포 밀도(confluence) 수준이 다르게 관찰되는 경우, 유사한 단백질 농도를 얻기 위해 용해 버퍼의 부피를 조절한다. 가이드라인으로, 세포 밀도 10%당 약 10 µL의 용해 버퍼를 사용한다(예: 70% 밀도에는 70 µL, 90% 밀도에는 90 µL 사용). - P200 피펫 팁의 넓은(근위) 끝부분을 사용하여 각 웰의 전체 표면을 철저히 긁어내어 세포를 용해 버퍼 내로 분리 및 수집한다.
- 용해물을 마이크로 원심분리 튜브에 수집하고 15분 동안 얼음 위에 둔다.
- 샘플을 4 °C에서 16,900 × g로 10분 동안 원심분리한다.
- 상층액을 깨끗한 마이크로 원심분리 튜브로 옮긴다.
- 단백질 정량을 위해 일부 분량을 덜어내고 분석 전까지 얼음 위에 보관한다.
참고: 단백질 정량을 위해 용해물 2.5 µL를 용해 버퍼 7.5 µL로 희석하고, 200 µL의 bicinchoninic acid 시약과 혼합한다. 다른 단백질 정량 방법을 사용할 수도 있다. - 용해물에 4× Laemmli 샘플 버퍼(250 mM Tris-HCl, pH 6.8, 8% SDS, 40% glycerol, 0.04% bromophenol blue 및 20% β-mercaptoethanol)를 첨가하고 충분히 혼합한다. 용해물 77.5 µL에 대해 Laemmli 샘플 버퍼 25.8 µL를 첨가한다.
- 샘플을 −80 °C에 보관한다.
참고: 이 단계에서 프로토콜을 일시 중단할 수 있다. 샘플은 SDS–PAGE 수행 전까지 최대 2주 동안 −80 °C에 보관할 수 있다.
4. SDS–PAGE 및 Western blot
- 샘플을 96 °C에서 5분 동안 가열한다.
- 각 샘플 70 µg을 15% SDS–PAGE 겔(두께 1.5 mm)에 로딩하고, 염색약 전선(dye front)이 분리 겔(resolving gel)에 진입할 때까지 90 V에서 전기영동을 수행한다. 15% acrylamide/bis-acrylamide, 375 mM Tris-HCl (pH 8.8), 0.1% SDS를 포함하여 직접 제작한 15% polyacrylamide 분리 겔을 사용한다.
- 전압을 120 V로 높이고, 염색약 전선이 겔 하단에 도달하거나 하단을 통과할 때까지 전기영동을 계속한다. 분자량 마커의 10 kDa 밴드가 겔 밖으로 나가기 전에 작동을 중단한다.
- 겔을 약 25 kDa 지점에서 절단하여 상단부와 하단부로 분리한다.
- 전사 버퍼(25 mM Tris base, 192 mM glycine, 20% [v/v] methanol) 내의 메탄올로 사전 활성화된 0.2 µm PVDF 막에 단백질을 전사시키며, 200 mA에서 하단 겔 부분(<25 kDa)은 1시간, 상단 겔 부분(>25 kDa)은 2.5시간 동안 수행한다.
- 블로킹 버퍼 내에서 부드럽게 교반하며 1시간 동안 막을 블로킹한다.
- 0.1% Tween-20이 포함된 블로킹 버퍼로 anti-LC3 1차 항체 용액을 1:1,000 비율로 희석하여 준비한다.
참고: anti-LC3 1차 항체는 1:1,000 희석 배율로 사용하였으며, anti-actin 로딩 컨트롤 항체는 1:4,000 희석 배율로 사용하였다. - 부드럽게 교반하며 anti-LC3 1차 항체가 포함된 막을 4 °C에서 하룻밤 동안 배양한다.
- TBS-T (0.1% Tween-20 in TBS; 20 mM Tris-HCl, pH 7.6, 150 mM NaCl)로 막을 5분씩 4회 세척한다.
- 블로킹 버퍼 내에서 horseradish peroxidase-conjugated anti-rabbit 2차 항체 용액을 1:2,000 비율로 희석하여 준비한다.
- 부드럽게 교반하며 2차 항체가 포함된 막을 상온에서 1시간 동안 배양한다.
- TBS-T로 막을 5분씩 4회 세척한다.
- TBS로 막을 2회 세척한다.
5. 화학발광 검출
- 사용 직전에 시약 A(루미놀/강화제 용액)와 시약 B(과산화물 용액)를 동일한 부피로 혼합하여 2성분 강화 화학발광 기질을 준비합니다.
- 실험실용 와이프로 멤브레인에서 과잉 액체를 조심스럽게 닦아냅니다.
- 멤브레인을 불투명한 상자에 넣습니다.
- 강화 화학발광 용액을 멤브레인에 넣고 상자를 닫은 후 5분 동안 배양합니다.
- 멤브레인에서 과잉 용액이 빠지도록 한 뒤, 신호 검출을 위해 멤브레인을 이미징 시스템에 넣습니다.
- 이미징 시스템 제조사의 지침에 따라 이미지를 획득합니다.
6. Fiji를 이용한 밀도 분석
- 이미지 파일을 Fiji 창으로 드래그 앤 드롭하여 엽니다.
- 이미지를 8비트 그레이스케일로 변환합니다 (Image → Type → 8-bit).
- 필요한 경우, 밴드가 수평으로 정렬되도록 이미지를 회전시킵니다 (Image → Transform → Rotate).
- Preview를 활성화하고 그리드를 적절한 선 수(예: 20)로 설정합니다.
- 밴드가 제대로 정렬될 때까지 회전 각도를 조절합니다.
- 사각형 선택 도구를 사용하여 첫 번째 레인 주변의 관심 영역(ROI)을 지정하며, 이때 LC3-II에 해당하는 밴드만 포함합니다.
참고: 선택 영역의 너비는 높이의 2배를 초과해서는 안 됩니다. 분석에 포함되는 모든 밴드에 대해 동일한 ROI 크기를 사용하십시오. - Analyze → Gels → Select First Lane을 선택합니다.
- 동일한 ROI를 다음 레인으로 이동하여 해당 밴드 주변에 배치합니다.
- Analyze → Gels → Select Next Lane을 선택합니다.
- 마지막 레인이 선택될 때까지 단계 6.6 및 6.7을 반복합니다.
- 강도 프로파일을 생성합니다 (Analyze → Gels → Plot Lanes).
- 직선 도구를 사용하여 각 피크의 기선을 정의하고, wand 도구를 사용하여 밴드 강도를 정량화합니다.
- 로딩 컨트롤을 기준으로 값을 정규화합니다.
결과
본 프로토콜은 다양한 실험 조건에서 KPC 유래 췌장암 세포주의 LC3 역학을 모니터링하기 위한 웨스턴 블로팅 방법을 설명합니다. 이 프로토콜을 통해 LC3와 로딩 컨트롤의 화학 발광 이미지를 생성합니다. 본 연구에서는 actin을 로딩 컨트롤로 사용하였습니다.
본 프로토콜의 두 가지 대표적인 응용 사례가 제시되어 있습니다. 첫째, 대조군 KPC 세포와 gemcitabine 처리 KPC 세포를 비교하였습니다. Gemcitabine은 췌장암 세포에서 자가포식을 유도하는 것으로 이전에 보고된 화학요법 제제입니다19. 그림 2A는 로딩 대조군으로 actin을 사용한 대표적인 LC3 면역블롯 분석 결과를 보여줍니다. Fiji의 밀도 분석(densitometric analysis)을 통해 얻은 정량 결과는 그림 2B에 제시되어 있습니다. LC3-II 수준은 actin으로 정규화되었습니다. Gemcitabine 처리 세포에서 LC3-II 수준이 59% 유의하게 증가한 것이 관찰되었으며, 이는 자가포식 유도와 일치하는 결과입니다.
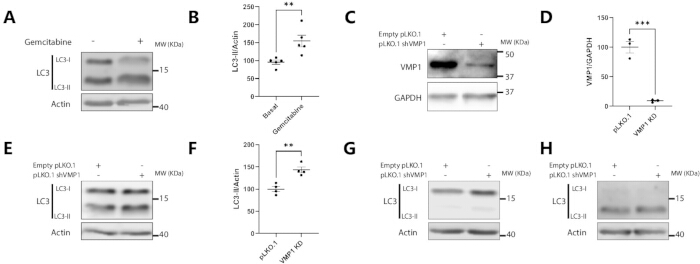
그림 2: KPC 유래 췌장암 세포에서의 LC3 면역블롯 분석: (A-B) gemcitabine의 효과, (C-F) VMP1 발현 억제, (G-H) 최적화되지 않은 기술적 조건. (A–B) 기초 상태 및 gemcitabine 처리 조건에서의 LC3 수준. KPC 유래 췌장암 세포를 20 µM gemcitabine으로 24 h 동안 처리하거나 처리하지 않았다. 세포 용해물을 LC3 및 로딩 컨트롤인 actin에 대해 면역 라벨링하였다. (A) LC3와 actin의 대표적인 면역블롯 이미지가 제시되어 있다. (B) 그래프는 actin으로 표준화된 LC3-II 밴드의 밀도 측정 정량 값을 보여준다. 데이터는 평균 ± SEM으로 표시되었다. **p < 0.01, unpaired Student’s t-test 적용. 조건당 n = 4. (C–D) shRNA 매개 VMP1 넉다운 검증. 공벡터 pLKO.1 플라스미드(pLKO.1) 또는 마우스 VMP1 서열을 표적으로 하는 shRNA를 인코딩하는 pLKO.1 플라스미드(VMP1 KD)를 상시 발현하는 세포를 용해하여 분석하였다. (C) GAPDH를 로딩 컨트롤로 사용한 VMP1의 대표적인 웨스턴 블롯 이미지이다. (D) VMP1 발현 수준 정량 결과, VMP1 KD 세포에서 약 90%의 감소가 나타났다. 데이터는 평균 ± SEM으로 표시되었다. ***p < 0.001, unpaired Student’s t-test 적용. 조건당 n=3. (E–F) VMP1 발현 억제가 LC3-II 축적에 미치는 영향. 공벡터 pLKO.1 또는 shVMP1 플라스미드를 상시 발현하는 KPC 유래 췌장암 세포를 용해하고, LC3 및 로딩 컨트롤인 actin에 대해 면역 라벨링하였다. (E) LC3와 actin의 대표적인 면역블롯 이미지가 제시되어 있다. (F) 그래프는 actin으로 표준화된 LC3-II 밴드의 밀도 측정 정량 값을 보여준다. 데이터는 평균 ± SEM으로 표시되었다. **p < 0.01, unpaired Student’s t-test 적용. 조건당 n = 5. (G-H). 최적화되지 않은 실험. 공벡터 pLKO.1 또는 shVMP1 플라스미드를 상시 발현하는 KPC 유래 췌장암 세포를 용해하고, LC3 및 로딩 컨트롤인 actin에 대해 면역 라벨링하였다. (G) 낮은 계면활성제 농도의 용해 버퍼를 사용하여 준비한 용해물에서 얻은 LC3와 actin의 대표적인 면역블롯 이미지이다. (H) 마우스와의 반응성이 보장되지 않는 1차 항체를 사용하여 LC3를 검출한 LC3와 actin의 대표적인 면역블롯 이미지이다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
빈 pLKO.1 플라스미드(pLKO.1) 또는 마우스 VMP1 서열을 표적으로 하는 shRNA를 인코딩하는 pLKO.1 플라스미드(VMP1 KD)를 구성적으로 발현하는 KPC 유래 췌장암 세포를 사용하여 두 번째 실험을 수행하였습니다. 먼저 VMP1의 성공적인 다운레귤레이션을 확인하였습니다. 그림 2C는 로딩 컨트롤로 GAPDH를 사용한 대표적인 VMP1 면역블롯을 보여주며, 그림 2D는 VMP1 KD 세포에서 VMP1 발현이 90% 감소했음을 정량화하여 보여줍니다. 이어 이들 세포에서 LC3-II 수준을 평가하였습니다. VMP1은 오토파고좀 형성에 필요하므로 LC3-II 축적이 증가할 것으로 예상되었습니다. VMP1 다운레귤레이션은 LC3-I에서 LC3-II로의 전환을 막지는 않지만, 오토파고좀 형성과 이후의 화물 분해를 저해하여 결과적으로 LC3-II 축적을 유도합니다11,15. 대표적인 LC3 및 액틴 면역블롯은 그림 2E에 제시되어 있으며, LC3-II/액틴 비율의 정량화 결과는 그림 2F에 나타나 있습니다. pLKO.1 대조군과 비교하여 VMP1 KD 세포에서 LC3-II 수준이 43% 유의하게 증가한 것이 관찰되었습니다.
이러한 결과는 본 프로토콜을 통해 KPC 유래 췌장암 세포 모델에서 LC3-II 수준을 신뢰성 있게 검출하고 정량화할 수 있음을 보여줍니다. 하지만 프로토콜에서 약간의 편차가 발생할 경우 최적의 결과를 얻지 못할 수 있습니다.
LC3-II는 LC3의 지질화된 형태이므로, 효율적인 추출을 위해서는 적절한 농도의 계면활성제가 포함된 용해 버퍼가 필요합니다. 그림 2G는 그림 2E–F(pLKO.1 versus VMP1 KD)에서 설명한 것과 동일한 실험 모델에서 얻은 대표적인 LC3 및 actin 면역블롯을 보여주지만, 저농도 계면활성제 용해 버퍼(50 mM Tris-HCl, pH 7.4, 250 mM NaCl, 25 mM NaF, 2 mM EDTA, 및 0.1% Triton X-100)를 사용하였습니다. actin 신호는 수용 가능한 수준으로 유지되었으나, LC3 신호는 최적 수준에 미치지 못했습니다. LC3-I 밴드만 명확하게 보였으며, LC3-II 밴드는 거의 검출되지 않았고 LC3-I에 비해 현저히 감소하였습니다.
LC3 면역블롯 분석에서 또 다른 중요한 변수는 1차 항체의 선택입니다. 다음의 면역블롯 결과는 그림 2A, 2B, 2E, 2F, 및 2G 본 실험 시스템에서 강력한 LC3 검출 결과를 나타낸 1차 항체를 사용하여 생성되었습니다. 이와 대조적으로, 그림 2H 다른 1차 항체를 사용하여 생성한 LC3 면역블롯 결과는 최적이 아님을 보여줍니다. 이러한 조건 하에서 LC3-I은 거의 검출되지 않았으며, LC3-II 신호는 이전 실험에 사용된 항체로 얻은 결과보다 상당히 약하게 나타났습니다.
토론
본 논문은 KPC 유래 췌장암 세포에서 고전적인 LC3 면역블롯팅 프로토콜의 기술적 최적화 및 표준화를 설명합니다. 췌장암의 발생 및 진행에서 오토파지와 오토파지 관련 단백질의 역할이 점점 더 중요하게 인식됨에 따라23, 이 표준화된 워크플로우는 LC3 역학을 모니터링하기 위한 신뢰할 수 있는 접근 방식을 제공합니다. 이 프로토콜은 화학 요법, 산화적 스트레스, 저산소증, 소포체 스트레스, 그리고 유전자 과발현, 넉다운, 넉아웃 또는 변이와 같은 유전적 조작을 포함한 다양한 실험 조건 하에서 오토파고좀 풀을 평가하는 데 적용될 수 있습니다. LC3 역학 평가 외에도, 이 프로토콜은 LC3와 관심 단백질 간의 직접적 또는 간접적 상호작용을 조사하도록 조정될 수 있습니다. 예를 들어, 표적 단백질의 면역침전 후 용출액에서 LC3를 검출하는 과정을 이 워크플로우를 사용하여 수행할 수 있습니다. 또한, LC3 면역블롯팅은 췌관 선암종에서 관련성이 높아지고 있는 신흥 분야인 분비성 오토파지 맥락의 세포외 소포 분석에 적용될 수 있습니다24,25.
그림 2G–H에서 보여주는 바와 같이, 미세한 편차가 최적하지 못한 결과로 이어질 수 있으므로 몇 가지 중요한 단계들을 세심하게 제어해야 합니다. 가장 중요한 고려 사항 중 하나는 용해 버퍼(lysis buffer)의 조성입니다. LC3-II를 효율적으로 추출하려면 RIPA 버퍼 또는 이와 유사한 제형과 같이 계면활성제 농도가 비교적 높은 버퍼가 필요합니다. 단백질-단백질 상호작용을 보존하기 위해 면역침강 프로토콜에서 흔히 사용되는 저농도 계면활성제 버퍼는 LC3-II를 충분히 가용화하지 못할 수 있습니다. 이러한 조건에서는 LC3-I는 계속 검출될 수 있지만, LC3-II는 검출이 어렵거나 불가능해져 데이터 해석에 지장을 줄 수 있습니다.
또 다른 중요한 요인은 연구 중인 실험 시스템에 대해 검증된 1차 항체를 선택하는 것입니다. 본 기술 평가에서는 동일한 제조사의 두 가지 항체 비교로 제한되었으며, 여러 클론이나 공급업체에 걸친 종합적인 검증을 수행한 것은 아닙니다. 그럼에도 불구하고, 본 결과는 실험 시스템에 따라 항체 성능이 어떻게 크게 달라질 수 있는지를 보여줍니다. 이러한 제한적인 비교만으로는 종 특이성에 대한 확정적인 결론을 내릴 수는 없으나, 이 모델에서 평가된 대체 항체의 성능이 미흡했다는 점은 예측된 교차 반응성에 의존하기보다 경험적 검증이 중요하다는 것을 강조합니다. 제조사의 데이터 시트에 따르면, 이 항체는 인간 샘플에 대해 검증되었으며, 마우스 반응성은 서열 상동성을 기반으로 예측된 것입니다. 마우스 세포에서는 약한 LC3 검출이 관찰되었지만(그림 2H), 동일한 항체가 쥐 췌장 조직 및 쥐 유래 AR42J 세포에서는 검출 가능한 신호를 생성하지 못했습니다(데이터 제시되지 않음). 이러한 관찰 결과는 연구 중인 특정 생물학적 모델 내에서 항체 성능을 검증하는 것이 얼마나 중요한지를 분명히 보여줍니다.
최적화가 필요한 추가 파라미터에는 겔 조성과 전기영동 조건이 포함됩니다. 전기영동을 염색약 전면이 겔 바닥에 도달한 시점부터 10 kDa 분자량 마커가 겔 밖으로 빠져나가기 전 사이에 종료할 때, 15% 분리 겔(resolving gel)은 LC3-I과 LC3-II의 적절한 분리를 제공합니다. 반면, 7% 겔과 같이 비율이 낮은 겔은 충분한 해상도를 제공하지 못합니다. LC3는 저분자량 단백질이므로 전이(transfer) 조건 또한 매우 중요합니다. 전이 시간이나 전류가 불충분하면 전이 효율이 감소할 수 있으며, 반대로 전이 시간이나 전류가 과도하면 단백질이 멤브레인을 통해 손실될 수 있습니다. 기공 크기가 더 큰 멤브레인을 사용할 경우 이러한 위험이 더욱 증가할 수 있습니다.
프로토콜에 대해 몇 가지 수정 사항이 허용될 수 있습니다. 세포 수집 시 P200 피펫 팁 대신 시판되는 세포 스크레이퍼(cell scraper)를 사용할 수 있습니다. 샘플을 얼음 위에 유지한다면, 용해 후 동결하지 않고 즉시 처리할 수 있습니다. 4–20% 구배 젤(gradient gel)을 포함하여 시판되는 폴리아크릴아미드 젤 또한 사용할 수 있습니다. 본 지침에 설명된 블로킹 용액 대신 실험실 등급의 우유 또는 TBS-T 내 1% BSA와 같은 대체 블로킹 시약을 사용할 수 있습니다. 마찬가지로 대체 항체 배양 버퍼를 사용할 수 있으나, 소듐 아자이드(sodium azide)는 퍼옥시다아제 활성을 억제하므로 horseradish peroxidase-접합 2차 항체가 포함된 용액에서는 반드시 제외해야 합니다.
이 프로토콜은 서로 다른 조직 유래 세포주 및 조직 용해물을 포함한 다른 실험 시스템에도 적용할 수 있습니다. 하지만, 본 워크플로우는 주로 KPC 유래 췌장암 세포에서 최적화되었으므로, 더 넓은 범위의 적용 가능성에 대해서는 신중하게 고려해야 합니다. 세포 유형, 기저 자가포식 수준, 단백질 발현 프로필 및 시료 조성의 차이가 LC3 검출에 상당한 영향을 미칠 수 있습니다. 따라서 다른 시스템에 적용할 때는 추가적인 최적화가 필요할 가능성이 높으며, 연구 대상 종과 항체의 호환성을 항상 확인해야 합니다.
LC3 면역블롯 분석의 근본적인 한계점 또한 강조되어야 합니다. LC3-II의 축적만으로는 오토파지 상태를 확정적으로 결정하거나, 오토파지 유도의 증가와 오토파고좀 제거의 손상을 구분하기에 불충분합니다. LC3-II는 오토파지 유도 과정에서 생성되지만, 오토파지 과정의 일부로서 리소좀 내에서 분해되기도 합니다. 결과적으로, 오토파지의 강화와 LC3 접합 이후 단계의 오토파지 플럭스 손상 모두 LC3-II의 축적으로 이어질 수 있습니다26.
이러한 한계는 그림 2A, B 및 그림 2E, F에 나타난 실험을 통해 알 수 있으며, 여기서는 생물학적으로 서로 다른 조건에서 LC3-II 수준이 모두 상승한 것이 관찰되었습니다. gemcitabine 처리 세포에서 LC3-II의 축적은 VMP1 발현 증가 및 LC3-I에서 LC3-II로의 전환 촉진과 관련된 오토파지의 활발한 유도를 반영합니다11,19. 반면, VMP1 넉다운은 오토파고솜의 성숙과 제거를 저해합니다. 이러한 조건에서는 LC3 지질화는 유지되지만, 결함이 있는 오토파지 플럭스로 인해 LC3-II 분해가 저해되어 오토파지 진행이 손상되었음에도 불구하고 LC3-II가 축적되는 결과가 나타납니다22. 이러한 서로 다른 생물학적 상태를 LC3 면역블롯팅만으로는 구분할 수 없으므로, 오토파지 플럭스의 엄격한 평가를 위해서는 SQSTM1/p62 분석 및 리소좀 억제 분석과 같은 상보적인 접근 방식이 필요합니다26.
이러한 상보적인 접근 방식들과 결합될 때, LC3 면역블로팅은 오토파지를 모니터링하는 가장 접근 가능하고 정보 제공력이 높은 방법 중 하나로 남습니다. 대안적인 기술들 또한 한계가 있습니다. 면역형광법을 이용한 LC3 puncta의 정량화27는 증가된 오토파지와 손상된 flux를 안정적으로 구분할 수 없으며, 표준화 및 자동화가 어려울 수 있습니다. 하지만 면역형광법은 생물학적 시료가 적게 필요하므로 인간 생검 조직과 같이 제한적인 임상 샘플의 경우 유리할 수 있습니다. 또한, LC3 면역블로팅은 transfection 기반의 리포터 시스템이 필요하지 않으므로 단백질 과발현과 관련된 아티팩트를 피할 수 있습니다. 마지막으로, 전통적인 유세포 분석법은 LC3-I과 LC3-II를 구분할 수 있는 충분한 해상도가 부족하여 오토파지 활성을 평가하는 데 활용도가 제한적입니다.
공개 사항
저자들은 이해 상충이 없음을 선언합니다.
감사의 글
This work was supported by grants from the Consejo Nacional de Investigaciones Científicas y Técnicas (CONICET) [PIP 2021–2023 GI-11220200101549CO], the Agencia Nacional de Promoción de la Investigación, el Desarrollo Tecnológico y la Innovación (Agencia I+D+i) [PICT-2021-I-A-00328], the Universidad de Buenos Aires [UBACyT 2023–2025, 20020220300232BA], and the Fundación Norberto Quirno, Ciudad de Buenos Aires.
The authors gratefully acknowledge The Company of Biologists for financial support through a Traveling Fellowship awarded by Disease Models & Mechanisms. This support contributed to the work arising from the funded visit. Further information about the charity is available at https://www.biologists.com/.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| C-DiGit Blot Scanner | LI-COR BioScience | 3600 | 단계 5.6의 화학발광 검출에 사용됨 |
| 10x Phosphate-Buffered Saline (PBS) | Corning | 46-013-CM | 단계 1.1에서 세포 계대 배양 전 세척을 위한 멸균 1x PBS 조제에 사용됨 |
| 2-Mercaptoethanol (β-mercaptoethanol) | Sigma-Aldrich (Merck) | M3148 | 단계 3.8의 SDS-PAGE 시료 준비를 위한 4× Laemmli 시료 버퍼 조제에 사용됨 |
| 3D Shaker | DLAB | SK-D1807-E | 블로킹, 1차 및 2차 항체 용액 내 멤브레인 배양 및 세척 단계(단계 4.6, 4.8, 4.9, 4.11, 4.12, 4.13)에 사용됨 |
| 6 Well- Cell Culture Plate | SORFA | SCP-11-006 | 단계 1.1에서 세포 파종에 사용됨 |
| Acrylamide | Sigma-Aldrich (Merck) | A8887 | 단계 4.2–4.5에 필요한 15% SDS-PAGE 겔 조제에 사용됨 |
| Anti-Glyceraldehyde-3-Phosphate Dehydrogenase, mouse monoclonal, clone 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 반응성: human, feline, pig, mouse, rabbit, fish, canine, rat. 녹다운 효율을 평가하기 위한 로딩 컨트롤로 사용됨 (그림 2C 및 2D) |
| Anti-mouse IgG, HRP-linked Antibody | Cell Signaling Technology | 7076 | RRID: AB_330924. 단계 4.10에서 2차 항체 용액 조제에 사용됨 |
| Anti-rabbit IgG, HRP-linked Antibody | Cell Signaling Technology | 7074 | RRID: AB_2099233. 단계 4.10에서 2차 항체 용액 조제에 사용됨 |
| Anti-β-Actin (ACTB) Antibody mouse monoclonal, AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 반응성: sheep, carp, feline, chicken, rat, mouse, Hirudo medicinalis, rabbit, canine, pig, human, bovine, guinea pig. 그림 2A, 2B, 2E, 2F, 2G, 2H에서 로딩 컨트롤로 사용됨 |
| Bromophenol blue | Sigma-Aldrich (Merck) | B0126 | 단계 3.8의 SDS-PAGE 시료 준비를 위한 4× Laemmli 시료 버퍼 조제에 사용됨 |
| Ethylenediaminetetraacetic acid (EDTA) | Sigma-Aldrich (Merck) | E9884 | 저계면활성제 용해 버퍼 조제에 사용됨 (그림 2G 및 2H) |
| Fetal Bovine Serum | NATOCOR | Lintc-634 | 세포 배양을 위한 완전 배지 조제에 사용됨 (단계 1 및 2) |
| Fiji | Open-source software | N/A | 이미지 분석 소프트웨어 |
| Glycerol | Sigma-Aldrich (Merck) | G5516 | 단계 3.8의 SDS-PAGE 시료 준비를 위한 4× Laemmli 시료 버퍼 조제에 사용됨 |
| Glycine | Sigma-Aldrich (Merck) | G7126 | 단계 4.5의 전이 버퍼 조제에 사용됨 |
| Immun-Blot PVDF Membrane, Roll, 0.2 µm, 26 cm x 3.3 m | Bio-Rad | 1620177 | 단계 4.5의 전이에 사용됨 |
| Intercept (TBS) Blocking Buffer | LI-COR BioScience | 927-60001 | 단계 4.6의 블로킹 및 단계 4.7, 4.10의 1차 및 2차 항체 용액 조제에 사용됨 |
| LC3 A/B (D3U4C) Rabbit Monoclonal Antibody | Cell Signaling Technology | 12741 | RRID: AB_2617131 반응성: human, mouse, rabbit. 단계 4.7에서 1차 항체 용액 조제에 사용됨 |
| LC3B (D11) Rabbit Monoclonal Antibody | Cell Signaling Technology | 3868S | RRID: AB_2137707 반응성: Human. 그림 2H에서 LC3 1차 항체로 사용됨 |
| Methanol | Anedra | 6197 | PVDF 멤브레인 활성화 및 단계 4.5의 전이 버퍼 조제에 사용됨 |
| Millex-HV Syringe Filter Unit, 0.45 μm PVDF | Merck Millipore | SLHV033RS | 렌티바이러스 함유 배지 여과에 사용됨 (단계 1.1) |
| Mini digital dry bath | Labnet International, Inc. | D 5060075 | 단계 4.1에서 시료 가열에 사용됨 |
| Mini-PROTEAN Tetra electrophoresis system | Bio-Rad | 1658025FC | 단계 4.2, 4.3 및 4.5의 SDS-PAGE 및 전이에 사용됨 |
| MISSION shRNA targeting mouse Vmp1 (TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | 안정적인 VMP1-녹다운 세포주 생성에 사용됨 (단계 1.1) |
| N,N'-Methylenebisacrylamide (Bis-acrylamide) | Sigma-Aldrich (Merck) | M7279 | 단계 4.2–4.5에 필요한 15% SDS-PAGE 겔 조제에 사용됨 |
| Nabigem 1g Gemcitabine | Microsules Argentina | M3060584-3 | 단계 2의 gemcitabine 처리에 사용됨 |
| Pen-Strep Solution | Sartorius | 03-031-1B | 세포 배양을 위한 완전 배지 조제에 사용됨 (단계 1 및 2) |
| Pierce BCA Protein Assay Kit | Thermo Fisher Scientific | 23227 | 단백질 정량에 사용됨 (단계 3.7) |
| Pierce Protease Inhibitor Tablets | Thermo Fisher Scientific | A32953 | 단계 3.2의 용해 버퍼 조제에 사용됨 |
| Polyethylenimine HCl MAX, Linear (PEI MAX), MW 40,000 | Polysciences | 24765-1 | 렌티바이러스 플라스미드 형질전환에 사용됨 (단계 1.1) |
| Potassium chloride (KCl) | Sigma-Aldrich (Merck) | P9333 | 단계 3.1의 PBS 조제에 사용됨 |
| Potassium phosphate monobasic (KH2PO4) | Sigma-Aldrich (Merck) | P5655 | 단계 3.1의 PBS 조제에 사용됨 |
| PowerPac Basic Power Supply | Bio-Rad | 1645050 | 단계 4.2, 4.3 및 4.5의 SDS-PAGE 및 전이에 사용됨 |
| Prestained ProteinLadder | Genbiotech | PM201 | 단계 4.2 - 4.4의 SDS-PAGE에 사용됨 |
| Puromycin (10 mg/mL solution) | InvivoGen | ant-pr-1 | 안정적으로 형질전환된 세포의 선택에 사용됨 (단계 1.1) |
| RPMI 1640 | Genbiotech | MC2012L | 세포 배양을 위한 완전 배지 조제에 사용됨 (단계 1 및 2) |
| Sodium chloride (NaCl) | Sigma-Aldrich (Merck) | S9888 | 단계 3.1의 PBS, 단계 3.2의 용해 버퍼 및 단계 4.9의 TBS 조제에 사용됨 |
| Sodium dodecyl sulfate (SDS) | Sigma-Aldrich (Merck) | L3771 | 단계 3.2의 용해 버퍼 및 단계 4.2–4.5에 필요한 15% SDS-PAGE 겔 조제에 사용됨 |
| Sodium fluoride (NaF) | Sigma-Aldrich (Merck) | S7920 | 저계면활성제 용해 버퍼 조제에 사용됨 (그림 2G 및 2H) |
| Sodium phosphate dibasic (Na2HPO4) | Sigma-Aldrich (Merck) | S9763 | 단계 3.1의 PBS 조제에 사용됨 |
| Sorval ST 16R Centrifuge | Thermo Fisher Scientific | 75004380 | 단계 1.1의 세포 원심분리 및 단계 3.5의 용해물 원심분리에 사용됨 |
| Sustrato quimioluminiscente SuperSignal West Pico PLUS | Thermo Fisher Scientific | 34577 | 단계 5.1의 화학발광 검출에 사용됨 |
| Thermo Scientific 1300 Series A2 Class II, Type A2 Biosafety Cabinet | Thermo Fisher Scientific | 1386 | 단계 1.1, 1.3 및 2.1의 멸균 세포 배양 작업에 사용됨 |
| Thermo Scientific BB 150 CO2 Incubator | Thermo Fisher Scientific | BB150-2TCS-L | 단계 1.2 및 2.2의 세포 배양에 사용됨 |
| TMEM49/VMP1 (D1Y3E) Rabbit Monoclonal Antibody | Cell Signaling Technology | 12929 | RRID: AB_2714018 반응성: human, mouse, rat. 그림 2C 및 2D에서 VMP1 녹다운 효율을 확인하기 위한 1차 항체로 사용됨 |
| Tris base | Sigma-Aldrich (Merck) | T1503 | 단계 4.5의 전이 버퍼 조제에 사용됨 |
| Tris hydrochloride (Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | 단계 3.2의 용해 버퍼, 단계 3.8의 4× Laemmli 시료 버퍼, 단계 4.2–4.5에 필요한 15% SDS-PAGE 겔 및 단계 4.9의 TBS 조제에 사용됨 |
| Triton X-100 | Sigma-Aldrich (Merck) | T8787 | 단계 3.2의 용해 버퍼 조제에 사용됨 |
| Trypsin EDTA | Gibco | 11570626 | 단계 1.1의 세포 계대 배양에 사용됨 |
참고문헌
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공