체외 이식 모델을 사용하여, 저지방 쥐의 내장 백색 지방 조직의 앞부분 일부를 7일에서 10일간 배양하여, 고지방 식이 섭취 중 지방 조직 염증을 유도하고 연구할 수 있게 합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
고지방 식이와 유사한 지방 조직 염증을 위한 체외 마우스 모델
* These authors contributed equally
이 논문에서
요약
초록
이 프로토콜은 생체 내 식이 개입 없이 고지방식이(HFD) 먹이 후 내장지방 조직(VAT)에서 관찰된 선택된 세포 및 염증 특징을 재현하는 외부 생체 마우스 모델을 설명합니다. 저지방 쥐에서 추출한 소량 VAT 이식은 7일에서 10일간 배양되며, 이 기간 동안 HFD 먹인 동물의 VAT와 매우 유사한 염증성 표현형을 자발적으로 발달시킵니다. 중요한 점은 이 모델이 지방 조직(AT) 구조를 보존하여 생리학적으로 관련된 맥락에서 염증 과정을 조사할 수 있게 한다는 점입니다. 배양 과정에서 비만 관련 염증의 주요 특징 징후가 나타나는데, 여기에는 크라운 모양 구조(CLS) 형성, 대사 활성화 대식세포(MMe) 축적, 염증성 사이토카인 생성 증가 등이 포함됩니다. 지방 세포 사망에도 불구하고, 포화지방산, 지질 조절 변화, 포도당 과잉, 산화 스트레스, 저산소증, 아디포카인 불균형, 파라크린 지방세포-면역세포 신호 전달 등 비만 관련 염증의 다른 요인들이 모델에 부분적으로 나타날 수 있습니다. 이 시스템은 라이브 이미징, 유세포 분석, 정량 PCR, ELISA, 면역염색, 대량 또는 단일 세포 RNA 시퀀싱 등 다양한 하위 응용 분야를 지원합니다. 또한, 약리학적 및 사이토카인 기반 치료법을 통해 신호전달 경로와 세포 유형 특이적 반응을 조사할 수 있습니다. 이 쉽게 맞춤화할 수 있는 모델은 3R 원칙에 부합하여 생체 내 식이 연구에서 동물 사용을 줄입니다. 이 모델은 재현 가능하고 비용 효율적이며 구현이 간편하여 지방세포 사멸, 면역 세포 역학, AT 염증의 치료 전략을 연구할 수 있는 다목적 플랫폼을 제공합니다.
서론
지방 조직(AT)은 약 20%의 지방세포와 면역세포, 섬유아세포, 전구세포, 혈관 세포가 혼합된 대사적으로 활발한 기관입니다. AT는 단원형 백색 지방 조직(WAT), 다근 갈색 지방 조직(BAT), 중간 베이지색 지방 조직으로 분류되며, 구성, 기능, 해부학적 위치에서 이질성을 반영합니다. WAT는 발달 기원, 유전자 발현 프로필, 대사 기능 면에서 서로 다른 피하 지방(SCAT), 내장 지방(VAT), 혈관주, 골수 지방 저장소에 분포합니다. 지질 저장 외에도 AT는 사이토카인, 호르몬, 아디포킨을 분비하는 내분비 기관으로서 기능합니다. SCAT과 비교할 때, VAT는 대사 활성도가 높고 염증 세포가 풍부하여 AT 염증 및 제2형 당뇨병과 같은 대사 질환 연구에 특히 적합하다.
AT는 대사 건강의 핵심 조절자이며, 비만과 관련된 여러 동반 질환에서 중심적인 역할을 합니다. 비만은 지방세포 비대, 과형성, 증식을 촉진하며,AT 확장과 염증은 고혈당, 고인슐린혈증, 고중성지방혈증, 포도당 내성 저하와 강한 상관관계를 보입니다. AT 확장은 지방세포 사망 증가와 함께 추정되며, 연간 약 10%의 세포 교체가 발생하며,7은 조직 정리와 재형성에 필수적인 대식세포 모집을 촉진합니다. 지방세포는 대식세포보다 훨씬 크기 때문에(100–200 μm), 약 5배 작은 이 세포가 효율적으로 식하는 것이 어려워 조직 항상성을 저해하고 만성 AT 염증9를 촉진합니다. 지방 조직 대식세포(ATM)는 다핵 거대 세포(MGCs)로 융합하거나, 죽은 지방세포 주위에 왕관 모양 구조(CLS)를 형성하고 소소좀 외포작용을 통해 이를 분해하여 과도한 죽음 속 지방세포의 제거를 매개합니다 10,11,12. CLS 풍부도는 비만 관련 염증과 상관관계가 있습니다11,13.
건강한 AT에서는 ATM이 주로 항염증성 M2 유사 대식세포인 반면, 비만은 염증성 M1 유사 표현형으로의 전환을 촉진합니다14,15. 추가로 기전적으로 구별되는 대식세포 하위 집합들이 나타나는데, 여기에는 대사활성화 대식세포(MMes)와 지질 관련 대식세포(LAM)가 포함되며, 이들은 소소좀 외식을 통해 죽은 지방세포를 제거하는 데 중요한 역할을 합니다 16,17,18.
생리학적으로 중요한 다세포 환경에서 AT 염증을 조사하기 위해, 프로토콜은 저지방 마우스에서 유래한 VAT의 유기형 이식 배양을 기반으로 한 체외 마우스 모델을 구축하였습니다. 7–10일간 배양된 VAT 추출 식물은 최소 12주 이상의 고지방식이(HFD) 섭취 후 관찰된 염증성 표현형을 CLS 형성, 대식세포 표현형, 염증성 사이토카인 생성과 비교할 수 있습니다 9,19. 중요한 점은 이 접근법이 동물 사용을 줄이고 식이 개입 승인의 필요성을 없애며, 장기 식이 개입 연구에 대한 의존도를 줄여 3R 원칙에 기여한다는 점입니다. 기존의 2차원(2D) 세포 배양 시스템, 예를 들어 단일 세포 배양 모델(예: 3T3-L1 세포 또는 1차 지방세포 배양)과 비교할 때, 이 방법은 조직의 복잡성과 세포 다양성을 보존하여 면역 세포와 지방세포 간의 생리학적 상호작용을 연구할 수 있게 합니다.
배양된 AT 추출기는 다양한 분석 접근법과 호환됩니다. 실시간 공초점 영상은 ATM 축적, CLS 형성, MGC 형성 9,19의 모니터링을 가능하게 합니다. 콜라겐제 소화는 기질 혈관 분획(SVF)을 분리하여 플로우 사이토메트릭 분석, 증식 분석, M1-유사, M2-유사 또는 MMe 표현형 결정 등을 가능하게 합니다12. 정량적 PCR(qPCR) 및 RNA 시퀀싱을 포함한 유전자 발현 분석은 전체 엑스플랜트, SVF 세포 또는 분류된 대식세포9에서 수행할 수 있습니다. 단백질 발현과 효소 활성은 웨스턴 블로팅 또는 ELISA12,20,21로 평가할 수 있으며, 조직 구조와 마커 발현은 전체 염색과 면역형광 9,22로 시각화할 수 있습니다. 또한, ATM 고갈과 사이토카인 치료를 포함한 약리학적 및 유전적 개입도 쉽게 실현 가능하다 21,23,24.
요약하자면, 이 HFD 유사 AT 염증의 체외 마우스 모델은 지방세포 사멸 연구, 세포 행동 의 현장 직접 관찰, 그리고 AT 면역학과 관련된 약리학적 또는 유전적 조작을 가능하게 합니다(그림 1).
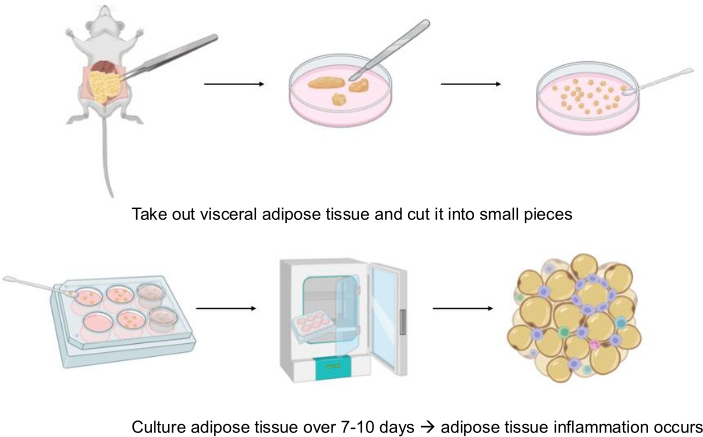
그림 1: 워크플로우의 그래픽 요약. 내장지방 조직(AT)은 쥐로부터 분리하여 작은 외부 식물로 잘라내어 7일에서 10일간 배양합니다. 배양 기간 동안 추출 식물은 염증 표현형을 발달시켜 통제된 체외 조건에서 지방 조직 염증을 연구할 수 있게 합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
동물 실험은 기관 및 국가 지침에 따라 수행되었으며 적절한 규제 당국의 승인을 받았습니다. Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdTomato 마우스("MacFat", RRID: Csf1r-eGFP: RRID:IMSR_JAX:018549, Adipoq-iCreERT2: RRID:IMSR_JAX:025124, CAG-tdTomato: RRID:IMSR_JAX:007914)27,28이 대표적인 현미경 실험에 사용되었습니다. 이 리포터 라인은 GFP 발현에 의한 대식세포와 tdTomato 발현에 의한 지방세포의 시각화를 가능하게 합니다. tdTomato 발현은 지방세포 사멸 후 상실되기 때문에, 배양 과정에서 지방세포의 생존 가능성을 모니터링할 수 있습니다. Csf1r-eGFP 보고자 마우스("MacGreen", RRID:IMSR_JAX:018549)28이 대식세포 시각화 및 유세포 분석에 사용되었습니다. C57BL/6J 마우스(RRID:IMSR_JAX:000664)는 scRNA-seq 및 qPCR 분석을 포함한 비영상 실험에 사용되었습니다. 모든 형질전환 계통은 C57BL/6J 배경에서 이형접합 마우스로 유지되었습니다.
동물 실험은 '실험동물 관리 원칙'(NIH 출판물 번호 85e23, 1985년 개정)과 특정 국가 법률을 따랐으며, 독일 라이프치히의 작센 주 지방 당국(Landesdirektion, 라이프치히)에서 승인받았습니다(동물 실험 적용: TV11-21-MEZ). 지방 당국에 따르면, 설명된 실험들은 동물 실험에 해당하지 않으며, "척추동물이 과학적 목적으로 장기나 조직을 사용하기 위해 죽인 경우, 이는 동물복지법(TierSchG) 제7조 2항에 따른 동물 실험이 아니라 동물복지법(TierSchG) 제4조 3항에 따른 살해"라고 명시되어 있습니다. 동물 도살은 '동물 보고서'에 보고되어야 합니다. 이 보고서는 동물 실험 신청서에 포함되어 있습니다. 라이프치히 대학교 의과대학 윤리위원회도 연구 프로젝트를 승인했습니다. 동물 실험 적용 TV11-21-MEZ 지침에 따라, 쥐들은 흡입 마취제 이소플루란 과다복용으로 안락사됩니다. 유효 가스 농도(O₂ 운반 가스 내 5%)는 이소플루란 증발기를 통해 공급됩니다. 안락사 절차는 호흡 부재(깃털 검사)와 심장 박동(촉진)이 확정되면 완료됩니다.
마우스는 라이프치히 대학교의 온도 조절(22 ± 2 °C) 특정 병원체 없는 시설에서 3–5마리의 형제자매 그룹으로 12시간 빛/어둠 주기 하에 보관되었습니다. 동물들은 자유롭게 물을 마실 수 있었고, 표준 차우 식단(지방 9% kcal; Sniff GmbH, 독일). 대표적인 실험은 수컷과 암컷 쥐를 이용해 수행되었습니다. 프로토콜에 사용되는 시약, 화학물질 및 키트는 재료표에 나열되어 있습니다.
1. 준비
- 시약과 장비를 준비하세요
- RPMI-1640에 10% 태아 소 혈청(FBS)과 1% 항생제 용액을 보충하여 멸균 환경에서 배양지를 준비합니다.
- 배양지를 가열하고 멸균 PBS를 37 °C로 가열합니다.
- 조직 배양 후드 내부의 모든 장비와 작업 공간을 70% 에탄올로 청소하세요.
- 동물 준비
- 기관 지침에 따라 쥐를 희생하세요. 선택적으로 동물의 무게를 재세요.
- 동물들을 70% 에탄올이 들어간 유리 비커에 넣으세요.
- 유리 비커 외부를 에탄올로 닦은 후 조직 배양 후드로 옮기세요.
2. 지방 조직 분리 (그림 2)
- 쥐 준비해
- 무딘 겸자를 사용해 쥐를 유리 접시에 눕히거나 해부판에 고정하세요.
- 페트리 접시에 미리 데운 PBS 얇은 층을 넣으세요.
- 새 장갑으로 바꿔 주세요.
- 겸자로 하복부 피부를 들어 올리고 가위로 작은 수평 절개를 하여 복강을 열어주세요.
- 초기 절개부에서 후미에서 앞쪽까지 ~2cm 정도의 수직 절개를 하여 내부 장기를 노출시킵니다.
- 지방 패드를 분리하세요
- 작고 날카로운 가위와 뾰족한 겸자를 사용해 흰색 지방 조직을 찾아 절제합니다. 오염을 방지하기 위해 별도의 기기를 사용하세요.
- 수컷 쥐: 생식샘 지방은 부고환과 고환에만 부착되어 있습니다. 조심스럽게 지방 발판을 들어 부고체 위쪽으로 절단하거나, 부고환과 고환을 생식샘 지방과 함께 절제한 후 제거하세요.
- 암컷 쥐: 생식샘 지방이 자궁 뿔과 난소에 부착되어 있으며, 수컷보다 더 두드러집니다. 지방 패드와 자궁 뿔과 난소를 따라 조심스럽게 들어 올리세요.
- 분리된 지방 패드를 PBS가 들어간 페트리 접시에 넣으세요.
- 면도날을 사용해 남은 부고지, 고환, 난소 또는 혈관을 제거하세요.
- 깨끗한 지방 패드를 미리 데워진 PBS가 들어있는 두 번째 페트리 접시로 옮깁니다. 선택적으로 지방 패드의 무게를 재세요.
참고: 배양 전에 지방 패드의 무게를 재면 실험 조건 간 조직 질량의 정규화가 가능합니다.
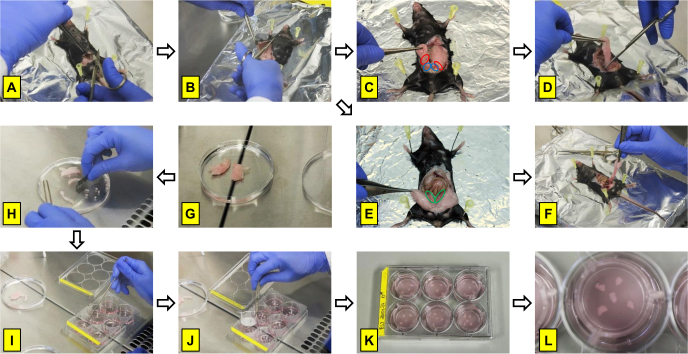
그림 2: 내장 지방 조직 제거 및 배양. (A,B) 복강을 열고 내장 지방 조직을 노출하는 과정. (C, D) 수컷 마우스에서 부고체 지방 조직을 분리하여 지방이 부고환(빨간 원)과 고환(파란 원)에 부착됨. (E, F) 암컷 쥐에서 생식샘 지방 조직을 분리하고, 지방은 자궁 뿔(녹색 원)과 난소에 부착되어 있습니다. (G, H) 지방 조직 제거 식물의 준비 및 다듬기. (I, J) 추출물을 배양 웰로 옮기고 세포 배양 삽입물을 삽입합니다. (K, L) 6웰 플레이트에서 배양 중 추출 식물의 대표 이미지. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
3. 식물 준비 및 배양
- 익스플랜트 준비
주의: 면도날은 날카로워서 부상을 일으킬 수 있습니다. 칼날은 기관 안전 절차에 따라 조심스럽게 취급하고 폐기해야 합니다.- 지방 패드를 스트립으로 잘라낸 후 면도날로 약 10mm3 (식물당 ~10mg) 크기의 큐브로 자릅니다.
- 외부 배양 설립
- 6웰 플레이트의 각 웰에 1–1.5mL의 배양지를 추가합니다.
참고: 정규화를 위해서는 배양지 1mL당 약 50mg의 지방 조직을 사용합니다. - 멸균 숟가락이나 주걱을 사용해 각 웰에 다섯 개의 추출물을 옮깁니다.
- 추출물을 원형으로 고르게 배치하세요.
- 세포 배양 인서트를 멸균 겸자로 덮으세요.
참고: 인서트 위치를 잡을 때 공기 방울이 생기지 않도록 하고, 익스플랜트가 그 안에 중앙에 위치하도록 하세요. - 추출물을 37°C, 5% CO₂, 21% O₂에서 7–10일간 배양합니다.
참고: 미리 가열된 PBS와 배양지를 사용하여 조직 생존력을 높입니다. 지방 패드가 인큐베이터 밖에 머무는 시간을 최소화하기 위해 빠르게 작업하세요. 쥐 털 오염을 피하세요. 머리카락이 조직에 달라붙으면 제거하고 따뜻한 PBS로 헹구세요.
- 6웰 플레이트의 각 웰에 1–1.5mL의 배양지를 추가합니다.
4. 하류 분석
- 7–10일간의 배양 기간 이후, 엑스플랜트, 기질 혈관 분획 세포 또는 배양 상원액을 수집하여 현미경, 유세포 분석, qPCR, ELISA, RNA 시퀀싱 등 실험 종료점에 필요한 후속 분석에 활용합니다.
5. 통계 분석
- GraphPad Prism 10.2를 사용하여 통계 분석을 수행합니다. 이상치는 ROUT 검정(Q = 1%)을 사용해 스크리닝하고, Shapiro–Wilk 검정(α = 0.05)으로 정규성을 평가합니다.
- 적절한 경우 쌍 학생 t-검정 또는 윌콕슨 짝 쌍 검정을 사용하여 두 그룹을 비교합니다. 여러 집단을 일방향 ANOVA를 사용한 후 Dunnett의 사후 검정을 적용하여 비교합니다. p < 0.05에서 통계적으로 유의미한 차이를 고려하라.
- 데이터를 SEM 평균± 제시합니다. 별도 명시가 없는 한, n을 생물학적 복제 횟수(개별 쥐)로 정의합니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
전반적인 조직 생존 가능성은 배양 기간 내내 유지되었으며, 여러 보완적 접근법을 통해 모니터링되었습니다. 조직 생존력은 칼세인25와 같은 생존성 염료를 이용한 공초점 현미경, 지방세포 막 완전성을 평가하기 위한 페리리핀에 대한 항체 염색 17,26, 또는 지방세포 내 형질전환 리포터 단백질 발현을 통해 평가할 수 있습니다. 조직의 활력과 완전성은 배양 과정에서 최대 14일간 보존되었으나, 현재는 더 긴 배양 기간이 평가되고 있습니다.
적합한 형질전환 리포터 모델은 Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdTomato 마우스 계통("MacFat")27,28
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
대사 질환과 당뇨병의 전 세계적 유병률이 증가함에 따라, 지방 조직(AT) 염증의 기전을 이해하는 것은 여전히 중요한 연구 목표로 남아 있습니다. 이 요구를 해결하기 위해, 통제된 실험 조건에서 AT 염증을 유도하고 분석할 수 있는 체외 외부 이식 배양 시스템이 개발되었습니다.
이 방법의 중요한 요구 사항 중 하나는 배양 기간 전반에 걸쳐 조직의 생존 가능성을 보존하는 것입니다. 여러 보완적 접근법을 사용해 AT의 무결성이 배양 내에서 최대 14일간 유지됨이 입증되었습니다. 비교하자면, 이전에 발표된 AT 이식 방법은 일반적으로 24시간에서3일까지 훨씬 짧은 기간 동안 조직 생존 가능성을 보여준다. 세포 배양 삽입물의 사용은 조직 수분을 유지하면서 효율적인 가스 교환을 가능하게 하여 조직 생존을 지원...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자들은 상충하는 이해관계가 없다고 선언한다.
감사의 글
저자들은 훌륭한 기술 지원을 제공해 준 콘스턴스 호부쉬와 플로리안 커름세에게 감사를 표합니다. 유세포분석은 라이프치히 대학교 코어 유닛 형광 기술에서 카트린 예거와 피아 글뢰크너의 기술 지원을 받아 수행되었습니다. 이 연구는 독일 연구재단(Deutsche Forschungsgemeinschaft, DFG)의 지원을 받았으며, 프로젝트 번호 209933838 SFB 1052 (프로젝트 B09)입니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
```html
```
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| BD OptEIA Mouse TNF ELISA Kit | BD Biosciences | 560478 | |
| Bodipy 558/568 C12 | 흐름 세포 분석: 1:10000; 염색: 1:2000 | Invitrogen | D3835 |
| Bovine Serum Albumin | 3% | Sigma | A9647 |
| CD107a (LAMP1) – AF647 | 염색: 1:100; 흐름 세포 분석: 1:200 | BioLegend | 121610 |
| CD11c – BV605 | 흐름 세포 분석: 1:100 | BioLegend | 117334 |
| CD16/32 | 흐름 세포 분석: 1:100 | Invitrogen | 14-0161-82 |
| CD301 – AF647 | 흐름 세포 분석: 1:50 | Bio-Rad | MCA2392A647 |
| CD36 – PE | 흐름 세포 분석: 1:400 | BioLegend | 102606 |
| CD45 – PE | 흐름 세포 분석: 1:100 | BD Pharmingen | 555483 |
| Click-iT Plus EdU Alexa Fluor 350 Flow Cytometry Assay Kit | EdU: 5 µM | Invitrogen | C10632 |
| Clodronate Liposomes | 500 µg/ml clodronate | Liposoma | |
| Collagenase Type 2 | 1 mg/ml, 315 U/mg | Worthington | LS004176 |
| CyQUANT LDH Cytotoxicity Assay Kit | Invitrogen | C20301 | |
| DAPI | 흐름 세포 분석: 0.2 µg/ml | Thermo Fisher | 62248 |
| Ethanol | 70% | Carl Roth | T913.1 |
| F4/80 – AF647 | 흐름 세포 분석: 1:100 | Invitrogen | MF48021 |
| F4/80 – PE-Cy7 | 흐름 세포 분석: 1:200 | Invitrogen | 25-4801-82 |
| Fetal Calf Serum | 1.10 | Gibco | 10270106 |
| Fetal Calf Serum | 1.20 | Gibco | 10270106 |
| HBSS (-Mg, -Ca) | Gibco | 14170138 | |
| HEPES | 13 mM | Roth | HN77.2 |
| Hoechst 33342 | 1:10,000 | Life Technologies | H3570 |
| LysoTracker – AF647 | 흐름 세포 분석: 1:20000; 염색: 1:10000 | Invitrogen | H34477 |
| MAC-2 | 염색: 1:1000 | Cedarlane | CL8942AP |
| Millicell Cell Culture Insert, 30 mm, hydrophilic PTFE, 0.4 µm | Merck Millipore | PICM0RG50 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| Penicillin/Streptomycin (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Penicillin/Streptomycin (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Perilipin | 2 µg/ml | Abcam | ab3526 |
| Plexxicon 5622 | 40 µM | Plexxicon Inc. | HY-114153 |
| RPMI-Media 1640 | with 11 mM glucose | Sigma Aldrich | R8758 |
| RPMI-Media 1640 | Sigma | R8758 | |
| TC-Insert for 6-well plates | Sarstedt | 83.3930.040 | |
| TPP tissue culture test plate 6 | TPP | 92006 | |
| Triton X-100 | 1% | Carl Roth | 3051.2 |
| Zinc chloride | 0.8 mM | Sigma | Z0152 |
| Zinc formaline | Polyscience | 21516-3.75 |
참고문헌
- Massier L, et al. An integrated single cell and spatial transcriptomic map of human white adipose tissue. Nat Commun. 2023;14(1):1438. doi:10.1038/s41467-023-36983-2.
- Rosen ED, Spiegelman BM. What We Talk About When We Talk About Fat. Cell. 2014;156(1-2):20-44. doi:10.1016/j.cell.2013.12.012.
- Ibrahim MM. Subcutaneous and visceral adipose tissue: structural and functional differences. Obes Rev. 2010;11(1):11-18. doi:10.1111/j.1467-789X.2009.00623.x.
- Bruun JM, Lihn AS, Pedersen SB, Richelsen B. Monocyte chemoattractant protein-1 release is higher in visceral than subcutaneous human adipose tissue: implication of macrophages resident in adipose tissue. J Clin Endocrinol Metab. 2005;90(4):2282-2289. doi:10.1210/jc.2004-1696.
- Curat CA, et al. Macrophages in human visceral adipose tissue: increased accumulation in obesity and a source of resistin and visfatin. Diabetologia. 2006;49(4):744-747. doi:10.1007/s00125-006-0173-z.
- Wang QA, Tao C, Gupta RK, Scherer PE. Tracking adipogenesis during white adipose tissue development, expansion and regeneration. Nat Med. 2013;19(10):1338-1344. doi:10.1038/nm.3324.
- Spalding KL, et al. Dynamics of fat cell turnover in humans. Nature. 2008;453(7196):783-787. doi:10.1038/nature06902.
- Weisberg SP, McCann D, Desai M, Rosenbaum M, Leibel RL, Ferrante AW. Obesity is associated with macrophage accumulation in adipose tissue. J Clin Invest. 2003;112(12):1796-1808. doi:10.1172/JCI200319246.
- Lindhorst A, et al. Adipocyte death triggers a pro-inflammatory response and induces metabolic activation of resident macrophages. Cell Death Dis. 2021;12(6):579. doi:10.1038/s41419-021-03872-9.
- Braune J, et al. Multinucleated giant cells in adipose tissue are specialized in adipocyte degradation. Diabetes. 2021;70(2):538-548. doi:10.2337/db20-0293.
- Cinti S, et al. Adipocyte death defines macrophage localization and function in adipose tissue of obese mice and humans. J Lipid Res. 2005;46(11):2347-2355. doi:10.1194/jlr.M500294-JLR200.
- Wehr R, Lindhorst A, Arndt L, Krueger M, Raulien N, Gericke M. Lysosomal exocytosis by macrophages as a druggable mechanism for anti-inflammatory clearance of dead adipocytes in adipose tissue. Cell Death Dis. 2025. doi:10.1038/s41419-025-08334-0.
- Altintas MM, et al. Apoptosis, mastocytosis, and diminished adipocytokine gene expression accompany reduced epididymal fat mass in long-standing diet-induced obese mice. Lipids Health Dis. 2011;10(1):198. doi:10.1186/1476-511X-10-198.
- Lumeng CN, Bodzin JL, Saltiel AR. Obesity induces a phenotypic switch in adipose tissue macrophage polarization. J Clin Invest. 2007;117(1):175-184. doi:10.1172/JCI29881.
- Lumeng CN, DelProposto JB, Westcott DJ, Saltiel AR. Phenotypic switching of adipose tissue macrophages with obesity is generated by spatiotemporal differences in macrophage subtypes. Diabetes. 2008;57(12):3239-3246. doi:10.2337/db08-0872.
- Haka AS, et al. Exocytosis of macrophage lysosomes leads to digestion of apoptotic adipocytes and foam cell formation. J Lipid Res. 2016;57(6):980-992. doi:10.1194/jlr.M064089.
- Strissel KJ, et al. Adipocyte death, adipose tissue remodeling, and obesity complications. Diabetes. 2007;56(12):2910-2918. doi:10.2337/db07-0767.
- Xu R, et al. Lipid-associated macrophages between aggravation and alleviation of metabolic diseases. Trends Endocrinol Metab. 2024. doi:10.1016/j.tem.2024.04.009.
- Gericke M, Weyer U, Braune J, Bechmann I, Eilers J. A method for long-term live imaging of tissue macrophages in adipose tissue explants. Am J Physiol Endocrinol Metab. 2015;308(11). doi:10.1152/ajpendo.00075.2015.
- Gericke MT, et al. Receptors for NPY and PACAP differ in expression and activity during adipogenesis in the murine 3T3-L1 fibroblast cell line. Br J Pharmacol. 2009;157(4):620-632. doi:10.1111/j.1476-5381.2009.00164.x.
- Arndt L, et al. The role of IL-13 and IL-4 in adipose tissue fibrosis. Int J Mol Sci. 2023;24(6):5672. doi:10.3390/ijms24065672.
- Haase J, et al. Local proliferation of macrophages in adipose tissue during obesity-induced inflammation. Diabetologia. 2014;57(3):562-571. doi:10.1007/s00125-013-3139-y.
- Braune J, et al. IL-6 regulates M2 polarization and local proliferation of adipose tissue macrophages in obesity. J Immunol. 2017;198(7):2927-2934. doi:10.4049/jimmunol.1600476.
- Neugebauer J, et al. The Impact of Resident Adipose Tissue Macrophages on Adipocyte Homeostasis and Dedifferentiation. Int J Mol Sci. 2024;25(23):13019. doi:10.3390/ijms252313019.
- Schopow N, et al. Examination of ex vivo viability of human adipose tissue slice culture. PLoS One. 2020;15(5). doi:10.1371/journal.pone.0233152.
- Braune J, et al. Hedgehog signalling in myeloid cells impacts on body weight, adipose tissue inflammation and glucose metabolism. Diabetologia. 2017;60(5):889-899. doi:10.1007/s00125-017-4223-5.
- Van Rooijen N, Van Nieuwmegen R. Elimination of phagocytic cells in the spleen after intravenous injection of liposome-encapsulated dichloromethylene diphosphonate: an enzyme-histochemical study. Cell Tissue Res. 1984;238(2):355-358. doi:10.1007/BF00217308.
- Sasmono RT, et al. A macrophage colony-stimulating factor receptor-green fluorescent protein transgene is expressed throughout the mononuclear phagocyte system of the mouse. Blood. 2003;101(3):1155-1163. doi:10.1182/blood-2002-02-0569.
- Blüher M. Adipose tissue dysfunction in obesity. Exp Clin Endocrinol Diabetes. 2009;117(6):241-250. doi:10.1055/s-0029-1192044.
- Hotamisligil GS, Shargill NS, Spiegelman BM. Adipose expression of tumor necrosis factor-alpha: direct role in obesity-linked insulin resistance. Science. 1993;259(5091):87-91. doi:10.1126/science.7678183.
- Cohen M, et al. Adipose tissue explant culture using PDMS flow chambers: an alternative to static explant culture. Adipocyte. 2025;14(1):2578286. doi:10.1080/21623945.2025.2578286.
- Du ZY, et al. Depot-dependent effects of adipose tissue explants on co-cultured hepatocytes. PLoS One. 2011;6(6). doi:10.1371/journal.pone.0020917.
- Murano I, et al. Dead adipocytes, detected as crown-like structures, are prevalent in visceral fat depots of genetically obese mice. J Lipid Res. 2008;49(7):1562-1568. doi:10.1194/jlr.M800019-JLR200.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
