본 프로토콜은 인간 면역결핍 바이러스-1(HIV-1) 감염 여부와 관계없이, 급속 부검을 통해 얻은 사후 뇌 조직으로부터 고순도의 인간 골수성 세포/미세아교세포를 분리, 정제 및 배양하는 방법을 설명합니다. 이는 골수성 세포/미세아교세포의 생물학, 뇌 내 HIV 저장소, 신경 염증 및 HIV 치료 전략을 연구하기 위한 강력한 ex vivo 플랫폼을 제공합니다.
방법 논문
인간 면역결핍 바이러스-1의 지속성을 연구하기 위한 뇌 미세아교세포의 분리
* These authors contributed equally
이 논문에서
요약
초록
본 연구진은 HIV-1(HIV) 감염 여부와 관계없이 신속 부검을 통해 얻은 사후 뇌 조직으로부터 일차 인간 뇌 골수성 세포(BrMCs)를 분리, 배양 및 연구하기 위한 견고한 프로토콜을 확립하고 최적화하였으며, 여기에는 >BrMC의 97.3%는 뇌 미세아교세포(MG)입니다. 따라서, 해당 세포 집단을 더 정확하게 나타내기 위해 이렇게 분리된 BrMC를 MG 또는 BrMC/MG라고 지칭합니다. 이 방법은 종합적인 ex vivo 뇌 내 HIV 저장소 유지, 신경염증 매개 및 신경세포 손상 기여를 포함한 미세아교세포 생물학 연구와 HIV 완치 전략의 평가.
세포 생존력과 RNA/단백질의 무결성을 유지하기 위해, 신속한 연구 부검 후 사망 6시간 이내에 뇌 조직을 수집하였습니다. 전두엽, 두정엽, 후두엽 피질, 해마, 기저핵을 포함한 여러 영역을 효소 소화 및 제어된 기계적 해리를 통해 처리한 후, 밀도 구배 원심분리를 실시하여 수초 파편을 효율적으로 제거하고 적혈구를 용해시켜 생존 가능한 단일 세포 현탁액을 생성하였습니다. 그 후 순도와 특이성을 보장하기 위해 CD3⁺ T 세포 제거 후 CD1b⁺ 자기 비드 농축으로 구성된 2단계 분리 방법을 사용하여 BrMCs/MG를 정제하였습니다.
정제된 골수성 세포는 장기 ex vivo 배양 동안 세포 생존력과 기능적 무결성을 유지하기 위해 M-CSF가 보충된 정의된 조건 하에서 배양되었습니다. 이 최적화된 플랫폼은 BrMCs/MG 내의 뇌 거주 HIV 저장소 및 관련 메커니즘에 대한 하위 분자, 면역 및 바이러스 분석을 위한 신뢰할 수 있고 확장 가능한 플랫폼을 제공합니다.
서론
뇌 골수세포(BrMCs)/미세아교세포는 중추신경계(CNS)의 주요 선천 면역 세포입니다1,2,3. 건강한 상태에서 이들은 뇌를 지속적으로 모니터링하며 시냅스 가지치기, 잔해 제거, 뉴런 지원과 같은 작업을 돕습니다4,5,6. 질병이 발생하면 미세아교세포가 면역학적으로 활성화되어 신경 염증을 유발하며, 이는 다양한 CNS 질환의 신경 퇴행에서 핵심적인 역할을 합니다7,8,9. HIV-1(HIV) 감염 시, BrMCs/미세아교세포는 CNS T 세포 및 아마도 성상교세포와 함께 뇌 내 주요 HIV 저장소 역할을 하며, 성상교세포는 CNS 내 HIV 저장소에서 상대적으로 적은 역할을 하는 것으로 보입니다. 미세아교세포는 효과적인 항레트로바이러스 치료(ART)에도 불구하고 잠복 감염되어 통합된 프로바이러스 HIV DNA를 보유하고 있으며, 낮은 수준의 HIV RNA 발현을 유지합니다10,1,12. BrMCs/미세아교세포 내의 지속적인 HIV 감염은 만성 염증으로 이어지며, 현대적인 ART 하에서도 HIV 관련 신경인지 장애(HAND)와 연관되어 있습니다. 이는 HIV 감염인의 최대 50%에서 인지, 행동 및 운동 증상이 나타나는 것으로 입증되었습니다13,14,15,16. 따라서 지속적으로 HIV에 감염된 미세아교세포의 기능을 이해하는 것은 HIV 감염 및 잠복기의 분자적 기전, 미세아교세포와 성상교세포 및 기타 CNS 세포 간의 상호작용, 뉴런 손상, 그리고 HAND 질환 과정을 파악하는 핵심이며, 이는 neuroHIV에 대한 치료 표적을 찾는 데 매우 중요합니다1,12,17.
하지만 인간 사후 뇌 조직을 사용하여 미세아교세포(microglia)를 연구하는 데에는 기술적인 어려움이 있습니다. 특히 백질의 높은 마이엘린(myelin) 함량은 세포를 가두고 필터를 막아, 면역자기 선택(immunomagnetic selection) 전에 마이엘린을 제거하지 않으면 세포 회수율을 낮출 수 있습니다18,19. PWH 사망 후에는 TMEM19 및 P2RY12와 같은 세포 표면 마커가 분해될 수 있어, 미세아교세포를 정확하게 식별하는 것이 더 어려워질 수 있습니다20,21. 또한 HIV 감염 뇌의 골수성 세포(myeloid cells)에는 미세아교세포와 일부 공통 마커를 공유하는 말초 단핵구 및 조직 상주 대식세포가 포함되어 있습니다. 따라서 BrMC, 특히 미세아교세포의 순수한 집단을 농축하기 위해서는 추가적인 단계가 필요합니다2,23.
인간 미세아교세포(microglia)를 분리하는 현재의 방법들은 HIV에 감염된 사후 조직에 효과적으로 적용되지 않습니다. 형광 활성화 세포 분류법(Fluorescence-activated cell sorting)은 포괄적인 결과를 제공하지만, 고가의 장비가 필요하고 시간이 더 많이 소요되며, 소량의 귀중한 인간 뇌 조직으로부터 얻을 수 있는 세포 수율이 낮습니다24,25. 면역 패닝(Immunopanning)은 특이도가 높지만, 여러 뇌 영역의 샘플을 동시에 처리할 수 없고 배양 시간이 길어, 하룻밤 운송 후 신속한 조직 처리가 필요한 사후 조직에는 적합하지 않습니다26,27. 또한, 이러한 방법들 중 어느 것도 동일한 샘플에서 T 림프구와 골수성 세포를 모두 회수할 수 없는데, 이는 HIV에 감염된 중추신경계(CNS) 세포의 완전한 면역 프로파일링을 위해 반드시 필요합니다17,28.
본 프로토콜은 HIV에 감염된 사후 인간 뇌 조직으로부터 미세아교세포 및 기타 중추신경계(CNS) 면역 세포를 분리하고 농축하기 위한 재현 가능하고 신뢰할 수 있으며 효율적인 방법을 제공합니다. 제어된 기계적 해리와 온화한 효소 소화(예: TrypLE Express 및 DNase I)를 결합하면 표면 항원을 상당 부분 보존하고 세포 응집을 최소화할 수 있습니다29,30. Percoll 밀도 구배 원심분리를 통해 수초를 제거한 후, CD3⁺ T 세포와 CD1b⁺ 골수성 세포를 면역자기 분리법으로 분리합니다31,32. 특히, 온화한 효소 조건을 사용함으로써 CD1b 및 CD68을 포함한 주요 골수성 마커와 TMEM19 및 P2RY12와 같은 미세아교세포 특이적 바이오마커를 보존할 수 있으며, 이를 통해 CNS 세포의 정확한 특성 분석과 하위 신호 전달 경로 분석이 가능해집니다3. 또한, 2단계 선택 접근 방식은 바이러스학 및 면역학 연구에 적합한 고순도의 CD3⁺ T 세포 분획을 생성합니다. 이는 바이러스 CNS 저장소 내 T 세포의 역할과 뇌로의 T 세포 침윤 후 발생하는 HIV 관련 신경학적 손상을 고려할 때, 특히 NeuroHIV 연구에 매우 중요합니다34,35.
종합적으로, CD3⁺ T 세포를 먼저 제거한 후 CD3 음성 분획에서 CD1b⁺ 골수성 세포를 농축하는 이 2단계 순차적 접근법은 귀중하고 제한적인 가치가 높은 조직 샘플의 활용도를 극대화하는 동시에 세포 순도와 CNS 세포 수율을 모두 향상시킵니다. 분리된 세포는 벌크 및 단일 세포 RNA 시퀀싱, 유세포 분석, 기능 분석, 그리고 CNS 상주 면역 세포 내의 복제 가능 바이러스 저장소를 결정하기 위한 HIV DNA/RNA 정량 및 바이러스 증식 분석을 포함한 바이러스학적 분석 등 광범위한 하위 응용 분야에 적합합니다17,36,37.
많은 PWH가 ART 억제 상태에 있거나 생애 말기에만 단기적으로 ART를 중단하므로, 본 프로토콜은 BSL-2+ 조건하에서 사후 뇌 조직 처리가 가능한 실험실과 호환됩니다. 또한, 분리 후 BrMCs/microglia의 특이성을 검증하기 위해 표준 면역자기 분리 및 유세포 분석 플랫폼만 필요합니다. 약간의 수정을 통해 알츠하이머병, 다발성 경화증, 롱 코비드19(long COVID19) 및 외상성 뇌 손상38,39,40과 같은 중추신경계(CNS) 질환 연구에도 적용할 수 있습니다. 본 프로토콜은 SIVmac251 또는 SIVmac239에 감염된 비인간 영장류(NHPs)12,41뿐만 아니라, HIV 감염 또는 잠복기의 인간화 마우스 모델에서 뇌 세포를 분리하도록 최적화되어 뇌 내 HIV 감염의 생리학적으로 유의미한 모델을 제공합니다. 인간의 뇌와 달리 이러한 동물 모델은 접근성이 더 높으며, HIV 감염, HIV 잠복기 및 관련 neuroHIV의 기전 및 중개 연구를 위한 귀중한 보완적 자원이 됩니다.
프로토콜
참고: 모든 인간/비인류 영장류(NHP) 조직은 BSL-2 조건에서 취급하십시오. Percoll 처리, ACK 버퍼 및 DMSO 사용 시 가운, 장갑, 마스크, 안면 보호구를 포함한 적절한 개인 보호 장비를 사용하십시오. 화학 및 생물학적 폐기물은 기관 지침에 따라 폐기하십시오. 메스, 피펫, 페트리 접시와 같이 조직 해리에 사용된 모든 일회용 장비는 생물학적 위험 폐기물 봉투에 버리기 전 10% bleach로 헹구십시오. 핀셋, 가위와 같은 재사용 가능 장비는 세척 및 오토클레이브 멸균 전 10% SDS로 헹구십시오.
1. 뇌 조직 수집
- 인체 시료
참고: 본 연구에 사용된 인체 조직은 캘리포니아 대학교 샌디에이고(UCSD; IRB No. 160563)의 기관생명윤리위원회(IRB)에서 승인한 프로토콜에 따라 수집되었습니다12. 인체 기증자는 항레트로바이러스 치료(ART)를 받고 있는 HIV 감염인입니다. 연령, 성별, 사후 경과 시간(PMI) 및 ART 상태를 포함한 주요 기증자 특성을 여기에 간략히 요약하였으며, 이러한 기증자 특성은 이전 출판물에 자세히 기술되어 있습니다12.- 세포 생존력과 RNA 무결성을 보존하기 위해 사망 후 ≤6 h 이내에 조직을 수집 하고 24 h 이내에 처리 실험실로 보냅니다.
- 비인류 영장류(NHP) 시료
참고: 레서스 원숭이(Macaca mulatta)는 에모리 국립 영장류 연구 센터(ENPRC, PROTO20170286) 또는 캘리포니아 국립 영장류 연구 센터(CNPRC, UCD IACUC #2832)에서 사육되었습니다. 동물 관리 및 실험 절차는 각 기관 동물실험윤리위원회(IACUC)의 규정에 따라 수행되었으며, 기관 및 연방 가이드라인을 준수하였습니다. 모든 동물 관리 시설은 미국 농무부(USDA)와 국제 실험동물 평가 인증 협회(AAALAC)의 인증을 받았습니다.- 부검 직후 조직을 수집합니다12.
- 조직 수집
참고: 모든 취급 과정은 얼음 위에 놓인 사전 냉각된 칭량 보트(weigh boat)에서 수행하십시오.- 조직 가용성에 따라 뇌 영역(예: 전두엽, 두정엽, 후두엽 피질, 해마, 기저핵)당 2–20 g을 수집합니다.
- 10 nM Nevirapine, 20 nM Raltegravir, 25 nM Darunavir가 첨가된 얼음처럼 차가운 DMEM/F12에 조직을 넣습니다. 조직을 4 °C로 유지합니다.
- 운송 조건
- 시료를 밀폐 튜브에 넣어 4 °C 얼음 상태로 보관합니다.
- 자격을 갖춘 담당자가 UN373 카테고리 B 규정에 따라 튜브를 운송하도록 합니다12. 얼음에 넣어 처리 실험실로 익일 배송합니다.
2. 조직 준비
- 조직을 50 mL 튜브로 옮깁니다. 상등액이 맑아질 때까지 DNase(10 U/mL)가 포함된 차가운 HBSS 20–40 mL를 넣고 튜브를 부드럽게 뒤집어 조직을 10–15회 세척합니다.
참고: 이 과정은 혈액, 잔해 및 오염 물질을 제거하는 단계이므로, 세척 중에 조직 조각들이 자유롭게 움직일 수 있도록 충분한 부피의 용액을 사용하십시오. - 멸균 핀셋을 사용하여 뇌수막과 큰 혈관을 제거하고 폐기합니다.
- 조직을 새로운 페트리 접시로 옮기고, 뇌 영역별로 조직 무게(용기 무게 제외)를 기록합니다.
- HBSS + DNase I (10 U/mL) 약 10 mL 내에서 멸균 핀셋을 사용하여 조직을 약 1–2 mm 크기의 조각으로 찢습니다.
참고: 메스를 사용하여 페트리 접시 내에서 조직을 잘게 다질 수 있습니다.
3. 효소 소화
- 1x 재조합 세포 해리 효소 10 mL와 DNase I(최종 농도 10 U/mL)을 혼합하여 소화 믹스를 준비하십시오.
- 회전 진탕기를 다음 온도로 예열하십시오. 37 °C 그리고 DNase I(최종 농도 10U/mL)이 포함된 재조합 세포 해리 효소를 다음의... 37 °C 배양기
- 단계 3.1의 소화 혼합액에 담긴 조직을 플라스크(부피에 따라 T150)로 옮깁니다. > 50 mL; 더 작은 플라스크가 필요한 경우 <50 mL)를 넣고 회전 진탕기에서 다음과 같이 배양한다: 37 °C, 150 rpm, 30분.
- 10 mL 및 5 mL 피펫을 사용하여 용액을 부드럽게 파이펫팅하여 혼합하십시오.
주의: 강한 피펫팅을 피하십시오. - 조직이 가라앉을 수 있도록 실온에서 5분 동안 배양하십시오.
- 세포 수집
- 상층액을 50 mL 튜브에 수집합니다. 이것이 컬렉션 #1수집한 상층액에 10% FBS를 첨가하여 효소 활성을 정지시킨다.
- 남은 조직을 HBSS + DNase I (10U/mL) + 10% FBS (조직 1g당 10mL)에 재현탁하십시오. 부드럽게 파이펫팅하여 균질화한 후 70 $\mu\text{m}$ 필터로 거릅니다.100 µm 여과기.
참고: 효소 소화가 충분히 이루어졌다면, 모든 조직이 스트레이너를 통과하게 됩니다. - 50에서 원심분리하십시오. × g, 실온, 10분; 이는 컬렉션 #2.
참고: 회수율을 최대화하려면 현탁액을 침전시킨 후 상층액만 새 튜브로 옮기십시오.
- 최종 처리
- 수집물(C1 및 C2)을 50에서 원심분리하십시오. × g 10분 동안.
- 상층액을 제거한다. C1과 C2의 세포 펠렛을 하나의 튜브에 모은다.
4. 미엘린 잔해 제거 (Percoll 밀도 구배)
- Percoll 9부와 10x HBSS 1부를 혼합하여 등장성 Percoll(SIP)을 준비합니다. 조직 1g당 약 2.5mL가 되도록 충분한 양을 준비하십시오.
- SIP 3.5 mL와 1x HBSS 5.5 mL를 혼합하여 35% Percoll 작업 용액을 준비하십시오. 조직 1g당 약 4.5 mL가 되도록 충분한 양을 준비하십시오.
- 밀도 분리
- 단계 3.7.2에서 얻은 세포 펠렛을 35% Percoll에 재부유하십시오. 원래 조직 무게(즉, 해리 전 측정된 조직 무게) 1g당 약 4.5ml의 35% Percoll을 사용하십시오.
- 참고: 50 mL 튜브에 35% Percoll을 넣어 세포를 재부유시키십시오(튜브당 최대 30 mL). 조직의 크기가 큰 경우, 세포를 여러 개의 50 mL 튜브에 나누어 담으십시오.
- 각 튜브 위에 1x HBSS 10 mL를 조심스럽게 층이 지도록 분주합니다. 얼음 위 또는 다음 온도에서 5분간 배양합니다. 4 °C.
- 80에서 원심분리하십시오. × g, 45분, 4 °C (감속 중 제동 없음).
- 층 회복
- 하층의 중간상(interphase)이 흐트러지지 않도록 주의하며 상층액과 수초층(myelin layer)을 조심스럽게 제거하십시오.
- 잔해물이 섞여 들어가는 것을 방지하기 위해, 펠릿과 인터페이스(혼합 뇌세포와 Percoll 분획이 포함된 수초층 아래 부분)를 새로운 50 mL 원심분리관(conical tube)에 수집하십시오.
- 희석 및 세척
- Percoll을 희석하기 위해 HBSS를 3:1 비율로 추가합니다(예: 수집된 현탁액 10mL당 HBSS 30mL 추가, 약 3배 희석).
- 1,00에서 원심분리하십시오. × g, 10분 동안 _에서 4 °C (브레이크와 가속 페달을 끝까지 밟으십시오).
- 상청액을 완전히 제거하십시오.
- 적혈구 용해 및 세포 계수
- 단계 4.5.3에서 얻은 세포 플레이트를 ACK 버퍼로 처리합니다(5 mL, 10분, 37 °C).
- Trypan blue를 사용하여 생존 세포 수를 측정하십시오.
- 참고: 예상 수율: ~0.1–1 × 10⁶ 조직의 상태에 따라 조직 g당 CNS 세포 수.
- ACK 용해 버퍼를 불활성화하기 위해 PBS 10 mL를 추가하십시오. 50에서 원심분리하십시오. × g 5분 동안.
참고: 선택적 중단 단계: 세포는 분리 전 0.5–1 밀도로 하룻밤 동안 배양할 수 있습니다. × 106 배지/mL (DMEM/F-12, pyruvate sodium 함유 글루타민 보충제 (50 mL), 10% 열불활성화 FBS, 1x HEPES 완충 용액, 1x 항생제-항진균제 (10x 스톡 5.5 mL), 10 ng/mL MCSF (1,0x 스톡).
위에서 설명한 조직 해리, 적혈구 용해, 세포 계수 및 선택적 하룻밤 배양 단계를 완료한 후, CD3+ 및 CD1b+ 세포 집단은 제조사의 지침에 따라 시판되는 세포 분리 키트를 사용하여 분리되었습니다. 키트, 시약 및 전체 분리 절차에 관한 자세한 정보는 다음에서 제공됩니다. 재료 목록, 아래에 분리 워크플로의 간략한 개요가 제공됩니다.
5. CD3⁺ T 세포 분리 (양성 선택)
참고: CD3 분리+ 준비된 단일 세포 현탁액으로부터, 먼저 CD3용 방출 형식 면역자기 양성 선택 키트를 사용하여 (다음의... 재료 목록). CD3를 모두 유지하십시오.+ 및 CD3- 이 섹션에서 생성된 분획들. CD3- 단계 6에는 해당 분획이 필요합니다.
- 방출 버퍼를 준비합니다.
- 사용 당일에 40x 방출 버퍼 농축액을 세포 분리 버퍼로 희석하여 1x 방출 버퍼를 준비하고, 4–6 °C 또는 얼음 위에 보관합니다.
참고: 처리할 각 시료당 2.5 mL의 1x 방출 버퍼를 준비하십시오.
- 사용 당일에 40x 방출 버퍼 농축액을 세포 분리 버퍼로 희석하여 1x 방출 버퍼를 준비하고, 4–6 °C 또는 얼음 위에 보관합니다.
- 세포 시료를 준비하고 선택 칵테일로 라벨링합니다.
- 단계 4.6.3의 세포 펠렛을 5 mL 라운드 바텀 폴리스티렌 튜브 내의 세포 분리 버퍼에 1 × 10⁸ cells/mL 농도로 재부유시킵니다.
- 시료 1 mL당 100 µL의 CD3 선택 칵테일을 시료에 추가합니다. 시료를 부드럽게 혼합하고 상온에서 3분 동안 배양합니다.
- 자기 입자로 시료를 라벨링합니다.
- 사용 직전에 자기 입자를 30초 동안 볼텍싱합니다. 시료당 1 mL당 10 µL의 자기 입자를 시료에 추가합니다. 시료를 부드럽게 혼합하고 상온에서 3분 동안 배양합니다.
- 세포 분리 버퍼를 사용하여 시료의 총 부피를 2 mL로 맞추고, 현탁액을 피펫으로 두세 번 부드럽게 위아래로 섞어 혼합합니다.
- 자기 분리를 통해 CD3+ 분획을 분리합니다.
- 캡을 열어둔 시료 튜브를 자기 세포 분리기에 넣고 상온에서 5분 동안 배양합니다.
- 참고: 자기 입자에 결합된 세포가 CD3+ 분획을 구성하며 자기장 내의 튜브 벽에 부착된 상태로 유지되고, 결합되지 않은 상층액이 CD3- 분획을 구성합니다.
- 튜브를 자기 분리기에서 제거하지 않은 상태로, 상층액을 CD3- 분획용으로 지정된 깨끗하고 라벨이 부착된 15 mL 원추형 튜브에 피펫으로 옮깁니다.
- 튜브를 자기 분리기에서 제거하고, 남아있는 세포를 2 mL의 세포 분리 버퍼에 부드럽게 재부유시킵니다.
- 단계 5.4.1부터 5.4.3까지를 총 3회의 5분 자기 분리가 될 때까지 반복하며, 모든 상층액을 동일한 CD3- 분획 튜브에 모읍니다.
- 자기 입자로부터 CD3+ 분획을 방출합니다.
- 남아있는 세포에 1x 방출 버퍼(단계 5.1.2에서 준비) 2.5 mL를 추가하고, 현탁액을 피펫으로 두세 번 부드럽게 위아래로 섞어 혼합합니다. 현탁액을 상온에서 3분 동안 배양합니다.
- 캡을 열어둔 튜브를 자기 세포 분리기에 넣고 상온에서 5분 동안 배양합니다.
- 튜브를 자기 분리기에서 제거하지 않은 상태로, 상층액을 CD3+ 분획용으로 지정된 깨끗하고 라벨이 부착된 15 mL 원추형 튜브에 피펫으로 옮깁니다.
참고: 방출 버퍼는 라벨링된 세포로부터 자기 입자를 분리시킵니다. 그 결과 생성된 상층액이 정제된 CD3+ 분획이며, 잔류 자기 입자는 자기장 내의 튜브 벽에 결합된 상태로 남아 폐기됩니다.
- 세포 계수 및 동결 보존
- 세포 수를 측정하고, 나머지 세포를 동결 혼합액(90% FBS + 10% DMSO)에서 이소프로판올 기반 동결 매체를 사용하여 24시간 동안 동결 보존한 후 액체 질소로 시료를 옮기고, CD3+ 분주액을 -80 °C에서 급속 냉동하여 보관합니다.
6. CD1b⁺ 골수성 세포 분리 (CD3⁻ 분획으로부터)
참고: 단계 5.4.4에서 보관한 CD3- 분획을 anti-CD1b 자기 마이크로비드와 컬럼 형태의 자기 분리기를 사용하여 CD1b+ 골수성 세포를 분리하기 위한 두 번째 면역자기 양성 선택 단계로 처리하였습니다(재료 표 참조).
- 분리 버퍼를 준비하고 세포 수를 측정합니다.
- 20x 농축액을 등장성 세척 용액으로 희석하여 1x BSA 기반 분리 버퍼를 준비하고, 준비된 버퍼는 사용 전까지 차갑게(4–8 °C) 유지합니다.
- 혈구계수기 또는 자동 세포 계수기를 사용하여 CD3 분획의 총 세포 수를 측정합니다.
- anti-CD11b 자기 마이크로비드로 세포를 라벨링합니다.
- 세포 현탁액을 30 × g에서 10분 동안 원심 분리하고 상청액을 완전히 제거합니다.
- 총 세포 1 × 10⁷개당 80 µL의 1x BSA 기반 분리 버퍼로 세포 펠렛을 재현탁합니다.
- 총 세포 1 × 10⁷개당 20 µL의 anti-CD1b 자기 마이크로비드를 첨가하고 잘 섞은 후, 4–8 °C에서 15분 동안 배양합니다.
- 참고: 냉장고 대신 젖은 얼음 위에서 배양할 경우 더 긴 배양 시간이 필요할 수 있습니다. 권장 온도보다 높은 온도에서 배양하거나 권장 시간보다 길게 배양하면 비특이적 세포 라벨링의 위험이 증가할 수 있습니다.
- 세포 1 × 10⁷개당 1 mL의 1x 분리 버퍼를 첨가하여 라벨링된 세포를 세척하고, 30 × g에서 10분 동안 원심 분리한 후 상청액을 완전히 제거합니다.
- 최대 1 × 10⁸개의 총 세포를 50 µL의 분리 버퍼에 재현탁합니다.
- 컬럼 기반 자기 분리를 수행합니다.
- 자기 분리 컬럼을 자기 분리기에 장착하고, 소용량 컬럼의 경우 50 µL, 대용량 컬럼의 경우 1 mL의 1x 분리 버퍼로 헹구어 평형화한 후 세척액을 폐기합니다.
참고: 샘플의 총 세포 수가 적을 때는 소용량 컬럼을 사용하십시오. 비장 유래 또는 혼합 면역 제제와 같이 총 세포 수가 많은 샘플에는 대용량 컬럼을 사용하십시오. - 평형화된 컬럼 아래에 깨끗한 5 mL 라운드 바텀 폴리스티렌 튜브를 놓고, 50 µL(소용량 컬럼) 또는 1 mL(대용량 컬럼)의 라벨링된 세포 현탁액을 컬럼 상단에 도포합니다.
- 샘플이 컬럼 내부로 완전히 들어가면, 소용량 컬럼은 회당 50 µL, 대용량 컬럼은 회당 1 mL의 1x 분리 버퍼를 첨가하여 컬럼을 3회 세척합니다. 각 후속 세척은 컬럼 저장조가 완전히 비워진 후에만 수행합니다.
참고: 단계 6.3.2와 6.3.3에서 수집된 통합 유출액이 라벨링되지 않은 CD11b- 분획이 됩니다. - 자기 분리기에서 컬럼을 제거하여 CD1b+ 분획용으로 지정된 깨끗하고 라벨이 붙은 5 mL 폴리스티렌 튜브 위에 올립니다.
- 1 mL(소용량 컬럼) 또는 2 mL(대용량 컬럼)의 1x 분리 버퍼를 컬럼 상단에 피펫으로 첨가하고, 컬럼과 함께 제공된 플런저를 강하게 눌러 라벨링된 세포를 수집 튜브로 즉시 밀어냅니다.
- 자기 분리 컬럼을 자기 분리기에 장착하고, 소용량 컬럼의 경우 50 µL, 대용량 컬럼의 경우 1 mL의 1x 분리 버퍼로 헹구어 평형화한 후 세척액을 폐기합니다.
- CD1b+ 분획의 정량 및 후속 처리
- 두 분획(CD1b+ 및 CD1b-)의 세포 수를 측정하고, 나머지 세포를 동결 보존 혼합물(90% FBS + 10% DMSO)에 넣어 이소프로판올 기반 동결 매질에서 24시간 동안 동결 보존한 후 액체 질소로 옮겨 CD1b- 분취액을 -80 °C에서 급속 냉동하여 보관합니다.
- CD1b+ 세포를 후속 실험에 사용합니다.
결과
본 프로토콜에 기술된 최적화된 워크플로우를 통해 사후 HIV 감염 인간 뇌 조직으로부터 생존 가능한 고농축 T 세포 및 BrMC/미세아교세포를 재현성 있게 분리할 수 있습니다. 프로토콜의 성공적인 수행 여부는 세포 생존율 평가, 수율 정량화, 주요 단계에서의 면역표현형 특성 분석을 포함한 일련의 품질 확인 지표를 통해 확인합니다. 성공적인 실험의 대표적인 결과는 다음과 같습니다.
조직 해리 및 세포 회수
~에 기술된 바와 같이 그림 1A기계적 해리 및 밀도 구배 원심분리를 거친 후, 적절하게 처리된 샘플은 Percoll 원심분리 후 잔류 수초 파편이 최소화된 시각적으로 투명한 펠렛을 생성해야 합니다. PWH의 신속 부검 뇌 조직을 사용한 대표적인 실험에서, 면역자성 선택 전의 총 세포 회수량은 일반적으로 8.0에서 × 104 1.0로 × 106 뇌 조직 그램당 세포 수이며, 이는 비장 조직의 수율(~5 × 10⁷ 세포/g) (표 1), 이는 이러한 조직 간의 내재적인 생물학적 차이를 반영합니다.
수율 저하나 생존율 감소는 흔히 사후 간격의 연장(>24 h), 부적절한 조직 보관 조건 또는 균질화 과정 중의 과도한 기계적 힘과 관련이 있습니다. 이러한 경우, Percoll 원심분리 후의 수초(myelin) 층이 더 두껍고 확산되어 보이며, CNS 세포가 포함된 중간상(interphase)의 경계가 덜 명확하게 정의됩니다. 수초 층을 불완전하게 제거하면(프로토콜 단계 4.4) 수초 파편에 의한 오염이 발생할 수 있으며, 이는 trypan blue 배제 계수법으로 세포 수를 측정할 때 죽은 세포로 오인될 수 있습니다. 또한 이러한 오염은 후속 항체 표지를 방해하여 자기 분리 효율을 떨어뜨릴 수 있습니다. 수초의 잔류가 의심되는 경우, 면역자기 선택 전 추가적인 Percoll 밀도 구배 원심분리 단계를 수행하는 것이 권장됩니다.
CD3+ T 세포 분획
CD3⁺ T 세포 양성 선택 단계는 두 가지 목적을 가집니다. 첫째는 평행한 CNS 세포 분석을 위해 T 세포 분획을 농축하는 것이며, 둘째는 골수세포 농축 분획에서 침윤된 T 림프구를 제거하여 분리된 골수세포 내의 잠재적인 T 세포 오염을 배제하는 것입니다. 대표적인 실험에서 CD3⁺ 분획은 전체 분리 세포의 약 2–8%(조직 g당 약 1 × 10⁴ cells/g)를 차지했으며(표 1), 이는 HIV 감염 CNS 조직에서 T 세포 침윤 수준이 제한적이고 낮다는 이전 보고들과 일치합니다.
CD1b⁺ BrMC 농축, 특성 분석 및 ex vivo 배양
CD3⁺ 세포 제거 후, CD3⁻ 분획을 자성 마이크로비즈를 사용하여 CD1b⁺ 선택 과정을 거쳤습니다. 이전에 보고된 바와 같이(12), 이 절차를 통해 선택 전 분획의 28.4%였던 CD11b⁺ BrMC의 비율을 95.2%까지 농축할 수 있었습니다. T 세포 마커인 CD3E에 대한 고감도 RT-qPCR(BrMC 10만 개 중 T 세포 1개를 검출 가능) 결과, 분리된 BrMCs/미세아교세포에서 검출 가능한 T 세포가 나타나지 않았으며(12), 이를 통해 높은 순도를 확인하고 T 세포 오염 가능성을 배제하였습니다.
정제된 CD1b⁺ BrMCs를 미세아교세포 배양액에서 최대 2주 동안 배양하여 세포를 회복시키고 부착시켜 세포 성장을 유도하였습니다. 그림 1B에 나타난 바와 같이, 분리된 인간 BrMCs는 분리 후 이르면 5일째에 단일층을 형성하였으며 양극성 형태를 보였습니다. 이제 이 세포들을 ex vivo 측정, 특성 분석 및 후속 기능 분석에 사용할 수 있습니다. NHP 뇌에서 분리한 CD1b⁺ 분획의 대표적인 유세포 분석 기반 순도 분석 결과가 그림 2A에 제시되어 있으며, 세포의 97.3%가 CD1b와 TMEM19를 공동 발현함을 보여줍니다. 인간 및 기타 NHP BrMC 시료의 순도는 이전에 기술된 바 있습니다12. 해당 분석에서 CD1b⁺ 분획은 28.4%에서 95.5%까지 농축되었으며, 인간 샘플에서 분리된 세포 집단의 최대 95.9%가 TMEM19⁺ 세포로 구성되었습니다. 소량의 다른 뇌 상주 골수성 세포 집단이 포함되어 있을 수 있으나, 본 연구에서는 이 세포들을 미세아교세포라고 지칭합니다.
비슷한 절차를 적용하여 비장 CD3⁺ T 세포와 CD11b⁺ 골수성 세포(SMCs)를 분리할 수 있습니다(표 1). 순도 평가 결과, CD3+ 세포는 약 98.9%, CD1b+ 세포는 9.3%인 것으로 나타났습니다(그림 2B,C). 이러한 생존 세포 집단(그림 2E,F)은 배양 상태로 유지될 수 있으며, 이를 통해 분리된 CNS 세포와의 쌍을 이룬 비교 분석이 가능합니다(그림 2D).
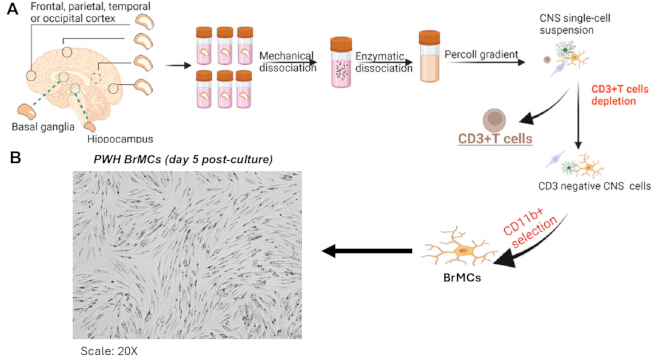
그림 1. BrMC를 정제하기 위한 2단계 순차적 분리 절차. (A) CD1b⁺ BrMC를 정제하기 위한 2단계 CNS 세포 분리 절차의 모식도. (B) 배양 5일 후 BrMC의 형태(10배 확대)는 MG가 디쉬에 성공적으로 부착되었음을 보여준다. 약어: BrMCs = 뇌 골수세포; CNS = 중추 신경계; MG = 미세아교세포. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
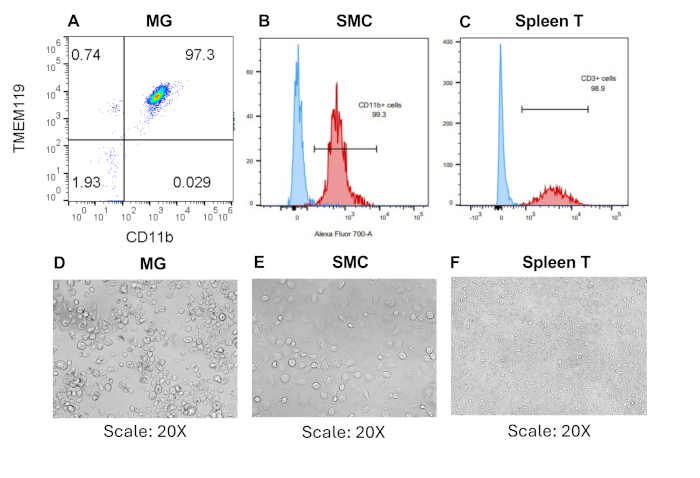
그림 2. 비장 T 세포 및 골수성 세포의 성공적인 분리. (A-C) 명시된 항체를 이용한 CD3⁺ 및 CD1b⁺ 분획의 유세포 분석. (D-F) 대표 이미지(하단)는 뇌와 비장에서 분리 후 7일간 배양한 미세아교세포, CD3⁺ T 세포 및 비장 골수성 세포를 보여줌 (배율: 20x). 약어: SMCs = 비장 골수성 세포; MG = 미세아교세포. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
| 영역 | 조직 무게 (g) | 분리 전 단계 | CD3+ T 세포 | CD1b+ 뇌미세혈관세포/평활근세포 | |||
| HIV 감염인(PWH) | 살아있는 세포 | 조직 g당 세포 수 | 생존 세포 | 조직 g당 세포 수 | 생존 세포 | 조직 g당 세포 수 | |
| 흐름 세포 광도계(Flow Cytometry) | 18.25 | 8.82E+06 | 4.83E+05 | 7.30E+05 | 1.3E+04 | 2.82E+06 | 1.5E+05 |
| 중합효소 연쇄 반응 (Polymerase Chain Reaction) | 4.1 | 3.53E+05 | 8.61E+04 | 1.20E+05 | 2.93E+04 | ||
| TCX | 16 | 4.15E+06 | 2.59E+05 | 2.79E+06 | 1.74E+05 | ||
| 구강암 | 4.24 | 1.75E+06 | 4.13E+05 | 4.50E+05 | 1.06E+05 | ||
| CRB | 11.4 | 4.15E+06 | 3.64E+05 | 2.64E+06 | 2.32E+05 | ||
| H | 1 | 1.23E+06 | 1.23E+06 | 6.0E+04 | 6.0E+04 | ||
| SPL | 5.25 | 2.82E+08 | 5.37E+07 | 2.98E+07 | 5.68E+06 | 9.60E+06 | 1.83E+06 |
표 1: CNS 세포의 2단계 분리 후 각 세포 유형의 수율.
토론
본 프로토콜을 통해 재현 가능한 데이터를 수집하려면 각 단계를 주의 깊게 따르는 것이 중요합니다. 어느 한 부분이라도 누락하거나 서두르면 세포 수율, 생존율 및 순도가 낮아질 수 있습니다. 분석 전 가장 결정적인 요인은 사후 조직 처리 속도입니다42. 인간 뇌 조직은 가능한 한 빨리, 가급적 6–12 h 이내에 처리해야 합니다. 대기 시간이 길어지면 TMEM19 및 P2RY12와 같은 미세아교세포 표면 항원이 분해되고 세포 생존율이 감소합니다20. 이를 방지하기 위해 조직을 신속하게 이송하고 DNase I이 포함된 HBSS 내 4 °C에서 즉시 보관하는 것이 중요합니다.
기계적 해리는 세심하게 조정해야 합니다43. 과도한 균질화는 세포를 파괴하고 DNA를 방출시켜 뭉침 현상을 유발하며, 이는 수율과 컬럼 효율을 모두 저하시킵니다4. 조직이 충분히 균질화되지 않으면 살아있는 세포가 조직 파편 내에 갇혀 있게 됩니다. 해리 배지에 DNase I을 첨가하면 뭉침 현상을 방지하는 데 도움이 됩니다45. 보통 3~4회의 분쇄 사이클을 수행하고 사이사이에 세척 과정을 거치는 것이 효과적입니다. Percoll 밀도 구배 원심분리의 경우, 원심분리 설정을 정확히 따르고 브레이크를 사용하지 않는 것이 중요합니다. 브레이크를 사용하면 층이 섞여 세포 분리가 제대로 이루어지지 않기 때문입니다45. Percoll 현탁액에 HBSS를 추가할 때는 층이 분리된 상태를 유지하도록 HBSS를 튜브 벽면을 따라 천천히 부어야 합니다. 이 과정이 처음인 실험자의 경우, 귀중한 조직을 사용하기 전에 색깔이 있는 용액으로 충분히 연습하는 것이 권장됩니다. CD1b+ 자기 컬럼 분리 과정 동안 세포와 모든 버퍼는 4–8 °C로 유지해야 합니다. 마이크로비드 배양 중에 온도가 이보다 높아지면 비특이적 표지, 항체 캡핑(antibody capping) 및 비드의 세포 내 섭취가 발생할 수 있으며, 이는 순도와 선택 효율을 현저히 떨어뜨립니다3.
이 프로토콜은 다양한 조직 유형이나 실험실 설정에 맞게 조정할 수 있습니다. 심장 관류가 불완전한 경우와 같이 조직에 적혈구가 많이 포함되어 있다면, 적혈구를 제거하고 분리 효율을 높이기 위해 Percoll 밀도 구배 원심분리 전에 ACK 용해 단계를 추가할 수 있습니다46. ACK 배양은 백혈구의 생존율을 떨어뜨릴 수 있으므로 장시간 수행해서는 안 됩니다47. 수율이 계속 낮게 유지되는 경우, 스트레이너에 남은 잔해를 해부 현미경으로 확인해야 합니다. 생존 가능한 조직이 많은 경우, 분쇄 횟수를 늘리거나 조직 조각을 스트레이너당 0.5 g 미만으로 더 작게 자를 수 있습니다. Percoll 구배에서 회수할 때는 중간층을 잃을 위험을 감수하기보다 펠렛 위에 소량의 Percoll을 남겨두는 것이 이상적입니다. MACS 분리 중에 컬럼이 막힌다면, 이는 대개 너무 많은 세포가 로딩되었거나 현탁액에 잔해가 남아 있음을 나타냅니다.
본 프로토콜은 HIV 감염 인간 뇌 조직을 위해 설계되었으나, 결과 해석 시 고려해야 할 몇 가지 중요한 제한 사항이 있습니다. 기계적 해리는 항상 세포 스트레스를 유발하며, 이는 일시적으로 미세아교세포의 유전자 발현을 변화시키고 염증 경로를 활성화할 수 있습니다3,48. 또 다른 제한 사항은 주요 선택 마커로 CD1b를 사용하는 것입니다. CD1b는 미세아교세포뿐만 아니라 많은 CNS 골수성 세포에서 발견되며, 신경 염증으로 인해 HIV 감염 조직에서 더 흔하게 나타나는 침윤 단핵구 및 대식세포에도 존재합니다49. 상주 미세아교세포와 침윤 세포를 구별하기 위해서는 TMEM19, P2RY12 및 SALL1과 같은 미세아교세포 특이적 마커를 이용한 추가 분석이 필요합니다20,50. 세 번째 제한 사항은 조직의 가용성과 공여자 간의 차이입니다. 사후 인간 뇌 샘플은 대체가 불가능하므로, 동일 공전자의 기술적 반복 시료를 사용하여 프로토콜을 최적화하는 것이 매우 어렵습니다. 또한 조직마다 수득률, 생존율 및 미세아교세포 활성화 정도에 차이가 있으며, 특히 신경인지 상태, ART 이력 및 기타 건강 문제가 매우 다양한 PWH의 경우 더욱 그러합니다. 이러한 차이점들은 실험 시 세심하게 기록되고 제어되어야 합니다.
다른 방법들과 비교했을 때, CD1b, CD45, TMEM19 또는 P2RY12에 대한 항체를 사용하는 FACS 기반 분리는 높은 순도를 달성하지만 고가의 장비가 필요하고 시간이 많이 소요되며 세포 스트레스를 증가시킵니다3,51. 또한 자기 비드 기반 방법보다 세포 회수율이 낮습니다52. 면역 패닝(Immunopanning)은 특이성이 매우 높지만 역시 시간이 많이 소요되고 전문적인 기질 준비가 필요하며, 여러 부위의 조직을 처리하는 경우 확장성이 떨어집니다53. 상용 효소 해리 키트는 단일 세포 수율을 높이고 기계적 스트레스를 줄일 수 있지만, 가격이 더 비싸고 프로테아제 활성으로 인해 세포 표면 마커가 변형될 수 있으며, 이로 인해 후속 면역자기 또는 유세포 분석 단계의 표지 효율이 감소할 수 있습니다54,5. 따라서 본 프로토콜은 표면 항원을 보존하기 위해 주요 해리 단계 동안 완만한 효소 소화를 포함하며, 이는 CD1b, CD68 및 TMEM19와 같은 민감한 마커에 특히 중요합니다. 여기서 사용된 CD3+ T 세포 제거 후 CD11b+ 양성 선택으로 이어지는 단계적 면역자기 제거-농축 접근법은 단일 단계 프로토콜에 비해 실제 워크플로우 측면에서 이점을 제공합니다. 이는 myeloid 분획의 순도를 최대화하는 동시에, 병행 면역학적 연구를 위한 T 세포 회수를 가능하게 합니다. 이러한 이중 회수는 CNS 내의 T 세포와 myeloid 세포 모두를 연구하는 것이 중요한 HIV 저장소 연구에서 특히 유용합니다.
분리된 CD1b+ 세포는 다양한 연구 응용 분야에 활용될 수 있다. 바이러스 저장소를 연구하는 경우, 이 분획은 HIV p24 항원 측정, droplet digital PCR을 이용한 HIV DNA/RNA 복제 수 측정 및 ex vivo 바이러스 증식 분석에 적합하다56,57. 이러한 분석들은 모두 생존 가능한 농축된 골수성 세포를 필요로 하며, ART 치료에도 불구하고 지속되는 중추신경계(CNS) 저장소를 이해하는 데 중요하다58. 전사체 연구의 경우, 본 프로토콜로 준비된 세포는 벌크 및 단일 세포 RNA 시퀀싱 모두에 적합하다59,60. 이를 통해 연구자는 단일 세포 수준에서 미세아교세포 활성화, 질병 관련 미세아교세포 시그니처 및 HIV 감염에 대한 미세아교세포 반응을 연구할 수 있다61. 다른 선택 키트를 사용하거나 구배 부피를 조정하는 등의 약간의 변경을 통해, 이 워크플로우는 사후 조직의 미세아교세포 분석이 필요한 알츠하이머병, 다발성 경화증, 롱 코비드19 및 외상성 뇌 손상을 포함한 다른 신경계 질환에도 적용될 수 있다49,62.
요약하자면, 본 프로토콜은 인간 및 동물 뇌 조직에서 골수성 세포/미세아교세포를 분리하기 위한 신뢰할 수 있고 확장 가능하며 유연하고 재현 가능한 방법을 제공합니다. 이 방법은 다양한 하위 분석 플랫폼과 호환되며 단일 조직 샘플에서 여러 면역 세포 유형을 회수할 수 있으므로, 신경면역학, 바이러스학 및 신경병리학 연구자들에게 유용한 도구가 될 것입니다.
공개 사항
저자들은 선언할 이해상충이 없습니다.
감사의 글
인체 조직을 수집해 주신 UC San Diego의 “Last Gift” 코호트 소속 Sara Gianella 박사님께 감사드립니다. 또한 붉은털원숭이 조직을 제공해 주신 Emory National Primate Research Center의 Ann Chahroudi 박사님, Oregon Health & Science University의 Afam Okoye 박사님, 그리고 University of California, Davis의 Satya Dandekar 박사님께 감사드립니다. 본 연구는 R21MH128034, R01MH136852, R21AI16709, R01MH13946 및 R01AI186609의 지원을 받았습니다. 연구비 지원 기관은 연구 설계, 데이터 수집 및 분석, 출판 결정 또는 원고 작성에 관여하지 않았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 10 mL 주사기 | VWR | Cat# 76837-040 | |
| 25 mL 세롤로지컬 피펫 | VWR | 카탈로그 번호 76201-710 | |
| ACK 용해 버퍼 | Thermo Fisher Scientific | 카탈로그 번호 A1049201 | |
| 항생제-항진균제 (10x) | Thermo Fisher Scientific | 카탈로그 번호 15240112 | |
| autoMACS 세척액 | Miltenyi Biotec | 카탈로그 번호 130-091-22 | |
| 생물안전작업대 (BSL-2) | |||
| CD1b MicroBeads, 인간 및 마우스용 – 동결건조된 | Miltenyi Biotec | Cat# 130-097-142 | |
| CD1b 마이크로비드, 비인류 영장류 | Miltenyi Biotec | Cat# 130-091-10 | |
| CD3 MicroBead 키트, 비인간 영장류 | Miltenyi Biotec | Cat# 130-092-012 | |
| 세포 계수 슬라이드 | Thermo Fisher Countess | 카탈로그 번호 C10312 | 대체품 VWR, Cat# 1028-050 |
| Clorox 살균 표백제 | Essendant | 카탈로그 번호 5037150 | |
| Corning 비처리 배양 접시 | Thermo Fisher Scientific | 카탈로그 번호 08-72-32 | |
| 게잡이원숭이 M-CSF | Kingfisher Biotech | 카탈로그 번호 RP1612Y-10 | |
| Luer-Lok 팁이 장착된 일회용 주사기 | BD | 카탈로그 번호 14-829-45 | |
| DMEM/F-12 | Thermo Fisher Scientific | 카탈로그 번호 132082 | |
| DNase I, 재조합, RNase-free | Roche | 카탈로그 번호 471672801 | |
| EasySep 완충액 | STEMCELL Technologies | 카탈로그 번호 2014 | |
| EasySep FITC Positive Selection Kit II | STEMCELL Technologies | 카탈로그 번호 17682 | |
| EasySep Release 인체 CD3 양성 선택 키트 | STEMCELL Technologies | 카탈로그 번호 1751 | |
| Falcon 세포 스트레이너, 70 µm 그리고 100 µm | Corning | Cat# 2108-950 | |
| 소태아혈청 (FBS) | VWR | Cat#97068-091 | |
| 미세 곡선 핀셋 | VWR | 카탈로그 번호 82027-410 | |
| 젠타마이신 | Thermo Fisher Scientific | 카탈로그 번호 1575060 | |
| Gibco RPMI 1640 | Thermo Fisher Scientific | 카탈로그 번호 1875-19 | |
| HBSS, 1x (칼슘, 마그네슘 및 페놀 레드 미포함) | Thermo Fisher Scientific | 카탈로그 번호 14175103 | |
| HBSS, 10배 농도, 칼슘, 마그네슘, 페놀 레드 함유 | Thermo Fisher Scientific | 카탈로그 번호 1406040 | |
| 헤모사이토미터 또는 자동 세포 계수기 | |||
| 인간 M-CSF | PeproTech | 카탈로그 번호 30-25 | 대체 제품 Cat# 78057 |
| 자기 분리를 위한 등장성 세척/희석 용액 | Miltenyi Biotec | 130-091-222 | |
| L-글루타민 (20 mM) | Thermo Fisher Scientific | 카탈로그 번호 25030-061 | |
| MACS BSA 스탁 용액(20x) | Miltenyi Biotec | Cat# 130-091-376 | |
| 자기 분리 시스템 | EasySep 또는 MACS | ||
| MS 컬럼 | Miltenyi Biotec | 카탈로그 번호 130-042-201 | |
| 페니실린-스트렙토마이신 | Thermo Fisher Scientific | 카탈로그 번호 1514012 | |
| Percoll | Cytiva/GE Healthcare, | 카탈로그 번호 GE17-0891-01 | |
| 보호 가운 | Kappler ProVent | 카탈로그 번호 17-98-497B | |
| 냉장 원심분리기 | |||
| 피루브산 나트륨 (10 mM) | Thermo Fisher Scientific | 카탈로그 번호 136070 | |
| 검체 핀셋 | VWR | 카탈로그 번호 82027-40 | 대체 카탈로그 번호 82027-438 |
| 멸균 일회용 메스 | Cardinal Health | 카탈로그 번호 1213-237 | VWR 대체 제품 Cat# 89140-80 |
| TrypLE Express Enzyme (1x), 페놀 레드 | ThermoFisher | 카탈로그 번호 1250510 |
참고문헌
- Prinz M, Masuda T, Wheeler MA, Quintana FJ. Microglia and central nervous system-associated macrophages: from origin to disease modulation. Annu Rev Immunol. 2021;39:251-77.
- Labzin LI, Heneka MT, Latz E. Innate immunity and neurodegeneration. Annu Rev Med. 2018;69:437-49.
- Thompson KK, Tsirka SE. The diverse roles of microglia in the neurodegenerative aspects of central nervous system (CNS) autoimmunity. Int J Mol Sci. 2017;18(3):504.
- Cornell J, Salinas S, Huang HY, Zhou M. Microglia regulation of synaptic plasticity and learning and memory. Neural Regen Res. 2022;17(4):705-16.
- Konishi H, Kiyama H, Ueno M. Dual functions of microglia in the formation and refinement of neural circuits during development. Int J Dev Neurosci. 2019;77:18-25.
- Fujita Y, Yamashita T. Neuroprotective function of microglia in the developing brain. Neuronal Signal. 2021;5(1):NS20200024.
- Gao C, Jiang J, Tan Y, Chen S. Microglia in neurodegenerative diseases: mechanism and potential therapeutic targets. Signal Transduct Target Ther. 2023;8(1):359.
- Leng F, Edison P. Neuroinflammation and microglial activation in Alzheimer disease: where do we go from here? Nat Rev Neurol. 2021;17(3):157-72.
- Hickman S, et al. Microglia in neurodegeneration. Nat Neurosci. 2018;21(10):1359-69.
- Donoso M, et al. Identification, quantification, and characterization of HIV-1 reservoirs in the human brain. Cells. 2022;11(15):2379.
- Asahchop EL, et al. Reduced antiretroviral drug efficacy and concentration in HIV-infected microglia contributes to viral persistence in brain. Retrovirology. 2017;14(1):47.
- Tang Y, et al. Brain microglia serve as a persistent HIV reservoir despite durable antiretroviral therapy. J Clin Invest. 2023;133(12):e167417.
- Thompson LJP, et al. HIV-associated neurocognitive disorder: a look into cellular and molecular pathology. Int J Mol Sci. 2024;25(9):4697.
- Olivier IS, Cacabelos R, Naidoo V. Risk factors and pathogenesis of HIV-associated neurocognitive disorder: the role of host genetics. Int J Mol Sci. 2018;19(11):3594.
- Eggers C, et al. HIV-1-associated neurocognitive disorder: epidemiology, pathogenesis, diagnosis, and treatment. J Neurol. 2017;264(8):1715-27.
- Prates GS, et al. HIV expression persists in the cerebrospinal fluid of HIV-associated neurocognitive disorders despite effective ART. Emerg Microbes Infect. 2026;15(1):2616945.
- Ash MK, Al-Harthi L, Schneider JR. HIV in the brain: identifying viral reservoirs and addressing the challenges of an HIV cure. Vaccines (Basel). 2021;9(8):867.
- Andersen ND, Srinivas S, Piñero G, Monje PV. A rapid and versatile method for the isolation, purification and cryogenic storage of Schwann cells from adult rodent nerves. Sci Rep. 2016;6(1):31781.
- Flores-Obando RE, Freidin MM, Abrams CK. Rapid and specific immunomagnetic isolation of mouse primary oligodendrocytes. J Vis Exp. 2018;(135):e57543.
- Van Wageningen TA, et al. Regulation of microglial TMEM119 and P2RY12 immunoreactivity in multiple sclerosis white and grey matter lesions is dependent on their inflammatory environment. Acta Neuropathol Commun. 2019;7(1):206.
- Honarpisheh P, et al. Potential caveats of putative microglia-specific markers for assessment of age-related cerebrovascular neuroinflammation. J Neuroinflammation. 2020;17(1):366.
- Rai MA, et al. Comparative analysis of human microglial models for studies of HIV replication and pathogenesis. Retrovirology. 2020;17(1):35.
- Gumbs SB, et al. Human microglial models to study HIV infection and neuropathogenesis: a literature overview and comparative analyses. J Neurovirol. 2022;28(1):64-91.
- Ma Z, Zhou Y, Collins DJ, Ai Y. Fluorescence activated cell sorting via a focused traveling surface acoustic beam. Lab Chip. 2017;17(18):3176-85.
- Sutermaster BA, Darling EM. Considerations for high-yield, high-throughput cell enrichment: fluorescence versus magnetic sorting. Sci Rep. 2019;9(1):227.
- Simon M, et al. Loss of perivascular aquaporin-4 localization impairs glymphatic exchange and promotes amyloid β plaque formation in mice. Alzheimers Res Ther. 2022;14(1):59.
- Olah M, et al. A transcriptomic atlas of aged human microglia. Nat Commun. 2018;9(1):539.
- Nühn MM, et al. Shock and kill within the CNS: a promising HIV eradication approach? J Leukoc Biol. 2022;112(5):1297-315.
- Donlin LT, et al. Methods for high-dimensional analysis of cells dissociated from cryopreserved synovial tissue. Arthritis Res Ther. 2018;20(1):139.
- Montanari M, et al. Automated-mechanical procedure compared to gentle enzymatic tissue dissociation in cell function studies. Biomolecules. 2022;12(5):701.
- Galatro TF, et al. Isolation of microglia and immune infiltrates from mouse and primate central nervous system. In: Clausen BE, Laman JD, editors. Inflammation: Methods and Protocols. New York: Humana Press; 2017. p. 333-42.
- Grabert K, McColl BW. Isolation and phenotyping of adult mouse microglial cells. In: Rousselet G, editor. Macrophages: Methods and Protocols. New York: Humana Press; 2018. p. 77-86.
- Ocañas SR, et al. Minimizing the ex vivo confounds of cell-isolation techniques on transcriptomic and translatomic profiles of purified microglia. eNeuro. 2022;9(2):ENEURO.0348-21.2022.
- Subra C, Trautmann L. Role of T lymphocytes in HIV neuropathogenesis. Curr HIV/AIDS Rep. 2019;16(3):236-43.
- Farhadian SF, et al. HIV viral transcription and immune perturbations in the CNS of people with HIV despite ART. JCI Insight. 2022;7(13):e160267.
- Marsh SE, et al. Dissection of artifactual and confounding glial signatures by single-cell sequencing of mouse and human brain. Nat Neurosci. 2022;25(3):306-16.
- Jolly S, et al. Single-cell quantification of mRNA expression in the human brain. Sci Rep. 2019;9(1):12353.
- Schroeter CB, et al. One brain-all cells: a comprehensive protocol to isolate all principal CNS-resident cell types from brain and spinal cord of adult healthy and EAE mice. Cells. 2021;10(3):651.
- Swartzlander DB, et al. Concurrent cell type-specific isolation and profiling of mouse brains in inflammation and Alzheimer's disease. JCI Insight. 2018;3(13):e121109.
- Zhao J, et al. Single-cell RNA sequencing reveals the heterogeneity of liver-resident immune cells in human. Cell Discov. 2020;6(1):22.
- Li X, et al. Histone decrotonylation plays a distinct role in HIV latency. Sci Adv. 2026;12(15):eaec0149.
- Heng Y, et al. The effects of postmortem delay on mouse and human microglia gene expression. Glia. 2021;69(4):1053-60.
- Trujillo M, et al. Combined mechanical and enzymatic dissociation of mouse brain hippocampal tissue. J Vis Exp. 2021;(176):e63007.
- Herron S, Delpech JC, Madore C, Ikezu T. Using mechanical homogenization to isolate microglia from mouse brain tissue to preserve transcriptomic integrity. STAR Protoc. 2022;3(4):101670.
- STEMCELL Technologies. How to prepare a single cell suspension from a frozen cell sample. protocols.io. 2019. doi:10.17504/protocols.io.4umgwu6.
- Volovitz I, et al. A non-aggressive, highly efficient, enzymatic method for dissociation of human brain tumors and brain tissues to viable single cells. BMC Neurosci. 2016;17(1):30.
- Manglani M, Gossa S, McGavern DB. Leukocyte isolation from brain, spinal cord, and meninges for flow cytometric analysis. Curr Protoc Immunol. 2018;121(1):e44.
- Bakina O, et al. In situ Patch-seq analysis of microglia reveals a lack of stress genes as found in FACS-isolated microglia. PLoS One. 2024;19(7):e0302376.
- Narasipura SD, et al. Inflammatory responses revealed through HIV infection of microglia-containing cerebral organoids. J Neuroinflammation. 2025;22(1):36.
- Haage V, et al. Comprehensive gene expression meta-analysis identifies signature genes that distinguish microglia from peripheral monocytes/macrophages in health and glioma. Acta Neuropathol Commun. 2019;7(1):20.
- Pan J, Wan J. Methodological comparison of FACS and MACS isolation of enriched microglia and astrocytes from mouse brain. J Immunol Methods. 2020;486:112834.
- Bordt EA, et al. Isolation of microglia from mouse or human tissue. STAR Protoc. 2020;1(1):100035.
- Bohlen CJ, Bennett FC, Bennett ML. Isolation and culture of microglia. Curr Protoc Immunol. 2019;125(1):e70.
- MacMullan MA, et al. An enzyme-free, cold-process acoustic method for gentle and effective tissue dissociation. bioRxiv. 2023:2023.10.03.560704. doi:10.1101/2023.10.03.560704.
- Mattei D, et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. Int J Mol Sci. 2020;21(21):7944.
- Kuzmichev YV, et al. Application of ultrasensitive digital ELISA for p24 enables improved evaluation of HIV-1 reservoir diversity and growth kinetics in viral outgrowth assays. Sci Rep. 2023;13(1):10958.
- Ferreira EA, Clements JE, Veenhuis RT. HIV-1 myeloid reservoirs: contributors to viral persistence and pathogenesis. Curr HIV/AIDS Rep. 2024;21(2):62-74.
- León-Rivera R, et al. Central nervous system viral seeding by mature monocytes and potential therapies to reduce CNS viral reservoirs in the cART era. mBio. 2021;12(2):e03633-20.
- Alyaqoobi Z, He Y, Wang X. Single-cell and bulk transcriptome analysis reveals the impact of inflammatory microglia on prognosis and immunotherapy response in primary glioblastoma. Clin Transl Oncol. 2026;28(6):2314-34.
- Farhadian SF, et al. Single-cell RNA sequencing reveals microglia-like cells in cerebrospinal fluid during virologically suppressed HIV. JCI Insight. 2018;3(18):e121718.
- Spurgat MS, Tang SJ. Single-cell RNA-sequencing: astrocyte and microglial heterogeneity in health and disease. Cells. 2022;11(13):2021.
- Marsh SE, et al. Multi-modal analysis and modeling of human neurodegenerative disease to reveal disease mechanisms and biomarkers. Alzheimers Dement. 2022;18:e061905.