콩과 식물과 토양의 공생 관계 박테리아는 뿌리혹을 형성하며, 이 뿌리혹 내부에서 박테리아는 식물이 이용할 수 있도록 공중 질소를 고정합니다. MicroCT는 불투명하고 단단한 조직인 뿌리혹의 조직 구성, 박테로이드 구역 및 관다발의 비파괴적 3D 이미징을 가능하게 하여, 뿌리혹의 절편 제작이 필요한 전통적인 이미징 기술보다 우수한 이점을 제공합니다.
방법 논문
Medicago sativa 뿌리 nodules의 3D MicroCT 영상화
* These authors contributed equally
이 논문에서
요약
초록
콩과 식물인 Medicago sativa와 토양 박테리아인 Sinorhizobium meliloti 사이의 공생 관계는 질소 고정 뿌리혹의 형성으로 이어집니다. 파라핀 절편 제작, 진동 절편 제작 및 동결 절편 제작을 포함한 전통적인 파괴적 방법들이 박테리아가 뿌리혹을 점유하는 방식을 시각화하는 데 적용되어 왔으나, 이로 인해 신뢰할 수 있는 3차원 정보를 얻는 것이 매우 어려웠습니다. 이러한 접근 방식은 종종 형광 표지 또는 염색과 결합되는데, 이는 식물 성장과 뿌리혹 형성에 영향을 미치는 추가적인 스트레스를 유발할 수 있습니다. MicroCT는 식물의 조직학적 특징을 비파괴적으로 3차원(3D) 시각화할 수 있어, 시료 준비 과정 중의 파괴적 인위물을 방지하고 고충실도 3D 재구성을 보장함으로써 식물 생물학을 위한 비교적 빠르고 쉽고 강력한 도구로 부상했습니다. MicroCT가 콩과 식물의 뿌리혹에 적용되어 왔으나, 식물 수확 및 시료 준비부터 스캐닝과 소프트웨어 시각화까지의 과정을 기록한 상세하고 확립된 프로토콜은 부족한 실정입니다.
본 연구에서는 Medicago sativa를 모델로 사용하여 단계별 microCT 워크플로우를 제시합니다. 프로토콜에는 뿌리에서 뿌리혹 절제, 고정, 대조도 강화, 마운팅, 스캐닝 및 3차원 재구성이 포함됩니다. 이미지 품질, 조직 보존 및 대조도와 같은 요소에 영향을 미치는 핵심 파라미터를 강조하여 설명합니다. 이 접근 방식을 사용하면 뿌리혹을 물리적으로 절단하지 않고도 전체 조직 구성, 박테로이드 감염 세포 및 관다발을 3차원으로 시각화할 수 있습니다. 여기에 설명된 파이프라인은 천연 뿌리혹의 비파괴적 고해상도 이미징을 위한 재현 가능한 방법을 제공하며, 다른 콩과 식물 종에도 적용 가능하여 연구자들이 뿌리혹 구조와 내부의 박테리아 조직을 3D로 연구하는 데 실용적인 도구가 될 것입니다.
서론
Medicago sativa(알팔파)와 같은 Leguminosae(또는 Fabaceae) 과의 식물은 Sinorhizobium meliloti와 같은 Rhizobiaceae 과의 질소 고정 토양 박테리아와 공생 관계를 형성하며, 그 결과 뿌리혹이 발달합니다. 식물은 질소가 제한된 조건에서 박테리아를 유인하기 위해 플라보노이드를 방출합니다. 이는 공생 박테리아의 Nod 인자 발현을 활성화하여 뿌리털의 굴곡과 이후 박테리아를 둘러싸는 감염실의 형성을 유발합니다1,2,3,4. 감염실 벽의 약해진 부분에서 감염사와 형성되어, 박테리아를 뿌리털 세포를 통해 운반하는 연장 튜브를 만듭니다5. 감염사가 내부 피층에 도달하면, 일련의 세포 분열이 시작되어 뿌리혹이라고 불리는 특수한 뿌리 기관의 형성이 시작됩니다1,2,5. 이후 박테리아는 뿌리혹 세포를 감염시키고 세포 내에서 심비오좀 막으로 둘러싸인 채 세포 내적으로 서식합니다. 여기서 식물은 박테리아에 탄소와 기타 영양분을 제공합니다. 그 대가로 박테리아는 사용할 수 없는 대기 중의 질소를 식물이 이용 가능한 형태인 암모니아로 전환하여 식물을 위해 질소를 고정합니다2,3,4. 따라서 뿌리혹은 질소 고정을 위한 필수적인 생물학적 공장 역할을 하여, 합성 질소 비료가 없는 환경에서도 식물의 성장을 유지시킵니다. 이러한 생물학적 질소 고정 과정은 콩과 식물이 합성 비료 없이도 자랄 수 있게 해주므로 경제적 및 환경적으로 중요합니다6. 더욱이, 일부 콩과 식물은 박테리아가 분화되어 질소를 더 효율적으로 고정하는 뚜렷한 구역을 형성하는 부정형 뿌리혹을 형성합니다4. 따라서 생물학적 질소 고정을 상세히 연구하기 위해서는 뿌리혹의 외부와 내부(박테리아가 뿌리혹 내의 식물 세포를 물리적으로 점유하는 곳)를 모두 시각화하는 것이 중요합니다. 그러나 뿌리혹은 붉은색의 식물 단백질인 레그헤모글로빈으로 채워진 불투명한 기관이므로, 전통적인 이미징 방법으로는 분석이 어렵습니다.
과거에 사용된 이미징 기술들은 파괴적인 방식이었습니다. 조직 절편을 제작하기 위해 파라핀 절편법, 바이브라톰 절편법 및 동결 절편법이 사용되어 왔으나, 이러한 방법들은 조직의 천연 상태를 훼손하고 3차원(3D) 재구성을 어렵게 만드는 아티팩트를 유발합니다6,7,8,9,10. 파라핀 임베딩된 뿌리혹 조직 절편을 이용한 재구성이 성공적으로 수행된 바 있으나, 이는 탈수된 시료를 사용하며 200개 이상의 개별 절편이 필요합니다8. 개별 절편에서는 관다발계의 일부를 확인할 수 있지만, 관다발이 어떻게 갈라져 뿌리혹을 감싸는지까지는 알 수 없습니다. 공초점 현미경 관찰 전 조직 절편에 다양한 형광 표지 및 염색 기술이 적용되었으나, 다음과 같은 문제점이 발생하는 경향이 있습니다8,9,10: (i) 식물 뿌리혹 조직은 자가형광이 매우 강하며, (ii) 많은 방법이 이미징 전 조직 투명화 과정을 필요로 하고, (iii) 형광 염색이 뿌리혹 조직을 손상시킬 수 있으며, (iv) 녹색 형광 단백질(GFP)로 표지된 박테리아를 식물에 접종하면 식물의 성장과 뿌리혹 형성 모두에 영향을 주는 스트레스가 유발되고, (v) 천연 뿌리혹은 크기가 너무 커서 시료 전체를 쉽게 절편화하기 어렵습니다5,11.
의료 현장에서 흔히 활용되는 컴퓨터 단층촬영(CT) 영상 기술은 진단 및 치료 목적으로 모두 사용됩니다12,13. 이의 소형 버전인 X선 마이크로 단층촬영(MicroCT)은 작은 피사체의 비파괴적 3차원(3D) 시각화를 가능하게 하는 영상 기술입니다. CT는 거대한 피사체 주위로 장비를 회전시키는 반면, microCT는 작은 피사체를 X선원 가까이에서 회전시킵니다. 이를 통해 훨씬 더 높은 해상도를 얻을 수 있습니다. MicroCT는 동물 발생 생물학에 적용되어 왔으나, 식물 생물학에서도 유망한 도구로 부상했습니다6,10,14,15,16,17,18,19. 특히 microCT와 방사광 기반 X선 단층촬영은 식물 생리학에서 물관 색전증을 조사하고, 영상 기반 추정치를 기존의 수압 흐름 측정값과 상호 검증하는 데 광범위하게 사용되어 왔습니다20,21,22. 물리적 절단 없이 온전한 기관을 스케일 단위로 영상화하기 때문에, microCT는 뿌리혹 전체의 공간적 관계를 보존합니다. 적절한 조영제를 사용하면 관다발 및 감염 구역과 같은 조직 수준의 구조를 분해할 수 있으며, 기존의 광학적 접근 방식의 한계가 되는 빛 산란 영역 너머까지 투과할 수 있어 불투명하고 자가 형광을 띠는 뿌리혹에 특히 유용합니다. 또한 샘플을 다시 스캔하거나, 광학 또는 전자 현미경 샘플 처리 후의 하위 상관 분석 워크플로우에 통합하거나, 향후 분석을 위해 보관할 수 있습니다. 일부 연구에서 콩의 뿌리혹을 조사하기 위해 microCT와 방사광 기반 X선 CT를 사용했지만, 뿌리혹 수확 및 염색부터 영상화 및 재구성까지의 전 과정을 다룬 상세한 기록은 없으며, 특히 알팔파와 같은 작은 뿌리혹의 경우는 더욱 그렇습니다6,14. X선 대조도는 조직 밀도에 따라 달라지는데, 대부분의 식물 조직은 밀도가 낮아 X선 감쇠가 제대로 이루어지지 않습니다. 조영제가 없으면 일반적인 벤치탑 microCT에서는 뿌리혹을 배경과 구별할 수 없습니다. 본 연구에서는 단백질 및 기타 생체 분자에 결합하여 식물 조직에서 높은 대조도를 나타내는 것으로 알려진 비특이적 염색제인 인텅스텐산(PTA)을 사용하였습니다14.
본 연구는 X선 현미경(XRM) 및 방사광 가속기 기반 플랫폼6,14보다 접근성이 높은 일반 실험실 기반 시스템을 사용하여, 알팔파를 모델로 한 콩과 식물 뿌리혹의 microCT 이미징을 위한 심층적인 단계별 프로토콜을 제공합니다. 이 워크플로우는 뿌리에서의 뿌리혹 수확, 고정, 염색, 대비 증강, 마운팅, 스캐닝, 3D 재구성 및 분석을 위한 구체적인 지침을 특징으로 합니다(그림 1). 이러한 단계들 사이에서, 안정적인 마운팅, 수분 유지 및 우수한 대비를 보장하기 위한 세부 파라미터를 제공합니다. 궁극적으로, 이 microCT 파이프라인은 전체적인 조직 구성, 식물 세포 내 박테리아 점유, 뚜렷한 질소 고정 구역 및 천연 상태의 알팔파 뿌리혹 전체의 관다발을 포함한 3D 조직학적 특징을 비파괴적이고 고해상도로 시각화할 수 있게 하는 재현 가능한 방법입니다. 우리는 이 프로토콜이 다른 콩과 식물 종에도 적용 가능하여, 연구자들에게 이 매우 중요한 뿌리 기관의 3D 구조와 조직을 시각화하는 실용적이고 온전한 방법을 제공할 것이라고 믿습니다.
프로토콜
1. 결절 채취 및 고정
- 메스를 사용하여 (참조 재료 목록) 관심 있는 뿌리혹의 양옆으로 뿌리를 일직선으로 절단하여, 뿌리혹이 뿌리에 붙어 있도록 합니다 (그림 2).
- 8~12개의 결절을 70% (v/v) 에탄올 10 mL가 들어 있는 20 mL 유리 바이알로 옮깁니다(참조 재료 목록).
2. 결절 염색
- 200 mL 광구 사각병에 70% 에탄올 200 mL와 PTA 분말 2 g을 넣어 1% (w/v) PTA 용액을 준비한다 (재료 표 참조). 완전히 녹을 때까지 흔들어 섞은 후 4 °C에서 보관한다. 염색액은 사용 1일 전에 제조한다.
- 고정 과정에 사용한 70% 에탄올을 제거하고 1% PTA 용액 10 mL로 교체한다 (재료 표 참조).
- 유리 바이알을 실온의 오비탈 셰이커에 올리고 80 rpm으로 4주 동안 반응시킨다. 염색액은 매주 10 mL의 신선한 1% PTA 용액으로 교체한다 (재료 표, 그림 2 참조).
3. 결절 마운팅
- 100 mL 개방형 유리 비커에 파라핀을 넣고 핫플레이트를 사용하여 100 °C에서 녹입니다(재료 표 참조).
- 시료 포매를 위해 200 µL 피펫 팁을 선택합니다. 팁의 좁은 끝부분을 녹은 파라핀에 얕게(1–2 mm) 담가 밀봉합니다(재료 표 참조).
- 35 mm 마이크로웰 디쉬에서 2 mL의 70% ethanol로 시료를 5분 동안 헹굽니다(재료 표 참조).
- 25 mL 삼각 플라스크에 저융점 아가로스 0.2 g을 넣고 탈이온수 20 mL와 섞어 1% (w/v) 저융점 아가로스를 제조합니다. 핫플레이트에서 50 °C로 가열하고 완전히 녹을 때까지 몇 번 흔들어 줍니다. 그런 다음 플라스크를 40 °C로 설정된 항온수조에 넣습니다(재료 표 참조).
- 거꾸로 세운 밀봉된 피펫 팁에 1% 저융점 아가로스를 약 25 µL 넣고 1분 동안 식을 때까지 기다립니다(재료 표 참조).
- 미세 핀셋을 사용하여 뿌리혹 하나를 집어 피펫 팁으로 옮겨 1% 저융점 아가로스 내에 고정시킵니다. 젤 로딩 팁을 사용하여 뿌리혹이 손상되지 않도록 주의하면서 뿌리혹을 피펫 팁의 파라핀 밀봉 면에 최대한 가깝게 이동시킵니다(재료 표 참조).
- 뿌리혹이 들어있는 팁을 랙에 꽂아 저융점 아가로스가 응고되도록 합니다. 응고되면 수분을 유지하기 위해 피펫 팁의 열린 끝부분을 Parafilm으로 밀봉합니다(재료 표 참조). 시료를 4 °C 냉장고에 보관하고 일주일 이내에 포매된 시료를 스캔합니다.
4. MicroCT 영상 촬영
- X선원과 최대한 가깝게 배치하여 시료 중심을 정확하게 맞출 수 있도록 적절한 크기의 시료 홀더에 피펫 팁을 거꾸로 장착합니다 (재료 표 참조).
- CT 소프트웨어를 엽니다. 시료가 장착된 홀더를 microCT의 회전 스테이지에 단단히 조여 고정합니다 (재료 표, 그림 3, 보충 그림 1 참조).
- 카메라 뷰와 X선원을 켠 다음, 연속 X선 뷰 화면을 켭니다 (보충 그림 1).
- 시료의 높이를 수직으로 조절하여 관심 영역이 X선 연속 화면의 중앙에 오도록 합니다. 이 높이를 기록하여 나중에 단계 4.10에서 사용합니다 (보충 그림 1).
- 비닝을 512 × 512로 설정하고, X선 연속 뷰의 시야 대부분을 시료가 채우되 각 측면에 약간의 빈 공간이 남도록 픽셀 크기를 조절합니다 (보충 표 1, 보충 그림 1 참조).
- 시료를 45°마다 회전시키며 중심을 맞추어 연속 X선 뷰 화면의 중앙에 위치시킵니다 (보충 그림 1).
- 비닝을 2048 × 2048로 변경합니다 (보충 표 1, 보충 그림 1 참조).
- Scanning Modes 메뉴에서 필터 없음(no filter)을 선택하고 전압은 50 kV, 전류는 40 µA로 설정합니다 (보충 표 1, 보충 그림 1 참조).
- 시료를 68 mm까지 내려 연속 X선 뷰 화면의 시야에서 벗어나게 하여 플랫 필드 보정을 수행합니다. Flat Field Correction을 끄고, 평균 X선 투과율이 55%가 되도록 Exposure Time을 설정합니다. 그 후 Flat Field Correction을 켭니다 (보충 표 1, 보충 그림 1 참조).
- 시료를 단계 4.4에서 결정한 높이로 다시 이동시킵니다 (보충 그림 1).
- Scanning Options에서 파일 이름과 폴더 위치를 설정합니다 (보충 그림 1).
- 회전 단계를 0.200°로 설정합니다. Frame Average는 3으로, Random Movement는 30으로 설정합니다. 360° 스캐닝을 선택합니다 (보충 표 1, 보충 그림 1 참조).
- 필요한 경우, 과도한 빈 공간을 제외하고 데이터 크기를 줄이기 위해 Partial width를 조절합니다 (보충 그림 1).
- Scan을 클릭하여 스캐닝을 시작합니다 (보충 그림 1).
5. 이미지 재구성
- 이미지 재구성 소프트웨어를 열고 스캔에서 얻은 모든 2D 투영 이미지를 불러옵니다(재료 표, 그림 4 참조).
- Preview를 클릭하여 녹색선 위치에서의 재구성 결과를 시각화합니다(부록 그림 2).
- Output 탭에서 히스토그램을 조정합니다. 오른쪽의 평탄한 영역은 잘라내고, 왼쪽 값은 0 또는 0보다 약간 낮은 상태로 유지합니다(부록 그림 2).
- Start 탭에서 후정렬(post-alignment)을 위해 Fine Tuning을 클릭합니다. Parameter 단계는 1로, Number of trials는 5로 설정하여 시작합니다. Start와 OK를 클릭합니다. Output 탭에 결과가 표시되면 prv 창을 클릭하고 화살표를 이용해 결과들을 살펴보며 최적의 정렬 상태를 선택합니다. 가장 상태가 좋은 이미지에서 그대로 둡니다(부록 그림 2).
- Output 탭에서 Use ROI 옆의 상자를 클릭하여 ROI를 활성화합니다. ROI 모양으로 circle을 선택합니다. Start 탭으로 돌아가 녹색선을 이동시켜 여러 위치를 미리 보면서, 전체 데이터 볼륨에 걸쳐 ROI 크기를 시료 크기에 맞게 조정합니다. 시료 주변에 어느 정도 빈 공간을 남겨둡니다(부록 그림 2).
- 다시 Start 탭을 클릭합니다. 상단과 하단의 빨간색 선을 이동시켜 재구성 데이터에서 필요하지 않은 영역을 잘라냅니다. 녹색선을 빨간색 선 근처로 이동시킨 후 Output 탭에서 재구성 결과를 미리 보아 중요한 데이터가 제외되지 않았는지 확인합니다(부록 그림 2).
- Output 탭에서 재구성된 이미지를 원하는 위치에 TIFF (16-bit) 형식으로 저장합니다(부록 그림 2).
- Start 탭으로 돌아가 Start를 클릭합니다(부록 그림 2).
6. 3D 시각화
- Dragonfly 소프트웨어를 실행합니다 (재료 표 참조).
참고: Dragonfly 및 해당 기능에 대한 추가 정보는 https://dragonfly.comet.tech/를 참조하십시오.) - 재구성된 TIFF 이미지를 가져옵니다.
- 모든 이미지를 선택하고 이미지 간격이 스캔 텍스트 파일의 배율 조정된 이미지 픽셀 크기(Scaled Image Pixel Size)와 동일한지 확인합니다 (보충 그림 3).
- 윈도우 레벨링을 조정하여 대비가 적절한 3D 뷰를 구현합니다 (보충 그림 3).
- 다양한 2D 슬라이스 평면(XY, 가로; XZ, 관상; YZ, 시상)을 스크롤하며 확인합니다 (보충 그림 3).
- 이미지를 마우스 오른쪽 버튼으로 클릭하고 뷰의 스크린샷을 내보내어 필요한 슬라이스 뷰를 저장합니다 (그림 4).
결과
세 그루의 M. sativa 식물에서 각각 두 개의 뿌리혹을 수확하였습니다. 두 개의 뿌리혹은 염색 시간 비교에 사용되었으며, 나머지 네 개는 대조도 향상을 위해 70% 에탄올 내 1% PTA로 28일 동안 전체 염색을 진행한 후 이미징하였습니다. 피펫 팁 내에 마운팅 매질로 1% 저융점 아가로스를 사용하여, 시료 주변에 X선 밀도가 낮은 마운팅 환경을 조성하였습니다. 염색액을 통해 식물 조직의 대조도를 성공적으로 높였습니다(그림 5A,B, 보충 그림 4). 데이터 히스토그램을 통해 시료의 신호를 배경 및 피펫 팁과 쉽게 분리함으로써, 뿌리혹 전체의 외부 및 내부 구조를 방해 없이 3D로 시각화할 수 있었습니다(그림 5A,B).
외부 표피가 보이지만, 다른 조직들에 비해 대비가 낮게 나타납니다(그림 5C–E). 반면, 관다발은 시료의 하단부터 상단까지 뚜렷하고 잘 연결되어 있습니다(그림 5A,B). 횡단면에서는 이러한 관다발의 수와 분지 형태를 명확하게 확인할 수 있습니다(그림 5C). 또한, 내부 조직의 대비가 우수하여 피층과 식물 액포를 식별할 수 있습니다(그림 5C–E). 이러한 높은 대비 덕분에 감염된 세포와 감염되지 않은 세포를 쉽게 구분할 수 있습니다(그림 5C–E). 관상면과 시상면에서는 분열 조직, 감염대 및 분화대의 분포가 드러납니다(그림 5D). 보충 영상 1은 3D로 재구성된 뿌리혹의 360° 뷰를 보여줍니다.
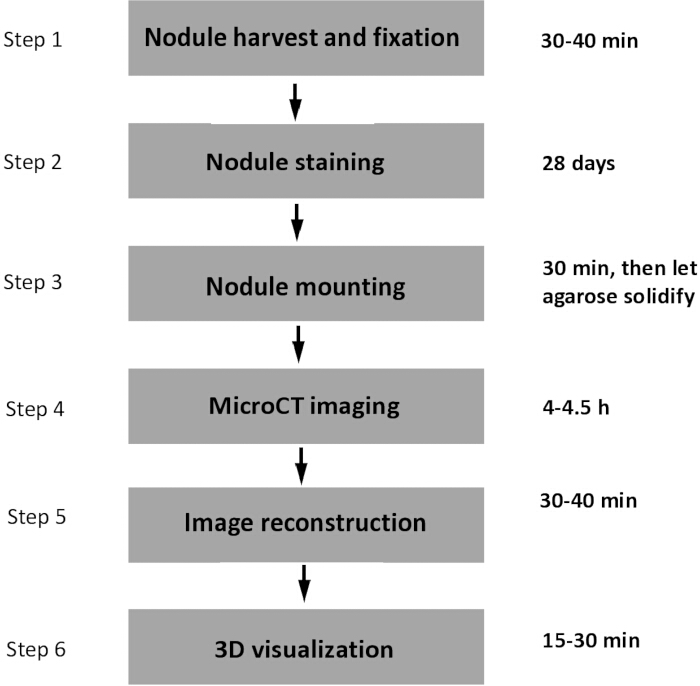
그림 1: 프로토콜 워크플로우. 콩과 식물의 뿌리혹을 영상화하기 위해 microCT를 사용하는 워크플로우의 개요와 각 단계에 소요되는 시간. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
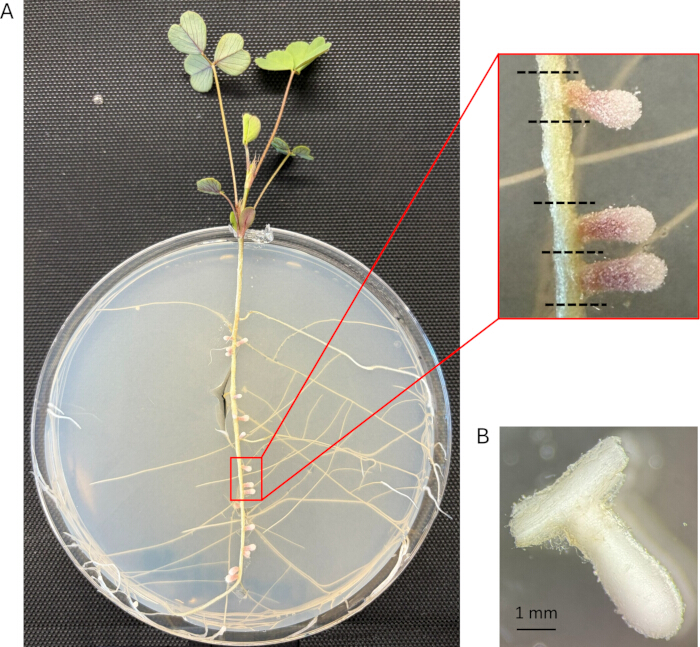
그림 2: 본 프로토콜에 사용된 M. sativa 뿌리 넙실. (A) S. meliloti 박테리아를 접종한 지 28일 된 M. sativa 식물 (28 dpi). 검은색 점선은 사진에 표시된 넙실을 절제하기 위한 권장 절단선을 나타냅니다. 식물 3개당 2개의 넙실을 절제하였으며, 총 4개의 샘플을 스캔하였습니다. (B) PTA 염색 후 4주가 지난 M. sativa 28 dpi 넙실. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
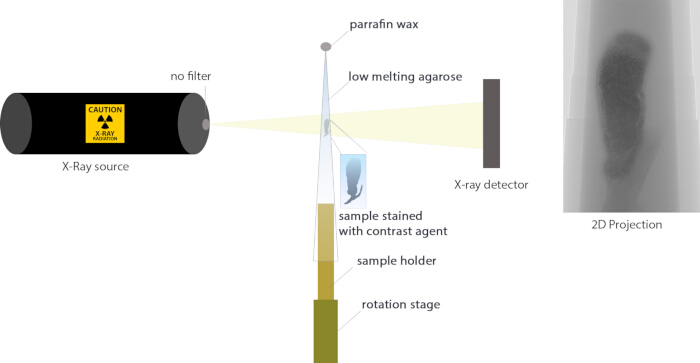
그림 3: microCT 시료 준비 개요. 조영제로 염색된 뿌리혹이 마이크로피펫 팁 내부의 저융점 아가로스에 의해 고정되어 있다. 마이크로피펫 팁의 한쪽 끝은 파라핀 왁스로 밀봉되어 microCT 장비 내의 회전 스테이지에 고정된다. X선 소스(필터 없음)는 장비의 한쪽에 위치하며, 방사선이 시료를 통과하여 반대편의 X선 검출기에 도달한다. 스캔 결과는 조직 밀도에 기반한 2D 투영 영상으로 나타난다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
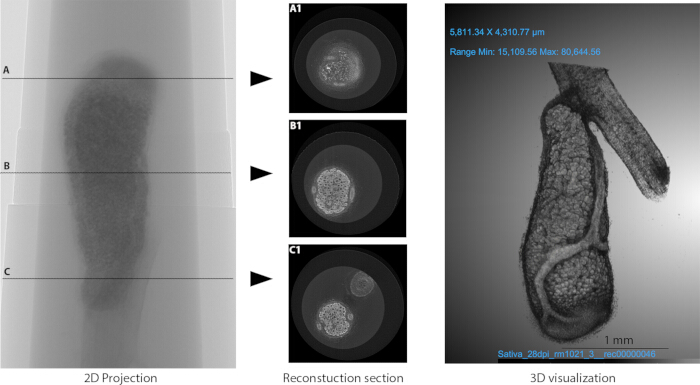
그림 4: 이미지 재구성 및 3D 시각화 예시. (왼쪽) 2D 투영 이미지. (가운데) 재구성 단면. A1, B1, C1은 microCT 2D 투영 이미지의 A, B, C 위치에서 재구성된 횡단면을 보여준다. (오른쪽) 재구성된 이미지로 생성한 뿌리 혹의 3D 시각화. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
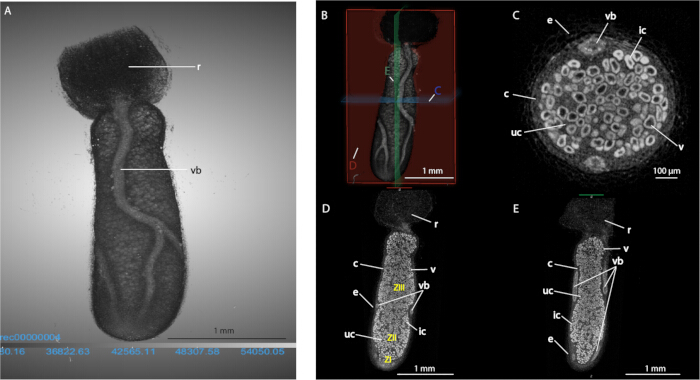
그림 5: 주석이 달린 대표 이미지. (A) M. sativa 뿌리 혹의 주석이 달린 3D 시각화. (B) 3D 이미지에서 가로(C), 관상(D), 시상(E) 단면을 각각 나타내는 빨간색, 파란색, 녹색 외곽선. M. sativa 뿌리 혹의 주석이 달린 가로(C), 관상(D), 시상(E) 단면. 약어: c – 피층; e – 표피; ic – 감염된 세포; r – 뿌리; uc – 감염되지 않은 세포; v – 액포; vb – 유관속; ZI – 구역 I (분열 조직); ZII – 구역 II (감염); ZIII – 구역 III (분화). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
보충 그림 1. microCT 이미징 소프트웨어 스크린샷. (A1) 스테이지 도어 열기 및 닫기. (A2) 카메라 뷰 켜기. (A3) X-선원 켜기. (A4) 연속 X-선 뷰 켜기. (A5) 시료 높이 조절. (A6) 픽셀 크기 조절. (A7) 시료 회전. (A8) 비닝 변경. (A9) 필터 변경. (A10) 스캐닝 모드 접속 옵션. (A11) X-선원 전압 및 전류 설정. (A12) 더블 클릭하여 플랫 필드 보정 끄기. (A13) 스캐닝 옵션. (B1) 플랫 필드 보정 꺼짐. (B2) 스캐닝 모드 접속 옵션. (B3) 평균 X-선 투과도. (B4) 노출 시간 조절. (B5) 플랫 필드 업데이트. (C1) 파일 이름을 지정하고 데이터 저장 위치 선택. (C2) 회전 단계, 프레임 평균화, 무작위 이동 및 360 deg 스캐닝 설정. (C3) 부분 폭 조절. (C4) 스캔 시작.이 파일을 다운로드하려면 여기를 클릭하십시오.
부록 그림 2. 이미지 재구성을 위한 소프트웨어 스크린샷. (A1) 샘플을 미리 볼 위치를 선택합니다. (A2) 샘플 미리보기. (A3) 파라미터 미세 조정. (A4) 사후 정렬을 위한 시행 횟수와 파라미터 단계를 설정합니다. (A5-6) 재구성 영역의 상단과 하단. (A7) 재구성 시작. (B1) 대비 조정. (B2) 사후 정렬 결과를 확인하고 클릭하여 이동합니다. (B3) 원형 ROI를 생성합니다. (B4) 파일 형식과 데이터를 저장할 위치를 선택합니다.이 파일을 다운로드하려면 여기를 클릭하십시오.
부록 그림 3. 3D 시각화를 위한 소프트웨어 스크린샷. (A) 이미지 간격 정보. (B) 선택, 회전 및 확대/축소 도구 (상단). 대비 조절을 위한 윈도우 레벨링 (하단). (C) 표시 스케일 바 (상단). 배경색 변경 (하단). 이 파일을 다운로드하려면 여기를 클릭하십시오.
부록 그림 4. PTA 염색 후 14, 17, 28일차의 MicroCT 재구성 결과. (A) PTA 염색 후 14일차에 재구성된 M. sativa 단면은 외층에서 노이즈를 보임 (n = 1). (B) PTA 염색 후 17일차에 재구성된 M. sativa 단면은 (A)와 비교하여 외층의 대비는 더 높으나 내부의 선명도는 더 낮음 (n = 1). (C) PTA 염색 후 28일차에 재구성된 M. sativa 단면은 (A) 및 (B)와 비교하여 외층과 내층 모두에서 더 높은 대비를 보임 (n = 4).이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 1: microCT 이미징 파라미터.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 영상 1: 3D 결절 영상.이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
다음은 시료 준비 및 염색에 관한 몇 가지 권장 사항입니다. microCT 이미징을 위한 시료 준비 과정에서는 구조적 무결성을 보존하기 위해 뿌리혹을 세심하게 절제하는 것이 필수적입니다. 공간적 맥락을 유지하고 조직 손상을 최소화하기 위해 뿌리혹 부착 지점의 양측에 뿌리 조각을 소량 남겨두는 것을 권장합니다. X선 감쇠를 높이고 내부 해부학적 특징을 시각화하기 위해서는 조영제 사용이 매우 중요합니다14. PTA 염색을 사용한 이전 연구에 따르면, 다양한 식물 종과 조직 유형 전반에서 충분한 대조도를 얻기 위해서는 최소 14일의 염색 기간이 필요하며, 과염색의 증거는 없었습니다14. 해당 연구에서는 Bradyrhizobium에 의해 유도된 대두 뿌리혹(14 dpi에서 고정)을 35일 동안 염색했습니다14. 이 범위(14~35일)를 기준으로, 본 연구팀은 자체 뿌리혹 시료에 대해 여러 시점(14, 17, 28일)에서 예비 염색 시험을 수행하고 결과 이미지의 대조도를 비교했습니다. 더 짧은 시점과 비교했을 때 대조도가 더 좋고 세포 경계가 더 명확하며 염색이 더 균일하게 이루어진 28일의 염색 기간을 본 프로토콜을 위해 선택했습니다(Supplementary Figure 4). 14일 및 17일 재구성 이미지는 체계적인 반복 연구가 아닌 단일 뿌리혹에서 얻은 결과인 반면, 28일 조건은 스캔한 4개의 뿌리혹 모두를 포함하고 있으며, 염색 기간은 연구에 필요한 해상도에 따라 조정되어야 함을 명시합니다. 또한 28일의 염색 기간은 짧은 시간이 아닙니다. 이전 연구에서 제안된 바와 같이, 전자레인지 보조 염색(microwave-assisted staining)은 PTA 침투를 가속화하여 필요한 염색 기간을 단축하는 데 도움이 될 수 있습니다14. Lugol 용액과 같은 요오드 기반 제제 또한 식물 조직의 대조도를 높이는 데 사용됩니다23,24. 본 연구의 주된 목적은 재현 가능한 단일 프로토콜을 수립하는 것이었으므로, 뿌리혹 조직에서 성능이 입증된 PTA를 선택하였으며 염색제 간의 비교는 수행하지 않았습니다14. 향후 연구에서는 다양한 식물 종과 조직 유형에 대해 다른 염색제를 테스트해야 할 것입니다.
적절한 임베딩 또한 동일하게 중요합니다. 탈수를 방지하고 시료의 자연스러운 형태를 유지하기 위해, 시료는 저융점 아가로스(low-melting-point agarose)로 완전히 덮여 있어야 합니다. 임베딩 후에는 스캐닝 동안 안정성을 유지하도록 아가로스를 응고시키기 위해 시료를 4 °C에서 하룻밤 동안 보관해야 합니다. 마운팅된 시료는 데이터 획득 과정에서 드리프트(drift)나 진동으로 인한 아티팩트(artifact)가 발생하는 것을 방지하기 위해 스캐닝 스테이지에 단단히 고정되어야 합니다.
MicroCT는 광학 및 전자 현미경보다 낮은 해상도로 전체 뿌리혹 조직을 비파괴적으로 3차원 시각화할 수 있게 해줍니다. XRM과 방사광 기반 X-선 CT는 일반적으로 기존의 microCT보다 더 높은 품질과 해상도의 이미지를 제공합니다. 방사광 기반 X-선 CT는 높은 광자속과 빔 일관성 덕분에 대조제 없이도 신속한 획득과 충분한 대비가 가능하므로, 신선하고 염색되지 않은 시료를 직접 스캔할 수 있습니다6. Duncan et al. (2022)14 및 Nakhforoosh et al. (2024)6와의 직접적인 비교는 연구 설계의 차이로 인해 제한적입니다. 여기에는 종(대두 vs Medicago sativa), 뿌리혹 유형(유한형 vs 무한형), 그리고 이미징 방식(XRM 및 방사광 기반 X-선 CT vs 기존 microCT)의 차이가 포함됩니다. 그럼에도 불구하고, 본 연구의 뿌리혹 재구성 이미지의 공칭 픽셀 크기는 약 1.75 µm로, Duncan et al. (2022)14의 뿌리혹 스캔(2.2 µm, Figure 4A)보다 더 세밀하지만, 그들의 재구성 이미지가 여전히 더 높은 명확성을 보여줍니다. 이는 유효 해상도가 공칭 픽셀 크기 이상의 요소에 의해 결정됨을 반영하는 것으로 보입니다. XRM 대물렌즈의 광학 배율, 검출기 민감도, 광원 안정성, 카메라 품질 및 재구성 방법이 모두 영향을 미칩니다. 여기서 보여주듯이 액포와 같이 크고 밀도가 낮은 구조는 쉽게 구별할 수 있지만, 개별 세포 내 박테로이드의 점유 상태나 더 작거나 밀도가 낮은 세포소기관은 구별할 수 없으며, 동적인 생물학적 과정은 실시간으로 캡처할 수 없습니다. PTA 및 요오드 기반 대조제는 비특이적이며 분자 정체성을 보고할 수 없습니다. 세포 내 수준의 문제는 여전히 형광 또는 전자 현미경이 필요할 것입니다. 이러한 이미징 접근법들은 서로 보완적이며, microCT는 전체 기관의 형태와 3D 조직 구조 분석에 적합하여, 더 미세한 구조적 및 분자적 세부 사항을 다루는 광학 및 전자 현미경 연구에 맥락을 제공합니다.
우리는 다른 S. meliloti 균주를 접종한 M. sativa, 그리고 여러 다른 S. meliloti 균주를 접종한 M. truncatula 및 Trigonella foenum-graecum의 유사한 시점 및 발달 단계의 뿌리혹을 사용하여 이 워크플로우를 성공적으로 재현하였습니다(미발표 데이터). 우리의 목적은 성숙한 질소 고정 뿌리혹에 대한 특성을 규명하고 재현 가능한 프로토콜을 제공하는 것이었기 때문에, 서로 다른 발달 단계의 뿌리혹은 테스트하지 않았습니다. 그럼에도 불구하고, 더 중요한 제한 사항은 뿌리혹의 크기이므로, 이 워크플로우는 다양한 발달 단계의 뿌리혹에도 적용 가능할 것입니다. 우리가 스캔한 뿌리혹의 길이는 약 2.5 mm였습니다(부록 표 1). 본 연구에 사용된 microCT의 경우, 최소 1 mm 이상의 길이를 권장합니다. 이미징 가능한 크기는 배율이 다를 수 있으므로 사용하는 장비에 따라 영향을 받을 수 있습니다.
최근의 증거에 따르면 뿌리혹 내부의 점유율은 질소 고정 효율과 직접적인 상관관계가 있는 중요한 매개변수입니다. 감염된 세포의 비율이 더 높은 뿌리혹이 박테리아에 의해 점유된 세포가 적은 뿌리혹보다 질소 고정 능력이 더 뛰어난 것으로 나타났습니다25. 또한, 뿌리혹의 건강 상태는 혈관 구조의 범위에 따라 달라지며, 혈관 구조가 파괴되거나 제한되면 뿌리혹의 결함과 식물 건강의 저하를 의미합니다26. 점유율과 혈관 구조를 시각화할 수 있다는 가능성을 고려할 때, microCT는 질소 고정 분야의 중요한 공백을 메워줍니다. 이 워크플로우를 통해 뿌리혹의 내부 및 외부 구조에 대한 비파괴적 시각화를 일상적으로 수행할 수 있으며, 이러한 구조는 작물로의 공생 질소 공급을 주도하는 고정 효율의 직접적인 결정 요인이 됩니다.
공개 사항
저자들은 공개할 사항이 없습니다.
감사의 글
We would like to thank Stephanie Sage for her help with plant preparation. Xia Zhao helped with sample embedding. We are grateful to Madi Mitchell for the initial project discussion. We would like to thank Tom Kleist and Kexi Yi for their data interpretation advice. We also thank Keith Duncan (Donald Danforth Plant Science Center) for his protocol advice. This project is funded by the Stowers Institute for Medical Research.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 20 mL 유리 바이알 | Sigma-Aldrich | Z190527 | 고정 및 염색을 위해 결절을 유지하는 데 사용됨. |
| 200 µL 피펫 팁 | Fisherbrand | 02-717-144 | 이미지 촬영을 위해 결절을 고정하는 데 사용됩니다. |
| 35 mm 마이크로웰 디쉬 | Fisher Scientific | 507532924 | 염색 후 결절을 세척하는 데 사용됩니다. |
| Dragonfly 소프트웨어 | Comet Technologies Canada Inc. | V2022.2 | 3D 뷰에서 2D 재구성 영상을 시각화하고 조작하는 데 사용됩니다. |
| 에탄올 | Decon Labs | V1001 | 결절을 고정하고 세척하는 데 사용됩니다. |
| 미세 핀셋 | Dumont | AA-Inox-E | 피펫 팁의 노듈을 조정하는 데 사용됩니다. |
| 겔 로딩 팁 | Corning (Costar) | 4853 | 피펫 팁 내부의 아가로스 내에 있는 결절을 조작하는 데 사용됩니다. |
| 가열판 | 미락 | SP72725 | 파라핀을 녹이고 저융점 아가로스를 용해하는 데 사용됩니다. |
| 저융점 아가로스 | GeneMate | 490001-602 | 방향성과 습도를 유지하기 위한 뿌리혹 매립에 사용됨. |
| 마이크로 CT | Bruker | Bruker SkyScan 1272 | 결절 스캔에 사용됨. |
| NRecon 소프트웨어 | Bruker | V2.2.0.6 | 2D 투영 영상의 재구성에 사용됨. |
| 궤도 진탕기 | VWR | 77591-858 | 염색 침투를 가속화하기 위해 뿌리 결절을 흔드는 데 사용됩니다. |
| 파라핀 | McCormick Scientific | 39503002 | 피펫 팁의 좁은 끝부분을 밀봉하는 데 사용됩니다. |
| 파라필름 | Alkali Scientific | PM996 | 시료의 건조를 방지하기 위해 피펫 팁을 밀봉하는 데 사용됩니다. |
| 인몰리브덴산/포스포텅스틱산 | 전자현미경 과학 (EMS) | 19500 | 결절 염색에 사용됨. |
| 시료 홀더 - 길이 3.4 cm 직경 0.63 mm | Bruker | 기기와 함께 제공되는 Bruker 세트 | 이미징 중에 피펫 팁과 시료를 고정하는 데 사용됩니다. |
| 메스 | Fisher Scientific | S07890 | 뿌리혹을 수확하는 데 사용됩니다. |
| Skyscan 소프트웨어 | Bruker | v1.5.1.0 | MicroCT 조작에 사용됨. |
| 항온수조 | Boekel 연구비 지원금 | 640013001 | 결절을 매립하는 동안 아가로즈를 액체 상태로 유지하는 데 사용됩니다. |
참고문헌
- Oldroyd GED, Murray JD, Poole PS, Downie JA. The rules of engagement in the legume-rhizobial symbiosis. Annu Rev Genet. 2011;45:119-44.
- Gibson KE, Kobayashi H, Walker GC. Molecular determinants of a symbiotic chronic infection. Annu Rev Genet. 2008;42:413-41.
- Porter SS, et al. Host-imposed control mechanisms in legume-rhizobia symbiosis. Nat Microbiol. 2024;9:1929-39.
- Guerra-García FJ, Sankari S. NCR peptides in plant-bacterial symbiosis: applications and importance. Trends Microbiol. 2025;33(2):147-50.
- Rae AE, Rolland V, White RG, Mathesius U. New methods for confocal imaging of infection threads in crop and model legumes. Plant Methods. 2021;17:24.
- Nakhforoosh A, et al. Visualization and quantitative evaluation of functional structures of soybean root nodules via synchrotron X-ray imaging. Plant Phenomics. 2024;6.
- Nierenberger M, Rémond Y, Ahzi S, Choquet P. Assessing the three-dimensional collagen network in soft tissues using contrast agents and high resolution micro-CT: Application to porcine iliac veins. C R Biol. 2015;338(7):425-33.
- Livingston D, Tuong T, Nogueira M, Sinclair T. Three-dimensional reconstruction of soybean nodules provides an update on vascular structure. Am J Bot. 2019;106(3):507-13.
- Warner CA, et al. An optical clearing technique for plant tissues, allowing deep imaging and compatible with fluorescence microscopy. Plant Physiol. 2014;166(4):1684-7.
- Indore NS, Karunakaran C, Jayas DS. Synchrotron tomography applications in agriculture and food sciences research: a review. Plant Methods. 2022;18:101.
- Novák K. Determination of symbiotic nodule occupancy in the model Vicia tetrasperma using a fluorescence scanner. Ann Bot. 2011;107(4):709-15.
- Martin L, et al. Cancer cachexia in the age of obesity: Skeletal muscle depletion is a powerful prognostic factor, independent of body mass index. J Clin Oncol. 2013;31(12):1539-47.
- Liguori C, et al. Emerging clinical applications of computed tomography. Med Devices (Auckl). 2015;8:265-78.
- Duncan KE, et al. X-ray microscopy enables multiscale high-resolution 3D imaging of plant cells, tissues, and organs. Plant Physiol. 2022;188(2):831-45.
- Wang J, et al. A deep learning-based micro-CT image analysis pipeline for nondestructive quantification of the maize kernel internal structure. Plant Phenomics. 2025;7(1).
- Brackin R, Atkinson BS, Sturrock CJ, Rasmussen A. Roots-eye view: Using microdialysis and microCT to non-destructively map root nutrient depletion and accumulation zones. Plant Cell Environ. 2017;40(12):3135-42.
- Brodersen CR, Roddy AB. New frontiers in the three-dimensional visualization of plant structure and function. Am J Bot. 2016;103(2):184-8.
- Schoborg TA, et al. Micro-computed tomography as a platform for exploring Drosophila development. Development. 2019;146(23).
- Wang M, et al. Nanoplastics causes extensive congenital malformations during embryonic development by passively targeting neural crest cells. Environ Int. 2023;173.
- Brodersen CR, et al. The dynamics of embolism repair in xylem: In vivo visualizations using high-resolution computed tomography. Plant Physiol. 2010;154(3):1088-95.
- Brodersen CR, et al. In vivo visualizations of drought-induced embolism spread in Vitis vinifera. Plant Physiol. 2013;161(4):1820-9.
- Nolf M, et al. Visualization of xylem embolism by X-ray microtomography: a direct test against hydraulic measurements. New Phytol. 2017;214(2):890-8.
- Karahara I, Yamauchi D, Uesugi K, Mineyuki Y. Three-dimensional visualization of plant tissues and organs by X-ray micro-computed tomography. Microscopy (Oxf). 2023;72(4):310-25.
- Staedler YM, Masson D, Schönenberger J. Plant tissues in 3D via X-ray tomography: simple contrasting methods allow high resolution imaging. PLoS One. 2013;8(9).
- Sánchez-Cañizares C, et al. Developmental fates and N2-fixing efficiency of terminally-differentiated versus undifferentiated bacteroids from legume nodules. Plant Physiol. 2026;200(3).
- Pepper AN, Morse AP, Guinel FC. Abnormal root and nodule vasculature in R50 (sym16), a pea nodulation mutant which accumulates cytokinins. Ann Bot. 2007;99(4):765-76.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공