본 프로토콜은 열 스트레스, 산화적 스트레스, 소포체(ER) 스트레스 및 미토콘드리아 스트레스에 대한 개체 전체의 저항성을 평가하기 위한 단계별 절차를 설명합니다. 또한 뉴런이 스트레스 저항성에 역할을 하는지 평가하는 방법도 제공합니다.
이 논문에서
요약
초록
생물체는 일생 동안 다양한 환경적 및 세포적 스트레스 요인에 노출됩니다. 다양한 스트레스 요인에 저항하는 능력은 생물체의 건강 수명 및 수명과 밀접한 상관관계가 있습니다. Caenorhabditis elegans (C. elegans)는 스트레스 저항성의 근저에 있는 보존된 분자 메커니즘 연구를 촉진하기 위한 스트레스 저항성 측정의 이상적인 모델 생물입니다. 또한 C. elegans는 스트레스 저항성의 신경학적 기초를 이해하는 데 필수적인 단순화된 신경계를 가지고 있습니다. 본 연구에서는 열 스트레스, 소포체(ER) 스트레스, 미토콘드리아 스트레스, 산화 스트레스의 네 가지 서로 다른 스트레스 조건에서 C. elegans의 스트레스 저항성을 측정하는 방법을 제시합니다. 벌레 집단을 고체 한천 배지에 배치하고, 열 스트레스의 경우 가혹한 온도에 노출시키거나, ER, 미토콘드리아 또는 산화 스트레스를 유도하는 다양한 용량의 화합물이 포함된 한천에 노출시킵니다. 예시로서, 각 스트레스의 용량을 단계적으로 높여 설정하고 최적 용량을 적정함으로써, 야생형 균주와 비교하여 RIC 뉴런이 제거된 균주의 스트레스 저항성 차이를 결정하였습니다. 스트레스 조건 하에서 C. elegans의 생존 여부를 시간별 또는 일별로 모니터링하고, 생존 곡선을 그려 서로 다른 C. elegans 균주 간의 스트레스 저항 능력 차이를 식별합니다. 이러한 방법은 야생형, 돌연변이 또는 뉴런 조작 균주의 C. elegans에서 다양한 용량과 시간 척도에 걸쳐 여러 스트레스 요인에 대한 저항성을 평가할 수 있는 재현 가능한 접근 방식을 제공하며, 여러 스트레스 요인의 근저에 있는 분자 및 신경 메커니즘을 밝히는 데 도움을 줍니다.
서론
생물체는 일생 동안 다양한 환경적 스트레스를 경험합니다. 열, 저산소증, 방사선, 산화적 스트레스, 삼투압 스트레스 및 병원성 스트레스를 포함한 대부분의 스트레스 요인은 세포 기능 장애와 항상성 불균형을 유발하여 세포 내 스트레스 반응을 일으킵니다. 생물체는 역동적인 환경적 도전과 스트레스 요인에 대처하기 위해 고도로 보존된 스트레스 반응 경로를 발달시켰습니다. 이러한 보존된 스트레스 반응 경로에는 열 충격 반응(HSR)1, 소포체(ER) 및 미토콘드리아의 미접힘 단백질 반응(UPR)2, 그리고 산화적 스트레스 반응3이 포함됩니다. 일반적으로 전사 인자인 서로 다른 스트레스 반응 경로의 핵심 조절 인자들은 반응성 유전자의 발현을 유도하여 단백질 항상성을 회복하고 세포 생존을 촉진합니다4. 이러한 반응에는 잘못 접힌 단백질을 재접힘시키는 샤페론의 합성 및 단백질 분해를 통한 손상된 단백질의 제거가 포함됩니다4. 스트레스 반응을 활성화하는 데 실패하면 세포질이나 세포 소기관에 손상된 단백질이 축적되어 세포 및 조직의 기능 장애로 이어집니다. 불균형한 세포 스트레스 반응은 신경 퇴행성 질환부터 대사 증후군에 이르는 다양한 만성 질환과 연관되어 왔습니다5,6. 반면, 스트레스 반응 경로의 적절한 활성화는 건강 수명(healthspan)의 개선과 실질적인 수명 연장으로 이어집니다7. 따라서 건강 증진을 위해 보호적 스트레스 반응을 활용하려면 스트레스 저항성의 분자적 기전을 연구하는 것이 중요합니다. 그러므로 살아있는 동물에서 스트레스 저항성을 정밀하게 정량화하기 위한 재현 가능한 방법과 기술을 확립하는 것이 필요합니다.
지난 15년 동안의 발견을 통해 여러 종에 걸쳐 스트레스 저항성을 향상시키는 데 있어 신경 신호 전달의 역할이 밝혀졌습니다8. 초기 연구 결과에 따르면 뉴런의 HSR 및 ER UPR은 비뉴런 조직에서 스트레스 반응을 활성화하기에 충분하며, 이를 통해 스트레스 저항성의 세포 비자율적 조절(cell non-autonomous regulation)이라는 개념이 정립되었습니다8,9,10. 이러한 초기 발견 이후, 여러 스트레스 저항성 경로가 환경적 신호에 반응하고 신경 신호 전달을 통해 스트레스 저항성을 촉진한다는 증거가 계속해서 축적되었습니다. 구체적으로 HSR10,11, ER UPR12,13, 미토콘드리아 미접힘 단백질 반응(UPRmt)14,15, 그리고 산화 스트레스 반응3은 각각 뉴런을 통해 세포 비자율적으로 스트레스 저항성을 촉진합니다. 스트레스 저항성의 세포 비자율적 조절 메커니즘은 초파리 D. melanogaster16,17,18,19 및 생쥐20,21를 포함한 생물체 전반에 걸쳐 보존되어 있습니다.
다양한 스트레스 요인 하에서 뉴런의 스트레스 내성 역할을 연구하는 것을 돕기 위해, 본 논문에서는 뉴런에 의해 조절되는 네 가지 스트레스 요인인 열 스트레스, ER 스트레스, 미토콘드리아 스트레스 및 산화 스트레스 하에서의 내성을 테스트하는 체계적인 프로토콜을 제시합니다. 다루기 쉬운 모델 생물인 C. elegans를 사용하여 이 네 가지 스트레스 요인에 대한 스트레스 내성을 측정하였습니다. 스트레스 내성 분석에 C. elegans를 사용하면 세포 수준뿐만 아니라 개체 수준에서의 스트레스 반응 활성화를 연구할 수 있습니다.
열 스트레스, 소포체(ER) 스트레스, 미토콘드리아 스트레스 및 산화 스트레스에 의해 활성화되는 스트레스 반응 경로는 인간을 포함한 다양한 생물체에서 보존되어 있으며 기능적으로 중요합니다22,23,24,25. 열 스트레스는 단백질의 미스폴딩(misfolding)과 응집을 유발하며, 단백질 항상성 유지에 필수적인 열 충격 반응을 활성화합니다26. C. elegans의 생리적 환경 온도는 20 °C이며, 25 °C 이상의 고온은 C. elegans에게 열 스트레스를 유도합니다27. 본 연구에서는 30 °C, 35 °C, 37 °C의 세 가지 상승된 도전 온도 조건에서 열 스트레스를 유도합니다.
ER은 단백질 합성 및 접힘의 주요 장소입니다28. ER 루멘 내에 접히지 않거나 잘못 접힌 단백질이 축적되면, 단백질 항상성을 회복하기 위해 미접힘 단백질 반응(unfolded protein responses)이 활성화됩니다29. ER 스트레스는 N-연결 당화(N-linked glycosylation)를 차단하여 ER 루멘에 잘못 접힌 단백질의 축적을 유발하는 화학 물질인 tunicamycin에 의해 유도될 수 있습니다 30. ER 루멘 내의 단백질 미접힘 스트레스에 대한 저항성이 증가하면 생존율이 높아집니다12. 우리는 벌레를 다양한 농도의 tunicamycin (25–200 µg/mL)에 노출시키고, 생존율을 측정하여 민감도를 평가합니다.
미토콘드리아는 세포의 대사 중심지이자 세포의 "발전소"입니다. 미토콘드리아 내의 활성 산소종(ROS)과 변성 단백질은 미토콘드리아 미접힘 단백질 반응을 촉발하고 미토콘드리아 스트레스를 유도합니다31. 미토콘드리아 스트레스는 전자 전달을 차단하여 ROS 생성을 유발하는 미토콘드리아 복합체 III 억제제인 antimycin A에 의해 유도될 수 있습니다32. 우리는 미토콘드리아 스트레스 내성 분석을 위한 최적 용량을 확인하기 위해 다양한 농도의 antimycin A (5–80 µg/mL)를 사용합니다.
산화성 스트레스는 일반적으로 환경 독소와 대사 과정에서 생성된 세포 내 자유 라디칼에 의해 유도됩니다. 산화성 스트레스는 모든 생물체에서 단백질, 지질 및 DNA에 손상을 일으킵니다33. 산소로 전자를 전달하여 과도한 양의 슈퍼옥사이드 라디칼을 생성하는 제초제 화학 물질인 파라콰트(Paraquat)는 산화성 스트레스의 강력한 유도제입니다34. 본 연구에서는 네 단계의 증가하는 파라콰트 농도(2.5–20 mM)를 적용하여 C. elegans의 최대 생존 기간이 3일에서 12일 사이의 범위로 나타남을 보여줍니다.
이 네 가지 스트레스 조건은 C. elegans의 스트레스 저항성에 대해 재현성이 매우 높은 결과를 도출하기에 용이합니다. 스트레스 저항성 방법들은 이전에 보고된 바 있습니다35,36,37,38,39,40. 다양한 스트레스 요인과 생존 분석을 요약한 기존의 리뷰 논문35과 비교하여, 본 논문은 재현 가능하고 일관된 스트레스 분석을 수행하기 위한 상세하고 실행 가능한 단계별 프로토콜을 수립하였습니다. 기존에 발표된 여러 프로토콜은 열 충격36 또는 산화적 스트레스38과 같은 특정 스트레스 분석 하나에 집중한 반면, 본 프로토콜은 열, ER, 미토콘드리아 및 산화적 스트레스의 네 가지 서로 다른 스트레스 분석법 모두를 보여줍니다. 이전에 보고된 스트레스 분석 프로토콜들은 ER, 미토콘드리아 및 산화적 스트레스40에 대한 경로 특이적 형광 전사 리포터나 열 충격 반응39과 같은 형광 리포터의 서로 다른 종점 분석법을 제시하지만, 본 프로토콜은 C. elegans의 전반적인 건강 상태를 효과적으로 측정하기 위해 생존 분석법을 사용합니다. 중요한 점은, 본 프로토콜이 스트레스 분석에 선택할 수 있는 효과적인 용량 범위를 참고할 수 있도록 네 가지 분석 모두에 대한 용량 적정을 제시했다는 것입니다. 또한, 본 프로토콜은 서로 다른 스트레스 분석에서의 시간 척도(시간 단위에서 일 단위까지)를 최적화하였으며, 뉴런이 스트레스 저항성을 조절하는지 테스트하는 예시로서 여러 스트레스 반응을 조절하는 뉴런의 새로운 역할을 제시하였습니다.
스트레스 내성 분석법을 개발하려면 적절한 스트레스 요인과 신뢰할 수 있는 평가 지표를 선정해야 합니다. C. elegans 생존 분석(survival assays)은 수명, 스트레스 저항성 및 병리적 감염을 포함한 생리적 과정을 측정하는 강력한 도구였습니다. 이러한 분석법을 사용하는 것의 주요 장점 중 하나는 C. elegans 생존 분석의 장점은 자가 수정, 많은 산란 수, 그리고 알에서 청년 성체까지 3일이라는 짧은 발달 주기 덕분에 동일한 연령의 동기화된 웜을 준비하고 분석하는 것이 간단하다는 점입니다. 배양된 자연 개체군에서 수컷은 드물게 나타납니다. C. elegans 따라서 본 프로토콜을 포함한 생존 분석에는 일반적으로 사용되지 않으며, 주로 유전적 교배에 사용됩니다.35다른 종말점 평가 방법(예: 형광 리포터, 단백질 및 지질 축적)과 비교하여, 생존 분석은 다음의 전반적인 건강 상태를 측정하는 데 효과적입니다. C. elegans 또한 완료하는 데 상대적으로 짧은 시간이 소요되며, 스트레스 요인의 투여량에 따라 보통 수 시간에서 수 주 정도 걸립니다. 당사는 서로 다른 균주 간의 스트레스 내성을 나타내는 주요 지표로 생존율을 활용합니다. C. elegans생존 여부는 운동성과 가벼운 기계적 자극에 대한 반응으로 판단하며, 자극에 반응이 없는 경우를 사망으로 정의합니다. C. elegans 스트레스 분석. ~에서의 생존 분석 C. elegans 박테리아 배지가 포함된 고체 또는 액체 배지 모두에서 수행할 수 있습니다.35하지만 액체 배지는 선충의 자연 서식지가 아니며, 선충이 액체 배양액 속에서 계속해서 몸을 흔들 수밖에 없게 되어 생존 곡선이 단축되는 결과로 이어집니다.41본 연구에서는 고체 배지를 사용하여 다양한 스트레스 요인 농도가 야생형 및 뉴런 제거 변이체 벌레의 생존에 미치는 영향을 평가합니다. 이러한 농도 적정 데이터는 유사한 스트레스 내성 분석을 수행하는 다른 연구자들에게 지침을 제공할 수 있습니다.
프로토콜
C. elegans를 이용한 실험은 미국 캔자스주 맨해튼의 캔자스 주립 대학교에서 기관 생물 안전 및 실험실 지침에 따라 수행되었습니다. C. elegans는 무척추동물 모델 생물이므로, 본 연구에서는 척추동물 동물윤리위원회의 승인이 필요하지 않았습니다. 사용된 모든 시약, 장비, 소프트웨어 및 균주의 상세 내용은 재료 표(Table of Materials)에 나열되어 있습니다.
1. NGM (Nematode Growth Medium) 플레이트 제작 및 Escherichia coli OP50 준비
- NGM 플레이트 제작
- NaCl 3 g, Agar(분말) 17 g, Peptone 2.5 g을 정밀하게 측정하여 넣고, 초순수(dd) H2O 900 mL를 가해 최종 부피를 1 L로 맞춘 후 오토클레이브로 멸균한다. 60 °C 항온수조에서 배지를 약 60 °C까지 냉각시킨다.
- 1 M CaCl2(ddH2O로 조제 후 필터 멸균), 5 mg/mL cholesterol(에탄올로 조제 후 필터 멸균) 1 mL, 1 M MgSO4(ddH2O로 조제 후 필터 멸균) 1 mL, 그리고 1 M KP Buffer 25 mL를 첨가한다.
KP Buffer를 제작하려면, ddH2O로 조제한 1 M K2HPO4 130 mL와 1 M KH2PO4 870 mL를 혼합한다. 충분히 혼합한 후 pH를 6.0으로 조정한다. 조제 후 측정된 pH는 일반적으로 6.0에 가까워 추가 조정이 필요하지 않다. KP buffer의 허용 pH 범위는 5.8–6.2이며, 목표 pH는 6.0이다. 사용 전 최종 pH가 약 6.0인지 확인한다. 필요한 경우 1 M K2HPO4 또는 1 M KH2PO4를 사용하여 pH 6.0으로 조정한다. - 충분히 혼합한 후 배지(NGM)를 플레이트(페트리 접시)에 분주한다. 60 mm 플레이트의 경우 플레이트당 10 mL의 NGM 배지를, 35 mm 플레이트의 경우 플레이트당 3 mL의 NGM 배지를 분주한다. 박테리아 먹이를 접종하기 전, NGM 아가 플레이트를 평평한 벤치 위 실온(22–25 °C)에서 최소 24시간 동안 둔다.
주의: 용융된 NGM 아가를 조제하고 분주할 때는 화상 및 뜨거운 액체 노출을 방지하기 위해 내열 장갑과 적절한 실험실 개인보호구(PPE)를 착용한다.
- Caenorhabditis elegans용 Escherichia coli OP50 박테리아 먹이 준비
- Escherichia coli OP50 박테리아를 Luria-Bertani(LB) 아가 플레이트에 스트리킹하고 37 °C에서 하룻밤 동안 배양한다(LB 아가 플레이트: ddH2O 100 mL에 NaCl 1 g, tryptone 1 g, yeast extract 0.5 g, agar 분말 1.5-2.0 g을 넣고 20분간 오토클레이브로 멸균한 뒤 50-60 °C로 냉각하여 플레이트에 분주한다. 깨끗하고 평평한 벤치 위에 놓고 건조시킨다).
- 단일 콜로니를 100 mL 액체 LB 배지에 접종한다(LB 배지: ddH2O 100 mL에 NaCl 1 g, tryptone 1 g, yeast extract 0.5 g을 넣고 20분간 오토클레이브로 멸균한다. 접종 전 37 °C 이하로 냉각시킨다).
- 박테리아 현탁액을 10배 희석(박테리아 현탁액 100 µL를 LB 배지 900 µL와 혼합)했을 때 600 nm에서의 광학 밀도(OD600)가 약 0.3이 될 때까지 37 °C 진탕 배양기에서 배양한다. 박테리아 현탁액을 수확하여 4 °C에서 보관한다. 박테리아 먹이는 NGM 플레이트에 접종하기 전 최대 일주일 동안 보관할 수 있다40.
- 리피트 피펫(repeat pipettor)을 사용하여 NGM 플레이트에 OP50 박테리아를 접종한다. 60 mm 아가 플레이트에는 200 µL를, 35 mm 아가 플레이트에는 100 µL를 접종한다. 접종된 NGM 플레이트를 사용 전 실온(~22–25 °C)의 평평한 벤치 위에 최소 24시간 동안 둔다. 플레이트를 실온에 48시간 이상 방치하지 않는다. 접종된 플레이트를 깨끗한 플라스틱 박스에 넣어 4 °C에서 보관한다.
참고: 통기구가 없는 플레이트를 사용하는 경우, 접종된 OP50이 건조되는 데 더 오랜 시간이 걸릴 수 있다.
주의: E. coli OP50 배양물을 다룰 때는 적절한 미생물 취급 수칙을 준수하고 실험복, 장갑 및 보안경을 착용한다. 작업 표면을 소독하고 기관의 생물 안전 절차에 따라 박테리아 폐기물을 처리한다.
2. C. elegans의 유지 및 동기화
이 섹션의 워크플로우는 그림 1A에 요약되어 있습니다.
- 벌레를 다음 조건에서 유지하십시오. 20 °C 벌레의 굶주림을 방지하기 위해 성체 벌레를 일주일에 두 번 OP50이 도말된 새로운 NGM 플레이트로 옮겨 배양합니다. 백금선 픽을 사용하여 20~40마리의 임신한 성체 벌레를 신선한 OP50 도말 NGM 플레이트에 옮기고, 기존 플레이트에서 임신한 성체와 함께 옮겨진 유충과 알은 모두 제거합니다. 임신한 벌레의 수를 정확히 파악하여 옮기면 정확한 기록 관리가 용이하며, 이후 단계(섹션 1.2)에서 벌레를 완전히 제거할 수 있습니다.
참고: 야생형 균주(N2)의 상태를 기준으로 할 때, 2시간 동안 80~120개의 알을 생성하려면 총 20~40마리의 임신한 벌레면 충분합니다. 임신한 성체가 성체 1일 차(day 1)일 때 산란 효율이 가장 높습니다. 산란력이 더 낮거나 높은 균주의 경우, 그에 맞게 임신한 벌레의 수를 조절하십시오. 이 단계의 목적은 이후의 스트레스 분석을 위해 동기화된 벌레로 발달할 충분한 양의 알을 확보하는 것입니다. - 약 2시간 후, 플레이트에서 임신한 벌레(gravid worms)를 제거하십시오. 이 단계에서 제거된 임신한 벌레의 수를 세어 플레이트에 놓았던 20~40마리의 임신한 벌레가 모두 제거되었는지 확인하십시오.
- 알이 담긴 플레이트를 다음 조건에서 배양하십시오. 20 °C 스트레스 분석을 위해 벌레가 L4 후기 단계에 도달할 때까지 배양합니다. 성체 연령 및 생식 상태의 차이로 인해 발생하는 변동성을 최소화하기 위해 벌레를 L4 단계로 동기화하십시오.12,35,37,38,40,42,43. At 20 °C선충이 균일하게 동기화된 L4 후기 단계에 도달합니다. 야생형 균주의 알을 고체 한천 배지에 산란시킨 후 약 54~58시간이 지났을 때(당사의 관찰 및 36,40).
참고: 발달 지연 계통의 경우, 해당 계통의 구체적인 발달 속도에 맞추어 L4 후기 단계로의 동기화 시점을 조정하십시오.
주의: 취급 시 주의사항 C. elegans 적절한 미생물학적 실무 지침을 준수하고, 생물학적 물질에 대한 노출을 최소화하며 오염을 방지하기 위해 실험복과 장갑을 착용하십시오.
3. 스트레스 조건 및 데이터 수집
- 열 스트레스 분석
이 섹션의 워크플로는 다음에서 요약되어 있습니다. 그림 1B.- 벌레를 후기 L4 단계로 동기화하고(섹션 2), 다음 조건에서 유지하십시오. 20 °C동기화된 L4 단계의 벌레를 OP50이 도말된 35mm NGM 플레이트(섹션 1)로 옮깁니다. 이때 그룹당 4개의 플레이트를 기술적 반복(technical replicates)으로 사용하며, 플레이트당 30~35마리의 벌레를 배치합니다. 생물학적 반복(biological replicates) 설정은 섹션 4를 참조하십시오.
- 후기 L4 단계의 벌레가 들어 있는 플레이트를 30, 35 또는 37 °C 인큐베이터. 분석 대상-웜이 담긴 플레이트를 넣기 전에 인큐베이터가 설정 온도에 도달했는지 확인하십시오. 30, 35 또는 _(이하 생략)_ 도 조건에서 야생형-웜의 평균 생존율은... 37 °C 약 4시간에서 3일 사이입니다 (그림 2B–D) 생리학적 비스트레스 상태의 평균 생존 기간인 약 20일에 비해 (그림 2A).
중요 단계: 모든 분석 플레이트를 한 층으로 겹치지 않게 하여 배지 면이 아래로 향하도록 하여 다음 위치에 놓으십시오. 35 °C 빠르고 균일한 온도 평형을 위해 인큐베이터에 넣습니다.
참고: 30, 35 또는 37 °C대부분의 벌레는 알을 낳지 않습니다. 드물게 알을 낳는 경우에도, 부화하는 알은 관찰되지 않습니다. 따라서 벌레를 새 플레이트로 옮길 필요는 없습니다. - 각 기술적 반복 실험 플레이트의 시간대별 사멸한 벌레 수를 측정하여 측정 데이터 시트에 기록한다. 벌레의 생존 여부는 매 시간 다음 조건 하에 측정한다. 35 °C 또는 37 °C 열 스트레스 및 1일 1회 투여 하에 30 °C 열 스트레스. 점수 산정은 실온에서 해부 현미경을 사용하여 수행한다. 점수 산정 시에는 검사 중인 플레이트만 인큐베이터에서 꺼내며, 열 스트레스 노출의 중단을 최소화하기 위해 나머지 모든 플레이트는 지정된 열 스트레스 온도에 유지해야 한다. 이러한 방식은 모든 시료에 대해 일관된 실험 조건을 유지하는 데 도움이 된다.
중요 단계: 열 스트레스 노출의 중단을 최소화하기 위해, 각 판정 세션 동안 각 플레이트를 인큐베이터 밖으로 꺼내 두는 시간을 3분 이내로 유지하십시오. 스트레스 분석 중 각 시점에서의 벌레 생존율에 따라, 실온에서 플레이트 하나를 판정하는 데는 보통 약 30초에서 3분이 소요됩니다. 수동 판정에 소요되는 시간을 고려할 때 판정 순서가 중요합니다. 모든 조건의 모든 기술적 반복 시료가 완료될 때까지, 각 조건에서 기술적 반복 시료를 하나씩 순차적으로 판정하는 방식을 권장합니다. 예를 들어, 4개의 기술적 반복 플레이트가 있는 3가지 조건/그룹(A, B, C)의 경우, 판정 순서를 A1, B1, C1 순으로 배치하십시오. → A2, B2, C2 → A3, B3, C3 → A4, B4, C4. - 다음 기준에 따라 벌레의 생존 여부를 평가하십시오. 부드러운 물리적 자극에 대한 움직임 반응이 관찰되는지 확인합니다. 활발하게 움직이는 벌레는 살아 있는 것으로 판정하며, 이때는 물리적 자극이 필요하지 않습니다. 자발적인 움직임을 보이지 않는 벌레의 경우, 백금 와이어 픽으로 몸의 후방 부위를 두 번 가볍게 터치하여 자극을 줍니다. 움직임 반응이 없으면 사망한 것으로 기록하고, 해당 벌레는 기록 후 플레이트에서 제거합니다. 터치 후 약 2초 동안 관찰하는 것으로 움직임 반응 여부를 판단하기에 충분합니다. 계수 중 생존 및 사망 벌레 수를 기록하고 계수 오류를 줄이기 위해 수동 계수기를 사용하는 것을 권장합니다. 모든 벌레가 중복 없이 한 번씩만 계수되도록 플레이트 아래에 격자무늬 투명 플라스틱 시트를 놓거나, 플레이트 바닥에 격자를 그려 구역을 나누어 계수합니다.
주의: 점수 기록(scoring) 직후 플레이트를 열 조건 배양기에 즉시 다시 넣으십시오. - 모든 개체가 사망하거나 사전 정의된 기준에 따라 중도 절단될 때까지 정기적인 간격으로 벌레의 생존 여부를 모니터링하십시오. 기록된 생존 데이터를 수집하고, 이를 사용하여 후속 분석을 위한 생존 곡선을 생성하십시오.
- ER 스트레스 분석법
이 섹션의 워크플로우는 다음의 내용으로 요약됩니다. 그림 1C.- ER 스트레스 분석용 배지 플레이트를 제작합니다. 투니카마이신(tunicamycin) 스탁 용액(디메틸설폭사이드(DMSO) 내 10 mg/mL, –에 보관)을 추가합니다.20 °C)를 액체 NGM 배지(섹션 1.1.2 참조)에 첨가하여 최종 농도가 25, 50, 100 또는 200 µg/mL예를 들어, ER 스트레스 분석 배지 1 L에 튜니카마이신 스톡 용액(DMSO 내 10 mg/mL) 2.5, 5, 10 또는 20 mL를 첨가하여 최종 농도를 25, 50, 100 또는 200 µg/mL 배지 플레이트에 tunicamycin을 첨가한다. 분석에 미처리 대조군이 포함된 경우, 해당 대조군 배지에 동일한 양의 DMSO(2.5, 5, 10 또는 20 mL)를 첨가한다.
중요 단계: 오토클레이브 멸균한 NGM 배지를 약 다음 온도까지 냉각하십시오. 55 °C 교반하면서 튜니카마이신(tunicamycin)을 원하는 최종 농도가 되도록 첨가한다. 충분히 혼합한 후, 튜니카마이신이 포함된 NGM 배지 3 mL를 각 35mm 플레이트에 붓는다. 각 35mm 한천 플레이트에 다음을 접종한다. 100 µL OP50 박테리아(섹션 1.2). 튜니카마이신(tunicamycin)이 포함된 OP50 접종 NGM 플레이트는 다음과 같이 보관할 수 있습니다. 4 °C 사용 전 최대 일주일 동안 보관하십시오.
주의: Tunicamycin은 위험 물질이므로 실험복, 장갑 및 보안경을 착용한 상태에서 화학 흄 후드 내에서 취급해야 합니다. 흡입 및 피부나 눈으로의 접촉을 피하십시오. - 웜을 L4 후기 단계로 동기화하고(섹션 2), 다음 조건에서 유지하십시오. 20 °C동기화된 L4 단계의 벌레를 tunicamycin이 포함되어 있고 OP50이 도말된 35 mm NGM 플레이트로 옮긴다. 이때 그룹당 4개의 플레이트를 기술적 반복(technical replicates)으로 사용하며, 플레이트당 30~35마리의 벌레를 배치한다. 생물학적 반복(biological replicates) 설정은 섹션 4를 참조한다.
- 모든 플레이트를 다음 조건에서 배양하십시오. 20 °C매일 죽은 벌레의 수를 기록하십시오. 25, 50, 100 또는 __의 조건에서 야생형 벌레의 평균 생존율은 200 µg/mL tunicamycin의 범위는 약 8일에서 11일 사이입니다 (그림 2E,F) 생리학적 스트레스가 없는 상태에서의 평균 생존 기간인 약 20일에 비해 (그림 2A).
참고: tunicamycin으로 유도된 ER 스트레스 분석 시, tunicamycin이 포함된 한천 배지에서 알이 산란되지만 부화하지는 않습니다. 따라서 웜을 새로운 배지로 옮길 필요는 없습니다. - 매일 각 기술적 반복(technical replicate) 플레이트 내 사멸한 벌레의 수를 측정하고, 이를 기록지에 작성하십시오. 측정은 실험대 위 실온에서 해부 현미경을 사용하여 수동으로 수행합니다. 활발하게 움직이는 벌레는 생존한 것으로 판정하며, 별도의 물리적 자극은 필요하지 않습니다. 자발적인 움직임이 없는 벌레의 경우, 백금선 픽(platinum wire pick)으로 몸의 후방 부위를 두 번 가볍게 자극하십시오. 자극에 반응이 없으면 사멸한 것으로 기록하고, 기록 후 해당 벌레를 플레이트에서 제거합니다. 정확한 계수를 위해 수동 계수기(hand tally counter) 사용을 권장합니다. 모든 벌레를 중복 없이 한 번씩만 세기 위해, 플레이트 아래에 격자무늬의 투명 플라스틱 시트를 배치하거나 플레이트 바닥에 격자를 그려 구역을 나누어 계수하십시오.
참고: 점수 산정(scoring) 직후 플레이트를 즉시 배양기로 옮기십시오. 다음 점수 산정 전까지 벌레를 약 24시간 동안 배양기 내에 유지하십시오. - 모든 개체가 사망하거나 사전 정의된 기준에 따라 제외될 때까지 매일 벌레의 생존 여부를 모니터링하십시오. 기록된 생존 데이터를 취합하여 이후 분석을 위한 생존 곡선을 생성하십시오.
- ER 스트레스 분석용 배지 플레이트를 제작합니다. 투니카마이신(tunicamycin) 스탁 용액(디메틸설폭사이드(DMSO) 내 10 mg/mL, –에 보관)을 추가합니다.20 °C)를 액체 NGM 배지(섹션 1.1.2 참조)에 첨가하여 최종 농도가 25, 50, 100 또는 200 µg/mL예를 들어, ER 스트레스 분석 배지 1 L에 튜니카마이신 스톡 용액(DMSO 내 10 mg/mL) 2.5, 5, 10 또는 20 mL를 첨가하여 최종 농도를 25, 50, 100 또는 200 µg/mL 배지 플레이트에 tunicamycin을 첨가한다. 분석에 미처리 대조군이 포함된 경우, 해당 대조군 배지에 동일한 양의 DMSO(2.5, 5, 10 또는 20 mL)를 첨가한다.
- 미토콘드리아 스트레스 분석
본 섹션의 워크플로를 요약하면 다음과 같습니다. 그림 1D.- 미토콘드리아 스트레스 분석 배지 플레이트를 제작합니다. antimycin A 스톡 용액(DMSO 내 5 mg/mL, –에서 보관)을 추가합니다.20 °C)을 액상 NGM 배지(섹션 1.1.2 참조)에 넣어 최종 농도가 5, 10, 20, 40 또는 80 µg/mL예를 들어, 미토콘드리아 스트레스 분석 배지 1L에 antimycin A 스톡 솔루션(DMSO 내 5mg/mL)을 1, 2, 4, 8 또는 16mL 첨가합니다. 최종 농도가 5, 10, 20, 40 또는 80 µg/mL 배지 플레이트에 antimycin A를 첨가합니다. 분석에 무처리 대조군이 포함된 경우, 해당 대조군 배지에 동일한 양의 DMSO(1, 2, 4, 8 또는 16 mL)를 첨가합니다.
중요 단계: 오토클레이브 처리한 NGM 배지를 약 55 °C 교반하면서 antimycin A를 원하는 최종 농도가 되도록 첨가합니다. 충분히 혼합한 후, antimycin A가 포함된 NGM 배지 3 mL를 각 35 mm 플레이트에 붓습니다. 각 35 mm 한천 플레이트에 다음을 접종합니다. 100 µL OP50 박테리아(섹션 1.2). antimycin A가 포함된 OP50 도말 NGM 플레이트는 다음 조건에서 보관할 수 있습니다. 4 °C 사용 전 최대 1주일까지 보관하십시오.
주의: Antimycin A는 위험 물질이므로 실험복, 적절한 장갑 및 보안경을 착용한 상태에서 화학 흄 후드 내에서 취급해야 합니다. 흡입 및 피부나 눈과의 접촉을 피하십시오. - 벌레를 L4 후기 단계로 동기화하고(섹션 2), 다음 조건에서 유지하십시오. 20 °C동기화된 L4 단계의 벌레를 antimycin A가 포함된 35mm OP50 도말 NGM 플레이트로 옮깁니다. 그룹당 4개의 플레이트를 기술적 반복구로 사용하며, 플레이트당 30~35마리의 벌레를 배치합니다. 생물학적 반복구 설정은 섹션 4를 참조하십시오.
- 모든 플레이트를 다음 조건에서 배양하십시오. 20 °C매일 죽은 벌레의 수를 기록하십시오.
중요 단계: 알의 부화 및 유충 발달 문제로 인해, 초기 10일 동안은 2일마다 웜(worm)을 새로운 플레이트로 옮겨주십시오. 플레이트에서 더 이상 새로운 유충이나 알이 관찰되지 않을 때 전이를 중단하십시오. 모든 기술적 반복구(technical replicates)는 동일한 횟수로 전이되어야 합니다. 예를 들어, 단 하나의 플레이트만 전이가 필요한 경우에도 해당 생물학적 반복구(biological replicate) 내의 모든 플레이트를 동시에 전이해야 합니다. 5, 10, 20, 40 또는 다음 조건에서 야생형 웜의 평균 생존율은... 80 µg/mL antimycin A의 범위는 약 1.5일에서 5일 사이입니다 (그림 2G,H) 생리적 스트레스가 없는 상태의 평균 생존 기간인 약 20일과 비교하여 (그림 2A).
참고: Antimycin A 유도 미토콘드리아 스트레스 분석법에서는 처음 10일 동안 2일마다 벌레를 새 플레이트로 옮겨주어야 합니다. 이는 과밀 및 기아 상태를 방지하고, 실험 대상 벌레와 그 후손을 구분하기 위해 수행합니다. - 매일 각 기술 반복(technical replicate) 플레이트의 죽은 벌레 수를 측정하여 측정 데이터 시트에 기록하십시오. 측정은 실온의 벤치 위에서 해부 현미경을 사용하여 수동으로 수행합니다. 활발하게 움직이는 벌레는 살아있는 것으로 측정하며, 별도의 물리적 자극은 필요하지 않습니다. 자발적인 움직임을 보이지 않는 벌레의 경우, 백금선 픽(platinum wire pick)으로 몸의 후방 부위를 두 번 가볍게 터치하여 자극하십시오. 반응이 없는 경우 죽은 것으로 기록하고, 기록 후 해당 벌레를 플레이트에서 제거합니다. 정확한 계수를 위해 수동 계수기(hand tally counter) 사용을 권장합니다. 모든 벌레를 중복 없이 한 번씩만 측정하기 위해, 플레이트 아래에 격자가 그려진 투명 플라스틱 시트를 배치하거나 격자를 그리십시오. 계수를 위해 플레이트를 격자 구역으로 나누기 위해 플레이트 바닥면에 표시합니다.
참고: 점수 산정(scoring) 직후에 벌레를 즉시 배양기로 옮기십시오. 다음 점수 산정 전까지 벌레를 약 24시간 동안 배양기에 보관하십시오. - 모든 개체가 사망하거나 사전 정의된 기준에 따라 제외될 때까지 매일 벌레의 생존 여부를 모니터링하십시오. 기록된 생존 데이터를 수집하여 이후 분석을 위한 생존 곡선을 작성하십시오.
- 미토콘드리아 스트레스 분석 배지 플레이트를 제작합니다. antimycin A 스톡 용액(DMSO 내 5 mg/mL, –에서 보관)을 추가합니다.20 °C)을 액상 NGM 배지(섹션 1.1.2 참조)에 넣어 최종 농도가 5, 10, 20, 40 또는 80 µg/mL예를 들어, 미토콘드리아 스트레스 분석 배지 1L에 antimycin A 스톡 솔루션(DMSO 내 5mg/mL)을 1, 2, 4, 8 또는 16mL 첨가합니다. 최종 농도가 5, 10, 20, 40 또는 80 µg/mL 배지 플레이트에 antimycin A를 첨가합니다. 분석에 무처리 대조군이 포함된 경우, 해당 대조군 배지에 동일한 양의 DMSO(1, 2, 4, 8 또는 16 mL)를 첨가합니다.
- 산화 스트레스 분석
본 섹션의 워크플로우는 다음과 같이 요약됩니다. 그림 1E.- 산화적 스트레스 분석용 배지 플레이트를 제작합니다. 파라콰트(paraquat) 스톡 용액(ddH2O에 0.5 M)을 추가하십시오.2O, –에 보관된20 °C)를 액체 NGM 배지(섹션 1.1.2 참조)에 첨가하여 최종 농도가 2.5, 5, 10 또는 20 mM이 되도록 합니다.
핵심 단계: 오토클레이브 처리한 NGM 배지를 약 다음 온도까지 식힙니다. 55 °C 교반하면서 파라콰트(paraquat)를 원하는 최종 농도가 되도록 첨가한다. NGM 배지와 파라콰트 혼합액을 35mm 플레이트에 3mL씩 붓기 전 충분히 섞어준다. 각 35mm 한천 플레이트에 다음을 접종한다. 100 µL OP50 박테리아(섹션 1.2). OP50 박테리아는 분석 시간 2~3일 전에 파종할 수 있다. 파라콰트가 포함된 OP50 파종 NGM 플레이트는 다음과 같이 보관할 수 있다. 4 °C 사용 전까지 최대 1주일 동안 보관하십시오.
주의: Paraquat는 독성이 매우 강하므로 반드시 적절한 장갑, 실험복 및 보안경을 착용하고 화학 흄 후드 내에서 취급해야 합니다. 흡입, 섭취 및 피부 또는 눈과의 접촉을 피하십시오. - 웜을 L4 후기 단계로 동기화하고(섹션 2), 다음 조건에서 유지하십시오. 20 °C동기화된 L4 단계의 벌레를 파라쿼트(paraquat)가 포함되고 OP50이 도말된 35 mm NGM 플레이트로 옮깁니다. 이때 그룹당 4개의 플레이트를 기술적 반복(technical replicates)으로 사용하며, 플레이트당 30~35마리의 벌레를 배치합니다. 생물학적 반복(biological replicates) 설정은 섹션 4를 참조하십시오.
- 모든 플레이트를 다음 조건에서 배양하십시오. 20 °C매일 죽은 벌레의 수를 기록하십시오. 2.5, 5, 10 또는 20 mM 파라콰트(paraquat) 조건에서 야생형 벌레의 평균 생존 기간은 약 2.5일에서 5일 사이입니다 (그림 2I,J), 이는 생리학적 스트레스가 없는 상태에서의 평균 생존 기간인 약 20일과 비교하여 (그림 2A).
참고: 파라콰트(paraquat) 유도 산화 스트레스 분석 시, 벌레를 새로운 플레이트로 옮길 필요는 없습니다. 파라콰트 플레이트에는 소수의 유충만 존재하며, 분석 전 과정 동안 L2 단계 또는 그 이전의 발달 단계에서 성장이 정지됩니다. 이들은 동기화된 코호트의 식별을 방해하거나 기아 상태를 유발하지 않습니다. 벌레를 옮기는 과정에서 발생할 수 있는 물리적 스트레스를 고려하여, 분석 중에 벌레를 옮기는 것은 권장되지 않습니다. - 매일 각 기술 반복(technical replicate) 플레이트에서 죽은 벌레의 수를 측정하여 스코어링 데이터 시트에 기록하십시오. 스코어링은 실온의 벤치 위에서 해부 현미경을 사용하여 수동으로 수행합니다. 활발하게 움직이는 벌레는 살아있는 것으로 판정하며, 별도의 물리적 자극은 필요하지 않습니다. 자발적인 움직임을 보이지 않는 벌레의 경우, 백금 와이어 픽으로 몸의 후방 부위를 두 번 가볍게 건드려 자극하십시오. 반응이 없는 경우 죽은 것으로 기록하고, 기록 후 해당 벌레를 플레이트에서 제거합니다. 정확한 계수를 위해 수동 계수기(tally counter) 사용을 권장합니다. 모든 벌레를 누락이나 중복 없이 한 번씩만 세기 위해, 플레이트 아래에 격자무늬의 투명 플라스틱 시트를 배치하거나 플레이트 바닥에 격자를 그려 구역을 나누어 계수하십시오.
참고: 점수 측정 직후에 벌레들을 즉시 배양기에 넣으십시오. 다음 점수 측정 전까지 약 24시간 동안 벌레들을 배양기에 보관하십시오. - 모든 개체가 사망하거나 미리 정의된 기준에 따라 중도 절단될 때까지 매일 벌레의 생존 여부를 모니터링하십시오. 기록된 생존 데이터를 수집하고, 이를 사용하여 후속 분석을 위한 생존 곡선을 생성하십시오.
- 산화적 스트레스 분석용 배지 플레이트를 제작합니다. 파라콰트(paraquat) 스톡 용액(ddH2O에 0.5 M)을 추가하십시오.2O, –에 보관된20 °C)를 액체 NGM 배지(섹션 1.1.2 참조)에 첨가하여 최종 농도가 2.5, 5, 10 또는 20 mM이 되도록 합니다.
4. 데이터 분석
- 각 시점마다 각 기술적 반복 플레이트에서 죽은 벌레의 수를 기록한다. 사망 데이터는 시점(스트레스 조건 개시 후 시간 또는 일수), 실험군(서로 다른 균주 또는 서로 다른 처리 조건), 그리고 기술적 반복(플레이트 1, 2, 3 또는 4)별로 정리된 기록지에 기록한다. 각 측정 간격(분석에 따라 시간별 또는 일별)마다 각 플레이트의 죽은 벌레 수를 별도로 기록하고, 분석이 완료될 때까지 누적 사망률을 추적한다.
- 각 측정 시점의 사망 데이터를 OASIS 2 (online application for survival analysis 2)44에 입력하여 Kaplan–Meier 생존 곡선을 생성하고 log-rank 통계 분석을 수행한다. 또는, 개별 시점의 죽은 벌레 비율을 백분율로 계산하여 사망률을 산출하고, 비쌍체 꼬리 양측 Student's t-test (두 그룹의 경우) 또는 one-way ANOVA 후 Tukey's 다중 비교 검정 (세 그룹 이상의 경우)을 사용하여 그룹 간에 비교할 수 있다.
참고: 전신 파열 또는 모체 내 부화(bagging) 현상을 보이는 벌레는 전체 생존율을 반영하기 위해 관찰된 시점에 사망한 것으로 기록한다. 아래의 대표 결과에 제시된 생존 곡선에는 파열된 벌레와 bagging된 벌레가 포함되었다. 각 조건별 검열된 벌레의 수는 Supplementary Table 1. 에 기록되었다. 분석 플레이트에서 탈출하거나, 플레이트 벽면에서 건조되었거나, 측정 중 분실된 벌레는 검열된 관찰값으로 처리하여 이후 생존 분석에서 제외한다. 움직임이 저하되었으나 가벼운 접촉에 반응을 보이는 동물은 생존한 것으로 기록한다. 분석 시작 전 산란 결함이 나타난 벌레는 생존 분석에서 제외한다. - 모든 스트레스 분석은 서로 다른 날에 수행된 최소 3회의 독립적인 생물학적 반복 실험으로 진행한다. 각 생물학적 반복은 벌레가 들어있는 4개의 기술적 반복 플레이트로 구성된다. 하나의 생물학적 반복 내에 있는 기술적 반복 데이터는 통합하여 하나의 생존 곡선을 생성한다. 독립적인 생물학적 반복은 별도로 분석하며, 통합하지 않고 개별 데이터 세트로 제시한다. 각 생물학적 반복은 독립적으로 준비된 배지와 새로 제조한 스트레스 유도 화합물을 사용하여 수행한다. 위에 설명된 프로토콜은 각 스트레스 분석에 대해 하나의 생물학적 반복을 생성하는 단계들이다. 수컷은 제외하며, 본 프로토콜에서는 자웅동체만을 포함하여 분석한다.
참고: 본 프로토콜에서 인큐베이터의 습도는 제어하지 않으나, 인큐베이터 온도는 실험 온도에 맞춰 엄격하게 제어한다. 여기에 보고된 실험들은 블라인드 조건에서 수행되지 않았으며, 실험자는 측정 중에 유전형과 처리 조건을 인지하고 있었다. 잠재적인 측정 편향을 최소화하기 위해 가능한 경우 유전형과 처리 조건에 대한 블라인드 처리를 권장한다.
결과
위에서 설명한 프로토콜을 사용하여, 먼저 야생형(WT) N2 웜을 이용해 열, 소포체(ER), 미토콘드리아 및 산화 스트레스의 네 가지 모든 스트레스 요인에 대해 농도를 점진적으로 높였을 때의 웜 생존율을 조사하였습니다. 이어서 뉴런 절제 변이주를 사용하여 야생형(WT) 웜과 비교하여 스트레스 내성에서 중간뉴런 RIC의 역할을 테스트하였습니다.
RIC 절제 변이체에서의 열 스트레스 용량 적정 및 열 스트레스 저항성 비교
20 °C의 생리적 온도에서, WT 웜의 평균 수명은 20.67일입니다(그림 2A). 섹션 3.1에 제시된 열 스트레스 분석 단계를 따라, 열 스트레스 용량을 높여 30, 35 및 37 °C의 고온 조건에서 WT의 생존율을 측정하였습니다. 데이터 분석 결과, 30 °C에서 WT 웜의 평균 수명은 3.11일이었으며(그림 2B), 35 °C와 37 °C에서는 평균 생존 시간이 각각 5.36 h와 4.89 h로 나타났습니다(그림 2C). 이러한 결과는 고온에서 생존율이 유의미하게 감소했음을 나타냅니다. 통계 분석 및 P 값은 보충 표 2와 그림 범례에 자세히 제시되어 있습니다. 이 데이터는 연구자가 열 스트레스 분석을 설계할 때 최적의 스트레스 온도와 시간 척도를 선택하는 데 유용한 정보를 제공합니다. 연구자는 며칠에 걸쳐 웜의 생존을 조사하려면 30 °C를 사용할 수 있으며, 수 시간 내에 웜의 생존 여부를 빠르게 평가하려면 35 °C 또는 37 °C를 사용할 수 있습니다.
다음으로, WT 동물과 비교하여 RIC 뉴런 제거가 생존에 미치는 영향을 평가하기 위해 35 °C를 열 스트레스 조건으로 사용하였습니다. 이 온도는 중간 수준의 열 스트레스를 제공하여 37 °C의 극심한 심각성을 피하는 동시에 30 °C보다 더 강력한 반응을 유도하며, 약 12 h 이내에 생존 분석을 완료할 수 있게 합니다.
RIC 뉴런은 C. elegans의 머리 영역에 위치한 한 쌍의 옥토파민성 중간뉴런입니다9,10. RIC 뉴런이 제거된 균주는 tbh-1 유전자 프로모터에 의해 구동되는 caspase-3 유전자를 발현시켜 생성되었으며, 이전에 사용된 바 있습니다45. 간단히 설명하면, mec-18 프로모터를 대체하기 위해 tbh-1 프로모터를 mec-18p::caspase-3 (p12)::nz 및 mec-18p cz::caspase-3 (p17) 공여 플라스미드에 구축하였습니다. RIC 유전적 제거 균주를 생성하기 위해 세 가지 구축물인 tbh-1p::caspase-3(p12)::nz (20 ng/µL), tbh-1p::cz::caspase-3(p17) (20 ng/µL), 그리고 (RIC 뉴런의 제거 여부를 나타내는 RIC 뉴런 마커로서의) tbh-1p::GFP (20 ng/µL)를 형광 공동 주입 마커인 myo-3p::GFP (5 ng/µL)와 함께 야생형 N2 균주에 공동 주입하였습니다. 독립적으로 주입된 세 가지 라인을 RIC 뉴런 제거 균주로 유지하였습니다. 형질전환 라인은 형광 myo-3p::GFP 마커가 있는 벌레를 선택하여 유지하였습니다. 각 스트레스 분석 결과는 두 세 개의 독립적인 라인을 통해 검증되었습니다. RIC 뉴런의 성공적인 제거는 RIC 뉴런 제거 균주에서 tbh-1p::GFP 형광이 관찰되지 않음을 통해 확인되었으며, 반면 tbh-1p::GFP 리포터 대조군 균주의 RIC 뉴런에서는 GFP 발현이 관찰되었습니다(Supplementary Figure 1).
섹션 3.1에 제시된 열 스트레스 분석 단계를 사용하여, WT 및 RIC 뉴런 제거 균주 모두의 생존율을 다음 조건 하에서 조사하였습니다. 35 °C 열 스트레스 (그림 2D). 섹션 4.1~4.3에 제시된 데이터 분석 단계에 따라 분석한 결과, RIC 뉴런이 제거된 계통과 야생형 N2 대조군 사이에 다음 조건 하에서 유의미한 차이가 발견되지 않았음을 보여주었습니다. 35 °C 열 스트레스 (그림 2D).
열 스트레스 분석의 모든 대표 결과는 서로 다른 날에 수행된 3회의 독립적인 생물학적 반복 실험을 통해 도출되었습니다(부록 그림 2). 기여한 동물 수(그림 설명에 n 값으로 표시됨) 대표 결과 및 보충 그림에 제시된 생존 곡선은 단일 생물학적 반복 실험 내 4개 기술적 반복 실험의 통합 수치입니다.
RIC 결손 균주의 ER 스트레스 용량 적정 및 ER 스트레스 저항성 비교
섹션 3.2에 제시된 ER 스트레스 분석 단계를 사용하여, ER 스트레스의 증가하는 용량으로서 25, 50, 100 또는 200 µg/mL의 tunicamycin 하에서 WT의 생존율을 측정하였습니다(그림 2E). 생리적으로 스트레스를 받지 않은 평균 생존 기간인 약 20일(그림 2A)과 비교했을 때, 야생형 웜의 평균 생존 기간은 tunicamycin 25 µg/mL에서 10.74일, 50 µg/mL에서 9.13일, 100 µg/mL에서 9.3일, 200 µg/mL에서 8.93일이었습니다(그림 2E). Tunicamycin의 용량 증가는 이러한 용량 범위 내에서 생존율을 유의미하게 변화시키지 않았습니다. 통계 분석 및 P 값은 보충 표 2 및 그림 범례에 자세히 제시되어 있습니다. 이 데이터는 연구자가 ER 스트레스 분석에서 최적의 tunicamycin 용량을 선택하는 데 신뢰할 수 있는 정보를 제공합니다.
다음으로, RIC 뉴런 절제가 WT 동물과 비교하여 생존에 미치는 영향을 평가하기 위해 테스트된 농도 중 중간 용량인 50 µg/mL tunicamycin을 ER 스트레스 조건으로 사용했습니다. 섹션 3.2에 제시된 ER 스트레스 분석 단계를 사용하여, 50 µg/mL tunicamycin으로 유도된 ER 스트레스 하에서 WT 및 RIC 뉴런 절제 균주의 생존율을 조사했습니다(Figure 2F). 섹션 4.1–4.3에 제시된 데이터 분석 단계를 적용한 결과, RIC 뉴런 절제 균주의 생존 곡선이 WT N2 대조군에 비해 유의미하게 오른쪽으로 이동했으며, 이는 ER 스트레스 하에서 생존 기간이 연장되었음을 나타냅니다. 이 결과는 RIC 뉴런의 절제가 ER 스트레스 저항성을 강화한다는 것을 시사합니다(Figure 2F).
ER 스트레스 분석의 모든 대표 결과는 서로 다른 날에 수행된 3회의 독립적인 생물학적 반복 실험을 통해 도출되었습니다(보충 그림 3). 기여한 동물 수 (그림 범례에 표시된 n 값) 대표 결과 및 보충 그림에 제시된 생존 곡선은 단일 생물학적 반복구 내 4회 기술적 반복구의 통합 수치입니다.
RIC 절제 균주에서 미토콘드리아 스트레스 용량 적정 및 미토콘드리아 스트레스 저항성 비교
섹션 3.3에 제시된 미토콘드리아 스트레스 분석 단계를 사용하여, 5, 10, 20, 40 또는의 조건에서 WT 생존율을 측정하였습니다. 80 µg/mL 미토콘드리아 스트레스 강도를 높이기 위한 항마이신 A(antimycin A) 투여(그림 2G). WT 벌레의 생존 곡선은 용량 의존적인 방식으로 유의미한 변화를 보였습니다. 생리적 스트레스가 없는 상태의 평균 생존 기간인 약 20일과 비교하여 (그림 2A), 야생형 벌레의 평균 생존 기간은 다음 조건에서 4.96일입니다. 5 µg/mL, 3.77일 동안 10 µg/mL, 2.68일 동안 20 µg/mL, 1.65일 동안 40 µg/mL및 1.4일 동안 80 µg/mL antimycin A (그림 2G). 통계 분석 및 P 값들이 상세히 제시되어 있습니다. 부록 표 2 및 도표 범례. 이 데이터는 연구자가 미토콘드리아 스트레스 분석법을 설계할 때 최적의 antimycin A 농도와 시간 척도를 선택할 수 있도록 신뢰할 수 있는 정보를 제공합니다. 연구자는 다음과 같이 선택할 수 있습니다. 5 µg/mL 약 10일 동안 벌레의 생존율을 평가하거나, 며칠 이내에 생존 결과를 얻으려면 더 높은 농도의 antimycin A를 사용하십시오. 고농도에서는 사망이 가속화되고, 저농도에서는 생존율이 더 점진적으로 감소하여 균주 간의 미세한 차이를 더 쉽게 구별할 수 있다는 점에 유의하십시오.
다음으로 저희는 ~을 사용하였습니다. 5 µg/mL 더욱 많은 [결과/반응]을 유발한 antimycin A는 테스트된 농도에 따라 생존율이 점진적으로 감소하였으며, 이는 WT 동물과 비교하여 RIC 뉴런 절제가 생존에 미치는 영향을 평가하기 위한 미토콘드리아 스트레스 조건이었다. 섹션 3.3에 제시된 미토콘드리아 스트레스 분석 단계를 이용하여, 다음의 조건 하에서 WT 및 RIC 절제 균주의 생존율을 조사하였다. 5 µg/mL antimycin A로 유도된 미토콘드리아 스트레스(그림 2H4.1~4.3절에 제시된 데이터 분석 단계를 사용하여 분석한 결과, RIC 뉴런이 제거된 계통의 생존 곡선은 WT N2 대조군에 비해 유의미하게 오른쪽으로 이동했으며, 이는 미토콘드리아 스트레스 하에서 생존 기간이 연장되었음을 나타냅니다. 이 결과는 RIC 뉴런의 제거가 미토콘드리아 스트레스 저항성을 향상시킨다는 점을 시사합니다.그림 2H).
미토콘드리아 스트레스 분석의 모든 대표 결과는 서로 다른 날에 수행된 세 번의 독립적인 생물학적 반복 실험을 통해 얻었습니다 (부록 그림 4). 수치(그림 범례에 표시된 n 값)에 기여하는 동물 수 대표 결과 및 보충 그림에 제시된 생존 곡선은 단일 생물학적 반복구 내 4회 기술적 반복구의 통합 수치입니다.
RIC 절제 균주의 산화적 스트레스 용량 적정 및 산화적 스트레스 저항성 비교
섹션 3.4에 제시된 산화적 스트레스 분석 단계를 사용하여, 산화적 스트레스의 증가 용량인 2.5, 5, 10 또는 20 mM paraquat 조건에서 WT의 생존율을 측정하였습니다(그림 2I). WT 벌레의 생존 곡선은 용량 의존적인 방식으로 유의미한 변화를 보였습니다. 생리학적 스트레스가 없는 상태의 평균 생존 기간인 약 20일(그림 2A)과 비교했을 때, 야생형 벌레의 평균 생존 기간은 2.5 mM에서 4.92일, 5 mM에서 3.81일, 10 mM에서 2.93일, 그리고 20 mM paraquat에서 2.81일이었습니다(그림 2I). 통계 분석 및 P 값은 보충 표 2와 그림 범례에 상세히 제시되어 있습니다. 이 데이터는 연구자가 산화적 스트레스 분석을 설계할 때 최적의 paraquat 용량과 시간 척도를 선택하는 데 신뢰할 수 있는 정보를 제공합니다. 연구자는 약 10일 동안 벌레의 생존을 평가하기 위해 2.5 mM을 선택하거나, 며칠 내에 생존 결과를 얻기 위해 더 높은 paraquat 농도를 사용할 수 있습니다. 고농도(10 mM 및 20 mM)는 사망을 가속화하며, 중간 및 저농도(2.5 mM 및 5 mM)는 생존율의 완만한 감소를 유도하여 균주 간의 미세한 차이를 더 쉽게 구별할 수 있다는 점에 유의하십시오.
다음으로, 테스트한 농도 중 중간 농도인 5 mM paraquat를 산화 스트레스 조건으로 사용하여 WT 동물과 비교하여 RIC 뉴런 절제가 생존에 미치는 영향을 평가하였습니다. 섹션 3.4에 제시된 산화 스트레스 분석 단계를 사용하여, 5 mM paraquat로 유도된 산화 스트레스 하에서 WT와 RIC 뉴런이 절제된 균주의 생존율을 조사하였습니다(그림 2J). 섹션 4.1-4.3에 제시된 데이터 분석 단계를 적용한 결과, 5 mM paraquat로 유도된 산화 스트레스 하에서 RIC 뉴런 절제 균주와 야생형 N2 대조군 사이에 유의미한 차이가 발견되지 않았습니다(그림 2J).
산화 스트레스 분석의 모든 대표 결과는 서로 다른 날에 수행된 세 번의 독립적인 생물학적 반복 실험을 통해 도출되었습니다.부록 그림 5). 기여한 동물 수(그림 범례에 표시된 n 값) 대표 결과 및 보충 그림에 제시된 생존 곡선은 단일 생물학적 반복 실험 내 4회의 기술적 반복 실험에서 얻은 통합 수치입니다.
문제 해결
파라콰트(paraquat)로 유도된 산화 스트레스 분석에서 반복적으로 발생하는 문제는 벌레들이 한천 플레이트 밖으로 탈출하여 개체 손실이 발생하고 분석 가능한 벌레 수가 감소한다는 점입니다. 이러한 탈출 행동을 부분적으로 억제하기 위해 분석 플레이트에 팔미트산(palmitic acid) 장벽 또는 다른 "울타리"를 추가할 수 있으나46,47, 개선 효과는 보통 수준이며 문제를 완전히 해결하지는 못합니다. 팔미트산 처리 후 C. elegans의 건강과 수명에는 유의미한 차이가 관찰되지 않았습니다48. 팔미트산 장벽은 NGM 플레이트 상에서 혐오성 "울타리" 역할을 하여 C. elegans가 스트레스, 기아 또는 병원균으로 인해 도망치는 것을 방지합니다. 벌레의 탈출을 최소화하려면, 10 mg/mL 팔미트산 -에탄올 용액(100% EtOH 50 mL에 팔미트산 0.5 g 첨가) 30 µL를 35 mm 분석 플레이트의 가장자리에 도포한 후, 플레이트를 가볍게 돌려 연속적인 링을 형성합니다. 에탄올이 증발하면 팔미트산 링이 벌레의 탈출을 줄이는 물리적 및 화학적 장벽 역할을 합니다. 팔미트산 링과 접촉한 상태에서 죽은 벌레들은 검열 데이터로 처리하여 생존 분석에서 제외합니다.
주의: 팔미트산 및 그 용액은 장갑, 실험복, 보안경을 포함한 적절한 실험실 개인 보호 장구(PPE)를 착용하여 취급해야 하며, 피부 및 눈에 닿지 않도록 주의해야 합니다.
데이터 가용성
그림 2와 보충 그림의 근거가 되는 생존 데이터(모든 생물학적 반복 실험 데이터 및 통계 결과 포함)는 보충 그림 1–5, 보충 표 1–2 및 보충 파일 1에 수록되어 있습니다.
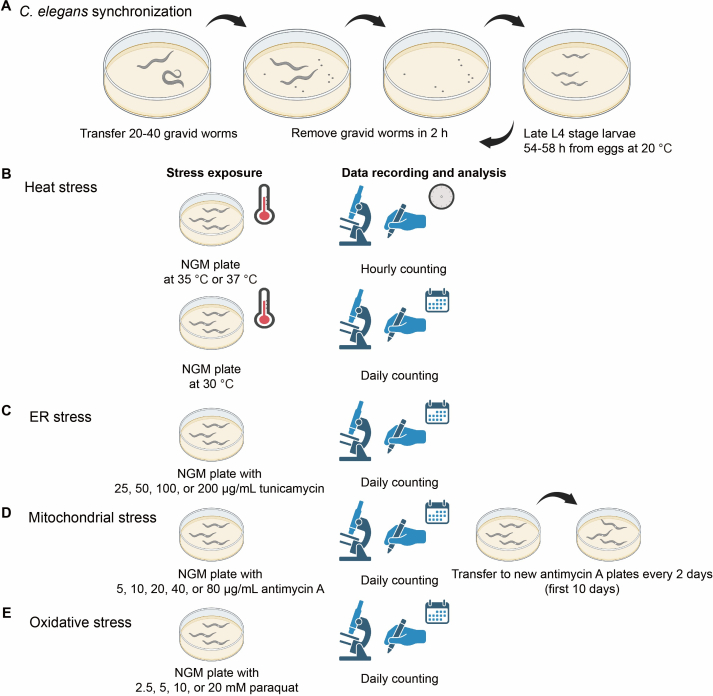
그림 1: 스트레스 분석 워크플로. (A) 임신한 벌레로부터 2시간 이내에 산란된 알을 수집하여 동기화된 벌레를 얻습니다. 모든 스트레스 분석에는 동기화된 벌레가 사용되며, 20 °C에서 알 상태로 54-58시간 동안 발달한 후 L4 후기 단계에서 스트레스 플레이트 또는 조건으로 옮깁니다 (B) 열 스트레스 분석에서는 동기화된 벌레를 35 °C 또는 37 °C 인큐베이터 내의 NGM 플레이트로 옮기고, 죽은 벌레의 수를 매시간 측정합니다. 30 °C 인큐베이터에서의 열 스트레스 분석의 경우, 죽은 벌레의 수를 매일 측정합니다. (C) ER 스트레스 분석에서는 동기화된 벌레를 25, 50, 100 또는 200 µg/mL tunicamycin이 포함된 NGM 플레이트로 옮깁니다. 죽은 벌레의 수를 매일 측정합니다. (D) 미토콘드리아 스트레스 분석에서는 동기화된 벌레를 5, 10, 20, 40 또는 80 µg/mL antimycin A가 포함된 NGM 플레이트로 옮기고, 매일 측정을 통해 생존율을 평가합니다. 자손으로 인한 간섭을 방지하기 위해, 분석 시작 후 첫 10일 동안 이틀마다 벌레를 새로운 antimycin A 함유 플레이트로 옮깁니다. (E) 산화 스트레스 분석에서는 동기화된 벌레를 2.5, 5, 10 또는 20 mM paraquat이 포함된 NGM 플레이트로 옮기고, 매일 측정을 통해 생존율을 평가합니다. 스트레스 저항성은 각 분석에서 생성된 Kaplan–Meier 생존 곡선을 비교하여 평가합니다. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
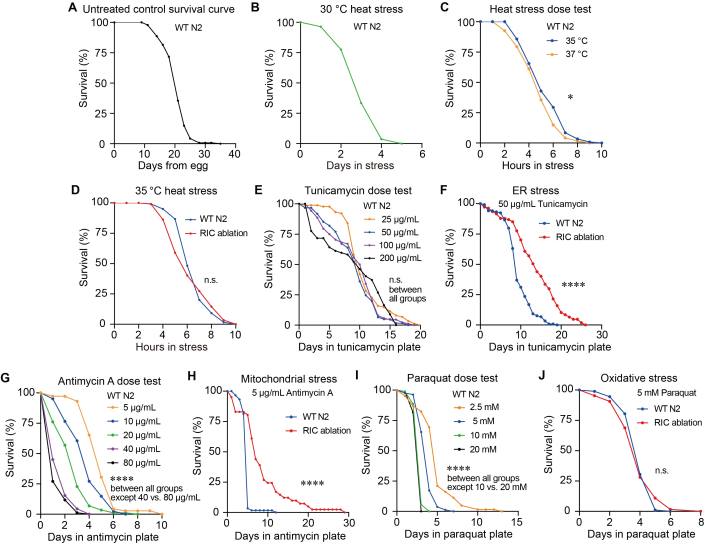
그림 2열, 소포체, 미토콘드리아 및 산화 스트레스 용량 적정 및 RIC 뉴런 제거 모델에서의 스트레스 저항성 비교 균주 (A) 비스트레스 조건 하의 WT N2 균주의 대표적인 Kaplan-Meier 생존 곡선(n = 141, 평균 생존 기간 = 20.67일).B) 대표 예시 WT N2 균주의 Kaplan-Meier 생존 곡선 30 °C 열 스트레스(n = 111, 평균 생존 기간 = 3.11일). (C) WT N2 균주의 대표적인 Kaplan–Meier 생존 곡선 35 °C 및 37 °C 열 스트레스 (n = 119, 121); 로그 순위 검정, P = 0.0244, *은 다음을 나타냅니다 P < 0.05. (D) WT N2 및 RIC 뉴런 제거 균주의 대표적인 Kaplan-Meier 생존 곡선 35 °C 열 스트레스 (n = 117, 120); 로그-순위 검정(log-rank test), P = 0.4972, n.s.는 유의미한 차이가 없음을 나타낸다. WT N2를 대조군으로 사용하였다. (E) 튜니카마이신(tunicamycin) 처리 농도 증가에 따른 WT N2 균주의 용량-반응 생존 곡선 (n = 88, 61, 88, 67); 로그-순위 검정(log-rank test), P = 0.6472 (25 µg/mL 대비 100 µg/mL), P = 0.1473 (25 µg/mL 대조 50 µg/mL), P = 0.6581 (50 µg/mL 대조하여 200 µg/mL), P = 1 (25 µg/mL ~ 대비 200 µg/mL; 50 µg/mL 대(對) 100 µg/mL; 100 µg/mL 대비 200 µg/mL), n.s.는 유의미한 차이가 없음을 나타냄. (F) WT N2 및 RIC의 대표적인 Kaplan–Meier 생존 곡선 뉴런이 제거된 계통 하의 50 µg/mL tunicamycin으로 유도된 ER 스트레스 (n = 119, 107); 로그 순위 검정, ****은 다음을 나타냄 P < 0.0001. (G) 안티마이신 A(antimycin A)의 농도를 증가시켜 처리한 WT N2 균주의 대표적인 카플란-마이어(Kaplan–Meier) 생존 곡선(n = 72, 81, 88, 91, 85); 로그 순위법(log-rank test), P = 0.000038 (5 µg/mL 대비 10 µg/mL), P = 0.00002 (10 µg/mL 대비 20 µg/mL), P = 1.60 × 10⁻8 (20 µg/mL 대비 40 µg/mL), P < 0.0001 (5 µg/mL 대비 20 µg/mL; 5 µg/mL 대비 40 µg/mL; 5 µg/mL 대비 80 µg/mL; 10 µg/mL 대비 40 µg/mL; 10 µg/mL 대비 80 µg/mL; 또는 20 µg/mL 대비 80 µg/mL), P = 0.189 (40 µg/mL ~와 대비하여 80 µg/mL), ****는 다음을 나타냅니다. P < 0.0001. (H) WT N2 및 RIC 뉴런 제거 균주의 대표적인 Kaplan-Meier 생존 곡선 5 µg/mL antimycin A-유도 미토콘드리아 스트레스 (n = 59, 41); 로그 순위 검정, P = 3.2 × 10⁻9, ****은(는) 다음을 나타냅니다. P < 0.0001. (I) 다양한 농도의 파라콰트(paraquat) 처리 하에서의 WT N2 균주 대표 Kaplan-Meier 생존 곡선(n = 62, 81, 88, 93); 로그 순위 검정(log-rank test), P = 1.80 × 10⁻7 (2.5 mM 대 5 mM), P < 0.0001 (2.5 mM 대 10 mM; 2.5 mM 대 20 mM; 5 mM 대 10 mM; 5 mM 대 20 mM), P = 0.1445 (10 mM 대 20 mM), ****는 다음을 나타냅니다. P < 0.0001. (J) 5 mM 파라콰트(paraquat)로 유도된 산화 스트레스 조건 하에서의 WT N2 및 RIC 뉴런 절제 균주의 대표적인 카플란-마이어(Kaplan–Meier) 생존 곡선 (n = 92, 64); 로그 순위 검정(log-rank test), P = 0.9817, n.s.는 유의미한 차이가 없음을 나타냅니다. 모든 실험은 세 번의 독립적인 생물학적 반복 실험을 통해 수행되었습니다. 이 그림에는 한 번의 생물학적 반복 실험에서 얻은 대표적인 결과가 제시되어 있습니다. 각 생물학적 반복구는 벌레가 포함된 4개의 기술적 반복 플레이트로 구성됩니다. 기여한 동물 수(n) 본 그림의 생존 곡선은 단일 생물학적 반복 실험 내 네 개의 기술적 반복 실험에서 얻은 통합 수치입니다. 독립적인 생물학적 반복 실험들은 통합하지 않고 각각 개별적으로 분석하여 보충 그림 2-5에 개별 데이터 세트로 제시하였습니다. 유의성은 생존 분포를 비교하는 로그 순위 검정(log-rank test)을 사용하여 평가하였습니다. 상세한 통계적 P 기술적 반복 시료 간의 수치, 평균 생존율 및 표준 오차(S. E.)는 보충 표 2에 포함되어 있습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
보충 그림 1: tbh-1p::GFP 리포터 대조군 균주에서는 RIC 뉴런에서 GFP 발현이 관찰되었으나, RIC 뉴런 제거 균주에서는 tbh-1p::GFP 형광이 나타나지 않음. (A) RIC 뉴런 제거 균주 tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP와 tbh-1p::GFP 리포터 대조군 균주 OH16150 tbh-1p::GFP; tdc-1p::mCherry의 형광 이미지. L4 후기 단계의 벌레를 488 nm 들뜸 파장으로 촬영하였으며, GFP 채널의 노출 시간은 800 ms, 명시야 채널의 노출 시간은 176 ms로 설정하였다. 노란색 화살표는 대조군 tbh-1p::GFP 리포터 균주 내 RIC 뉴런의 위치 또는 RIC 뉴런 제거 균주에서 소실된 RIC 뉴런의 예상 위치를 나타낸다. RIC 뉴런 제거 균주에서는 RIC 뉴런 위치에서 tbh-1p::GFP 신호가 검출되지 않았으나, tbh-1p::GFP 리포터 대조군 균주 OH16150의 RIC 뉴런에서는 tbh-1p::GFP 신호가 관찰되었다. RIC 뉴런 제거 균주의 체벽 근육 형광은 공동 주입 마커인 myo-3p::GFP에서 기인한 것이다. (A) OH16150 n = 14; RIC 뉴런 제거 균주 n = 20. (B, C) 다른 두 생물학적 반복 실험의 대표적 결과. L4 후기 단계의 벌레를 488 nm 들뜸 파장으로 촬영하였으며, GFP 채널의 노출 시간은 1007 ms(B) 또는 1998 ms(C), 명시야 채널의 노출 시간은 176 ms(B 및 C)로 설정하였다. (B) OH16150 n = 8; RIC 뉴런 제거 균주 n = 17. (C) OH16150 n = 14; RIC 뉴런 제거 균주 n = 13. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 2: 비스트레스 조건 또는 열 스트레스 하에서의 생존 곡선 생물학적 반복 실험 결과. (A, B) 비스트레스 조건에서 두 번의 독립적인 생물학적 반복 실험을 통해 얻은 Kaplan-Meier 생존 곡선. (A) n = 123, 평균 생존 기간 = 20.52 days; (B) n = 130, 평균 생존 기간 = 22.74 days. (C, D) 30 °C 열 스트레스 하에서의 WT N2 균주 Kaplan-Meier 생존 곡선. 데이터는 두 번의 독립적인 생물학적 반복 실험 결과임. (C) n = 130, 평균 생존 기간 = 3.72 days. (D) n = 98, 평균 생존 기간 = 3.77 days. (E, F) 35 °C 또는 37 °C 열 스트레스 조건 하에서의 Kaplan-Meier 생존 곡선. 데이터는 두 번의 독립적인 생물학적 반복 실험 결과임. (E) n = 118, 121; log-rank test, P = 0.0409, *은 P < 0.05를 나타냄, (F) n = 122, 120; log-rank test, P = 0.0251, *은 P < 0.05를 나타냄. (G, H) 35 °C 열 스트레스 조건 하에서의 WT N2 및 RIC 뉴런 제거 균주의 Kaplan-Meier 생존 곡선. 데이터는 두 번의 독립적인 생물학적 반복 실험 결과임. (G) n = 79, 76; log-rank test, P = 0.2217, n.s.는 유의미한 차이가 없음을 나타냄. (H) n = 77, 81; log-rank test, P = 0.1881, n.s.는 유의미한 차이가 없음을 나타냄. 통계적 유의성은 생존 분포를 비교하는 log-rank test를 사용하여 평가하였음. 기술적 반복 실험 간의 상세한 통계적 P 값, 평균 생존 기간 및 S. E.는 보충 표 2에 포함되어 있음. 이 파일을 다운로드하려면 여기를 클릭하십시오.
부록 그림 3: ER 스트레스 조건에서의 생존 곡선 생물학적 반복 실험 결과. (A, B) 다양한 농도의 tunicamycin 처리 하에서의 WT N2 균주 Kaplan-Meier 생존 곡선. 데이터는 두 번의 독립적인 생물학적 반복 실험 결과임. (A) n = 110, 102, 100, 96; (B) n = 88, 77, 75, 69. 서로 다른 그룹 간(A 및 B)의 통계적 P 값은 부록 표 2에 표시되어 있음. (C, D) 50 µg/mL tunicamycin으로 유도된 ER 스트레스 조건 하에서의 WT N2 및 RIC 뉴런 제거 균주의 Kaplan-Meier 생존 곡선. 데이터는 두 번의 독립적인 생물학적 반복 실험 결과임. (C) n = 104, 55; log-rank test, P = 0.012, *은 P < 0.05를 나타냄, (D) n = 85, 109; log-rank test, P = 0.0001, ***은 P < 0.001을 나타냄. 유의성은 생존 분포를 비교하는 log-rank test를 사용하여 평가됨. 기술적 반복 실험 간의 상세한 통계적 P 값, 평균 생존 기간 및 S. E.는 부록 표 2에 포함되어 있음. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 4: 미토콘드리아 스트레스 조건에서의 생존 곡선 생물학적 반복 실험. (A, B) 다양한 농도의 antimycin A 처리 하에서의 WT N2 균주 Kaplan-Meier 생존 곡선. 데이터는 두 번의 독립적인 생물학적 반복 실험 결과임. (A) n = 71, 80, 81, 88, 90. (B) n = 71, 85, 83, 88, 87. 서로 다른 그룹 간의 통계적 P 값(A 및 B)은 보충 표 2에 표시됨. (C, D) antimycin A로 유도된 미토콘드리아 스트레스 하에서의 WT N2 균주 및 RIC 뉴런 제거 균주의 Kaplan-Meier 생존 곡선. 데이터는 두 번의 독립적인 생물학적 반복 실험 결과임. (C) n = 105, 78; log-rank test, P = 0.000004, ****는 P < 0.0001을 나타냄. (D) n = 89, 73; log-rank test, ****는 P < 0.0001을 나타냄. 유의성은 생존 분포를 비교하는 log-rank test를 사용하여 평가됨. 기술적 반복 실험 간의 상세한 통계적 P 값, 평균 생존 시간 및 S. E.는 보충 표 2에 포함됨. 이 파일을 다운로드하려면 여기를 클릭하십시오.
부수 도표 5: 산화 스트레스 조건 하에서의 생존 곡선 생물학적 반복 실험 결과. (A, B) 다양한 농도의 paraquat 처리 하에서의 WT N2 균주 Kaplan-Meier 생존 곡선. 데이터는 두 번의 독립적인 생물학적 반복 실험 결과임. (A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. 서로 다른 그룹 간(A 및 B)의 통계적 P 값은 부수 표 2에 표시되어 있음. (C, D) 5 mM paraquat으로 유도된 산화 스트레스 조건 하에서의 WT N2 및 RIC 뉴런 제거 균주의 Kaplan-Meier 생존 곡선. 데이터는 두 번의 독립적인 생물학적 반복 실험 결과임. (C) n = 87, 82; log-rank test, P = 0.2629, n.s.는 유의미한 차이가 없음을 나타냄. (D) n = 116, 118; log-rank test, P = 0.1184, n.s.는 유의미한 차이가 없음을 나타냄. 유의성은 생존 분포를 비교하는 log-rank test를 사용하여 평가하였음. 기술적 반복 실험 간의 상세한 통계적 P 값, 평균 생존 기간 및 S. E.는 부수 표 2에 포함되어 있음. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 1: 모든 생존 곡선에 포함된 벌레 수의 요약. 이 표는 벌레의 초기 수와 파손된 벌레, 백킹(bagged)된 벌레 및 검열(censored)된 벌레의 수를 요약하여 보여줍니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 2: P 값, 평균 생존 기간 및 표준 오차(S. E.)를 포함한 모든 생존 곡선에 대한 세부 통계 분석. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 1: 본 연구의 결과를 뒷받침하는 데이터.
RIC 뉴런의 성공적인 절제 확인 내용과 메인 그림에 제시된 데이터의 근거가 되는 모든 생물학적 반복 실험 결과가 포함되어 있습니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
본 문서에서는 표준화된 단계를 설명하였습니다. 열, 소포체(ER), 미토콘드리아 및 산화 스트레스 조건 하에서 재현 가능한 스트레스 분석을 위해 C. elegans (그림 1). 우리는 네 가지 모든 스트레스 요인의 투여량을 점진적으로 증가시키며 WT 벌레의 생존율에 미치는 영향을 조사하였습니다(그림 2). 또한 우리는 뉴런 절제 균주를 사용하여 4가지 모든 스트레스 요인에 대한 스트레스 내성에서 중간뉴런의 역할을 조사하는 사례를 제시하였습니다.그림 2).
본 연구에서 제시하는 스트레스 분석 프로토콜을 성공적으로 적용하기 위해서는 과정 중 몇 가지 주요 고려 사항을 유의해야 합니다. 한천 분말, 배지, 주변 온도 및 습도 등의 차이로 인해 실험실 간 변동성이 발생할 수 있으므로, 프로토콜 및 결과 섹션에 기술된 적정 단계와 방법에 따라 각 스트레스 또는 스트레스 유도 화합물의 농도를 적정하는 것을 권장합니다. 적절한 스트레스 조건은 야생형 대조군 벌레에서 재현 가능하고 중간 정도의 생존 반응을 유도하여, 스트레스 저항성의 증가와 감소를 모두 감지할 수 있는 충분한 동적 범위를 제공해야 합니다. 거의 완전한 생존이나 거의 완전한 치사율을 보이는 조건은 피해야 합니다. 다음으로, 모든 생물학적 및 기술적 반복 실험에서 벌레들이 동일한 발달 단계로 동기화되었는지 확인하는 것이 필수적입니다. 벌레의 동기화는 섹션 2.1-2.3에 설명된 절차를 통해 수행할 수 있으며, 후기 L4 단계로의 동기화를 권장합니다. L4 단계에서 스트레스 분석을 시작하는 것은 C. elegans 스트레스 반응 연구 분야에서 잘 확립된 관행이며, 수많은 연구에서 산화42, 열 40,43 및 기타 스트레스 저항성 분석35에 동기화된 L4 개체를 사용해 왔습니다. L4 단계에서 시작하면 발달 동기화를 보장하는 동시에, 성체 연령 및 산란 시작과 배아 보유를 포함한 생식 상태의 차이로 인해 발생하는 변동성을 최소화할 수 있으며, 이러한 요인들은 모두 스트레스 저항성 측정에 영향을 미칠 수 있습니다12,37,38,40. 본 연구의 모든 실험군이 동기화되었으며 동일하게 처리되었으므로, 이 접근 방식은 스트레스 저항성을 비교하기 위한 일관되고 적절한 기초를 제공합니다. 마지막으로, 분석 시작 전에 벌레가 굶주리거나 스트레스를 받은 경우, 스트레스 분석을 위한 동기화된 자손을 생성하기 위해 임신한 벌레로 사용하기 전, 먹이가 공급되는 비스트레스 조건에서 여러 세대 동안 자손을 회복시켜야 합니다.
독립적인 생물학적 반복 실험 간의 실험 간 변동성은 플레이트 준비 및 보관의 차이로 인해 발생할 수 있으며, 여기에는 4 °C에서 스트레스 유발 화합물이 포함된 플레이트의 보관 기간과 OP50 박테리아 파종 시점이 포함됩니다. 서로 다른 날에 수행된 실험 간의 재현성을 높이기 위해, 섹션 1.1의 NGM 플레이트 제작, 섹션 3.2.1의 tunicamycin 유도 ER 스트레스 플레이트, 섹션 3.3.1의 antimycin A 유도 미토콘드리아 스트레스 플레이트 및 섹션 3.4.1의 paraquat 유도 산화 스트레스 플레이트 제작에 대해 기술된 프로토콜에 따라 핵심적인 플레이트 준비 단계를 표준화해야 합니다. 구체적으로, 한천 플레이트는 부은 후 실온에서 약 24 h 동안 건조하고, 한천이 완전히 응고된 후에 OP50을 파종해야 합니다. OP50이 파종된 NGM 플레이트는 4 °C에 보관하기 전 실온에서 추가로 24 h 동안 건조시켜야 합니다. 최적 건조 시간은 통기성 또는 비통기성 플레이트의 사용 여부와 온도 및 습도와 같은 지역적 환경 조건에 따라 달라질 수 있습니다. 따라서 각 실험실은 자체 조건에 맞게 이 단계를 최적화하고, 재현성을 보장하기 위해 모든 독립적인 생물학적 반복 실험에서 일관된 건조 시간을 유지해야 합니다. 스트레스 유발 화합물의 분해와 과도한 박테리아 성장은 모두 분석의 일관성에 영향을 줄 수 있으므로, 스트레스 분석 플레이트는 준비 후 1주일 이내에 사용해야 합니다.
이 프로토콜은 또한 뉴런 절제 계통을 사용하여 네 가지 스트레스 요인 모두에 대한 스트레스 반응에서 인터뉴런의 역할을 조사하는 사례를 보여주었습니다(그림 2). 특정 뉴런에서 특이적으로 발현되는 유전자의 프로모터를 사용하여 caspase-3 발현을 유도하고 표적 뉴런을 절제할 수 있습니다. 여기서는 RIC 뉴런에서 특이적으로 유전자 발현을 유도하는 tbh-1 프로모터를 사용하여 RIC 뉴런을 절제했습니다. tbh-1 프로모터는 RIC 표적 유전자 조작에 대해 널리 검증되었으며, 세포 특이적 발현, 복구, 칼슘 이미징 및 뉴런 억제에 일상적으로 사용됩니다45,49,50. 보고된 tbh-1의 특성 분석과 일치하게, 우리는 tbh-1p::GFP의 발현이 RIC 뉴런에 국한되어 있음을 관찰했으며 다른 조직에서는 형광을 검출하지 않았습니다(보충 그림 1). RIC 뉴런이 절제된 계통에서 산란수나 생식선 형태를 구체적으로 조사하지는 않았으나, RIC 뉴런 절제 계통에서 뚜렷한 생리적 결함은 관찰되지 않았습니다. tbh-1 리포터는 생식계의 체세포인 체세포 생식선 초세포(somatic gonadal sheath cells)에서 추가적인 발현을 보인다고 보고된 바 있습니다51,52. RIC 뉴런 외부에서 낮은 수준의 발현이 일어날 가능성을 완전히 배제할 수는 없으나, tbh-1의 비-RIC 발현이 RIC 뉴런 절제 동물에서 관찰된 강화된 스트레스 저항성의 원인일 가능성은 낮다고 판단됩니다. 이 방법은 잘 확립되어 있지만49,50, 표적 뉴런 외부 세포에서 발현될 가능성이 있다는 한계가 있습니다. 따라서 스트레스 요인에 반응하는 뉴런 활동을 모니터링하거나, 스트레스 분석에서 해당 뉴런에서 방출되는 신경전달물질의 역할을 평가하는 등 뉴런의 역할을 확인하기 위한 다른 방법론이 필요합니다.
C. elegans 생존 분석(survival assays)은 다음과 같은 이유로 스트레스 내성을 측정하는 강력한 도구입니다. 선충의 상대적으로 짧은 수명(약 20~30일, 그림 2) 및 일반적으로 수 시간에서 수일에 걸쳐 발생하는 다중 스트레스 요인에 의한 급성 사망률(그림 2). 하지만 생존 분석의 한계점은 생사(live/dead)라는 이분법적 종말점을 사용하므로, 스트레스 노출 중에 발생하는 점진적인 생리적 기능 저하를 포착하지 못한다는 점입니다. 여러 시점에서 수행하는 thrashing 분석이나 자동화된 운동성(속도) 측정과 같은 보완적 분석을 통해 스트레스 동안의 점진적인 신경근 기능 상실에 대한 추가 정보를 얻을 수 있습니다. 또 다른 한계는 가벼운 물리적 자극에 대한 반응 부재로 사망 여부를 결정한다는 점인데, 이는 운동 능력이 심하게 손상된 동물의 생존력을 과소평가할 수 있습니다. 또한, 수동 점수 산정은 관찰자에 따른 변동성과 잠재적 편향을 유발합니다. 이러한 영향을 최소화하기 위해, 독립적인 생물학적 반복 실험 내의 모든 점수 산정은 유전자형과 실험 조건을 알지 못하는 동일한 연구자가 수행해야 합니다. 플레이트 간 및 실험 간 변동성을 줄이기 위해서는 각 시점마다 동일한 현미경 배율과 조명 설정을 사용하는 등 일관된 점수 산정 조건을 유지하는 것이 중요합니다. 대표 결과에서는 RIC 뉴런이 제거된 균주가 야생형 웜에 비해 ER 및 미토콘드리아 스트레스에 대해서는 스트레스 저항성이 증가했지만, 열 및 산화 스트레스에 대해서는 그렇지 않은 사례를 제시하였습니다.그림 2). 4가지 스트레스 요인 중 2가지에서 생존율 차이가 나타났다는 사실만으로는 해당 뉴런의 경로 특이적 역할을 확립할 수 없으며, 본 원고의 생물학적 결론은 기전적 주장이라기보다 관찰 결과 및 방법론의 입증으로서 제시된 것입니다.
여기서 설명한 스트레스 생존 분석 외에도, C. elegans의 생존율을 측정하기 위해 여러 자동화 플랫폼이 개발되었습니다. 자동 정량 분석은 처리량을 상당히 증가시키고, 지속적 또는 고빈도 모니터링을 가능하게 하며, 수동 정량 분석과 관련된 관찰자 편향 및 노동력을 줄여줍니다53,54,55. 이러한 시스템은 특히 대규모 유전적 또는 화학적 스크리닝에 유리합니다. 그러나 대부분의 자동화 방법은 움직임의 정지를 죽음으로 간주하는데, 이는 이미징 알고리즘과 검출 임계값에 따라 스트레스 하에서 정지 상태이거나 운동 능력이 심하게 저하된 벌레를 오분류하는 결과를 초래할 수 있습니다. 자동 검출은 온도, 응결, 곰팡이 또는 박테리아 오염, 배양 조건의 변동을 포함한 환경적 요인의 영향을 받을 수 있으며, 이 모든 요인은 벌레 검출을 방해하고 생존 측정값에 영향을 줄 수 있습니다. 반면, 수동 정량 분석을 통해 실험자는 bagging, 내부 부화 또는 개체 파손과 같이 특정 정량 또는 제외 기준이 필요한 이상 표현형을 식별할 수 있습니다. 수동 정량 분석은 노동 집약적이며 관찰자에 따른 가변성이 크다는 단점이 있지만, 이러한 한계는 블라인드 테스트, 표준화된 정량 기준, 그리고 동일한 연구자에 의한 일관된 정량을 통해 최소화할 수 있습니다. 결과적으로, 수동 및 자동 생존 분석은 각각 뚜렷한 장점과 한계가 있으며, 분석 방법의 선택은 실험 목적, 요구되는 처리량 및 스트레스 패러다임의 특성에 따라 이루어져야 합니다.
종합적으로, 여기서 설명한 방법들은 열, 미토콘드리아, 소포체(ER) 및 산화 스트레스를 포함한 다양한 환경 스트레스 요인에 대한 C. elegans의 반응을 평가하기 위한 표준화되고 재현 가능한 프레임워크를 제공합니다. 다양한 스트레스 요인에 대한 저항성을 평가하는 것은 매우 중요한데, 이는 유전적 또는 생리적 섭동이 한 종류의 스트레스에 대한 저항성은 높이는 동시에 다른 스트레스에 대한 감수성을 증가시킬 수 있으며, 이를 통해 스트레스 적응의 스트레스 요인 특이적 메커니즘과 공통 메커니즘을 모두 밝혀낼 수 있기 때문입니다. 이러한 분석법을 통해 서로 다른 유전자형과 실험 조건 간의 스트레스 저항성을 정량적으로 비교할 수 있으며, 스트레스 저항성 및 생리적 항상성 유지에서 유전자, 뉴런 및 대사 경로의 역할을 조사하는 데 쉽게 적용할 수 있습니다. 더 넓게는, 이러한 방법들은 불리한 환경 조건에서 개체의 건강과 생존을 촉진하는 메커니즘을 식별하기 위한 강력한 플랫폼을 제공합니다.
공개 사항
저자들은 공개할 이해상충 사항이 없습니다.
감사의 글
본 출판물에 보고된 연구는 S.H.에게 제공된 Kansas Idea Network of Biomedical Research Excellence (K-INBRE, P20 GM103418), Center of Biomedical Research Excellence (COBRE, P20 GM113109) 및 Kansas State University의 Johnson Cancer Research Center (Cancer Research Expansion Award)의 연구비 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 튜니카마이신 | Sigma-Aldrich | T7765 | 소포체 스트레스 유도제 |
| 안티마이신 A | Sigma-Aldrich | A8674 | 미토콘드리아 스트레스 유도제 |
| 메틸 바이올로젠 디클로라이드 하이드레이트 (파라콰트) | Sigma-Aldrich | 856177 | 산화적 스트레스 유도제 |
| 팔미트산 | MP Biomedicals, LLC | 100905 | 억제하다 C. elegans 탈출 행동 |
| 콜레스테롤 | MP Biomedicals, LLC | 101382 | NGM용 |
| 염화칼슘 | Thermo Fisher Scientific Inc. | C79-500 | NGM용 |
| 무수 황산마그네슘 | Mallinckrodt Pharmaceuticals plc | 6070 | NGM용 |
| 한천 (Agar) | Apex Chemicals Co., Ltd | 20-273 | NGM용 |
| 펩톤 | Apex Chemicals Co., Ltd | 20-260 | NGM용 |
| 제1인산칼륨 | Thermo Fisher Scientific Inc. | P285-3 | NGM용 |
| 염화 나트륨 | Thermo Fisher Scientific Inc. | S640-3 | NGM을 위해 |
| 인산이수소칼륨 | Allied Chemical, General Chemical Division | 코드 2131 | NGM을 위해 |
| 페트리 접시 (35 mm) | Genesee Scientific, LLC | 32-103 | 스트레스 분석 플레이트 |
| 페트리 접시 (60 mm) | Genesee Scientific, LLC | 32-105 | 유지하다 C. elegans |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| New Brunswick Scientific (Eppendorf) C24KC 냉장 배양 진탕기 | Eppendorf / New Brunswick Scientific | C24KC | 37 °C 배양기 |
| DigiTherm® 38리터 가열/냉각 인큐베이터 | Tritech Research Inc. | DT2-MP-47L | 35 °C 배양기 |
| Fisher Scientific Isotemp 저온 배양기 | Fisher Scientific | 146E | 30 °C 배양기 |
| SHELab SRI20P 냉장 배양기 | Sheldon Manufacturing Inc. | SRI20P | 20 °C 배양기 |
| Leica M165 FC 연구용 스테레오 현미경 | Leica Microsystems | M165 FC | 이미징용 현미경 |
| ACCU-SCOPE 3075-DIA 줌 스테레오 현미경 | ACCU-SCOPE Inc. | 3075-DIA | 선충 취급 및 점수 측정을 위한 현미경 |
| Microsoft Excel 2019 | Microsoft Corporation | 원시 데이터 플로팅 | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | 데이터 시각화 | |
| OASIS 2 | POSTECH, PMID: 27528229 | 통계 분석 | |
| BioRender | Science Suite Inc. | 모식도 | |
| ImageJ | 국립보건원(NIH) | 영상 처리 | |
| Adobe Illustrator 2021 | Adobe Inc. | 그림 구성 레이아웃 | |
| 야생형 | Caenorhabditis Genetics Center, CGC | 질소(N2) | |
| tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | 자체 제작 | RIC 소작술 | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. RIC 뉴런은 GFP와 mCherry 모두로 표지됨 | Caenorhabditis Genetics Center, CGC | OH16150 |
참고문헌
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공