신경면역 상호작용의 시간적 및 공간적 특성을 규명하기 위해 살아있는 마우스 뇌에 분비성 면역 단백질을 투여하는 맞춤형 방법입니다.
이 논문에서
요약
초록
분비성 면역 단백질이 신경계 기능에 영향을 미친다는 사실이 점점 더 많이 인식되고 있음에도 불구하고, 뇌의 복잡한 환경 내에서 이러한 단백질의 시공간적 역동성을 정의하는 데에는 기술적인 장벽이 여전히 존재합니다. 예를 들어, 뇌의 핵심 면역 세포군인 미세아교세포는 다양한 세포 표적과 상호작용하는 여러 인자들을 방출합니다. 미세아교세포 유래 단백질은 다른 세포 유형에 신호를 전달할 수 있습니다. ~을 통해 내입화(internalization) 없는 표면 수용체 결합, 수동적 막 수송, 식세포 작용을 통한 섭취 또는 내세포작용(endocytosis) 매개 섭취와 같은 기전들입니다. 본 논문에서는 미세아교세포 유래 분비 단백질의 국소 전달 방법이 제시됩니다. 세포 상호작용 기전과 그에 따른 하위 기능적 결과물들을 분석하기 위해 생체 내(in vivo)본 연구에서는 단백질 샘플의 전달 준비 방법, 표적 뇌 영역에 대한 단백질의 정위적 투여 방법, 그리고 면역조직화학 염색을 통해 고정 방식에 민감한 단백질을 시각화하기 위한 뇌 조직 수집 및 준비의 최적 방법을 설명합니다. 이러한 접근 방식은 신경면역 소통의 시공간적 제어 연구를 위한 다각적인 체계를 제공하며, 면역 유래 단백질이 신경 및 뇌 기능을 어떻게 역동적으로 조절하는지에 대한 기전적 탐구를 가능하게 합니다.
서론
신경면역 소통, 즉 신경계와 면역계 사이의 분자적 대화는 최근에야 건강과 질병을 이해하는 데 필수적인 것으로 확립되었습니다. 한때 면역계의 활동으로부터 상당 부분 보호받는다고 생각되었던 뇌1,2는 이제 매우 역동적인 면역 틈새(immune niches)를 포함하고 있으며, 이를 통해 신경계가 신체 전반에 걸쳐 면역 신호를 보내고 받을 수 있다는 사실이 인정되고 있습니다3. 이러한 강력한 양방향 교차 소통은 주로 뇌 내부 또는 맥락총(choroid plexus), 뇌수막(meninges), 혈관주위 공간(perivascular spaces)과 같은 신경계 인터페이스에 존재하는 면역 유능 세포들에 의해 매개됩니다4. 그러나 뇌 실질 자체에서 면역 신호 전달은 주로 미세아교세포(microglia)에 의해 매개되는데, 이는 배아 발달 과정 중 뇌에 처음으로 정착하는 장수 조직 상주 대식세포입니다. 미세아교세포는 흔히 그 식세포 작용 기능에 주목하여 실험적으로 연구되지만, 매우 다양한 면역 인자들을 방출함으로써 주변 환경뿐만 아니라 원거리와도 상호작용합니다5.
감염, 부상 및 질병과 같이 복잡하고 다인성인 조건을 in vivo에서 모델링하는 것은 스트레스 상태의 신경계에 대한 총체적인 이해를 제공한다는 점에서 유익하지만, 광범위하고 다양한 결과를 초래하는 일련의 요인들이 발생하여 이를 개별적으로 분석하기 어려울 수 있습니다. 또한, 뇌 영역 간 세포의 높은 이질성을 고려할 때, 개별 요인의 인과적 방출과 그에 따른 효과를 정확히 규명하는 것은 여전히 어려운 과제입니다. 위치 정밀 감염 후 특정 요인의 과발현을 가능하게 하는 렌티바이러스 및 아데노 부속 바이러스 벡터와 같은 도구들을 통해 뉴런 및 성상교세포와 같은 다른 뇌 세포에서 분비되는 요인들의 역할을 다양한 맥락에서 조사할 수 있었으나, 미세아교세포는 지금까지 이러한 방식으로 특이적이고 강력하게 조절하기가 어려웠습니다6. 따라서 미세아교세포 유래 신호 분자를 정의된 뇌 위치로 전달할 수 있는 능력은 다양한 맥락에서 미세아교세포의 정확한 역할과 결과를 분리하여 파악할 수 있는 유용한 방법을 제공합니다.
이 방법의 목적은 살아있는 생쥐의 뇌에 미세아교세포 유래 인자를 시공간적으로 전달하여, 관심 단백질이나 분자의 기능적 영향에 대한 후속 조사를 가능하게 하는 것입니다. 또한, 이러한 두개내 투여 방법은 다음과 같은 다른 여러 상황 및 연구 질문에도 적용 가능합니다. ~을 통해 상호작용하는 면역 인자 또는 억제제와 같이 여러 인자를 병용 투여하거나, 관심 있는 시간 경과에 따른 조직 반응을 조사하는 경우입니다. 본 프로토콜에서는 면역조직화학적 종말점 분석을 위한 조직 수집 및 준비 과정을 설명하지만, qPCR이나 단백질 정량 분석을 위해 관심 뇌 영역에서 신선 동결 조직 펀치를 수집하는 등 다양한 다른 뇌 종말점 분석을 이 투여 방법과 병행할 수 있습니다. ~을 통해 Western blot 또는 ELISA, 혹은 주입된 뇌 영역에서 신경 세포 활동의 전기생리학적 기록 수행.
프로토콜
동물을 대상으로 하는 모든 절차는 미국 국립보건원(National Institutes of Health)의 실험동물 관리 및 사용 지침에 따라 수행되었으며, 해당 연구 기관의 동물실험윤리위원회(IACUC)가 승인한 프로토콜 하에 진행되었습니다. 여기에 기술된 모든 절차는 듀크 대학교(Duke University)의 IACUC 검토 및 승인을 받았습니다. 사용된 시약과 장비는 재료 표에 나열되어 있습니다.
1. (선택 사항) 관심 표지자를 포함한 주입액 준비
- 관심 있는 면역 단백질 또는 분자의 정제된 버전을 구매, 분리 또는 제작합니다(단백질 최적화 및 검증 권장 사항에 대한 안내는 Discussion 참조).
- 필요한 경우, 단백질의 화학적 구조를 기반으로 최적의 표지 전략을 결정합니다. 예를 들어, 단백질의 특정 도메인이나 영역이 기능 수행에 필수적인 경우, 해당 부위에서의 결합을 피하십시오. 표지 후 단백질의 정상적인 기능에 대한 검증이 수행되어야 합니다.
참고: 정제된 단백질의 경우, 일반적인 화학적 표지 방법으로는 제조사의 지침에 따라 주로 시스테인 잔기에 있는 티올기(maleimide 또는 iodoacetamide 염료) 또는 주로 리신 잔기에 있는 아민기(N-hydroxysuccinimide (NHS) 에스테르 또는 isothiocyanate 염료)에 결합시키는 방법이 포함됩니다. 결합을 수행하기 위해 표준 공급업체로부터 키트를 구매할 수도 있습니다.- 사용 전, 적절한 크기의 컬럼을 통해 단백질과 염료를 원심 분리하여 단백질은 포집하고 결합되지 않은 유리 염료는 통과시켜 제거되었는지 확인하십시오.
- 또는, 검출을 위해 관심 단백질에 유전적 태그를 부착하고, 이를 관심 세포에서 발현시킨 후 정제하십시오. 태그는 단백질에 직접 융합하거나 유연한 링커를 통해 연결할 수 있으며, 일반적인 옵션으로는 형광 단백질(예: eGFP, tdTomato, mCherry) 및 자체 표지 태그(예: HaloTag, SNAP-tag)가 있습니다.
- 손상을 유발할 수 있는 동결-해동 사이클을 피하기 위해 단백질을 소분하십시오. 최상의 결과를 위해, in vivo 사용 전 각 동결-해동 사이클 횟수에 따른 정상적인 단백질 기능을 검증하십시오. -80 °C에서 보관하십시오.
참고: 내인성 단백질과 외인성 단백질의 구분이 필요하지 않은 경우(즉, 녹아웃 설치류 모델에 주입하는 경우)에는 표지되지 않은 단백질로도 충분할 수 있습니다. 실험 조건을 최적화하기 위해 경험적 테스트를 수행해야 합니다.
2. 수술 절차를 위한 장비 준비
- 다음의 수술 도구들을 증기 지시 스트립과 함께 오토클레이브 전용 용기에 담으십시오: 메스 핸들, 포셉, 소형 가위, 지혈 집게, 드릴 비트(1.35 mm), 그리고 팁 전용 무균법을 위한 수술용 드레이프. 수술 도구를 멸균하십시오. ~을 통해 ~에서 오토클레이브 멸균하십시오. 121 °C 15~20 psi에서 30분 동안 처리합니다.
- 추가 필요 재료: 멸균 면봉, 포비돈-요오드 용액, 70% 에탄올, 0.9% 식염수, 이소플루레인, 글라스 풀드 마이크로피펫, 멸균 메스 날, 제모 크림, 안구 윤활제, 조직 접착제 또는 외과용 봉합사, 가열 패드, 전자저울, 준비된 약물 및 인슐린 주사기, 그리고 수술 기록부.
- 유리 인발 마이크로피펫을 준비하려면, 일반적으로 약 1.0mm인 인젝터에 맞는 외경과 0.5mm에서 0.8mm 사이의 내경을 가진 유리 모세관을 선택하십시오. 이를 피펫 풀러(pipette puller)에 장착한 후, 가늘면서도 견고한 테이퍼 팁(tapered tip)이 형성되도록 설정하여 인발하십시오(이 설정은 특정 기기에 따라 다르므로 개별적인 최적화가 필요합니다).
참고: 일반적으로 낮은 온도는 실질 조직에 진입할 때 구부러질 수 있는 길고 유연한 팁이 형성되는 것을 방지하는 데 도움이 되며, 낮거나 적절한 인장력은 막힘이나 주입 저항을 유발할 수 있는 너무 좁은 팁 입구가 형성되는 것을 방지하는 데 도움이 됩니다. 해부 현미경을 사용하여 인장된 모든 피펫 팁을 검사하고, 미세 핀셋을 사용하여 팁 입구를 조심스럽게 잘라 내경 개구부를 약 다음 정도로 남기십시오. 20 µm베벨링 도구를 사용하는 경우, 다음보다 작은 각도를 사용하십시오. 35°. - 멸균된 도구, 추가 재료 및 주사용 단백질을 얼음에 채워 수술 공간으로 가져옵니다.그림 1A). 고압 증기 멸균된 도구들을 수술용 타월 위에 조심스럽게 풀어 놓고, 모든 도구의 끝부분이 지정된 멸균 구역 중앙에 위치하도록 배치합니다(그림 1B,C). 지혈집게를 사용하여 드릴 비트를 시야 중앙에 배치합니다. 핸들에 멸균 메스 날을 부착하고 날 끝이 멸균 구역 내에 위치하도록 유지합니다.
- 가열 패드를 다음과 같이 예열하십시오. 37 °C 여러 건의 수술을 수행하는 경우 비드 멸균기를 켭니다.
- 가는 게이지 바늘을 사용하여 마이크로피펫 팁에 미네랄 오일을 역충전하고, 유리 피펫 전체 길이에 기포가 없는지 확인하십시오. 유리 피펫을 마이크로인젝터에 장착하고, 주입할 단백질 부피만큼의 양을 조심스럽게 배출하십시오. 기발표된 권장 사항에 따른 부피로 표적 단백질을 충전하십시오.7 인젝터에 넣은 다음, 인젝터를 옆으로 치워 둡니다.
3. 정위 고정 수술 절차
참고: 모든 수술은 환기가 잘 되는 수술실에서 수행되었으며, 모든 인원은 장갑, 마스크, 헤어 캡, 신발 커버 및 가운으로 구성된 개인 보호 장구를 착용하였습니다. Isoflurane 가스 노출은 건강에 위험하므로 활성탄 캐니스터와 같은 scavenging 시스템이 필요하며, 이는 isoflurane 사용 전후에 무게를 측정해야 합니다. 마취 기화기, 환기 시스템 및 scavenging 장비와 같은 모든 장비가 사용 전 적절하게 인증 및 교정되었는지 확인하십시오.
- 마취 기화기에 적정량의 isoflurane이 충전되었는지 확인하고 산소 유량을 1 L/min으로 설정하십시오. 3.5%~4%의 유량으로 설정된 isoflurane 챔버에 마우스를 넣기 전 마우스의 체중을 기록하십시오. 수술 시작 시간을 기록하십시오.
- 동물의 호흡률 감소를 관찰한 후, 발가락 꼬집기 반사(toe pinch reflex)가 없는 것을 통해 완전 마취 상태임을 확인하십시오. 완전히 마취되면 동물을 스테레오택식스(stereotax)의 가열 패드로 옮기고, 노즈 콘(nose cone)을 통해 1 L/min의 속도로 2% 이소플루란(isoflurane)을 지속적으로 공급하십시오. 동물의 호흡률에 따라 이소플루란 유량을 적절히 조절하십시오.
- 각 눈에 안구 윤활제를 충분히 도포합니다. 수술 전 과정 동안 윤활제가 눈 전체를 완전히 덮고 있는지 모니터링하십시오. 필요에 따라 다시 도포하십시오.
- 멸균 면봉을 사용하여 정수리에 제모 크림을 바르고 털에 스며들도록 마사지합니다. 그 후 0.9% 식염수에 적신 면봉으로 제모 크림과 머리털을 모두 닦아냅니다. 정수리의 모든 털이 제거될 때까지 제모 크림 도포와 제거 과정을 반복합니다.
주의: 털이 이미 제거되어 피부가 노출된 부위에 제모 크림을 바르지 않도록 주의하십시오. 또한, 털에 문지른 크림을 한 번에 약 3분 이상 방치하지 마십시오. 제모 크림에 장시간 노출되면 피부 화상을 입을 수 있습니다. - 동물의 체중에 따라 적절한 양의 수술 전 진통제를 투여하십시오. 정확한 진통제 용량, 투여 경로 및 투여 시기는 IACUC의 검토와 승인이 필요합니다. 본 연구에서는 4 mg/kg의 meloxicam을 사용하였습니다. ~을 통해 수술 시작 시 투여하는 피하 주사.
- 동물의 머리를 이어바(earbars) 사이에 단단히 고정하고, 두개골이 최대한 평평하고 고르게 유지되도록 합니다. 동물의 머리를 가볍게 눌러 움직임이 없는지 확인하십시오. 머리가 기울어지거나 움직인다면, 움직임이 없을 때까지 이어바를 다시 고정하십시오.
- 멸균 면봉을 사용하여 베타딘을 중심에서 바깥쪽으로 원을 그리며 도포한 후, 70% 에탄올로 동일하게 반복합니다.
- 포비돈-요오드 도포를 반복한 후, 70% 에탄올을 2회 더 도포하여 총 3회 도포합니다.
주의: 이제부터 이곳은 무균 구역으로 간주하며, 멸균된 기구만 해당 구역 내로 반입할 수 있습니다. - 메스를 사용하여 눈 윗부분부터 양쪽 귀의 중간 지점까지 한 번의 매끄러운 동작으로 수직 절개하십시오. 멸균 면봉을 사용하여 피부를 조심스럽게 분리하고 두개골을 노출시키십시오. 브레그마(bregma)와 람다(lambda)가 모두 보이는지 확인한 후, 메스 날을 적절한 손상성 폐기물 전용 용기에 주의하여 폐기하십시오.
- 홈이 있는 핀셋을 사용하여 멸균된 드릴 비트를 드릴에 장착하십시오. 드릴을 뇌정위 고정 장치(stereotax arm)에 고정한 후, 드릴이 두개골에 살짝 닿도록 브레그마(bregma)의 중심 위에 위치시키십시오. 뇌정위 고정 장치의 Z축 위치를 0으로 설정하십시오.
- 적절한 머리 배치를 위한 품질 관리 조치를 수행하려면 다음과 같이 하십시오.
- 브레그마(bregma)에서 영점을 조절한 후, 드릴 비트를 람다(lambda)로 이동시키고 Z축 위치를 다시 조정하여 두개골 표면에 살짝 닿게 합니다. 람다에서의 Z축 위치를 기록합니다.
- 드릴 비트를 다시 위로 올린 다음, Y축 위치를 -2.1 mm로 이동시키십시오. 이 위치는 브레그마(bregma)와 람다(lambda)의 중간 지점쯤이 될 것입니다. X축 위치를 양옆으로 -1.5 mm와 +1.5 mm로 이동시키고, 드릴 비트가 두 위치에서 두개골에 막 닿았을 때의 Z축 위치를 각각 기록하십시오.
- 기록된 모든 Z축 위치가 다음과 같은지 확인하십시오. <0.2 mm. 필요에 따라 조정하십시오.
- 브레그마(bregma)에서 다시 좌표를 0으로 설정한 다음, 스테레오택식 고정 장치의 암(arm)을 원하는 (X,Y) 좌표로 이동하십시오.
참고: 출판된 마우스 뇌 정위 좌표 지도(stereotaxic coordinate atlases)는 대개 정상적인 청년 성체 체중(~28g)의 참조 마우스를 기준으로 합니다. 이보다 크거나 작은 마우스는 이러한 참조 좌표와 완벽하게 일치하지 않을 수 있습니다. 단백질을 실험적으로 투여하기 전, 염료를 이용한 예비 주입을 통해 정확한 좌표를 확인하는 것이 권장됩니다. 좌표를 조정하려면 시작점으로 bregma-lambda 보정 비율을 사용하는 것을 고려할 수 있습니다. 이는 마우스의 bregma에서 lambda까지 측정된 거리(mm)에 참조 지도에서 권장하는 좌표를 곱한 후, 그 결과값을 참조 지도의 bregma-lambda 거리로 나누어 계산합니다. - 드릴을 켜고 암(arm)을 Z축 방향으로 천천히 내려 두개골에 접촉시킵니다. 드릴로 두개골을 조심스럽게 뚫되, 아래에 있는 뇌 조직에 닿거나 손상을 주지 않도록 주의하십시오. 구멍이 제대로 뚫리면 뇌 표면이 윤기가 나고 촉촉하게 보일 것입니다.
참고: 간헐적 드릴링과 낮은 드릴 속도(1000 rpm)는 과도한 마찰로 인한 발열 위험을 줄이는 데 도움이 되며, 드릴링 중 또는 후에 멸균 식염수를 도포하면 골분말의 에어로졸화를 줄일 수 있습니다. 실험자의 위험을 방지하기 위해 개인 보호구(안면 마스크, 보안경)를 착용하는 것이 중요합니다. - 여러 곳에 주사를 시행하는 경우, 필요에 따라 단계 3.12를 반복하십시오.
- 드릴을 스테레오택식 고정 장치 암에서 분리하십시오. 두 번 이상의 수술을 수행하는 경우, 멸균된 요철 핀셋을 사용하여 드릴에서 드릴 비트를 제거한 후 비드 멸균기에 넣으십시오. 10초 후, 드릴 비트를 비드에서 꺼내 수술용 타월 위의 멸균 구역에 놓으십시오.
- 멸균된 면봉을 0.9% 식염수에 적셔 노출된 두개골을 적시고, 드릴링으로 인해 발생한 먼지를 닦아냅니다. 동물의 안구 윤활제 상태를 확인하고 필요 시 추가로 도포합니다.
4. 표적 단백질 주입 및 수술 후 회복
- 장착된 인젝터를 뇌정위 고정 장치 암에 고정합니다. 브레그마(bregma)에서 영점을 다시 설정하고 원하는 (X, Y) 좌표로 조정합니다. 인젝터 팁을 두개골에 뚫은 구멍을 통해 뇌 표면, 즉 두개골 바로 아래까지 내립니다. Z 평면의 영점을 설정합니다.
- 인젝터 팁을 목표 Z 좌표보다 약간 더 깊게(약 -0.2 mm 추가) 매우 천천히 삽입한 다음, 다시 정확한 좌표로 끌어올리십시오.
- 원하는 단백질을 500 nL/min 이하의 속도로 천천히 주입하십시오. 주입 시간을 기록하십시오.
참고: 조직의 손상과 파괴를 방지하면서 원하는 공간적 타겟팅을 달성하기 위해 주입량을 신중하게 고려하십시오. 관심 영역별 최적의 주입량과 주입 속도를 결정하기 위해 경험적 테스트를 수행해야 합니다(참조 고찰 (자세한 내용은 추가 참조). - 주입물의 역류를 방지하기 위해, 주입이 끝난 후 5~10분 동안 주입기를 그대로 유지하십시오.
- 1~2분에 걸쳐 주입기를 뇌 밖으로 천천히 끌어올립니다.
- 다회 주입을 수행하는 경우 단계 4.1~4.5를 반복하십시오.
- 작업이 완료되면 정위 고정 장치(stereotax)에서 인젝터를 제거하십시오.
- 식염수에 적신 멸균 면봉을 사용하여 수술 절개 부위를 재수화하십시오. 부피바카인(bupivacaine) 또는 선호하는 다른 국소 마취제를 피부에 국소 도포하십시오.
- 멸균 핀셋을 사용하여 절개 부위를 닫고, 조직 접착제(또는 봉합사나 상처 스테이플러와 같은 다른 선호 방법)를 도포하여 상처를 밀봉하십시오.
주의: 조직 접착제가 동물의 눈이나 절개 부위 이외의 피부에 닿지 않도록 주의하십시오. 제조사에서 제공하는 도포기보다 멸균 피펫 팁과 피펫을 사용하여 조직 접착제를 바르면 더욱 정밀하게 도포할 수 있습니다. - 이어바(earbars)와 노즈콘(nosecone)을 풀고, 동물을 회복을 위해 따뜻하고 깨끗한 케이지에 넣으십시오. 동물이 이소플루레인(isoflurane) 마취 상태에서 벗어난 시간을 기록하십시오.
- 동물을 관찰하며 동물이 처음으로 서 있는 모습이 확인된 시간을 기록하십시오. 최소 30분 동안 완전히 보행 가능해지면, 하이드로겔 및 재수화된 분쇄 사료와 같은 보조 관리 수단이 제공되는 깨끗한 홈케이지로 동물을 옮기십시오.
참고: 회복된 동물로부터 조직을 급성으로(24시간 이내에) 채취하는 경우가 아니라면, 수술 후 첫 일주일 동안은 매일 체중을 측정하고 상태를 관찰하여 이상 반응 여부와 정상적인 상처 치유를 평가하고 건강한 회복을 확인해야 합니다. 수술 후 진통제는 IACUC의 심의 및 승인을 받은 프로토콜에 따라 투여해야 하며, 본 실험에서는 수술 후 첫 3일 동안 24시간마다 4 mg/kg의 meloxicam을 피하 투여하였습니다. 모든 관찰 내용은 기록지에 작성해야 합니다. 만약 활동성 감소, 체중 감소 등과 같은 질병 행동을 보이는 동물이 관찰될 경우, >수술 전 체중의 15% 감소 또는 기타 건강 악화 징후가 나타날 경우, 수의사에게 문의하여 상담을 받거나 동물을 인도적으로 희생시켜 연구 대상에서 제외해야 합니다.
5. 면역조직화학법 절차를 위한 조직 준비
- 다음 재료들을 준비하십시오: 1x PBS, 포셉, 소형 가위, 30 mL 주사기 또는 관류 펌프, 26게이지 나비 바늘, 15 mL 원추형 튜브 2개, PBS 내 4% 파라포름알데히드(PFA), 소형 웨잉 보트 3개(조직의 PFA 세척용). PBS 내 30% 자당.
주의: PFA는 발암 물질이며 특별한 취급 및 폐기가 필요한 독성 증기를 방출합니다. PFA의 모든 조제, 사용 및 폐기는 화학 흄 후드 또는 생물안전작업대 내에서 수행해야 합니다. 액체 폐기물과 PFA에 접촉한 모든 고형물(예: 피펫 팁, 튜브, 웨잉 보트 등)을 포함한 모든 PFA 폐기물은 해당 작업이 수행되는 기관의 지침에 따라 유해 폐기물 용기에 버려야 합니다. - 안락사 절차에 관한 기관 지침을 따르십시오. 사망이 확인되면 동물을 트레이나 버킷 위로 옮기고, 포셉과 가위를 사용하여 동물의 복강을 열어 심장을 노출시킵니다.
- 펌프를 사용하거나 30 mL 주사기를 사용하여 수동으로 차가운 1x PBS로 동물의 심장을 통해 관류하십시오.
주의: 혈전 형성을 방지하기 위해 희생과 관류 사이의 시간 간격을 최대한 짧게 유지해야 하므로, 여러 마리의 생쥐로부터 조직을 수집하는 경우 한 마리씩 순차적으로 수행해야 합니다. - 두개골에서 뇌 전체를 제거하여 4% PFA 용액이 담긴 15 mL 원추형 튜브로 옮기고 2시간 이내로 유지하십시오. 조직이 과고정되지 않도록 각 뇌를 PFA에 넣은 시간을 기록하십시오.
참고: 조직 고정의 최적화는 관심 대상물에 대해 경험적으로 테스트해야 합니다. 예를 들어, C1q와 신경세포 리보핵산단백질 복합체의 상호작용은 과고정에 민감합니다.8~을(를) 참조하십시오. 고찰 적절한 고정 방법 선택에 관한 더 자세한 내용은 다음을 참조하십시오. - 적절한 시간 동안 조직을 고정한 후, 조직 내 잔류 PFA를 제거하기 위해 PBS로 3회 세척하십시오.
- 뇌를 PBS 용액 내 30% sucrose가 포함된 15mL 원추형 튜브로 옮겨 다음과 같은 온도에서 보관하십시오. 4 °C 뇌가 바닥으로 가라앉을 때까지 유지합니다. 평균적으로 1~3일이 소요됩니다.
- 고정된 뇌 조직을 포매하기 위해 다음 재료들을 준비하십시오: PBS 내 30% sucrose, 동결 포매제, 적절한 크기의 일회용 동결 몰드(예: 22 mm x 22 mm), 면도날, 핀셋, 세롤로지컬 피펫 및 팁.
- 동결 매몰제와 30% sucrose 용액을 1:1 비율로 섞어 매몰 용액을 만듭니다. 22 mm x 22 mm 몰드를 사용하는 경우, 몰드당 약 5 mL의 매몰 용액이 필요합니다. 서로 다른 점도를 균일하게 혼합하기 위해 볼텍스 믹서로 충분히 섞어줍니다.
- 시상면 뇌 단면을 얻으려면 면도날을 사용하여 뇌의 정중선을 따라 절단하십시오.그림 2A). 각 조직 몰드에 반구를 포함한 샘플 세부 정보를 표시하십시오. 반구는 선호도에 따라 개별 몰드에 넣거나 함께 장착할 수 있으며, 정중선이 몰드 바닥을 향하게 하십시오.그림 2B).
- 뇌 조직을 둘러싸고 완전히 잠기게 할 수 있도록 적절한 양의 매립액을 추가하십시오. 충전된 몰드를 실온에서 1시간 동안 그대로 둡니다.
참고: 볼텍싱(vortexing)으로 인해 임베딩 용액에 기포가 많이 남아 있어도 괜찮습니다. 1시간의 배양 기간 동안 기포가 사라질 충분한 시간이 확보됩니다. - 드라이아이스를 준비하고, 드라이아이스 위에 평평한 금속 선반이나 플레이트를 올려 냉동을 위한 평평한 표면을 만듭니다.
- 채워진 각 몰드를 드라이아이스 위에 최대한 평평하게 놓이도록 조심스럽게 옮깁니다. 동결이 시작되기 전, 몰드를 옮긴 직후에 핀셋을 사용하여 뇌 조직이 여전히 제자리에 있는지 확인합니다. 매몰액이 완전히 불투명해지면 완전히 동결된 것이며, 이때 매몰된 조직을 -로 옮길 수 있습니다.80 °C 면역조직화학 염색을 수행할 준비가 될 때까지 (그림 2C).
- 크라이오스탯(챔버 온도: -20 ~ -25 °C, 헤드 온도: -15 ~ -18 °C) 15–를 수집하기 위해40 µm 전하 처리된 슬라이드 위에 시상면 절편들을 올리되, Pap pen 배리어(barrier)를 도포할 수 있도록 충분한 간격을 둡니다. 하나의 슬라이드에 세 개의 시상면 절편을 충분한 간격으로 배치할 수 있습니다.
주의: 민감한 단백질 또는 민감도를 알 수 없는 단백질을 시각화하는 경우, 면역조직화학 실험에 필요한 섹션만 수집하여 당일에 실험을 수행하십시오. 매립 조직은 보관 후 -에서 다시 동결할 수 있습니다.80°C 향후 실험을 위해 보관하십시오. 또는, 절편화된 조직이 부착된 슬라이드를 슬라이드 박스에 담아 -에서 보관할 수 있습니다.80°C.
6. 주입된 단백질에 대한 면역조직화학 염색 수행
- 면역조직화학염색을 위한 재료를 준비합니다: 1x TBS, pap pen, saponin, 소혈청알부민(BSA), 목적에 맞는 1차 항체, 2차 항체, Sudan Black B 기반의 자가형광 소광제, 70% 에탄올, DAPI가 포함된 봉입제, 커버슬립, 매니큐어.
참고: 시판되는 자가형광 소광 용액에는 흔히 디메틸포름아미드(DMF)가 포함되어 있어 취급 및 폐기 시 주의가 필요합니다. 장갑 없이 취급하지 마십시오. 사용한 용액은 해당 작업을 수행하는 기관의 정책에 따라 유기 용매 폐기물 용기에 수집하십시오. - 전이 피펫을 사용하여 슬라이드 위의 조직 절편에 1x TBS를 가하고 10분 동안 세척합니다.
- 1x TBS 세척액을 흡입하여 제거한 후, pap pen을 사용하여 각 조직 절편 주위에 소수성 장벽을 형성합니다.
참고: 첫 번째 1x TBS 세척 후에 이 작업을 수행하면 슬라이드에 붙어 장벽의 효과를 떨어뜨릴 수 있는 과잉 포매액을 제거하는 데 도움이 됩니다. 장벽을 형성하기 전 태스크 와이프로 과잉 용액을 제거하십시오. 단, 재수화된 조직이 마르지 않도록 주의하십시오. - 1x TBS 10분 세척을 2회 더 반복하여 총 3회 세척합니다.
- 투과화 완충액을 준비합니다: 1x TBS에 0.1% saponin을 추가합니다. 준비 후 2주 이내에 사용하십시오. 각 절편에 ~100 µL를 가하고 실온에서 10분 동안 배양합니다.
- 블로킹 완충액을 준비합니다: 1x TBS에 0.1% saponin과 1% BSA를 추가합니다. 블로킹 완충액은 1차 및 2차 용액에도 추가로 사용되므로 여유 있게 만들어 4 °C에 보관하십시오. 준비 후 2주 이내에 사용하십시오. 투과화 완충액을 흡입하여 제거하고 각 절편에 블로킹 완충액 ~100 µL를 가합니다. 실온에서 1시간 동안 배양합니다.
- 1차 용액을 준비합니다: 블로킹 완충액에 1차 항체를 추가합니다. 1차 항체 농도를 1:500으로 시작하여 결과에 따라 조정하십시오. 블로킹 완충액을 흡입하여 제거하고, 각 절편에 1차 용액 ~100 µL를 가합니다.
참고: 표적 단백질의 내인성 형광 신호를 강화하기 위해 태그에 대한 1차 항체(예: anti-GFP 항체)를 이용한 증폭을 수행할 수 있습니다. - 슬라이드를 1차 용액에 넣어 4 °C에서 하룻밤 동안 보관합니다.
참고: 하룻밤 동안 증발하는 것을 방지하기 위해 각 절편에 1차 용액을 충분히 넣고, 슬라이드 보관 장소에 추가적인 습기를 제공하십시오. - 실온에서 1x TBS로 10분씩 3회 세척하여 1차 용액을 씻어냅니다.
- 2차 용액을 준비합니다: 블로킹 완충액에 2차 항체를 추가합니다. 2차 항체 농도를 1:200으로 시작하여 필요에 따라 조정하십시오. 각 조직 절편에 용액 ~100 µL를 가하고, 빛으로부터 보호하기 위해 덮개를 씌운 상태로 실온에서 1시간 동안 배양합니다.
참고: 이 단계에서는 슬라이드가 빛에 노출되지 않도록 보호해야 합니다. - 실온에서 1x TBS로 10분 동안 세척하여 2차 용액을 제거합니다.
- 제조사의 지침에 따라 자가형광 소광 용액을 즉석에서 준비합니다. 20x 소광 용액을 70% 분자 생물학 등급 에탄올로 희석하여 1x 작동 용액을 준비합니다.
- 슬라이드를 하나씩 처리하며, 1x TBS를 흡입하여 제거하고 1x 소광 용액을 가합니다. 슬라이드를 20~30초 동안 천천히 회전시켜 용액이 조직 절편 전체에 퍼지게 합니다.
- 소광 용액을 폐기물 용기에 버린 후, 전이 피펫을 사용하여 각 절편에 TBS를 가하고, TBS를 폐기물 용기에 버리는 과정을 TBS가 깨끗해질 때까지(보통 2~3회면 충분함) 빠르게 반복합니다.
- 각 슬라이드에 대해 소광 용액 단계를 반복하기 전, 절편이 마르지 않도록 1x TBS를 가해 둡니다.
- 슬라이드를 하나씩 처리하며 TBS를 완전히 흡입하여 제거한 후, 각 조직 절편에 DAPI가 포함된 봉입제를 최소 한 방울 가합니다. 슬라이드 위에 커버슬립을 덮고 커버슬립 가장자리를 매니큐어로 밀봉하여 봉입제의 증발이나 커버슬립의 움직임을 방지합니다. 모든 슬라이드에 대해 이 과정을 반복합니다.
- 즉시 이미징하지 않는 경우, 장기 보관을 위해 슬라이드를 -20 °C에 보관하십시오.
결과
C1q는 약 450 kD 크기의 단백질로, 신체 전반에 걸쳐 높게 발현되며 고전 보체 경로의 핵심 구성 요소로서 선천 면역계에서 명확한 역할을 수행합니다. 하지만 뇌 내에서 C1q의 기능적 역할은 여전히 연구 중에 있습니다. 뇌의 C1q는 주로 뇌의 상주 면역 세포 집단인 미세아교세포(microglia)에 의해 생성 및 방출됩니다9. 정상적인 뇌 발달 과정에서의 시냅스 제거, 학습 및 기억, 그리고 질병 상황과 같은 과정에서 C1q의 역할이 반복적으로 입증되었습니다10,11,12,13,14. 또한 설치류와 비인간 영장류 모두에서 뇌가 노화됨에 따라 C1q가 신경 구조 내부 또는 바로 인접한 곳에 축적되는 것이 관찰되었습니다9,15,16. 본 연구실은 노화 과정 중 뇌 내 C1q 축적이 가져오는 기능적 결과에 관심을 가지고 있습니다. 본 연구를 통해 성체 및 노화된 설치류에서 C1q가 RNA 결합 단백질을 포함한 신경세포 내 단백질과 상호작용한다는 것을 발견했습니다8. T 세포가 다른 세포 유형에서 유래된 C1q를 내부로 섭취한다는 것이 이전에 밝혀졌으므로17, 저희는 신경세포 또한 in vivo에서 외인성 C1q를 내부로 섭취할 수 있는지 확인하였습니다.
본 연구에서는 먼저 3개월령 수컷 마우스에 2 µL의 C1q 단백질을 편측 뇌실 내(ICV) 주입하였습니다. C1q는 야생형 성체 뇌에서 발현되므로, 두 가지 접근 방식을 사용하였습니다. 첫째, C1q -/- (넉아웃) 마우스에 C1q 단백질을 주입하였고, 둘째, C1q +/+ (야생형) 동물에서 내인성 C1q 단백질과 외인성 C1q 단백질을 구별하기 위해 594-maleimide 접합을 통해 C1q를 형광 표지하였습니다. 단백질은 10 mM HEPES, 300 mM NaCl, pH 7.2 완충액에 현탁하여 1 mg/mL 농도로 투여하였습니다. 좌반구 ICV 주입을 위해 사용된 정위 고정 좌표는 X = +1.0 mm, Y = -0.4 mm, Z = -2.5 mm였으며, 주입 속도는 500 nL/min였습니다. 역류를 줄이기 위해 주입에 사용된 유리 미세침을 주입 종료 후 5분 동안 그대로 둔 다음 제거하였습니다. 주입 1시간 후 조직을 수집하여 시상면 절편의 면역조직화학 분석을 진행하였습니다. 주입이 성공적으로 이루어지면 정위 고정 표적 부위에 국소적인 형광이 나타나야 합니다.
먼저 C1q -/- 마우스에서 전체 면역조직화학법 절차(단계 6.1–6.17)를 거친 후, 좌반구(그림 3A)와 우반구(그림 3B)의 30 µm 시상절편을 이미징하였습니다. 뉴런 세포체(cyan)를 시각화하기 위해 anti-NeuN 항체를 사용하였으며, 1시간 전 좌심실에 주입한 비표지 C1q를 시각화하기 위해 anti-C1q 항체(red)를 사용하였습니다. 좌반구의 뇌실 주변 실질에서 풍부한 C1q가 관찰되었으며, 해마 CA3 영역의 뉴런 세포체와 C1q 사이에 높은 공국소화(colocalization)가 나타났는데(그림 3A), 이는 내인성 C1q 발현이 있는 야생형 마우스에서 관찰되는 것과 유사합니다. 예상대로 주입 1시간 후 대조측 반구의 뇌실 주변(또는 실질 어디에서도)에서는 주입된 C1q가 관찰되지 않았습니다(그림 3B). 다음으로 C1q-594를 ICV 주입한 C1q +/+ 야생형(C57BL/6J) 마우스의 뇌를 이미징하였습니다. 이를 통해 자가형광 억제 및 DAPI(blue)를 이용한 커버슬립 밀봉 과정(단계 6.12–6.17)만으로도 30 µm 시상절편에서 C1q-594(magenta)를 시각화할 수 있음을 확인하였습니다. 주입된 좌반구에서는 형광 표지된 주입 C1q(magenta)가 동일한 뇌실 주변 분포로 관찰되었습니다(그림 3C).
신경세포 공국소화를 확인하기 위해, 2개월령의 C1q -/- 수컷 2마리를 대상으로 2차 실험을 수행하였다. 한쪽 뇌반구에는 C1q-594 2 µL를 ICV 주입하였고, 다른 쪽 뇌반구에는 열 불활성화(HI)된 C1q-594 2 µL를 주입하였다. 열 불활성화는 594-maleimide 접합 후, 준비된 단백질의 절반을 56 °C로 설정된 히트 블록에 30분 동안 두어 수행하였다. 열 불활성화는 천연 C1q 단백질 구조를 변형시키고 활성화를 방해하는 것으로 이전에 밝혀진 바 있다18. 현탁액 완충액(50 mM HEPES, 150 mM NaCl, pH 7.5) 내 200 µg/mL 농도의 정상 천연 C1q는 용액 상태에서 가용성적이며, 명시야 현미경 하에서 가시적인 응집체를 형성하지 않는다(Figure 4A). 반면, 동일한 단백질 조제물을 가열했을 때는 명시야 하에서 가시적인 응집체가 관찰되었으며(Figure 4B), 이는 단백질의 구조적 변화를 시사한다. 다음으로, HI-C1q를 in vivo로 주입했을 때 C1q의 신경세포 섭취가 변화하는지 확인하였다. 주입 1시간 후 뇌를 수집하였고, 각 뇌반구를 위 프로토콜에 설명된 것과 동일하게 처리하였다. 20 µm 시상단면 절편에서 신경세포를 식별하기 위해 면역조직화학 염색을 수행하였다. NeuN+ 신경세포(cyan)와 C1q-594(red)를 포착하기 위해 해마 CA3 영역의 동일한 설정으로 40배율 이미지를 획득하였다(Figure 5A,B). 정상 C1q-594를 주입한 뇌반구에서는 강력한 C1q 표지가 관찰된 반면(Figure 5A), HI-C1q-594를 주입한 뇌반구의 CA3에서는 C1q-594가 관찰되지 않았으나, 형광 단백질이 뇌실 가장자리 주변에 모여 있는 것은 관찰되었으며(Figure 4C), 이는 신경세포 섭취라는 정상적인 C1q 단백질 기능의 변화와 일치한다. 눈가림 처리된 실험자가 8개의 40배율 시야에서 NeuN+ 세포를 수동으로 정량화한 결과, 뇌반구 간 CA3의 신경세포 밀도에는 변화가 없었으나(Figure 5D), C1q+ 신경세포의 비율은 HI-C1q-594를 주입한 뇌반구에서 유의미하게 감소하였다(Figure 5C). 이는 양측 꼬리 t-test로 확인되었다(p = 0.026, n = 동물 2마리, 동물당 각 뇌반구의 이미지 2장 분석).
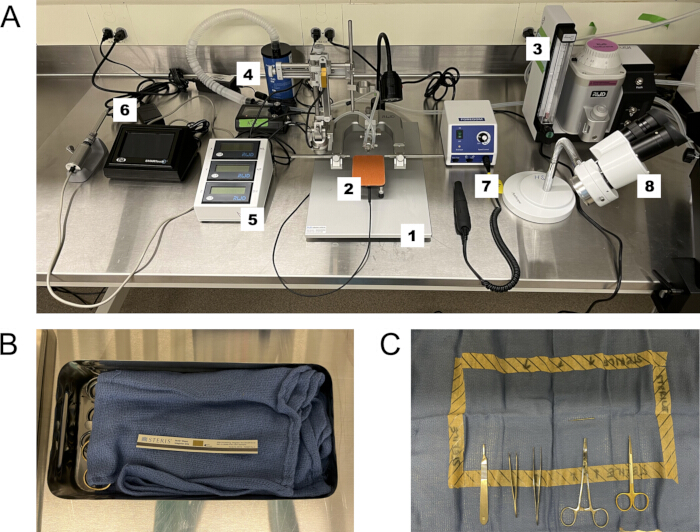
그림 1: 수술 설정 및 수술 무균 구역 준비. (A) 수술 장비: 1. 스테레오택스, 2. 설치류 가온기, 3. 이소플루레인 기화기, 4. 이소플루레인 회수 캐니스터, 5. 디지털 스테레오택스 암, 6. 마이크로인젝터, 7. 드릴, 8. 실체 현미경. (B) 오토클레이브 처리된 도구 및 멸균 상태를 확인하기 위한 증기 지시 strips가 부착된 무균 구역 수술 타월. (C) 오토클레이브 처리된 도구들은 오토클레이브 처리된 수술 타월에 지정된 무균 구역 내에 "팁이 안쪽으로" 향하도록 조심스럽게 배치한다. 손잡이는 무균 중심 구역 바깥에 두며, 도구의 팁은 베타딘과 70% ethanol로 멸균한 후에만 동물에 접촉해야 한다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
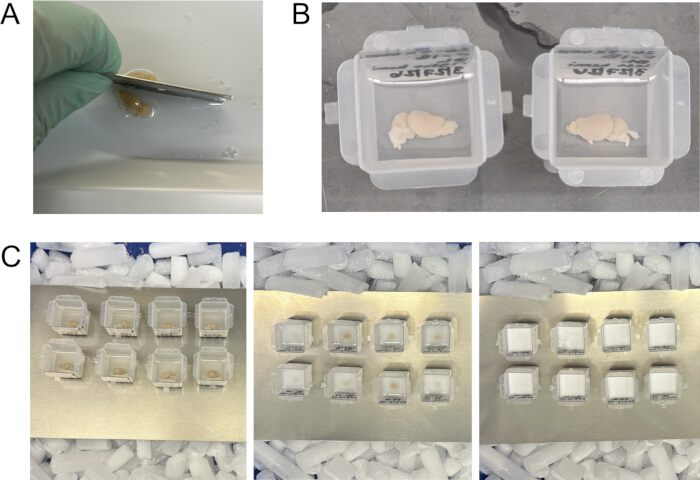
그림 2: 시상면 절편 제작을 위한 뇌 처리 및 동결 과정. (A) 면도날을 사용하여 뇌의 정중선을 따라 절단한 후, 각 뇌반구의 정중선 면이 아래로 향하도록 동결 몰드에 배치한다. (B) 동결 매립제와 PBS 내 30% sucrose를 50:50 비율로 혼합하여 몰드에 채운다. (C) 몰드에 담긴 뇌를 드라이아이스 위에서 동결시킨다(왼쪽). 완전히 동결되면 불투명하게 변한다(오른쪽). 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
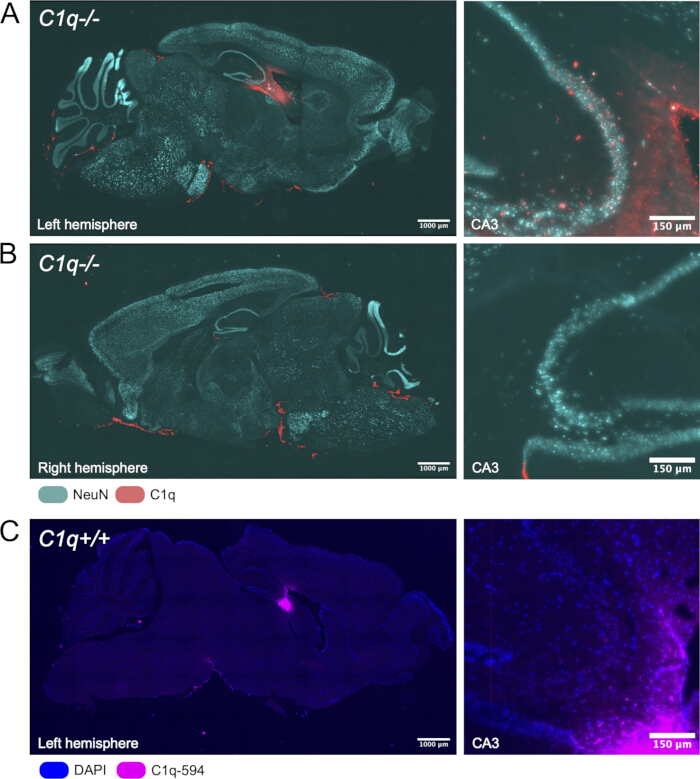
그림 3: C1q 단백질을 뇌실 내(ICV) 투여한 후 1시간 뒤의 대표적인 결과. (A) 주입된 반구에서 C1q 단백질(빨간색)과 NeuN+ 신경세포체(청록색)를 나타낸 시상면 절편 및 뇌실에 인접한 CA3 해마 영역의 확대 사진. (B) 동일한 동물의 주입 반대측 반구 시상면 절편에서 C1q 단백질(빨간색)과 NeuN+ 신경세포체(청록색) 및 CA3의 확대 사진. (C) 594-maleimide 접합을 통해 형광 표지된 C1q(마젠타색)를 ICV로 주입한 야생형 동물의 시상면 절편으로, 면역조직화학법으로 증폭하지 않고 DAPI(파란색)로 커버글라스를 덮어 염색한 결과 및 CA3의 확대 사진. 왼쪽 이미지 스케일 바 = 1000 µm, 오른쪽 이미지 스케일 바 = 150 µm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
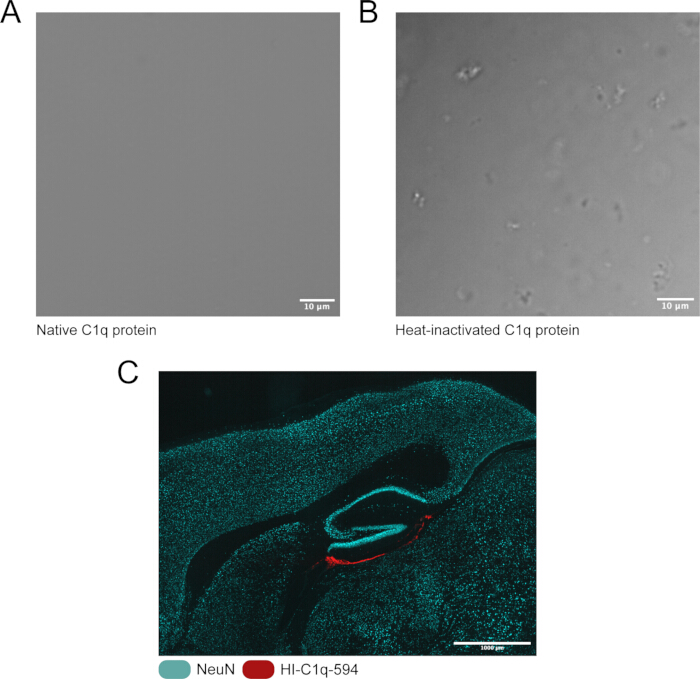
그림 4: C1q 단백질의 열 불활성화. (A) 버퍼(50 mM HEPES, 150 mM NaCl, pH 7.5)에 200 μg/mL 농도로 현탁된 천연 C1q 단백질을 명시야 현미경으로 촬영한 이미지. (B) 동일한 버퍼와 농도로 현탁된 동일한 C1q 단백질 소스를 명시야 현미경으로 촬영하기 전, 56 °C에서 30분 동안 열 처리한 이미지. (C) ICV 주입 1시간 후 시상단면에서의 열 불활성화(HI)-C1q-594(적색)와 NeuN+ 세포(청색)의 국소화. 상단 스케일 바 = 10 µm, 하단 스케일 바 = 1000 µm. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
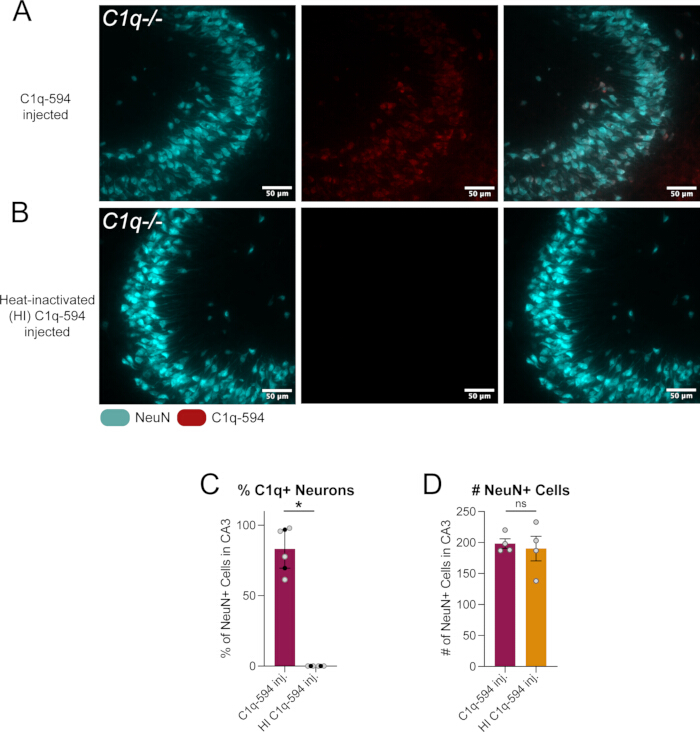
그림 5: 해마 뉴런 내의 정상 C1q 단백질과 열불활성화 C1q 단백질 섭취량의 정량 분석. (A) C1q-594를 1 h 전에 주입한 뇌실 인접 해마 CA3 영역의 시상단면. NeuN+ 뉴런 세포체 (cyan), C1q-594 (red), 그리고 두 이미지의 중첩. (B) 열불활성화 (HI)-C1q-594를 1 h 전에 주입한 뇌실 인접 해마 CA3 영역의 시상단면. NeuN+ 뉴런 세포체 (cyan), C1q-594 (red), 그리고 두 이미지의 중첩. (C) 40x 시야 내에서 C1q-594+인 NeuN+ 세포의 백분율 정량 분석, 양측 t-test. (D) 40x 시야 내 NeuN+ 세포 수의 정량 분석, 양측 t-test. 스케일 바 = 50 µm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 단백질 표지 | 항체 | |
| 시각화 | 직접 방식, 항체에 의존하지 않음 | 항원 가용성에 따라 다른 단백질과 교차 반응성이 나타날 수 있음 |
| 준비 과정 | 표지(labeling) 과정이 단백질의 구조와 기능을 변화시킬 수 있으므로, 관심 단백질의 준비 및 검증에 더 많은 시간과 고도의 기술적 과정이 소요될 수 있습니다. 반응 수율이 낮을 수 있으며, 이를 위해 다량의 투입 단백질이 필요할 수 있습니다. | 별도의 준비 과정 없이, 이미 검증되어 상용화된 다양한 항체들을 사용할 수 있습니다. |
| 실험적 유연성 | 원할 경우 실시간 추적 가능 | 고정이 필요함 |
| 민감도 | 화학 양론으로 인한 제한된 민감도 | 증폭 가능하게 함 |
표 1: 단백질 표지의 장점과 단점 대조항체 검출.
토론
점점 더 복잡해지는 분비 인자들의 레퍼토리에 의해 매개되는 중추신경계(CNS) 항상성 유지에서 미세아교세포가 중요한 역할을 한다는 증거가 계속해서 나타나고 있습니다5. 정의된 시공간적 방식으로 미세아교세포 유래 인자들을 전달할 수 있는 능력은 다양한 환경적 및 유전적 조건 하에서 복잡한 신경면역 소통을 분석하는 데 유용한 도구를 제공합니다.
이 방법은 다양한 생물학적 질문에 답하기 위해 쉽게 조정될 수 있습니다. 이 방법은 이전에 매우 큰 단백질인 C1q가 신경 세포 기능에서 수행하는 역할을 더 잘 이해하기 위해 사용되었으나8, 다른 거대 단백질뿐만 아니라 사이토카인 및 케모카인과 같은 작은 단백질의 역할을 조사하는 데에도 적용될 수 있습니다. 사이토카인과 케모카인의 면역학적 역할은 in vivo에서 어느 정도 잘 알려져 있지만, 이러한 인자들은 종종 스트레스 요인에 반응하여 광범위하게 동시에 방출됩니다. 또한, 다양한 면역 인자들의 비면역적/비정형적 역할, 특히 항상성 유지 역할이 점점 더 분명해지고 있습니다. 이 방법을 사용하면 특정 뇌 영역에서 개별적인 특정 인자들에 대한 조사뿐만 아니라, 항상성 유지에서 이러한 인자들이 수행하는 역할까지 연구할 수 있습니다. 이 프로토콜의 또 다른 유용한 응용 분야는 녹아웃 라인이나 특정 질환 모델과 같은 형질전환 마우스 라인에 관심 단백질을 투여하는 것입니다. 해당 단백질이 내인성으로 발현되지 않는 마우스에서 관심 단백질의 정확한 위치와 양을 제어할 수 있는 능력은, 단백질의 급성 국소 투여가 행동 변화와 같은 효과를 유도하는지 결정하는 데 사용될 수 있습니다. 또는, 주입된 인자의 기능에 중요할 것으로 가설이 세워진 특정 수용체나 신호 전달 단백질이 결핍된 형질전환 라인에 주입하여 실험할 수도 있습니다.
또한, 단백질 기능에 대한 기전적 이해를 높이기 위해 미세아교세포 유래 인자의 두개내 투여를 다른 인자의 주입과 병행하여 수행할 수 있습니다. 예를 들어, 미세아교세포 유래 단백질인 C1q가 뉴런으로 어떻게 진입하여 번역 기구와 상호작용하는지 확인하기 위해, 본 연구진은 이전에 이 기술을 사용하여 C1q 주입 30분 전에 엔도사이토시스 억제제를 함께 투여하였습니다. 이를 통해 C1q가 뉴런으로 진입할 수 있음을 확인하였습니다. ~을 통해 억제제를 함께 처리했을 때 뉴런 내 C1q가 유의미하게 감소한 것으로 보아, 이는 세포내섭취(endocytosis)에 의한 것입니다.8차단 항체나 가설상의 다른 경쟁적 결합 인자를 투여하여 유사한 실험을 수행할 수 있습니다. 이러한 공동 투여 실험은 주사 간격을 연장하거나 단축함으로써 시간적으로 조절할 수 있으며, 예를 들어 한 인자를 다른 인자보다 30분 전에 주사하거나, 5분 전 또는 1시간 전에 주사하는 방식으로 수행할 수 있습니다.
이 방법론을 사용하여 실험을 설계할 때는 여러 요인을 고려해야 하며, 우선적으로 표적 단백질을 검출하기 위한 전략부터 설정해야 합니다. 본 과정에서는 단백질의 직접 형광 표지(그림 3C)와 항체를 이용한 면역조직화학적 검출(그림 3A)이라는 두 가지 대표적인 접근 방식이 제시되었으며, 각각 뚜렷한 장점과 한계가 있습니다(표 1). 항체 기반 검출은 감도가 매우 높고 신호 증폭이 가능하지만, 조직 고정 과정이 필요하므로 단백질 동역학의 라이브 이미징과 같은 응용 분야에는 적합하지 않습니다. 직접 형광 표지는 이러한 한계를 피할 수 있으나 단백질 자체의 변형이 필요하며, 이는 단백질의 특성에 영향을 줄 수 있으므로 반드시 검증되어야 합니다. 어떤 접근 방식을 사용하든 세심한 검증은 필수적입니다. 상용 항체는 널리 보급되어 있으나 비특이적 결합이나 교차 반응이 나타날 수 있으므로 특이성 테스트가 매우 중요합니다. 가능한 경우, 야생형 조직과 단백질 녹아웃 조직의 염색 결과를 비교하는 것과 같이 적절한 대조군을 사용하여 항체의 성능을 확인해야 하며, 이는 항체 검증의 표준 방법으로 남아 있습니다.
반면, 직접 형광 표지법은 실험에 사용하기 전 준비와 검증 과정이 모두 필요합니다. 이 방법은 항체에 의존하지 않고 단백질을 직접 시각화할 수 있게 해주지만, 형광 태그가 단백질의 구조, 위치, 상호작용 또는 기능을 변화시키지 않는지 확인하는 것이 필수적입니다. 적절한 검증 방법은 단백질마다 다르지만, Western blot을 통해 예상 분자량을 확인하거나, 정상적인 세포 또는 세포 내 위치를 검증하거나, 공면역침전법(co-immunoprecipitation)과 같은 분석법을 통해 알려진 단백질-단백질 상호작용이 유지되는지 평가하는 방법 등이 포함될 수 있습니다. 결과적으로 항체 기반 검출과 직접 단백질 표지법은 각각 고유한 장점과 한계가 있으며, 가장 적절한 접근 방식은 관심 단백질과 기발표된 권장 사항19에 맞춘 예비 연구를 통해 경험적으로 결정해야 합니다.
이 방법론의 신뢰성을 확보하기 위해서는 실험자가 선택한 뇌정위 좌표와 주입 단백질 농도를 사전에 경험적으로 최적화하고 검증하는 것이 중요합니다. 좌표 검증은 Fast Green과 같은 염료를 시험 주입한 후, 주입 직후에 뇌를 수거함으로써 수행할 수 있습니다. 이를 통해 관심 영역에 염료가 국소화되었는지 시각적으로 확인하고, 가능한 가장 정확한 주입을 위해 좌표를 조정할 수 있습니다. 저자들은 관심 영역에 대한 정확한 뇌정위 좌표를 결정하기 위해 이전에 발표된 논문을 참고하거나, Protocol에 설명된 대로 bregma-lambda 비율을 기반으로 대형 또는 소형 마우스에서 테스트할 좌표를 계산하는 것을 권장합니다.
주입한 단백질에 대해 실험적 결론을 도출하기 위해서는, 잘 설계된 실험에 반드시 고려되고 포함되어야 할 몇 가지 핵심 대조군이 있습니다. 미세아교세포 유래 단백질을 연구하는 데에는 내재적인 어려움이 따릅니다. ~을 통해 두개내 투여. 실험자가 특정 뇌 영역에서 특정 단백질에 대한 반응에 관심을 가질 경우, 수술 자체가 염증을 유발하여 연구 결과에 혼동을 줄 수 있습니다. 면역 관련 단백질을 고려할 때 가장 수행하기 쉬운 방법은 수술 대조군을 설정하는 것으로, 위수술(단백질 주입을 제외한 모든 단계 수행) 또는 용매 대조군 주입(모든 단계를 수행하되, 단백질 대신 동일한 부피의 단백질 완충액만 주입) 중 하나 또는 둘 모두를 실시합니다. 이는 수술이나 조직 손상에 따른 효과와 단백질 자체에 의한 결과를 구분하는 데 도움이 됩니다. 더욱 확실한 방법은 비활성 단백질이나 무관한 단백질을 동일한 부피와 농도로 주입하는 대조군을 포함하는 것입니다. 이때 실험 단백질과 비교하여 대조 단백질의 상대적인 크기를 고려하는 것이 중요합니다. 예를 들어, C1q는 매우 큰 단백질(~450 kD)이므로, bovine serum albumin(~66 kD)과 같은 일반적인 대조 단백질을 주입하는 것은 가장 적절한 방법이 아닐 수 있습니다. 따라서 본 실험에서는 열불활성화된 C1q를 비활성 단백질 대조군으로 사용하였습니다. 수집 전 설정한 시간 범위 내에서 주입된 단백질의 확산 정도에 따라, 다음과 같이 실험적으로 주입한 반구의 반대측 반구에 이러한 대조 조건 중 하나를 포함함으로써 피험자 내 대조군으로 수행할 수 있습니다. 대표 결과 (그림 4 그리고 그림 5).
실험 설계 시 중요한 고려 사항은 조직 고정 전략입니다. 고정의 종류와 기간 모두 단백질 시각화, 조직 형태 및 일부 경우에는 단백질 기능에 깊은 영향을 미칠 수 있기 때문입니다. paraformaldehyde (PFA)와 같은 가교 고정제는 일반적으로 조직 구조를 우수하게 보존하지만, 과도한 단백질 가교로 인해 고정 민감성 에피토프의 검출 능력을 감소시키고, 자가형광을 증가시키며, 항원 회복 과정이 필요할 수 있습니다. 반면, 알코올, 아세톤 또는 메탄올 기반 용액과 같은 비가교 고정제는 고정 민감성 단백질을 더 잘 보존하는 경우가 많으나 조직의 무결성을 손상시킬 수 있습니다. 이러한 트레이드오프는 실험 목표에 따라 슬라이드상 고정을 이용한 신선 동결 절편 사용, 식염수 관류 후 짧은 PFA 침지, 또는 표준 관류 고정 등의 고정 기간과 방법을 최적화함으로써 완화할 수 있습니다. 모든 응용 분야에 최적화된 단일 고정 전략은 없으므로, 연구자는 조직 보존과 단백질 검출 사이의 최적의 균형을 맞추기 위해 주요 실험 종점을 기준으로 고정 조건을 선택하고 경험적으로 최적화해야 합니다.
본 프로토콜의 목적은 실험 결과를 정량화하는 방법을 규정하기보다 단백질 전달을 표준화하는 것이지만, 연구 목적에 따라 여러 가지 접근 방식이 유용할 수 있습니다. 본 예시에서는 세포 마커(예: 뉴런의 경우 NeuN)에 대한 항체로 면역 라벨링을 수행하고 관심 단백질과의 공국소화(colocalization)를 정량화하여 세포 유형별 단백질 섭취를 평가하지만(그림 5), 형광 리포터 마우스 라인을 사용하는 것이 특정 세포군을 식별하는 대안적인 수단이 될 수 있습니다. 또 다른 중요한 결과는 단백질 확산이며, 이는 주입된 단백질의 생화학적 특성에 의해 강한 영향을 받습니다. 단백질 확산의 정확한 특성 분석이 필요한 경우, 뇌내 전달 후 정해진 시점에서 주입 분포와 조직 확산을 추정하기 위해 특정 분자량을 가진 덱스트란과 같은 불활성 형광 추적자를 함께 주입하는 것을 권장합니다. 이러한 실험들은 대표 결과(Representative Results) 섹션의 실험 파라미터를 결정하기 위해 저자들에 의해 이전에 수행되었습니다8.
마지막으로, 트러블슈팅 과정에서 단백질 검출 및 두개내 전달의 최적화가 필요할 수 있습니다. 일반적인 어려움 중 하나는 관심 단백질로부터 신뢰할 수 있는 형광 신호를 얻는 것입니다. 앞서 논의한 바와 같이, 고정 전략은 신호 품질의 주요 결정 요인입니다. 높은 자가형광과 함께 실제 형광 신호가 약하게 나타나는 경우, 우선 조직 고정 시간 및/또는 범위를 줄이는 것을 권장합니다. 과고정은 흔히 발생하며, 이는 자가형광 증가와 표적 신호 감소 모두의 원인이 될 수 있기 때문입니다. 본 프로토콜에는 자가형광 소광 용액이 포함되어 있어 표적 형광의 신호 대 잡음비를 개선할 수 있습니다. 주입 절차가 올바르게 수행되면 조직 손상은 최소화되어야 합니다. 주입기 진입 지점에서 공동화(cavitation)나 병변 형성이 관찰되지 않아야 합니다. 이러한 현상이 발생하는 경우, 조직을 깨끗하게 관통할 수 있도록 글라스 풀 파이펫(glass-pulled pipette)의 제작 과정을 최적화해야 할 수도 있습니다. 예를 들어, 파이펫 팁이 충분히 단단하여 뇌 실질과 접촉 시 휘어지지 않는지 확인하고, 필요에 따라 베벨(bevel)을 조정하여 부드러운 진입을 돕는 날카로운 모서리를 만들어야 합니다. 뇌 심부 영역에 주입하는 경우, 주입기가 뇌 표면에 닿지 않고 표적 영역에 도달할 수 있도록 풀 파이펫의 길이를 늘려야 할 수도 있습니다. 뇌실이 아닌 뇌 실질에 직접 주입물을 전달할 때는 부종을 최소화하고 주입 지점의 공동화를 방지하며, 파이펫 제거 시 주입물의 역류를 줄이기 위해 적은 주입량(<1 µL)을 권장합니다. 또한 천천히 주입(<500 nL/min)하고, 주입 완료 후 파이펫을 제거하기 전 5–10 min 동안 대기하여 주입물이 주변 조직으로 확산될 수 있도록 하는 것이 좋습니다. 파이펫 제거 중 주입 경로를 따라 액체가 역류하는 것이 관찰되거나 면역 조직 화학 처리 후 주입 경로를 따라 액체가 검출되면, 주입량 및/또는 주입 속도를 줄이고 주입 후 대기 시간을 연장해야 합니다.
공개 사항
저자들은 이해관계의 충돌이 없음을 밝힙니다.
감사의 글
본 연구는 국립 알츠하이머 조정 센터(NACC; NSH), 알츠하이머 협회(NSH) 및 듀크 뇌과학 연구소(DIBS) Germinator Award(JD)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.9% 식염수 (약제 등급) | Cytiva | Z1376 | |
| 30 mL 주사기 | Becton, Dickinson and Company (BD) | 302832 | |
| 70% 에탄올 | Koptec | UN1170 | |
| Alexa Fluo 594 C5 Maleimide | Invitrogen | A10256 | |
| 마취 기화기 | 실제 임상 데이터 (Real-World Data) | TAIJI-IE | |
| 비드 멸균기 | VWR | 75999-324 | |
| 소혈청알부민 | Genessee Scientific | 25-529 | |
| 나비바늘 - Vacutainer Safety-Lok | Becton, Dickinson and Company (BD) | 367281 | |
| 커버슬립 - 50 mm No. 1 | Avantor (VWR) | 48393-081 | |
| 디지털 설치류 뇌정위 고정 장치 | 실제 임상 데이터(Real World Data) | 68803 | |
| 일회용 동결 몰드 | 전자현미경 과학 | 70182 | 성체 마우스 뇌 시상절편용 22 mm x 22 mm |
| 해부 현미경 | Leica | MZ FLIII | |
| 포매제 - Tissue-Tek OCT | 사쿠라 | 4583 | |
| 안구 윤활제 | Optixcare | OPX-4242 | |
| 유리 피펫 풀러 | Sutter Instrument Co. | 모델 P-30 | 우리는 1.14 MM, 3.5를 사용합니다." 당사 인젝터용 크기 |
| 유리 피펫 | World Precision Instruments | 504949 | |
| 염소 항-토끼 AF594 2차 항체 | Invitrogen | A-11012 | |
| 염소 항-쥐 AF488 2차 항체 | Invitrogen | A-11006 | |
| 제모 크림 | 나이르 | 42016527 | |
| 가열 스테이지 - Rodent Warmer X1 | Stoelting | 53800M | |
| 드릴 비트가 포함된 고속 회전식 마이크로모터(드릴) | Stoelting | 51449 | |
| 이소플루란 | Dechra | 이소스파이어(Isospire) | |
| 마이크로인젝터 및 컨트롤러 | 분리유청단백질 | 나노리터2020 | |
| 현미경 슬라이드 | 프리미어 | 8348 | |
| 경질 미네랄 오일 | Fisher Scientific Education | S25439 | |
| DAPI 함유 봉입제 | Sigma-Aldrich | F6057 | |
| 매니큐어 | 전자현미경 과학 | 72180 | |
| 천연 마우스 보체 C1q 단백질 | Creative Biolabs | CTP-463 | 다른 제조사의 제품에는 뇌 C1q의 정상적인 역동성을 억제하는 분자 오염 물질이 포함되어 있을 수 있습니다. |
| 팹 펜 - ImmEdge Pen | Vector Laboratories | H-4000 | |
| 파라포름알데히드 - 16% | 전자현미경 과학 | 15710 | 4%로 희석하십시오. |
| 인산완충식염수 (PBS) | Sigma-Aldrich | P3813 | |
| 포비돈-요오드 용액, 10% (w/v) | 리카 | 3955-16 | |
| 토끼 항 C1q 1차 항체 | Abcam | ab182451 | |
| Rat anti NeuN (RBFOX3) 1차 항체 | Biolegend | 608451 | |
| 사포닌 | Sigma-Aldrich | 47036 | |
| 메스 날 - 10번 | VWR | 76457-442 | |
| 증기 지시 스트립 | Steris | 801010 | |
| Puritan 멸균 면봉 도포기 | 퓨리탄 | 25-806 1WC | |
| 자당 | Sigma-Aldrich | 84097 | |
| 수술용 타월 | McKesson | 16-6006-B | |
| 조직 접착제 - Vetbond | 3M | 1469SB | |
| Tris 완충 식염수 | Sigma-Aldrich | T5941, S7653 | |
| 트루블랙(TrueBlack) | BIOTIUM | 23007 |
참고문헌
- Medawar PB. Immunity to homologous grafted skin; the fate of skin homografts transplanted to the brain, to subcutaneous tissue, and to the anterior chamber of the eye. Br J Exp Pathol. 1948;29(1):58-69.
- Medawar PB. Immunological tolerance. Nature. 1961;189:14-17.
- Guo X, et al. Neuro-immune crosstalk: molecular mechanisms, biological functions, diseases, and therapeutic targets. MedComm (2020). 2026;7(2):e70497.
- Castellani G, Croese T, Peralta Ramos JM, Schwartz M. Transforming the understanding of brain immunity. Science. 2023;380(6640):eabo7649.
- Di Pietro AA, et al. Microglia in systemic neuroimmune communication: functions beyond phagocytosis. Trends Immunol. 2026;47(6):495-510.
- Zhou L, Wang Y, Xu Y, Zhang Y, Zhu C. A comprehensive review of AAV-mediated strategies targeting microglia for therapeutic intervention of neurodegenerative diseases. J Neuroinflammation. 2024;21(1):232.
- Yue W, Shen J. Local delivery strategies for peptides and proteins into the CNS: status quo, challenges, and future perspectives. Pharmaceuticals (Basel). 2023;16(6):810.
- Scott-Hewitt N, et al. Microglial-derived C1q integrates into neuronal ribonucleoprotein complexes and impacts protein homeostasis in the aging brain. Cell. 2024;187(16):4193-4212.e4124.
- Fonseca MI, et al. Cell-specific deletion of C1qa identifies microglia as the dominant source of C1q in mouse brain. J Neuroinflammation. 2017;14(1):48.
- Stevens B, et al. The classical complement cascade mediates CNS synapse elimination. Cell. 2007;131(6):1164-78.
- Schafer DP, et al. Microglia sculpt postnatal neural circuits in an activity and complement-dependent manner. Neuron. 2012;74(4):691-705.
- Hong S, et al. Complement and microglia mediate early synapse loss in Alzheimer mouse models. Science. 2016;352(6286):712-6.
- Wang C, et al. Microglia mediate forgetting via complement-dependent synaptic elimination. Science. 2020;367(6478):688-94.
- Stevens B, Johnson MB. The complement cascade repurposed in the brain. Nat Rev Immunol. 2021;21(10):624-5.
- Stephan AH, et al. A dramatic increase of C1q protein in the CNS during normal aging. J Neurosci. 2013;33(33):13460-74.
- Datta D, et al. Classical complement cascade initiating C1q protein within neurons in the aged rhesus macaque dorsolateral prefrontal cortex. J Neuroinflammation. 2020;17(1):8.
- Ling GS, et al. C1q restrains autoimmunity and viral infection by regulating CD8. Science. 2018;360(6388):558-63.
- Zubler RH, Lange G, Lambert PH, Miescher PA. Detection of immune complexes in unheated sera by modified 125I-C1q binding test: effect of heating on the binding of C1q by immune complexes and application of the test to systemic lupus erythematosus. J Immunol. 1976;116(1):232-5.
- Obermaier C, Griebel A, Westermeier R. Principles of protein labeling techniques. Methods Mol Biol. 2015;1295:153-65.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공