본 논문에서는 신입 연구자들을 위해 기술적으로 접근 가능하고 비용 효율적인 벌레 초기 발생 이미징 프로토콜을 설명합니다.
방법 논문
벌레 초기 발생 영상화: 신입 연구자를 위한 실무 매뉴얼
* These authors contributed equally
이 논문에서
요약
초록
2025년 제25회 국제 예쁜꼬마선충 회의(International Worm Meeting)에서 발표된 Caenorhabditis Genetics Center (CGC)의 균주 분배 기록에 따르면, 전 세계 80개국의 약 8,000개 연구실에서 이 동물들을 연구에 사용하고 있습니다. 특히 경험이나 자원이 부족한 연구실에서는 선충의 행동에 대한 직접적인 데이터를 생성하기 위해 지속 가능한 배양 및 유지 플랫폼을 구축하는 것이 필수적입니다. 본 프로토콜에서는 Caenorhabditis elegans를 예로 들어, 신입 연구자들이 기본적인 선충 취급 및 이미징 워크플로우를 구축할 수 있는 실무적인 방법을 제시합니다. 이어서 현미경 이미징을 위해 선택된 초기 발달 단계에서 정상 및 섭동된 C. elegans 샘플을 수집하는 절차를 설명합니다. 이미징 대상에는 생식세포 발달(체세포 분열 및 감수 분열), 수정 전 난모세포, 난모세포-정자 전핵의 이동 및 융합, 가성분열, 그리고 개체로 성장하는 배아 발달(체세포 분열)이 포함됩니다. 배아 및 전신 이미징은 비교적 간단하지만, 정밀한 생식선 및 배아 해부, 신속한 샘플 수집, 마운팅, 타임랩스 이미징 및 기본적인 이미지 분석을 용이하게 하기 위해 개선된 가이드라인과 기술적 팁을 제공합니다.
서론
선충은 매우 재현성 높은 발달 프로그램과 유전자 섭동을 통해 밝혀진 다양성3,4,5,6 및 관련 종들7,8,9,10 덕분에 생의학 연구에서 가장 강력한 모델 생물 중 하나로 꼽힙니다1,2. 1960년대 Sydney Brenner에 의해 도입된 이후, Caenorhabditis elegans (C. elegans)는 작은 크기, 광학적 투명성, 3일의 짧은 생애 주기, 완전히 규명된 세포 계보, 서열 분석 및 주석 처리된 게놈, 그리고 유전자 기능을 제어하기 위한 고급 유전학적 툴킷을 갖춘 대표적인 모델로 부상했습니다11,12,13,14,15,16. 이러한 연구의 핵심은 현미경을 통해 동적인 생물학적 사건을 시각화하는 능력이며, 특히 감수 분열과 체세포 분열부터 완전한 개체 형성에 이르는 발달의 연속체인 생식선과 배아에서 그러합니다17. 이 과정 전반에 걸쳐 신속한 감수 분열과 연속적인 체세포 분열, 그리고 다세포 재구성이 놀라운 시공간적 정밀도로 진행됩니다17.
일반적으로 in vitro로 모니터링하는 배아와 비교하여, in vivo 생식선은 단일 조직 내에서 감수 분열과 체세포 분열을 모두 연구하기에 이상적인 시스템입니다. 특히 공간적으로 분리된 감수 분열 구역과 체세포 분열 구역을 통해 이 두 가지 서로 다른 세포 분열 양상을 동시에 관찰할 수 있어 새로운 연구자들에게 유용합니다 (그림 1)18. 합포체 구조로 조직된 C. elegans 생식선에서 생식 세포들은 공유된 세포질 중심핵인 rachis를 통해 서로 연결되어 있습니다18 (그림 1). 생식 세포의 증식은 원시 생식 세포(PGC)의 불완전하고 비대칭적인 분열을 통해 원위부 생식샘 팔(distal gonad arm)에서 체세포 분열로 일어납니다. 유충 4기(L4) 후기에 합포체 상태의 pachytene 정모세포들이 점진적으로 rachis에서 분리되어 근위부 생식샘 팔(proximal gonad arm)에서 감수 분열로 진입합니다19. 이는 고정/마취된 동물을 통해 in vivo로 직접 이미징하거나, 분리된 일차 정모세포를 통해 in vitro로 이미징할 수 있습니다20,21.
생식세포주와 배아에서 나타나는 생물학적 현상은 매우 풍부하며 다양한 과학 연구 분야 전반에 걸쳐 광범위하게 적용됩니다. 감수분열 성숙 이후, 생식세포 유래의 난모세포는 수정관(spermatheca)으로 진입하여 정자와 수정되며, 이는 배아 발생을 유도합니다22,23. C. elegans 배아는 발달 과정의 견고함이 매우 뛰어나 세포 극성, 세포 분열, 세포 주기 및 세포 이동의 분자적 기전을 탐구하는 데 있어 훌륭한 모델이 됩니다24,25. 성체 초기 단계의 벌레를 해부하여 새로 수정된 배아를 추출할 수 있으며, 이렇게 추출된 배아를 대상으로 난모세포-정자 전핵의 이동 및 융합, 가분열(pseudocleavage), 비대칭 세포 분열, 낭배 형성, 기관 형성 등을 포함한 주요 발달 이정표의 타임랩스 이미징을 수행할 수 있습니다.
생식선과 배아의 전체 및 부분 구조에 대한 광학적 접근은 원칙적으로 항상 가능하지만, 초심자가 출판 가능한 수준의 고품질 현미경 영상을 얻는 것은 매우 까다로운 일입니다. 문헌에 기재된 "표준" 서면 프로토콜은 종종 복잡한 절차를 간략하고 모호하게 설명하여, 해당 기술의 미묘한 "감각"을 제대로 전달하지 못하는 경우가 많습니다. 그 예로 마취제의 정확한 양, 해부 과정 중 생식선 손상을 방지하기 위해 필요한 세심한 취급, 그리고 현미경 관찰 시 정밀한 초점 평면 선정 등이 있습니다. 결과적으로 초보 연구자들은 일관되게 만족스러운 영상을 얻기까지 반복적인 멘토링, 실습 세션 및 광범위한 트러블슈팅을 거치며 수개월 동안 좌절스러운 시행착오를 겪게 됩니다. 이러한 비효율적인 지식 전달은 연구 진행을 지연시키며, 실험실 간의 데이터 해석을 저해할 수 있는 원치 않는 기술적 변동성을 유발합니다.
예를 들어, 생식세포 계열의 경우 성선(gonad)의 해부학적 복잡성과 다른 조직(예: 장)으로 인한 가려짐 때문에 in vivo 상태에서 세포 형태나 분열 역학을 관찰하기가 어렵습니다. 더욱이, 생식세포 계열은 섬세한 관형 구조와 마운팅 압력에 대한 극도의 민감성으로 인해 추가적인 어려움이 따릅니다. 따라서 일반적인 생식세포 계열 및 배아 관찰뿐만 아니라 상세한 세포 분해능 관찰을 위해 in vitro 이미징이 선호됩니다. 일례로, 성선에서 분리한 단일 근위 1차 정모세포는 두 번의 연속적인 감수분열을 마쳐 네 개의 반수체 정세포가 될 수 있으며, 조직 구조에 의한 그림자가 없으므로 더 고품질의 이미지를 쉽게 캡처할 수 있습니다. 이러한 관찰 방법은 다른 조직이나 전신으로 확장 적용될 수 있습니다26,27,28,29,30,31,32. 편리하게도 각 작업은 1 h 이내에 완료될 수 있어 타임랩스 이미징이 용이합니다.
본 논문에서는 생식세포 발달부터 배아 발달까지 선택된 발달 단계 전반에 걸쳐 적용 가능한 실용적인 단계별 타임랩스 이미징 프로토콜을 제시하며, 여기에는 이미징 절차뿐만 아니라 벌레 이미징을 처음 접하는 연구자들의 기술적 진입 장벽을 낮추기 위한 준비 단계(예: 벌레 해부)가 포함되어 있습니다33. 본 프로토콜은 생식선과 배아 모두에 대한 현미경 이미징의 실시간 시각적 시연을 강조하며, 수 시간 동안의 기록 과정에서도 생존력을 유지하는 최적화된 마운팅 절차부터 광독성/광퇴색 최소화와 신호 대 잡음비 사이의 균형을 맞추는 현미경 파라미터 설정, 그리고 기본적인 이미지 획득 단계까지 상세히 다룹니다.
프로토콜
참고: C. elegans 개체군의 성공적인 장기 유지는 후속 실험 작업의 기초가 되며, 이를 위해서는 고품질의 선충 성장 배지(NGM)의 일관된 제조, 박테리아 먹이원의 안정적인 증식, 균주 성장 및 번식을 위한 적절한 환경 조건, 그리고 오염으로 인한 배양 손실을 방지하기 위한 효과적인 전략이 필요합니다.
1. 벌레 배양 및 유지
참고: 여기서는 몇 가지 조언만 제공하며, 자세한 절차는 Wormbook34에서 확인할 수 있습니다. 칭량 및 준비 단계를 줄이려면 NGM 혼합 분말을 사용하십시오.
- 먹이가 도말된 NGM 한천 배지에서 모든 동물을 배양하십시오. E. coli OP50 배양액 내의 20 °C 야생형(WT) 및 16 °C 또는 25 °C 온도 민감성 돌연변이체(ts 돌연변이체)의 경우.
참고: 신입 연구원은 CGC 돌연변이 균주를 수령한 후 배양 온도를 확인해야 합니다.
참고: 야생형(WT) 동물은 온도가 높을수록 더 빠르게 성장하며, 온도 민감성(ts) 돌연변이체는 특정 온도에서 배아를 생성할 수 있습니다. 16 °C (허용 온도)에서는 가능하지만, 다음 온도에서는 불가능한 25 °C (특정 유전자 또는 단백질에서 기능 상실 효과를 보이는 제한 온도)35,36,37,38균주와 먹이는 CGC [https://cgc.umn.edu]에서 구매하거나 인근 실험실로부터 기증받아 확보할 수 있습니다. - 기아 상태로 만들기 전, 동물들을 새로운 플레이트로 옮깁니다(수치가 현저히 낮은). Escherichia coli (대장균(E. coli) 현미경으로 관찰한 OP50)을 첨가하여 이후 실험(~2~3일) 동안 건강한 상태를 유지하도록 합니다.
- 동물을 냉동 완충액(최종 농도가 15%가 되도록 글리세롤을 첨가한 S 완충액)에 넣어 -로 보관하십시오.80 °C 하룻밤 동안 보관한 후, 장기 보관을 위해 냉동 보관함이나 액체 질소로 옮깁니다.34.
참고: 냉동 전 모든 크라이오바이알(cryovial)에 유성 방수 네임펜으로 라벨을 부착하십시오. 수성 잉크는 초저온 보관에 적합하지 않습니다.
2. 아가로스 패드 준비
- 아가로스 3 g을 정밀하게 측정하여 250 mL 삼각 플라스크에 옮깁니다. M9 버퍼 100 mL를 첨가하고 잘 섞은 후, 아가로스가 완전히 녹을 때까지 전자레인지에서 2–3분 동안 가열합니다(이후 아가로스 버퍼라고 함).
참고: 버퍼 증발을 방지하고 삼투 농도 오차를 최소화하기 위해 플라스크 입구를 유산지로 덮으십시오. 총 부피는 실험 요구 사항에 따라 조절할 수 있습니다. - 잘 섞인 아가로스 버퍼를 1.5 mL 원심분리 튜브에 옮겨 담으며, 이는 실온에서 최대 1개월까지 보관할 수 있습니다. 보관된 아가로스는 90–100 °C로 설정된 히터 블록에서 녹입니다(갓 제조한 아가로스를 사용하는 경우 이 단계는 생략합니다).
- 200 µL 피펫 팁의 끝부분을 잘라 입구를 넓힘으로써 응고로 인한 막힘을 방지하고, 녹인 아가로스 버퍼 한 방울을 유리 슬라이드(크기: 75 x 25 mm; 두께: 0.9–1.10 mm; 종류: 소다석회 유리) 위에 떨어뜨립니다.
- 즉시 다른 슬라이드로 방울을 덮습니다. 커버슬립(크기: 22 x 22 mm; 두께: 0.25 mm)의 가장자리를 따라 아가로스 버퍼를 추가로 도포하고, 공기 방울이 생기지 않도록 주의하며 아가로스를 살짝 눌러 각 커버슬립을 완전히 둘러싸는 얇고 둥근 원형으로 만듭니다.
참고: 이렇게 하면 동물을 고정하고 탈수를 방지하기 위한 밀폐된 마이크로 챔버가 형성됩니다. 고처리량 실험을 위해 여러 개의 슬라이드를 병렬로 처리할 수 있습니다. - 사용 전 아가로스가 완전히 응고될 때까지 최소 3분 동안 식힙니다.
참고: 동물이 스트레스를 받지 않도록 아가로스 패드가 응고되는 즉시 이미징에 사용하십시오. 고체 아가로스가 중심부의 수분을 흡수하면 결국 동물이 사망할 수 있습니다.
3. 생체 내(In vivo) 자웅동체 또는 수컷 벌레에서의 정자 형성 관찰 (그림 1 및 보충 영상 S1)
- 섹션 2에서 설명한 대로 아가로스 패드를 준비합니다.
- NMY-2::GFP가 표지된 동물20 (후기 L4 단계) 10–20마리를 커버슬립 위의 M9 완충액에 희석된 0.5% 테트라미솔 염산염 5–10 µL로 빠르게 옮깁니다.
참고: 동물의 움직임과 탈수를 방지하기 위해 완충액을 너무 많이 또는 너무 적게 추가하지 않도록 주의하십시오. 이미징을 방해할 수 있는 E. coli의 의도치 않은 전이를 방지하기 위해, 박테리아 잔디 경계 밖으로 기어 나온 벌레를 선택하십시오 (현미경 하에서 흐릿하고 반투명한 영역이 있는 E. coli 군집이 관찰될 수 있습니다). - 동물이 완전히 마취될 때까지 1분 동안 배양합니다.
- 상단 슬라이드를 조심스럽게 제거하여 하단 슬라이드에 아가로스 패드만 남깁니다.
- 아가로스 패드가 있는 슬라이드를 뒤집습니다. 기포 형성을 방지하기 위해 패드를 완충액 속의 벌레 쪽으로 조심스럽게 접촉시켜 내립니다. 다시 슬라이드를 뒤집어 커버슬립이 위로 오게 합니다.
참고: 커버슬립의 급격한 움직임은 벌레의 몸에 손상을 줄 수 있으므로 피하십시오. - 200 µL 피펫 팁을 사용하여 가열된 액체 바셀린(고체 아가로와 함께 미리 가열함)을 도포하고, 피펫 팁을 커버슬립 경계를 따라 빠르게 움직여 바셀린이 식으면서 커버슬립이 슬라이드에 고정되도록 합니다.
- 생식 세포 발달 이미징을 위해 슬라이드를 현미경 스테이지 위에 올립니다.
- 단일 이미지의 경우, 레이저 출력과 노출 시간을 늘려 형광 신호를 최적화하며(각 균주의 형광 발현 강도에 따라 다름), 더 나은 형광 시각화를 위해 필요한 만큼 높일 수 있습니다 .
- 타임랩스/Z-스택의 경우, 광독성 및 광퇴색을 최소화하기 위해 더 낮은 여기 출력과 더 짧은 노출 시간을 사용합니다.
참고: 목표는 벌레 성장에 미치는 부정적인 영향을 최소화하면서 공간적 및 시간적 이미징 데이터를 얻는 것입니다 .
4. In vivo PGC 분열 관찰 (그림 1 및 보충 영상 S1)
- 섹션 2에서 설명한 대로 아가로스 패드를 준비합니다.
- 10마리의 NMY-2::GFP 표지 동물39,40 (후기 L1 단계에서 젊은 성체 단계)을 커버슬립 위의 M9 버퍼로 희석한 0.5% 테트라미졸 염산염 5–10 µL로 옮깁니다.
- 동물이 완전히 고정될 때까지 1분 동안 배양합니다.
- 상단 슬라이드를 제거하고, 하단 슬라이드에 아가로스 패드만 남깁니다.
- 아가로스 패드가 있는 슬라이드를 뒤집습니다. 기포가 생기지 않도록 버퍼 내의 벌레가 있는 패드를 살짝 터치합니다. 커버슬립이 위로 오도록 슬라이드를 다시 뒤집습니다.
- 단계 3.6에서 설명한 대로 200 µL 피펫 팁을 사용하여 페트롤리움 젤리로 커버슬립의 경계선을 밀봉합니다.
- 이미징을 위해 슬라이드를 현미경 스테이지로 옮깁니다.
5. 수컷 정자 형성의 in vitro 관찰을 위한 생식선 해부 (부록 그림 S1 및 부록 비디오 S2)
참고: 주사기 크기는 개인의 선호도에 따라 조정할 수 있습니다. 수컷은 하나의 생식샘을 포함하는 완전하고 단일한 생식계를 가지는 반면, 자웅동체는 두 개의 생식샘을 가집니다(두 생식샘 모두 L4 후기부터 성체 초기까지는 정자를 생성하고, 이후 단계에서는 난모세포를 생성합니다)41.
- 신선하게 준비하십시오 인비트로 (in vitro) 배양 완충액 (15% FBS가 포함된 Leibovitz’s L-15 배지).
참고: 완충액은 다음의 조건으로 보관해야 합니다. 4 °C 일주일 이내로 냉장 보관하십시오. 장기 보존을 위해서는 혈청을 여러 개의 튜브에 나누어 -에서 보관할 수 있습니다.20 °C. - 약 10마리의 N2 또는 형광 표지된(NMY-2::GFP; mCherry::Histone) 수컷 벌레(L4 후기 단계)를 다음이 포함된 1.5 mL 원심분리 튜브에 넣습니다. 500 µL 배양 완충액의.
- 튜브를 1,000에서 원심분리하십시오. × g 2분 동안 처리합니다. 상층액을 조심스럽게 제거합니다. 400 µL 완충액의
- 추가하십시오 400 µL 배양 완충액을 사용하여 5.2~5.3단계를 반복한다.
- 동물이 포함된 남은 버퍼를 커버슬립 위로 옮깁니다. 니코틴성 아세틸콜린 수용체 작용을 통해 선충을 고정시키기 위해 적절한 부피의 테트라미솔 염산염(최종 농도 0.1%) 또는 레바미솔(최종 농도 0.1 mM)을 첨가합니다.41 및 국소 마취 활성42선충들이 움직임을 멈출 때까지 커버슬립을 부드럽게 흔들어 줍니다.
참고: 비용을 절감하기 위해, 초기 세척 단계에서 부유물을 제거하는 용도로 M9 버퍼를 사용할 수 있거나 E. coli마지막 세척 단계 또는 슬라이드 제작 직전에만 배양 완충액을 추가하십시오. 특별한 요구 사항이 있거나 완충액이 매우 깨끗한 경우, 프로세스 속도를 높이기 위해 5.2~5.3단계를 생략할 수 있습니다. - 두 개의 28 G 바늘을 각각 시린지에 장착하여 양손에 하나씩 잡습니다. 커버슬립을 해부 현미경 아래에 놓고, 바늘을 30~45° 웜의 각도에서 근위 생식샘 암(proximal gonad arm) 근처를 절개하여 생식샘 조직을 분리합니다. 모든 동물에 대해 동일한 과정을 반복합니다.
참고: 이 과정에서 체내 잔해물이 배출됩니다. 초보자의 경우, 더 많은 연습이 권장됩니다. 마비 완충액 내에서의 최대 완전 해부 시간은 다음과 같이 지속될 수 있습니다. <5분. 실험 목적에 따라 시간을 조정하십시오. - 커버슬립을 흔들어 부유물을 모으십시오. 피펫을 사용하여 큰 부유물을 조심스럽게 흡입하고, 작은 제1정모세포가 커버슬립에 남아 있도록 하면서 완충액을 최대한 적게 남기십시오.
참고: 커버슬립에 버퍼를 너무 많이 남기지 마십시오. 버퍼가 과도하면 마운팅 중에 움직임이 발생할 수 있습니다. - 깨끗한 슬라이드를 준비하고, 해리된 일차 정모세포로 커버슬립을 조심스럽게 덮습니다. 3.6단계에서와 같이 가열된 액상 바셀린으로 커버슬립의 가장자리를 밀봉합니다.
참고: 정세포의 기계적 손상을 방지하기 위해, 밀봉 전 커버슬립의 네 모서리에 소량의 액상 바셀린(liquid petroleum jelly)을 도포하십시오. - 이미지 촬영을 위해 현미경으로 옮깁니다.
참고: 아가로스 패드 사용을 피하십시오. 액체 배지는 더 투명한 배경을 제공하여 제1정모세포를 구별하는 데 탁월한 광학적 선명도를 제공합니다.
6. 벌레의 해부 및 형광(보충 그림 S2, 보충 그림 S3, 보충 비디오 S3, 및 보충 비디오 S4)과 명시야(그림 2 및 보충 비디오 S5) 하에서의 in vitro 수정 및 배아 발생 관찰)
참고: 초기 단계 배아는 베벨 개구부가 서로 반대 방향을 향하도록 한 두 개의 28G 바늘을 교차시켜 얻었습니다. 수정낭 근처에서. 액체의 증발을 방지하기 위해 챔버를 밀봉한 후 즉시 현미경으로 옮겼다.
- 커버슬립과 아가로스 패드가 배아에 가하는 압력의 영향을 제거하기 위해, 드릴을 사용하여 35mm 페트리 접시 중앙에 10mm 구멍을 가공합니다. 하단을 22mm 현미경 커버 글라스로 밀봉하여 도립 공초점 현미경용 재사용 챔버를 제작합니다.
- 약 \_\_\_를 추가하십시오. 30 µL 챔버에 M9 완충액을 주입합니다.
참고: 이 볼륨은 라운드당 4시간의 타임랩스 이미징에 충분한 양입니다. 버퍼 볼륨을 통해 다음부터 지속적인 이미징이 가능합니다. 난자-정자 전핵의 이동 및 융합부터 부화 전 배아의 근육 수축까지. - 자웅동체(hermaphrodites)를 선택하십시오. 약 20마리의 젊은 성체 동물을 이미징 챔버 내의 M9 버퍼로 옮기십시오.
참고: 수컷은 정자만을 생성하며, 배아는 생성하지 않습니다. - 더 많은 초기 단계 배아를 방출시키기 위해 주사바늘을 사용하여 수정낭을 두 번 가로로 절개하십시오. 속눈썹 집게를 사용하여 동물 본체를 제거하십시오.
참고: 실제로 백금 픽커(platinum picker)는 액체 내의 체내 잔해물을 제거하기에 너무 딱딱합니다. 또한, 일반적인 실제 속눈썹 픽커보다 기능이 더 뛰어난, 포크처럼 여러 끝단이 있는 가짜 속눈썹 픽커를 사용하여 잔해물을 제거하는 것을 권장합니다. - 액체 증발을 방지하기 위해 페트리 접시의 뚜껑을 덮으십시오.
7. 현미경 하의 타임랩스 이미징
- 슬라이드/챔버를 현미경(예: 60×/1.4 NA 대물렌즈와 EMCCD 카메라가 장착된 도립 스피닝 디스크 공초점 현미경)의 최저 배율(10×) 시야에 놓고, 원하는 단계의 개체, 일차 정모세포 또는 갓 수정된 배아를 탐색합니다.
- 비형광 선충의 경우, 세포핵의 위치, 융합 상태 및 분열구의 형태를 통해 초기 배아의 발달 단계를 결정합니다(그림 2 및 보충 영상 S5).
- in vitro로 분리된 일차 정모세포의 경우, 중축(rachis)에서 떨어져 나와 버퍼 내에 둥글게 분산되어 있으며 분열을 준비 중인 세포를 찾습니다(보충 그림 S1 및 보충 영상 S2).
- 형광 선충의 경우, 단백질 분포와 세포 형태를 기반으로 단계를 식별합니다.
참고: 형광은 GFP의 경우 488 nm 여기 라인과 525–550 nm 방출 필터를 사용하여 검출하였으며, RFP/mCherry의 경우 561 nm 여기 라인과 607–636 nm 방출 필터를 사용하여 검출하였습니다.
- 해당 세포 또는 배아의 위치를 잡고 고배율(63× 또는 100×)로 전환합니다.
참고: 세포와 배아의 준비 및 이미징 원리가 동일하므로, 시각화된 실험 튜토리얼에서는 명시야 및 형광 채널을 모두 사용한 분리된 배아의 사례를 보여줍니다. - 현미경 획득 소프트웨어를 사용하여 Z-stack(통상 ≤1 µm 간격) 비디오 녹화 또는 스냅샷 촬영을 시작하며, Z 레이어 수와 연구 요구 사항에 따라 스캐닝 간격을 최소 1 s까지 설정합니다.
참고: 광퇴색/광독성에 민감한 형광 균주의 경우, 장기 이미징 중 광퇴색/광독성을 줄이기 위해 레이저 출력을 낮추고 노출 시간을 단축하십시오. - 이미지 출력을 위해 모든 이미지를 .tiff 형식으로 저장하고 원래의 이미징 정보를 유지합니다.
8. 이미지 분석
참고: 개별 .tiff 이미지 또는 타임랩스 스택은 현미경 전용 소프트웨어나 생물학적 이미지 분석을 위한 오픈 소스 플랫폼인 Fiji/ImageJ [https://imagej.net/software/fiji]43와 같은 일반 분석 소프트웨어를 사용하여 회전, 크롭, 라벨링, 측정 및 처리할 수 있습니다.
- 획득한 이미지를 Fiji/ImageJ에서 엽니다. 개별 형광 점 또는 구조의 형광 신호 강도와 분포를 확인합니다. 선택하십시오. 이미지 | 조정하다 | 밝기/대비 및 이미지 | 하이퍼스택 | 스택을 하이퍼스택으로 변환 단일 tiff 이미지 내의 채널, Z 레이어 및 시점을 분리하십시오. 선택하십시오. 이미지 | 색상 | 채널 도구 전시를 위한 색상 균형 최적화.
- 사용 이미지 | 변형 | 회전 각 이미지를 회전시켜 벌레가 가로 방향으로 놓이고 머리가 왼쪽을 향하도록 합니다. 다음을 사용하십시오. 이미지 | 자르기 필요한 경우 불필요한 빈 영역을 제거합니다.
- 사용법 이미지 | 스택 | Z-투영 충분한 신호를 가진 대표 프레임들로부터 Z-투영(Z-projection) 이미지를 생성하기 위해.
참고: 최적의 시각화를 위해 고대비 프레임을 함께 투영하는 것이 권장됩니다. 하지만 서로 다른 군 간에 동일한 특정 조직 또는 소기관 내의 상대적 차이를 비교하려면, 신호가 약하더라도 전체 정보를 포함하는 여러 프레임을 함께 투영할 수 있습니다. - 사용 파일 | 다른 이름으로 저장 | Tiff 후속 분석을 위해 투영된 이미지를 저장하기 위해.
- 사용하는 공초점 현미경에 따라 픽셀이 마이크로미터(μm)로 변환되도록 이미지 스케일을 보정하십시오.µm). 보정 후, 사용하십시오 분석 | 도구 | 스케일 바 스케일 바를 추가하려면.
참고: 위의 이미지 처리는 시각화 및 도표 작성으로 제한됩니다. 일괄 처리나 자동 측정이 필요한 경우에는 Fiji/ImageJ 또는 CellProfiler와 같은 다른 오픈 소스 도구를 사용하십시오.44 및 Python 기반 분석 파이프라인45.
결과
표형 분석을 위해 세포 수준에서 C. elegans를 시각화하려면 전통적으로 광학 장비에 상당한 투자가 필요했지만, 최근의 소비자 가전 제품과 혁신적인 어댑터 시스템을 통해 매우 저렴한 비용으로도 만족스러운 이미징 능력을 구현할 수 있게 되었습니다. 공초점 현미경이나 기타 쉽게 구할 수 있는 장비를 사용하여 자웅동체 in vivo의 생식선 구조를 이미징하기 위해, 우리는 두 가지 형광 표지가 도입된 균주20를 사용합니다. 여기서 NMY-2::GFP는 U자형 생식선의 전체 구조와 일차 정모세포의 축(rachis) 및 피질 영역을 표시하며, mCherry::Histone은 핵 형태와 발달 단계를 나타냅니다(그림 1 및 보충 영상 S1). 이 두 단백질은 다양한 연구에서 널리 사용됩니다46,47,48. 3D 구조 정보의 대부분을 포착하기 위해, 벌레 생식선의 하단부터 상단까지 1 µm 간격으로 전체 Z-stack을 획득했습니다. 염색체의 조밀한 덩어리와 적도 부위의 약한 NMY-2 축적을 바탕으로, 가장 근위쪽에 위치한 일차 정모세포들은 핵소체(karyosome) 단계에 있으며, 이는 이 세포들이 첫 번째 분열을 시작하고 있음을 나타냅니다(그림 1 및 보충 영상 S1). 또한, PGC의 체세포 분열은 생식선의 원위 영역에서 발생하며, 본 프로토콜을 통해 함께 포착할 수 있습니다.
정자 형성 과정을 in vitro로 관찰하기 위해, 먼저 배양 버퍼를 준비합니다. 벌레를 해부하여 생식선 정모세포를 버퍼 속으로 방출합니다. 핵 형태(핵막 붕괴의 시작) 또는 전체 세포 형태를 통해 식별되는, 첫 번째 분열을 준비 중인 제1정모세포를 빠르게 찾는 것이 매우 중요합니다. 형광 균주를 사용하면 정확한 발달 단계를 더 쉽게 식별할 수 있습니다. 광독성/광퇴색과 캡처 효율 사이의 균형을 맞추기 위해 30 s 간격으로 이미지를 캡처합니다. (부수 그림 S1 및 부수 영상 S2).
초기 배아 발생에 관한 더 많은 정보를 얻기 위해, 우선 명시야 채널(brightfield channel)에서 새로 수정된 배아를 찾습니다. 이때 부계 및 모계 핵은 배아의 장축을 따라 양 끝단에 위치하며, 융합을 위해 서로를 향해 이동합니다. 표준 슬라이드를 이용한 배아 관찰의 경우, GFP::히스톤을 발현하는 균주를 사용하였습니다.49 및 mCherry::PH50 각각 세포핵과 세포막의 역동성을 표지하기 위함입니다. 이 이미지들은 완전한 세포 분열 과정을 보여주기 위해 서로 다른 Z-층에서 캡처되었습니다 (보충 그림 S2 및 보충 영상 S3). 배아를 정확한 단계에서 식별하는 능력이 필수적이라는 점에 유의하십시오. 본 연구에서는 초기 단계의 배아를 선택하였으며, 물리적 섭동 없이 전체 발달 과정을 포착하기 위해 연속 기록 방식을 채택하였습니다. 이러한 접근 방식은 다음을 가능하게 합니다. >수정부터 근육 수축까지의 전 과정을 포함하는 500분간의 타임랩스 녹화 (그림 2 및 보충 영상 S5). 야생형 외에도 비교 영상 연구를 위한 돌연변이체들을 사용할 수 있습니다. 예를 들어, HUM-2는 인간 myosin V의 상동체로, 세포 소기관, 소포 및 mRNA의 분포에 결정적인 역할을 하며 동물 생리학 및 세포 기능에 중요합니다.51예시로서, 이 프로토콜은 또한 다음의 고랑 역학을 포착하는 데 사용되었습니다. hum-2 (제공해주신 텍스트가 없습니다. 번역할 소스 텍스트를 입력해 주세요.시각적 비교를 위한 돌연변이체(부수 도표 S3 그리고 보충 영상 S4마지막으로, .tiff 이미지를 ImageJ/Fiji에서 처리 및 크롭한 후, 직접적인 시각적 비교를 위해 이미지 편집 소프트웨어에서 정렬합니다.52.
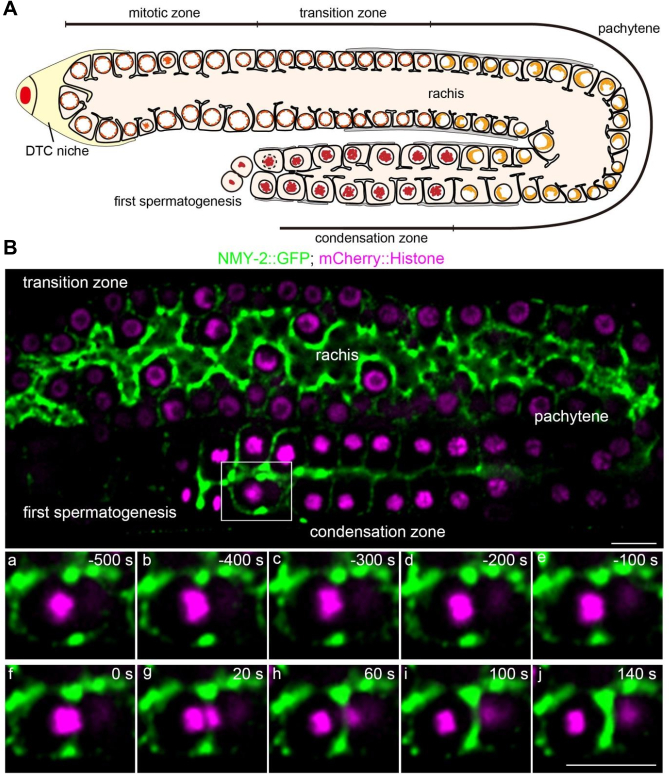
그림 1: L4 후기 단계 벌레의 생식선 구역 분포 모식도 및 형광 이미지. (A) L4 후기 단계 벌레의 생식선 구조 모식도. DTC = 원위 팁 세포. (B) 근위 정모세포의 rachis 및 피질 영역을 표지하는 NMY-2::GFP와 서로 다른 발달 단계의 핵 형태를 표지하는 mCherry::Histone의 형광 이미지. 스케일 바 = 10 µm. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
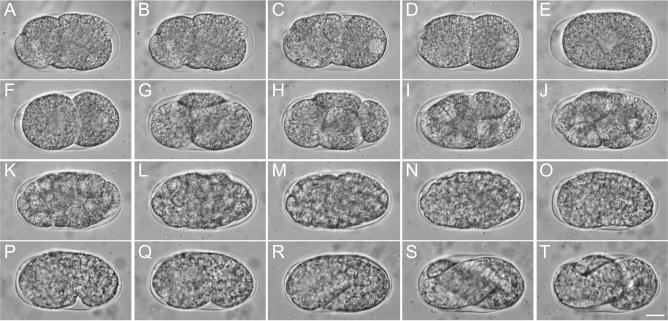
그림 2: C. elegans 배아 발달. (A-E) 융합 단계에서 1세포 단계까지의 과정으로, 난모세포-정자 전핵의 이동 및 융합, 가성분열, 1세포 단계의 확립을 포함함. (F-J) 2세포 단계에서 다세포 단계까지의 과정. (K-O) 낭배 형성 단계. (P-T) 콤마 단계에서 근육 수축 단계까지의 과정. 스케일 바 = 10 µm. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
보충 그림 S1: 완전한 정자 형성 과정의 이미징 대표 예시. (A) 핵막 붕괴의 시작. (B) 제1감수분열 전中期. (C) 수축 환 형성 및 수축 시작; (D) 제1감수분열 완료; (E) 제2감수분열 시작. (F) 두 개의 2차 정세포의 구溝 수축. (G) 제2감수분열 말기. (H) 제2감수분열 완료 및 4개의 정세포와 중앙에 위치한 하나의 잔여체 형성. 스케일 바 = 10 µm. 이 파일을 다운로드하려면 여기를 클릭하십시오.
부수 그림 S2: GFP::Histone으로 세포핵을, mCherry::PH로 세포막을 표지하여 초기 배아 발생을 이미징한 대표 예시. (A) 가성분열. (B) 분열구의 퇴행 및 정상 상태로의 복귀. (C) 제1세포 분열의 중기. (D) 제1세포 분열의 후기. (E) 2세포기. (F) AB 세포 분열의 후기와 P1 세포 분열의 전기. (G) P1 세포 분열의 후기. (H) 4세포기. 스케일 바 = 10 µm. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 S3: N2 및 hum-2 (ok596) 돌연변이 초기 배아의 분열구 대표 비교. 확대 패널은 시각적 비교를 위해 시간에 따른 분열구의 역동성을 보여줍니다. 숫자는 염색체 분리에 의해 정의된 후기 시작 후의 시간을 나타냅니다. 스케일 바 = 2 µm. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 영상 S1. NMY-2::GFP 및 mCherry::Histone을 이용한 L4 후기 단계 생식선의 대표적인 형광 타임랩스 이미지; 프레임당 30 s. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 영상 S2. him-5 (e1490)에서 완전한 정자 형성 과정을 보여주는 대표적인 명시야 타임랩스 이미지; 프레임당 30초. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 비디오 S3. GFP::Histone 및 mCherry::PH를 이용한 초기 배아 발생의 대표적 형광 타임랩스 이미지; 프레임당 30 s. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 영상 S4. N2 및 hum-2 (ok596) 변이체 초기 배아의 분열구(cleavage furrow) 대표 형광 타임랩스 이미지; 프레임당 15초. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 영상 S5. 난모세포와 정자 전핵의 융합부터 개체를 형성하는 체세포 분열까지의 N2 C. elegans 배아 발달 과정을 촬영한 대표적인 명시야 타임랩스 이미지입니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
충(worm)의 준비 및 이미징을 위해, 당사는 각각 챔버와 슬라이드를 기반으로 하는 두 가지 워크플로우를 효율화하였습니다. 챔버 기반 접근법은 다음과 같은 경우에 사용되어 왔습니다. 광독성 및 광퇴색이 제한된 상태에서 발달 과정의 장기 관찰이 가능한 고해상도 라이브 이미징53슬라이드 기반 접근법은 뉴런 활동 및 세포 내 구조의 단기 관찰에 흔히 사용되는 표준 아가로스 패드 마운팅 기법을 응용하여 적용되었습니다.54우리는 선정된 대상들에 대해 장기 관찰을 수행하기 위해 두 가지 프로토콜(섹션 3, 4, 5, 6)을 모두 적용하였다. C. elegans 초기 발달 단계. ~에 관하여 체내(in vivo) 생식샘 구조 관찰, PGC 분열 또는 정자 형성 과정 관찰을 위해, 본 연구에서는 기존에 확립된 방법의 주요 절차를 따랐으며 신입 연구자들이 빠르고 쉽게 접근할 수 있도록 일부 내용을 수정하였습니다.55~에 관하여 인 비트로(in vitro) 정자 형성 과정의 관찰에서, 우리는 핵막이 붕괴되며 전기가 중기로 이행하는 단계에 진입하는 세포를 신속하게 식별하는 것을 강조합니다.56아가로스 패드는 배아나 벌레를 완충하고 부분적으로 안정화할 수 있지만, 생체 내(in vivo) 이미징 시, 일차 정모세포와 슬라이드 사이의 대비(contrast)를 감소시키므로, 아가로스 패드는 권장되지 않습니다. in vitro 해부된 정모세포의 관찰에는 액체 배지가 선호됩니다. 마찬가지로, 관심 있는 특정 발달 단계의 신속한 식별이 강조됩니다. in vitro 배아 발생 관찰
위의 방법들을 결합하면 생식세포부터 배아에 이르는 선택적인 발달 과정을 이미지화할 수 있습니다. 이러한 방법들은 라이브 셀 이미징을 위한 급속 온도 전환 시스템과 같은 온도 제어 장비와 결합할 수 있어, 온도에 민감한 돌연변이체 실험을 더욱 편리하게 수행할 수 있습니다57. 마찬가지로, 냉각 기반의 고정법을 사용하면 배양 플레이트 상에서 C. elegans 개체군을 직접 고처리량 및 서브마이크론 해상도로 이미징할 수 있으며, 이는 생리학적 생존력을 유지하면서 화학적 마취나 개별 벌레 조작의 필요성을 줄여줍니다58. 또한, RNA 간섭14 및 레이저 절제59,60,61,62,63,64,65와 같은 인위적인 섭동을 현미경 관찰과 결합하여 발달 반응 및 그 기저의 생물학적 또는 물리적 메커니즘을 조사할 수 있습니다. 향후 하드웨어, 소프트웨어 및 사용자별 운용 방식을 최적화함으로써 현미경 워크플로우가 더욱 개선될 수 있을 것입니다33,66. 구체적인 운용 세부 사항은 조정이 필요하겠지만, 본 프로토콜의 선택된 원리들은 초파리나 제브라피시 치어와 같은 다른 소형 운동성 동물 모델, 특히 고정이 필요한 in vivo 관찰 및 해부가 필요한 in vitro 관찰에 적용 가능할 수 있습니다67,68.
이러한 유형의 프로토콜을 통해 획득한 이미지 데이터셋은 충분한 시료 수와 표준화된 획득 설정이 사용되었을 때, 후속 계산 또는 정량 분석을 지원할 수 있습니다69,70. 예를 들어, C. elegans 배아 발생은 시공간 이미지 데이터에 기반하는 세포 계보 추적71,72 및 세포 형태 분할73,74,75 연구에 활용되어 왔습니다. 기전적 관점에서는 핵, 막, 극성 관련 단백질76,77,78 및 세포골격 관련 단백질79,80,81의 이미징을 통해 세포 분열과 형태 발생 분석을 지원할 수 있습니다. 정량적 시스템 생물학은 이러한 유형의 이미징 데이터를 분자, 세포 및 개체 수준 전반에 걸쳐 통합할 수 있습니다82,83,84,85. 본 프로토콜에서 이러한 광범위한 응용 분야는 대표 결과에 의해 직접적으로 입증된 성과라기보다 잠재적인 확장 가능성으로 간주되어야 합니다.
공개 사항
저자들은 공개해야 할 이해관계 충돌이 없습니다.
감사의 글
기술적 지원을 제공해주신 Northeastern University의 Samuel H. Chung 교수님, Erin J. Cram 교수님, Javier Apfeld 교수님, Noa William Franklin Grooms 박사님, 그리고 Beijing Normal University의 Chuanfu Dong 교수님께 감사드립니다. 본 연구는 Pei Zhang 박사가 수행한 National Natural Science Foundation Youth Project (Grant 22407016) 및 National Natural Science Foundation Project (Grant 22477010)의 재정적 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 28게이지 U-100 인슐린 주사기 | EasyTouch | B08589MG8D | 충 해부 |
| 35 mm 페트리 접시 | Celltreat | 229638 | 이미징 챔버 |
| 60mm 페트리 접시 | Fisherbrand | AS4050 | 충 배양 |
| 아가로스 | Bio-Rad | 1613100 | 아가로스 패드 준비 |
| C. elegans RNAi 피딩 라이브러리 (Ahringer) | Source BioScience Ltd. | 입력된 텍스트가 없습니다. 번역할 내용을 제공해 주시기 바랍니다. | RNAi 실험 |
| C. elegans 균주: GFP::histone; mCherry::PH | Caenorhabditis Genetics Center | YC0154 | 본 연구에 사용된 균주 |
| C. elegans 균주: GFP::HUM-2 | Sunybiotech | YC0381 | 본 연구에 사용된 균주 |
| C. elegans 균주: him-5 (e1490) | Caenorhabditis 유전학 센터 | CB4088 | 본 연구에 사용된 균주 |
| C. elegans 균주: N2, 야생형 | Caenorhabditis 유전학 센터 | N2 (브리스톨) | 본 연구에 사용된 균주 |
| C. elegans 균주: NMY-2::GFP; mCherry::histone | Caenorhabditis 유전학 센터 | YC0032 | 본 연구에 사용된 균주 |
| C. elegans 균주: PH::GFP; mCherry::histone | Caenorhabditis 유전학 센터 | YC0029 | 본 연구에 사용된 균주 |
| 미분 간섭 대비(DIC) 현미경 | Olympus | BX53 | 충물 이미징 |
| 해부 현미경 | Nikon | SMZ745 | 벌레 관찰 |
| E. coli OP50 | Caenorhabditis Genetics Center | OP50 | 박테리아 먹이원 |
| 우태아혈청(FBS) | 입력된 텍스트가 없습니다. 번역할 내용을 제공해 주세요. | 해당 사항 없음 | 배양 버퍼 |
| 동결 완충액 (S buffer/글리세롤) | 입력된 텍스트가 없습니다. 번역할 내용을 제공해 주십시오. | 제공된 소스 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 장기 보관 |
| 하이브리드화 커버 글라스 | Invitrogen (Thermo Fisher Scientific) | H18200 | 아가로스 패드/챔버 준비 |
| 이소프로필 β-D-1-티오갈락토피라노사이드 (IPTG) | Invitrogen (Thermo Fisher Scientific) | 15529019 | 벌레 배양 |
| Leibovitz L-15 배지 | 제공된 소스 텍스트가 없습니다. 번역할 내용을 입력해 주십시오. | 제공된 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 배양 완충액 |
| 레바미솔 염산염 | 해당 사항 없음 | 입력된 텍스트가 없습니다. 번역할 내용을 제공해 주세요. | 충 immobilization (충 고정) |
| M9 완충액 | 입력된 텍스트가 없습니다. 번역할 내용을 제공해 주시기 바랍니다. | 입력된 텍스트가 없습니다. 번역할 내용을 제공해 주십시오. | 벌레 배양 및 마운팅 |
| 현미경 커버 글라스 | Fisherbrand | 12541016 | 이미징 슬라이드 |
| 미니 디지털 인큐베이터 | 벤치마크 사이언티픽(Benchmark Scientific) | BMS-H2200-HC-E | 벌레 배양 |
| NGM 혼합 분말 | 해당 사항 없음 | 제공된 소스 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 벌레 배양 |
| Nikon Eclipse Ti2-E 도립 현미경 | Nikon | Ti2-E | 충물 영상화 |
| 일반 현미경 슬라이드 | Fisherbrand | 12550A3 | 이미징 슬라이드 |
| 일반 현미경 슬라이드 | Corning | 2947-75X25 | 아가로스 패드 준비 |
| 스피닝 디스크 공초점 현미경 | Olympus | SpinSR10 | 벌레 이미징 |
| 스피닝 디스크 공초점 장치 | Yokogawa | CSU-X1 | 타임랩스 이미징 |
| 테트라미솔 | Sigma-Aldrich | L9756 | 선충 마취 |
| 바세린 | Sangon Biotech | A510146-0500 | 이미징 슬라이드 |
참고문헌
- Corsi AK, Wightman B, Chalfie M. A transparent window into biology: a primer on Caenorhabditis elegans. Genetics. 2015;200(2):387-407.
- Ambros VR, et al. From nematode to Nobel: how community-shared resources fueled the rise of Caenorhabditis elegans as a research organism. Proc Natl Acad Sci U S A. 2025;122(48):e2522808122.
- Du Z, et al. De novo inference of systems-level mechanistic models of development from live-imaging-based phenotype analysis. Cell. 2014;156(1):359-72.
- Xiao L, et al. Defect-buffering cellular plasticity increases robustness of metazoan embryogenesis. Cell Syst. 2022;13(8):615-30.e9.
- Green RA, et al. Automated profiling of gene function during embryonic development. Cell. 2024;187(12):3141-60.e23.
- Yang M, Bai Y, Wang Z, Du Z. Intracellular buffering enables developmental robustness after genome doubling in C. elegans embryos. Cell Rep. 2026;45(3):117005.
- Laugsch M, Schierenberg E. Differences in maternal supply and early development of closely related nematode species. Int J Dev Biol. 2004;48(7):655-62.
- Guan G, Luo C, Tang HL, Tang C. Modulating cell proliferation by asymmetric division: a conserved pattern in the early embryogenesis of nematode species. MicroPubl Biol. 2024;10.17912/micropub.biology.001006.
- Large CRL, et al. Lineage-resolved analysis of embryonic gene expression evolution in C. elegans and C. briggsae. Science. 2025;388(6753):eadu8249.
- Zhang P, et al. Biosynthesis of modular signaling molecules requires functional diversification of carboxylesterases in Pristionchus pacificus. Commun Biol. 2025;8(1):1213.
- Brenner S. The genetics of Caenorhabditis elegans. Genetics. 1974;77(1):71-94.
- Sulston JE, Schierenberg E, White JG, Thomson JN. The embryonic cell lineage of the nematode Caenorhabditis elegans. Dev Biol. 1983;100(1):64-119.
- C. elegans Sequencing Consortium. Genome sequence of the nematode C. elegans: a platform for investigating biology. Science. 1998;282(5396):2012-8.
- Chung SH, et al. Femtosecond laser ablation reveals antagonistic sensory and neuroendocrine signaling that underlie C. elegans behavior and development. Cell Rep. 2013;4(2):316-26.
- Zhang H, Abraham N, Khan LA, Gobel V. RNAi-based biosynthetic pathway screens to identify in vivo functions of non-nucleic acid-based metabolites such as lipids. Nat Protoc. 2015;10(5):681-700.
- Huang X, et al. PIWI-interacting RNA expression regulates pathogenesis in a Caenorhabditis elegans model of Lewy body disease. Nat Commun. 2023;14(1):6137.
- Schnabel R, Hutter H, Moerman D, Schnabel H. Assessing normal embryogenesis in Caenorhabditis elegans using a 4D microscope: variability of development and regional specification. Dev Biol. 1997;184(2):234-65.
- Wang X, Hu B, Zhao Z, Tse YC. From primordial germ cells to spermatids in Caenorhabditis elegans. Semin Cell Dev Biol. 2022;127:110-20.
- L’Hernault SW. Spermatogenesis. In: Riddle DL, Blumenthal T, Meyer BJ, Priess JR, editors. C. elegans II. 2nd edition. Cold Spring Harbor Laboratory Press, Cold Spring Harbor, NY; 1997.
- Wang X, et al. Cortical recruitment of centralspindlin and RhoA effectors during meiosis I of Caenorhabditis elegans primary spermatocytes. J Cell Sci. 2021;134(3):jcs238543.
- Hu J, et al. Distinct roles of two myosins in C. elegans spermatid differentiation. PLoS Biol. 2019;17(4):e3000211.
- Kovacevic I, Orozco JM, Cram EJ. Filamin and phospholipase C-ε are required for calcium signaling in the Caenorhabditis elegans spermatheca. PLoS Genet. 2013;9(5):e1003510.
- Sadeghian F, Grooms NWF, Chung SH, Cram EJ. Tensions on the actin cytoskeleton and apical cell junctions in the C. elegans spermatheca are influenced by spermathecal anatomy, ovulation state and activation of myosin. Front Cell Dev Biol. 2024;12:1490803.
- Hoege C, Hyman AA. Principles of PAR polarity in Caenorhabditis elegans embryos. Nat Rev Mol Cell Biol. 2013;14(5):315-22.
- Simske JS, Hardin J. Getting into shape: epidermal morphogenesis in Caenorhabditis elegans embryos. Bioessays. 2001;23(1):12-23.
- Zhang H, Emmons SW. Regulation of the Caenorhabditis elegans posterior hox gene egl-5 by microRNA and the polycomb-like gene sop-2. Dev Dyn. 2009;238(3):595-603.
- Zhang N, et al. The C. elegans intestine as a model for intercellular lumen morphogenesis and in vivo polarized membrane biogenesis at the single-cell level: labeling by antibody staining, RNAi loss-of-function analysis and imaging. J Vis Exp. 2017;(128):e56100.
- Zhang N, et al. The C. elegans excretory canal as a model for intracellular lumen morphogenesis and in vivo polarized membrane biogenesis in a single cell: labeling by GFP-fusions, RNAi interaction screen and imaging. J Vis Exp. 2017;(128):e56101.
- Cui M, et al. A model of hereditary sensory and autonomic neuropathy type 1 reveals a role of glycosphingolipids in neuronal polarity. J Neurosci. 2019;39(29):5816-34.
- Li Z, et al. A collection of toolkit strains reveals distinct localization and dynamics of membrane-associated transcripts in epithelia. Cell Rep. 2021;35(5):109072.
- Cheng X, et al. Proteotoxic stress disrupts epithelial integrity by inducing MTOR sequestration and autophagy overactivation. Autophagy. 2022;19(1):241-55.
- Zhang P, et al. The centralspindlin complex regulates cytokinesis and morphogenesis in the C. elegans spermatheca. Development. 2023;150(2):dev200840.
- Wang YL, Grooms NWF, Civale SC, Chung SH. Confocal imaging capacity on a widefield microscope using a spatial light modulator. PLoS One. 2021;16(2):e0244034.
- Stiernagle T. Maintenance of C. elegans. WormBook. 2006;1-11.
- Hirsh D, Vanderslice R. Temperature-sensitive developmental mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):220-35.
- Davies T, et al. Using fast-acting temperature-sensitive mutants to study cell division in Caenorhabditis elegans. Methods Cell Biol. 2017;137:283-306.
- Ward S, Miwa J. Characterization of temperature-sensitive, fertilization-defective mutants of the nematode Caenorhabditis elegans. Genetics. 1978;88(2):285-303.
- Vanderslice R, Hirsh D. Temperature-sensitive zygote defective mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):236-49.
- Fujita M, Onami S. Cell-to-cell heterogeneity in cortical tension specifies curvature of contact surfaces in Caenorhabditis elegans embryos. PLoS One. 2012;7(1):e30224.
- Nishikawa M, Naganathan SR, Jülicher F, Grill SW. Controlling contractile instabilities in the actomyosin cortex. eLife. 2017;6:e19595.
- Kimble J, Hirsh D. The postembryonic cell lineages of the hermaphrodite and male gonads in Caenorhabditis elegans. Dev Biol. 1979;70(2):396-417.
- Onuaguluchi G, Igbo IN. Comparative local anaesthetic and antiarrhythmic actions of levamisole hydrochloride and lignocaine hydrochloride. Arch Int Pharmacodyn Ther. 1987;289(2):278-89.
- Schindelin J, et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Weisbart E, et al. CellProfiler plugins - an easy image analysis platform integration for containers and Python tools. J Microsc. 2024;296(3):227-34.
- Rueckl M, et al. SamuROI, a Python-based software tool for visualization and analysis of dynamic time series imaging at multiple spatial scales. Front Neuroinform. 2017;11:44.
- Kachur TM, Audhya A, Pilgrim DB. UNC-45 is required for NMY-2 contractile function in early embryonic polarity establishment and germline cellularization in C. elegans. Dev Biol. 2008;314(2):287-99.
- Schmutz C, Stevens J, Spang A. Functions of the novel RhoGAP proteins RGA-3 and RGA-4 in the germ line and in the early embryo of C. elegans. Development. 2007;134(19):3495-505.
- Chartier NT, et al. PAR-4/LKB1 mobilizes nonmuscle myosin through anillin to regulate C. elegans embryonic polarization and cytokinesis. Curr Biol. 2011;21(4):259-69.
- Knight AJ, Johnson NM, Behm CA. VHA-19 is essential in Caenorhabditis elegans oocytes for embryogenesis and is involved in trafficking in oocytes. PLoS One. 2012;7(7):e40317.
- Murata D, et al. GPI-anchor synthesis is indispensable for the germline development of the nematode Caenorhabditis elegans. Mol Biol Cell. 2012;23(6):982-95.
- Wong S, Weisman LS. Roles and regulation of myosin V interaction with cargo. Adv Biol Regul. 2021;79:100787.
- McLean D. Adobe Photoshop and Illustrator techniques. J Audiov Media Med. 2002;25(2):79-81.
- Gabel CV, et al. Neural circuits mediate electrosensory behavior in Caenorhabditis elegans. J Neurosci. 2007;27(28):7586-96.
- Chung SH, Sun L, Gabel CV. In vivo neuronal calcium imaging in C. elegans. J Vis Exp. 2013;(74):50357.
- McCarter J, Bartlett B, Dang T, Schedl T. On the control of oocyte meiotic maturation and ovulation in Caenorhabditis elegans. Dev Biol. 1999;205(1):111-28.
- L’Hernault SW. Spermatogenesis. WormBook. 2006;1-14.
- Pitayu-Nugroho L, et al. Kinetochore component function in C. elegans oocytes revealed by 4D tracking of holocentric chromosomes. Nat Commun. 2023;14(1):4032.
- Wang YL, et al. High-throughput submicron-resolution microscopy of Caenorhabditis elegans populations under strong immobilization by cooling cultivation plates. iScience. 2023;26(2):105999.
- Chung SH, et al. The role of the AFD neuron in C. elegans thermotaxis analyzed using femtosecond laser ablation. BMC Neurosci. 2006;7(1):30.
- Chung S, Maxwell I, Mazur E. Subcellular surgery and nanoneurosurgery [conference paper]. Presented at: Conference on Lasers and Electro-Optics; Baltimore, MD; 2007. p. 1-2.
- Chung SH, Mazur E. Femtosecond laser ablation of neurons in C. elegans for behavioral studies. Appl Phys A Mater Sci Process. 2009;96(2):335-41.
- Chung SH, Mazur E. Surgical applications of femtosecond lasers. J Biophotonics. 2009;2(10):557-72.
- Cai H, et al. Wedge prism approach for simultaneous multichannel microscopy. Sci Rep. 2019;9(1):17795.
- Chung SH, et al. Novel DLK-independent neuronal regeneration in Caenorhabditis elegans shares links with activity-dependent ectopic outgrowth. Proc Natl Acad Sci U S A. 2016;113(20):E2852-60.
- Grooms NWF, et al. Expression of thioredoxin-1 in the ASJ neuron corresponds with and enhances intrinsic regenerative capacity under lesion conditioning in C. elegans. FEBS Lett. 2023;597(14):1880-93.
- Wang YL, et al. Widefield targeted illumination microscopy enables optically-sectioned, motion-resilient imaging of neuronal fibers and their dynamics. Laser Photon Rev. 2025;19(24):e01980.
- Ghaemi R, Rezai P, Nejad FR, Selvaganapathy PR. Characterization of microfluidic clamps for immobilizing and imaging of Drosophila melanogaster larva’s central nervous system. Biomicrofluidics. 2017;11(3):034113.
- Bauer B, Mally A, Liedtke D. Zebrafish embryos and larvae as alternative animal models for toxicity testing. Int J Mol Sci. 2021;22(24):13417.
- Ho VWS, et al. Systems-level quantification of division timing reveals a common genetic architecture controlling asynchrony and fate asymmetry. Mol Syst Biol. 2015;11(6):MSB145857.
- Packer JS, et al. A lineage-resolved molecular atlas of C. elegans embryogenesis at single-cell resolution. Science. 2019;365(6459):eaax1971.
- Bao Z, et al. Automated cell lineage tracing in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 2006;103(8):2707-12.
- Katzman B, Tang D, Santella A, Bao Z. AceTree: a major update and case study in the long term maintenance of open-source scientific software. BMC Bioinform. 2018;19(1):121.
- Cao J, et al. Establishment of a morphological atlas of the Caenorhabditis elegans embryo using deep-learning-based 4D segmentation. Nat Commun. 2020;11(1):6254.
- Guan G, et al. Cell lineage-resolved embryonic morphological map reveals signaling associated with cell fate and size asymmetry. Nat Commun. 2025;16(1):3700.
- Guan G, et al. EmbSAM: cell boundary localization and Segment Anything Model for fast images of developing embryos. Commun Biol. 2026;9(1):8.
- Goehring NW, et al. Polarization of PAR proteins by advective triggering of a pattern-forming system. Science. 2011;334(6059):1137-41.
- Zhang H, et al. Vesicular sorting controls the polarity of expanding membranes in the C. elegans intestine. Worm. 2013;2(1):e23702.
- Zhang H, et al. Clathrin and AP-1 regulate apical polarity and lumen formation during C. elegans tubulogenesis. Development. 2012;139(11):2071-83.
- Kajita A, Yamamura M, Kohara Y. Computer simulation of the cellular arrangement using physical model in early cleavage of the nematode Caenorhabditis elegans. Bioinformatics. 2003;19(6):704-16.
- Zhang H, et al. Apicobasal domain identities of expanding tubular membranes depend on glycosphingolipid biosynthesis. Nat Cell Biol. 2011;13(10):1189-201.
- Pimpale LG, Middelkoop TC, Mietke A, Grill SW. Cell lineage-dependent chiral actomyosin flows drive cellular rearrangements in early Caenorhabditis elegans development. eLife. 2020;9:e54930.
- Hench J, Henriksson J, Lüppert M, Bürglin TR. Spatio-temporal reference model of Caenorhabditis elegans embryogenesis with cell contact maps. Dev Biol. 2009;333(1):1-13.
- Richards JL, et al. A quantitative model of normal Caenorhabditis elegans embryogenesis and its disruption after stress. Dev Biol. 2013;374(1):12-23.
- Moore JL, Du Z, Bao Z. Systematic quantification of developmental phenotypes at single-cell resolution during embryogenesis. Development. 2013;140(15):3266-74.
- Wong MK, et al. Timing of tissue-specific cell division requires a differential onset of zygotic transcription during metazoan embryogenesis. J Biol Chem. 2016;291(24):12501-13.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공