종 간 상호작용 중 진균의 형태학적 반응을 정성적 및 정량적으로 평가하기 위한 두 가지 비접촉식 공동 배양 접근법을 설명합니다. 본 프로토콜은 Candida 종 간 분석법을 예로 들어 내인성 요인이 균사 성장에 어떻게 영향을 미치는지 보여줍니다. 이러한 방법들은 다양한 미생물 간의 종 간 통신을 조사하는 데 쉽게 응용될 수 있습니다.
이 논문에서
요약
초록
미생물 군집 내에서 세포의 행동과 형태는 일반적으로 다양한 세포 내외부 요인의 영향을 받습니다. 미생물 간의 소통을 연구하기 위해 사용 가능한 다양한 접근 방식들은 매우 지루하거나 전문적인 시설 및 전문 지식을 필요로 할 수 있습니다. 본 논문에서는 주어진 종간 상호작용에서 다양한 요인의 역할을 조사하기 위해 측정 가능한 반응으로서의 형태적 전이에 기반한 두 가지 상호 보완적인 비접촉식 공동 배양 접근 방식인 멤브레인 인서트 웰 플레이트 공동 배양 분석법과 무세포 상층액(Cell-Free Supernatant, CFS) 기반 분석법을 설명합니다. 멤브레인 인서트 웰 플레이트 시스템은 세포 외 분자의 확산을 허용하면서, 물리적으로 분리된 종 사이의 실시간 상호작용을 가능하게 합니다. 이와 대조적으로, CFS 기반 분석법은 조건화 배지에 대한 반응을 평가하기 위한 단순하고 확장 가능한 접근 방식을 제공합니다. 여기에 제시된 프로토콜에는 배양 준비, 조건화 상층액 생성, 분석 설정, 현미경 관찰, 이미지 획득, Fiji를 이용한 정량적 형태 분석 및 통계적 평가를 위한 표준화된 절차가 포함되어 있습니다. 이는 내인성 및 외인성 요인에 대한 진균의 형태적 반응 사례를 통해 입증되었습니다. 여기서 제시된 방법들은 군집 내의 새로운 미생물 상호작용을 연구하기 위한 접근 가능하고 적응력 있는 대안적 도구를 제공하며, 군집 내 다종 공존의 기저 메커니즘을 조사하는 데 쉽게 확장 적용될 수 있습니다.
서론
자연 및 임상 생태계에서 미생물은 일반적으로 종 내 및 종 간 통신의 복잡한 네트워크에 의해 제어되는 구조화된 다종 미생물 군집 내에 서식합니다1. 이러한 컨소시엄은 정족수 감지(quorum-sensing) 분자, 휘발성 유기 화합물, 분비 펩타이드 및 단백질을 포함한 다양한 화학적 신호를 사용하여 개체군 수준의 행동을 조절합니다2. 협력적, 경쟁적 또는 포식적 틈새 상호작용이 미생물 대사, 공간 구조 및 스트레스 적응을 크게 변화시키므로 이러한 통신 역학을 매핑하는 것이 매우 중요합니다3. 임상적으로 이러한 다종 미생물 네트워크(예: 이종 세균-진균 또는 종 간 진균-진균 컨소시엄)는 단일 배양에 비해 시너지 효과를 내는 독성, 가속화된 조직 정착 및 증가된 항균제 내성을 빈번하게 나타냅니다4,5. 따라서 미생물 통신의 분자적 결정 요인을 해독하는 것은 전통적인 모델을 넘어 군집 안정성을 파괴하기 위한 혁신적인 항감염 전략을 개발하는 데 필수적입니다6.
미생물 간 상호작용(crosstalk)의 뚜렷한 양상을 분석하기 위해, 연구자들은 주로 포유류 세포 생물학, 면역학 및 종양학에서 사용되는 다양한 실험 구성을 활용한다7,8,9. 예를 들어, 직접 접촉 공동 배양 모델은 병치 분비(juxtacrine) 신호 전달 및 물리적인 세포 간 결합을 조사하는 표준으로 사용된다10. 이와 유사하게 변형된 설정은 미생물 간의 물리적 상호작용을 연구하여 미생물 간 억제 또는 약물 반응을 이해하는 데에도 사용된다9,11,12. 그러나 접촉 의존적 신호와 확산성 신호가 관찰된 반응에 모두 기여하기 때문에 그 기저 메커니즘을 구분하는 것은 어렵다. 전통적인 접촉 기반 분석법은 공간적 통찰을 제공할 수 있지만, 노동 집약적이거나 서로 다른 균주 라벨링이 필요하며, 이는 비모델 생물체의 경우 번거로울 수 있다. 반대로, Transwell(막 삽입 웰 플레이트) 분석법은 주로 포유류 연구에서 접촉 의존적 신호와 확산성 신호의 기여도를 구분하기 위해 사용된다13,14,15,16. 이 방법은 세포 간 통신이 분비 분자에 의해 매개될 때 특히 유용하며, 세포 집단 간의 신호 전달 역학을 실시간으로 분석할 수 있게 한다17. 나아가, 비접촉 분석법은 막 분리의 장점을 제공하며, 이를 계산 모델과 결합한 실험에 통합함으로써 전통적인 방법으로는 놓칠 수 있는 미생물을 동적으로 추적할 수 있다18. 이러한 접근 방식은 때때로 서로 다른 박테리아 종의 발달 역학을 동시에 연구하는 데 사용된다19.
막 삽입 웰 플레이트 분석법보다 저렴한 고처리량 대안은 무세포 상청액(Cell-Free Supernatant, CFS) 기반 또는 조건 배지 기반 분석법입니다. 이 방법은 재생 의학 및 혈관 생물학 분야에서 줄기세포 매개 조직 수복 및/또는 종양 유도 혈관 신생을 이해하는 데 필요한 시크리토옴을 분리하는 데 사용되는 것으로 알려져 있습니다20. 마찬가지로, 미생물 연구에서 CFS 체계는 다종 미생물 간의 경쟁을 해독하는 데 유용했습니다. 예를 들어, 박테리아 여과액( Pseudomonas aeruginosa acyl-homoserine lactones 또는 Lactobacillus 대사산물 등)이 진균 바이오필름의 성숙을 조절하는 데 사용되었습니다21,22. 최근에는 미세유체 플랫폼이 오가노이드-온-어-칩 기술을 통해 고정밀 생체 모사 능력을 가능하게 했습니다23,24. 미세유체 시스템이 시크리토옴에 대한 미생물 군집의 반응을 동시에 검출하는 데 구현되었으나, 이는 전문적인 장비와 숙련도가 필요하며 모든 환경에서 쉽게 구현되지 않을 수 있습니다25,26,27. 따라서 막 삽입 웰 플레이트 및 CFS 기반 분석법이 대부분의 경우 최적의 방법이 될 것입니다. 이 두 분석법 중 선택은 분비 분자의 성격에 따라 달라집니다. 분비 분자가 불안정하여 반감기가 짧고 실시간 활성 측정이 필요한 경우에는 막 삽입 웰 플레이트 분석법이 더 적합합니다. 반면, 분비 분자가 안정적이고 실험 규모가 큰 경우에는 CFS 기반 분석법이 더 경제적일 것입니다.
본 프로토콜의 주요 목적은 멤브레인 인서트 웰 플레이트와 CFS 플랫폼을 사용하여 형태학적 특성을 평가하기 위한 단계별 정성 및 정량 추적 방법론을 제시하는 것입니다(그림 1). 여기서는 Candida albicans와 Candida glabrata 사이의 분비 인자 유도 통신을 예시로 하여 이를 입증하였습니다. 또한, 이러한 도구들은 분비 신호 분자에 노출되었을 때 C. albicans 균사의 절대적 기하학적 발달(길이, 부피 및 직경)을 변화시키는 내재적 유전 변수(배수성 및 교배형 유전자좌 상태)의 영향을 정량화할 수 있습니다. 확립된 이 프로토콜은 종 간 신호 전달 역학을 연구하는 데 적합하며, 단순하고 경제적인 비접촉식 플랫폼을 제공합니다.
프로토콜
C. albicans와 C. glabrata는 모두 생물안전등급 2(BSL-2) 인간 기회감염성 병원체로 분류됩니다. 모든 실험 단계는 우수한 미생물 작업 지침(GMP) 및 기관의 밀폐 절차를 엄격히 준수하여 인증된 생물안전작업대 내에서 수행해야 합니다. 실험실 가운, 이중 장갑 및 보호 안경을 포함한 개인 보호 장구(PPE)를 상시 착용해야 합니다. 오염된 모든 소모품, 플라스틱 제품 및 액체 배양물은 최종 폐기 전 검증된 오토클레이브 멸균(121 °C, 15 psi, 20분 동안) 또는 새로 조제한 10% 차아염소산나트륨 용액을 이용한 화학적 소독을 거쳐야 합니다(권장 사항: National Institutes of Health (NIH) Waste Disposal Guide 2022). 본 방법론 전반에 사용된 모든 표준 시약, 분석 등급 화학 물질 및 장비는 재료 표에 기술되어 있습니다. 진균 균주 특성 및 배경 유전자형은 표 1에 상세히 나와 있습니다. 본 연구에 사용된 배지 목록과 그 조성은 보충 파일 1에 제공됩니다.
1. 무세포 상층액(CFS) 준비
- 배양 시작 및 배양
- 멸균된 플라스틱 루프를 사용하여 Glucose Minimal Medium (GMM) agar plate28에서 갓 성장한 C. glabrata CBS138의 단일 고립 콜로니를 채취한다. 해당 콜로니를 10 mL의 표준 Yeast Peptone Dextrose (YPD) broth (1% w/v yeast extract, 2% w/v peptone, 2% w/v D-glucose)29가 담긴 멸균 유리 튜브에 접종한다.
- 튜브를 오비탈 쉐이킹 인큐베이터 내에 고정한다. 37 °C의 일정 온도에서 200 rpm으로 지속적으로 교반하며 18시간 동안 배양한다.
- 흡광도 (OD600)가 12.0에서 14.0 사이의 안정적인 범위에 있는지 확인하여 배양이 균일하게 후기 정지 성장기(late stationary growth phase)에 진입했는지 검증한다. 현미경으로 세포를 관찰하여 세포가 효모 형태이며 오염이 없는지 확인한다. 이러한 발달 단계의 창(developmental window)은 안정적인 세포 외 시크리토옴(secretome) 성분의 최적 축적을 보장하기 위해 필요하다.
- 세포 분리 및 여과
- 18시간 배양한 C. glabrata 액체 배양물을 멸균된 15 mL 원추형 폴리프로필렌 원심분리 튜브로 무균적으로 옮긴다.
- 튜브의 무게 중심을 맞추고, 25 °C의 제어된 실온에서 정확히 5분 동안 5,000 x g로 원심분리하여 바이오매스를 단단한 펠릿으로 압축한다.
- 가공되지 않은 액체 상층액을 깨끗하고 멸균된 20 mL 플라스틱 주사기로 디캔팅한다. 주사기를 멸균된 0.22 µm Polyethersulfone (PES) 저단백질 결합 멤브레인 필터에 조심스럽게 부착한다.
- 일정한 기계적 압력을 가하여 액체를 PES 필터를 통해 멸균된 15 mL 수집 튜브로 통과시켜, 작업용 무세포 상층액(Cell-Free Supernatant, CFS)을 생성한다. 여과 중에 저항이 느껴지면 멤브레인이 파열될 수 있으므로 과도한 압력을 가하지 않는다. 이러한 경우 새 멤브레인 필터를 사용한다.
참고: 어세이를 설정하기 전에 갓 수확한 CFS를 급격한 동결-해동 사이클이나 4 °C 미만의 저장 온도에 노출시키지 마시오. 저온 침전이 저농도 단백질 인자를 불안정하게 만들 수 있기 때문이다. - 동반 멤브레인 인서트 웰 플레이트 공동 배양 실험(단계 4)으로 바로 진행하는 경우, 대상 압축 세포 펠릿을 초기 수집 튜브 내에 유지한다.
2. 균사 유도 분석을 위한 Candida albicans 접종원 준비
- 접종원 준비 및 유지
- 대상 C. albicans 균주(-80 °C에 보관된 장기 마스터 글리세롤 스톡에서 직접 회수, 유전자형은 표 1 참조)를 회수한다. 세포를 고체 GMM 플레이트(0.67% w/v 아미노산 제외 효모 질소 염기, 2% w/v D-glucose, 2% w/v agar)에 스트리킹하여 워킹 콜로니를 형성시킨다.
- 이배체 균주(SC5314, RBY1132, RBY1133)의 경우: 단일 콜로니를 5 mL의 액체 GMM에 접종한다. 튜브를 37 °C에서 200 rpm으로 일정하게 교반하며 12시간 동안 배양한다.
참고: 이배체 세포의 하룻밤 준비 과정에서 최소 배지(GMM)를 사용하는 것은 영양분이 풍부한 배지에서 자주 발생하는 자발적 자동-필라멘트화를 억제하는 데 매우 중요하다. - 단배체 균주(GZY896, GZY803)의 경우: 분리된 콜로니를 0.1 mg/mL uridine이 첨가된 5 mL의 액체 YPD 배지(YPDU)에 접종한다. 튜브를 37 °C에서 200 rpm으로 계속 교반하며 12시간 동안 배양한다.
- 형태학적 안정성을 유지하고 일관성을 보장하기 위해, 연속적인 액체 계대 배양은 최대 3회로 제한한다. 시작 대조군 풀에서 자동-필라멘트화 또는 가성균사 클러스터링이 2%를 초과하는 경우, 해당 균주를 폐기하고 마스터 냉동 스톡에서 신선한 세포를 다시 회수한다.
- 정규화
- 하룻밤 배양한 액체 배양액 1 mL를 멸균 큐벳에 분주한다. 보정된 UV-Visible 분광광도계를 사용하여 600 nm에서의 정확한 흡광도(OD600)를 측정하며, 이때 신선한 GMM 또는 YPDU 배지를 블랭크 대조군으로 사용한다.
참고: 하룻밤 배양한 액체 배양액, 특히 YPDU에서 배양된 배양액의 OD600(세포 밀도)은 분광광도계의 측정 감도 범위를 초과할 수 있다. 이러한 경우, 측정 전에 배양액을 적절히(10~20배) 희석한다. - 표준화된 대상 현탁액을 만드는 데 필요한 고밀도 배양액의 부피를 계산한다. 멸균 튜브에서 미리 데워진(37 °C) 액체 GMM으로 세포를 희석하여, 최종 OD600 = 0.1로 조정된 1 mL의 워킹 접종원을 준비한다.
- 하룻밤 배양한 액체 배양액 1 mL를 멸균 큐벳에 분주한다. 보정된 UV-Visible 분광광도계를 사용하여 600 nm에서의 정확한 흡광도(OD600)를 측정하며, 이때 신선한 GMM 또는 YPDU 배지를 블랭크 대조군으로 사용한다.
3. CFS 기반 균사 유도 분석 (96-웰 플레이트 형식)
- 어세이 설정
- 멸균된 광학적으로 투명한 평底 96-well 폴리스티렌 마이크로타이터 플레이트를 준비합니다.
- 테스트 웰 구성: 신선하게 여과된 C. glabrata CFS(단계 1.2.4 참조) 45 µL를 지정된 테스트 웰에 직접 분주합니다. 멸균된 GMM 배지(반수체 표적 균주를 평가하는 경우 YPDU 배지) 45 µL를 추가합니다.
- 음성 배지 대조군: 대조군 웰에 GMM 배지 90 µL를 추가합니다. 또한, 별도의 웰에 멸균된 GMM 배지 45 µL와 접종하지 않은 공백 YPD 배지 45 µL를 혼합하여 기본 배경 배지 성분을 모니터링합니다.
- 양성 유도 대조군: GMM 배지 80 µL와 소태아혈청(FBS; 최종 농도 10% v/v) 10 µL의 혼합액을 추가합니다.
- 접종: 모든 실험 및 대조군 웰의 적절한 배지 90 µL에 OD600 = 0.1로 표준화된 C. albicans 작동 접종액(단계 2.2.2 참조) 10 µL를 정확하게 분주합니다.
- 배양 및 데이터 수집
- 증발을 최소화하기 위해 96-well 플레이트를 전용 플라스틱 뚜껑으로 덮습니다. 플레이트를 37 °C로 유지되는 정적 인큐베이터에 정확히 3시간 동안 둡니다. 안정적인 균사 형성을 위해 이 시간 동안 플레이트를 이동하거나 흔들지 않도록 주의합니다.
- 배양 후, 명시야 광학계와 디지털 CCD 카메라 모듈이 통합된 도립 광학 현미경의 스테이지 위에 멀티웰 플레이트를 수직으로 놓습니다.
- 웰당 최소 5개의 서로 다른 시야에서 자동 또는 수동으로 이미지를 체계적으로 캡처합니다.
- 조건당 명확한 기술적 반복(technical duplicates)을 포함하여, 서로 다른 날에 준비된 최소 3회의 완전히 독립적인 생물학적 반복(biological replicates)을 통해 이 어세이 구성을 수행합니다.
4. 멤브레인 인서트 웰 플레이트 공배양 분석
- 외막측(하단) 챔버 설정
- 멸균된 24-웰 조직 배양 캐리어 플레이트를 준비합니다.
- 정규화된 OD 용액 1.0 mL를 정확하게 분주하십시오.600 = 0.1 C. albicans 세포 현탁액(단계 2.2.2에서 준비)을 하단 외막강(abluminal chamber)에 넣습니다.
- 루멘(상부) 챔버 설정
- ~을 검색하십시오 *C. glabrata* 단계 1.2.5에서 따로 보관해 둔 세포 펠렛. 펠렛을 1 mL의 멸균 GMM 배지에 다시 현탁하고, 5000 x로 원심분리합니다. g 3분 동안 처리한 후 액체를 따라냅니다. 잔류 영양 성분이나 기존 배지 성분을 제거하기 위해 이 세척 단계를 2회 반복합니다.
- 최종 세척된 펠릿을 신선한 GMM 배지에 다시 현탁하고, 최종 광학 밀도를 OD의 고농도 값으로 조정하십시오.600 = 5.0.
- 멸균 핀셋을 사용하여 트랙 에칭(track-etched) 처리된 멸균 멤브레인 웰 인서트를 집어 올립니다. 0.4 µm 공극 크기의 폴리카보네이트 막. 인서트 본체를 내용물이 채워진 24웰 플레이트 챔버 안으로 부드럽게 내려, 상단 플랜지가 중간 홈 위치에 고정되도록 합니다.
- 정확히 분주하십시오 750 µL 농축된 C. glabrata OD 측정 배양600 = 5.0를 상단 루멘 삽입 챔버(luminal insert chamber)에 넣습니다.
참고: 초기 세포 비율을 대략 1:50으로 유지하십시오.C. albicans ~로 / ~에게 / ~까지 C. glabrata막 장벽을 가로지르는 전달은 국소적 피드백 아티팩트를 방지하는 동시에 신호 전달 리간드가 충분히 축적되도록 합니다.
- 배양 및 이미징
- 조립된 멤브레인 인서트 웰 플레이트 어셈블리를 덮개로 덮고 정적으로 배양하십시오. 또는 완만한 궤도 진탕(30 rpm) 하에서 37 °C 정확히 3시간 동안.
- 배양 후, 멸균 핀셋을 사용하여 각 웰에서 상단 루멘 인서트를 조심스럽게 들어 올려 추출하십시오. 추출한 인서트는 생물학적 위험 폐기물 함에 버리십시오.
참고: 고해상도 현미경 스크리닝 시 굴절 그림자, 빛 산란 패턴 및 배경 그리드 아티팩트를 제거하기 위해서는 이미징 전 상단 삽입 막(insert membrane)을 완전히 제거해야 합니다. - 형태학적 평가를 위해 24웰 플레이트를 도립 현미경 스테이지 위에 배치하십시오. 본 연구에서는 DIC 필터 세트가 장착된 10x/0.30NA, 20x/0.50NA 또는 초장작동거리(extra-long working distance) 40x/0.60NA 대물렌즈가 있는 도립 현미경을 사용하였습니다.
5. 고해상도 현미경 관찰 및 디지털 이미지 분석
- 디지털 이미지 획득
- 저배율 10배 대물렌즈를 사용하여 웰 바닥을 스캔함으로써 세포가 균일하게 분포되었는지 확인하고, 국소적인 트래킹 오류나 비정상적인 세포 응집이 있는지 표시하십시오.
- 교정된 20x 대물렌즈를 사용하여 최소 10개 이상의 서로 다른 시야를 캡처하십시오. 이 이미지는 표준 필라멘트 수와 개체군 분포를 추적하기 위한 핵심 데이터 세트가 됩니다.
- 정밀한 표현형 분석 및 세포 경계의 세부 측정을 위해, 40배 초장작동거리(extra-long-working-distance) 대물렌즈 구성 하에서 현미경 사진을 촬영하십시오. 모든 원본 이미지 파일을 저장하십시오.
- 정량적 표현형 분석 파이프라인 (Fiji)
- 실행하십시오 Fiji (버전 1.54p 이상) 처리 소프트웨어를 사용하십시오. 다음 경로로 이동하여 대상 마이크로그래프를 엽니다. 파일 > 열기 또는 파일을 직접 끌어다 놓으십시오. Fiji 제어판
- 균사 길이 추적(L): 메인 화면의 선 선택 아이콘을 마우스 오른쪽 버튼으로 클릭하십시오. Fiji 툴바에서 다음을 선택하십시오. 분절선 도구 드롭다운 메뉴에서 선택하십시오. 움직이는 균사(filament)가 모세포 효모 세포벽 경계에서 나오는 정확한 접합 지점에 커서를 위치시키십시오.
- 균사의 중앙 종축을 따라 계속해서 왼쪽 클릭하여 추적하고, 곡선이나 굴곡진 부분은 앵커 포인트를 배치하여 조정하며, 선의 끝은 절대적인 정단 팁에서 종료하십시오. 클릭하여 측정 마이크로미터(µm) 단위로 길이를 기록하십시오.µm). 누릅니다 Ctrl+M (Windows) 또는 Cmd+M (Mac OS) 마이크로미터(μm) 단위로 총 길이(L)를 기록하십시오.µm) 결과 창 내에서.
- 동일한 필라멘트를 중복 측정하는 것을 방지하려면, 내장된 ‘브러시 도구(Brush Tool)’를 사용하여 완료된 각 세포를 강조 표시하십시오.
- 모세포 효모 세포 프로파일링: 이전에 추적된 균사 필라멘트에 해당하는 부착된 모세포 효모 세포체를 찾습니다. 다음을 사용하십시오. 분할 선 도구 세포체의 최대 장축을 측정하기 위해 최대 장축(변수 ‘a’로 정의되는 장축)을 가로지르는 직선을 긋고 다음을 수행한다. 측정 명령어
- 세포체의 가장 넓은 가로 범위에 걸쳐 장축과 엄격하게 수직이 되는 보조선을 그어 그에 대응하는 수직 횡축(변수 'b'로 정의되는 단축)을 측정하고 다음을 수행하십시오. 측정 명령어
- 모세포 효모 세포의 총 부피(CV, 세제곱 마이크로미터로 표시)를 계산하십시오. µm3‘a’와 ‘b’의 로그 변수를 사용하여 장구형(prolate spheroid)의 표준 기하학적 모델을 적용함으로써: CV = 4/3 π ab2.
- 균사 구조 두께 (d): 다음을 선택하십시오. 분절선 도구외벽 간 거리를 측정합니다. 즉, 길이 축에 수직으로 선을 긋습니다. 필라멘트 구조의 자연적인 변동성을 고려하여, 필라멘트 길이를 따라 등간격으로 떨어진 세 지점에서 이 측정값들을 측정하고 각 측정값을 기록합니다. ~을 통해 그 측정 명령어
- 이 세 가지 서로 다른 데이터 포인트의 산술 평균을 계산하여 정확한 평균 두께 값(d)을 결정하십시오. 계산된 평균 직경 값을 2로 나누어 구조 변수인 반지름(r = d/2)을 결정하십시오.
- 균사 필라멘트의 총 부피(HV, 단위는 µm3) 필라멘트를 분지되지 않은 정규 기하학적 원통으로 간주하여 처리합니다. 추적된 필라멘트 길이(L)와 도출된 구조적 반지름(r)을 다음 계산 모델에 적용합니다: HV = π 입력값이 제공되지 않았습니다. 번역할 소스 텍스트를 제공해 주시기 바랍니다.2 L.
6. 통계적 설계
- 생물학적 반복 실험
- 별도로 준비한 신선한 초기 배양물을 사용하여, 최소 3회 이상의 독립적인 생물학적 런(run)을 통해 모든 개별 테스트 레이아웃을 수행하십시오.
- 각 생물학적 런 내에서, 국소적인 웰 가장자리 효과 또는 피펫팅 오차를 고려하여 조건당 최소 2개의 동일한 기술적 웰(technical well)을 할당하십시오.
- 실험 단위의 정의: 통계적 타당성을 확보하고 아티팩트를 방지하기 위해, 각 실험당 최소 3회의 기술적 반복을 포함하십시오. 단일 웰 내에서 측정된 개별 세포는 기술적 하위 샘플(technical subsample)이 되며, 마찬가지로 이러한 웰 3개는 3회의 기술적 반복(technical replicate)에 해당합니다. 마찬가지로, 각 샘플에 대해 3회의 생물학적 반복(독립 실험)이 권장됩니다 (N = 3).
- 생물학적 런 내의 각 서로 다른 조건에 대해, 여러 시야(field of view)에 걸쳐 50~100개의 개별 세포를 무작위로 측정하십시오. 각 생물학적 반복에 대해 이러한 세포 측정값의 평균 또는 중앙값을 계산하십시오. 이후의 모든 비교 통계 테스트에는 생물학적 반복에서 얻은 이 평균 또는 중앙값을 사용하십시오.
- 분포 프로파일링 및 가설 검정
- 모수적 방법(예: 평균 비교)을 적용하기 전에, Shapiro-Wilk 또는 D’Agostino-Pearson 정규성 검사를 사용하여 생물학적 반복 데이터 세트의 정규성을 평가하십시오.
- 두 집단 비교: 단일 테스트 그룹을 단일 대조군 배경과 직접 비교할 때(예: 순수 배지에서의 야생형 C. albicans 성장 대 분리된 C. glabrata CFS에서의 성장), 데이터 세트가 정규 분포를 따른다는 전제하에 비쌍체 꼬리 양방향 Student’s t-test를 적용하십시오.
- 데이터가 정규 분포에서 크게 벗어나는 경우, 순위 데이터의 중앙값을 비교하며 데이터의 절대값에 의존하지 않는 Mann-Whitney U test(Wilcoxon 순위 합 검정)와 같은 비모수적 대안으로 전환하십시오. 비모수적 검정은 이상치 값에 영향을 받지 않는 것으로 알려져 있습니다.
- 다중 집단 평가: 세 개 이상의 유전적 라인 또는 처리 조합을 동시에 평가할 때(예: MATa/a, MATα/α, MATa/α 균주 전체의 형태학적 변이 추적), 표준 일원 분산 분석(One-Way ANOVA)을 수행한 후 다중 쌍별 비교를 위해 Tukey’s 사후 검정을 수행하십시오. 정규성 검정 조건을 충족하지 않는 경우, 모수적 프레임워크를 비모수적 Kruskal-Wallis test로 대체하고 이어서 Dunn’s 사후 다중 비교 분석을 수행하십시오.
- 그래픽 표현 및 데이터 시각화: 모든 통계 분석 및 그래픽 표현은 통계 및 그래프 소프트웨어를 사용하여 수행하십시오.
참고: 통계 분석 및 그래픽 표현 작성을 위해 이에 상응하는 다른 소프트웨어를 사용할 수 있습니다. 멤브레인 인서트 웰 플레이트 및 CFS 분석 데이터는 컬럼-산점도(column-scatter plot), 지터-바이올린 플롯(jitter-violin plot) 또는 지터 박스 플롯(jitter box plot)으로 표현할 수 있으며, 이는 중앙값(중앙선)과 95% CI(본 연구에서 사용됨), 또는 중앙값(중앙선)과 제1 및 제3 사분위수(각각 상단 및 하단선)를 나타냅니다. - 공식적인 통계적 유의성 임계값을 알파 수준 p < 0.05로 설정하십시오. 생성된 모든 데이터 그림과 표에서 관례적인 표기법 구성을 유지하십시오. 예: ns: p > 0.05; *: p < 0.05; **: p < 0.01; ***: p < 0.001; ****: p < 0.0001.
결과
종 간 상호작용 탐구를 위한 비접촉 공동 배양 분석
수용성 및 저농도의 세포 외 신호 전달 분자는 혼합 미생물 공생 과정에서 주요 통신 사건을 매개하는 경우가 많습니다. 이러한 역학을 평가하기 위해 C. albicans와 C. glabrata 사이의 상호작용 패턴을 분석하면서 직접적인 세포 간 물리적 접촉은 방지하도록 설계된 두 가지 비접촉 세포 기반 설정을 사용하였습니다. 첫 번째 구성은 통합 막 삽입 웰 플레이트 배양 시스템을 이용하였으며, 여기서 두 균주는 불활성 0.4 µm 다공성 폴리카보네이트 막에 의해 물리적으로 분리되어 분비된 분자들이 장벽을 통해 양방향으로 자유롭게 확산될 수 있도록 하였습니다. 두 번째 설정에서는 정지기 C. glabrata 배양액에서 수집한 세포 제거 상층액(CgCFS)이 포함된 마이크로타이터 플레이트에서 직접 배양된 C. albicans 효모 세포의 성장을 모니터링하였습니다.
이전 스크리닝 결과30와 일치하게, 야생형 이형 접합 이배체 C. albicans 세포(SC5314)는 멤브레인 인서트 장벽으로 분리된 C. glabrata 세포 또는 여과된 CgCFS에 반응하여 진균사(true hyphae)를 쉽게 형성했습니다. 반면, 순수 음성 대조군 배지(GMM 또는 YPD)에서 유지된 세포는 주로 출아 효모 및 가성 균사 형태로 남아 있었습니다(그림 2A). 비교 분석 결과, 두 가지 분석 설정 간에 일관성이 있음이 입증되었습니다. 두 분석 모두 필라멘트 길이, 부피, 두께를 포함한 모든 구조적 지표에서 유사한 값을 나타냈습니다(그림 2). 형태학적 파라미터의 차이는 적절한 통계 테스트와 이어서 수행된 다중 비교 사후 테스트의 p-값이 0.05 기준을 충족할 때 유의미한 것으로 간주되었습니다. 이러한 관찰 결과, C. albicans 세포는 멤브레인 인서트 웰 플레이트 설정 내의 C. glabrata 세포에 의해 유도된 진균사의 길이(39.66 µm ± 6.81 µm)와 여과된 CgCFS에 노출되었을 때의 길이(37.13 µm ± 6.50 µm; 그림 2B) 사이에 유의미한 차이가 없음을 보여주었습니다. 마찬가지로, 멤브레인 인서트 웰 플레이트 시스템에서 유도된 필라멘트의 부피(112.10 µm3± 22.59 µm3) 또한 CgCFS 조건화 배지에서의 부피(109.78 µm3± 34.69 µm3; 그림 2C)와 유의미한 차이가 없었습니다. 또한, 필라멘트 직경 측정 결과, 평균 균사 두께는 멤브레인 인서트 웰 플레이트 구성의 경우 1.89 ± 0.10 µm, CgCFS 처리의 경우 1.92 µm ± 0.23 µm로 두 설정 간에 일정하게 유지됨을 확인했습니다(그림 2D).
배수성 상태와 교배형 구성은 in vitro 형태학적 치수를 변화시킨다
이형 전환을 유도하는 배수성 수준과 교배 유전자좌 구조의 역할이 서로 다른 진균 모델 시스템에서 규명되었습니다. 본 연구에서는 분석 추적 파이프라인을 적용하여 일련의 반수체(MATa 또는 MATα) 및 이배체(MATa/a, MATα/α 또는 MATa/α) C. albicans 균주들에 걸쳐 균사 길이, 구조적 부피, 두께 및 그에 상응하는 모효모 세포 부피와 같은 균사 형성 지표를 정량화하였습니다.
구조적 프로파일링 결과, 유도제인 CgCFS 시크리토메(secretome) 또는 양성 혈청 대조군에 노출되었을 때, 호모자이거스 이배체 알파 균주(MATα/α)는 호모자이거스 이배체 MATa/a 균주와 비교하여 유의미하게 더 긴 축 길이(45.56 µm ± 9.24 µm 및 46.62 µm ± 9.07 µm)와 더 큰 부피(125.24 µm3 ± 39.94 µm3 및 119.45 µm3 ± 37.32 µm3)를 가진 필라멘트를 형성하였다(그림 3A,C). 표준 임상 분리주인 C. albicans는 주로 헤테로자이거스 이배체로 존재하지만, 표준 MATa/α 균주는 유도 후(특히 혈청에 의해) MATa/a 균주에 비해 더 긴 필라멘트와 더 큰 부피를 나타냈다. 그러나 이는 호모자이거스 MATα/α 균주보다 유의미하게 작았다(그림 3B,D).
동시에, 반수체 균주들은 반대되는 패턴을 보였는데, 두 유도 조건 모두에서 반수체 MATa 균주가 반수체 MATα 균주에 비해 균사 길이가 유의미하게 증가하였습니다 (CgCFS: 22.06 µm ± 5.41 µm 대 17.58 µm ± 4.12 µm; Serum: 23.71 µm ± 6.59 µm 대 21.00 µm ± 5.29 µm; 그림 4A). 흥미롭게도, 반수체 배경에서의 이러한 길이 증가는 CgCFS에 반응할 때만 균사 부피의 증가(38.84 µm3 ± 19.58 µm3 대 34.25 µm3 ± 19.62 µm3)로 이어졌습니다 (그림 4B). 이러한 초기 in vitro 측정 결과는 배수성 상태와 교배형 유전자좌 구성 사이의 복잡한 상호작용을 시사하며, MATa 및 MATα 유전자좌가 균사 형성 역학에 서로 다르게 기여할 가능성이 높음을 나타냅니다.
결합된 데이터셋 전반에 걸쳐 이러한 구조적 지표들 사이의 통계적 관계를 연구하기 위해, 테스트된 모든 배수성 및 교배형 변이체를 포함하여 Spearman 순위 상관관계(ρ) 및 Pearson 선형 회귀(R2) 분석을 수행하였습니다. 분석된 모든 쌍에서 양의 상관관계가 관찰되었습니다: 균사 길이 대 균사 부피, 균사 길이 대 균사 두께, 균사 길이 대 모세포 부피, 그리고 총 균사 부피 대 모효모 세포 부피 (그림 5, 보충 표 1 및 보충 표 2).
균사 길이와 계산된 균사 부피 사이에 가장 강력한 관계가 관찰되었습니다(ρ = 0.91; 그림 5A). 반대로, 모세포 효모의 초기 부피와 돌출된 균사 부피 사이의 상관관계가 가장 낮았습니다(ρ = 0.63; 그림 5C). 또한, 균사 두께는 균사 부피만큼 균사 길이와 강한 상관관계를 보이지 않았습니다(그림 5A,D). 모세포 부피, 균사 길이 및 균사 두께 간의 상관관계에서는 통계적으로 유의미한 차이가 나타나지 않았습니다(그림 5B,D). 이러한 기하학적 분포는 모세포 효모의 초기 부피가 더 크다고 해서 반드시 더 긴 균사나 더 높은 부피로 이어지는 것은 아님을 시사합니다.
요약하자면, 이러한 결과는 물리적 접촉 없이 C. albicans의 형태 형성 변화를 시각화하고 정량화하는 데 있어 멤브레인 인서트 웰 플레이트와 CFS 기반 분석법 모두가 유용함을 보여줍니다. 본 프로토콜을 통해 생성된 데이터는 서로 다른 배수성 배경과 교배형 구성에 따라 각기 다른 형태적 특성이 나타남을 밝혀냈습니다. 이러한 비접촉식 분석 설정은 다양한 미생물 조합 간의 종간 신호 전달 역학을 조사하는 데 적용할 수 있는 유연하고 확장 가능한 방법론을 제공합니다.
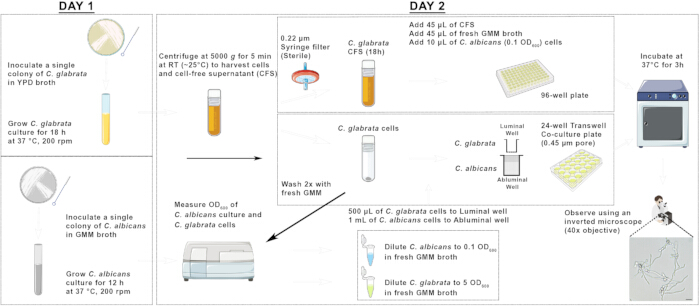
그림 1: Candida 종을 이용한 멤브레인 인서트 웰 플레이트 공동 배양 및 CFS 기반 균사 유도 분석의 모식도. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
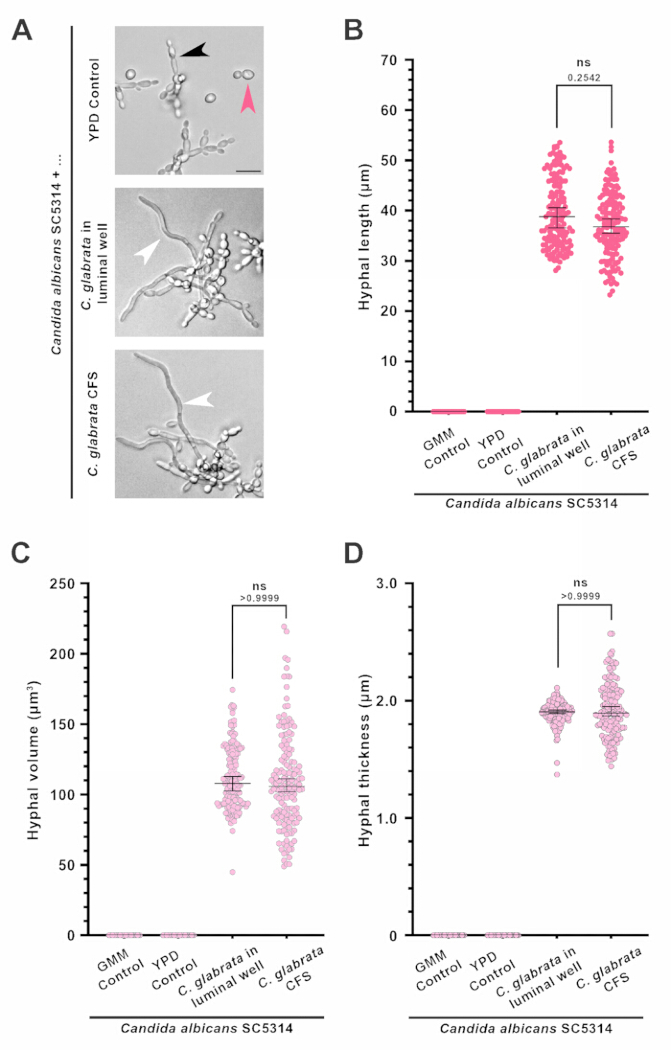
그림 2: 멤브레인 인서트 웰 플레이트와 CFS 기반 비접촉 분석법 간에 관찰된 균사 형태의 비교. (A) 멤브레인 인서트 웰 플레이트 설정의 YPD(대조군) 또는 C. glabrata, 또는 C. glabrata 무세포 상등액(CFS)으로 조건화된 배지에 대한 C. albicans의 형태학적 반응을 나타내는 대표적인 명시야 현미경 사진. 분홍색, 검은색 및 흰색 화살표는 각각 효모, 가균사와 진성 균사를 나타냄. 스케일 바, 10 µm. 멤브레인 인서트 웰 플레이트 설정의 C. glabrata 세포 또는 C. glabrata CFS에 반응하여 관찰된 이형 접합 이배체 C. albicans 균주(SC5314)의 균사 길이(B), 균사 부피(C) 및 균사 두께(D). 데이터는 세 번의 독립적인 생물학적 실험 결과의 중앙값 ± 95% 신뢰 구간을 나타내며, n = 50 cells임. ns, 유의하지 않음: p > 0.05. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
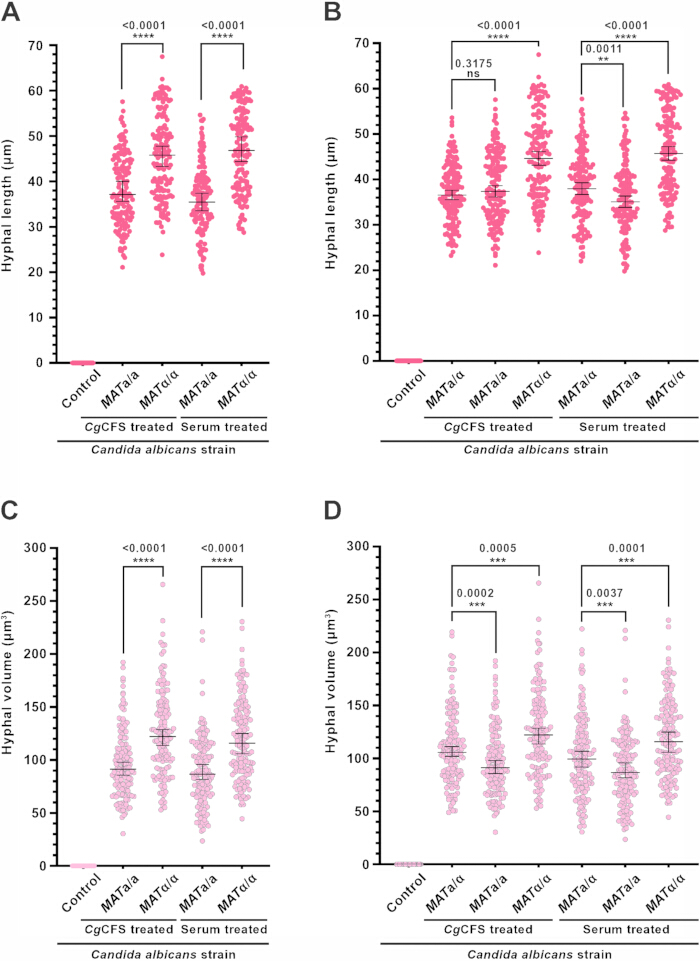
그림 3: 이배체 C. albicans의 균사 형태에 교배형과 접합성이 유의미한 영향을 미친다. 표시된 유도 분자에 반응한 C. albicans의 동형접합 이배체 간(A) 및 이형접합과 동형접합 이배체 간(B)의 비교 균사 길이를 나타낸 그래프이다. 마찬가지로, 언급된 유도 분자에 반응한 동형접합 이배체 간(C) 및 이형접합과 동형접합 이배체 간(D)의 비교 균사 부피를 보여준다. 대조군: YPD, 비균사 유도 배지 대조군. 데이터는 3회의 독립적인 생물학적 실험에서 얻은 중앙값 ± 95% 신뢰 구간을 나타내며, n = 50 cells이다. 그래프 상단에 표시된 숫자는 Wilcoxon 순위 합 검정 비교로 결정된 p-값이다. **: p < 0.01, ***: p < 0.001, ****: p < 0.0001은 통계적으로 유의미함; ns는 유의미하지 않음: p > 0.05. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
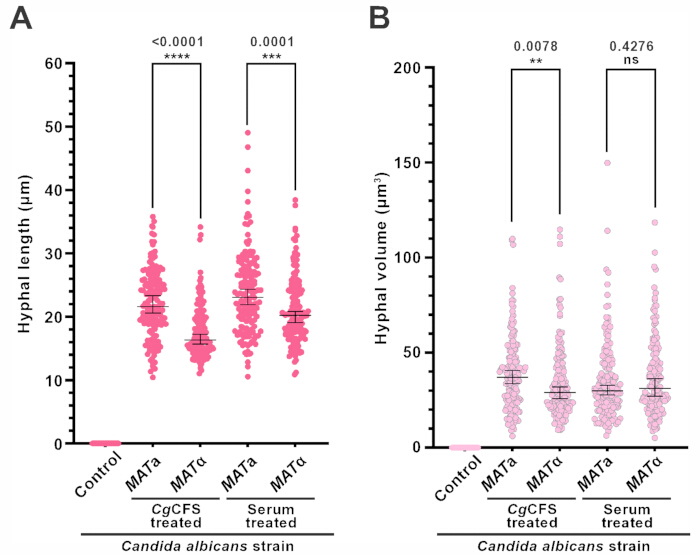
그림 4: 다양한 분자 유도제에 반응한 반수체 C. albicans의 균사 특성. 플롯은 표시된 유도제에 반응한 반수체 C. albicans 균주의 균사 길이(A)와 균사 부피(B)를 나타낸다. 대조군: 비균사 유도 배지 대조군인 YPD. 데이터는 n = 50개 세포를 대상으로 한 3회의 독립적인 생물학적 실험에서 얻은 중앙값 ± 95% 신뢰 구간을 나타낸다. 표시된 숫자는 Wilcoxon 순위 합 검정으로 결정된 p-값이다. **: p < 0.01, ***: p < 0.001, ****: p < 0.0001은 통계적으로 유의미함을 뜻하며, ns는 유의미하지 않음(p > 0.05)을 뜻한다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
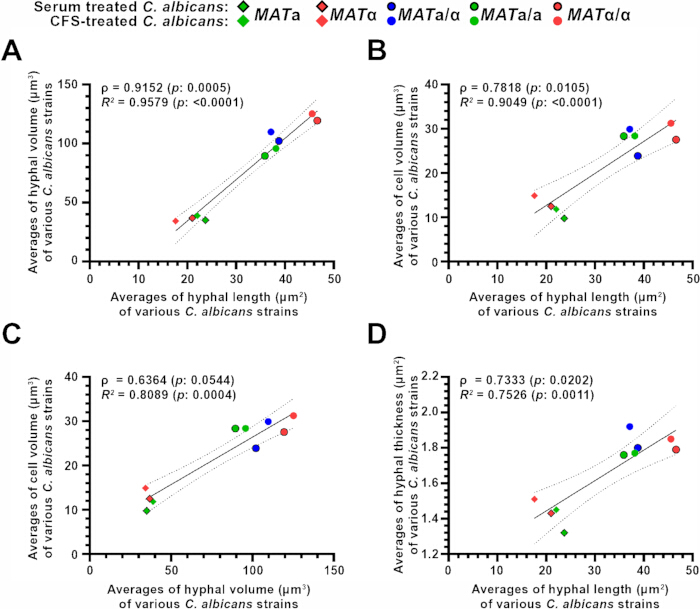
그림 5: C. albicans의 배수성과 대응하는 형태학적 파라미터 간의 상관관계. 그래프는 본 연구에서 사용된 형태학적 파라미터, 즉 균사 부피와 균사 길이(A), 세포 부피와 균사 길이(B), 세포 부피와 균사 부피(C), 그리고 균사 두께와 균사 길이(D) 간의 Spearman 상관관계 및 선형 회귀를 보여준다. ρ: Spearman 상관계수; R2: 선형 회귀 분석의 결정계수; p: p-값. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
| 균주 | 종 | 배수성 | 유전자형 | 제공된 소스 텍스트가 없습니다. 번역할 내용을 입력해 주세요. |
| CBS138 | Candida glabrata | 반수체 (1n) | MATα | ATCC 2001 |
| SC5314 | Candida albicans | 이배체 (2n) | 이형 접합(MATa/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | 이배체 (2n) | 동형접합(MATa/a); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. Candida albicans의 장벽 활성이 페로몬 분해를 매개하고 교배를 촉진한다. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | 이배체 (2n) | 동형접합(MATα/α); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | 반수체 (1n) | 동형접합(MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. ‘필수 이배체’ Candida albicans는 교배 능력이 있는 반수체를 형성한다. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | Candida albicans | 반수체 (1n) | 동형접합(MATα); his4 ura3Δ::HIS4 |
표 1: 본 연구에 사용된 Candida albicans 및 Candida glabrata 균주. 이 표는 비접촉식 막 삽입 웰 플레이트 공동 배양 및 세포 없는 상층액(CFS) 기반 분석에서 평가된 진균 균주의 명칭, 명시적 유전자형, 배수성 상태 및 교배형 접합성을 나타냅니다.
보충 표 1: 다양한 C. albicans 형태학적 파라미터에 대해 수행된 통계 분석 데이터. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 2: 본 연구에서 평가된 다양한 C. albicans 형태학적 파라미터의 모든 생물학적 반복 실험 원시 값.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 1: 본 연구에 사용된 배지 목록 및 조성.이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
멤브레인 인서트 웰 플레이트와 CFS 기반 분석법을 사용한 이전 보고에 따르면, C. albicans는 C. glabrata 세포 또는 그 CFS에 반응하여 균사를 형성하는 것으로 나타났습니다. 그러나 이러한 반응은 Saccharomyces cerevisiae 및 Candida dubliniensis와 같은 다른 효모들에 의해서는 유도되지 않았습니다30. 또한, 이러한 균사 반응은 C. albicans SC5314 실험실 표준 균주에만 국한되지 않고, 임상 분리주 WUM5A를 포함한 다른 유전적 배경에서도 발생했습니다30. 본 프로토콜에서는 이러한 발견을 바탕으로 균사 길이, 균사 부피, 균사 두께라는 세 가지 형태학적 지표를 정량화하기 위한 표준화된 워크플로우를 구축했습니다. 나아가, 이러한 형태학적 요인들을 사용하여 배양액 분비 유도 분자에 반응하는 C. albicans의 형태적 특성에 배수성 및 접합형 유전자좌 상태의 변이가 어떠한 영향을 미치는지 평가하였습니다.
여기에서 설명하는 비접촉식 방법론은 가용성 종 간 신호 전달 인자의 형태 측정 결과를 시각화하고 분석하기 위한 간단한 실험적 프레임워크를 제공합니다. 멤브레인 인서트 웰 플레이트는 활성 배양물 간의 양방향 확산을 가능하게 하는 반면, CFS 기반 분석법은 필요한 유도 성분을 하위 표적 배양물과 독립적으로 수집하기 때문에 확장 가능한 포맷을 제공합니다. 분석의 일관성을 위해서는 멤브레인 인서트 웰 플레이트 설정에서 약 1:50 (C. albicans 대 C. glabrata)의 비율을 유지하는 것이 필요합니다. 이러한 농도 기울기는 멤브레인 장벽을 통해 가용성 유도 분자의 적절한 흐름을 보장하는 동시에, C. albicans의 필라멘트 형성 역학을 억제할 수 있는 farnesol과 같은 내인성 쿼럼 센싱 억제제의 축적 임계값 미만으로 유지시켜 줍니다31,32. 이와 유사하게, CFS 기반 분석에서 중요한 단계는 C. glabrata 소스 배양물이 균일하게 후기 정지 성장기에 도달하는 데 필요한 18시간의 배양 기간입니다. C. glabrata 배양 기간이 12시간 미만이거나 24시간을 초과하는 경우, 수집된 CFS가 본 연구에서 다룬 특정 유도 분자의 최적 농도를 가질 가능성이 낮아져 균사 유도가 최적화되지 않을 수 있습니다. CFS를 수집하기 위한 적절한 성장 단계나 배양물 비율은 새로운 실험 목적 및/또는 새로운 미생물 종의 조합에 대해 표준화되어야 합니다.
다양한 실험실 환경에서 분석 재현성을 최대화하기 위해 다음과 같은 주요 절차적 개선 사항을 권장합니다. 모든 이배체 C. albicans 균주의 하룻밤 배양에는 Glucose Minimal Medium (GMM) 사용을 권장합니다. GMM을 사용하면 영양이 풍부한 YPD 배지에서 빈번하게 관찰되는 배경 자동균사형성(auto-filamentation)을 억제할 수 있습니다. 이러한 자동균사형성은 다른 연구에서도 관찰되었으나, 그 근본적인 기전은 여전히 불분명합니다33. 또한 고배율 명시야 현미경 관찰 시 방해가 될 수 있는 빛 산란 및 광학 수차를 제거하기 위해, 이미지 획득 전에 폴리카보네이트 멤브레인 인서트를 완전히 물리적으로 제거할 것을 권장합니다.
이러한 비접촉식 구성은 가용성 신호 전달 성분의 역할을 구분하는 데 도움이 되지만, 특정한 실험적 어려움이 수반됩니다. 예를 들어, 비접촉식 분석법은 부주의한 취급으로 인한 막 파열과 그로 인한 미생물 교차 오염과 같은 사소한 위험에 노출되기 쉽습니다. 따라서 샘플링 시 피펫 팁이 막이 아닌 인서트의 챔버 벽면에 닿도록 주의하여 팁을 배치해야 합니다. 또한, 부적절한(더 큰) 공극 크기로 인해 구획 간에 물리적 교차 오염이 발생할 수 있으며, 이는 적절한 막 공극 크기를 가진 인서트를 사용하여 쉽게 해결할 수 있습니다. 진균의 과성장이나 광범위한 바이오필름 증착이 다공성 막을 덮을 수 있는데, 이는 초기 접종 농도를 OD600 = 0.1로 제한하고 12 h 이상 배양하지 않음으로써 해결할 수 있습니다. 추가적으로, 미생물이 장치 웰 내에서 균일하게 분포하지 않고 종종 막 근처에 응집되거나 부착될 수 있으며, 이는 광학 밀도 측정에서 예상치 못한 편향을 초래할 수 있습니다. 더욱이, 이러한 시스템은 두 개체군을 물리적으로 분리하기 때문에 세포 간의 직접적인 물리적 접촉에 의존하는 상호작용을 재현하거나 평가할 수 없습니다. 예를 들어, 혼합 종 바이오필름의 성숙, 기계적 공동 응집, 또는 세포벽 부착소(adhesins)에 의해 유도되는 신호 전달 등이 이에 해당합니다. 이러한 플레이트 기반 분석법은 초기 필라멘트 형성 역학(3 h 시점)의 효과적인 최종 시점 스냅샷을 제공하지만, 장기적인 성장 역학이나 공간적 행동은 포착하지 못합니다. 장기간에 걸쳐 연속적인 실시간 추적이 필요한 연구자의 경우, 특수 미세유체 관류 채널이나 자동화된 살아있는 세포 이미징 챔버가 더 적합한 대안이 될 수 있습니다.
세포의 기하학적 구조는 대사 효율과 근본적으로 연결되어 있으며, 특히 표면적 대비 부피(SA/V) 비율은 영양분 획득 및 세포 내 운송의 핵심 동력으로 작용합니다. 이형성 및 사상균에서 길쭉한 균사 형태(hyphal morphotype)로의 전환은 최적화된 SA/V 비율을 유지하기 위한 구조적 적응 기전으로 작용합니다. 이를 통해 균사 끝단 지향적 대사 과정을 유지하는 동시에 확장된 균사벽을 따라 분산된 영양분 흡수가 가능해집니다34,35,36,37. 하지만 본 연구 결과, 형태 측정학적 스케일링은 서로 다른 배수성 상태 및 교배형 유전자좌(mating-type locus) 구성에 따라 균일한 비례 관계로 나타나지 않음을 보여줍니다.
생성된 형태계측 데이터 세트 ~을 통해 이 추적 프로토콜은 배수성과 상관관계가 있는 명확한 구조적 스케일링 경향을 보여주며, 반수체 계통은 모든 기하학적 지표에서 대응하는 이배체 균주보다 일관되게 더 작은 절대값을 나타냅니다.그림 5). 이배체 배경 내에서, 동형접합의 MATα/α 구성에서 ~ 대비 향상된 필라멘트 형성 역학(길이 및 부피)이 나타났다 MATa/a 또는 MATa/α 이러한 조건 하의 균주들 in vitro 조건들. 강화된 사상형 성장(filamentation)이 종종 침투 능력의 증가와 관련이 있다는 점을 고려할 때, 다음의 임상 분리주들이 왜 C. albicans 주로 이형 접합 이배체로 분리되며 (MATa/α). 면역 능력이 있는 숙주 내에서는 헤테로접합 상태가 장기적인 공생 군집 형성에 더 광범위한 적응도 이점을 제공할 가능성이 있습니다. 다시 말해, 다음과 같은 구조적 특성이 MATa/α 형태형은 숙주의 면역 감시로부터 생존하는 방향으로 최적화되어 있습니다. 따라서 향후 연구에서는 이러한 표준화된 공동 배양 시스템을 활용하여, 다양한 선택 압력 하에서 서로 다른 교배형 동형접합체의 상대적 적응도를 체계적으로 평가해야 합니다.
이전 연구들은 액포의 형태, 분열-융합 역학 및 구조적 확장이 신장하는 진균 필라멘트의 내부 부피와 팽압을 조절하는 데 중요한 역할을 한다는 것을 입증했습니다. 예를 들어, 도열병균인 Magnaporthe oryzae에서는 가느다란 영양 균사와 구형의 침입 구조 사이의 뚜렷한 전환이 액포 조직의 변화와 밀접하게 조정됩니다38,39,40. 하지만 현재의 프로토콜은 C. albicans의 필라멘트 형성 과정 중 액포 역학을 직접적으로 모니터링하지 않았으며, 이러한 내부 세포소기관의 변화를 전체 구조적 부피와 관련하여 추적하는 것은 향후 연구를 위한 유익한 방향이 될 것입니다. 또한, 특정 진균 유래 분비체 성분이 혈청과 같은 숙주 유래 화학적 유도제와 서로 다른 형태적 스케일링 역학을 유도하는 이유를 밝히기 위한 추가 연구가 필요합니다.
본 프로토콜에 상세히 설명된 비접촉식 공동 배양 방법은 기회감염성 박테리아 군집과 이형성 진균 사이의 신호 전달 역학과 같은 종 간 및 계 간 상호작용을 조사하는 데 응용될 수 있습니다. 또한, 이러한 96-well 및 24-well 포맷은 확장 가능하므로, 이 정량적 플랫폼을 화학적 스크리닝에 활용할 수 있습니다. 그 예로는 기본 세포 생존력에 직접적인 영향을 주지 않으면서 시크리토옴(secretome)에 의해 자극되는 사상형 형성 경로를 선택적으로 차단하는 저분자 억제제 또는 새로운 항진균 화합물의 식별 등이 포함됩니다.
공개 사항
저자들은 경쟁 관계나 이해 상충 관계가 없음을 선언합니다.
감사의 글
본 연구는 RNP에게 수여된 DBT-Wellcome Trust India Alliance Intermediate Fellowship (IA/I/19/1/504294)의 지원을 받았습니다. KBSS는 Ahmedabad University Special Research Grant (AU/SRG/SAS/20-21/07_KS_03.25) 및 SERB-Core Research Grant (URBSASE23A6/SERB/23-24/KS_02.27)의 지원을 받았습니다. 그림 1에 사용된 아이콘은 CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/) 라이선스 하의 Servier Medical Art (https://smart.servier.com/)와 BioArt Source, NIAID, NIH에서 수정하여 사용하였습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.22 μm PES 주사기 필터 | Millipore (Merck) | SLGPR33RS | |
| 한천 | HiMedia | GRM666 | |
| 포도당 | HiMedia | GRM016 | |
| 세포 배양 인서트가 포함된 Nunc 24-웰 캐리어 플레이트 (0.4 μm) | Thermo Scientific | 141002 | |
| Nunc BioLite 96웰 멀티디쉬, 세포 배양 처리됨, 평평한 바닥 | Thermo Scientific | 130188 | |
| 프로테오스 펩톤 | HiMedia | RM005 | |
| 우리딘 | 시그마 | U6381 | |
| 효모 추출물 | HiMedia | RM027 | |
| 효모 질소 베이스, 황산 암모늄 포함, 아미노산 제외 | HiMedia | M878 |
참고문헌
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공