유전자 기능 및 약물 내성에 관한 Mycobacterium tuberculosis 돌연변이를 연구하기 위해, 등배경(isogenic background)에 변화를 도입하는 두 가지 표적 부위 특이적 돌연변이 유발 기술인 자살 벡터를 이용한 2단계 대립유전자 교환(AE)과 ssDNA 올리고뉴클레오타이드를 이용한 재조합공학(recombineering)을 설명하고 비교합니다. 돌연변이 유발 여부는 PCR 및 증폭 산물의 시퀀싱을 통해 확인합니다.
방법 논문
Mycobacterium tuberculosis의 부위 특이적 돌연변이 유발
* These authors contributed equally
이 논문에서
요약
초록
임상 분리주의 다양한 유전적 배경으로 인한 혼란 변수 없이 특정 돌연변이의 영향을 연구하기 위해서는 마이코박테리움(mycobacterial) 게놈의 정밀한 조작이 필요합니다. 이는 특히 유전자 기능과 약물 내성 기전을 조사할 때 매우 중요한데, 배경 돌연변이가 관심 돌연변이의 효과를 강화하거나 억제할 수 있기 때문입니다. 본 영상에서는 동종의 Mycobacterium tuberculosis 배경에 정의된 돌연변이를 도입하기 위해, 자살 벡터(suicide vector)를 이용한 2단계 대립유전자 교환과 올리고뉴클레오티드 매개 재조합 공학(recombineering)이라는 두 가지 표적 부위 특이적 돌연변이 유발 접근법을 설명하고 비교합니다.
2단계 대립유전자 교환은 마이코박테리아 복제 기원이 결여되어 있고 돌연변이 DNA 단편을 운반하며, 다음과 같은 선택 마커를 포함하는 자살 벡터를 사용합니다. sacB 자당 민감도 측정을 위해, lacZ 청백 선별(blue-white screening) 및 항생제 내성 유전자(카나마이신(kanamycin) 또는 hyg). 이 과정은 다단계 폴리머라제 연쇄 반응(PCR) 또는 합성을 통해 변이된 단편을 생성하고, 이를 벡터에 클로닝한 후 전기천공법으로 도입하는 과정을 포함합니다. 결핵균(M. tuberculosis)또한, 항생제 내성 및 blue-white colony 스크리닝을 통해 단일 교차(single-crossover, SCO) 통합 이벤트를 선택합니다. 이어서 숙로스(sucrose)와 X-gal을 이용한 역선택을 통해 야생형 서열을 보유한 박테리아를 제거합니다. 이 방법은 안정적이고 표지가 없는 돌연변이를 보장하지만, 시간이 많이 소요되고 노동 집약적입니다.
리콤비니어링(Recombineering)은 유도 가능한 acetamidase 프로모터 하에서 Che9c gp61 리콤비네이스(recombinase)를 발현하는 pJV75amber와 같은 리콤비네이스 발현 플라스미드를 단일 가닥 DNA(ssDNA) 올리고뉴클레오타이드와 함께 사용하여 정밀한 돌연변이를 도입하는 방법입니다. 형질전환체는 적절한 항생제를 통해 선별하며, PCR 및 Sanger 시퀀싱으로 확인합니다. 이 접근 방식은 더 간단하고 빠르며 비용 효율적이지만, 낮은 형질전환 효율, 신선한 컴피턴트 셀(competent cells)의 필요성, 그리고 게놈 영역과 올리고뉴클레오타이드 설계에 따라 효율이 달라질 수 있다는 제한점이 있습니다.
2단계 대립유전자 교환(allelic exchange)과 리콤비니어링(recombineering)은 M. tuberculosis에 특정 돌연변이를 도입하기 위한 상호 보완적인 전략을 제공합니다. 두 방법 모두 유전자 기능 및 약제 내성과 관련된 변이와 같은 돌연변이의 실험적 검증을 가능하게 합니다.
서론
게놈 돌연변이에 대한 연구는 다양한 방법을 통해 유전자 기능과 약물 내성을 조사할 수 있게 해줍니다. 하지만, 관심 있는 돌연변이를 보유한 임상 분리주의 복잡한 유전적 배경은 다른 수많은 돌연변이가 상호작용하여 시너지 효과나 길항 효과를 일으킬 수 있기 때문에 종종 결과 해석을 어렵게 만듭니다1. 인공지능(AI) 기반 접근 방식으로 내성을 예측할 수는 있지만, 이를 결정적으로 증명하거나 하위 효과를 판단할 수는 없습니다2,3.
자발적 돌연변이에 의존하는 변동 분석(Fluctuation assays)은 항결핵제와 같은 알려진 스트레스 요인 하에서 내성을 효과적으로 선택할 수 있습니다4,5. 그러나 이러한 비표적 전략은 광범위한 스크리닝이 필요하며, 임상 분리주에서 관찰되는 약물 내성 관련 유전자의 새로운 돌연변이와 같은 특정 돌연변이를 회복한다는 보장이 없습니다.
여러 표적 접근 방식이 개발되었으며, 그중 부위 특이적 돌연변이 유발(site-directed mutagenesis)은 관심 유전자에 정밀한 단일 뉴클레오타이드 치환(점 돌연변이)을 도입하는 데 사용되는 일련의 분자 생물학적 기법을 포함합니다6. 일반적인 작업 흐름은 다음과 같습니다: (1) 원하는 점 돌연변이가 포함된 관심 유전자를 갖는 공여 DNA 단편 또는 플라스미드 생성, (2) 이 DNA를 박테리아에 도입, (3) 돌연변이 서열을 염색체의 표적 유전자좌로 전달, (4) 재조합을 통해 돌연변이의 통합을 촉진, (5) 재조합 돌연변이체 선별.
M. tuberculosis 유전자의 표적 조작을 위한 두 가지 서로 다른 부위 특이적 돌연변이 유발 전략을 기술하고, 각 작업 흐름을 비교하며, 각각의 장단점을 논의합니다. 이 방법들은 마이코박테리움의 천연 상동 재조합(HR) 수선 경로(본문에서는 자살 벡터를 이용한 2단계 대립유전자 교환(AE)이라고도 함)7 또는 플라스미드 인코딩 파지 유래 리콤비니어링 시스템8을 활용합니다.
2단계 AE 법은 HR을 통해 유기체의 염색체 DNA에 자살 전달 벡터(suicide delivery vector)를 통합합니다. 이 자살 전달 벡터는 pNIL/pGOAL 벡터 시리즈의 일부를 구성하는 유연한 카세트를 포함하고 있으며, 이에 대해 충분히 논의된 바 있습니다7. 이는 유전자 녹아웃 및 대규모 삽입을 포함한 복잡한 편집에 대해 높은 정밀도와 안정적인 통합을 제공합니다. 자살 벡터와 재조합 공학(recombineering)을 이용한 AE의 핵심 원리는 HR 기반 유전자 녹아웃 및 점 돌연변이 도입을 포함하여, 마이코박테리아에 대한 이전 프로토콜에서 이미 확립되었습니다9,10, 7. AE의 한계로는 여러 선택 마커로 인한 잠재적인 in vitro 항생제 스트레스, 연속 계대 배양 중 자발적 돌연변이 발생 위험, 노동 집약적인 클로닝 단계, 그리고 8~12주가 소요될 수 있는 2단계 선택 과정 등이 있습니다.
이와 대조적으로, 재조합 공학(recombineering)은 pJV75amber의 Che9c gp61 재조합효소와 단일 가닥 DNA(ssDNA) 올리고뉴클레오타이드를 활용하여8,11 부위 특이적 돌연변이 유발 및 스크리닝을 용이하게 합니다. 에피솜 플라스미드 pJV75amber는 유도 가능한 acetamidase 프로모터의 제어 하에 Che9c gp61 재조합효소(E. coli RecT와 상동성을 갖는 단일 가닥 DNA 어닐링 단백질)를 발현합니다8. 재조합효소 단백질은 점 돌연변이를 포함하는 외생적으로 합성된 ssDNA 올리고뉴클레오타이드 템플릿과 내생성 상동 DNA 가닥 사이의 ssDNA 인식, 어닐링 및 대립유전자 교환을 매개합니다8.
리콤비니어링(Recombineering)은 클로닝 단계를 생략하여 전체 소요 시간을 4~6주로 단축하므로, 임상 분리균주 내 약제 내성 변이체를 빠르게 검증하는 데 이상적입니다. 하지만 리콤비니어링은 특정 게놈 영역에서 효율이 가변적일 수 있으며, 짧은 상동성 팔(homology arms)의 사용으로 인해 오프타겟(비정상적) 재조합이 발생할 수 있어 반복적인 실험 과정이 필요할 수 있습니다. 또한, 내장된 역선택(counter-selection) 기전이 없는 경우 콜로니에 대한 광범위한 스크리닝이 추가로 필요할 수 있습니다.
두 방법을 나란히 제시함으로써 연구자는 프로젝트의 필요에 따라 하나를 선택할 수 있습니다. 필수 유전자의 견고하고 표지가 없는 편집을 위해서는 AE를, 고속 대량 돌연변이 유발의 속도와 단순성을 위해서는 리콤비니어링(recombineering)을 선택할 수 있습니다. 궁극적으로 이러한 접근 방식은 혼란 변수가 되는 유전적 배경 없이 유전자 기능, 상위성 및 저항성 기전에 대한 연구를 용이하게 합니다. 본 연구에서는 복잡한 편집에 적합한 AE의 유용성, 리콤비니어링의 속도, 그리고 AE의 노동 집약성을 강조합니다. 또한, 리콤비니어링은 이전의 단일 방법 프로토콜8에서 강조되지 않았던 게놈 영역 의존성을 보입니다. 여기서는 M. tuberculosis의 부위 특이적 돌연변이 유발을 위한 표적화된 적응 및 개선 방법을 제공합니다.
살아있는 M. tuberculosis를 다루는 모든 실험은 기관의 생물 안전 프로토콜 및 위험 평가를 준수하여, 교육을 받은 숙련된 인원이 BSL3 시설 내에서 수행해야 합니다. 해당 시설은 출입 통제, 음압 공기 흐름 및 HEPA 필터 환기 시스템을 갖추어야 하며, 모든 작업은 인증된 생물 안전 작업대(Class II) 내에서 이루어져야 합니다. 또한, BSL-3 시설 내부에서는 전동식 공기 정화 호흡기(PAPR) 또는 N95 마스크, 장갑, 전신 보호복 또는 가운, 그리고 보호 안경과 같은 개인 보호 장구(PPE)를 항상 착용해야 합니다. 배양 배지와 일회용 소모품을 포함한 모든 폐기물은 BSL3 시설 밖으로 반출하기 전 반드시 오토클레이브 멸균 또는 화학적 멸균 처리를 거쳐야 합니다.
PCR과 같은 후속 분석을 위해 BSL3 구역에서 반출하기 전, 세포 펠릿을 포함한 배양물은 80 °C에서 60분 동안 가열 불활성화해야 합니다. 불활성화된 시료는 이중 봉투에 넣고 적절한 세제와 70% ethanol로 표면을 오염 제거한 후, 분자 생물학적 작업을 위해 BSL2 구역으로 운반합니다. 이러한 안전 조치는 원심 분리나 피펫팅 과정 중 발생할 수 있는 에어로졸 형성을 최소화하여 우발적인 노출 위험을 줄이는 데 중요합니다.
UV 노출 중에는 UV 보호 고글 또는 안면 보호구와 장갑을 착용해야 하며, 피부 및 안구 손상을 방지하기 위해 UV 노출은 반드시 밀폐된 UV 조사 시스템 내에서만 수행해야 합니다.
프로토콜
방법 A: 2단계 대립유전자 교환(AE)
참고: 상동 재조합은 관심 있는 M. tuberculosis 유전자에 점 돌연변이를 도입하는 효과적인 방법을 제공합니다. 이 기술은 다섯 단계로 구성됩니다: 1) 삽입 서열의 생성 및 증폭; 2) 자살 전달 벡터의 구축; 3) 돌연변이 DNA의 마이코박테리아 게놈 전달; 4) 공통 통합체(co-integrant)를 생성하기 위한 돌연변이 대립유전자 함유 플라스미드의 형질전환; 5) 공통 통합체의 해소를 위한 역선별. 이 방법은 결실 돌연변이 구축에도 적용될 수 있으나, 여기서는 단일 뉴클레오타이드 변이 균주 생성에 중점을 둡니다.
- 상동 재조합을 위한 dsDNA 단편 생성
참고: AE를 사용하여 단일 염기 변화의 영향을 조사할 때, 단일 염기 변이(SNV)를 포함하는 표적 단편 또는 유전자를 생성하는 세 가지 방법이 있습니다. (1) 중합효소 연쇄 반응(PCR)을 통해 임상 균주에서 관심 있는 SNV가 포함된 게놈 영역을 증폭한 후 이를 적절한 벡터에 클로닝합니다. (2) 관심 있는 점 돌연변이를 포함하도록 합성된 맞춤 설계 올리고뉴클레오타이드를 구매합니다. (3) 아래에 설명된 3단계 PCR 방법을 사용하여 표적 단편 또는 유전자에 점 돌연변이를 도입합니다. 이 오버랩 PCR은 게놈 서열의 표적 위치에 정확하게 단일 염기 변화를 도입합니다. 이 방법은 두 세트의 프라이머가 필요하며 다음 세 단계로 진행됩니다. 1) 상류 및 하류 영역을 각각 PCR로 증폭, 2) 두 오버랩 단편의 어닐링, 3) 외부 프라이머를 이용한 전체 길이 DNA 단편의 증폭.- 외부 프라이머가 유전자의 상류 및 하류 영역의 5' 및 3' 말단에 각각 결합하도록 설계하십시오. 이 외부 프라이머에는 유전자와의 20 염기쌍(bp) 상동성 영역, 제한 효소 부위, 그리고 클로닝 실험 중 직접적인 제한 효소 절단이 가능하도록 각 프라이머 말단에 6bp의 추가 비코딩 서열 오버행을 포함하십시오. 제한 효소 부위가 벡터에는 존재하지만 표적 유전자 내에는 존재하지 않는지 확인하십시오.재료 표).
- 중앙 프라이머가 서로 상보적이며 관심 대상인 단일 염기 변이(SNV)를 포함하도록 설계하십시오. 상보적인 정방향 및 역방향 프라이머가 상류 및 하류 영역의 중앙에서 겹치게 하여, 이중 가닥 DNA(dsDNA) 단편의 중심부에 뉴클레오타이드 염기 변화가 포함되도록 합니다.
- ~로부터 게놈 dsDNA를 사용하십시오. M. tuberculosis a의 템플릿 DNA로서 H37Rv 25 µL PCR 반응 혼합물(그림 1) 고미스매치 교정 Taq 중합효소를 사용하여 수행합니다. 개별 반응을 다음과 같이 설정하십시오: 다음을 추가합니다. 5 µL GC 버퍼(최종 1×, GC 함량이 높은 서열에 권장됨) *M. tuberculosis* DNA), 0.5 µL 10 mM dNTP(최종 200 µM 각각), 1.25 µL ~의 10 µM 정방향 프라이머 (최종 0.5 µM), 1.25 µL 의 10 µM 역방향 프라이머 (최종 0.5 µM), 0.25 µL 중합효소(최종 1 U), 1 µL 템플릿 DNA (50–100 ng)의, 0.75 µL 100% DMSO(GC 함량이 높은 템플릿의 경우 최종 농도 3%)와 nuclease-free water를 첨가하여 25 µL 최종 부피. 한 반응에는 프라이머 A와 B를 사용하고, 다른 반응에는 C와 D를 사용한다(그림 1A).
- 두 개의 DNA 단편을 각각 증폭한다: 프라이머 A와 B를 사용하여 상류 영역을, 프라이머 C와 D를 사용하여 하류 영역을 증폭한다(그림 1A). 사용된 프라이머와 증폭 산물의 길이에 따라 사이클 조건을 최적화하며, 최초 변성 단계부터 시작합니다. 98 °C 30초 동안; 다음 조건으로 30회 변성 주기 수행: 98 °C 10초 동안 Tm(통상적으로 55–65 °C (이들 프라이머에 대해) 30초 동안, 다음 온도에서 신장하며 72 °C 킬로베이스(kb)당 30초 동안; 최종 신장 단계는 72 °C 5분 동안 유지합니다. 다음 온도로 유지하십시오. 4 °C.
- 업스트림 및 다운스트림 영역을 결합하여 어닐링 및 신장시킨다. 5 µL 각 생성된 PCR 산물(단계 1.4)을 새로운...으로 25 µL 반응 (프라이머 추가를 제외하고 성분 비율을 비례적으로 조정) (그림 1B). 동일한 사이클 조건을 사용하되 사이클 횟수를 10~15회로 줄입니다.
- 3단계 이전에 1단계 PCR 산물에서 과량의 프라이머를 제거하기 위해 대개 1:10에서 1:50 비율의 희석만으로도 충분하지만, 더 높은 순도가 필요하거나 비특이적 밴드가 존재하는 경우에는 상용 컬럼 기반 정제 키트나 젤 추출법을 사용하십시오.
- 마지막 증폭 단계에서 다음을 추가하십시오. 2 µL 단계 1.5에서 얻은 오버랩 PCR 생성물로부터 새로운 25 µL 프라이머 A 및 D를 이용한 반응 (최종 0.5 µM 각각) (그림 1C). 단계 1.4와 동일한 사이클 조건을 사용하십시오.
참고: 새로운 프라이머 조합(프라이머 A 및 D)과 연장된 단편 길이에 맞춰 어닐링 Tm 및 신장 시간을 조정하십시오. - 아가로스 겔 전기영동으로 증폭 여부를 확인하십시오. 스미어(smear) 없이 예측된 크기의 단일 밴드가 나타나야 합니다.
참고: 겔을 폐기하지 마십시오. 단계 2.1에서 사용됩니다.
- SNV 포함 dsDNA 단편 시퀀싱을 위한 벡터 구축
참고: 이 섹션에서는 AE의 두 번째 단계를 설명합니다. 생성된 목적 프래그먼트를 시퀀싱 벡터에 클로닝하여 플라스미드 증식을 가능하게 하고, 후속 단계에서 보다 효율적인 클로닝을 위해 여러 개의 복제본을 얻습니다.- 화학적 컴피턴트 세포 준비 E. coli Green과 Rogers의 방법에 따른 세포12.
- 1.8단계에서 얻은 관심 SNV를 포함하는 PCR 증폭 dsDNA 단편을 깨끗한 메스 칼날을 사용하여 겔에서 절제하고, 제조사의 프로토콜에 따라 상용 겔 및 PCR 정제 키트를 사용하여 정제하십시오. 분광광도법을 사용하여 DNA 농도를 측정하며, 50~100 ng/$\mu$L를 목표로 합니다.µL정제 후 용액이 투명한지 확인하십시오.
- 적절한 리가아제(ligase)를 사용하여 선형 DNA 단편을 시퀀싱 벡터(예: pJET1.2)에 결합시키십시오. 라이게이션(ligation)은 다음에서 수행하십시오. 10 µL 반응: 첨가 1 µL 10× 라이게이스 버퍼, 50 ng의 벡터, 150 ng의 삽입물(3:1 몰비), 1 µL DNA ligase (400 U/µL), 그리고 물을 첨가하여 10 µL; ~에서 배양함 4 °C 하룻밤 동안 배양하고, 다음 온도에서 10분간 배양하여 불활성화합니다. 65 °C.
- 플라스미드 구조물을 화학적로 수용성인 세포에 형질전환하십시오. E. coli ~을 첨가하여 세포를 5 µL 결합된 플라스미드 DNA(단계 2.3 참조)의 100 µL 컴피턴트 셀(competent cells)을 넣고 가볍게 두드려 혼합한다. 혼합물을 얼음 위에서 30분 동안 배양한다. 세포를 다음 온도에서 열충격(heat-shock) 처리한다. 42 °C 90초 동안 처리한 후, 즉시 튜브를 얼음에 넣고 2분 동안 유지하십시오. 다음으로 [물질/시약]을 추가합니다. 900 µL Luria-Bertani (LB) 배지를 사용하고, 세포를 다음 온도에서 배양합니다. 37 °C 회복을 위해 1시간 동안 진탕(200 rpm)한다.
- 원심분리(3,000 × g (10분 동안) 원심분리한 후 LB 배지를 제거합니다. 재조합 세포를 다음 용액에 재현탁합니다. 100 µL 신선한 LB 배지, 플레이트 50 µL 적절한 항생제가 포함된 LB 한천 배지에 도말하고, 다음 온도에서 정지 배양한다. 37 °C 하룻밤 동안 배양합니다. 플레이트당 50~500개의 콜로니가 형성될 것으로 예상됩니다.
- 프라이머 A와 D를 사용하여 단계 1.3에 설명된 대로 1~10개의 단일 콜로니를 선택하고 각 콜로니의 세포를 PCR 반응액에 첨가하여, 콜로니 PCR을 통해 DNA 단편의 존재 여부를 스크리닝한다. PCR은 단계 1.4에 설명된 대로 수행한다.
- PCR 양성 콜로니(통상 5~10개)를 선택하여, 항생제가 포함된 5 mL LB 배지에서 하룻밤 동안 배양한다. 37 °C 200 rpm으로 진탕하며.
- 글리세롤을 준비하십시오 -80 °C 각 하룻밤 배양액의 냉동 보관 주(stock)를 준비합니다. 상용 미니프렙(miniprep) DNA 정제 키트를 사용하여 플라스미드 DNA를 추출하고, 생어 시퀀싱(Sanger sequencing)을 통해 dsDNA 단편의 서열과 단일 염기 변이(SNV)의 존재를 확인합니다. 또한, 제한 효소(RE) 매핑을 수행하여 올바른 크기의 단편이 시퀀싱 플라스미드에 삽입되었는지 확인합니다. 겔 전기영동으로 검증하며, 예측된 크기와 일치하는 단편이 나타나야 합니다.
- 자살 전달 벡터 구축
참고: 이 섹션에서는 자살 전달 벡터(suicide delivery vector)의 최종 준비 과정을 설명합니다. 널리 사용되는 두 가지 자살 전달 벡터는 p1NIL과 p2NIL이며, 이 둘은 다중 클로닝 부위(multiple cloning sites)의 제한 효소 절단 부위만 서로 다릅니다. 본 프로토콜에서는 p2NIL을 기준으로 설명합니다.재료 목록). 벡터 구축을 돕기 위해 p2NIL 및 pGOAL19의 플라스미드 맵을 참조하여 고유 제한 효소 인식 부위를 확인하십시오.- 적절한 제한효소(예: HindIII 및 KpnI)를 사용하여 시퀀싱 벡터로부터 2.8단계에서 검증된 SNV 함유 DNA 단편을 제거하기 위해 RE 소화를 수행합니다. 별도의 반응에서 동일한 효소로 자살 전달 벡터(예: p2NIL)를 소화합니다. 두 소화 반응 모두 대량 규모로 수행합니다.1 µg DNA)가 포함된 50 µL 반응: 첨가 10 µL 10× 완충액의, 1 µL 각 효소 (10 U/µL), 1 µg DNA와 nuclease-free water를 최종 부피가 다음이 되도록 추가합니다. 50 µL; 다음 온도에서 배양하십시오. 37 °C 1시간 동안 반응시킨다. 제조사의 권장 사항에 따라 필요한 경우 열 불활성화한다.
- 아가로스 겔 전기영동으로 DNA 단편을 분리하십시오. 예상 크기에서 뚜렷한 밴드가 관찰되는지 확인하십시오. 아가로스 겔에서 선형화된 p2NIL 벡터와 SNV 포함 DNA 단편을 절단하여 회수하고, 상용 겔 및 PCR 정제 키트를 사용하여 정제하십시오.
- 분광광도법을 사용하여 DNA 농도를 측정하고, 50 ng의 p2NIL 벡터 DNA를 사용하여 삽입물 대 벡터의 몰비(molar ratio)를 3:1로 맞추는 데 필요한 DNA 부피를 계산하십시오. 라이게이션은 다음에서 수행하십시오. 10 µL 반응: 첨가 1 µL 10× 리가아제 완충액, 50 ng의 벡터, 150 ng의 삽입물(3:1 몰비) 1 µL T4 DNA ligase (400 U/µL), 그리고 물을 사용하여 10 µL; 에서 배양하십시오 4 °C 하룻밤 동안.
- 삽입물이 연결된 벡터를 컴피턴트 세포에 형질전환하십시오. E. coli 세포(단계 2.4 참조). 변형된 세포를 LB 한천 배지에 도말한다. 50 μg/mL 카나마이신(Kanamycin, Kan). 다음 조건에서 배양한다. 37 °C 하룻밤 동안.
- 결과로 생성된 콜로니(SNV 포함 DNA 단편이 삽입된 p2NIL, 이하 p2NIL_insert)에 대해 콜로니 PCR(단계 2.6 참조) 및 아가로스 겔 전기영동을 수행하여 SNV 포함 DNA 단편의 존재를 확인하십시오. 단계 1.7에서 최적화된 프라이머 A와 D를 사용하여 단계 1.3에 기술된 대로 PCR을 진행하십시오.
- 정확하게 구축된 p2NIL_insert 벡터를 포함하는 콜로니를 Kan이 포함된 10 mL의 LB 배지에 접종하여 37 °C200 rpm으로 하룻밤 동안 진탕 배양합니다. 냉동 보관주를 준비하고(배양액 1~2 mL 사용), 미니프렙(miniprep)을 수행하여 p2NIL_insert를 분리합니다.
- pGOAL 벡터 시리즈(pGOAL17 또는 pGOAL19)에서 유래한 선택 마커를 p2NIL_insert에 도입하기 위해, pGOAL과 p2NIL_insert를 각각 PacI 제한효소로 별도로 소화합니다. 50 µL 반응 (단계 3.1 참조).
- 결과물을 아가로스 겔 전기영동으로 분리하고, 목적 밴드를 절취한 후 상용 겔 및 PCR 정제 키트를 사용하여 정제하십시오.
- 알칼리성 포스파타아제(alkaline phosphatase) 처리를 통해 선형화된 p2NIL_insert를 탈인산화하여 5' 말단과 3' 말단의 자가 결합을 방지한다. 1 unit/µg 내 DNA 단편의 20 µL ~와의 반응 2 µL 10× 완충액과 증류수로 구성하며, 다음 온도에서 10분 동안 배양합니다. 37 °C이후 ,에서 2분간 열 불활성화를 수행한다. 75 °C.
참고: 자가 결합(self-ligation) 방지가 필요한 경우, 1 unit/µL의 농도로 벡터 DNA를 탈인산화합니다.µg rAPid alkaline phosphatase를 처리하고 열 불활성화를 위해 배양하였다. - 탈인산화된 p2NIL_insert에 pGOAL 선택 마커 카세트를 연결하여 p2NIL_insert_SM을 생성합니다. 10 µL 반응(단계 2.3 참조) 후 화학적 컴피턴트 세포로 형질전환 E. coli 세포(단계 2.4 참조).
- 적절한 항생제가 포함된 LB 한천 배지에 세포를 도말합니다(50 µg/mL Kan 및/또는 200 µg/mL Hyg) 및 50 µg/mL 선택 마커의 기능성을 확인하기 위해 X-gal을 처리한다. 다음 온도에서 배양한다. 37 °C 하룻밤 동안 배양하며, LacZ 활성을 나타내는 청색 콜로니가 형성될 것으로 예상합니다.
- 항생제가 포함된 LB 한천 배지(2% 수크로스 포함 및 미포함)에 개별 청색 콜로니를 스트리킹하여 수크로스 민감성을 확인한다.
- 제한효소 지도 작성(RE mapping)을 통해 suicide delivery vector의 최종 구조를 확인하십시오. 다음으로부터 플라스미드를 정제하여 예상된 단편 패턴을 검증하십시오. E. coli제한효소 플라스미드 매핑을 수행하여 제한효소 절단 패턴을 플라스미드 서열 파일의 예측 결과와 비교하십시오.
- ~의 생성 M. tuberculosis 상동 재조합을 통한 단일 염기 변이(SNV) 도입
참고: 자살 전달 벡터(suicide delivery vector)는 상동 재조합을 통해 게놈 DNA에 도입되며, 이후 선택 가능 마커에 대해 선택 및 역선택을 수행하는 2단계 선택법이 뒤따릅니다. 다음 단계들은 생물안전 3등급(Biosafety Level 3) 조건 하에 수행됩니다.
참고: 1~11단계는 공통 통합체(co-integrant)의 선택 과정을 설명합니다. *M. tuberculosis* 균주- 전기천공 가능 세포(electrocompetent cells) 준비 M. tuberculosis 특정 OD(흡광도)에서 세포를 회수하여 세포를 수집함600 0.6–1.0이며, 차가운 10% 글리세롤의 1/50 부피로 3회 세척한 후, 10% 글리세롤에 재현탁한다. 세포 농도는 약 10이어야 한다.11 mL당 세포 수, 그리고 - 에서 보관할 수 있습니다.80 °C10.
- 배치하십시오 10 µg UV 조사 시스템 내의 페트리 접시에 담긴 플라스미드 DNA를 UV 광선에 노출시켜 에너지가 100 mJ/cm²에 도달할 때까지 조사합니다.2.
- 추가 10 µg UV 전처리를 거친 플라스미드 DNA 또는 6 µL Tris-EDTA (TE) 완충액(음성 대조군)을 400 µL 전기천공 효율이 높은(electrocompetent) M. tuberculosis 세포를 각각의 1.5 mL 마이크로원심분리관에 분주합니다. 파이펫팅을 통해 부드럽게 혼합합니다.
- 혼합물을 0.2 cm 전기천공 큐벳으로 옮기고 2.5 kV의 단일 펄스로 전기천공을 수행한다. 25 µF및 1,000 Ω 저항을 사용하십시오. 시정수(최적 범위 15~25 ms)를 모니터링하십시오. 아킹(arcing)이 발생할 경우 폐기하십시오.
- 전기천공된 세포를 다음 용액에 재현탁하십시오. 600 µL 7H9-OADC 배지를 사용하여 세포를 세척하고, 멸균된 2 mL 스크루 캡 튜브(O-링 포함)로 세포를 옮깁니다.
- 형질전환된 세포를 24~48시간 동안 다음 온도에서 배양하십시오. 37 °C.
- 3,000 ×g에서 원심분리하여 세포를 수확합니다. g 실온에서 10분 동안 원심분리합니다. 가시적인 펠렛(pellet)이 형성될 것입니다. 펠렛화된 세포에서 배지를 제거합니다.
- 적절한 항생제가 포함된 7H11-OADC 한천 배지 플레이트에 세포를 스트리킹합니다(20 µg/mL Kan 및/또는 50 µg/mL Hyg) 및 50 µg/mL X-gal.
참고: 냉각된 7H11-OADC 한천 배지에 X-gal을 첨가하십시오.50 °C) 플레이트를 붓기 전. X-gal은 장기간 보관 시 분해될 수 있습니다. 37 °C ~에 필요한 배양 기간(3~4주) M. tuberculosis, 열적 불안정성으로 인해 블루-화이트 스크리닝(blue-white screening)의 민감도가 잠재적으로 감소할 수 있습니다. 미리 부어 놓은 플레이트는 다음 온도에서 보관하십시오. 4 °C 분해를 최소화하기 위해 최대 2주 동안 암소에 보관하십시오. 색상이 희미하게 관찰될 경우 X-gal 언더레이(underlay) 방법을 고려하십시오. 일반 7H11-OADC 한천 배지를 분주하고 응고시킨 후, 한천을 약간 들어 올리고 200-500 µL 밀봉 및 배양 전, 한천(agar) 아래에 X-gal 용액(DMF 내 20 mg/mL)을 첨가한다. 이는 보관 및 배양 중 직접적인 열 노출을 줄여준다. - ~에서 배양하십시오 37 °C 21일 동안 배양합니다. 첫 번째 AE를 성공적으로 거친 콜로니는 청색으로 나타나며, 수크로스에 민감하고 항생제에 내성을 가집니다 (그림 2). 단일 교차(single crossover, SCO) *M. tuberculosis* 균주들은 야생형 영역과 SNV 포함 영역을 모두 포함하고 있습니다.
- SCO 콜로니를 선택하여 0.05% Tween 80(이하 7H9-OADC-Tween)과 적절한 항생제가 첨가된 5 mL의 7H9-OADC 배지에 접종한다. 다음 온도에서 배양한다. 37 °C 7일 동안.
- 자당 민감성을 확인하기 위해, 2% 자당이 함유된 7H11-OADC 한천 배지에 각 배양물을 획선 도말합니다. 다음 온도에서 배양합니다. 37 °C 21일 동안 배양합니다. SCO 배양액은 설탕(sucrose)에서 성장하지 않을 것으로 예상됩니다. 4.10단계에서 설탕 민감성을 보인 SCO 배양액을 계속 사용하십시오.
참고: 단계 12-18에서는 공통-집적체(co-integrant)의 해상도 선택 과정을 설명합니다. M. tuberculosis 균주 - SCO 콜로니를 항생제가 포함되지 않은 5 mL의 7H9-OADC-Tween 배지에 계대 배양하고, 다음 온도에서 7일 동안 배양한다. 37 °C 공통 통합체(co-integrant, DCO)의 분해를 선택하기 위해.
- 스트리킹 100 µL 2% sucrose와 X-gal이 포함된 7H11-OADC 한천 배지 플레이트에서50 µg/mL). 다음 온도에서 배양하십시오. 37 °C 21일 동안 배양합니다. 아직 확인이 필요하지만, 두 번째 대립유전자 교환 단계가 성공했다면 항생제에 민감하고 자당(sucrose)에 저항성을 가진 흰색 콜로니가 나타날 것으로 예상됩니다.그림 2).
- DCO 단일 콜로니 10~30개를 선택하여 5 mL의 7H9-OADC-Tween(항생제 제외) 배지에 접종한다. 다음 조건에서 7일 동안 배양한다. 37 °C.
- 통합된 벡터 백본의 해소를 확인하기 위해, 카나마이신과 해당되는 경우 하이그로마이신(pGOAL19 구축물의 경우)에 대해 패치 테스트를 수행하십시오. 또한, 사용된 벡터(pGOAL17 또는 pGOAL19)에 따라 수크로스 역선별 패치 테스트를 실시하십시오. 콜로니를 다음 중 하나가 포함된 7H11-OADC 한천 배지에 스트리킹하십시오. 50 µg/mL Hyg 또는 2% sucrose를 첨가하여 다음 온도에서 배양하십시오. 37 °C 최대 21일 동안 배양합니다. 통합된 벡터 백본(vector backbone)이 제거된 콜로니는 2% sucrose가 포함된 플레이트에서는 성장하지만, hygromycin이 포함된 플레이트에서는 성장하지 않습니다.
- 콜로니 PCR을 수행하기 위해 다음을 가열하십시오. 200 µL DCO 분취량 M. tuberculosis 배양액의 (또는 배양물의) 80 °C 60분 동안 수행합니다. 가열한 배양액을 15,000 × g 실온에서 15분 동안 원심분리하여 펠릿을 형성합니다. PCR 증폭에는 상층액(DNA 포함)을 사용하십시오. 프라이머 A와 D를 사용하여 단계 1.3에 기술된 대로 PCR 설정을 수행합니다. 단계 1.4에 기술된 대로 PCR을 진행합니다.
- 결과물인 단편들을 아가로스 겔 전기영동으로 분리하십시오. 목적 단편을 절단하고 제조사의 프로토콜에 따라 상용 겔 및 PCR 정제 키트를 사용하여 정제하십시오.
- PCR 산물을 Sanger 시퀀싱하여 SNV의 존재를 확인하십시오. 시퀀싱된 DNA 단편을 다음의 항목에 매핑하여 출력 결과를 분석하십시오. M. tuberculosis H37Rv 참조 게놈(GenBank NC_000962.2). 또한, 배양 과정에서 오프타겟 돌연변이가 발생하지 않았는지 확인하기 위해 조상 균주와 변이 균주에 대해 전유전체 시퀀싱을 수행하십시오.
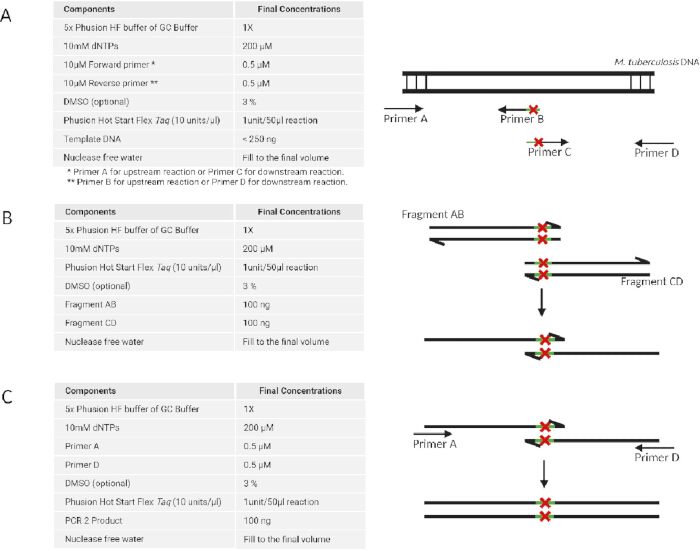
그림 1: 다단계 PCR 방법을 이용한 단일 염기 변이 함유 dsDNA 단편의 생성. DNA 단편 생성은 세 단계로 이루어집니다: (A) 두 세트의 프라이머를 사용하여 상류 및 하류 영역을 각각 PCR 증폭합니다. (B) 상류 및 하류 영역을 어닐링하여 하나의 중첩 단편을 형성합니다. (C) 외부 프라이머를 사용하여 전체 길이 DNA 단편을 추가로 증폭합니다. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
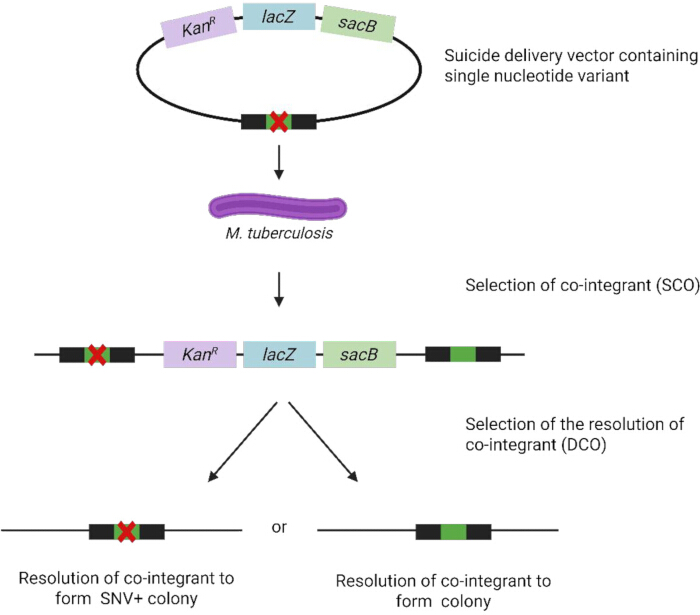
그림 2~의 구축 제공해주신 텍스트가 없습니다. 번역할 소스 텍스트를 입력해 주시면, 요청하신 지침에 따라 전문적인 학술 한국어로 번역해 드리겠습니다. *M. tuberculosis* 상동 재조합을 위한 SNV를 보유한 균주BioRender(https://BioRender.com)로 작성됨. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
방법 B: 재조합 공학(Recombineering)
참고: 리콤비니어링(Recombineering)은 세 가지 구성 요소인 리콤비니어링 플라스미드 pJV75amber, 플라스미드의 하이그로마이신(hygromycin) 내성을 복구하기 위한 63 bp ssDNA 올리고뉴클레오타이드 JCV198, 그리고 원하는 점 돌연변이를 포함하는 63 bp ssDNA 올리고뉴클레오타이드의 M. tuberculosis 전기천공법으로 시작됩니다. 이후 형질전환체는 콜로니 PCR 및 생거 시퀀싱(Sanger sequencing)을 통해 스크리닝합니다. pJV75amber의 제한효소 절단 조성을 표 1에 나타냈습니다. 다음 단계들은 생물안전등급 3(Biosafety Level 3) 조건 하에서 수행됩니다:
| 시약 | 튜브 A (µL) | 튜브 B (µL) | 튜브 C (µL) | 튜브 D (µL) |
| 10x 완충액 B | 2 | - | 2 | 2 |
| 10x 버퍼 M | - | 2 | - | - |
| 뉴클레아제 제거수 | 16 | 15 | 15 | 13 |
| pJV75 amber DNA 분주액 | 2 | 2 | 2 | 2 |
| Dra1 효소 | - | 1 | - | 2 |
| EcoRv 효소 | - | - | 1 | 1 |
| 최종 반응 부피 | 20 | 20 | 20 | 20 |
표 1: 제한효소 처리: pJV75amber DNA.
- pJV75amber를 이용한 M. tuberculosis 형질전환
- 방법 A 단계 4.1에 설명된 대로 전기천공 가능 M. tuberculosis 세포를 준비한다.
- 별도의 1.5 mL 마이크로원심분리 튜브에 전기천공 가능 M. tuberculosis 세포 95 µL와 pJV75amber 플라스미드 DNA 100 ng 또는 뉴클레아제-프리 워터 5 µL(음성 대조군)를 각각 첨가한다. 파이펫팅으로 부드럽게 섞는다.
- 두 개의 개별 전기천공 큐벳(0.2 cm 간격)으로 옮기고 실온에서 30분 동안 배양한다. 세포 현탁액이 큐벳 바닥에 가라앉았는지 확인한다(필요한 경우 가볍게 쳐서 기포를 제거한다).
- 큐벳을 전기천공기의 샘플 챔버에 넣고 저항 1000 Ω, 전압 2.5 kV, 커패시턴스 25 µF에서 펄스를 가한다. 시간 상수(최적 15–25 ms)를 모니터링한다. 아킹(arcing)이 발생하면 폐기한다.
- 즉시 7H9-OADC-Tween 900 µL를 첨가하고 파이펫팅으로 10회 위아래로 섞는다.
- 세포(총 부피 1.0 mL)를 샘플용과 대조군용으로 각각 50 mL 튜브 두 개에 옮기고 37 °C에서 48시간 동안 배양한다.
- 37 °C에서 3,000 × g로 15분간 원심분리하여 세포를 수확한다. 가시적인 펠릿이 형성되어야 한다. 펠릿팅된 세포에서 배지를 제거한다. 7H9-OADC-Tween 200 µL에 재현탁한다.
- 배양액 100 µL를 25 µg/mL Kan이 함유된 7H11-OADC 한천 배지에 도말한다.
- 플레이트를 37 °C에서 21일 동안 배양한다.
- pJV75amber 확인을 위한 콜로니 PCR 테스트
참고: 다음의 M. tuberculosis 특이적 수정 사항을 반영하여 일반 콜로니 PCR 프로토콜(방법 A 단계 2.6 참조)을 따른다:- pJV75amber가 형질전환된 박테리아의 단일 콜로니를 7H9-OADC-Tween 및 Kan(25 µg/mL)이 들어 있는 15 mL 마이크로원심분리 튜브에 접종한다.
- 37 °C에서 7일 동안 배양한다.
- 배양액 200 µL를 1.5 mL 원심분리 튜브에 옮기고, 나머지는 4 °C에 보관하거나 -80 °C에서 50% 글리세롤 스톡으로 만들어 방법 B 단계 3.1에서 사용한다.
- 배양액을 80 °C에서 60분 동안 가열하여 M. tuberculosis 세포로부터 플라스미드 DNA를 방출시킨다.
- 실온에서 16,000 × g로 15분간 원심분리하여 세포를 펠릿팅한다.
- 정방향 프라이머(KANR_F)와 역방향 프라이머(KANR_R)를 사용하여 PCR을 수행한다: Taq 마스터 믹스 12.5 μL, 각 프라이머 1.25 μL(최종 0.5 μM), 템플릿 DNA 1 μL(방법 B 단계 2.5의 상층액), 물을 넣어 총 25 μL로 맞춘다. 카나마이신 유전자(aph) 프라이머 세트에 최적화된 사이클 조건을 사용한다: 95 °C에서 3분간 초기 변성; 95 °C 30초, 55 °C 30초, 72 °C 45초를 35회 반복; 72 °C에서 5분간 최종 신장. 4 °C에서 보관한다.
- 1% 아가로스 겔에서 150 V로 45분간 분석한다. 예상되는 700 bp aph 밴드가 생성되는 콜로니는 pJV75amber를 포함하는 것으로 확인된 것이며, 이를 후속 리콤비니어링(recombineering)에 선택한다.
- pJV75amber가 형질전환된 리콤비니어링 가능 M. tuberculosis
- 단계 2.2(방법 B)에서 pJV75amber가 확인된 단일 콜로니 배양액을 사용하여, Kan(25 μg/mL)과 0.2% 숙신산이 함유된 20 mL 7H9-OADC-Tween에 접종한다.
- OD600이 0.6에 도달할 때까지(mid-log 성장기) 37 °C에서 배양하여 컴피턴트 M. tuberculosis 세포를 준비한다(방법 A 단계 4.1 참조).
- 아세트아마이드를 최종 농도 0.2%가 되도록 첨가한다.
- 37 °C에서 하룻밤 동안 배양한다.
- 라벨이 붙은 전기천공 큐벳(0.2 cm 간격)을 준비하고, 각각 유도된 컴피턴트 M. tuberculosis 세포 100 µL를 넣은 후 표 2에 명시된 대로 리콤비니어링을 위한 ssDNA 올리고뉴클레오타이드를 첨가한다:
- 샘플: JCV198 ssDNA 올리고뉴클레오타이드 1 µg과 관심 서열을 가진 ssDNA 리콤비니어링 올리고뉴클레오타이드 1 µg을 첨가한다.
- 양성 대조군: JCV198 ssDNA 올리고뉴클레오타이드 1 µg을 첨가한다.
- 음성 대조군: 뉴클레아제-프리 워터 2 µL(DNA 없음)를 첨가한다.
- 파이펫팅으로 부드럽게 섞는다.
- 방법 B 단계 1.3-1.7에 설명된 대로 전기천공을 수행하고 세포를 회복시킨다.
- 형질전환 배양액 100 µL를 Hyg(50 µg/mL)가 포함된 7H11-OADC 한천 배지와 포함되지 않은 배지에 각각 도말한다.
- 플레이트를 37 °C에서 21일 동안 배양한다.
- 삽입된 점 돌연변이 확인을 위한 재조합 M. tuberculosis 스크리닝
- 재조합 M. tuberculosis 세포의 단일 콜로니를 선택하여 Hyg(50 µg/mL)가 포함된 5 mL 7H9-OADC-Tween에 접종한다.
- 37 °C에서 7일 동안 배양한다.
- 각 하룻밤 배양액의 200 µL 분량을 멸균된 1.5 mL 마이크로원심분리 튜브에 옮긴다. 나머지 배양액은 PCR 및 생거 시퀀싱(Sanger sequencing)을 통해 관심 SNV를 가진 콜로니가 확인될 때까지 4 °C에 보관한다(또는 글리세롤 스톡 준비). 80 °C에서 1시간 동안 가열하여 사멸시킨 후 실온에서 16,000 × g로 5분간 원심분리하여 잔해물을 펠릿팅한다.
- 상층액에 대해 PCR 및 생거 시퀀싱을 수행하여 관심 SNV의 존재를 확인한다. 참조 서열과 매핑하여 검증하며, 추가 돌연변이 없이 SNV만 존재해야 한다.
- M. tuberculosis 내 pJV75amber의 콜로니 PCR 확인(방법 B 단계 2 참조)을 빠르게 수행하려면 Chelex-100을 이용한 직접 용해법을 고려한다:
- 단일 콜로니(일부 살아있는 물질을 남겨둠)를 1.5 mL 튜브에 든 5% Chelex-100 현탁액 100 µL에 직접 넣고, 볼텍싱하여 재현탁한 후 100 °C에서 10분간 끓이고, 16,000 × g로 5분간 원심분리한다. 투명한 상층액 1–2 µL를 PCR 템플릿으로 사용한다.
참고: 이 방법은 7일간의 액체 배양 단계를 생략하여 전체 일정을 1주일에서 하루로 단축하면서도 aph 증폭에 충분한 플라스미드 DNA를 얻을 수 있다. - 마이코박테리아의 두꺼운 마이콜산 세포벽으로 인해 불완전한 용해로 인한 잠재적인 PCR 억제 또는 위음성이 발생하는지 모니터링한다.
- 결과가 일관되지 않은 경우, 민감도와 신뢰성을 비교하기 위해 동일한 콜로니 세트에 대해 Chelex 직접 용해법과 열 용해법을 병행하여 테스트한다.
- 단일 콜로니(일부 살아있는 물질을 남겨둠)를 1.5 mL 튜브에 든 5% Chelex-100 현탁액 100 µL에 직접 넣고, 볼텍싱하여 재현탁한 후 100 °C에서 10분간 끓이고, 16,000 × g로 5분간 원심분리한다. 투명한 상층액 1–2 µL를 PCR 템플릿으로 사용한다.
| 시료 | 컴피턴트(Competent) M. tuberculosis|pJV75amber | JCV198 | 표적 ssDNA | 뉴클레아제 제거수 |
| 시료 | 100 μL | 1 μL | 1 μL | 제공된 소스 텍스트가 없습니다. 번역할 내용을 입력해 주세요. |
| B: 양성 대조군 | 100 μL | 1 μL | 입력된 텍스트가 없습니다. 번역할 소스 텍스트를 제공해 주세요. | 1 μL |
| C: 음성 대조군 | 100 μL | 입력된 텍스트가 없습니다. 번역할 내용을 제공해 주십시오. | 제공된 텍스트가 없습니다. 번역할 소스 텍스트를 입력해 주세요. | 2 μL |
표 2: ssDNA 올리고뉴클레오타이드를 이용한 형질전환을 위한 실험 설정.
결과
2단계 대립유전자 교환
제한 효소 부위가 포함된 rv0678 A97G DNA 단편의 PCR 증폭
M. tuberculosis H37Rv rv0678의 상류 및 하류 영역(각 1413 bp)을 PCR로 증폭하였다. 이 단계는 rv0678 내의 c.97A>G 단일 염기 변화(Thr33Ala)와 p2NIL 벡터로의 클로닝을 위한 제한 효소 인식 부위가 포함되도록 하였다. 약 1400 bp의 예상 단편 크기에 해당하는 밴드를 아가로스 겔 전기영동으로 확인하였다(그림 3). 겔에서 DNA 밴드를 정제하여 상류 및 하류 DNA 단편을 각각 67.9 ng/µL 및 40.50 ng/µL의 농도로 얻었다.
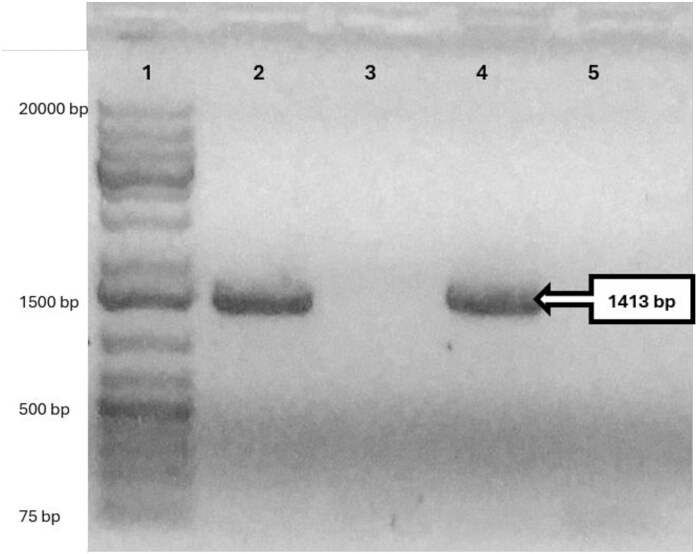
그림 3: 자살 전달 벡터 구축을 위해 PCR로 증폭된 rv0678의 상류(1413 bp) 및 하류(1413 bp) 영역. rv0678 상류 및 하류 단편의 성공적인 증폭을 확인하기 위해 0.5% 아가로스 겔을 사용하였다. 레인 1: 1 kb DNA 래더; 레인 2: rv0678 상류 영역의 PCR 산물; 레인 3: rv0678 상류 영역 증폭의 음성 대조군; 레인 4: rv0678 하류 영역의 PCR 산물; 레인 5: rv0678 하류 영역 증폭의 음성 대조군. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
중심 c.97A>G 뉴클레오타이드 변화를 포함하는 전체 길이의 rv0678 단편은 상류 및 하류 단편의 오버랩 PCR을 통해 생성되었으며, 젤 전기영동(그림 4)으로 확인된 단일 2825 bp 단편을 얻었습니다.
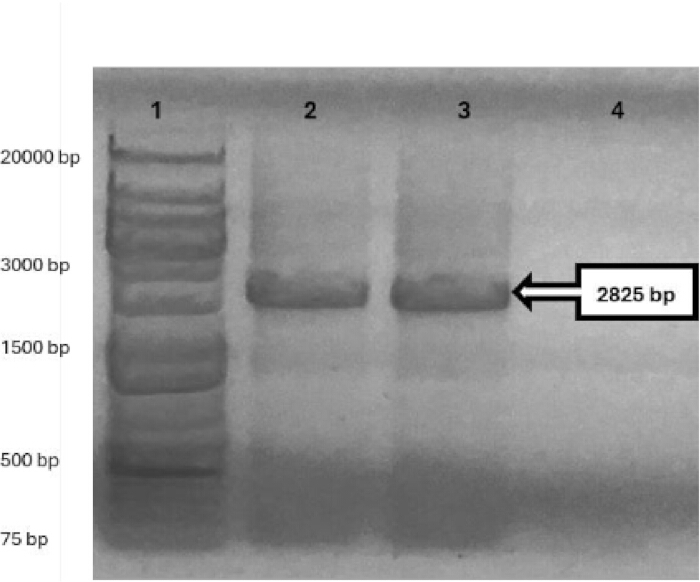
그림 4: 전체 길이 rv0678 DNA 단편(2825 bp)의 오버랩 PCR. A97G 돌연변이를 포함하는 전체 길이 rv0678 DNA 단편을 생성하기 위해 상류 및 하류 영역의 성공적인 오버랩을 확인하고자 0.5% 아가로스 겔을 사용하였다. 레인 1: 1 kb DNA 단편; 레인 2 및 3: 전체 길이 rv0678 단편; 레인 4: 음성 대조군. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
PCR 생성물은 컬럼을 이용하여 정제하여 126.6 ng/μL의 수율을 얻었습니다.µL 정제된 rv0678 그 후 DNA를 시퀀싱 플라스미드 벡터에 결합시켰습니다. 플라스미드 DNA(pJET1.2_에 대한 생거 시퀀싱(Sanger sequencing) 결과,rv0678)에서 분리된 E. coli 형질전환 플레이트에서 회수한 단일 콜로니(ampR)를 통해 ~를 확인하였다 E. coli pJET1.2_ 콜로니rv0678 원하는 돌연변이 ACC를 포함하는 > 뉴클레오타이드 97번 위치의 GCC입니다. 해당 유전자 내에 오프타겟 돌연변이는 없었습니다. 이중 제한효소(HindIII 및 KpnI) 절단을 통해 원형 벡터 pJET1.2에서 DNA 삽입물을 절단하였습니다.rv0678이를 겔 전기영동으로 분리하여 pJET1.2 벡터(2974 bp)와 해당...의 크기가 정확함을 확인하였다. rv0678 삽입물(2825 bp). 이 삽입물은 절단된 겔 슬라이스에서 정제되었으며, HindIII 및 KpnI로 절단된 p2NIL(4418 bp)에 라이게이션되었다.그림 5) p2NIL_을 생성하기 위해rv0678 (7243 bp); 해당 컨스트럭트는 제한효소 지도 작성을 통해 확인되었습니다.
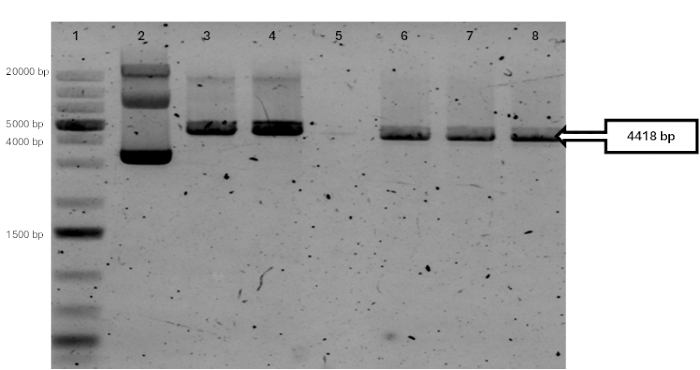
그림 5p2NIL 플라스미드 DNA(4753 bp)의 제한효소 절단 분석). 1% 아가로스 겔을 통해 HindIII와 KpnI을 이용한 p2NIL의 이중 제한효소 절단이 성공적으로 이루어졌음을 확인하였으며, 그 결과 (더 큰 크기의) 벡터 단편(4418 bp)과 [이하 생략/문장 미완성]이 생성되었습니다. aph 레인 6-8에서는 카세트와 전기영동 조건으로 인해 보이지 않는 더 작은 단편(335 bp)이 확인되었습니다. 대조군: 레인 5, DNA 물질 없음; 레인 2, 절단되지 않은 원형 p2NIL; 레인 3, HindIII로 선형화된 p2NIL (4753 bp); 레인 4, KpnI로 선형화된 p2NIL (4753 bp). 모든 단편은 1 kb DNA ladder인 레인 1을 기준으로 분리되었습니다. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
최종 자살 벡터인 p2NIL_rv0678을 구축하기 위해, E. coli에서 분리한 벡터를 PacI high-fidelity (HF) 효소로 선형화하고 재환형화를 방지하기 위해 탈인산화하였습니다. pGOAL19의 유연한 마커 카세트 DNA 단편(7949 bp; lacZ, sacB 및 hph) 또한 PacI-HF 제한 효소 소화를 통해 절단하였습니다. 절단된 겔 슬라이스에서 DNA 단편을 정제하였습니다. 정제된 pGOAL19 (7949 bp; lacZ, sacB 및 hph) DNA 단편을 선형 p2NIL_rv0678에 결합시켜 p2NIL_rv0678_pGOAL19 (15182 bp)를 구축하였습니다.
p2NIL_rv0678_pGOAL19 E. coli 형질전환체는 X-gal, Kan, Hyg가 포함된 플레이트에서 선택되었습니다.. 청색 콜로니를 수크로스가 포함된 플레이트에 패치하여 기능성을 확인하였다. sacB 유전자. 플라스미드 DNA p2NIL_rv0678_pGOAL19 분리원 E. coli 제한효소 절단을 통해 단일 콜로니의 매핑을 수행하였다(그림 6). 이 자살 플라스미드 벡터들은 AE에 사용되었습니다.
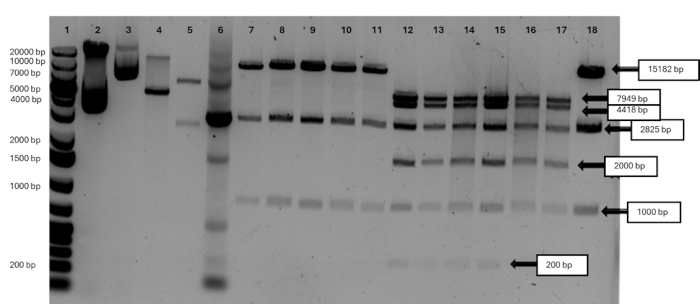
그림 6: 자살 플라스미드 벡터 p2NIL_rv0678_pGOAL19 (15,182 bp)의 제한효소 절단 분석. E. coli 단일 콜로니에서 분리한 플라스미드 DNA를 HindIII, KpnI 또는 PacI(단독 또는 조합)로 절단하여 p2NIL 백본 (4,418 bp), pGOAL19 카세트 (7,949 bp), 그리고 rv0678 삽입물 (2,825 bp)로 나누어지는 예상 분절 패턴을 확인하였다. 레인 1: 1 kb DNA ladder. 대조군: 절단되지 않은 원형 p2NIL (레인 2) 및 pGOAL19 (레인 3); KpnI로 선형화된 p2NIL (레인 4, 4,753 bp); PacI로 선형화된 pGOAL19 (레인 5, 7,949 bp 및 2,486 bp); p2NIL_rv0678_pGOAL19로부터 PCR 증폭된 rv0678 삽입물 (레인 6, 2,825 bp). HindIII로 선형화된 p2NIL_rv0678_pGOAL19 (15,182 bp)는 레인 7–11 및 19에 표시되어 있다. 6개의 독립적인 E. coli 콜로니 유래 플라스미드를 HindIII, KpnI, PacI로 3중 제한효소 절단한 결과는 레인 12–18에 표시되어 있다. 여기에서 이 그림의 확대 버전을 확인하십시오.
p2NIL_rv0678_pGOAL19를 이용해 M. tuberculosis를 형질전환시킨 후, X-gal, Kan 및 Hyg가 포함된 Middlebrook 7H10 한천 배지에서 SCO 형질전환체를 선별하였습니다. M. tuberculosis 단일 콜로니의 콜로니 PCR 및 Sanger 시퀀싱을 통해 p2NIL_rv0678_pGOAL19의 삽입을 확인하였습니다(그림 7).
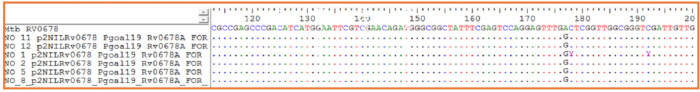
그림 7: rv0678의 A97G 돌연변이에 대한 콜로니 PCR 및 Sanger 시퀀싱 확인. p2NIL_rv0678_pGOAL19를 보유한 E. coli 단일 콜로니의 콜로니 PCR 생성물을 rv0678-특이적 프라이머를 사용하여 시퀀싱하였다. Sanger 시퀀싱 크로마토그램(정렬)은 클로닝된 삽입물 내의 도입된 변이 rv0678_97 (GAC > GGC, A97G 돌연변이에 해당)을 보여주며, 6개의 콜로니가 BioEdit에서 시각화된 참조 M. tuberculosis H37Rv rv0678 서열과 정렬되었다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
두 번째 교차 사건에서 자살 플라스미드 벡터가 소실된 형질전환체를 선별하기 위해, 선택된 청색 단일 콜로니를 Kan이 포함된 7H9-OADC 배지에서 배양한 후 Kan이 없는 상태에서 계대 배양하였습니다. 접종물을 2% sucrose와 X-gal이 포함된(Hyg 제외) 7H11-OADC 한천 배지에 도말하여 공동 통합체의 해소를 나타내는 rv0678 변이주를 선별하였습니다. 16일 후 플레이트에서 백색 단일 콜로니를 회수하였습니다. 일부 청색 콜로니가 관찰되었으며, 이는 공동 통합체의 부분적인 해소를 나타냅니다. 7H11-OADC 한천 플레이트에서 분리하여 Sanger 시퀀싱으로 스크리닝한 sucrose 저항성 M. tuberculosis 백색 단일 콜로니들이 rv0678 Thr33Ala 점 돌연변이 c.97A>G를 보유하고 있음을 확인하였습니다(그림 8).
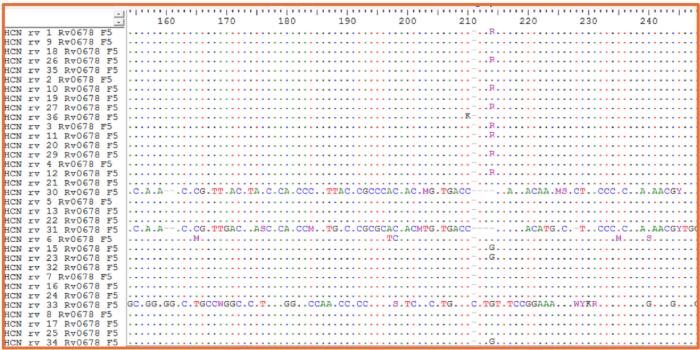
그림 8: M. tuberculosis의 rv0678 A97G 돌연변이에 대한 PCR 증폭 및 Sanger 시퀀싱 확인. 설탕 민감성 흰색 단일 콜로니(설탕, X-GAL 및/또는 kanamycin으로 선택)의 콜로니 PCR 생성물을 rv0678-특이적 프라이머를 사용하여 시퀀싱하였다. 참조 M. tuberculosis H37Rv rv0678 서열에 정렬된 Sanger 시퀀싱 데이터는 BioEdit에서 시각화한 선택된 콜로니 내에 원하는 rv0678_97 변이(GAC > GGC, Thr33Ala; 순수 돌연변이 "G" 배경의 콜로니 4개 및 야생형과 돌연변이가 혼합된 "R" 배경의 콜로니 8개)가 존재함을 확인해주었다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
리콤비니어링(Recombineering)
pJV75amber를 이용한 M. tuberculosis의 형질전환
리콤비니어링(recombineering)에 사용된 플라스미드 pJV75amber를 DH5α E. coli에서 분리하였으며, 분광광도계를 사용하여 농도를 측정한 결과 180.7 ng/µL였다. 원하는 뉴클레오타이드 변화를 포함하는 ssDNA 올리고뉴클레오타이드의 리콤비니어링에 필요한 gp61 리콤비나제 단백질을 발현하는 M. tuberculosis (pJV75amber)를 생성하기 위해, 전기천공 가능(electrocompetent) M. tuberculosis H37Rv에 2 µg의 플라스미드 DNA를 형질전환시켰다. 형질전환된 재조합 M. tuberculosis 세포를 7H11-OADC 한천 배지에 도말하였다. 이 세포들을 사용하여 pJV75amber 내의 aph 유전자(700 bp)를 PCR로 증폭하였다(그림 9). 형질전환된 M. tuberculosis의 흰색 단일 콜로니 20개를 분리하여 pJV75amber 벡터의 존재를 확인하였다. 이후의 리콤비니어링 실험을 위해 M. tuberculosis (pJV75amber) 단일 콜로니를 선정하였다.
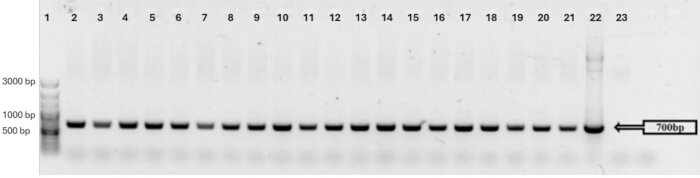
그림 9: 20개의 단일 콜로니로부터 aph 프라이머를 사용하여 수행한 M. tuberculosis (pJV75amber) 단일 콜로니의 콜로니 PCR. 레인 1: 100 bp plus DNA ladder; 레인 2–21: 단일 콜로니로부터 aph의 PCR 증폭; 레인 22: pJV75amber DNA; 레인 23: 음성 대조군. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
M. tuberculosis 내 atpE A196G (Ile66Val)의 재조합 공학
단일 뉴클레오타이드 변화 atpE c.196A>G(Ile66Val 돌연변이 유발)를 포함하는 ssDNA 올리고뉴클레오타이드와 JVC198 ssDNA 올리고뉴클레오타이드를 공동 형질전환시킨 전기천공 가능 재조합 M. tuberculosis (pJV75amber) 세포를 Hyg 배지에서 선택하였습니다. Hyg 내성 콜로니를 대상으로 atpE 유전자의 PCR 증폭 및 Sanger 시퀀싱을 수행하여 리콤비니어링(recombineering)이 일어났는지 확인했습니다. 스크리닝한 33개의 단일 콜로니 중 2개만 돌연변이가 확인되었으며, 그중 하나(C11_atpE)는 야생형(CAT)과 돌연변이(CGT) 대립유전자가 혼재된 집단이었습니다. 반면, 두 번째 콜로니(C14_atpE)는 순수한 atpE c.196A>G 돌연변이 집단이었습니다(그림 10).
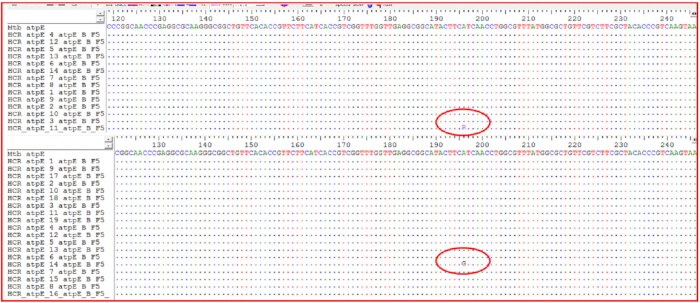
그림 10: M. tuberculosis 단일 콜로니 내 atpE 유전자의 PCR 증폭 및 Sanger 시퀀싱. 콜로니 PCR 생성물은 atpE 특이적 프라이머를 사용하여 시퀀싱되었으며, 참조 M. tuberculosis H37Rv atpE 서열과 정렬되었다. 시퀀싱 크로마토그램(정렬) 결과: (상단 패널) 스크리닝된 14개 콜로니 중 196번 위치에서 야생형(A)과 돌연변이(G) 대립유전자가 모두 나타나는 혼합 집단 콜로니 1개(C11_atpE); (하단 패널) 스크리닝된 19개 콜로니 중 BioEdit에서 시각화된 atpE A196G 치환 Ile66Val을 보유한 순수 돌연변이 집단 콜로니 1개(C14_atpE)가 확인되었다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
M. tuberculosis의 유전적 조작은 이 유기체의 지질이 풍부한 세포 외피, 느린 성장 속도, 그리고 외래 DNA의 상대적으로 비효율적인 흡수 능력으로 인해 기술적으로 매우 어렵습니다. 이러한 특징들로 인해 형질전환, 콜로니 회복 및 분자적 확인 과정이 다른 많은 박테리아 시스템보다 더 느리고 예측 가능성이 낮습니다. 또한, 대형 dsDNA 단편의 생성과 플라스미드 기반 전달 벡터의 구축은 많은 공수가 들며 여러 단계의 품질 관리 과정을 거쳐야 합니다. 본 프로토콜에서는 자살 벡터를 이용한 2단계 AE와 올리고뉴클레오타이드 매개 리콤비니어링(recombineering)이라는 두 가지 상호 보완적인 접근법을 제시함으로써, 동일 유전적 배경의 M. tuberculosis에 정의된 점 돌연변이를 도입하는 과정에서의 이러한 난제들을 해결하고자 합니다.
2단계 AE 프로토콜의 핵심 특징은 효율적인 재조합이지만, 이는 다중 클로닝 부위(multiple cloning sites) 로의 제한 효소 클로닝 필요성과 HR을 자극하고 AE를 높이기 위해14 UV 전처리된 플라스미드 DNA를 사용해야 한다는 점13으로 인해 제한적입니다. UV 노출이 컨스트럭트 내에서 원치 않는 변이를 유도할 수 있지만, SNV가 발생할 가능성은 매우 낮은 것으로 보고되었습니다15,16. 다중 선택 및 역선택 마커7,10에 의존하는 SCO 및 DCO 사건의 2단계 전략은 M. tuberculosis17에 in vitro 항생제 스트레스를 가할 수 있습니다. 추가 마커를 사용하면 순수한 돌연변이 집단의 회복률을 높일 수 있지만, 연속 계대 배양은 in vitro 진화의 위험이 있어 유전적 배경이 서로 다른 균주 집단을 생성할 수 있으며13,15, 이는 도입된 점 돌연변이의 해석을 방해할 수 있습니다18. 형질전환 효율과 재조합 비효율성은 SCO 사건을 제한하는 반면, DCO 사건은 오직 재조합 효율에 의해서만 제한되며 더 쉽게 발생합니다19. 또한, 제한 효소 절단 및 다중 클로닝 부위로의 클로닝은 여전히 많은 시간과 노동력이 소요됩니다.
ssDNA oligonucleotides를 이용한 리콤비니어링(Recombineering)은 M. tuberculosis에 점 돌연변이를 도입하는 데 효율적입니다. 표적 ssDNA oligonucleotide의 짧은 상동성 팔(homology arms) 덕분에 직접적인 화학 합성이 가능하며, 이를 통해 상동 재조합에 필요한 제한 효소 클로닝 및 PCR 증폭과 같은 다단계 과정을 생략할 수 있습니다20. 리콤비니어링은 돌연변이 유도를 위해 M. tuberculosis 내 염색체 외부에서 자체 복제가 가능한 제거 가능 플라스미드(curable plasmid)에 전적으로 의존합니다21,22. 또한, ssDNA oligonucleotides는 합성이 용이합니다. 따라서 리콤비니어링은 필요한 플라스미드 수와 배양 단계가 적어 상동 재조합보다 더 간단하고 빠르며 비용 효율적입니다. 하지만 표적 게놈 영역에 따라 부위 특이적 돌연변이 유도(site-directed mutagenesis) 효율이 낮을 수 있으며, 여러 번의 시도가 필요할 수 있습니다. ssDNA를 이용한 전반적인 리콤비니어링 효율은 다른 기술에 비해 상대적으로 높은 것으로 보고되지만, 의도한 변경을 가진 세포의 절대적인 수는 여전히 낮다고 할 수 있습니다20,23. 주요 과제로는 외래 공여체 ssDNA 기질의 가닥 편향(strand bias)과 상대적으로 짧은 상동성으로 인해 상동성 영역 외부의 서열 유사성을 공유하는 궤적(loci)에서 의도하지 않은(비정상적) 재조합이 발생하는 것이 있습니다. 추가적인 항생제 선택 없이 돌연변이체를 선별하기 위해 사용되는 HygR 공동 선택(co-selection) 방식은24,25 오페론 하류에 극성 효과(polar effects)를 일으켜 유전적 배경에 원치 않는 돌연변이를 초래할 수 있습니다26. Figure 10에서 알 수 있듯이(atpE A196G 양성 콜로니 2/33), 리콤비니어링 효율은 표적에 따라 다를 수 있으며, 이는 suboptimal한 ssDNA oligo 상동성 팔(<50 nt), 어닐링을 방해하는 2차 구조, 불충분한 리콤비나제(recombinase) 유도 또는 경쟁적인 야생형 복구 경로 때문일 가능성이 있습니다. 또한 리콤비니어링은 원하는 변이체를 확인하기 위해 많은 단일 콜로니를 스크리닝해야 하므로 시간이 많이 소요될 수 있습니다. M. tuberculosis에서는 지질이 풍부한 마이코박테리아 세포 외벽으로 인해 플라스미드 DNA 및 ssDNA oligonucleotides의 흡수 효율이 여전히 낮습니다. 따라서 HygR 선택 가능 oligonucleotide의 장점은 절대적인 형질전환 효율을 높이는 것이 아니라, 전기천공법(electroporation) 동안 DNA를 흡수한 소수의 세포를 공동 선택할 수 있게 한다는 점에 있습니다. 이를 통해 스크리닝 모집단 내에서 DNA 수용 세포를 농축할 수 있으며, 그 중에서 PCR과 시퀀싱을 통해 원하는 염색체 돌연변이를 식별할 수 있습니다. 하지만 HygR 선택 자체가 표적 부위 돌연변이의 삽입을 확인하는 것은 아니므로, 확정된 돌연변이체를 식별하기 위해 여전히 다수의 HygR 콜로니를 스크리닝해야 합니다.
SNV를 포함하는 ssDNA 올리고뉴클레오타이드는 복제 포크에서 미스매치를 생성한다는 점에 유의해야 합니다. M. tuberculosis의 NucS 미스매치 복구 시스템이 이 미스매치를 인식하여 복구함으로써 의도한 돌연변이의 삽입을 억제할 수 있습니다. 효율을 극대화하기 위해 연구자는 DNA 미스매치 복구에 관여하는 비정형 미스매치 복구(MMR) 엔도뉴클레아제인 EndoMS로도 알려진 NucS에 의해 효율적으로 복구되는 G-G, G-T 또는 T-T 염기쌍을 형성하는 미스매치는 피해야 합니다27,28.
여기에서 제시하는 프로토콜은 조절된 유전적 배경 내에서 정밀한 돌연변이 유발을 가능하게 함으로써 결핵 연구를 발전시키며, 이를 통해 임상 분리주를 이용한 연구에 내재된 한계점을 해결합니다. 기존 방법들과 비교하여7,8,29,30본 출판물은 다음을 제공합니다. M. tuberculosis-특이적 최적화(조정된 전기천공법 파라미터(2.5 kV 포함)를 포함하여, 25 µF, 1000 Ω)를 달성하는 >108 CFU/µg 형질전환 효율과 최적화된 올리고뉴클레오타이드 설계(리콤비니어링을 위해 63bp, 재조합을 위해 25kb)를 통해 이차 구조 및 오프타겟 효과를 최소화하였습니다. 이러한 개선을 통해 리콤비니어링의 실험 기간을 AE 방식의 12주에서 6주로 단축하였으며, bedaquiline 내성 유전자좌의 성공적인 돌연변이 유발을 통해 입증된 바와 같이 재현성을 향상시켰습니다. rv0678 그리고 atpE. 본 연구의 참신함은 두 가지 접근 방식의 직접적인 병행 비교, 변이 확인을 위한 전장 유전체 시퀀싱 및 돌연변이 예측을 위한 AI와 같은 현대적 도구의 통합, 그리고 시각적 문서화에 있으며, 이 모든 요소는 자원이 제한된 환경에서의 도입을 용이하게 합니다.
설명된 방법들을 최적화하고 일반적인 문제점들을 해결하기 위해, 상동 재조합(HR)과 리콤바이니어링(recombineering) 모두에 적용 가능한 몇 가지 수정 사항을 도입할 수 있습니다. 두꺼운 세포벽으로 인해 M. tuberculosis 형질전환의 병목 현상이 되는 전기천공 효율을 높이려면, 글리신 처리(성장 중 0.2–0.5 M로 24–48시간 처리)를 통해 세포벽을 약화시켜 DNA 흡수를 촉진함으로써 전기천공 가능 세포(electrocompetent cells)를 준비하십시오. 또한, 최적화된 큐벳(간격 0.1–0.2 cm)과 냉각된 버퍼를 사용하여 초고전계 전기천공(12.5–25 kV/cm)을 실시하고, 에탄올 침전이나 컬럼 정제로 DNA를 탈염하여 아킹(arcing) 현상을 최소화함으로써 105 CFU/µg DNA 이상의 형질전환 효율을 달성하십시오. 대수 증식 중간 단계에서 수확하기 위해 세포 밀도를 OD600 0.6–0.8에서 모니터링하고, 포화 및 생존율 저하를 방지하기 위해 과도한 DNA 사용을 피하십시오(1–10 µg로 제한). 콜로니 생성 수가 계속 낮게 나타나는 경우, 저항성 마커가 발현될 수 있도록 전기천공 후 48시간 동안 회복 배양 과정을 포함시키십시오31,32.
다른 일반적인 문제로는 오버랩 연장(overlap extension) 시 PCR 수율이 낮게 나타나는 경우가 있습니다. 이는 GC 강화제(3–5% DMSO)를 포함한 고충실도 중합효소(high-fidelity polymerases)와 구배 어닐링 온도(gradient annealing temperatures, 55–65 °C)를 사용하여 최적화할 수 있습니다. 선택 과정 중의 항생제 스트레스는 통합 후 절제를 위해 Cre-loxP와 같은 마커리스(markerless) 시스템을 도입함으로써 완화할 수 있습니다. Cre-loxP는 Cre 재조합효소(recombinase)가 34-bp loxP DNA 서열을 인식하고 두 loxP 사이트 사이에 위치한 DNA 분절의 정밀한 절제를 촉매하는 부위 특이적 재조합 시스템으로, 세포 내에서 조건부 유전자 넉아웃(conditional gene knockout)을 가능하게 합니다33.
HR의 경우, 비정상적인 결합보다 정상적인 결합을 유도하여 오프타겟 통합을 방지하기 위해 자살 벡터의 상동성 팔(homology arms) 길이를 1–2 kb로 연장하십시오. 비특이적 사건을 억제하면서 특이적 재조합 속도를 높이기 위해 유도성 재조합효소(RecET 시스템)가 포함된 복제성 플라스미드를 사용하십시오. HR을 위한 UV 전처리의 경우, 과도한 돌연변이를 유발하지 않으면서 재조합을 자극하도록 노출량을 100–150 mJ/cm2로 조정하고, 돌연변이 유발 후 전전체 염기서열 분석(whole-genome sequencing)을 통해 컨스트럭트를 검증하여 의도치 않은 변화가 있는지 확인하십시오9,34,35.
리콤비니어링(recombineering)을 위해, GC 함량이 높은 미스매치를 피하면서 63 - 90 nt의 상동성 팔(homology arms)을 갖도록 올리고 디자인을 최적화하고, OligoEvaluator와 같은 소프트웨어를 사용하여 안정성을 확인하십시오. 독성 없이 발현의 균형을 맞추기 위해 전기천공법 이후 아세트아미드 유도를 0.2–0.5%로 조정하여 4–6 h 동안 처리하십시오. 가닥 편향(strand bias)과 오프타겟 어닐링(off-target annealing)을 줄이려면, 지연 가닥(lagging strand)을 표적으로 하는 50–100 nt 상동성을 가진 ssDNA 올리고뉴클레오타이드를 설계하고, 엑소뉴클레아제 분해로부터 보호하기 위해 올리고 말단에 포스포로티오에이트(phosphorothioate) 수식을 도입하십시오. 비정상적 재조합(illegitimate recombination)이 빈번하게 발생하는 경우, 항생제 농도를 높이거나 이중 마커를 사용하여 선택 압력을 높이거나, 신선한 컴피턴트 셀(competent cells)로 형질전환을 반복하여 수율을 높이십시오. 이러한 단계들을 통해 까다로운 게놈 궤적(genomic loci)에서도 재조합 효율을 >20%까지 향상시킬 수 있습니다. 광범위한 콜로니 스크리닝은 멀티플렉스 PCR을 위해 콜로니를 풀링하거나, 표적 유전자와 호환되는 경우 형광 기반 리포터를 사용하여 간소화할 수 있습니다36.
여기에 설명된 방법들은 M. tuberculosis 유전학을 위한 기초적인 도구를 제공하며, 최신 기술로 확장될 가능성이 있습니다. 부위 특이적 돌연변이 유발(Site-directed mutagenesis)은 차세대 염기서열 분석37을 통해 확인된 약제 내성 돌연변이를 검증35하는 데 사용될 수 있으며, 이를 통해 임상 분리균주 내 새로운 변이체의 신속한 표현형 분석이 가능해집니다. 향후 연구에서는 CRISPR-유도 돌연변이 유발 DNA 중합효소와 같은 CRISPR-Cas 시스템을 통합하여 다중 편집을 수행함으로써, 약물 표적 유전자의 레퍼토리를 다양화하고 내성 기전의 발견을 가속화할 수 있을 것입니다. M. tuberculosis의 내인성 Type III CRISPR를 이용해 파지나 플라스미드에 대응하는 방어 체계를 활용한다면, 내성 균주를 위한 새로운 항균제나 진단법을 개발할 수 있을 것입니다38,39,40.
in vivo에서 필수 유전자를 식별하기 위한 TnSeq를 포함한 유전자 조작 기술의 발전은 생균주 내의 약독화 표적을 정확히 찾아냄으로써 백신 개발의 길을 열어줍니다41. 프로그래밍 가능한 염기 편집은 이중 가닥 절단 없이 미세한 돌연변이를 정교하게 유도할 수 있어, 오프타겟 효과를 줄이고 다제내성의 상위성 연구를 용이하게 할 수 있습니다. 더 광범위한 응용 분야로는 바이오센서 플랫폼이나 실시간 감염 모니터링을 위한 리포터 삽입과 같은 합성 생물학을 위해 M. tuberculosis를 엔지니어링하는 것이 포함됩니다. 향후 연구는 AI 기반 설계와 이러한 방법들을 결합한 고처리량 돌연변이 유발 파이프라인에 집중하여 숙주-병원체 상호작용을 매핑하고 맞춤형 치료법에 대한 정보를 제공해야 합니다42.
공개 사항
저자들은 공개할 이해관계 충돌이 없습니다.
감사의 글
Stellenbosch University 의과대학 및 보건과학부 분자생물학 및 인간유전학 부문의 TB Genomics Research Group 모든 구성원분들의 소중한 기여에 깊은 감사를 표합니다. 본 연구에 기여하였습니다. 유럽 및 개발도상국 임상시험 파트너십(TMA2017CDF-1885), 남아프리카 공화국 의학연구위원회, 독일 학술교류처(DAAD) 및 Odysseus 보조금 N에 따른 플란더스 연구재단(FWO)으로부터 연구비를 지원받았습니다.° G0F8316N. 또한 상동 재조합 공학(homologous recombineering) 방법을 개발하고, 본 연구에 사용된 pJV75amber를 제공해 주신 Graham Hatfull 교수님과 Julia van Kessel 교수님께 감사의 뜻을 표합니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.5 mL 마이크로원심분리 튜브, 원추형 바닥, 잠금 캡 | WhiteHead Scientific | 605001 | 배양 |
| 1.5 mL 마이크로원심분리 튜브, 원추형 바닥, 잠금 캡 | WhiteHead Scientific | 615001 | 배양 |
| 10 mM 염화칼슘 이수화물 (CaCl2·2H2O) | Sigma-Aldrich | 화학적 형질전환 E. coli | |
| 10 mM RbCl, 75 mM CaCl2·2H2O | Sigma-Aldrich | 83979 | 화학적 형질전환 E. coli |
| 10 mM MOPS (3-(N-Morpholino) propanesulfonic acid) 완충액 | Sigma-Aldrich | M1254 | 화학적 형질전환 E. coli |
| 100 mM 염화루비듐 (RbCl) | Sigma-Aldrich | 83979 | 화학적 형질전환 E. coli |
| 15 cm 페트리 접시 | Lasec | SKU | 한천 배양 |
| 15% wt./vol 글리세롤 | Sigma-Aldrich | 49781-500ML | 배양 |
| 표준 탈염 처리를 거쳐 25-nm 규모로 합성된 20 bp ~ 32 bp PCR 프라이머 | Integrated DNA Technologies (WhiteHead Scientific) | N/A | DNA 증폭 |
| 25 cm 조직 배양 플라스크 | WhiteHead Scientific | 707001 | 액체 배양 |
| 30 mM 아세트산 칼륨 | Sigma-Aldrich | P1190-100G | 화학적 형질전환 E. coli |
| 50 mL 원심분리 튜브 | WhiteHead Scientific | P10432 | 배양 |
| 50 mM 염화망간(II) 사수화물 (MnCl2·4H2O) | Sigma-Aldrich | 63535 | 화학적 형질전환 E. coli |
| PAGE 정제를 거쳐 100-nm 규모로 합성된 63 bp ssDNA 올리고뉴클레오타이드 | Integrated DNA Technologies (WhiteHead Scientific) | N/A | 대립유전자 교환 도입 |
| 75 cm 조직 배양 플라스크 | WhiteHead Scientific | 708013 | 액체 배양 |
| Benchmark Accuris UV Transilluminator 광원 | Sigma Aldrich | BMSE3000-1EA | 겔 시각화 |
| Benchmark Scientific (H3020) Incu-Shaker 20 L 적층형 진탕 배양기, 미끄럼 방지 고무 매트 포함, 115 V | Alkali Scientific | SKU: | E. coli 배양 |
| Bio-Edit | 소프트웨어 | n/a | Sanger 시퀀싱 리드의 시각적 검사 및 분석 |
| Crosslinkers CL 508 | Thistle Scientific. | SKU: CLV-CL-508.M | 플라스미드 DNA 처리 |
| DNA-MAN | 소프트웨어 | n/a | Sanger 시퀀싱 리드의 시각적 검사 및 분석 |
| 디지털 드라이 배스, 타이머 포함, 150 °C 가열, 듀얼 블록 | WhiteHead Scientific | E-DB150-2D | 형질전환 |
| Gene Pulser Xcell 전기천공 시스템 | Bio-Rad, Hercules, CA 94547, USA | 1652660 | 전기천공 |
| Gene Pulser/ MicroPulser 전기천공 큐벳, 0.2 cm 간격 | Bio-Rad, Hercules, CA 94547, USA | 1652086 | 전기천공 |
| HindIII-HF 효소 | New England Bio-lab | R3104L | 제한 효소 절단 |
| JCV198 (PAGE 정제를 거쳐 100-nm 규모로 합성된 ssDNA 올리고뉴클레오타이드) | Integrated DNA Technologies (WhiteHead Scientific) | 63 bp | CCCTGTTACTTCTCGACCGTATTGA TTCGGATGATTCCTACGCGAGCCT GCGGAACGACCAGG; 표적 유전자: php; pJV75amber의 php 유전자 내 hygR 복구 |
| Memmert IN Plus Standard 26.5 cu ft 비-CO2 정적 배양기 | Ares Scientific | SKU: IN-750-PLUS | M. tb 배양 |
| Mtb_Rv0678_Fwrd_SEQ | Integrated DNA Technologies (WhiteHead Scientific) | 885bp | GCGACCACAACCAGGATGA; 표적 유전자: rv0678; rv0678의 PCR 증폭 |
| Mtb_Rv0678_Rev_SEQ | Integrated DNA Technologies (WhiteHead Scientific) | 885bp | CTCGGACAACACGCTGACC; 표적 유전자: rv0678; rv0678의 PCR 증폭 |
| Mtb_Rv0678_T33A_For_ampyP | Integrated DNA Technologies (WhiteHead Scientific) | 1413bp | ATTTCGAGTCCAGGAGTTTGGCTC GGTTGGCGGGTCGATT{G}; 표적 유전자: rv0678; A95G 삽입 |
| Mtb_Rv0678_T33A_Rev_ampyP | Integrated DNA Technologies (WhiteHead Scientific) | 1413bp | CAATCGACCCGCCAACCGAGC CAAACTCCTGGACTCGAAA{T}; 표적 유전자: rv0678; A95G 삽입 |
| Mycobrowser | 데이터베이스 | n/a | 유전자 서열 내 SNV 코돈 |
| NCBI 데이터베이스 | 데이터베이스 | n/a | SNV 위치 식별을 위한 게놈 내 유전자 위치 |
| p2NIL | Addgene | 20188 | 발현 클로닝 벡터 (kanR) |
| PacI-HF 효소 | New England Bio-lab | R0547L | 제한 효소 절단 |
| pCR-Blunt-II-TOPO | Thermofisher -scientific / Invitrogen | 451245 | LacZ 및 kanR을 발현하는 서브클로닝 벡터 |
| pGOAL17 | Addgene | 20189 | LacZ 및 SacB를 발현하는 Lambda RED 재조합 효소 클로닝 벡터 |
| pGOAL19 | Addgene | 20190 | hygR, LacZ 및 SacB를 발현하는 Lambda RED 재조합 효소 클로닝 벡터 |
| Phusion high fidelity Hotstart flex polymerase 키트 | New England Bio-lab | M0535L | 고정밀 교정 DNA taq 중합효소 |
| pJET1.2/blunt | Thermofisher -scientific | K1231 | 서브클로닝 시퀀싱 벡터 (ampR) |
| PJV75_KANR_F (표준 탈염 처리를 거쳐 25-nm 규모로 합성된 프라이머) | Integrated DNA Technologies (WhiteHead Scientific) | 700 bp | ATTCAACGGGAAACGTCTTG; 표적 유전자: aph; pJV75amber 내 KanR 유전자 증폭 |
| PJV75_KANR_R (표준 탈염 처리를 거쳐 25-nm 규모로 합성된 프라이머) | Integrated DNA Technologies (WhiteHead Scientific) | 700 bp | CGAGGCAGTTCCATAGGATG; 표적 유전자: aph; pJV75amber 내 KanR 유전자 증폭 |
| pJV75amber | Addgene / Van Kessel lab | 26906/ 26908/26908/ 26910 | kanR, hygR 및 게놈 내 재조합을 촉진하는 Che gp61을 발현하는 벡터 |
| Primer3plus | 소프트웨어 | n/a | 관심 유전자에 특이적인 프라이머 쌍 설계 |
| RcmbFrag_Rv0678_Fwrd_digPrim | Integrated DNA Technologies (WhiteHead Scientific) | 2825bp | ACAGCG{AAGCTT}CAGGTTG GTCGCGAAGGTCG; 표적 유전자: HindIII 사이트; 삽입 사이트 ACAGCGAAGCTT |
| RcmbFrag_Rv0678_Rev_digPrim | Integrated DNA Technologies (WhiteHead Scientific) | 2825bp | CGTACA{GGTACC}ACGTACG CTCAATCAAGGCC; 표적 유전자: kpnl 사이트; 삽입 사이트 CGTACAGGTACC |
| SNAPGene | 소프트웨어 | n/a | 가상 클로닝 및 제한 효소 오버행 추가 |
| Thermo Fisher QuantStudio 3 Thermocycler | Pika America | N/A | DNA 증폭 |
참고문헌
- Fenner L, et al. Effect of mutation and genetic background on drug resistance in Mycobacterium tuberculosis. Antimicrob Agents Chemother. 2012;56(6):6. doi:10.1128/AAC.06460-11.
- K SP, Parivakkam Mani A, S G, Yadav S. Advancements in artificial intelligence for the diagnosis of multidrug resistance and extensively drug-resistant tuberculosis: A comprehensive review. Cureus. 2024;16(5):e60280.
- Kandathil SM, Lau AM, Jones DT. Machine learning methods for predicting protein structure from single sequences. Curr Opin Struct Biol. 2023;81:102627.
- Hall BM, Ma CX, Liang P, Singh KK. Fluctuation AnaLysis CalculatOR: a web tool for the determination of mutation rate using Luria–Delbrück fluctuation analysis. Bioinformatics. 2009;25(12):12.
- Murray A. Salvador Luria and Max Delbrück on random mutation and fluctuation tests. Genetics. 2016;202(2):2.
- Pérez-Donoso JM, Vásquez CC. Site-directed mutagenesis as a tool for unveiling mechanisms of bacterial tellurite resistance. Genet Manip DNA Protein - Ex Curr Res. 2013;10.5772/47998.
- Parish T, Stoker NG. Use of a flexible cassette method to generate a double unmarked Mycobacterium tuberculosis tlyA plcABC mutant by gene replacement. Microbiology. 2000;146(Pt 8):1969-1975.
- van Kessel JC, Hatfull GF. Efficient point mutagenesis in mycobacteria using single-stranded DNA recombineering: characterization of antimycobacterial drug targets. Mol Microbiol. 2008;67(5):5.
- Gupta R, et al. A dual role for mycobacterial RecO in RecA-dependent homologous recombination and RecA-independent single-strand annealing. Nucleic Acids Res. 2013;41(4):2284-2295.
- Parish T, Stoker NG. Electroporation of Mycobacteria. Electroporation Protocols for Microorganisms. Humana Press; 1995:237-252.
- van Kessel JC, Hatfull GF. Recombineering in Mycobacterium tuberculosis. Nat Methods. 2007;4(2):2.
- Green R, Rogers EJ. Transformation of Chemically Competent E. coli. In Laboratory Methods in Enzymology: DNA. Academic Press; 2013;529:329-336.
- Gordhan BG, Parish T. Gene replacement using pretreated DNA. Methods Mol Med. 2001;54:77-92.
- Zhang Y, Muyrers JP, Testa G, Stewart AF. DNA cloning by homologous recombination in Escherichia coli. Nat Biotechnol. 2000;18(12):1314-1317.
- Hinds J, et al. Enhanced gene replacement in mycobacteria. Microbiology. 1999;145(3):519-527.
- Kodym A, Afza R. Physical and chemical mutagenesis. Methods Mol Biol. 2003;236:189-204.
- Martin C, et al. Transposition of an antibiotic resistance element in mycobacteria. Nature. 1990;345(6277):739-743.
- Kalpana GV, Bloom BR, Jacobs WR. Insertional mutagenesis and illegitimate recombination in mycobacteria. Proc Natl Acad Sci U S A. 1991;88(12):5433-5437.
- Goude R, Parish T. Electroporation of mycobacteria. J Vis Exp. 2008;15:e761.
- Sawitzke JA, et al. Recombineering: highly efficient in vivo genetic engineering using single-strand oligos. Methods Enzymol. 2013;533:157-177.
- Sarasin A. New trends in photobiology: Shuttle vectors for studying mutagenesis in mammalian cells. J Photochem Photobiol B. 1989;3(2):143-155.
- Wang XY, et al. Impact of different promoters on episomal vectors harbouring characteristic motifs of matrix attachment regions. Sci Rep. 2016;6.
- Thomason LC, Oppenheim AB, Court DL. Modifying bacteriophage lambda with recombineering. Methods Mol Biol. 2009;501:239-251.
- Merker M, et al. Whole genome sequencing reveals complex evolution patterns of multidrug-resistant Mycobacterium tuberculosis Beijing strains in patients. PLoS One. 2013;8(12):e82551.
- Faksri K, et al. Whole-genome sequencing analysis of serially isolated multi-drug and extensively drug resistant Mycobacterium tuberculosis from Thai patients. PLoS One. 2016;11(8):e0160992.
- Ishikawa M, Hori K. A new simple method for introducing an unmarked mutation into a large gene of non-competent Gram-negative bacteria by FLP/FRT recombination. BMC Microbiol. 2013;13(1):86.
- Rivera-Flores IV, Wang EX, Murphy KC. Mycobacterium smegmatis NucS-promoted DNA mismatch repair involves limited resection by a 5′-3′ exonuclease and is independent of homologous recombination and NHEJ. Nucleic Acids Res. 2024;52(20):12308-12323.
- Murphy KC. Oligo-mediated recombineering and its use for making SNPs, knockouts, insertions, and fusions in Mycobacterium tuberculosis. Methods Mol Biol. 2021;2314:301-321.
- Murphy KC, Papavinasasundaram K, Sassetti CM. Mycobacterial recombineering. Methods Mol Biol. 2015;1285:177-199.
- Kendall SL, Frita R. Construction of targeted mycobacterial mutants by homologous recombination. Methods Mol Biol. 2009;465:297-310.
- Campo-Pérez V, Cendra M del M, Julián E, Torrents E. Easily applicable modifications to electroporation conditions improve the transformation efficiency rates for rough morphotypes of fast-growing mycobacteria. New Biotechnol. 2021;63:10-18.
- Tang D, et al. Ultra-high field strength electroporation enables efficient DNA transformation and genome editing in nontuberculous mycobacteria. Microbiol Spectr. 2025;13(10):e01944-25.
- Stephan J, Stemmer V, Niederweis M. Consecutive gene deletions in Mycobacterium smegmatis using the yeast FLP recombinase. Gene. 2004;343(1):181-190.
- Baulard A, Kremer L, Locht C. Efficient homologous recombination in fast-growing and slow-growing mycobacteria. J Bacteriol. 1996;178(11):3091-3098.
- Borgers K, Vandewalle K, Festjens N, Callewaert N. A guide to Mycobacterium mutagenesis. FEBS J. 2019;286(19):3757-3774.
- Alonso MN, et al. Efficient method for targeted gene disruption by homologous recombination in Mycobacterium avium subspecies paratuberculosis. Res Microbiol. 2020;171(5):203-210.
- Beviere M, et al. The role of next-generation sequencing (NGS) in the management of tuberculosis: Practical review for implementation in routine. Pathogens. 2023;12(8):978.
- Ding XY, et al. Programmable base editing in Mycobacterium tuberculosis using an engineered CRISPR RNA-guided cytidine deaminase. Front Genome Ed. 2021;3:734436.
- Feng S, et al. A CRISPR-guided mutagenic DNA polymerase strategy for the detection of antibiotic-resistant mutations in M. tuberculosis. Mol Ther Nucleic Acids. 2022;29:354-367.
- Zein-Eddine R, Refrégier G, Cervantes J, Yokobori NK. The future of CRISPR in Mycobacterium tuberculosis infection. J Biomed Sci. 2023;30:34.
- James KS, et al. TnSeq identifies genetic requirements of Mycobacterium tuberculosis for survival under vaccine-induced immunity. NPJ Vaccines. 2025;10(1):103.
- Ghosh M, Lahiri M, Dalal A, Parida KK, Kalia NP. Advancements in tuberculosis diagnostics: An update. Microb Pathog. 2025;207:107843.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공