통합 대사체학, 전사체학, 단일 세포 및 기능 분석을 통해 SHMT2가 폐선암에서 SGOC 대사 재프로그래밍, 공격적 행동 및 예측된 면역요법 반응성 감소의 바이오마커임을 확인하였습니다.
연구 논문
SHMT2: 공격성 폐선암의 대사 및 면역 바이오마커
* These authors contributed equally
이 논문에서
요약
초록
세린/글리신-일탄소(SGOC) 대사는 폐선암(LUAD)에서 빈번하게 변화하지만, 종양의 거동 및 예측된 면역요법 반응성과의 관계는 아직 완전히 정의되지 않았습니다. 내부 추출 일렉트로스프레이 이온화 질량 분석법을 사용하여 23쌍의 LUAD 및 인접 정상 폐 조직에 대한 대사체 프로파일링을 수행하였습니다. TCGA-LUAD 코호트의 전사체 및 임상 데이터를 분석하여 SHMT2 발현, 예후, 차등 발현 유전자 및 면역 관련 특징을 평가하였습니다. 면역 관문 억제제에 대한 예측 반응은 TIDE 및 TCIA를 사용하여 평가하였으며, 약물 민감도는 oncoPredict를 통해 추론하였습니다. 단일 세포 RNA-seq 데이터를 사용하여 SHMT2의 세포 분포를 조사하였습니다. 실험적 검증에는 정량적 역전사 PCR(RT-qPCR), 웨스턴 블로팅, Human Protein Atlas(HPA) 면역조직화학 분석, 그리고 shRNA 매개 SHMT2 넉다운 후의 증식, 상처 치유 및 콜로니 형성 분석이 포함되었습니다. 대사체 분석 결과, 글리신, 세린 및 트레오닌 대사가 LUAD에서 두드러지게 변화된 경로로 확인되었습니다. SHMT2는 LUAD에서 상향 조절되었으며, 낮은 전체 생존율 및 부정적인 임상 병리학적 특징과 연관이 있었습니다. SHMT2 고발현 종양은 세포 주기 및 SGOC 관련 전사 프로그램의 농축, 낮은 면역 및 기질 점수, 그리고 낮은 예측 면역요법 반응성을 보였습니다. 단일 세포 분석 결과, B 세포 집단에서 SHMT2 발현이 상대적으로 농축되어 있음을 확인하였습니다. In vitro 실험에서 SHMT2는 LUAD 세포에서 과발현되었으며, SHMT2 넉다운은 증식, 이동 및 클론 생성 성장을 억제하였습니다. 종합적으로, SHMT2는 LUAD에서 SGOC 대사 재프로그래밍, 공격적인 종양 표현형 및 면역 불리한 상태와 연관되어 있어 바이오마커로서의 잠재적 관련성을 뒷받침하며, 치료 표적으로 활용하기 위해서는 추가적인 약리학적 및 in vivo 검증이 필요합니다.
서론
LUAD는 뚜렷한 분자적 이질성, 조기 전이 성향, 그리고 현재 치료 전략의 제한적인 지속성으로 인해 전 세계적으로 암 관련 사망의 주요 원인으로 남아 있습니다1,2. 면역관문 억제제(ICIs)가 LUAD의 치료 지형을 바꾸어 놓았지만, 지속적인 임상적 이점은 일부 환자군으로 제한되며, 일차성 및 획득성 내성이 빈번하게 관찰됩니다3,4. 이러한 현저한 환자 간 변동성은 종양 면역 미세환경을 형성하고 면역요법 반응성을 결정하는 생물학적 결정 요인을 정의하는 동시에, 환자 층화와 치료 결과를 개선하는 데 활용할 수 있는 실행 가능한 취약점을 식별해야 할 시급한 필요성을 강조합니다.
대사 재프로그래밍은 악성 진행의 핵심적인 특징입니다5. 다양한 대사 프로그램 중에서 SGOC 대사는 당분해 입력물과 아미노산 대사 및 뉴클레오타이드 합성을 연결하여, 퓨린/피리미딘 생성과 메틸 공여체 생성을 위한 일탄소 단위를 공급합니다6. SGOC 대사는 바이오매스 생산을 넘어 산화환원 항상성에 기여하며 메티오닌 회로와 상호작용하여 DNA, RNA 및 히스톤 메틸화에 영향을 미침으로써, 증식과 후성유전적 조절의 결절점에 위치합니다7,8. 세린 하이드록시메틸전이효소의 미토콘드리아 동형단백질인 Serine hydroxymethyltransferase 2 (SHMT2)는 세린을 글리신으로 전환하는 동시에 5,10-methylene-tetrahydrofolate를 생성하며, SGOC 네트워크 내에서 미토콘드리아 일탄소 공급의 주요 진입점을 구성합니다9. SHMT2는 여러 악성 종양에서 비정상적으로 상향 조절되며, 증식, 침습, 치료 저항성 및 산화 스트레스 적응의 강화와 관련이 있는 것으로 알려져 있습니다10,11,12,13. 또한 SHMT2는 BRISC 복합체를 통해 염증 신호 전달과 교차하지만, LUAD에서 SHMT2가 직접적으로 유도하는 면역 기전은 아직 확립되지 않았습니다14,15. 따라서 SHMT2가 LUAD에서 임상적으로 유의미한 대사 표현형을 나타내는지, 그리고 이것이 면역 미세환경 특징 및 예측된 면역요법 반응과 어떻게 연관되는지에 대한 통합적인 평가가 필요합니다.
종양 대사와 항종양 면역 사이의 양방향 상호작용은 현대 암 생물학의 핵심입니다16. 종양 세포는 영양소의 경쟁적 고갈, 면역 조절 대사산물의 축적, 그리고 면역 세포의 분화 및 작동 프로그램(effector programs)을 재구성하는 대사-후성유전학적 결합을 통해 면역 능력을 저하시킬 수 있습니다7,16,17. 강화된 일탄소 대사는 T 세포의 메틸화 의존적 프로그램과 대사 적합성에 영향을 미칠 수 있으나, 이러한 효과의 방향과 크기는 세포 유형과 영양 상태에 따라 달라집니다17. 적응 면역 조절은 T 세포 너머로 확장됩니다. B 세포, 항체 반응, 항원 제시 및 3차 림프 구조(TLS)는 면역 요법의 효능과 연관되어 왔습니다18. 이러한 관찰 결과는 플랫폼 간의 일치성만으로 인과 관계가 증명된다고 가정하지 않고, 벌크 종양(bulk-tumor), 단일 세포 및 기능적 맥락 내에서 대사 후보 물질을 배치할 수 있는 다층적 분석의 필요성을 뒷받침합니다.
대사체원 또는 표현형과의 연관성을 확립하지 않은 채 변화된 대사체만을 식별하는 대사체학 전용 설계나, 대사체 변화를 직접 관찰하지 않고 경로 활성을 추론하는 벌크 전사체학 전용 설계와 달리, 본 워크플로우는 쌍을 이룬 조직 대사체학, 벌크 및 단일 세포 전사체학, 그리고 in vitro 기능 분석을 통합합니다. 이러한 계층 간의 일관성은 후보 물질의 우선순위 선정을 뒷받침하고 단일 분석 플랫폼에 대한 의존도를 낮추어 줍니다. 다만, 면역 공배양 또는 in vivo 시스템에서 검증되지 않는 한, 도출된 증거는 면역 조절에 대해 상관관계 수준에 머물게 됩니다.
LUAD와 인접 정상 폐 조직의 쌍 조직 대사체학 분석을 통해 먼저 글리신 관련 대사 섭동을 식별하였습니다. 이후 TCGA 전사체 및 임상 데이터를 통합하여, 경로 관련성, 종양 내 상향 조절, 예후 연관성 및 실험적 분석 가능성이 확인된 미토콘드리아 SGOC 효소인 SHMT2를 평가하였습니다. 이어서 면역 미세환경 프로파일링, 단일 세포 매핑 및 in vitro 기능 검증을 통해 대사 변화, 효소 조절 장애, 세포 분포 및 종양 세포 표현형을 아우르는 다층적 가설 생성 프레임워크를 구축하였습니다. 실무적인 관점에서, 이 워크플로우에는 신선 동결된 쌍 조직이 필요합니다. 질량 분석법을 통한 대사체 식별은 반정량적이므로, 후보 대사체는 독립적인 검증을 거쳐야 합니다. 면역 요법 예측(TIDE/TCIA) 및 약물 민감도 추론(oncoPredict)은 전사체 기반의 계산적 추정치이며, 실제 ICI 치료 코호트에서의 임상적 검증을 대체할 수 없으므로 가설 생성 단계로 해석해야 합니다.
프로토콜
본 연구는 난창 대학교 제2부속병원의 기관생명윤리위원회(CDEFYYLK 3-05)의 승인을 받았습니다. 헬싱키 선언에 따라, 모든 환자로부터 시료 수집 전 서면 동의서를 받았습니다. 원시 데이터는 재료 표에 나열된 소프트웨어와 웹 리소스를 사용하여 내보내고 분석되었습니다.
임상 조직 수집
2024년 1월부터 6월 사이에 침습성 폐선암으로 병리학적 진단을 받고 수술적 절제를 시행한 환자들로부터 쌍을 이룬 종양 조직과 이에 매칭되는 원격 정상 폐 조직을 수집하였습니다. 검체는 집도의에 의해 절제되었으며, 절제 후 5분 이내에 처리하여 즉시 액체 질소로 급속 냉동한 후 분석 전까지 보관하였습니다. 비식별화된 임상병리학적 특성은 부록 표 1에 제공되어 있습니다.
LUAD와 정상 폐 조직을 구별하기 위한 내부 추출 전기분무 이온화 질량분석법(iEESI-MS)
조직 표본 (1 mm3)는 하이브리드 선형 이온 트랩-정전기 궤도 트랩 질량 분석계를 사용하여 양이온 모드에서 iEESI-MS로 분석되었습니다. 메탄올 추출 용매(100%)는 다음의 속도로 공급되었습니다. 3.0 µL/min +5 kV 바이어스로. iEESI-MS는1 스캔 범위는 m/z 50~2,000였습니다. iEESI-MS2 정규화된 충돌 에너지 25~35%, 분리창 m/z 2.0, 동적 배제 시간 30초의 충돌 유도 해리법을 사용하였다. 기기 표준 절차에 따른 일일 외부 교정을 통해 질량 오차를 유지하였다. <5 ppm. 중앙값 정규화 후, 로그 변환₂ 변환 및 자동 스케일링 후, 200회의 순열 검정을 통해 OPLS-DA를 수행하였다. 대사물질은 HMDB를 사용하여 주석을 달았으며, 경로 풍부도 분석은 KEGG 주석을 사용하여 수행하였다.
질량 분석 데이터 처리 및 대사체 식별
가공되지 않은 MS 데이터는 중앙값 정규화(median normalization)를 거친 후 log₂ 변환 및 오토스케일링(autoscaling, 평균 중심화 및 각 변수의 표준편차로 나누는 과정)을 통해 정규화되었습니다. 변별력 있는 m/z 특성을 식별하기 위해 직교 부분 최소 제곱 판별 분석(OPLS-DA)이 사용되었습니다. VIP > 1.0, |log₂(FC)| > 0.58, 그리고 p < 0.05일 때 특성이 차별적인 것으로 간주되었습니다. 차별적 특성들에 대해 MS2 분석을 수행하고 Human Metabolome Database를 사용하여 주석을 달았습니다. 이후 KEGG 기반의 경로 풍부도 분석(pathway enrichment)을 통해 변화된 경로를 식별하고 경로 관련 효소의 우선순위를 정했습니다. 주석이 달린 차별적 대사체들은 보충 표 2(Supplementary Table 2)에 제공되어 있습니다.
TCGA 기반 SHMT2 발현, 생존율 및 임상병리학적 연관성 분석
TCGA-LUAD의 RNA-seq 발현 프로파일 및 해당 임상 주석을 2025년 12월 18일에 Genomic Data Commons에서 다운로드하였으며, 종양(n = 542) 및 정상(n = 59) 샘플을 포함하였습니다. Fragments per kilobase of transcript per million mapped reads (FPKM) 값은 log2(FPKM + 1)로 변환하였습니다. 생존 정보가 완전한 샘플만 예후 분석에 포함되었습니다. 종양과 정상 조직의 SHMT2 발현 값은 Wilcoxon rank-sum test를 사용하여 비교하였습니다. 환자들은 발현 값의 중앙값을 기준으로 SHMT2-high 그룹과 SHMT2-low 그룹으로 나누었습니다. 전체 생존율은 Kaplan-Meier 분석 및 log-rank test를 통해 평가하였습니다. 종양-림프절-전이(TNM) 병기, 연령 및 성별과의 연관성은 적절한 경우 카이제곱 검정 또는 Wilcoxon 검정을 사용하여 평가하였습니다. 1년, 3년 및 5년 생존율에 대한 시간 의존적 수신자 조작 특성(ROC) 곡선을 생성하였습니다. 모든 통계 검정은 양측 검정으로 수행되었습니다.
차별 발현 분석 및 기능적 풍부도 분석 (GO/KEGG)
SHMT2 고발현 그룹과 저발현 그룹 간의 차등 발현 유전자(DEGs)는 허위 발견율(false-discovery rate) < 0.05 및 |log₂(FC)| ≥ 1을 기준으로 식별되었습니다. 결과는 화산 플롯(volcano plot)과 행별 z-점수 정규화를 적용한 상위 40개 DEG의 히트맵(heatmap)으로 시각화하였습니다. 유전자 온톨로지(GO) 및 KEGG 풍부도 분석에는 보정된 p < 0.05를 사용하였습니다. 인간 유전자 주석 정보는 2025년 12월 Ensembl에서 확보하였습니다.
면역 침윤, 면역 요법 반응 예측 및 약물 민감도 추론
ImmuneScore, StromalScore 및 ESTIMATEScore를 포함한 종양 미세환경 점수는 ESTIMATE를 사용하여 계산되었습니다. 면역 세포 구성은 LM22 참조 세트(2025년 12월 5일 다운로드)와 1,000회의 순열을 이용한 CIBERSORT로 추론하였으며, 디콘볼루션 p < 0.05인 샘플만을 유지하였습니다. 그룹 간 비교는 SHMT2-high 및 SHMT2-low 종양 간에 수행되었습니다. SHMT2와 면역 관문 관련 유전자 사이의 Spearman 상관관계는 상관 행렬로 시각화하였습니다. Immunophenoscores는 TCIA에서 얻었으며, 면역 요법 반응성의 보완적 예측을 위해 TIDE를 사용하였습니다. 약물 민감도는 IC50 값을 추정하기 위해 2023년 12월 GDSC 릴리스로 학습된 oncoPredict를 사용하여 추론하였습니다. 그룹 간 차이 분석에는 Wilcoxon 검정을 사용하였고, 연속 변수 간의 연관성 분석에는 Spearman 상관관계를 사용하였습니다.
LUAD의 단일 세포 RNA-seq 분석
단일 세포 전사체 데이터19 2025년 12월 20일에 Gene Expression Omnibus에서 다운로드하여 분석하였다. 200~6,000개의 검출된 특성(feature)을 가진 세포와 < 미토콘드리아 전사체의 10%를 유지하였다. 카운트 데이터는 스케일 인자 10,000의 LogNormalize를 사용하여 정규화하였으며, 상위 2,000개의 가변 유전자를 선택하고 모든 유전자를 스케일링하였다. 주성분 분석에는 처음 20개 성분을 사용하였고, UMAP에는 1~20차원을 사용하였으며, 클러스터링에는 0.5의 해상도를 적용하였다. 세포 유형은 Human Primary Cell Atlas 참조 데이터를 사용하여 주석을 달았다. 종양 샘플과 정상 샘플 간의 세포 유형 비율을 비교하였으며, Spearman 상관관계 행렬을 생성하였다. 주석이 달린 세포 유형 전반에 걸쳐 SHMT2 분포를 조사하였다. 세포 주기 상태는 cyclone을 사용하여 추론하였으며, 릿지 플롯(ridge plot)으로 시각화하였다.
세포 배양
BEAS-2B, H1299 및 A549 세포를 다음 조건에서 배양하였다. 37 °C 5% CO2로 설정된 습윤 배양기에서2 및 약 95%의 상대 습도 조건에서, 다음의에 명시된 배지와 보충제를 사용하여 재료 목록.
정량적 실시간 역전사 PCR (RT-qPCR)
페놀 기반의 RNA 추출 시약을 사용하여 총 RNA를 추출하였다. 추출된 RNA는 역전사 마스터 믹스를 사용하여 cDNA로 역전사되었다. 역전사는 20 µL 시스템으로 진행되었으며, 42 °C에서 2분간 genomic DNA 제거, 50 °C에서 15분간 역전사, 85 °C에서 5초간 반응 종결 단계를 거쳤다. 정량적 PCR은 DNA 결합 염료 기반의 qPCR 마스터 믹스를 사용하여 실시간 PCR 시스템에서 수행하였으며, 95 °C에서 3분간 가열한 후 95 °C에서 10초, 60 °C에서 30초의 과정을 40 사이클 반복하였고, 마지막으로 95 °C에서 15초, 60 °C에서 60초, 95 °C에서 15초의 멜팅 커브 단계를 진행하였다. 모든 반응은 3반복으로 수행되었다. 상대적 발현량은 GAPDH를 하우스키핑 유전자로 하여 2−ΔΔCt 법으로 계산하였다. 프라이머 스톡 용액은 2중 증류수에서 10 µM 농도로 제조하여 -20 °C의 암소에 보관하였다. 프라이머 서열은 부록 표 3에 제공되어 있다.
웨스턴 블로팅
전체 세포 단백질은 얼음 위에서 30분 동안 radioimmunoprecipitation assay 버퍼를 사용하여 추출한 후, 4 °C에서 12,000 x g로 15분간 원심분리하였습니다. 단백질은 12% sodium dodecyl sulfate-polyacrylamide gel electrophoresis로 분리하여 0.22 µm polyvinylidene fluoride 막으로 전이시켰습니다. 막을 0.1% Tween 20이 포함된 Tris-buffered saline (TBST) 내의 5% (w/v) 무지방 우유로 실온에서 2시간 동안 블로킹한 후, 5% 무지방 우유-TBST에 희석한 anti-SHMT2 (1:1,000) 및 anti-GAPDH (1:2,000) 1차 항체와 함께 4 °C에서 하룻밤 동안 배양하였습니다. TBST (20 mM Tris-HCl, 150 mM NaCl, 0.1% Tween-20)로 각각 8분씩 3회 세척한 후, horseradish-peroxidase-접합 2차 항체 (1:5,000)와 함께 실온에서 1시간 동안 배양하였습니다. 신호는 용액 A와 B를 동일한 부피로 혼합하여 준비한 enhanced chemiluminescence 기질을 사용하여 실온의 암소에서 2분간 배양한 후, chemiluminescence 이미징 시스템으로 캡처하였습니다.
HPA 면역조직화학 염색 검증
정상 폐 조직과 LUAD에서의 SHMT2 단백질 발현 패턴을 HPA를 사용하여 평가하였습니다. HPA에서 “SHMT2”를 검색하였으며, 비교를 위해 대표적인 면역조직화학(IHC) 이미지와 관련 병리 주석을 다운로드하였습니다. 항체 특이성으로 인한 편향을 최소화하기 위해 HPA에서 검증 수준이 더 높은 항체를 우선적으로 선택하였습니다. 가능한 경우, 여러 항체(HPA020543 및 HPA020549)의 IHC 결과를 상호 참조하였습니다.
LUAD 세포 내 SHMT2 넉다운
LUAD에서 SHMT2의 종양 세포 내재적 역할을 조사하기 위해, shRNA를 사용하여 H1299 및 A549 세포에서 SHMT2 넉다운을 수행하였다. shRNA는 H1 프로모터 구동 및 puromycin 선택 가능 렌티바이러스 벡터에 의해 운반되었으며, 바이러스 제작 과정에서 패키징 플라스미드가 공동 형질전환되었다. sh-SHMT2는 인간 SHMT2 코딩 영역을 표적으로 하였고, sh-NC는 스크램블 음성 대조군으로 사용되었다. 준비된 바이러스 스톡의 타이터는 ≥ 1 x 10⁸ transducing units/mL였으며 -80 °C에서 보관되었다. 세포에 재료 표에 기술된 준비된 sh-SHMT2 또는 sh-NC 렌티바이러스 입자를 감염시켰다. 48시간 후, RT-qPCR 및 웨스턴 블로팅을 통해 넉다운 효율을 평가하였다. SHMT2 침묵이 확인된 세포만을 증식, 이동 및 콜로니 형성 분석에 사용하였다.
세포 증식 분석
CCK-8 분석법을 사용하여 세포 증식을 평가하였다. 형질전환된 H1299 및 A549 세포를 96-well 플레이트에 well당 5 x 10³ cells의 밀도로 6반복 하여 분주하였다. 1, 2, 3, 4, 5일차에 각 well에 10 µL의 CCK-8 시약(배양액 부피의 10%)을 첨가하고 37 °C에서 2 h 동안 배양하였다. 450 nm에서 흡광도를 측정하여 세포 생존율 지표로 사용하였다.
상처 치유 분석
세포 이동능은 상처 치유 분석(wound-healing assay)을 통해 평가하였다. 형질전환된 H1299 및 A549 세포를 6-well plate에 분주하고 90–95% 밀도로 배양하였다. 멸균된 200 µL 피펫 팁을 사용하여 직선형 상처를 만들고, 탈락한 세포는 인산염 완충 식염수(phosphate-buffered saline)로 부드럽게 세척하여 제거하였다. 이후 세포를 무혈청 또는 저혈청 배지에서 유지하였으며, 도립 현미경을 사용하여 0 h 및 24 h 시점의 상처 부위를 촬영하였다. 상처 폐쇄 정도는 재료 표(Table of Materials)에 기재된 이미지 분석 소프트웨어를 사용하여 정량화하였으며, 초기 상처 면적 대비 감소 백분율로 계산하였다.
콜로니 형성 분석
군락 형성 분석을 위해, 형질전환된 H1299 및 A549 세포를 웰당 800 cells의 밀도로 6-well plates에 분주하고, 배양 기간 동안 현미경으로 모니터링하며 가시적인 군락이 형성될 때까지 약 10–14일 동안 배양하였다. 군락은 실온에서 4% paraformaldehyde로 30분 동안 고정하고, 실온에서 0.1% crystal violet으로 15분 동안 염색하였다. 50 cells 이상의 세포를 포함하는 군락을 광학 현미경 하에서 계수하였다.
in vitro 실험을 위한 통계 분석
모든 in vitro 실험은 최소 3회 독립적으로 수행되었습니다. 데이터는 평균 ± 표준 편차로 표시되었습니다. 두 집단 간의 비교에는 Student's t-test를 사용하였으며, p < 0.05인 경우를 통계적으로 유의미한 것으로 간주하였습니다.
결과
조직 대사체학 연구 결과, LUAD에서 광범위한 대사 재구성(metabolic remodeling)이 나타났으며, 특히 글리신 관련 경로가 현저하게 농축된 것으로 밝혀졌다
LUAD 환자 23명의 짝지은 종양 및 인접 정상 폐 조직을 direct iEESI-MS로 분석하였으며, 환자 특성 및 차이 대사체 주석은 Supplementary Table 1 및 Supplementary Table 2에 제공되어 있습니다. log2 정규화 후, OPLS-DA는 종양과 정상 대사 프로파일 간의 명확한 분리를 보여주었습니다 (R2X = 0.824, R2Y = 0.968, Q2 = 0.757) (Figure 1A). 모델의 신뢰성은 200회 순열 검사(permutation testing)를 통해 추가적으로 입증되었으며, 절편값은 R2 = 0.789 및 Q2 = −0.451이었습니다 (Figure 1B). 변수 중요도 투영(VIP) > 1, |log2(FC)| > 0.58, 그리고 p < 0.05라는 사전 설정 기준을 사용하여 45개의 차이 m/z 피처를 식별하였습니다 (Figure 1C). MS/MS 획득 및 HMDB 주석을 통해 glycine, serine 및 butanone을 포함한 6가지의 변화된 내인성 대사체를 도출하였습니다 (Supplementary Table 2). KEGG 풍부도 분석 결과 11개의 경로가 확인되었으며, 그 중 glycine, serine 및 threonine 대사가 가장 두드러졌고 (Figure 1D), 이는 LUAD에서 glycine 관련 대사 재구성이 일어남을 시사합니다.
TCGA-LUAD 데이터는 종양 내 SHMT2의 상향 조절을 확인하며, 높은 발현이 불량한 예후와 연관됨을 보여준다
SHMT2는 네 가지 기준의 수렴을 통해 우선순위로 선정되었습니다. 해당 기준은 SGOC 대사의 미토콘드리아 진입점에 직접적으로 위치한다는 점, TCGA-LUAD에서 종양 관련 상향 조절이 유의미하게 나타난다는 점, 전체 생존율과의 연관성, 그리고 실험적 섭동에 적합하다는 점입니다. TCGA-LUAD RNA-seq 데이터에 따르면, 종양 조직의 SHMT2 log2(FPKM + 1) 발현량이 정상 폐 조직보다 유의미하게 높게 나타났습니다.그림 2A). 중앙값 기준점(median cutoff)을 이용한 Kaplan-Meier 분석 결과, SHMT2의 고발현은 더 낮은 전체 생존율과 연관이 있는 것으로 나타났다(그림 2B). 탐색적 임상병리학적 분석 결과, 종양 단계 및 림프절 상태와의 연관성이 추가적으로 시사되었습니다 (그림 2C), 한편 시간 의존적 ROC 분석 결과 AUC 값이 도출되었다 > 1, 3, 5년 시점에서 0.70 (그림 2D).
SHMT2 고발현 종양은 세포 주기 진행 및 SGOC 대사 축이 풍부한 전사 프로그램을 나타낸다
SHMT2와 관련된 생물학적 프로그램을 규명하기 위해, 차등 발현 분석 전 TCGA-LUAD 종양을 SHMT2 발현 값의 중앙값을 기준으로 SHMT2-high 그룹과 SHMT2-low 그룹으로 나누었습니다(그림 3A). 상위 40개 차등 발현 유전자의 히트맵은 그룹별로 뚜렷한 발현 패턴을 보여주었습니다(그림 3B). GO 농축 분석 결과, 세포 주기 진행, 염색체 분리 및 유사분열(그림 3C)이 확인되었으며, 이는 SHMT2-high 증식성 전사 표현형을 설명하는 분석적 근거가 되었습니다. KEGG 농축 분석에서도 글라이신, 세린 및 트레오닌 대사가 강조되었으며(그림 3D), 이는 SHMT2의 단독 변화가 아니라 SGOC와 관련된 전사가 조율되어 일어났음을 나타냅니다.
높은 SHMT2 발현은 면역 결핍 미세환경, 예측된 면역요법 효능의 감소 및 뚜렷한 약물 민감도 패턴과 연관이 있다
ESTIMATE를 이용한 종양 미세환경 프로파일링 결과, SHMT2 고발현군에서 ImmuneScore와 StromalScore 값이 더 낮게 나타났습니다 (p < 0.001) (그림 4A). CIBERSORT 디콘볼루션 분석에서는 기억 B 세포, 휴지기 기억 CD4 T 세포, 단핵구 및 휴지기 비만 세포의 비율은 더 낮았고, 활성화된 기억 CD4 T 세포와 여포 보조 T 세포의 비율은 더 높게 나타났습니다 (그림 4B). 상관관계 분석을 통해 SHMT2가 BTLA, TNFSF15, CD28과는 양의 상관관계를, CD160 및 TNFSF14와는 음의 상관관계를 가짐을 확인하였습니다 (그림 4C). TIDE 및 TCIA 유래 면역표현형 점수(immunophenoscores)를 이용한 보완적인 전사체 기반 예측 결과, SHMT2 고발현 종양에서 예측된 면역요법 반응 이득이 더 낮았습니다 (p < 0.05) (그림 4D). 이러한 추정치는 실제 임상 치료를 받은 LUAD 코호트에서 도출된 것이 아니므로, 실제 치료 내성을 입증하는 것은 아닙니다.
약물 민감도는 실험적으로 측정하지 않고 계산적으로 추론하였습니다. SHMT2-고발현 종양은 glycogen synthase kinase-3 억제제와 selumetinib에 대해 예측된 IC50 값이 더 낮았으나, talazoparib 및 PLK1 억제제에 대한 예측 민감도는 더 낮았습니다(그림 4E–H). cytarabine, irinotecan, palbociclib을 포함한 9가지 추가 약제에 대해 예측 민감도가 감소한 결과는 부록 그림 1A–I에 나타나 있습니다. 이러한 결과는 후보 가설이며 임상적 또는 약리학적 효능을 입증하는 것은 아닙니다.
단일 세포 분석을 통해 LUAD의 뚜렷한 세포 구성이 밝혀졌으며, B 세포가 SHMT2를 발현하는 주요 세포군으로 확인되었습니다
종양 미세환경 내에서 SHMT2의 세포 분포를 조사하기 위해 LUAD 단일 세포 RNA-seq 데이터를 분석하였습니다. UMAP 클러스터링을 통해 B 세포, 혈관 내피 세포, 상피 세포, T 세포 및 기타 주요 구획을 식별하였습니다(그림 5A). 세포 유형의 비율은 종양 조직과 인접 정상 조직 간에 차이가 있었으며(그림 5B–C), B 세포와 T 세포의 비율은 양의 상관관계를 보였습니다(p < 0.001) (그림 5D). SHMT2 발현은 B 세포 구획에서 상대적으로 풍부하게 나타났으나, 상피 세포에서도 검출되었습니다(그림 5E). 전사체 검출만으로는 세포 기능이나 악성 상태를 확정할 수 없으므로, 이러한 결과는 국소화 가설로 해석됩니다. SHMT2의 종양 세포 내재적 역할은 LUAD 세포주에서 별도로 조사되었습니다.
단일 세포 세포 주기 분석은 세포 유형별로 정규화된 G1, S 및 G2/M 점수를 계산하여 수행되었습니다. G1 점수는 0 근처에 집중된 반면, S 및 G2/M 점수는 더 넓은 분포를 보였습니다(부록 그림 2) 및 뚜렷한 세포 유형의 이질성(그림 5F). 이러한 결과는 LUAD 미세환경 내에 증식 상태의 이질성이 존재함을 나타내며, 벌크 GO/KEGG 분석에서 확인된 세포 주기 및 유사분열 시그니처와 일치합니다.
실험적 검증을 통해 SHMT2의 과발현을 확인하였으며, SHMT2 넉다운이 LUAD 세포의 악성 표현형을 억제함을 입증하였다
생물정보학적 분석 결과를 검증하고 SHMT2의 종양 세포 내재적 역할을 평가하기 위해, 먼저 정상 기관지 상피 세포(BEAS-2B)와 LUAD 세포주(H1299 및 A549)에서 발현을 조사하였으며, 이는 벌크 TCGA 데이터 및 단일 세포 분석의 상피 세포에서 검출된 결과와 일치하였습니다(그림 5E). RT-qPCR 결과, BEAS-2B 세포보다 H1299 및 A549 세포에서 SHMT2 mRNA 수준이 더 높게 나타났으며(그림 6A), 웨스턴 블로팅을 통해 더 높은 단백질 발현을 확인하였습니다(그림 6B–C). 대표적인 HPA 면역조직화학 염색 이미지 또한 정상 폐 조직보다 LUAD에서 SHMT2 염색이 더 강하게 나타남을 보여주었습니다(그림 6D). LUAD에서 SHMT2의 생물학적 기능을 추가로 조사하기 위해, shRNA를 사용하여 H1299 및 A549 세포에서 SHMT2를 억제하였습니다. RT-qPCR 분석 결과, 두 세포주 모두에서 sh-NC 군에 비해 sh-SHMT2 군의 SHMT2 mRNA 발현이 현저히 감소했음을 확인하였습니다(그림 6E). 이와 일관되게, 웨스턴 블로팅을 통해 넉다운 후 SHMT2 단백질 발현이 효과적으로 하향 조절되었음을 입증하였습니다(그림 6F–G).
기능 분석 결과, SHMT2 넉다운은 LUAD 세포의 악성 표현형을 유의하게 저해하는 것으로 나타났다. CCK-8 분석 결과, SHMT2를으로 유전자 침묵을 유도했을 때 H1299 및 A549 세포 모두의 증식 능력이 현저히 억제되었으며, 시간이 지남에 따라 그 차이가 더욱 뚜렷해졌다(그림 6H). 상처 치유 분석(Wound-healing assay)을 통해 SHMT2 결핍이 대조군 세포에 비해 두 LUAD 세포주의 이동 능력을 유의하게 감소시켰음을 추가로 확인하였다(그림 6I). 마찬가지로, 콜로니 형성 분석 결과 SHMT2 넉다운이 H1299 및 A549 세포의 클론 형성 잠재력을 유의하게 감소시켰음을 입증하였다(그림 6J). 종합적으로, 이러한 결과는 SHMT2가 LUAD 세포의 증식, 이동 및 콜로니 형성 능력을 촉진하며, LUAD에서 종양 형성 촉진 역할을 한다는 것을 시사한다.
데이터 가용성:
그림의 기초가 되는 데이터를 포함하여 이 연구의 결과물를 뒷받침하는 모든 원시 데이터는 Zenodo의 https://doi.org/10.5281/zenodo.20676134에서 공개적으로 이용 가능합니다.
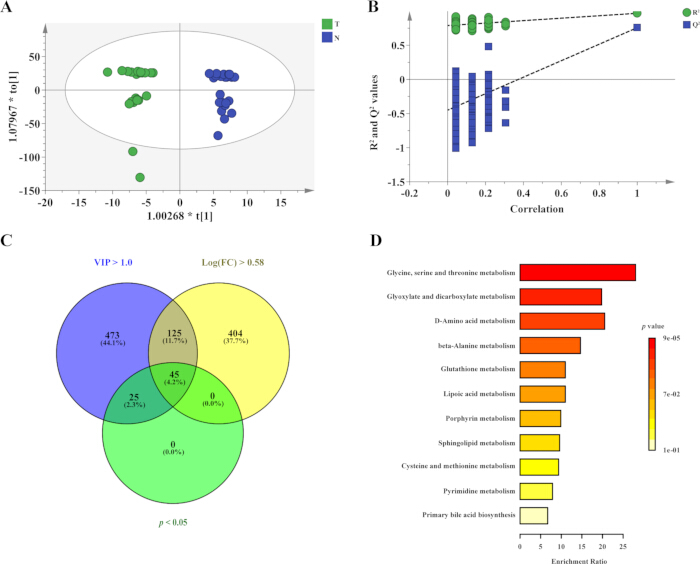
그림 1: 조직 메타볼로믹스를 통해 밝혀진 LUAD의 글리신 관련 대사 재프로그래밍. (A) LUAD 조직(T, 녹색)과 쌍을 이룬 인접 정상 조직(N, 청색) 사이의 분리를 보여주는 OPLS-DA score plot. (B) R2 및 Q2 값을 기반으로 OPLS-DA 모델의 안정성과 예측 성능을 평가하는 순열 검사. (C) VIP score > 1.0, |log2(FC)| > 0.58, p < 0.05로 스크리닝된 차별적 특징들의 중첩을 보여주는 벤 다이어그램. 45개의 특징이 유지되었다. (D) 차별적 대사물질에 대한 KEGG 기반 대사물질 세트 농축 분석. 막대 길이는 농축 비율을 나타내며, 색상 강도는 p 값을 나타낸다. 약어: VIP = variable importance in projection; FC = fold change. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
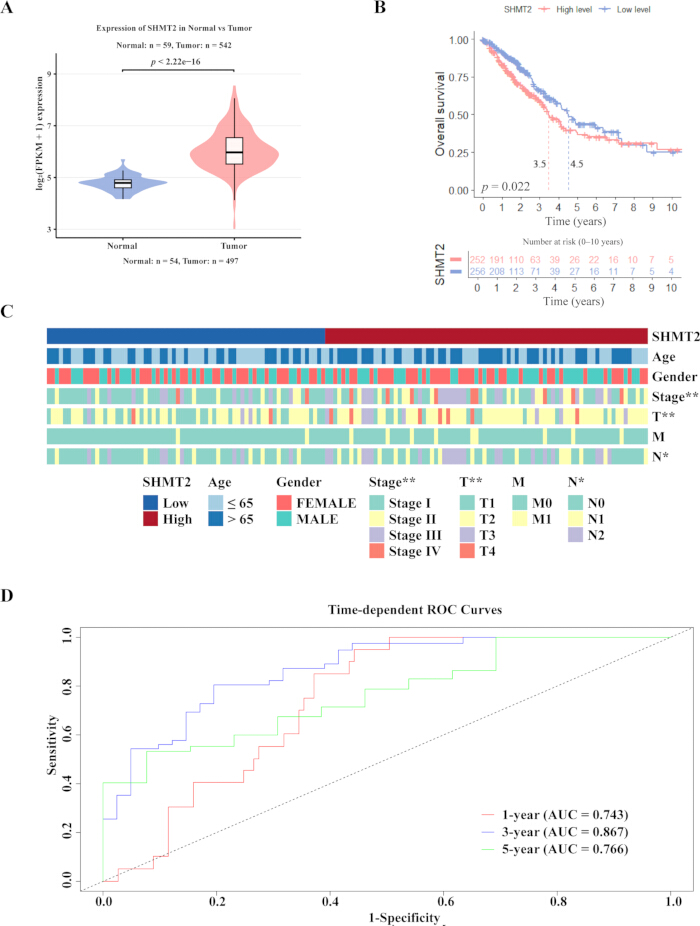
그림 2SHMT2는 LUAD에서 상향 조절되며 TCGA-LUAD에서 불량한 예후를 예측한다. (A) TCGA-LUAD RNA-seq 데이터를 사용하여 정상 폐 조직(n = 59)과 LUAD 종양(n = 542) 간의 SHMT2 발현을 비교한 바이올린 도표. (B) SHMT2 발현 값의 중앙값을 기준으로 나눈 환자들의 Kaplan-Meier 전체 생존 곡선. SHMT2 고발현군은 분홍색으로, SHMT2 저발현군은 파란색으로 표시됨. (C) 연령, 성별, 전체 병리학적 단계(1~4단계), 원발성 종양 단계(T1~T4), 지역 림프절 단계(N0~N2), 원격 전이 단계(M0~M1)를 포함한 SHMT2 발현과 임상병리학적 특성 간의 연관성을 보여주는 히트맵. *은 SHMT2 고발현 그룹과 SHMT2 저발현 그룹 간의 통계적으로 유의미한 차이를 나타냄 (*p < 0.05; **p < 0.01; 카이제곱 검정). (D) LUAD 환자의 1년, 3년 및 5년 전체 생존율을 예측하는 SHMT2 발현의 예후 성능을 평가한 시간 의존적 ROC 곡선. 해당 AUC 값은 패널에 표시됨. 약어: SHMT2 = serine hydroxymethyltransferase 2; FPKKM = fragments per kilobase of transcript per million mapped reads; ROC = 수신자 조작 특성 곡선; AUC = 곡선 아래 면적. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
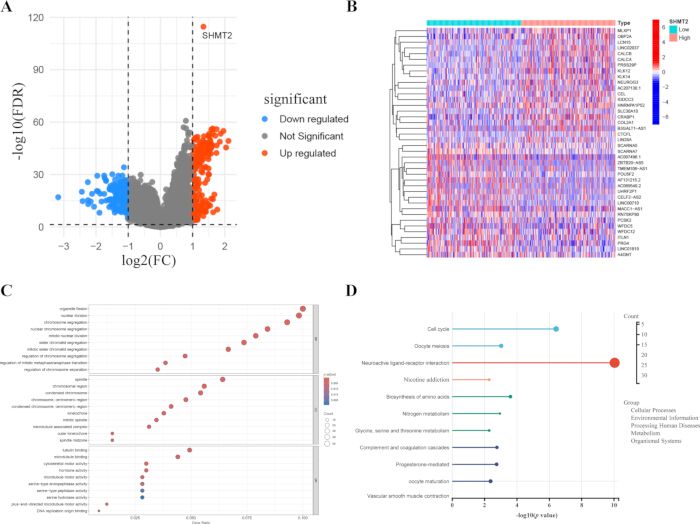
그림 3: SHMT2-고발현 vs SHMT2-저발현 종양의 전사체 프로파일링은 SGOC/일탄소 대사 및 증식 프로그램을 강조한다. (A) SHMT2-고발현 및 SHMT2-저발현 LUAD 종양 간의 차등 발현 유전자를 보여주는 볼케이노 플롯. 상향 조절된 유전자는 빨간색, 하향 조절된 유전자는 파란색, 유의미하지 않은 유전자는 회색으로 표시되었다. (B) 비지도 계층적 군집화를 적용한 대표적 DEG의 히트맵. (C) 차등 발현 유전자의 유전자 온톨로지(Gene Ontology) 농축 분석. 버블 크기는 유전자 수를 나타내고, 색상은 보정된 p 값을 나타내며, x축은 유전자 비율을 나타낸다. (D) 차등 발현 유전자의 KEGG 경로 농축 분석. 도트 크기는 유전자 수를 나타내며, x축은 −log₁₀(p 값)을 나타낸다. 약어: SHMT2 = serine hydroxymethyltransferase 2; FDR = false discovery rate; FC = fold change. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
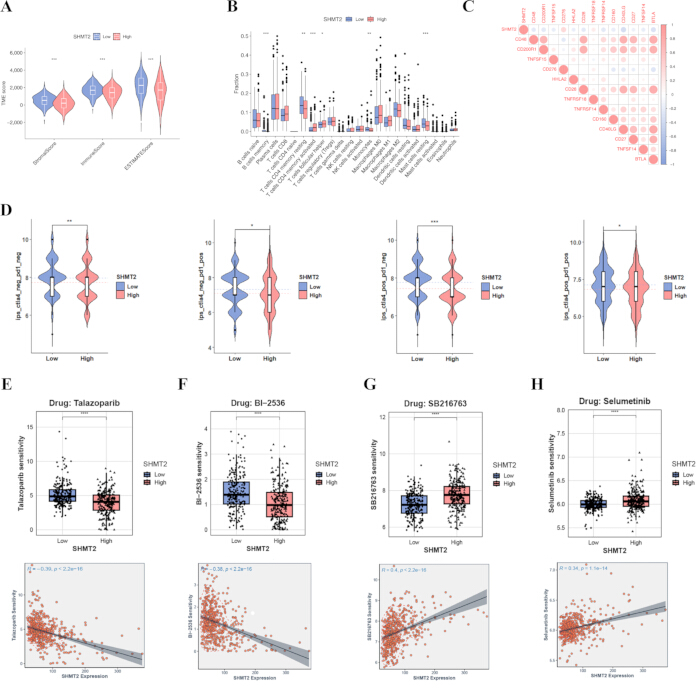
그림 4: SHMT2 발현은 종양 면역 환경, 예측된 면역요법 반응 및 약물 민감도와 연관이 있다. (A) SHMT2 고발현군과 저발현군 간의 TME 점수, ESTIMATE 점수, 기질 점수, 면역 점수 및 종양 순도 비교. (B) CIBERSORT로 추정한 SHMT2 저발현 종양과 고발현 종양 간의 면역 세포 침윤 비교. (C) SHMT2와 면역 관문 관련 유전자 간의 Spearman 상관관계 행렬. 원의 크기는 상관관계의 강도를 나타내며, 색상은 Spearman의 ρ (양수에서 음수까지)를 나타낸다. (D) 네 가지 면역 관문 억제 설정(CTLA4-/PD-1-, CTLA4-/PD-1+, CTLA4+/PD-1-, CTLA4+/PD-1+)에서의 면역표현형 점수 비교로, SHMT2 고발현 종양에서 예측된 이점이 감소함을 나타낸다. (E) SHMT2 고발현군과 저발현군에서의 Talazoparib에 대한 예측 민감도를 추정된 IC₅₀ 값(위)과 SHMT2 발현과 예측된 약물 민감도 간의 상관관계(아래)로 나타낸 결과. (F) SHMT2 고발현군과 저발현군에서의 BI-2536에 대한 예측 민감도를 추정된 IC₅₀ 값(위)과 SHMT2 발현과 예측된 약물 민감도 간의 상관관계(아래)로 나타낸 결과. (G) SHMT2 고발현군과 저발현군에서의 S63845에 대한 예측 민감도를 추정된 IC₅₀ 값(위)과 SHMT2 발현과 예측된 약물 민감도 간의 상관관계(아래)로 나타낸 결과. (H) SHMT2 고발현군과 저발현군에서의 Selumetinib에 대한 예측 민감도를 추정된 IC₅₀ 값(위)과 SHMT2 발현과 예측된 약물 민감도 간의 상관관계(아래)로 나타낸 결과. 약어: SHMT2 = serine hydroxymethyltransferase 2; TME = 종양 미세환경; ESTIMATE = Expression data를 이용한 악성 종양 조직 내 기질 및 면역 세포 추정; IC₅₀ = 반최대 억제 농도. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
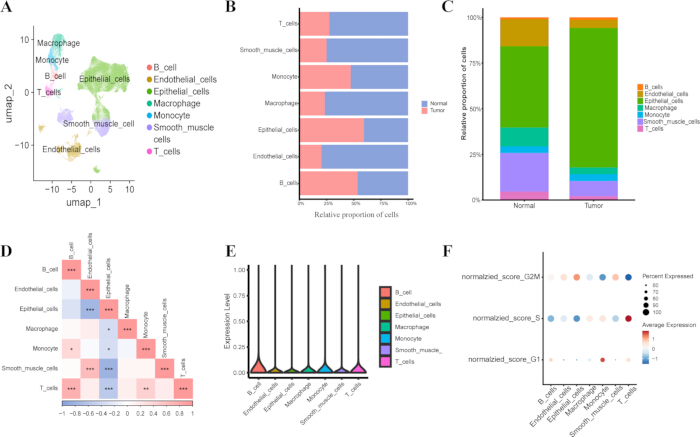
그림 5: 단일 세포 랜드스케이프를 통해 LUAD에서의 세포 구성 변화, SHMT2 발현 편향 및 세포 주기 이질성이 드러남. (A) LUAD 및 인접 정상 폐 조직에서 공개된 단일 세포 전사체를 주석 처리된 세포 유형별로 색상을 지정하여 UMAP으로 시각화함. (B) 정상 및 종양 샘플 내 세포 유형의 상대적 비율을 가로 누적 막대 그래프로 나타냄. (C) 전체 세포 구성을 세로 누적 막대 그래프로 나타냄. (D) 세포 유형 비율의 Spearman 상관관계 히트맵; 빨간색은 양의 상관관계를, 파란색은 음의 상관관계를 나타냄 (*p < 0.05, **p < 0.01, ***p < 0.001). (E) 주요 세포 유형별 SHMT2 발현량을 바이올린 플롯으로 나타냄. (F) 확인된 세포 유형별 G1-, S-, G2/M-기 세포 주기 점수를 도트 플롯으로 나타냄; 점의 크기는 세포의 백분율을, 색상은 평균 세포 주기 점수를 나타냄. 약어: UMAP = Uniform Manifold Approximation and Projection. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
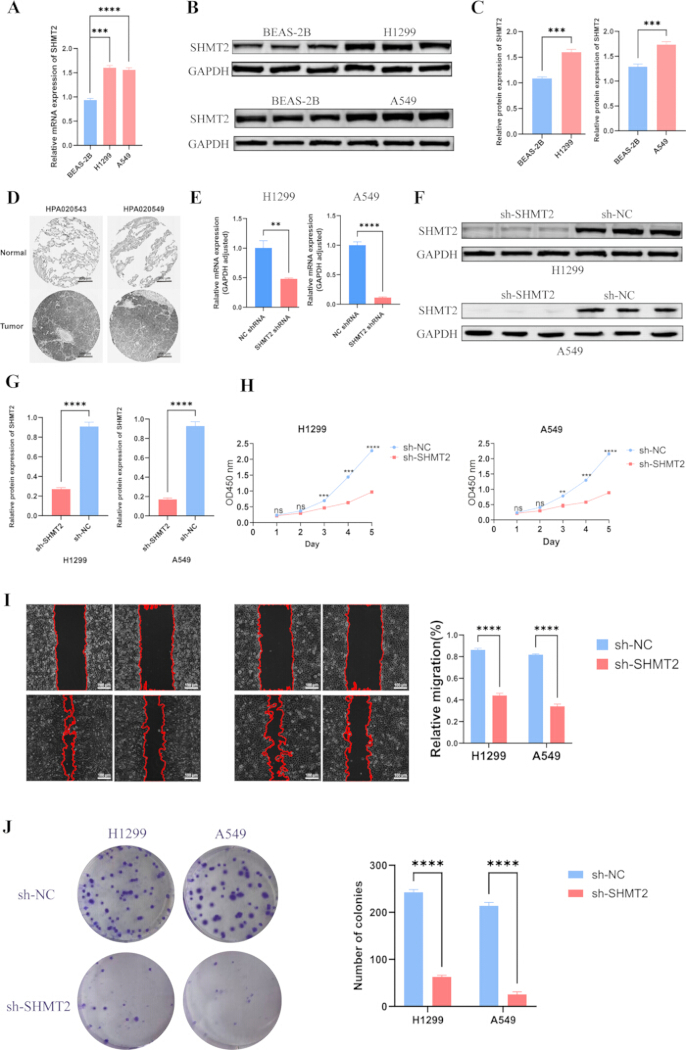
그림 6: LUAD 세포에서 SHMT2 발현의 실험적 및 조직학적 검증과 SHMT2 녹다운의 기능적 효과. (A) 정상 기관지 상피 세포(BEAS-2B) 및 LUAD 세포주(H1299 및 A549)에서의 SHMT2 mRNA 발현에 대한 RT-qPCR 분석. (B) GAPDH를 로딩 컨트롤로 사용한 BEAS-2B, H1299 및 A549 세포의 SHMT2 단백질 발현에 대한 Western blot 분석. (C) BEAS-2B 대비 H1299 및 A549 세포에서 GAPDH로 정규화된 SHMT2 단백질 발현의 밀도 측정 정량화. (D) HPA의 항체 HPA020543 및 HPA020549를 사용하여 정상 폐 및 LUAD 조직에서 SHMT2의 대표적인 면역조직화학(IHC, x20) 이미지. (E) sh-SHMT2 또는 sh-NC가 트랜스펙션된 H1299 및 A549 세포에서 SHMT2 녹다운 효율의 RT-qPCR 검증. (F) H1299 및 A549 세포에서 SHMT2 녹다운 후 SHMT2 단백질 발현의 Western blot 분석. (G) SHMT2 녹다운 후 GAPDH로 정규화된 SHMT2 단백질 수준의 밀도 측정 정량화. (H) H1299 및 A549 세포의 세포 증식에 미치는 SHMT2 녹다운의 영향을 보여주는 Cell Counting Kit-8 (CCK-8) 분석. (I) H1299 및 A549 세포에서 SHMT2 녹다운 후 감소된 이동 능력을 보여주는 상처 치유 분석(Wound-healing assay, x200); 오른쪽 패널은 상대적 이동의 정량화를 보여줌. (J) H1299 및 A549 세포에서 SHMT2 녹다운 후 감소된 클론 형성 능력을 보여주는 콜로니 형성 분석; 오른쪽 패널은 콜로니 수의 정량화를 보여줌. 데이터는 최소 3회의 독립적인 실험으로부터 얻은 평균 ± SD로 표시됨. *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. 약어: sh-NC = short hairpin RNA 음성 대조군; sh-SHMT2 = SHMT2를 표적으로 하는 short hairpin RNA. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
보충 그림 1: TCGA-LUAD에서 SHMT2 발현은 예측된 약물 민감도와 역상관 관계를 보인다. 중앙값 컷오프(median cutoff)로 정의된 SHMT2-low 및 SHMT2-high 종양 간에 TCGA-LUAD 샘플의 예측 약물 반응을 추론하여 비교하였다. 각 화합물에 대해, 상단 패널은 IC50 (반최대 억제 농도) 기반 반응 점수(값이 낮을수록 예측 민감도가 높음을 나타냄)의 그룹별 차이를 보여주며, 하단 패널은 연속적인 SHMT2 발현과 예측 민감도 사이의 연관성을 적합된 선형 회귀선 및 95% 신뢰 구간과 함께 보여준다. 그룹 비교에는 양측 Wilcoxon 순위합 검정을 사용하였으며, 상관관계는 해당 p 값과 함께 Spearman's r로 표기하였다 (* p < 0.05, ** p < 0.01, *** p < 0.001). (A) Cytarabine. (B) GDC0810. (C) P22077. (D) Irinotecan. (E) AZD4547. (F) Palbociclib. (G) VE821. (H) I-BRD9. (I) Oxaliplatin.이 파일을 다운로드하려면 여기를 클릭하십시오.
부록 그림 2: 단일 세포 해상도에서 세포 유형별 세포 주기 단계 점수 분포의 릿지 플롯(Ridge plot) 시각화.릿지 플롯은 B 세포, T 세포, 상피 세포, 대식세포, 단핵구, 혈관 내피 세포 및 평활근 세포를 포함한 주요 세포 유형 전반의 정규화된 세포 주기 점수 분포를 보여준다. (A) G1기 점수. (B) S기 점수. (C) G2/M기 점수. 분포 모양과 정점 위치의 차이는 LUAD 미세환경 내 세포 집단 간의 증식 상태의 이질성을 나타낸다.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 1: 쌍 조직 대사체 분석에 포함된 LUAD 환자 23명의 비식별화된 임상 병리학적 특성. 변수에는 환자 번호, 성별, 연령, 원발 종양 단계(T), 국소 림프절 단계(N) 및 전체 병리학적 단계가 포함됩니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 2: LUAD와 쌍을 이룬 인접 정상 조직 간에 확인된 차이 대사체. 이 표는 각 차이 대사체에 대한 HMDB accession 번호, 대사체 이름, 분자식, VIP 점수, log₂(FC) 및 p 값을 나열합니다. 약어: HMDB = Human Metabolome Database; VIP = variable importance in projection; FC = fold change. 여기에서 이 파일을 다운로드하십시오.
보충 표 3: 정량적 역전사 PCR (RT-qPCR)에 사용된 프라이머 서열.이 표는 유전자 발현 분석에 사용된 표적 유전자, 프라이머 방향(정방향 또는 역방향) 및 프라이머 서열(5′–3′)을 나열합니다.이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
본 연구는 대사체학적 발견, 효소 우선순위 지정, 전사체학적 해석, 면역 문맥 평가, 단일 세포 국소화 및 종양 세포 기능 검증으로 구성된 순차적 프레임워크를 사용하였습니다. 분석 결과 LUAD에서 글리신 관련 및 SGOC 대사 리모델링이 확인되었으며, SHMT2가 불량한 예후 및 계산적으로 예측된 낮은 면역요법 이점과 연관되어 있음이 나타났습니다. 이러한 우선순위 지정 방식은 단일 오믹스 층에 의존하는 것보다 더 강력하지만, 면역 인과 기전을 입증하는 것은 아닙니다.
SHMT2는 세린을 글리신으로 전환하고 일탄소 단위(one-carbon units)를 생성하는 주요 미토콘드리아 진입점을 구성합니다. TCGA-LUAD 분석 결과, 종양 관련 SHMT2 상향 조절이 나타났으며, 높은 발현 수준이 낮은 생존율 및 부정적인 임상 병리학적 특징과 연관되어 있음이 밝혀졌습니다. 이러한 결과는 SHMT2를 암세포의 생존, 증식, 침습 및 치료 내성과 연관시킨 연구들과 일치합니다20,21,22,23. 추가적인 연구를 통해 SHMT2와 후성유전학적 조절 사이의 연결 고리가 확인되었으며, 이는 선택적 일탄소 효소 억제제 개발의 동기가 되었습니다24,25. 차등 발현 및 풍부도 분석(enrichment analyses)을 통해 SHMT2가 단순한 개별 유전자 수준의 변화가 아니라, 조정된 SGOC 및 세포 주기 프로그램 내에 위치한다는 것이 추가로 밝혀졌습니다. 따라서 대사체 경로 풍부도와 SHMT2 관련 전사 사이의 일치성은 후보 우선순위 선정을 강화하지만, 오믹스 층 전반에 걸쳐 상관관계 수준으로 남아 있습니다.
SHMT2 고발현 종양과 면역 결핍 환경 사이의 연관성은 상호 배타적이지 않은 세 가지 경로를 통해 설명될 수 있습니다. 첫째, 세린, 글리신, 엽산 결합 1탄소 단위 및 메티오닌 회로 기질에 대한 종양 세포의 수요 증가가 영양소 배분을 변화시켜 인접 림프구의 대사 적응도를 저하시킬 수 있습니다. 둘째, SHMT2에 의해 지원되는 NADPH, 글루타치온 및 뉴클레오티드 생성은 산화 및 영양 스트레스 하에서 종양 세포의 생존력을 높이며, 이로 인해 미세환경으로 방출되는 스트레스 관련 신호를 변화시킬 수 있습니다. 셋째, 1탄소 흐름과 S-adenosylmethionine 가용성은 악성 세포와 면역 세포 모두에서 메틸화 의존적 프로그램에 영향을 줄 수 있습니다26,27,28,29. 이러한 메커니즘은 생물학적으로 타당하지만, 본 벌크 및 단일 세포 분석에서는 국소 대사물질, 사이토카인 분비 또는 면역 세포 기능을 직접적으로 측정하지 않았습니다. 따라서 SHMT2 고발현 종양에서 TIDE/TCIA가 예측한 낮은 이득은 SGOC 활성과 면역 결핍을 연결하는 가설로 해석되어야 하며, SHMT2가 임상적 면역요법 내성을 유발한다는 증거로 보아서는 안 됩니다.
단일 세포 분석을 통해 추가적인 구조적 해상도를 얻을 수 있습니다. 공개된 단일 세포 RNA-seq 데이터를 분석한 결과, 정상 폐 조직 대비 종양 조직에서 세포 구성의 변화가 나타났으며, B 세포와 T 세포 비율 사이의 양의 상관관계가 확인되어 이는 조율된 적응 면역과 일치하는 결과였습니다30. SHMT2 발현은 B 세포에서 상대적으로 풍부하게 나타났으나 상피 세포에서도 검출되었습니다. B 세포와 3차 림프 구조(tertiary lymphoid structures)가 항원 제시, 국소 항체 반응 및 면역 관문 억제제에 대한 반응을 지원할 수 있다는 점에서 이러한 관찰 결과는 유의미합니다18,31,32,33. 하지만 이는 책임 있는 B 세포 서브타입을 식별하거나 B 세포의 SHMT2가 유익한지 혹은 해로운지를 입증하는 것은 아닙니다. 벌크 분석 및 단일 세포 분석 결과 또한 세포 주기 활성으로 수렴되었습니다. SHMT2-high 종양에서는 유사분열 및 염색체 분리 관련 용어들이 풍부하게 나타났으며, S기 및 G2/M기 점수는 세포 유형별로 다양하게 나타났습니다. 미토콘드리아의 일탄소 대사가 뉴클레오타이드 전구체를 공급하기 때문에, 이러한 발견은 SHMT2 관련 SGOC 활성과 증식 수요 사이의 타당한 연결 고리를 뒷받침합니다.
Xi 등은 대식세포의 에페로사이토시스(efferocytosis)를 강화하고, M2-유사 분극화를 촉진하며, 식도암을 면역 억제 방향으로 재구성하는 TP63-RAC2 프로그램을 확인하여34, 종양-대식세포 간 통신의 직접적인 사례를 제시하였습니다. Jiang 등은 췌장암의 SATB2가 종양 세포의 증식 및 이동뿐만 아니라 T 세포 독성의 변화와 연관되어 있음을 밝혀35, 종양 내재적 효과와 면역 효과가 동시에 나타남을 보여주었습니다. 반면, Liu 등은 TRIM29가 NEFL 분해 및 PI3K/AKT 활성화를 통해 교모세포종을 유도한다는 것을 보여주었으며36, 이러한 주로 종양 내재적인 메커니즘은 모든 부정적인 면역 연관성을 사이토카인 신호 전달의 탓으로 돌리는 것에 대해 경고합니다. Zhai 등은 간세포암에서 WDR54에 의해 매개되는 NF-κB 신호 전달의 증폭을 확인하여37, 악성 행동을 미세환경 신호와 결합할 수 있는 사이토카인 반응성 염증 노드를 강조하였습니다. Yin 등은 공동 배양 및 in vivo 실험을 통해 두경부암에서 PLAU가 신경성장인자 관련 신경주위 상호작용과 협력한다는 것을 보여줌으로써38, 수용성 및 세포 외 인자들이 비면역성 기질 간의 상호작용을 조직할 수 있음을 입증하였습니다. 마지막으로, Liu 등은 사이토카인 유도 JAK/STAT 신호 전달의 맥락 의존적인 이중적 역할을 요약하였는데, 지속적인 IL-6/STAT3 및 IFN 관련 신호 전달은 PD-L1 발현, 억제성 골수성 상태 및 T 세포 소진을 촉진할 수 있는 반면, 적절한 시기에 이루어지는 신호 전달은 항원 제시와 항종양 면역에도 필요합니다39. 종합적으로, 이러한 연구들은 SGOC 재프로그래밍이 사이토카인, 대식세포, 기질 또는 림프구 상태를 수정하는지 테스트하기 위한 생물학적 근거를 제공하지만, LUAD에서 SHMT2 특이적 사이토카인 회로를 확립한 연구는 없습니다. 따라서 본 TIDE/TCIA 결과는 메커니즘 연구를 위한 검증 가능한 방향을 정의합니다.
산화환원 조절은 특히 유의미한 기전적 맥락을 제공합니다. DeNicola 등은 비소세포폐암에서 NRF2가 ATF4를 통해 PHGDH, PSAT1 및 SHMT2를 조절하여 글루타치온 및 뉴클레오타이드 생성을 지원하며, 이러한 프로그램이 불량한 예후와 연결됨을 입증하였습니다40. 보다 최근에 Zhang 등은 HER2 억제제에서 생존한 식도선암세포에 NRF2가 축적된다는 것을 보여주었습니다. NRF2 녹다운은 lapatinib의 세포독성을 증가시킨 반면, 지속적인 NRF2 발현은 민감도를 감소시키고 NRF2 의존성을 생성하였습니다41. 후자의 연구에서는 SHMT2 억제를 직접적으로 테스트하지 않았으나, 이러한 발견들을 종합해 볼 때 SHMT2가 NRF2가 지원하는 산화환원 및 생합성 프로그램의 일부로 기능할 수 있음을 시사합니다. LUAD의 경우, KEAP1/NFE2L2 상태를 층화하고 SHMT2 섭동이 NRF2 활성 모델에서 선택적으로 활성산소종을 증가시키거나 치료 민감도를 회복시키는지 확인함으로써 이 가설을 검증해야 합니다.
대사체학 단독 또는 전사체학 단독 분석과 비교하여, 통합 워크플로우는 조직 수준의 대사체 신호를 경로 관련 유전자 발현, 세포 유형 분포 및 섭동 표현형과 연결합니다. 이러한 설계는 후보 물질의 우선순위 지정을 개선하며 공개된 전사체 또는 단일 세포 코호트로 대체하여 확장할 수 있지만, 각 계층은 서로 다른 변동성 요인을 도입합니다. 적출 후 지연은 소분자 풍부도를 변화시킬 수 있으므로 빠르고 균일한 조직 동결이 매우 중요합니다. 질량 분석기의 드리프트, 불안정한 총 이온 신호 또는 낮은 순열 성능이 나타나면 대사체 해석 전 재교정, 신호 품질 검토 및 재분석을 수행해야 합니다. 벌크 분석에는 사전에 지정된 그룹화 및 필터링 임계값이 필요하며, 단일 세포 분석 결론은 적절한 품질 관리 및 클러스터링 해상도 설정 범위 내에서 검증되어야 합니다. In vitro 검증을 위해서는 표현형 분석 전 일치하는 세포 계대, 유사한 합류도, 균일한 상처 너비 및 SHMT2 넉다운 확인이 필요합니다. 이러한 체크포인트는 재현성을 높여주지만 코호트, 플랫폼 또는 모델 특이적 효과를 완전히 제거하지는 못합니다.
해석을 제한하는 몇 가지 한계점이 있습니다. 조직 대사체학 코호트의 규모가 작았으며, 확인된 대사체들에 대한 표적 정량 검증이 필요합니다. 면역요법의 이점과 약물 민감도는 ICI 치료 코호트나 약리학적 실험에서 직접 측정된 것이 아니라 전사체 기반 모델을 통해 추론되었습니다. 단일 세포 데이터셋은 B 세포에 편중된 SHMT2 발현을 시사하지만, B 세포의 하위 유형, 공간적 구성 또는 SHMT2 의존적 면역 기능까지는 규명하지 못했습니다. in vitro 실험을 통해 유전적 넉다운 후의 종양 세포 성장 및 이동 표현형은 확인되었으나, 사이토카인 매개 면역 기전이나 치료 안전성은 확립되지 않았습니다. 향후 연구에서는 종양을 KEAP1/NFE2L2 상태에 따라 층화하고, SGOC 유속과 사이토카인 분비를 정량화하며, SHMT2 섭동을 면역 공배양, 공간 프로파일링, 약리학적 선택성 연구 및 in vivo 검증과 결합하여 진행해야 합니다.
요약하자면, SHMT2는 LUAD에서 SGOC 대사 리모델링, 불량한 예후, 증식성 전사 프로그램, 면역학적으로 불리한 종양 환경, 그리고 전산 예측상 더 낮은 면역요법 반응성과 연관되어 있습니다. 단일 세포 분석 결과 B 세포 집단에서 SHMT2 발현이 상대적으로 풍부한 것으로 나타났으며, in vitro 넉다운은 LUAD 세포의 증식, 이동 및 클론 생성 성장을 감소시켰습니다. 이러한 결과는 SHMT2가 추가 검증이 필요한 후보 바이오마커임을 뒷받침하며, 대사-면역 상호작용 연구를 위한 테스트 가능한 프레임워크를 제공합니다.
공개 사항
저자들은 이해 상충 관계가 없음을 선언합니다.
감사의 글
저자들은 본 연구에 참여해 주신 환자분들과 그 가족분들께 감사드립니다. 또한, 데이터를 공개적으로 제공해 준 TCGA, GEO 및 HPA 데이터베이스 기여자분들께 감사를 표합니다. 본 연구는 Jiangxi Province의 Key Research and Development Program(grant no. 20223BBG71009)과 중국 국가 자연과학 재단(National Natural Science Foundation of China, grant nos. 81860379 및 82160410)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| A549 세포 | CCL-185 | ATCC | |
| anti-GAPDH 항체 | M1310-2 | Huaan Biotechnology | |
| anti-SHMT2 항체 | D197021 | Sangon Biotech | |
| BEAS-2B 세포 | CRL-9609 | ATCC | |
| Cell Counting Kit-8 (CCK-8) | K1018 | APExBIO | |
| 데이터베이스: TCGA / GDC | 2025-12-18 접속 | National Cancer Institute (NCI) | |
| 데이터베이스: GEO | 2025-12-20 접속 | NCBI | |
| 데이터베이스: HMDB | 2025-12-12 접속 | Human Metabolome Database | |
| 데이터베이스: KEGG | 2025-12-11 접속 | Kanehisa Laboratories | |
| 데이터베이스: Human Protein Atlas | Protein Atlas | ||
| 데이터베이스: GDSC | 2023-12 릴리스 | Sanger Institute | |
| 데이터베이스: Ensembl | 2025-12 | EMBL-EBI | |
| 데이터베이스: TCIA | 2025-12-10 접속 | The Cancer Immunome Atlas | |
| H1299 세포 (NCI-H1299) | CRL-5803 | ATCC | |
| HRP-접합 2차 항체 | D110087 | Sangon Biotech | |
| HiScript II Q Select RT SuperMix | KR116 | Tiangen Biotech | |
| LightCycler 480 System | 5015278001 | Roche | |
| 무지방 우유 | 일반 실험실 시약 | BD (또는 사용된 제품) | |
| PVDF 막, 0.22 µm | GVHP00010 (또는 일반 실험실 시약) | MilliporeSigma (또는 사용된 제품) | |
| R 패키지: pRoloc | 1.40.0 | Bioconductor | |
| R 패키지: TCGAbiolinks | 2.26.0 | Bioconductor | |
| R 패키지: survival | 3.4-0 | CRAN | |
| R 패키지: survminer | 0.4.9 | CRAN | |
| R 패키지: timeROC | 1.0.4 | CRAN | |
| R 패키지: DESeq2 | 1.38.1 | Bioconductor | |
| R 패키지: ggplot2 | 3.4.4 | CRAN | |
| R 패키지: pheatmap | 1.0.12 | CRAN | |
| R 패키지: clusterProfiler | 4.6.2 | Bioconductor | |
| R 패키지: org.Hs.eg.db | 3.16.0 | Bioconductor | |
| R 패키지: estimate | 1.0.13 | Bioconductor / GitHub | |
| R 패키지: CIBERSORT | 1 | (독립 실행형 R 스크립트) | |
| R 패키지: corrplot | 0.92 | CRAN | |
| R 패키지: TIDE | 0.3.0 | R 패키지 | |
| R 패키지: oncoPredict | 1.1.1 | CRAN / GitHub | |
| R 패키지: GEOquery | 2.66.0 | Bioconductor | |
| R 패키지: Seurat | 4.3.0 | CRAN | |
| R 패키지: SingleR | 1.10.0 | Bioconductor | |
| R 패키지: scran | 1.26.0 | Bioconductor | |
| SYBR Green qPCR Master Mix (Universal) | HY-K0501A | MedChemExpress (MCE) | |
| TRIzol Universal Reagent | DP424 | Tiangen Biotech |
참고문헌
- Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75(1):10-45.
- Lim ZF, Ma PC. Emerging insights of tumor heterogeneity and drug resistance mechanisms in lung cancer targeted therapy. J Hematol Oncol. 2019;12(1):134.
- Wang M, Herbst RS, Boshoff C. Toward personalized treatment approaches for non-small-cell lung cancer. Nat Med. 2021;27:1331-1340.
- Passaro A, et al. Managing resistance to immune checkpoint inhibitors in lung cancer: treatment and novel strategies. J Clin Oncol. 2022;40:598-609.
- Faubert B, Solmonson A, DeBerardinis RJ. Metabolic reprogramming and cancer progression. Science. 2020;368:eaaw5473.
- Wei S, et al. Targeting serine-glycine-one-carbon metabolism as a vulnerability in cancers. Biomark Res. 2023;11:48.
- Kao KC, Vilbois S, Tsai CH, Ho PC. Metabolic communication in the tumour-immune microenvironment. Nat Cell Biol. 2022;24(11):1574-1583.
- Wong C, Qian Y, Yu J. Interplay between epigenetics and metabolism in oncogenesis: mechanisms and therapeutic approaches. Oncogene. 2017;36:3359-3374.
- Xu M, Pei DS. Serine hydroxymethyltransferase 2: a novel target for human cancer therapy. Invest New Drugs. 2021;39:1671-1681.
- Zeng Y, et al. Roles of mitochondrial serine hydroxymethyltransferase 2 (SHMT2) in human carcinogenesis. J Cancer. 2021;12(19):5888-5894.
- Liberati FR, et al. RNA-mediated inhibition of mitochondrial SHMT2 impairs cancer cell proliferation. Cell Death Discov. 2025;11:369.
- Fu R, et al. SHMT proteins: an emerging set of serine hydroxymethyltransferase in cancer. Cell Signal. 2025;135:111977.
- Zhang Y, et al. SHMT2 promotes cell viability and inhibits ROS-dependent, mitochondrial-mediated apoptosis via the intrinsic signaling pathway in bladder cancer cells. Cancer Gene Ther. 2022;29(10):1514-1527.
- Wens M, et al. Metabolic control of BRISC-SHMT2 assembly regulates immune signalling. Nature. 2019;570:460-464.
- Ivashkiv LB. IFNγ: signalling, epigenetics and roles in immunity, metabolism, disease and cancer immunotherapy. Nat Rev Immunol. 2018;18:545-558.
- De Martino M, Rathmell JC, Galluzzi L, Vanpouille-Box C. Cancer cell metabolism and antitumour immunity. Nat Rev Immunol. 2024;24:654-669.
- Qi Y, et al. One-carbon metabolism shapes T cell immunity in cancer. Trends Endocrinol Metab. 2024;35:961-974.
- Huang D, et al. The single-cell immunogenomic landscape of B and plasma cells in early-stage lung adenocarcinoma. Cancer Discov. 2022;12:2545-2563.
- Dolgalev I, et al. Inflammation in the tumor-adjacent lung as a predictor of clinical outcome in lung adenocarcinoma. Nat Commun. 2023;14:6479.
- Han T, et al. Phosphorylated SHMT2 regulates oncogenesis through m6A modification in lung adenocarcinoma. Adv Sci (Weinh). 2024;11:e2307834.
- Lee GY, et al. Comparative oncogenomics identifies PSMB4 and SHMT2 as potential cancer driver genes. Cancer Res. 2014;74:3114-3126.
- Bernhardt S, et al. Proteomic profiling of breast cancer metabolism identifies SHMT2 and ASCT2 as prognostic factors. Breast Cancer Res. 2017;19:112.
- Yang G, Tan J, Guo J, Wu Z, Zhan Q. Exosome-mediated transfer of circ_0063526 enhances cisplatin resistance in gastric cancer cells via regulating the miR-449a/SHMT2 axis. Anticancer Drugs. 2022;33(10):1047-1057.
- Parsa S, et al. The serine hydroxymethyltransferase-2 (SHMT2) initiates lymphoma development through epigenetic tumor suppressor silencing. Nat Cancer. 2020;1:653-664.
- Cuthbertson CR, et al. A review of small-molecule inhibitors of one-carbon enzymes: SHMT2 and MTHFD2 in the spotlight. ACS Pharmacol Transl Sci. 2021;4:624-646.
- Reina-Campos M, Scharping NE, Goldrath AW. CD8+ T cell metabolism in infection and cancer. Nat Rev Immunol. 2021;21:718-738.
- Bacigalupa ZA, Landis MD, Rathmell JC. Nutrient inputs and social metabolic control of T cell fate. Cell Metab. 2024;36:10-20.
- Li S, et al. Metabolic regulation of immunity in the tumor microenvironment. Cell Rep. 2025;44(11):116463.
- Ouyang Y, et al. S-adenosylmethionine: a metabolite critical to the regulation of autophagy. Cell Prolif. 2020;53(11):e12891.
- Wang R, et al. The interaction of innate immune and adaptive immune system. MedComm. 2024;5(10):e714.
- Teillaud JL, et al. Tertiary lymphoid structures in anticancer immunity. Nat Rev Cancer. 2024;24:629-646.
- Fridman WH, et al. B cells and tertiary lymphoid structures as determinants of tumour immune contexture and clinical outcome. Nat Rev Clin Oncol. 2022;19:441-457.
- Lauss M, Donia M, Svane IM, Jönsson G. B cells and tertiary lymphoid structures: friends or foes in cancer immunotherapy? Clin Cancer Res. 2022;28(9):1751-1758.
- Xi Y, et al. Macrophage efferocytosis mediated by the TP63-RAC2 pathway promotes immunosuppressive remodeling in esophageal cancer. Cell Rep Med. 2026;7(1):102529.
- Jiang G, et al. SATB2 plays a critical role in pancreatic cancer cell proliferation, migration and T cell cytotoxicity. Cancer Genet. 2025;296-297:53-64.
- Liu Y, et al. TRIM29 promotes glioblastoma progression via ubiquitinating NEFL and activating the PI3K/AKT signaling pathway. Cancer Genet. 2025;296-297:88-99.
- Zhai H, et al. WDR54 enhances NF-κB signaling to promote progression of hepatocellular carcinoma. Cancer Genet. 2025;298-299:302-314.
- Yin H, et al. PLAU serves as a prognostic biomarker correlated with perineural invasion in HNSCC. Cancer Genet. 2025;294-295:145-155.
- Liu Z, et al. JAK inhibition in PD-1 immunotherapy and tumor microenvironment. Front Immunol. 2026;17:1790936.
- DeNicola GM, et al. NRF2 regulates serine biosynthesis in non-small cell lung cancer. Nat Genet. 2015;47(12):1475-1481.
- Zhang W, et al. NRF2-mediated persistent adaptation of oesophageal adenocarcinoma cells to HER2 inhibition. Oncogene. 2025;44(33):2929-2941.