본 연구에서는 뇌를 두개골에서 제거할 때 흔히 소실되는 송과선을 보존하는 해부 프로토콜을 제시합니다. 이 프로토콜은 면역조직화학, in situ 하이브리다이제이션 및 공간 전사체학을 포함한 후속 응용 분석을 위해 배아 및 출생 초기 마우스 뇌 표본에서 송과선이 유지되도록 보장합니다.
방법 논문
주생기 마우스 뇌 표본 제작 시 송과선 보존 방법
183 조회수
⸱
2026년 9월 11일
이 논문에서
요약
초록
멜라토닌을 분비하는 신경내분비 구조인 송과선은 배아 전뇌의 등쪽 중앙선에 있는 원기(anlage)에서 형성됩니다. 생쥐의 배아기 14.5일(E 14.5)에는 한 쌍의 종뇌 소포 사이의 간뇌 지붕에서 송과선 게실(pineal diverticulum)이 바깥쪽으로 돌출되는 것을 볼 수 있습니다. 이 게실은 상부에 위치한 연골, 수막 및 혈관 조직과 밀접하게 접촉하고 있습니다. 이는 배아 후기 또는 출생 초기 단계에서 뇌를 추출하기 위해 두개골 상부를 열 때 쉽게 소실됩니다. 송과선의 중요한 신경내분비적 역할에도 불구하고, 생쥐 뇌 발달의 배아 단계 동안 이 구조를 온전히 보존하기 어렵다는 점 때문에 송과선의 초기 발달과 이 과정을 조절하는 신호 메커니즘에 대해서는 여전히 알려진 바가 적습니다.
본 논문은 배아 단계부터 출생 후 7일(P7)까지의 뇌 분리 과정에서 송과체의 구조적 무결성과 간뇌 지붕과의 부착 상태를 유지하며 송과체를 보존하는 혁신적인 해부 절차를 제시합니다. 이 절차는 E18.5 마우스 뇌를 사용하여 시연되었으며, 따라서 in situ 하이브리다이제이션, 면역조직화학 및 공간 전사체학을 포함하여 조직 구조의 보존이 필요한 후속 응용 분야에 적합합니다. 또한 본 프로토콜은 발달 중인 송과체만을 분리하는 데 사용할 수 있어, 크기가 매우 작아 어려움이 많았던 전사체 및 단백질체 분석에서 송과체 특이적 표현력을 향상시킬 수 있습니다.
서론
송과선은 척추동물 뇌의 등쪽 정중선에 위치한 작은 신경내분비 구조로, 멜라토닌의 리듬감 있는 분비를 통해 일주기 생리 조절에 핵심적인 역할을 합니다1,2. 포유류의 배아 발생 과정에서 송과선은 발달 중인 전뇌의 등쪽 정중선에서 기원합니다. 생쥐의 경우, 등쪽 간뇌 신경상피의 특수 영역이 송과선 원기/송과선 함몰(pineal anlage/pineal recess)을 형성하면서 송과선 발달이 시작되며, 이후 배아기(E) 14.5일에 외반되어 송과선 게실(pineal diverticulum)을 형성합니다3,4,5. 이 게실은 간뇌의 지붕에 부착되어 있으며, 한 쌍의 종뇌 소낭 사이에 위치합니다. 발달이 진행됨에 따라 이 게실은 뇌의 등쪽 정중선에 있는 상위 구조물, 특히 전뇌의 등쪽 표면을 따라 흐르는 정맥관인 상시상정맥동(SSS) 및 횡정맥동(TS)과 밀접하게 연관됩니다6. 발달 중인 송과선은 SSS와 TS의 교차점 바로 아래에 위치하며, 두개강에서 뇌를 추출하기 위해 상위 혈관-뇌수막 구조물을 제거할 때 등쪽 간뇌와의 섬세한 부착 부위가 특히 취약해집니다7. 이로 인해 두개강을 열어 뇌를 추출하는 과정에서 송과선이 뜯겨 나갈 수 있어 손상되기 매우 쉽습니다. 결과적으로 루틴 해부 과정에서 송과선이 소실되는 경우가 빈번하며, 이는 온전한 표본에서 송과선의 구조 및 분자 조성을 분석하는 데 제한이 됩니다.
본 영상에서는 송과체와 이것이 시상간뇌 지붕에 부착된 상태를 보존하며 마우스 뇌를 적출하는 단계별 프로토콜을 설명합니다. 이 방법은 배아기 E16.5부터 출생 초기 단계(P7)까지 적용 가능하며, in situ 하이브리다이제이션, 면역조직화학 및 공간 전사체 분석을 이용한 송과체 발달 연구에 적합합니다. 하위 응용 분석의 예시로, 송과체 풍부 마커인 CRX에 대한 in situ 하이브리다이제이션 및 면역조직화학 분석 결과가 제시됩니다.
이 방법의 핵심 혁신은 뇌를 두개골에서 제거할 때 송과체를 전단시키게 되는 물리적 부착물을 조심스럽게 제거함으로써 정중선 구조물에 가해지는 스트레스를 최소화한다는 점입니다. 이는 표준 절차보다 개선된 방식입니다.
본 해부 방법은 P7 단계까지만 적용 가능합니다. 이는 출생 초기 발달 과정에서 두개골 궁의 점진적인 골화로 인해 두개골의 강성이 증가하고 뇌수막 및 혈관 구조와의 결합이 강화되기 때문입니다. 성체 설치류의 송과선 해부 절차를 설명한 연구는 여러 건 있으나8, 송과선이 매우 취약하여 뇌 분리 과정 중 손상되기 쉬운 배아 및 출생 초기 단계에서 송과선을 보존하는 데 집중한 연구는 거의 없었습니다.
프로토콜
모든 절차는 Tata Institute of Fundamental Research의 기관 동물 윤리 위원회의 승인을 받았으며 이에 따라 수행되었습니다.
1. 재료 준비
- 미세해부(microdissection)에 필요한 모든 기구(재료 표 참조)가 절차 시작 전 준비되었는지 확인하십시오. 모든 기구는 70% ethanol을 사용하여 멸균하십시오. 공간 전사체학(spatial transcriptomic) 또는 인시튜 하이브리다이제이션(in situ hybridization)과 같은 후속 응용 분야를 위한 시료 수집 시에는 RNase 제염 용액으로 기구를 닦아내십시오.
- 해부 현미경 스테이지를 RNase 제염 용액으로 세척하고, 해부대 근처에 ice-cold 1× PBS 병을 준비해 두십시오.
- 본 절차 전에 다음의 기구 및 플라스틱 소모품을 준비하십시오.
- 동물 준비를 위해 다음을 준비하십시오: 무딘 핀셋(blunt forceps) 2쌍, 수술용 가위 1쌍, 페트리 접시(10 cm) 2개, 페트리 접시(6 cm; 필요에 따라 머리 하나당 1개씩) 여러 개.
- 뇌 분리를 위해 다음을 준비하십시오: #5 핀셋 1쌍, #55 핀셋 1쌍, 미세해부용 가위 1쌍, 그리고 후속 응용 분야에 적합한 수집 튜브/접시.
- 참고: 후속 응용 분야에 인시튜 하이브리다이제이션 또는 공간 전사체학이 포함된 경우, 사용 전 해부 기구를 RNase 제염 용액으로 세척하십시오.
2. 동물 준비
- E14.5–P0 단계의 동물을 대상으로 다음 단계(2.1.1– 2.1.6)를 수행합니다.
- 기관 동물 윤리 위원회 가이드라인에 따라 임신한 어미 쥐를 안락사시킵니다. 제시된 예시에서는 경추 탈구법으로 안락사시켰습니다.
- 임신한 어미 쥐의 복강 중앙을 절개하여 자궁을 노출시킵니다. 둔탁한 핀셋을 사용하여 자궁각을 조심스럽게 끌어내어 얼음처럼 차가운 1× PBS가 담긴 멸균 10 cm 디시에 놓습니다.
- 주변의 양막 및 태반으로부터 개별 태아를 조심스럽게 분리하여 격리합니다.
- 태아들을 얼음처럼 차가운 1× PBS가 담긴 새로운 10 cm 페트리 접시로 옮기고, 뇌 분리를 위해 개별적으로 꺼낼 때까지 얼음 위에 유지합니다. 태아 한 마리를 얼음처럼 차가운 PBS가 담긴 6 cm 페트리 접시로 옮깁니다.
- P7까지의 출생 후 단계의 경우, 기관 동물 윤리 위원회 가이드라인에 따라 새끼 쥐를 안락사시킵니다. 그 후 단계 2.1.6부터 진행합니다.
- 외과용 가위를 사용하여, 전뇌가 예기치 않게 손상되는 것을 방지하기 위해 후뇌가 머리 부분에 포함되도록 머리와 몸통을 분리합니다.
- 머리를 차가운 PBS로 세척하여 혈액을 제거합니다. 얼음처럼 차가운 1× PBS가 담긴 새로운 6 cm 페트리 접시로 옮깁니다. 이후의 해부 단계 동안 혈액과 잔해물이 씻겨 나갈 수 있도록 머리를 PBS에 담근 상태로 유지합니다.
3. 송과선을 보존한 상태로 뇌를 분리하는 해부 절차
참고: 아래의 모든 단계는 해부 현미경을 사용하여 수행해야 합니다. 해부 과정 전반에 걸쳐 뇌와 주변 구조를 명확하게 시각화할 수 있도록 배율을 최소 2×(또는 필요에 따라)로 조정하십시오. RNA 및 단백질 분해를 최소화하기 위해 모든 해부 과정은 얼음처럼 차가운 PBS 내에서 수행되어야 합니다. 단계 3.1~3.10의 경우, 단계 3.1의 지침에 따라 비우세손을 사용하여 머리를 단단히 잡고 절차 전반에 걸쳐 고정하십시오. 단계 3.2~3.9는 비우세손으로 머리를 고정하고 우세손으로 정밀한 조작을 수행하며, 우선 #5 포셉을 사용한 다음 각 단계에 명시된 대로 #55 포셉 또는 미세해부 가위로 교체하여 수행합니다.
- 비우세 손에 #5 포셉을 잡는다. 단단하게 아래로 누르는 동작으로 두 개의 프롱을 안와에 삽입한다. 3.9단계가 완료될 때까지 아래 방향으로 압력을 유지하여 뇌를 페트리 접시 바닥에 고정한다.
참고: 뇌는 안와 위에 위치하므로 안와에 포셉을 삽입해도 영향을 받지 않는다. 일정한 하방 압력을 유지하면 해부 과정 전반에 걸쳐 뇌를 안정시킬 수 있다. - 우세 손을 사용하여 #5 포셉으로 머리를 덮고 있는 피부를 집어 제거한다.
참고: 이 단계에서는 뇌를 덮고 있는 매끄러운 연골두개(chondrocranium)가 보인다. - 중뇌-후뇌 상부에 위치한 연골두개 부분을 다음과 같이 제거한다:
- #5 포셉을 사용하여 중뇌가 종뇌(telencephalon)와 만나는 지점의 양측 연골두개에 두 개의 관통 절개를 가한다.
- 종뇌와 중뇌를 구분하는 가상의 접선 방향을 따라 #5 포셉의 프롱 하나를 연골두개 아래로 접선 방향으로 밀어 넣는다. 단단히 잡고 연골두개를 찢어서 연다.
- 중뇌와 후뇌가 노출될 때까지 연골두개 제거를 계속한다.
- #55 포셉으로 교체한다. 종뇌 상부 연골두개의 꼬리쪽 가장자리 립(lip) 바로 아래에 프롱 하나를 삽입한다. 혈관 및 뇌수막 조직과의 모든 연결 부위를 분리하여 연골두개를 조심스럽게 떼어낸다.
- 미세해부 가위를 사용하여 등쪽 종뇌 정중선을 따라 후각구 방향으로 절개한다. 닫힌 상태의 #55 포셉을 사용하여 연골두개와 뇌 사이의 부착 부위를 조심스럽게 제거한다. #5 포셉을 사용하여 종뇌 반구를 덮고 있는 연골두개의 두 부분을 분리한다.
참고: 이 단계에서 SSS는 뇌의 연골두개 상단 가장자리를 따라 짙은 붉은색 정맥으로 보이며, TS는 SSS와 직교하는 방향으로 보인다. - 송과선은 SSS 바로 아래에 있다. 미세해부 가위를 사용하여 SSS의 주둥이쪽(rostral) 끝부분을 절개한다.
- #55 포셉을 사용하여 송과선, SSS 및 TS를 더 잘 노출시키기 위해 양쪽 연골두개의 등쪽 부분을 완전히 제거한다.
- 미세해부 가위를 사용하여 송과선 양측의 TS에 두 군데 절개를 가한다. #55 포셉을 사용하여 TS의 외측 부착 부위를 분리한다.
- 닫힌 상태의 #5 포셉을 사용하여 뇌의 주둥이쪽 부분을 복측 두개궁(ventral cranial vault)에서 조심스럽게 들어 올린다. 닫힌 포셉을 뇌의 복측 아래로 밀어 넣어 완전히 분리한다.
- 이후의 하위 응용 단계에 적합하도록 송과선이 온전한 상태의 뇌를 보관한다.
4. 프로토콜의 핵심 단계
참고: 본 해부 프로토콜의 성공 여부는 송과선 주변의 혈관 부착물을 얼마나 세심하게 처리하느냐에 달려 있습니다. 해부 절차 전반에 걸쳐 송과선을 온전하게 유지하기 위해 다음 사항들이 매우 중요합니다:
- #5 포셉의 갈고리 부분을 양쪽 안와에 삽입하여 머리를 고정하고, 단계 3.1–3.9 전 과정 동안 단단하게 아래로 누르는 압력을 유지하십시오. 이는 뇌에 직접적인 압력을 가하지 않으면서 안정적인 지지력을 제공합니다.
- 연골두개골을 제거하는 동안(단계 3.3), 과도하게 당기거나 벗겨내는 동작을 피하십시오. 이러한 동작은 송과선이 등쪽 간뇌에서 분리되는 결과를 초래할 수 있습니다.
- 수막 및 혈관 부착물을 제거하는 동안(단계 3.4) 및 등쪽 종뇌 연골두개골을 여는 동안(단계 3.5)에는 #55 포셉의 끝부분만 사용하십시오. 포셉이 깊게 들어가면 미측 종뇌 지붕 바로 아래에 위치한 송과선이 손상될 수 있습니다.
- 뇌를 추출하기 전에 상시상정맥동의 절단(단계 3.6)과 횡정맥동의 양측 절단(단계 3.8)을 완료하십시오. 이러한 절단은 등쪽 정맥망 내부의 긴장을 완화하여 뇌 제거 시 송과선이 찢어지는 것을 방지합니다.
- 단계 3.9에서는 닫힌 포셉을 사용하여 등쪽 정중선이 흐트러지지 않도록 주의하며 뇌를 부드럽게 떼어내십시오. 모든 수막 및 혈관 부착물이 해제되면 뇌는 두개궁에서 자유롭게 분리되어야 합니다.
결과
본 해부 프로토콜을 통해 E16.5–P7 단계의 배아 및 출생 초기 생쥐 뇌를 송과선이 본래의 해부학적 위치에 보존된 상태로 일관되게 분리할 수 있습니다(그림 1).
연골두개골을 단계적으로 제거하고 수막 및 혈관 부착 부위를 세심하게 정리하면 송과선에 의도치 않은 전단 응력이 가해지는 것을 방지할 수 있습니다. 또한, 상시상정맥동(SSS)의 앞쪽 끝부분을 조절하여 절단하고 가로정맥동(TS)을 양측으로 절단하면 등쪽 혈관 네트워크의 긴장을 효과적으로 해소할 수 있습니다. 이는 이후 뇌 추출 과정에서 송과선이 뜯겨 나가는 것을 방지합니다. 그 결과, 뇌를 두개골에서 분리한 후에도 송과선은 손상되지 않고 간뇌 정중선에 부착된 상태로 유지됩니다 (그림 2A).
보존된 송과체의 무결성과 후속 응용 가능성을 테스트하기 위해, 송과체 마커인 Crx에 대한 in situ 하이브리디제이션과 CRX 단백질에 대한 면역조직화학 염색을 수행하였습니다9,10(그림 2B–D). 이를 통해 송과체의 정체성과 구조적 무결성을 확인하였습니다.
해당 해부 프로토콜은 여러 발달 단계에 걸쳐 검증되었으며, 대다수의 실험에서 송과체가 온전하게 보존되었습니다: E16.5 (N = 10), E18.5 (N = 15), P0 (N = 10), P7 (N = 6). 이는 본 방법이 배아 및 출생 초기 뇌 분리 과정에서 송과체를 보존하는 데 있어 견고하고 재현성이 매우 높음을 보여줍니다(그림 2E).
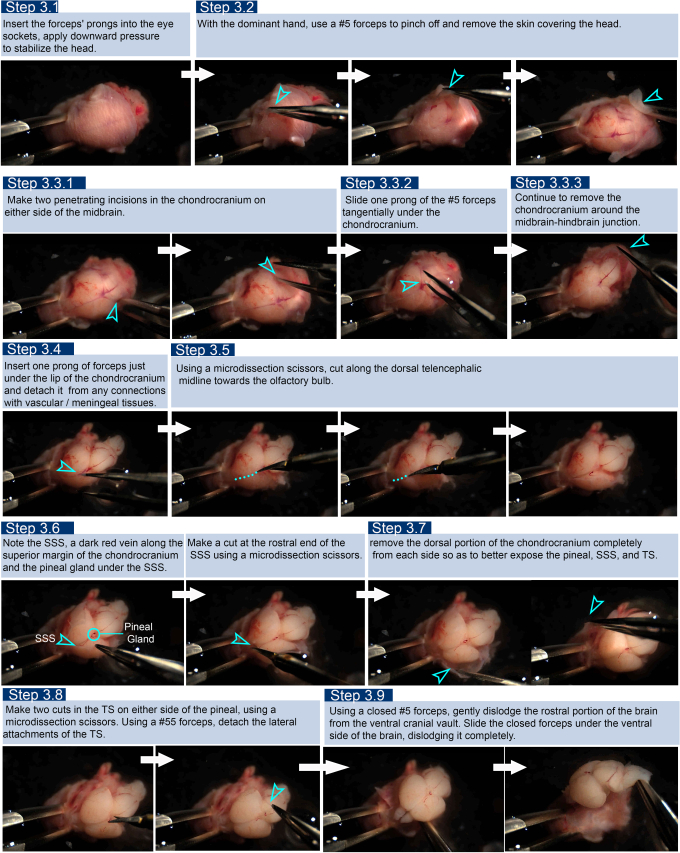
그림 1: 송과체를 손상시키지 않고 E18.5 마우스 뇌를 분리하는 단계별 절차를 보여주는 비디오 스틸 컷. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
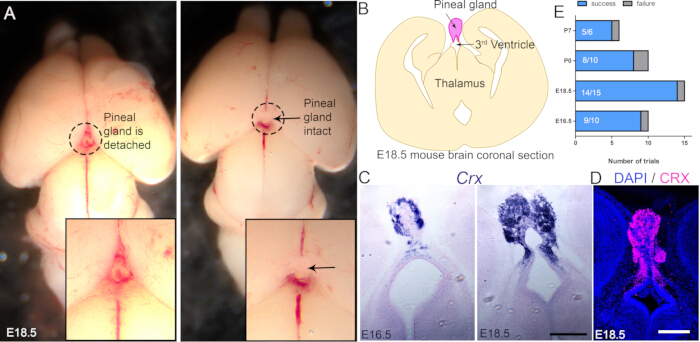
그림 2: 대표 결과. (A) 표준 해부 과정 중 송과선이 탈락된 두 개의 E18.5 마우스 뇌의 대표 예시(왼쪽)와 설명된 방법을 사용하여 송과선이 온전하게 유지된 뇌(오른쪽)의 비교. (B) 송과선을 분홍색으로 표시한 E18.5 관상면 단면의 모식도. (C) E16.5 및 E18.5에서 Crx에 대한 In situ hybridization 결과로, 송과선 특이적 발현을 보여줌. (D) E18.5에서 CRX에 대한 면역염색 결과. (E) 배아기(E16.5 및 E18.5)와 출생 후(P0 및 P7) 발달 단계에서 본 프로토콜의 성공(송과선이 온전한 상태로 뇌 분리) 및 실패(송과선 손상 또는 소실) 비율을 나타낸 막대 그래프. 스케일 바: 100 µm. A, C, D의 경우 N = 6 생물학적 반복 실험. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
토론
인간 태아 및 영아 뇌에 대한 표준화된 송과선 박리법이 개발되어 법의학 병리학자가 영아 급사 증후군의 원인을 이해하는 데 도움을 주고 있습니다11. 이전 프로토콜에서는 표면 혈관, 뇌막 및 맥락총과 함께 송과선을 제거하는 방법이 입증되었습니다12. 하지만 마우스나 기타 설치류의 초기 발달 단계에서 간뇌 지붕에 부착된 온전한 송과선을 안정적으로 유지하는 방법은 아직 설명된 바 없습니다.
송과체 절제술 및 분석을 설명하는 고전적인 해부학 및 방법론 문헌의 상당 부분은 송과체의 크기가 더 크고 식별하기 쉬운 쥐 모델을 사용하여 개발되었습니다13. 반면, 생쥐의 송과체는 상당히 더 작고 취약하여 일반적인 뇌 적출 과정 중에 소실되거나 손상되기 쉽습니다. 일부 연구에서는 머리 전체 상태에서 뇌를 고정함으로써 이러한 문제를 해결하려고 시도했습니다. 그러나 이는 조직 절편 제작을 위한 준비 과정에서 추가적인 기술적 제약을 초래합니다. 예를 들어, 4% paraformaldehyde로 고정한 후 30% sucrose에서 냉동 보호 처리를 하는 동안, 두개골 穹窿(cranial vault)이 하부의 뇌 조직에 압력을 가해 배측 전뇌 구조의 압착이나 왜곡이 발생할 수 있습니다. 이러한 아티팩트는 뇌의 형태학적 구조를 훼손하며, 정확한 해부학적 조직 구성에 의존하는 분석을 어렵게 만들 수 있습니다. 또한, 조직 고정법이 모든 응용 분야에 적합하지 않을 수도 있습니다. 따라서 생쥐 송과체의 발달 및 분자 생물학적 연구를 용이하게 하기 위해, 전반적인 뇌의 무결성을 손상시키지 않으면서 송과체를 보존하고 간뇌의 상부 부착 상태를 유지할 수 있는 방법이 필요합니다.
온전한 뇌 표본에서 송과선을 안정적으로 보존하는 것은 여러 실험적 응용 분야에서 매우 중요합니다. 면역조직화학 및 in situ 하이브리디제이션과 같은 조직학적 및 분자적 접근법은 송과선 내의 유전자 발현과 세포 조직을 조사하기 위해 조직 구조의 보존이 필수적입니다. 최근에는 공간 전사체학 및 기타 공간 분해 분자 프로파일링 방법과 같은 신흥 기술 또한 특정 해부학적 맥락 내에서 유전자 발현을 매핑하기 위해 온전한 조직 형태에 의존하고 있습니다. 현재까지 배아 생쥐 송과선의 공간 전사체 지도는 보고된 바 없습니다. 이는 부분적으로 일반적인 뇌 해부 과정에서 온전한 송과선을 보존하는 기술적 어려움을 반영하는 것일 수 있습니다. 따라서 송과선의 무결성을 안정적으로 유지하는 방법은 송과선 생물학 분야에서 신흥 공간 전사체 접근법의 적용을 촉진할 가능성이 높습니다. 또한 송과선은 전체 뇌 조직에서 매우 작은 부분을 차지하므로, 송과선이 온전한 상태로 뇌를 분리하면 이후 송과선만 선택적으로 수집하는 추가 단계가 가능해지며, 이러한 수집물을 통합함으로써 전사체 및 단백질체 연구의 벌크 분석에서 송과선 특이적 표현의 농축도를 실질적으로 향상시킬 수 있습니다.
비우세손의 #5 포셉을 사용하여 머리 부분을 잘 고정해야 합니다. 이는 해부 과정 전반에 걸쳐 유지되어야 하며, 따라서 우세손으로 필요에 따라 기구를 교체하며 조작해야 합니다. 제거해야 할 송과체와 그 위의 혈관-뇌수막 조직 간의 부착 부위를 더 잘 볼 수 있도록 조명을 조절하십시오.
공개 사항
모든 저자는 이해상충이 없음을 선언합니다.
감사의 글
저희는 훌륭한 지원을 해주신 Tata Institute of Fundamental Research의 Shital Suryavanshi 박사님과 동물실 직원분들께 감사드립니다. 또한, 절차 영상 촬영을 위해 연구실 내의 Olympus MVX10 스테레오 매크로 줌 현미경을 관대하게 사용하도록 허락해 주신 Sundar Naganathan 박사님께 감사드립니다. 본 연구는 인도 정부 원자력청(DAE)의 연구비(프로젝트 식별 번호 RTI4003 및 RTI4015 (ST)), ICMR-DHR SUG 연구비(GAP00303), ANRF PMECRG 연구비(GAP00313 (AP))의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 명시야 현미경 | Olympus | IX73 | 컬러 카메라가 장착된 모든 명시야 현미경을 사용할 수 있습니다. |
| 공초점 현미경 | Olympus | FV3000 | 요구되는 해상도에 따라 공초점 현미경 또는 에피 형광 현미경 중 어느 것이든 적합합니다. |
| CRX 항체 | Invitrogen | PA5-32182 | Parichha 등이 설명한 면역염색 프로토콜9. |
| CRX 프로브 | 맞춤 제작 | 맞춤 제작 | In situ hybridization 프로토콜 Parichha 외.10. |
| 미세 핀셋 # 5 | F.S.T | 11251-23 | 타사에서 제공하는 유사한 도구로 대체 가능합니다. |
| 미세 핀셋 # 55 | F.S.T | 11255-20 | 어느 회사의 유사한 도구로 대체될 수 있습니다. |
| PBS, pH 7.4 | Gibco | 10010023 | 어느 회사의 유사한 제품으로 대체 가능합니다. |
| 페트리 접시 | Corning | CLS351029 | 타사 제품 중 유사한 항목으로 대체 가능합니다. |
| RNaseZap | Invitrogen | AM9782 | RNaseZap RNase 제염 용액은 접촉 즉시 RNase를 파괴하는 표면 제염 용액입니다. |
| 스프링 가위(미세해부 가위) | F.S.T | 15020-15 | 타사의 유사한 도구로 대체 가능합니다. |
| 스테레오줌 현미경 | Nikon | SMZ745 | 모든 해부 현미경을 사용할 수 있습니다. |
참고문헌
- Nakahara D, Nakamura M, Iigo M, Okamura H. Bimodal circadian secretion of melatonin from the pineal gland in a living CBA mouse. Proc Natl Acad Sci U S A. 2003;100(16):9584-9.
- Christ E, Pfeffer M, Korf HW, von Gall C. Pineal melatonin synthesis is altered in Period1-deficient mice. Neuroscience. 2010;171(2):398-406.
- Rath MF. Homeobox gene-encoded transcription factors in development and mature circadian function of the rodent pineal gland. J Pineal Res. 2024;76(3):e12950.
- Rath MF, Rohde K, Klein DC, Møller M. Homeobox genes in the rodent pineal gland: roles in development and phenotype maintenance. Neurochem Res. 2013;38(6):1100-12.
- Estivill-Torrús G, Vitalis T, Fernández-Llebrez P, Price DJ. The transcription factor Pax6 is required for development of the diencephalic dorsal midline secretory radial glia that form the subcommissural organ. Eur J Neurosci. 2001;14(6):1011-22.
- Dias M, et al. Transection of the superior sagittal sinus enables bilateral access to the rodent midline brain structures. eNeuro. 2021;8(4):ENEURO.0146-21.2021.
- Matsunaga MM, et al. Morphologic analysis of mice's pineal gland. J Morphol Sci. 2011;28(3):157-60.
- Boeckmann D. Morphological investigation of the deep pineal of the rat. Cell Tissue Res. 1980;210(2):283-94.
- Parichha A, et al. Constitutive activation of canonical Wnt signaling disrupts choroid plexus epithelial fate. Nat Commun. 2022;13:633.
- Parichha A, et al. Dentate gyrus morphogenesis is regulated by β-catenin function in hem-derived fimbrial glia. Development. 2022;149(21):dev200953.
- Sparks DL, Coyne CM, Sparks LM, Hunsaker JC 3rd. Recommended technique for brain removal to retain anatomic integrity of the pineal gland in order to determine its size in sudden infant death syndrome. J Forensic Sci. 1997;42(1):100-2.
- Bowyer JF, et al. A visual description of the dissection of the cerebral surface vasculature and associated meninges and the choroid plexus from rat brain. J Vis Exp. 2012;69:e4285.
- Calvo J, Boya J. Embryonic development of the rat pineal gland. Anat Rec. 1981;200(4):491-500.
재인쇄 및 허가
