본 리뷰는 정자 형성 단계 전반에 걸친 미토콘드리아 품질 관리(생성, 역동성 및 미토파지)에 관한 증거를 종합하여, 대사 변화와 구조적 재구성을 남성 불임과 연결시키고 향후 연구의 지침이 될 방법론적 공백을 식별합니다.
이 논문에서
요약
초록
남성 불임이 전 세계적으로 증가하고 있습니다. 정자 형성 과정은 에너지 소모가 많으며 생합성, 융합-분열 역학 및 미토파지를 포함한 미토콘드리아 품질 관리(MQC)와 밀접하게 연결되어 있습니다. 본 논문에서는 생식 세포의 발달 단계에 걸친 현재의 증거들을 종합하여, 당분해 기반의 ATP 생성에서 산화적 인산화(OXPHOS) 중심의 대사로의 단계별 전환과 미토콘드리아 구조의 중간편 초(midpiece sheath)로의 재구성을 강조합니다. 또한 내막/외막 융합에 관여하는 OPA1/MFN1-2, 분열 및 초 조직화에 관여하는 DRP1/FIS1/MFF의 유전적 및 기능적 데이터와 더불어, 미토콘드리아 품질 관리에서 PINK1–Parkin 의존성 및 비의존성 미토파지의 역할을 요약합니다. 동시에 정자 완성 과정 중의 세포질 제거와 첨체 유지에는 미토파지뿐만 아니라 일반적인 오토파지가 관여할 수 있음을 인정합니다. 과도한 활성 산소종(ROS), 미토콘드리아 막 전위(MMP) 붕괴, 조절되지 않는 역학 또는 결함이 있는 미토파지와 같은 미토콘드리아 기능 장애는 정자 형성과 정자 기능을 손상시킵니다. 또한, 특히 표준화된 표현형 분석과 인간 유전적 증거의 부족과 같이 임상 적용을 제한하는 방법론적 공백을 식별합니다. MQC의 인과관계와 약물 가능성을 명확히 하는 것은 향후 남성 불임의 진단 또는 치료 연구를 지원할 수 있을 것입니다.
서론
전 세계적으로 정자의 질이 저하되고 있으며, 비정상적인 정자 질로 인한 남성 불임의 발생률이 증가하고 있습니다1. 최근의 한 메타 분석에 따르면 1973년에서 2011년 사이에 북미, 유럽, 호주 및 뉴질랜드 남성의 정자 수가 50–60% 감소했으며2, 이러한 감소세는 2000년 이후 더욱 가속화되었습니다3. 정자 질의 급격한 저하는 전 세계적으로 보고되었습니다2,3,4,5,6. 이러한 감소 원인에 대해서는 남성 생식 능력을 보호하기 위한 추가적인 연구와 표적 조치가 필요합니다.
정자 형성 과정은 고환의 세정관에서 일어납니다. 이는 세정관의 장축을 따라 정자 형성 세포들의 특정한 조합이 파동 형태로 진행되는 과정이며, 최종적으로 정원줄기세포(SSCs)가 증식하고 분화하여 정자가 되도록 유도합니다7. 포유류의 정자 형성은 생물학에서 가장 복잡하고 오래 걸리는 분화 과정 중 하나입니다. 인간의 경우, 전체 정자 형성 주기는 64–74일이 소요되며, 각 세정관 상피 주기는 16일 동안 지속됩니다. 이 복잡한 과정에는 미토콘드리아의 형태, 수 및 분포의 상당한 변화가 수반됩니다8.
미토콘드리아 품질 관리(MQC)는 미토콘드리아 생합성, 융합, 분열 및 선택적 미토파지의 협력적인 과정으로, 다양한 생체 에너지 요구 조건 하에서 소기관의 무결성을 유지합니다8,9. 고환에서 MQC는 단계별로 특이적으로 작용하며, 증식하는 정원세포에서 감수 분열 및 정자 형성 과정으로의 전환을 지원하고, 최종적으로 정자 중편(midpiece)에 조밀하게 패킹된 미토콘드리아 초(sheath)를 형성하는 것으로 정점에 달합니다9. 그림 1은 정자 형성 과정 중 MQC의 메커니즘을 보여줍니다. MQC 구성 요소의 결함은 모델 생물체와 인간 모두에서 정자 형성 장애 및 저하된 생식 능력으로 이어질 수 있습니다. 본 리뷰에서는 현재의 메커니즘적 통찰을 통합하고 중개 연구의 기회를 제시합니다.
리뷰 및 관점
정자 형성 및 미토콘드리아 에너지 대사
정자형성 과정은 정원세포의 증식, 정모세포로의 분화, 감수 분열, 정세포의 성숙, 그리고 세정관 내강으로의 정자 방출을 포함하는 세 가지 순차적 단계인 체세포 분열 증식, 감수 분열, 그리고 정자세포변태로 구성됩니다. 정원세포는 예비형과 갱신형으로 분류됩니다. 일부 정원세포는 줄기세포로 유지되는 반면, 다른 세포들은 분화를 통해 정자형성에 참여합니다. 또한 일부 세포는 세포 사멸(apoptosis)과 같은 계획된 세포사를 겪습니다. 2배체인 제1정모세포는 두 차례의 감수 분열을 거쳐 단배체인 정세포로 분화합니다. 정자세포변태 단계에서 원형 정세포는 더 이상 분열하지 않고 매우 길쭉한 형태의 정세포로 변하며, 최종적으로 성숙한 정자로 발달합니다.
정자 형성은 정원세포, 정모세포, 정세포 및 정자를 포함한 생식세포와 이를 지원하는 세르톨리 세포 간의 조율된 상호작용뿐만 아니라 혈액-고환 장벽의 무결성 유지를 필요로 한다10,11. 인접한 세르톨리 세포 사이의 밀착 연접으로 형성되는 혈액-고환 장벽은 세정관 상피를 기저 구획과 내강 구획으로 나누어, 생식세포 발달에 필수적인 특수한 미세환경을 조성하고 유지한다11,12. 결과적으로 정원줄기세포에서 성숙한 정자에 이르는 정자 형성 과정은 이러한 고유한 고환 미세환경 내에서 일어난다. 정자 생성 과정은 미토콘드리아 기능에 크게 의존한다13. 진핵세포의 에너지 대사 중심인 미토콘드리아는 정자 생성에 필수적인 것으로 간주된다. 정자의 생성은 미토콘드리아의 에너지 공급 및 신호 전달 기능에 매우 의존적이다. 발달 중인 생식세포에서 미토콘드리아는 정자 형성에 필수적인 ATP를 제공할 뿐만 아니라, 세포 내 신호 전달, 세포 주기 조절 및 프로그램된 세포 사멸에 참여함으로써 그 과정에 영향을 미친다13. 레이디히 세포에서 미토콘드리아는 스테로이드 호르몬 생성에 결정적인 역할을 하며, 이러한 고환 간질 세포에서의 테스토스테론 생성에는 미토콘드리아의 ATP 합성이 필요하다14. 또한, 독립적인 DNA를 가진 유일한 세포소기관으로서 미토콘드리아 DNA는 정자의 품질과 밀접한 관련이 있다. 따라서 미토콘드리아의 상태와 그 조절 기전을 이해하는 것은 정자 형성 과정을 밝히고 남성 가임력을 유지하는 데 중요하다.
에너지 대사는 상당한 양의 ATP를 필요로 하는 정자 형성 과정에 매우 중요합니다. ATP 생성의 두 가지 주요 경로는 미토콘드리아 산화적 인산화(OXPHOS)와 당분해입니다. ATP 공급은 단계에 따라 달라지는데, 감수 분열과 중편(midpiece) 형성 과정에서는 OXPHOS의 중요성이 점차 증가하는 반면, 특히 성숙한 정자에서는 당분해가 ATP 생성에 크게 기여합니다. 또한, 당분해는 유연하고 신속한 에너지 공급을 제공함으로써 정자의 성숙, 운동성 및 여성 생식관 통과를 지원합니다.
하지만 정원세포와 초기 정모세포에서 미토콘드리아는 상대적으로 크기가 작고 제한적인 OXPHOS 활성을 보입니다. 정자 형성 과정이 정모세포, 정세포, 정자와 같은 후기 단계로 진행됨에 따라 미토콘드리아는 리모델링을 거치며, OXPHOS 활성이 공간적으로 더 집중되고 효율적으로 변합니다. 또한, 혈액-고환 장벽으로 인해 단계별로 이용 가능한 기질이 달라집니다. 세정관 상피의 기저 구획에 위치하는 정원세포는 혈중 포도당에 접근할 수 있으며 당분해를 통해 에너지를 생성합니다. 반면, 관강 구획의 정모세포와 정세포는 혈액-고환 장벽에 의해 혈액 및 간질과 분리되어 있으며, 세르톨리 세포가 포도당 수송체(GLUTs)를 통해 포도당을 흡수하여 당분해를 통해 피루브산으로 전환하는 것에 의존합니다. 피루브산은 이후 젖산 탈수소효소(LDH)에 의해 젖산으로 전환됩니다. 젖산은 단카복실산 수송체(MCTs)를 통해 정모세포로 운반되며, 여기서 LDH에 의해 다시 피루브산으로 전환된 후 피루브산 탈수소효소(PDH)에 의해 아세틸-CoA로 전환되어 트리카복실산(TCA) 회로로 진입합니다. 마지막으로, 피루브산은 미토콘드리아 피루브산 운반체를 통해 미토콘드리아로 운반되어 OXPHOS를 촉진합니다.
미토콘드리아 기능 장애에 의한 정자 형성 저해
정자 방출 과정 동안, 성숙한 정자는 세르톨리 세포에서 세정관 강으로 방출된 후 부고환으로 운송됩니다. 이 과정에는 미토콘드리아로부터의 상당한 에너지 공급이 필요합니다. 미토콘드리아 기능이 손상되면 정자 형성이 저해됩니다. 미토콘드리아 기능 장애의 주요 징후로는 활성산소종(ROS)의 과잉 생산, 미토콘드리아 막 전위(MMP)의 변화, 미토콘드리아 분열 및 융합 역학의 불균형, 미토콘드리아 생합성 저하, 미토콘드리아 자가포식 결함 및 칼슘 이온 항상성 파괴 등이 있습니다.
미토콘드리아가 OXPHOS를 통해 ATP를 생성하는 과정에서는 ROS 생성 또한 동반됩니다. 미토콘드리아는 ROS의 주요 공급원이며, ROS는 주로 미토콘드리아 전자전달계(ETC)의 호흡 복합체 I 및 III에서 생성됩니다15. 정상적인 생리적 조건에서 적절한 수준의 ROS는 정자 형성 과정을 조절하는 신호 전달 경로에 관여합니다. 그러나 과도한 ROS는 산화-환원 불균형을 초래하여 산화 스트레스를 유발하고 정자 형성을 저해할 수 있습니다. 따라서 미토콘드리아 에너지 대사와 ROS 생성 사이의 균형은 정자 형성을 보장하는 핵심 요인입니다.
효율적인 미토콘드리아 OXPHOS를 위해서는 호흡 탄소 기질(예: pyruvate, 지방산)이 미토콘드리아 외막을 통해 막 사이 공간으로 유입되어야 합니다. 이후 이러한 기질들은 미토콘드리아 내막에 위치한 운반체를 통해 매트릭스로 수송되어 TCA 회로에 참여합니다. TCA 회로에서 이 탄소 기질들은 산화 분해 과정을 거치며 nicotinamide adenine dinucleotide (NADH)와 flavin adenine dinucleotide (FADH2)를 생성합니다. 생성된 물질들은 ETC에 전자를 제공하여 ADP와 무기 인산(Pi)으로부터 ATP를 합성하는 OXPHOS를 구동합니다. TCA 회로나 ETC 경로의 중단은 정자 생성에 장애를 일으킬 수 있습니다16. 세포 에너지 상태와 미토콘드리아 기능의 지표인 MMP는 정자 운동성17 및 전반적인 수정 능력18과 관련이 있는 것으로 나타났습니다.
미토콘드리아 스트레스 상황에서 분열은 손상된 미토콘드리아 분절을 분리할 수 있으며, 융합은 내용물의 혼합과 기능적 보완을 촉진할 수 있습니다. 이후 손상되었거나 과잉된 미토콘드리아는 미토파지를 통해 분해 및 재활용될 수 있습니다. 종합적으로 미토콘드리아 생성, 분열, 융합 및 미토파지는 미토콘드리아 기능과 리모델링을 지원하는 미토콘드리아 품질 관리(MQC)를 구성합니다19.
정자 형성 과정은 정조세포가 정자로 분화되는 과정을 포함하며, 이는 세포 형태의 상당한 변화를 가져올 뿐만 아니라 에너지 대사의 지원과 조절을 필요로 합니다. 세포의 발전소인 미토콘드리아는 에너지 공급, 신호 전달, 세포 사멸을 포함하여 정자 형성의 핵심적인 측면에서 결정적인 역할을 합니다. 정자 형성 과정 동안 생식 세포의 대사 요구량은 발달 단계에 따라 다르게 나타납니다. 미토콘드리아의 수와 형태는 정자 형성 과정 중에 상당한 변화를 겪습니다. 정자가 형성될 때 많은 미토콘드리아가 제거되는 반면, 잔류한 미토콘드리아는 정자의 중편에 배치되어 축사와 관련 편모 구조 주변에 미토콘드리아 초를 형성합니다. 따라서 정자 형성 과정 중에 다양한 고환 세포 내의 미토콘드리아는 지속적으로 융합과 분열을 반복하며, 정상적인 기능을 보장하고 정자 형성의 높은 에너지 수요를 지원하기 위해 효율적이고 정밀한 MQC 메커니즘이 필요합니다. 정자가 생성됨에 따라 미토콘드리아의 형태와 수 모두 상당한 변화를 겪으며, MQC는 이 과정에서 중요한 역할을 합니다. MQC에 관여하는 핵심 표적 단백질은 표 1에 나열되어 있습니다.
정자 형성 과정과 미토콘드리아 역학
미토콘드리아는 형태, 크기 및 세포 내 분포가 융합과 분열의 조율을 통해 지속적으로 재구성되는 매우 역동적인 세포소기관이며, 이 과정을 통칭하여 미토콘드리아 역동성이라고 합니다. 정상적인 생리적 조건에서 융합과 분열은 역동적인 평형 상태를 유지하며, 이를 통해 미토콘드리아 항상성을 유지하고 기능적 보완을 촉진하며 세포 분열 시 적절한 미토콘드리아 유전이 이루어지도록 합니다. 유전적 결손, 번역 후 변형 결함 또는 병리적 스트레스로 인해 이러한 균형이 무너지면 미토콘드리아 기능이 저하되고 에너지 생산에 차질이 생기며, 궁극적으로 정자 형성이 방해를 받습니다. 정자 형성은 급격한 대사 변화와 광범위한 형태적 재구성을 수반하며, 이에 따라 미토콘드리아 구조와 활성의 단계별 적응이 요구되므로 생식세포에서 미토콘드리아 역동성의 정밀한 조절은 특히 중요합니다.
미토콘드리아 융합은 미토콘드리아 외막의 MFN1 및 MFN2와 내막의 OPA1에 의해 매개되며, 이를 통해 내부 성분의 혼합, 기능적 보완 및 미토콘드리아 DNA 무결성 유지가 촉진됩니다. 융합은 단순한 방어적 반응이 아니라, 생식세포 분화 과정에서 미토콘드리아의 유전과 대사 적응을 지원하는 맥락 의존적 메커니즘입니다. 정원세포 분화 과정에서 MFN 발현이 증가하며, MFN1 또는 MFN2 중 어느 하나라도 결핍되면 정원세포와 정모세포에서 DNA 산화 및 세포 사멸이 일어나 남성 불임으로 이어집니다20,21. 생쥐 모델에서 MFN1 돌연변이는 정모세포의 현저한 감소와 정자 생성 실패를 동반한 고환 위축을 유발하는 반면, 미분화 정원세포는 영향을 받지 않아 MFN1이 감수 분열 진행에 필수적임을 시사합니다20. 이와 대조적으로 MFN2는 미토콘드리아와 소포체 기능을 모두 조절하며 정자 형성 과정에서 별개의 역할을 수행합니다21.
미토콘드리아 분열은 DRP1에 의해 조절되며, DRP1은 FIS1, MFF, MID49 및 MID51을 포함한 어댑터 단백질을 통해 미토콘드리아 외막으로 모집됩니다. 모집된 DRP1은 고리 모양의 올리고머로 조립되어 GTP 의존적 방식으로 미토콘드리아를 수축시키고 분열시킵니다. 이 과정은 세 가지 주요 단계로 이루어집니다: 인산화에 의한 DRP1 활성화, FIS1, MFF, MID49 및 MID51과의 상호작용을 통한 외막으로의 모집, 그리고 GTP를 소모하며 미토콘드리아를 둘러싸고 수축시켜 두 개의 독립된 소기관을 생성하는 고리 구조로의 조립입니다. 분열은 단순히 탈분극된 미토콘드리아를 제거하거나 증가된 에너지 수요를 충족시키기 위한 기전이 아니라, 미토콘드리아의 분포, 손상된 구성 요소의 분리, 세포 분열 시의 유전, 그리고 미토콘드리아 구조의 리모델링을 조절하는 조정된 과정입니다. DRP1이 결핍된 생쥐는 배아 치사성을 보이며22,23, MFF 결핍 생쥐는 생식 능력과 정자 수가 감소하여 수컷 생식 세포 발달 과정에서 미토콘드리아 분열을 연구하는 데 유용한 모델이 됩니다24. 미토콘드리아 분열은 정자 형성 과정 중 미토콘드리아 시스(mitochondrial sheath)의 적절한 형성에 필수적입니다.
정자 형성 과정은 에너지 소모가 많으며, 주로 정원세포에서의 당분해와 정모세포 및 정세포에서의 산화적 인산화(OXPHOS)에 의존합니다. OXPHOS는 특히 감수분열 동안 매우 중요하며, 그 효율성은 온전한 미토콘드리아 역동성에 달려 있습니다25,26. 감수분열 이후, MFF 및 기타 분열 단백질이 미토콘드리아 분열을 조절하고 정자 미토콘드리아 초(sheath) 형성에 참여합니다24. 정자 완성 과정(spermiogenesis) 동안 일부 미토콘드리아는 선택적으로 유지되어 초 형태로 재구성되는 반면, 과잉 미토콘드리아와 세포질 성분은 자가포식을 통해 제거됩니다27. OPA1, DRP1, MFF와 같은 단백질은 정자 기능을 향상시키기 위한 잠재적 연구 표적이 될 수 있으나, 그 치료적 관련성은 추가적인 검증이 필요합니다. 인간의 정자 형성 과정에서 미토콘드리아 품질 관리(MQC)에 대한 추가 연구는 향후 남성 불임의 진단 또는 치료 연구를 촉진할 수 있을 것입니다.
정자 형성 및 미토콘드리아 자가포식
미토파지(Mitophagy)는 정자 형성 과정에서 결정적인 역할을 합니다28. 미토파지는 주로 자식포(autophagosome)가 손상된 미토콘드리아를 둘러싸는 과정을 포함합니다. 손상된 미토콘드리아를 포함하는 자식포는 이후 리소좀과 융합되며, 미토콘드리아는 리소좀 작용을 통해 분해되어 손상된 미토콘드리아가 제거되고 품질 관리가 이루어집니다. 미토콘드리아 자식작용의 전형적인 경로는 PINK1/Parkin 경로이며, PINK1/Parkin 독립적 경로 또한 보고된 바 있습니다29.
자가포식은 정자 형성 과정 동안 아크로솜의 무결성 유지, 정세포의 극성 형성 및 세포질 성분의 분해를 돕지만, 미토콘드리아 제거가 구체적으로 입증되지 않는 한 이러한 과정은 선택적 미토파지보다는 일반적인 자가포식을 반영합니다. 여러 연구에 따르면 미토파지는 미토콘드리아 동역학과 밀접한 관련이 있으며, 미토콘드리아 분열은 과잉되거나 손상된 미토콘드리아를 제거하기 위해 미토파지를 촉진할 수 있습니다30. FIS1은 미토콘드리아 분열 단백질이지만 정자 형성 중 미토파지에도 관여합니다31. RAB7A는 미토파고솜 형성 및 자가포식소 성숙에 관여합니다32. FIS1은 미토콘드리아 GTPase 활성화 단백질인 TBC1D15와 상호작용합니다33,34. TBC1D15는 소포와 리소좀의 융합 및 자가포식소 성숙에 관여하는 RAB7A 활성을 조절합니다34,35. FIS1이 비활성화되면 RAB7A가 미토콘드리아 표면에서 활성 상태로 남아 자가포식소 막의 성장과 관형화(tubulation)의 조절 장애를 초래하며, 광학 현미경을 통해 LC3 응집을 관찰할 수 있습니다35. 미토파지는 DRP1 매개 미토콘드리아 분열과 독립적으로도 발생할 수 있으므로, 분열이 미토콘드리아 제거의 필수 조건으로 간주되어서는 안 됩니다35.
정자 형성 과정(spermiogenesis) 동안 정세포(spermatids)는 과잉 세포 성분들이 제거되며, 연구 결과 정세포에서 자가포식소체(autophagosomes)가 가장 풍부한 것으로 밝혀졌다36. 핵심 자가포식 유전자인 Atg7는 정자 형성 과정 중 정세포의 극성 형성 및 세포질 제거와 연관되어 있으나, 초기 생식 세포 유형들은 이러한 맥락에서 영향을 덜 받는 것으로 보인다27,36. 또한, Leydig 세포29, 정원줄기세포/전구세포37,38, Sertoli 세포39, 그리고 독성 물질에 노출된 미성숙 쥐 고환40을 포함한 손상된 고환 모델에서 미토콘드리아 자가포식(mitophagy)이 강화된다. 정자 형성 과정에서 미토콘드리아 자가포식은 세포 사멸(apoptosis) 및 다른 형태의 프로그램된 세포 사멸과 연관되어 있으며, 이를 통해 고환 내 정자 생산에 영향을 미친다41,42.
계량서지학적 배경
“spermatogenesis” 및 “MQC”라는 검색어를 사용하여 1970년부터 2023년까지의 Web of Science Core Collection에 대한 집중적인 계량서지학적 분석을 수행하였으며, 비포유류 연구 및 무관한 기록은 제외하고 VOSviewer 1.6.20을 사용하여 시각화하였습니다43. 스크리닝 후, 66개국 1,217개 기관의 5,705명 저자가 작성한 1,019편의 논문이 유지되었습니다. 출판물 수는 꾸준히 증가하였습니다(그림 2A). 미국과 중국이 가장 많은 논문을 기여하였으며(각각 212편 및 196편), 미국이 가장 높은 피인용 횟수를 기록하였습니다(12,295회; 그림 2B). 기관 및 저자 네트워크는 그림 2C,D에 요약되어 있습니다.
키워드 공출현 분석(빈도 > 7) 결과, 정자 운동성, 산화 스트레스, 세포 사멸/프로그램된 세포사, DNA 손상, 지질 과산화 및 정자 품질에 중점이 두어진 것으로 나타났습니다(그림 3). 이러한 서지학적 패턴은 기전적 리뷰를 대체하지는 않지만 이를 뒷받침합니다. 즉, 해당 분야는 산화적 손상과 운동성 결과에 집중되어 있는 반면, 단계별 MQC 경로와 불임 사이의 직접적인 인체 증거는 여전히 제한적인 상태입니다.
결론
생명공학의 발전으로 남성 가임력 연구는 기술적인 형태학 및 운동성 분석에서 정자 형성의 분자 및 세포 수준 기전 연구로 전환되었습니다. 미토콘드리아는 이 과정의 중심 역할을 하며, ATP를 생성하고 감수분열 및 정자 형성 과정 중의 재구성을 지원하며, 산화적 및 환경적 손상에 매우 민감합니다44. 이러한 스트레스 하에서 기능을 유지하기 위해 미토콘드리아는 생성, 융합-분열 역학 및 미토파지가 통합된 MQC에 의존합니다. 이러한 경로의 교란은 생식세포 발달, 정자 중편 구조, 그리고 궁극적으로 가임력을 손상시킵니다. 결론적으로, 가용한 증거들은 미토콘드리아 역학과 미토파지가 정자 형성 과정 동안 에너지 생산, 소기관 재구성 및 손상된 구성 요소의 제거를 조정하는 데 도움을 준다는 단계 특이적 모델을 뒷받침합니다. 그러나 직접적인 인간 증거와 표준화된 표현형 분석은 여전히 제한적이므로, MQC 관련 단백질은 확립된 치료 표적이라기보다 추가 검증이 필요한 잠재적 연구 표적으로 간주되어야 합니다.
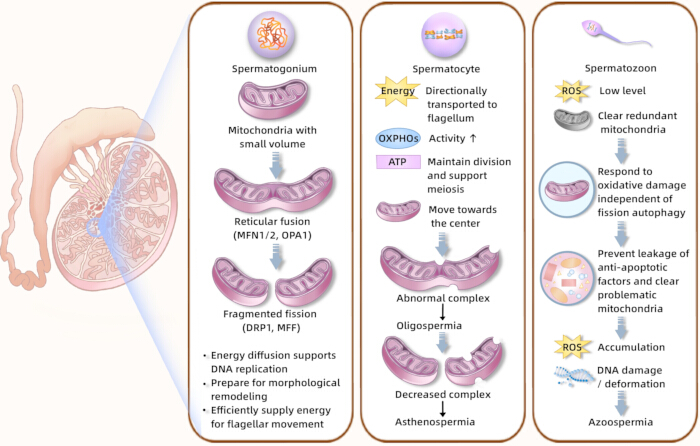
그림 1. 정자 형성 과정 중 미토콘드리아 품질 관리 메커니즘. 정자 형성 시 단계별 에너지 대사 및 미토콘드리아 리모델링. 도식은 Sertoli 세포-생식세포 간의 대사 결합, 포도당 운반체, 모노카르복실산 운반체, ATP 생성, 감수분열 및 정자 형성 과정 중 당분해 지원 대사에서 산화적 인산화로의 전환, 그리고 활성 산소종 관련 미토콘드리아 손상을 보여준다. 약어: ATP = adenosine triphosphate; OXPHOS = 산화적 인산화; ROS = 활성 산소종. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
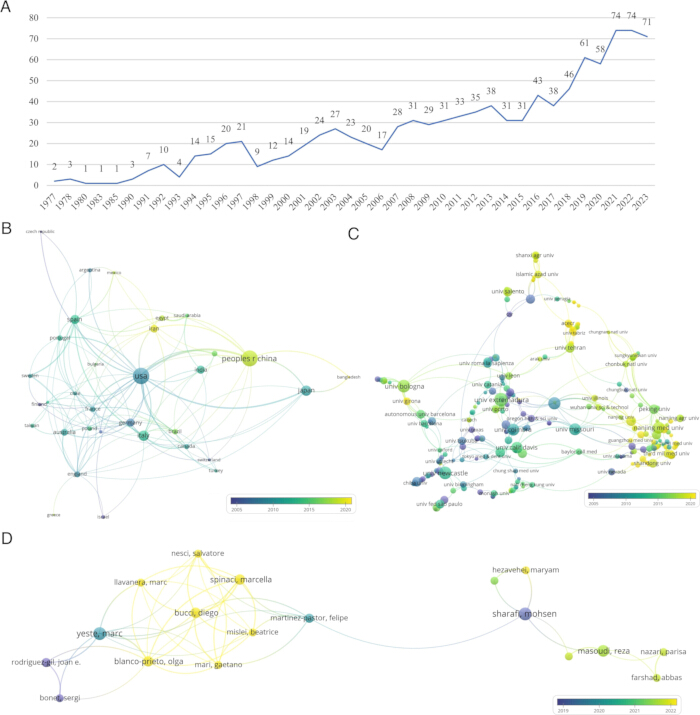
그림 2. 국가, 기관, 저자별 출판 및 협력 분석. (A) 정자 형성 및 MQC 분야의 연간 출판물 수. (B) 정자 형성 및 MQC 분야의 국제 협력 출판물 시계열 분포도. (C) 정자 형성 및 MQC 분야의 기관 간 협력 시계열 분포도. (D) 정자 형성 및 MQC 분야의 저자별 출판 시계열 분포도. 노드는 출판물 수를 나타내며, 노드의 색상은 과거에서 최근까지의 출판 시점을 나타내고, 선은 협력 관계를 나타내며 선이 굵을수록 더 밀접한 협력을 의미함. 약어: MQC = mitochondrial quality control. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
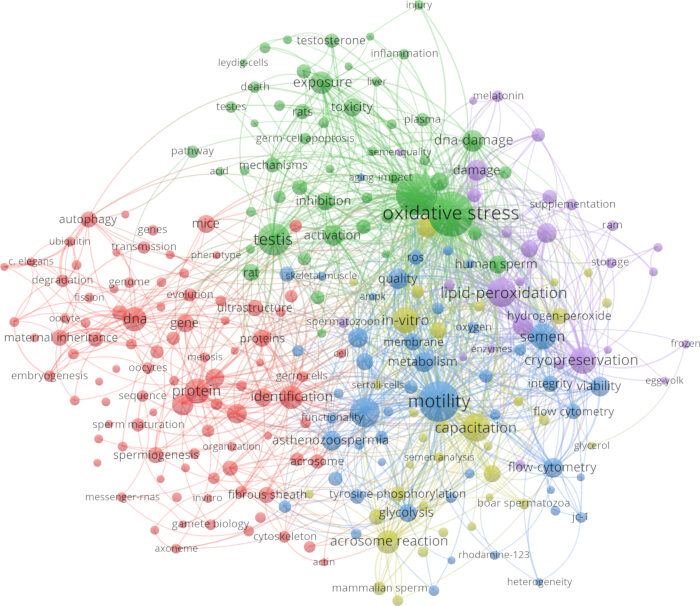
그림 3. 고빈도 키워드 동시 출현 차트. 노드는 고빈도 키워드를 나타내며, 노드의 크기는 빈도를 의미합니다. 노드의 색상은 클러스터링을 나타내며, 동일한 색상은 서로 더 밀접하게 관련된 주제임을 의미합니다. 선은 키워드 간의 관계를 나타내며, 선이 굵을수록 더 밀접한 관계임을 나타냅니다. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
| MQC 과정 | 표적 단백질 |
| 미토콘드리아 융합 | Optic atrophy 1 (OPA1) |
| Mitofusin 1 (MFN1) | |
| Mitofusin 2 (MFN2) | |
| 미토콘드리아 분열 | Dynamin-related protein 1 (DRP1) |
| Mitochondrial fission 1 protein (FIS1) | |
| Mitochondrial fission factor (MFF) | |
| 미토파지 | PTEN-induced putative kinase 1 (PINK1) |
| Ubiquitin-protein ligase Parkin (E3 ubiquitin-protein ligase Parkin) |
표 1: 미토콘드리아 품질 관리의 주요 표적 단백질.이 표는 정자 형성 과정 중 미토콘드리아 융합, 미토콘드리아 분열 및 미토파지(mitophagy)에 관여하는 대표적인 단백질들을 나열합니다.
공개 사항
저자들은 선언할 이해관계 충돌이 없습니다.
감사의 글
본 연구는 Ningxia Natural Science Foundation Project (2025AAC030481, 2024AAC03715), National Natural Science Foundation of China (82560939, 82505601), Ningxia Key Research and Development Program (2025FRG05005, 2025BEG2008), Beijing Natural Science Foundation (7254520), China Postdoctoral Science Foundation (2025T181076), China Association of Science and Technology의 Young Elite Scientists Sponsorship Program (YESS20240193), China Association of Chinese Medicine의 Young Talents Support Program (CACM-2024-QNRC2-B17), 그리고 National Administration of Traditional Chinese Medicine의 High-Level Key Discipline Construction Project of Traditional Chinese Medicine (zyyzdxk-2023238)의 지원을 받아 수행되었습니다.
참고문헌
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.