본 리뷰에서는 면역 조절 및 이식 거부 반응에서 DNA 메틸화의 역할을 요약합니다. DNA 메틸화는 면역 세포의 발달과 분화를 조절하고 면역 세포 기능을 변조하며, 이식편 생존율 향상을 위한 바이오마커 및 치료 표적으로 활용될 수 있습니다.
리뷰 논문
DNA 메틸화의 면역학적 조절 및 동종이식 거부반응에서의 시사점
34 조회수
⸱
2026년 9월 11일
이 논문에서
요약
초록
이식 거부 반응은 장기간의 이식편 생존에 있어 여전히 주요한 장벽이며, 이는 면역 반응과 분자 조절 기전 사이의 복잡한 상호작용에 의해 발생합니다. 주요 후성유전학적 변형인 DNA 메틸화는 면역 세포의 발달, 분화, 성숙 및 기능 조절에 중요한 역할을 합니다. 비정상적인 DNA 메틸화는 면역 관련 유전자의 발현을 변화시켜 면역 반응의 성격과 강도에 영향을 미칠 수 있습니다. 이식 과정에서 이러한 변화는 이식 거부 반응에 관여하는 T 세포, B 세포 및 선천 면역 세포에 영향을 줄 수 있습니다. 또한, DNA 메틸화는 면역 활성화, 관용 및 염증 반응과 관련된 신호 전달 경로의 조절에도 기여합니다. 따라서 메틸화 패턴의 변화는 거부 반응의 진행과 이식편 기능 유지 모두에 영향을 줄 수 있습니다. 본 리뷰에서는 면역 조절에서 DNA 메틸화에 관한 현재의 지식을 요약하고, 특히 흉선 발달, 헬퍼 및 세포독성 T 세포, 조절 T 세포, B 세포, 선천 면역 세포 및 신호 전달 경로를 중심으로 이식 거부 반응에 미치는 영향을 살펴봅니다. 또한, 이식 분야에서 바이오마커 및 치료 표적으로서의 DNA 메틸화의 잠재적 관련성을 고찰합니다. 이러한 후성유전학적 기전을 이해함으로써 고형 장기 이식 후 거부 반응 위험을 평가하고, 면역 반응을 조절하며, 장기적인 이식편 예후를 개선하기 위한 보다 정밀한 접근법의 개발을 뒷받침할 수 있을 것입니다.
서론
면역학은 면역 체계의 구조와 기능에 관한 과학적 학문으로, 자기 및 비자기 성분의 인식에 따른 면역 반응의 기저 기전과 항상성 유지를 포함합니다. 또한 이 분야는 면역 기능의 조절 장애로 인해 발생하는 병리적 과정까지 포괄합니다. 면역 체계는 방어, 감시, 항상성이라는 세 가지 기본 기능을 수행합니다. 이러한 기능들이 상호작용하여 외부 병원체와 유해 물질의 침입을 막고, 체내의 비자기 성분을 제거하며, 안정적인 내부 면역 환경을 유지합니다. 면역 반응의 특성에 따라 면역은 선천 면역과 적응 면역으로 분류됩니다. 선천 면역은 외부 병원체에 대해 신속하고 비특이적인 반응을 제공하는 반면, 적응 면역은 특정 항원을 표적으로 하는 매우 특이적인 반응을 제공합니다1,2. 면역 반응 과정에서 외부 및 내부 요인은 면역 기능과 관련된 유전자의 발현을 조절합니다. 이러한 조절에는 고전적인 유전적 기전뿐만 아니라 후성유전학적 변형이 포함되어, 복잡하고 역동적인 전사 조절 네트워크를 형성합니다3.
전통적인 유전학은 DNA 서열의 변화로 인한 유전자 기능의 변화에 집중하는 반면, 후성유전학은 기본 DNA 서열을 수정하지 않고 발생하는 가역적이고 유전 가능한 유전자 발현의 변화를 연구합니다. 감염, 화학 물질 노출, 의약품을 포함한 환경적 자극과 사이토카인 및 호르몬과 같은 내부 요인은 유전자의 후성유전적 지형을 변화시킬 수 있습니다. 이러한 변화는 유전자 발현을 조절하며 궁극적으로 세포 표현형과 생물학적 기능을 형성합니다. 유전자 발현을 조절하는 주요 후성유전적 기전으로는 DNA 메틸화, 히스톤 수정, 염색질 리모델링 및 비코딩 RNA 매개 조절이 있습니다. 초기 배아 발달 단계 동안 DNA 메틸화 표지는 거의 완전히 제거되었다가 이후 분화 과정에서 다시 확립됩니다4,5. 이러한 후성유전적 수정의 정밀한 제거와 재확립은 정상적인 세포 발달, 분화 및 성숙에 필수적입니다. 반면, 비정상적인 후성유전적 변화는 유전자 기능을 방해하고 질병의 발생 및 진행에 기여할 수 있습니다6. DNA 메틸화 패턴 또한 T 세포와 B 세포의 발달 및 분화 과정 동안 역동적으로 변화합니다7,8. 이러한 발견은 골수 조혈 모세포가 다양한 면역 세포 계통으로 분화하도록 유도하는 데 있어 후성유전적 조절의 결정적인 역할을 강조합니다. 히스톤 수정은 단핵구/대식세포 및 헬퍼 T 세포의 분화와 기능적 가소성을 조절하며9,10,11,12,13,14 Toll-like 수용체 경로를 포함한 주요 신호 전달 경로에 영향을 미칩니다15,16. 염색질 리모델러인 Mi-2beta는 흉선 세포에서 높게 발현되며 CD4 유전자 발현과 T 세포 발달을 직접적으로 조절합니다17. 비코딩 RNA 또한 면역 반응의 중요한 조절자로 작용합니다. 예를 들어, 인터페론-γ (IFN-γ)는 세포 내 세균 감염에 대한 숙주 방어에서 중심적인 역할을 하는 반면, miR-21은 IFN-γ mRNA를 직접 표적으로 하여 IFN-γ 생산을 억제할 수 있습니다18. 종합적으로, 이러한 결과들은 면역 반응을 조절하는 데 있어 후성유전적 기전의 중추적인 역할을 강조합니다.
면역 세포는 면역 기능의 중심이며, 이식편 생존의 주요 결정 요인인 이식 거부 반응의 핵심 동력입니다19,20,21. 광범위한 면역학적 연구를 통해 이식 거부 반응의 기저 메커니즘을 조사해 왔으나, 여전히 많은 측면이 충분히 이해되지 않은 상태입니다22. 또한, 후성유전학적 메커니즘이 면역 세포의 발달, 분화 및 성숙에 결정적인 역할을 한다는 증거가 증가하고 있습니다23,24. 따라서 후성유전학적 관점에서 이식 거부 반응의 분자적 기초를 조사하면, 장기 이식 후 이식 거부 반응과 만성 동종이식 신병증의 조기 개입 및 예방을 지원할 수 있으며, 이는 이식편의 장기 생존에 잠재적인 이점이 될 수 있습니다. 다양한 후성유전학적 변형 중 DNA 메틸화는 포유류 게놈에서 전사를 조절하는 가장 안정적인 메커니즘입니다25. 이에 따라, 본 리뷰에서는 면역 세포의 발달, 분화 및 기능에서 DNA 메틸화의 역할과 장기 이식 후 급성 거부 반응에 미치는 영향을 살펴봅니다.
리뷰 및 관점
1. DNA 메틸화 및 시퀀싱 기술
DNA 메틸화는 S-아데노실메티오닌을 메틸 공여체로 사용하며, DNA 메틸전이효소는 CpG 디뉴클레오타이드(cytosine–phosphate–guanine) 내 시토신의 5번 탄소에 메틸기가 공유 결합으로 추가되는 것을 촉매하여 시토신을 5-메틸시토신(5mC)으로 전환합니다. 이러한 수식은 DNA 서열 자체를 넘어 유전자 발현에 추가적인 조절 층을 더합니다. 일반적으로 메틸화 수준이 낮은 영역은 단백질 결합을 허용하며 활성 유전자 전사를 촉진하는 크로마틴 구조를 지원합니다26. 반대로, 메틸화된 DNA 영역은 메틸-CpG 결합 도메인(MBD) 단백질을 모집하거나, 히스톤 수식 및 크로마틴 리모델링 복합체를 촉진하거나, 또는 전사 인자와 다른 DNA 결합 단백질의 결합을 직접적으로 차단함으로써 유전자 전사와 발현을 억제할 수 있습니다27,28,29. 하지만 DNA 메틸화는 유전자 활성화와도 연관될 수 있으며, 특히 유전자 본체(gene body) 영역 내에서 유전자 발현과 양의 상관관계를 보입니다. 이러한 관계는 빈도가 낮지만, 유전자 본체 메틸화는 편재성으로 발현되는 유전자에서 흔히 나타납니다30,31.
DNA 메틸화의 생물학적 기능은 게놈 맥락 내에서 해석되어야 합니다. CpG 디뉴클레오타이드는 종종 CpG 섬(CpG islands)이라고 불리는 영역에 밀집되어 있으며, 이는 200 base pairs (bp) 이상의 길이를 가지고 G+C 함량이 최소 50%이며 관찰/기대(Obs/Exp) 비율이 최소 0.6인 DNA 세그먼트로 정의됩니다32. 포유류 게놈에서 CpG 디뉴클레오타이드는 상대적으로 드물며 게놈의 약 1%만을 차지합니다. 인간 유전자 프로모터의 약 60%가 CpG 섬과 연관되어 있으며, 이러한 영역은 일반적으로 정상 세포에서 메틸화되지 않은 상태입니다. 초기 발달 또는 조직 분화 과정에서 아주 적은 비율(~6%)만이 메틸화됩니다33,34. CpG 쇼어(CpG shores)는 CpG 섬의 상류 및 하류 2,000 bp 이내의 영역을 의미하며, 이들의 메틸화 상태는 전사 억제와 밀접한 상관관계를 갖습니다. 메틸화 재프로그래밍 과정 중 차등 메틸화 영역의 약 70%가 CpG 쇼어에서 발생합니다23,35. 또한, 대부분의 조직 특이적 메틸화는 CpG 섬보다는 쇼어에서 일어납니다34,35. CpG 쉘프(CpG shelves)는 CpG 쇼어의 상류 및 하류 2,000 bp 이내에 위치하며, "open sea"라는 용어는 CpG 섬, 쇼어 및 쉘프 이외의 모든 나머지 게놈 영역을 지칭합니다.
DNA 메틸화는 유지 메틸화(maintenance methylation)와 신규 메틸화(de novo methylation)라는 두 가지 주요 과정을 통해 일어납니다. 유지 메틸화는 주로 반보존적 DNA 복제 중에 발생하며, 이때 유지 메틸전달효소가 기존의 메틸화 패턴을 딸 가닥에 복제합니다. DNMT1은 주요 유지 메틸전달효소로 작용하며, 헤미메틸화(hemimethylated)된 DNA를 우선적으로 표적하고, 세포 내에서 가장 풍부한 메틸전달효소이며, 세포 주기의 S기 동안 활발하게 전사됩니다36. 반면, 신규 메틸화는 이전에 메틸화되지 않은 부위를 표적함으로써 DNA 복제와 독립적으로 새로운 메틸화 패턴을 형성합니다. DNMT3A와 DNMT3B는 주요 신규 메틸전달효소로 기능합니다. 이들은 배아줄기세포에서 높게 발현되며 배아 발달 과정 중 메틸화 패턴을 형성하는 데 필수적인 역할을 하지만, 세포가 분화됨에 따라 발현이 감소합니다27. DNMT3 가족에는 촉매 활성은 없으나 모체 게놈 각인(maternal genomic imprinting)을 형성하는 데 중요한 DNMT3L도 포함됩니다37. DNMT3L은 DNMT3A와 DNMT3B의 활성을 강화하여 DNA 메틸화 효율을 높입니다38. 게놈 전반에서 많은 메틸화된 시토신이 특히 유전자 본체 영역 내에서 DNA 탈메틸화를 거칩니다. 탈메틸화는 능동적 및 수동적 기전을 통해 일어납니다. 능동적 탈메틸화는 TET 효소에 의해 5mC가 산화된 유도체로 산화되는 과정을 포함합니다39. 이와 대조적으로, 수동적 탈메틸화는 유지 메틸전달효소 활성이 없을 때 DNA 복제 과정에서 메틸화된 시토신이 점진적으로 희석되어 발생합니다40.
DNA 메틸화는 유전자 전사와 발현을 조절하는 중심적인 역할을 하기 때문에, 메틸화 검출 기술의 발전에 힘입어 지난 10년 동안 주요 연구 초점이 되었습니다. 시료 전처리의 차이에 따라 DNA 메틸화 검출법은 크게 세 가지 범주로 분류할 수 있습니다41. 첫 번째 방법은 메틸화 민감성 제한 효소(methylation-sensitive restriction endonucleases)를 이용하는 것으로, 이 효소들은 메틸화된 DNA 영역을 선택적으로 절단하지 못하므로 메틸화 상태에 따라 서로 다른 크기의 단편을 생성합니다. 두 번째 방법은 5-메틸시토신을 특이적으로 인식하는 메틸화 결합 단백질이나 항체를 사용하여 메틸화된 DNA 단편을 농축하는 방식입니다. 세 번째 방법은 비설파이트(bisulfite) 처리를 통해 메틸화되지 않은 시토신을 우라실로 전환하고 메틸화된 시토신은 그대로 유지함으로써, 메틸화된 부위와 메틸화되지 않은 부위를 정밀하게 구별하는 방식입니다. 현재로서는 비설파이트 전환과 차세대 염기서열 분석(next-generation sequencing)을 결합한 방법이 DNA 메틸화 분석에 가장 널리 사용되는 전략입니다. 표 1에는 주요 메틸화 검출법의 원리, 장점, 한계점 및 이식 연구에서의 잠재적 응용 분야가 요약되어 있습니다. DNA 메틸화 검출 기술의 지속적인 발전은 후성유전학 연구를 위한 기술적 도구 모음을 확장하며 새로운 후성유전학적 치료 전략의 개발을 뒷받침하고 있습니다41,42,43,44,45.
2. 초기 흉선 세포 발달 및 분화의 메틸화 특성
이식 거부는 세포 매개 및 항체 매개 면역 반응을 모두 포함하는 복잡한 메커니즘과 관련이 있습니다. 이식 면역학의 현재 증거에 따르면, T 세포 매개 면역이 이식편 거부 반응에서 중심적인 역할을 합니다46,47. 흉선은 T 세포의 발달, 분화 및 성숙을 위한 일차 기관으로 기능합니다48. T 세포의 전구 단계인 흉선세포 발달 과정 동안, DNA 메틸화 패턴은 지속적이고 역동적인 리모델링을 거칩니다. 이러한 변화에는 T 세포 전사를 조절하는 게놈 영역에서의 탈메틸화와 메틸화가 모두 포함되지만, 이러한 과정이 완전히 균형 잡힌 방식으로 일어나지는 않습니다. 초기 발달 단계에서는 CD3, RUNX3, RORC, RAG1 및 LCK를 포함하여 주요 T 세포 수용체(TCR) 구성 요소와 필수 조절 인자를 인코딩하는 유전자들이 주로 탈메틸화를 거칩니다7. 보다 광범위하게는, 면역 세포 분화 과정 동안 메틸화보다는 탈메틸화가 더 빈번하게 발생합니다49,50. 반면, de novo 메틸화는 상대적으로 제한적이며 주로 흉선세포 발달의 초기 결정 단계에서 발생합니다7. De novo 메틸화는 줄기세포의 다능성과 관련된 유전자를 침묵시키는 데에도 결정적인 역할을 하며, 이를 통해 계보 결정과 분화가 가능해집니다7,51. 흉선세포 DNA 메틸화의 또 다른 중요한 특징은 대부분의 메틸화 변화가 분화 과정에서 일단 확립되면 안정적으로 유지되며 대체로 가역적이지 않다는 점입니다. 하지만 RAG 유전자와 같은 일부 유전자는 역동적인 조절을 보입니다. 즉, 초기 면역 세포 발달 단계에서 탈메틸화를 거친 후 후기 단계에서 다시 메틸화됩니다7.
3. 면역 세포 분화 및 기능에서의 DNA 메틸화
DNA 메틸화는 다양한 면역 세포 집단의 분화, 기능 및 가소성을 조절하는 데 중요한 역할을 하며, 이를 통해 이식 면역 반응의 결과에 영향을 미칩니다.
- 적응 면역 세포
- 헬퍼 T 세포 (CD4++ T 세포)
CD4+ T 세포는 급성 이식 거부 반응의 주요 작동 세포로 작용한다.52,53나이브 T 세포(Tn)는 여러 종류의 CD4+ T 세포로 분화합니다.+ 조절된 유전적, 후성유전적 및 추가적인 조절 기제들을 통해 T 세포 하위 집단이 형성됩니다. 특정 신호에 의해 자극을 받으면 나이브 T 세포(naive T cells)의 후성유전적 풍경이 변화할 수 있으며, 이로 인해 유전자 전사와 발현이 달라집니다. 이러한 변화는 궁극적으로 이식 후 면역 거부 반응의 유형과 강도 모두에 영향을 미칠 수 있습니다. T 세포 활성화 이후, 인터루킨 2 (IL2) 유전자는 급격한 탈메틸화를 거쳐 메틸화되지 않은 상태로 유지됩니다. 이러한 후성유전학적 변화는 T 세포 기능을 지원하는 유전자의 전사와 발현을 강화하는 데 필수적입니다.54.
DNA 메틸화는 또한 나이브 T 세포가 Th1 및 Th2 하위 집단으로 분화하도록 유도하는 데 결정적인 역할을 합니다.55,56나이브(naive) CD4 T 세포에서+ T 세포, 그 IFNG 해당 유전자는 고도로 메틸화되어 있으며, Th2 세포에서는 강한 메틸화 상태를 유지하는 반면 Th1 분화 과정에서만 특이적으로 탈메틸화됩니다.57이와 대조적으로, IL4 해당 유전자는 나이브 T 세포와 Th1 세포에서 강하게 메틸화되어 있으나, Th2 세포에서는 부분적인 탈메틸화가 일어난다.58외부 요인은 DNA 메틸전이효소(DNMT)의 활성을 조절함으로써 이러한 메틸화 패턴을 추가적으로 조절할 수 있습니다. 예를 들어, 비타민 D 결핍은 DNMT 활성을 증가시키고 다음과 같은 부위의 과메틸화를 촉진합니다. IFNG 유전자, 반면 비타민 D 보충은 이러한 변화를 되돌릴 수 있다59생물학적 노화 또한 DNA 메틸화 패턴에 영향을 미칩니다. Yu 등의 연구를 포함한 여러 연구에 따르면, DNMT3a mRNA 발현과 다음의 메틸화가 인터루킨-4 유전자 프로모터는 연령이 증가함에 따라 증가하는 반면, 메틸화는 IFNG 유전자 프로모터 감소60이러한 결과는 DNA 메틸화의 연령 관련 변화가 Th1과 Th2 세포 반응 사이의 균형을 변화시킬 수 있음을 시사합니다.
나이브 T 세포의 분화에는 다른 두 가지 중요한 CD4 분화 경로 또한 관여합니다.+ T 세포 하위 집단: Th17 및 조절 T(Treg) 세포61,62DNA 메틸화가 이 과정을 엄격하게 조절합니다. Th17 특이적 전사 인자인 ROR의 발현은γt와 사이토카인 IL-17은 각각의 유전자 프로모터 영역의 메틸화 상태에 따라 달라집니다.63,64,65이식 조직 내의 Th17 세포는 이식 거부 반응을 악화시키고 혈관 손상을 촉진할 수 있습니다.66DNA 메틸화는 Th17 세포의 기능적 가소성에도 영향을 미칩니다. 만성 염증 조건 하에서, IFNG Th17 세포 내의 유전자는 탈메틸화 상태로 유지되어, 이 세포들이 IFN-$\gamma$를 생성할 수 있게 합니다.γ그 결과, Th17 세포는 Th1 및 Th17 표현형의 특성을 모두 획득할 수 있습니다.67게다가, in vitro 특정 자극 조건이 Th17 세포를 강력한 면역 억제 활성을 가진 기능적 Treg 세포로 분화시킬 수 있다는 연구 결과들이 있습니다.68.
반대로, Treg 세포는 면역 관용을 유지하고 이식편 내의 항상성을 보존하는 데 중요한 역할을 합니다.69이 세포들은 흉선에서 기원하거나 TGF-β의 영향으로 말초에서 분화할 수 있습니다.β그 기원과 관계없이, Treg 세포는 전사 인자인 Foxp3를 일관되게 발현합니다.70후성유전적 조절, 특히 DNA 메틸화는 다음을 포함하여 Treg 기능과 관련된 유전자의 발현을 조절하는 데 핵심적인 역할을 합니다. Foxp3 그리고 Ctla4함으로써 이들의 전사 활성에 직접적인 영향을 미칩니다71,72,73,74흉선 Treg 세포 발달 과정 중, Foxp3 유전자는 점진적인 탈메틸화 과정을 거칩니다. 이러한 탈메틸화 상태는 세포가 말초 조직으로 이동한 후에도 지속되며, 적절한 강도의 지속적인 TCR 신호 전달이 필요합니다.62,75,76,77DNMT1이 없을 때, TCR 자극은 흉선과 말초 조직 모두에서 Foxp3 음성 T 세포의 Foxp3 발현을 효과적으로 유도할 수 있습니다. 그러나 TCR 자극이 충분한 후성유전학적 리모델링을 유도하지 못하면, 세포는 Treg 표현형을 유지하는 데 필수적인 Foxp3의 안정적인 발현을 유지할 수 없습니다.62,75,78Foxp3의 안정적인 발현은 주로 시스-조절 요소(cis-regulatory elements), 특히 보존된 비암호화 서열(conserved non-coding sequences, CNS)의 후성유전학적 변형에 의해 조절됩니다.71,79,80이 중 Treg 특이적 탈메틸화 영역(TSDR)의 메틸화 상태는 안정적인 Treg 집단과 불안정한 Treg 집단을 구분하는 신뢰할 수 있는 마커 역할을 한다.71,81,82,83,84,85,86천연 발생 나이브 조절 T 세포(nTregs)에서는 TSDR이 비메틸화 상태로 유지되어 Stat5, NFAT, Runx1 및 CREB와 같은 전사 인자의 모집이 가능하며, 이는 안정적인 Foxp3 발현을 지원합니다. 반면, 유도 조절 T 세포(iTregs)에서는 일반적으로 TSDR이 메틸화되어 Foxp3 발현의 안정성이 떨어집니다.72,74,87,88,89또한, TET1 또는 TET2와 같은 탈메틸화 효소의 소실은 Foxp3 유전자좌의 과메틸화를 유발하며, 이는 Treg 기능을 저해하고 자가면역 질환의 발생을 촉진합니다.90임상 연구 결과, 불현성 거부반응이 있는 신이식편 생검 시료에서 Foxp3 탈메틸화 수준이 높을수록 이식편 결과가 개선되는 것으로 나타났습니다.82,84.
동종이식 거부반응을 예방하고 면역 관용을 촉진하기 위한 수단으로 Treg 세포에 대한 연구가 점점 더 활발히 진행되고 있습니다.91이식 거부 반응을 유도하는 작동 T 세포를 효과적으로 억제하여 면역 관용을 유지하기 위해서는, 충분한 수의 조절 T 세포가 이식편 내에 지속적으로 존재해야 합니다.92하지만 Treg 세포는 어느 정도의 표현형 불안정성을 보입니다. 특정 조건 하에서 이들은 다음을 포함한 후성유전학적 변화를 겪을 수 있습니다. RORC 염증성 사이토카인 IL-17의 발현을 유도하는 유전자93,94이러한 변화는 Treg 세포의 가소성을 강조하며, 이들의 치료적 활용에 과제를 제기합니다. 추가적인 실험 연구들은 후성유전학적 조절이 Treg 기능을 강화할 수 있음을 시사합니다. 예를 들어, Guo는 등 동물 모델에서 DNA 메틸화 억제제와 IL-35를 병용 투여하면 Foxp3 발현이 증가하고 Treg 세포 분화가 촉진되며 이식편 생존율이 개선됨을 보여주었다.95이러한 진전에도 불구하고, Treg 세포 관련 기전에 대한 이해는 여전히 불충분한 상태입니다. 향후 연구에서는 Treg 분화를 촉진하고 Treg 표현형을 안정화하는 조건을 정의하여, 이러한 발견을 면역 매개 질환의 치료에 적용하는 것을 목표로 해야 합니다. - 독성 T 세포 (CD8+ )+ T 세포)
활성화 후, 나이브 CD8+ T 세포는 세포독성 T 림프구(CTL)로 알려진 세포독성 작동 세포로 분화합니다. 이러한 세포는 일반적으로 두 가지 하위 집단으로 분류되는데, IFN-을 생성하는 Tc1 세포와γ, 그리고 IL-4와 IL-5를 생성하는 Tc2 세포96임상 연구에 따르면 CD69의 비율은+/CD8+ 심장 이식 환자의 말초 혈액 내 T 세포는 심각한 거부 반응과 상관관계가 있습니다. 또한, CD8+ 심근 조직 내의 T 세포는 CD69를 발현합니다.+ 활성화된 표현형을 나타내며 퍼포린(perforin) 매개 세포독성 활성을 보인다97,98실험적 근거는 CD8의 역할을 더욱 뒷받침합니다.+ 이식 거부 반응에서의 T 세포. Jones 등. 흉선 절제술과 anti-CD4/CD8 처리를 통해 생성된 T 세포 결핍 마우스에서, TCR 항원 특이적 CD8의 전이가 ~임을 입증했다.+ T 세포만으로도 완전 불일치 동종 심장 이식편의 거부를 유도하기에 충분하다99이러한 결과는 CD8의 결정적인 기여를 강조합니다.+ 면역 매개 이식 거부 반응에 대한 T 세포. DNA 메틸화는 CD8 또한 조절합니다.+ T 세포의 발달 및 기능. DNMT1이 없을 때 흉선세포의 생존이 저해됨100또한, 성숙한 CD8 T 세포에서 DNMT3a를 결손시켰을 때+ T 세포는 말단 작동 세포로의 분화는 줄이면서 기억 세포로의 분화를 촉진합니다. 이러한 효과는 부분적으로 T 세포 인자 1(Tcf1)의 발현 증가에 의해 매개되는데, 이는 DNMT3a가 Tcf7 유전자의 프로모터 영역을 표적으로 하여 초기 작동 CD8 T 세포에서 데 노보(de novo) 메틸화를 유도하기 때문입니다.+ T 세포101또한, 급성 바이러스 감염 마우스 모델에서 T 세포 내 TET2의 조건부 결손은 기억 CD8 T 세포의 형성을 촉진합니다.+ T 세포102종합적으로, 이러한 결과들은 DNA 메틸화가 CD8의 발달, 분화 및 기능적 반응을 결정적으로 조절한다는 것을 입증합니다.+ T 세포 - B 세포
T 세포는 이식 거부 반응에서 중심적인 역할을 하지만, B 세포 또한 세포성 및 체액성 거부 반응 모두에 기여합니다.103,104체액성 거부반응은 주로 B 림프구에 의해 매개됩니다. B 세포는 활성화되면 형질세포로 분화하여 다량의 특이 항체를 생성 및 분비하며, 이는 이식편에서 염증성 손상을 유발할 수 있습니다.105DNA 메틸화는 B세포 면역 반응을 추가적으로 조절합니다. Lee 외. 초기 B 세포 발달 과정 중, 특히 유전자 본체(gene body) 영역과 비-CpG 섬(non-CpG island) 영역 내에서 광범위한 DNA 탈메틸화가 일어남을 보여주었습니다. 이와 대조적으로, B 세포 성숙의 후기 단계에서는 DNA 메틸화의 조절 영향이 덜 뚜렷해집니다.106또한, Shaknovich는 외. 생식 중심 B 세포와 나이브 B 세포 간의 DNA 메틸화 프로파일에서 유의미한 차이를 확인하였다107생식 중심 B 세포는 탈메틸화를 거치며, 이는 기능성 유전자의 발현을 변화시키고 NF-κB를 포함한 주요 신호 전달 경로에 영향을 미칩니다.κB 및 MAPK 경로107,108기능 연구를 통해 DNA 메틸화가 B세포 활성을 억제한다는 점이 추가로 입증되었습니다. de novo 메틸전이효소인 Dnmt3a 및 Dnmt3b의 결손(Dnmt3 결핍)은 B세포의 발달과 성숙을 촉진합니다. 동시에, 이는 B세포 활성화를 강화하고 생식중심 B세포 및 형질세포의 증식을 지원합니다. 이러한 결과는 de novo DNA 메틸화가 정상적으로 B세포 활성화를 제한하고 형질세포 분화를 억제하는 역할을 함을 나타냅니다.109.
- 헬퍼 T 세포 (CD4++ T 세포)
- 선천 면역 세포
고형 장기 이식 후의 면역 반응은 선천성 면역과 적응성 면역 간의 조절된 상호작용을 포함합니다. 선천성 면역 체계는 수지상 세포, 대식세포, 자연 살해 세포, 호중구와 같은 조혈성 및 비조혈성 세포를 포함하며, 이들 모두는 이식 후 면역 거부 반응에 기여할 수 있습니다.110.
수지상 세포는 선천 면역과 적응 면역을 연결하는 핵심 조절자로 작용하며, 면역 활성화 또는 면역 관용을 모두 촉진할 수 있는 능력을 갖추고 있습니다.111,112단핵구(monocytes)로부터 분화하는 동안, 수지상세포(dendritic cells)는 DNA 메틸화의 광범위한 변화를 겪으며, 이는 많은 게놈 영역 전반에 걸쳐 메틸화 수준이 현저히 감소하는 것이 특징입니다. 이러한 변화는 주로 계통 지정(lineage specification)과 면역 활성화에 필수적인 인핸서(enhancer) 영역 및 전사 인자 결합 부위에서 일어납니다.113,114,115이러한 분화 과정의 특징은 세포 표면에서 CD14의 하향 조절과 CD209의 상향 조절이 일어난다는 점입니다. 이러한 변화는 해당 유전자의 프로모터 영역 내 CpG 사이트의 탈메틸화와 상관관계가 있습니다. CD209 유전자116또한, DNA 메틸화 억제제로 처리하면 CD40 및 CD86과 같은 공동 자극 분자의 발현이 유의미하게 증가하며, 이를 통해 항원 제시 능력이 향상되고 수지상 세포의 기능적 성숙이 촉진됩니다. 이러한 결과는 DNA 메틸화가 수지상 세포의 기능과 면역 활성을 직접적으로 조절한다는 것을 나타냅니다.117.
단핵구와 대식세포는 비정상적인 세포와 침입한 병원체의 식세포 작용 및 제거를 매개하므로 면역 체계의 필수적인 구성 요소입니다. 방대한 증거에 따르면 대식세포는 초기 급성 이식 거부 반응에서 관찰되는 염증성 손상뿐만 아니라, 후기 만성 거부 반응 동안의 섬유화 진행에도 기여하는 것으로 나타났습니다.118,119M1 대식세포(고전적 활성형)와 M2 대식세포(대안적 활성형) 사이의 균형은 면역 반응을 결정적으로 조절합니다. M1 대식세포가 우세하게 되면 염증과 조직 손상이 촉진됩니다. 반대로, DNA 메틸화 억제제나 유전자 녹아웃(knockout)을 통해 DNMT1 발현을 감소시키면 퍼옥시좀 증식체 활성 수용체의 메틸화가 낮아집니다. γ1 (PPARγ1) 프로모터. 이러한 변화는 M2 대식세포 활성화를 촉진하며 면역 매개 손상을 제한하는 데 도움을 줍니다.120DNA 메틸화 패턴의 차이는 대식세포 기능에서 후성유전적 조절의 역할을 더욱 부각시킵니다. 연구들에 따르면 관상동맥질환 유무에 따라 말초혈액 단핵구/대식세포 내 특정 유전자의 프로모터 메틸화에서 유의미한 변이가 확인되었습니다.121또한, 단핵구의 대식세포 분화 과정에는 전사 인자 결합 부위의 메틸화 수준에 상당한 변화가 수반되며, 이는 주요 조절 영역의 DNA 메틸화가 대식세포 분화에서 정밀하고 결정적인 역할을 한다는 것을 시사합니다.122.
자연살해(NK) 세포는 이식 거부 반응에서 작동 및 조절 기능을 모두 수행합니다. NK 세포는 이식편 거부 반응을 촉진하는 동시에 면역 관용의 형성에 기여할 수 있습니다. 골수 조혈모세포가 NK 세포로 분화하는 동안, 다음의 메틸화 감소가 일어납니다. 킬러 세포 면역글로불린 수용체(KIR) 해당 유전자는 KIR 발현 증가를 유도하며, 이는 면역 조절에서 중요한 역할을 합니다. 또한, DNA 메틸화 억제제 처리는 해당 부위의 탈메틸화를 유도합니다. 킬러 세포 면역글로불린 수용체 (Killer Cell Immunoglobulin-like Receptor) 유전자를 조절하고 NK 세포에서 해당 유전자의 발현을 촉진합니다.123,124이러한 결과는 DNA 메틸화가 NK 세포 기능의 핵심 조절 인자임을 나타냅니다.
호중구 또한 이식 거부 반응에 활발하게 참여합니다. 활성화된 호중구는 항원제시세포를 모집하고 활성화하는 다양한 매개체들을 방출하며, 이를 통해 항원 특이적 T 세포 반응을 개시하고 면역 거부 반응을 증폭시킵니다.125,126,127호중구에서 발현되는 앵커 단백질인 PRV-1은 생리적 및 병리적 조건 모두에서 프로모터 부위의 DNA 메틸화에 의해 조절됩니다.128.
4. 주요 신호 전달 경로의 DNA 메틸화
DNA 메틸화는 기능성 유전자의 전사를 직접적으로 조절할 뿐만 아니라, 주요 신호 전달 경로를 조절함으로써 세포 행동에 영향을 미칩니다. 예를 들어, 분비성 frizzled 관련 단백질(SFRP) 유전자의 프로모터 영역의 과메틸화는 유전자 침묵을 유도합니다. 이러한 침묵은 Wnt/β-catenin 신호 전달 경로의 정상적인 조절을 방해하여, 해당 경로의 비정상적인 활성화를 초래하고 대장암의 발생을 촉진합니다129. 마찬가지로, 면역 세포 내 mTOR 신호 전달 경로의 상위 음성 조절 인자의 과메틸화는 이들의 발현을 감소시켜 과도한 mTOR 활성화를 유도하며, 이는 당뇨병성 신장의 염증성 손상에 기여합니다. decitabine이나 RNA 간섭과 같은 개입은 DNMT1을 억제하여 이러한 조절 유전자의 메틸화를 감소시킴으로써 당뇨병성 신증의 진행을 완화할 수 있습니다130. 또한, DNA 메틸전이효소 억제제는 NF-κB 및 JAK/STAT와 같은 신호 전달 경로를 조절하여 세포 증식을 억제함으로써 질병의 발생과 진행에 영향을 미칠 수 있습니다131,132 (그림 1).
5. 임상적 함의: 면역억제제와 DNA 메틸화의 상호작용
표준 면역억제제들이 면역 세포의 DNA 메틸화 패턴에 영향을 미치는 것으로 나타났으나, 그 효과는 약물 종류와 게놈 맥락에 따라 다르게 나타납니다. T 세포의 IFNγ 프로모터 메틸화 연구에 따르면, mycophenolic acid는 T 세포 활성화로 유도된 탈메틸화를 억제하는 반면, tacrolimus는 해당 특정 궤적에서 동일한 효과를 나타내지 않는 것으로 밝혀졌습니다133. 이와 대조적으로, sirolimus는 mTOR 신호 전달 경로에 미치는 영향을 통해 전반적인 메틸화 프로필을 조절하는 것으로 나타났으며134, DNA 메틸화 자체가 mTOR 경로를 조절함으로써 신장 이식 후 동종이식편의 생존 및 급성 거부에 영향을 미치는 것으로 입증되었습니다135. 또한, dexamethasone과 같은 글루코코르티코이드는 말초 면역 구획 내에서 광범위한 DNA 메틸화 리모델링을 유도합니다. 호중구 dexamethasone 메틸화 지수는 글루코코르티코이드 노출의 민감한 약동학적 마커 역할을 하며, 면역억제성 면역 프로필과 연관되어 있습니다136. ATG 유도 요법 또한 신장 이식 수혜자의 DNA 메틸로옴을 변화시키는 것으로 보고되었으며, 메틸화 기반 모델이 전사체 프로필보다 감염 위험을 더 효과적으로 예측하는 것으로 나타났습니다137. 개별적인 후성유전학적 가변성이 이러한 치료법에 대한 환자의 반응에 영향을 미칠 수 있으며, 이는 메틸화 바이오마커가 잠재적으로 개인 맞춤형 면역억제 요법의 지침이 될 수 있음을 시사합니다136,137. 이러한 약물-후성유전체 상호작용은 장기적인 이식 결과 최적화에 중요한 시사점을 가질 수 있으므로 추가적인 연구가 필요합니다.
6. 과제 및 전망: 후성유전학적 조절과 면역 안전성의 균형
이식 분야에서의 가능성에도 불구하고, azacitidine 및 decitabine과 같은 DNMT 억제제(DNMTis)는 감염 및 종양 형성 위험을 초래합니다. 이러한 약제 치료는 심각한 패혈성 합병증과 관련이 있으며138,139, 전신적 저메틸화제 노출은 이차성 급성 골수성 백혈병으로의 전환 위험 증가와도 관련이 있으며, 영향을 받은 환자의 중앙 전체 생존 기간은 5개월 미만으로 나타났습니다140. 약물 관련 독성 외에도, 세포 유형 특이성의 부족이 중요한 과제로 남아 있습니다. 전신적 탈메틸화는 작동 T 세포를 활성화하는 동시에 Treg 구획을 불안정하게 하여 거부 반응을 잠재적으로 악화시킬 수 있으며141, CMV와 같은 기회성 병원균에 대한 CD8+ 기억 T 세포의 보호 기능을 저해할 수 있습니다101,102.
이러한 한계를 극복하기 위해, 최신 전략들은 세포 유형 및 유전자 자리 특이적 조절을 달성하는 것을 목표로 하고 있습니다. 나노입자 플랫폼은 DNMT 억제제를 이식편 침윤 세포에 우선적으로 전달할 수 있습니다142,143. CRISPR/dCas9 에피게놈 편집은 전신적 영향 없이 Foxp3-TSDR의 표적 탈메틸화를 가능하게 하여 Tregs를 안정화합니다144,145. 바이오마커 기반 모니터링 또한 더 안전한 임상 적용을 뒷받침할 수 있습니다146.
결론
이식편의 생존율을 높이는 것은 장기 이식 연구의 주요 목표입니다. 이식 거부 반응은 공여 장기와 수혜자 모두의 후성유전학적 변형이 동적으로 상호작용하여 전체적인 후성유전학적 지형을 형성하는 복잡한 면역학적 과정입니다. 수혜자의 면역 체계는 이식 거부 반응의 주요 동인입니다. 후성유전학적 기제는 면역 세포의 발달, 분화 및 기능을 결정적으로 조절하며, 이를 통해 이식 후 거부 반응과 이식편 생존에 영향을 미칩니다. 또한, 면역억제제, 감염 및 이식 후 환경과 같은 요인들은 후성유전학적 조절과 면역 반응 사이의 관계를 더욱 복잡하게 만듭니다. 이러한 요인들은 후성유전학적 패턴을 변화시키고 면역 세포의 행동을 수정하여 이식 결과에 또 다른 복잡성을 더할 수 있습니다. 따라서 새로운 바이오마커와 치료 표적을 식별하고 장기 이식의 진단 방법 및 치료 전략을 개선하기 위해 후성유전학적 기제와 이식 거부 반응 사이의 관계에 대한 추가적인 연구가 필요합니다.
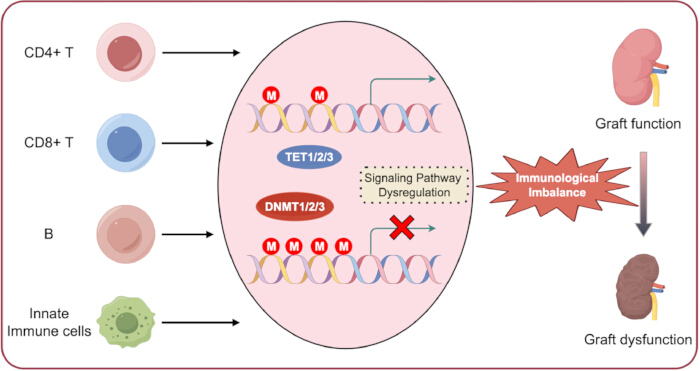
그림 1이식 면역에서의 DNA 메틸화. 면역 세포는 수명 전반에 걸쳐 고유한 DNA 메틸화 패턴을 유지한다. 이러한 생리적 과정의 붕괴는 비정상적인 DNA 메틸화와 하위 신호 전달 경로의 조절 장애를 유발할 수 있으며, 결과적으로 면역 항상성 손상과 동종이식편 기능 부전으로 이어질 수 있습니다.이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
| 방법 | 원리 | 장점 | 한계점 | 이식 분야의 응용 |
| MeDIP-seq⁴¹ | Anti-5mC 항체 농축 + NGS | 전장 유전체 분석에 있어 비용 효율적이며, 대규모 샘플 코호트에 적합함 | 낮은 해상도 (~100–300 bp); 5mC와 5hmC를 구별할 수 없음 | 이식 수혜자 유래 말초혈액 단핵구(PBMC)의 전신적 메틸화 변화 스크리닝 |
| WGBS⁴² | 중아황산염 전환 + 차세대 염기서열 분석(NGS) | 단일 염기 해상도; 게놈 전반의 커버리지 | 높은 비용; 대량의 데이터 필요 | 이식 생검 조직의 포괄적 메틸로옴 매핑; 새로운 거부반응 관련 DMR의 식별 |
| RRBS⁴³ | 제한 효소 농축 + 비설파이트 전환 + NGS | 비용 효율적; CpG 풍부 지역의 높은 커버리지 | 비-CpG 및 CpG 결핍 지역의 제한적인 커버리지 | 시퀀싱 비용을 절감한 이식 조직의 표적 메틸로옴 분석 |
| 메틸화 특이적 PCR⁴⁴ | 비스ulfite 전환 + 메틸화 특이적 프라이머를 이용한 PCR | 높은 민감도; 간편하고 신속하며 저렴한 비용 | 특정 궤적(loci)만을 표적으로 함; 정성적 또는 제한적인 정량적 분석 | 발견 코호트로부터 도출된 후보 DMR의 검증; 임상 바이오마커 개발 |
| 파이로시퀀싱(Pyrosequencing)⁴⁵ | 중아황산염 전환 + 합성 기반 시퀀싱 | 정량적; 표적 궤적에서의 단일 염기 해상도 | 중간 정도의 처리량; 사전 표적 식별 필요 | Treg 세포의 FOXP3 TSDR과 같은 특정 CpG 부위에서의 메틸화 수준에 대한 정밀 정량 분석 |
표 1: 주요 DNA 메틸화 검출 방법 요약. 이 표는 일반적으로 사용되는 DNA 메틸화 검출 방법과 그 원리, 장점, 한계점 및 이식 연구에서의 잠재적 응용 분야를 요약하여 보여줍니다.
공개 사항
저자들은 경쟁 관계나 잠재적인 이해 상충이 없음을 밝힙니다.
감사의 글
저자들은 그림 제작에 도움을 준 Figdraw에 감사드립니다.
참고문헌
- Güell-Alonso R, Cabrera-Pérez R, Vives J. Immunocompatibility in transplantation: adapting to a changing therapeutic landscape. Front Immunol. 2025;16:1648534.
- Li XQ, Ding RD, Cai JZ. Organ transplantation: current status, challenges, and future prospects. MedComm. 2026;7(1):e70567.
- Medzhitov R, Horng T. Transcriptional control of the inflammatory response. Nat Rev Immunol. 2009;9:692–703.
- Bagci H, Fisher AG. DNA demethylation in pluripotency and reprogramming: the role of tet proteins and cell division. Cell Stem Cell. 2013;13:265–269.
- Gu TP, et al. The role of Tet3 DNA dioxygenase in epigenetic reprogramming by oocytes. Nature. 2011;477:606–610.
- Cedar H, Bergman Y. Programming of DNA methylation patterns. Annu Rev Biochem. 2012;81:97–117.
- Rodriguez RM, et al. Regulation of the transcriptional program by DNA methylation during human αβ T-cell development. Nucleic Acids Res. 2015;43:760–774.
- Rauch TA, et al. A human B cell methylome at 100-base pair resolution. Proc Natl Acad Sci U S A. 2009;106:671–678.
- Hardbower DM, et al. Ornithine decarboxylase regulates M1 macrophage activation and mucosal inflammation via histone modifications. Proc Natl Acad Sci U S A. 2017;114:E751–E760.
- De Santa F, et al. The histone H3 lysine-27 demethylase Jmjd3 links inflammation to inhibition of polycomb-mediated gene silencing. Cell. 2007;130:1083–1094.
- Antignano F, Zaph C. Regulation of CD4 T-cell differentiation and inflammation by repressive histone methylation. Immunol Cell Biol. 2015;93:245–252.
- Wei G, et al. Global mapping of H3K4me3 and H3K27me3 reveals specificity and plasticity in lineage fate determination of differentiating CD4+ T cells. Immunity. 2009;30:155–167.
- Liu Z, et al. The histone H3 lysine-27 demethylase Jmjd3 plays a critical role in specific regulation of Th17 cell differentiation. J Mol Cell Biol. 2015;7:505–516.
- He H, et al. Histone methylation mediates plasticity of human FOXP3(+) regulatory T cells by modulating signature gene expressions. Immunology. 2014;141:362–376.
- Menden H, et al. Histone deacetylase 6 regulates endothelial MyD88-dependent canonical TLR signaling, lung inflammation, and alveolar remodeling in the developing lung. Am J Physiol Lung Cell Mol Physiol. 2019;317:L332–L346.
- Irizarry-Caro RA, et al. TLR signaling adapter BCAP regulates inflammatory to reparatory macrophage transition by promoting histone lactylation. Proc Natl Acad Sci U S A. 2020;117:30628–30638.
- Williams CJ, et al. The chromatin remodeler Mi-2beta is required for CD4 expression and T cell development. Immunity. 2004;20:719–733.
- Yang F, et al. MiR-21 is remotely governed by the commensal bacteria and impairs anti-TB immunity by down-regulating IFN-γ. Front Microbiol. 2020;11:512581.
- Nankivell BJ, Kuypers DR. Diagnosis and prevention of chronic kidney allograft loss. Lancet. 2011;378:1428–1437.
- Zununi Vahed S, et al. Genetics and epigenetics of chronic allograft dysfunction in kidney transplants. Iran J Kidney Dis. 2016;10:1–9.
- Goldberg RJ, Weng FL, Kandula P. Acute and chronic allograft dysfunction in kidney transplant recipients. Med Clin North Am. 2016;100:487–503.
- Wood KJ, Bushell A, Hester J. Regulatory immune cells in transplantation. Nat Rev Immunol. 2012;12:417–430.
- Ji H, et al. Comprehensive methylome map of lineage commitment from haematopoietic progenitors. Nature. 2010;467:338–342.
- Suarez-Alvarez B, Rodriguez RM, Fraga MF, Lopez-Larrea C. DNA methylation: a promising landscape for immune system-related diseases. Trends Genet. 2012;28:506–514.
- Eckhardt F, et al. DNA methylation profiling of human chromosomes 6, 20 and 22. Nat Genet. 2006;38:1378–1385.
- Thomson JP, et al. CpG islands influence chromatin structure via the CpG-binding protein Cfp1. Nature. 2010;464:1082–1086.
- Esteller M. Epigenetic gene silencing in cancer: the DNA hypermethylome. Hum Mol Genet. 2007;16(Spec No 1):R50–R59.
- Lopez-Serra L, Esteller M. Proteins that bind methylated DNA and human cancer: reading the wrong words. Br J Cancer. 2008;98:1881–1885.
- Kuroda A, et al. Insulin gene expression is regulated by DNA methylation. PLoS One. 2009;4:e6953.
- Hellman A, Chess A. Gene body-specific methylation on the active X chromosome. Science. 2007;315:1141–1143.
- Jones PA. Functions of DNA methylation: islands, start sites, gene bodies and beyond. Nat Rev Genet. 2012;13:484–492.
- Esteller M. Epigenetics in evolution and disease. Lancet. 2008;372:S90–S96.
- Straussman R, et al. Developmental programming of CpG island methylation profiles in the human genome. Nat Struct Mol Biol. 2009;16:564–571.
- Irizarry RA, et al. The human colon cancer methylome shows similar hypo- and hypermethylation at conserved tissue-specific CpG island shores. Nat Genet. 2009;41:178–186.
- Doi A, et al. Differential methylation of tissue- and cancer-specific CpG island shores distinguishes human induced pluripotent stem cells, embryonic stem cells and fibroblasts. Nat Genet. 2009;41:1350–1353.
- Portela A, Esteller M. Epigenetic modifications and human disease. Nat Biotechnol. 2010;28:1057–1068.
- Bourc'his D, et al. Dnmt3L and the establishment of maternal genomic imprints. Science. 2001;294:2536–2539.
- Gowher H, et al. Mechanism of stimulation of catalytic activity of Dnmt3A and Dnmt3B DNA-(cytosine-C5)-methyltransferases by Dnmt3L. J Biol Chem. 2005;280:13341–13348.
- Wu X, Zhang Y. TET-mediated active DNA demethylation: mechanism, function and beyond. Nat Rev Genet. 2017;18:517–534.
- Bochtler M, Kolano A, Xu GL. DNA demethylation pathways: additional players and regulators. Bioessays. 2017;39:1–13.
- Laird PW. Principles and challenges of genomewide DNA methylation analysis. Nat Rev Genet. 2010;11:191–203.
- Lister R, et al. Human DNA methylomes at base resolution show widespread epigenomic differences. Nature. 2009;462:315–322.
- Meissner A, et al. Reduced representation bisulfite sequencing for comparative high-resolution DNA methylation analysis. Nucleic Acids Res. 2005;33:5868–5877.
- Herman JG, et al. Methylation-specific PCR: a novel PCR assay for methylation status of CpG islands. Proc Natl Acad Sci U S A. 1996;93:9821–9826.
- Colella S, et al. Sensitive and quantitative universal pyrosequencing methylation analysis of CpG sites. Biotechniques. 2003;35:114–120.
- Nankivell BJ, Alexander SI. Rejection of the kidney allograft. N Engl J Med. 2010;363:1451–1462.
- Gelman AE, et al. CD4+ T lymphocytes are not necessary for the acute rejection of vascularized mouse lung transplants. J Immunol. 2008;180:4754–4762.
- Seo W, Taniuchi I. Transcriptional regulation of early T-cell development in the thymus. Eur J Immunol. 2016;46:531–538.
- Calvanese V, et al. A promoter DNA demethylation landscape of human hematopoietic differentiation. Nucleic Acids Res. 2012;40:116–131.
- Lee ST, et al. A global DNA methylation and gene expression analysis of early human B-cell development reveals a demethylation signature and transcription factor network. Nucleic Acids Res. 2012;40:11339–11351.
- Challen GA, et al. Dnmt3a is essential for hematopoietic stem cell differentiation. Nat Genet. 2011;44:23–31.
- Chitilian HV, et al. The strength of cell-mediated xenograft rejection in the mouse is due to the CD4+ indirect response. Xenotransplantation. 1998;5:93–98.
- Pierson RN, et al. Xenogeneic skin graft rejection is especially dependent on CD4+ T cells. J Exp Med. 1989;170:991–996.
- Bruniquel D, Schwartz RH. Selective, stable demethylation of the interleukin-2 gene enhances transcription by an active process. Nat Immunol. 2003;4:235–240.
- Sanders VM. Epigenetic regulation of Th1 and Th2 cell development. Brain Behav Immun. 2006;20:317–324.
- Wilson CB, Rowell E, Sekimata M. Epigenetic control of T-helper-cell differentiation. Nat Rev Immunol. 2009;9:91–105.
- Schoenborn JR, et al. Comprehensive epigenetic profiling identifies multiple distal regulatory elements directing transcription of the gene encoding interferon-gamma. Nat Immunol. 2007;8:732–742.
- Santangelo S, et al. Chromatin structure and DNA methylation of the IL-4 gene in human T(H)2 cells. Chromosome Res. 2009;17:485–496.
- Jiao X, et al. Vitamin D deficiency during pregnancy affects the function of Th1/Th2 cells and methylation of IFN-γ gene in offspring rats. Immunol Lett. 2019;212:98–105.
- Xia Y, et al. Age-related changes in DNA methylation associated with shifting Th1/Th2 balance. Inflammation. 2016;39:1892–1903.
- Muranski P, Restifo NP. Essentials of Th17 cell commitment and plasticity. Blood. 2013;121:2402–2414.
- Ohkura N, et al. T cell receptor stimulation-induced epigenetic changes and Foxp3 expression are independent and complementary events required for Treg cell development. Immunity. 2012;37:785–799.
- Janson PCJ, et al. Profiling of CD4+ T cells with epigenetic immune lineage analysis. J Immunol. 2011;186:92–102.
- Thomas RM, Sai H, Wells AD. Conserved intergenic elements and DNA methylation cooperate to regulate transcription at the il17 locus. J Biol Chem. 2012;287:25049–25059.
- Huang Y, et al. Decipherer manifestations and Treg/Th17 imbalance in multi-staging rheumatoid arthritis and correlation with TSDR/RORC methylation. Mol Immunol. 2020;127:1–11.
- Yuan X, et al. A novel role of CD4 Th17 cells in mediating cardiac allograft rejection and vasculopathy. J Exp Med. 2008;205:3133–3144.
- Cohen CJ, et al. Human Th1 and Th17 cells exhibit epigenetic stability at signature cytokine and transcription factor loci. J Immunol. 2011;187:5615–5626.
- Ye J, et al. Human tumor-infiltrating Th17 cells have the capacity to differentiate into IFN-γ+ and FOXP3+ T cells with potent suppressive function. Eur J Immunol. 2011;41:936–951.
- Issa F, Chandrasekharan D, Wood KJ. Regulatory T cells as modulators of chronic allograft dysfunction. Curr Opin Immunol. 2011;23:648–654.
- Josefowicz SZ, Rudensky A. Control of regulatory T cell lineage commitment and maintenance. Immunity. 2009;30:616–625.
- Baron U, et al. DNA demethylation in the human FOXP3 locus discriminates regulatory T cells from activated FOXP3(+) conventional T cells. Eur J Immunol. 2007;37:2378–2389.
- Kim HP, Leonard WJ. CREB/ATF-dependent T cell receptor-induced FoxP3 gene expression: a role for DNA methylation. J Exp Med. 2007;204:1543–1551.
- Morikawa H, et al. Differential roles of epigenetic changes and Foxp3 expression in regulatory T cell-specific transcriptional regulation. Proc Natl Acad Sci U S A. 2014;111:5289–5294.
- Polansky JK, et al. Methylation matters: binding of Ets-1 to the demethylated Foxp3 gene contributes to the stabilizationization of Foxp3 expression in regulatory T cells. J Mol Med (Berl). 2010;88:1029–1040.
- Toker A, et al. Active demethylation of the Foxp3 locus leads to the generation of stable regulatory T cells within the thymus. J Immunol. 2013;190:3180–3188.
- Jordan MS, et al. Thymic selection of CD4+CD25+ regulatory T cells induced by an agonist self-peptide. Nat Immunol. 2001;2:301–306.
- Kawahata K, et al. Generation of CD4(+)CD25(+) regulatory T cells from autoreactive T cells simultaneously with their negative selection in the thymus and from nonautoreactive T cells by endogenous TCR expression. J Immunol. 2002;168:4399–4405.
- Josefowicz SZ, Wilson CB, Rudensky AY. Cutting edge: TCR stimulation is sufficient for induction of Foxp3 expression in the absence of DNA methyltransferase 1. J Immunol. 2009;182:6648–6652.
- Floess S, et al. Epigenetic control of the foxp3 locus in regulatory T cells. PLoS Biol. 2007;5:e38.
- Polansky JK, et al. DNA methylation controls Foxp3 gene expression. Eur J Immunol. 2008;38:1654–1663.
- Barzaghi F, et al. Demethylation analysis of the FOXP3 locus shows quantitative defects of regulatory T cells in IPEX-like syndrome. J Autoimmun. 2012;38:49–58.
- Bestard O, et al. Intragraft regulatory T cells in protocol biopsies retain foxp3 demethylation and are protective biomarkers for kidney graft outcome. Am J Transplant. 2011;11:2162–2172.
- Liu J, et al. T regulatory cells in cord blood—FOXP3 demethylation as reliable quantitative marker. PLoS One. 2010;5:e13267.
- Wieczorek G, et al. Quantitative DNA methylation analysis of FOXP3 as a new method for counting regulatory T cells in peripheral blood and solid tissue. Cancer Res. 2009;69:599–608.
- Zhuo C, et al. Higher FOXP3-TSDR demethylation rates in adjacent normal tissues in patients with colon cancer were associated with worse survival. Mol Cancer. 2014;13:153.
- Lal G, et al. Epigenetic regulation of Foxp3 expression in regulatory T cells by DNA methylation. J Immunol. 2009;182:259–273.
- Zhou L, Chong MM, Littman DR. Plasticity of CD4+ T cell lineage differentiation. Immunity. 2009;30:646–655.
- Burchill MA, et al. IL-2 receptor beta-dependent STAT5 activation is required for the development of Foxp3+ regulatory T cells. J Immunol. 2007;178:280–290.
- Kanamori M, et al. Induced regulatory T cells: their development, stability, and applications. Trends Immunol. 2016;37:803–811.
- Yang R, et al. Hydrogen sulfide promotes Tet1- and Tet2-mediated Foxp3 demethylation to drive regulatory T cell differentiation and maintain immune homeostasis. Immunity. 2015;43:251–263.
- Issa F, Robb RJ, Wood KJ. The where and when of T cell regulation in transplantation. Trends Immunol. 2013;34:107–113.
- Issa F, Wood KJ. CD4+ regulatory T cells in solid organ transplantation. Curr Opin Organ Transplant. 2010;15:757–764.
- Suarez-Alvarez B, Baragano Raneros A, Ortega F, Lopez-Larrea C. Epigenetic modulation of the immune function: a potential target for tolerance. Epigenetics. 2013;8:694–702.
- Schmidl C, et al. Epigenetic reprogramming of the RORC locus during in vitro expansion is a distinctive feature of human memory but not naive Treg. Eur J Immunol. 2011;41:1491–1498.
- Guo H, et al. Inhibiting cardiac allograft rejection with interleukin-35 therapy combined with decitabine treatment in mice. Transpl Immunol. 2013;29:99–104.
- Betts RJ, Kemeny DM. CD8+ T cells in asthma: friend or foe? Pharmacol Ther. 2009;121:123–131.
- Schwengerdt KO, Fricker FJ, Bahjat KS, Kuntz ST. Increased expression of the lymphocyte early activation marker CD69 in peripheral blood correlates with histologic evidence of cardiac allograft rejection. Transplantation. 2000;69:2102–2107.
- Rutella S, et al. Induction of CD69 antigen on normal CD4+ and CD8+ lymphocyte subsets and its relationship with the phenotype of responding T-cells. Cytometry. 1999;38:95–101.
- Jones ND, et al. T-cell activation, proliferation, and memory after cardiac transplantation in vivo. Ann Surg. 1999;229:570–578.
- Lee PP, et al. A critical role for Dnmt1 and DNA methylation in T cell development, function, and survival. Immunity. 2001;15:763–774.
- Ladle BH, et al. De novo DNA methylation by DNA methyltransferase 3a controls early effector CD8+ T-cell fate decisions following activation. Proc Natl Acad Sci U S A. 2016;113:10631–10636.
- Carty SA, et al. The loss of TET2 promotes CD8(+) T cell memory differentiation. J Immunol. 2018;200:82–91.
- Schiffer L, et al. Chemokine CXCL13 as a new systemic biomarker for B-cell involvement in acute T cell-mediated kidney allograft rejection. Int J Mol Sci. 2019;20(10):2552. doi:10.3390/ijms20102552.
- Xu H, He X, Xu R. B cell activating factor, renal allograft antibody-mediated rejection, and long-term outcome. J Immunol Res. 2018;2018:5251801.
- Schmitz R, et al. B cells in transplant tolerance and rejection: friends or foes? Transpl Int. 2020;33:30–40.
- Lee ST, et al. A global DNA methylation and gene expression analysis of early human B-cell development reveals a demethylation signature and transcription factor network. Nucleic Acids Res. 2012;40:11339–11351.
- Shaknovich R, et al. DNA methyltransferase 1 and DNA methylation patterning contribute to germinal center B-cell differentiation. Blood. 2011;118:3559–3569.
- Caron G, et al. Cell-cycle-dependent reconfiguration of the DNA methylome during terminal differentiation of human B cells into plasma cells. Cell Rep. 2015;13:1059–1071.
- Barwick BG, et al. B cell activation and plasma cell differentiation are inhibited by de novo DNA methylation. Nat Commun. 2018;9:1900.
- Kaur BP, Secord E. Innate immunity. Pediatr Clin North Am. 2019;66:905–911.
- Steinman RM, Banchereau J. Taking dendritic cells into medicine. Nature. 2007;449:419–426.
- Merad M, Collin M, Bromberg J. Dendritic cell homeostasis and trafficking in transplantation. Trends Immunol. 2007;28:353–359.
- Zhang X, et al. DNA methylation dynamics during ex vivo differentiation and maturation of human dendritic cells. Epigenetics Chromatin. 2014;7:21.
- Pacis A, et al. Bacterial infection remodels the DNA methylation landscape of human dendritic cells. Genome Res. 2015;25:1801–1811.
- Klug M, et al. Active DNA demethylation in human postmitotic cells correlates with activating histone modifications, but not transcription levels. Genome Biol. 2010;11:R63.
- Bullwinkel J, Lüdemann A, Deberry J, Singh PB. Epigenotype switching at the CD14 and CD209 genes during differentiation of human monocytes to dendritic cells. Epigenetics. 2011;6:45–51.
- Frikeche J, et al. Impact of the hypomethylating agent 5-azacytidine on dendritic cells function. Exp Hematol. 2011;39:1056–1063.
- van den Bosch TP, et al. CD16+ monocytes and skewed macrophage polarization toward M2 type hallmark heart transplant acute cellular rejection. Front Immunol. 2017;8:346.
- Wang YY, et al. Macrophage-to-myofibroblast transition contributes to interstitial fibrosis in chronic renal allograft injury. J Am Soc Nephrol. 2017;28:2053–2067.
- Wang X, et al. Epigenetic regulation of macrophage polarization and inflammation by DNA methylation in obesity. JCI Insight. 2016;1:e87748.
- Bakshi C, Vijayvergiya R, Dhawan V. Aberrant DNA methylation of M1-macrophage genes in coronary artery disease. Sci Rep. 2019;9:1429.
- Dekkers KF, et al. Human monocyte-to-macrophage differentiation involves highly localized gain and loss of DNA methylation at transcription factor binding sites. Epigenetics Chromatin. 2019;12:34.
- Li G, Yu M, Weyand CM, Goronzy JJ. Epigenetic regulation of killer immunoglobulin-like receptor expression in T cells. Blood. 2009;114:3422–3430.
- Schenk A, Bloch W, Zimmer P. Natural killer cells—an epigenetic perspective of development and regulation. Int J Mol Sci. 2016;17:326.
- Scapini P, et al. The neutrophil as a cellular source of chemokines. Immunol Rev. 2000;177:195–203.
- Chertov O, Yang D, Howard OM, Oppenheim JJ. Leukocyte granule proteins mobilize innate host defenses and adaptive immune responses. Immunol Rev. 2000;177:68–78.
- Hirayama S, et al. Prevention of neutrophil migration ameliorates rat lung allograft rejection. Mol Med. 2006;12:208–213.
- Jelinek J, et al. Epigenetic control of PRV-1 expression on neutrophils. Exp Hematol. 2007;35:1677–1683.
- Suzuki H, et al. Epigenetic inactivation of SFRP genes allows constitutive WNT signaling in colorectal cancer. Nat Genet. 2004;36:417–422.
- Chen G, et al. Aberrant DNA methylation of mTOR pathway genes promotes inflammatory activation of immune cells in diabetic kidney disease. Kidney Int. 2019;96:409–420.
- Shang D, Han T, Xu X, Liu Y. Decitabine induces G2/M cell cycle arrest by suppressing p38/NF-κB signaling in human renal clear cell carcinoma. Int J Clin Exp Pathol. 2015;8:11140–11148.
- Zhu Z, et al. STAT3 signaling pathway is involved in decitabine induced biological phenotype regulation of acute myeloid leukemia cells. Am J Transl Res. 2015;7:1896–1907.
- Peters F, et al. Interferon-gamma DNA methylation is affected by mycophenolic acid but not by tacrolimus after T-cell activation. Front Immunol. 2017;8:822.
- Kraig E, et al. A randomized control trial to establish the feasibility and safety of rapamycin treatment in an older human cohort: immunological, physical performance, and cognitive effects. Exp Gerontol. 2018;105:53–69.
- Zhu C, et al. DNA methylation modulates allograft survival and acute rejection after renal transplantation by regulating the mTOR pathway. Am J Transplant. 2021;21(2):567–581.
- Wiencke JK, et al. DNA methylation as a pharmacodynamic marker of glucocorticoid response and glioma survival. Nat Commun. 2022;13(1):5537.
- Hsu FM, et al. DNA methylation predicts infection risk in kidney transplant recipients. Life Sci Alliance. 2025;8(7):e202403124. doi:10.26508/lsa.202403124.
- Bai JF, et al. Efficacy and safety of venetoclax and azacitidine for acute myeloid leukemia in China: a real-world single-center study. BMC Cancer. 2025;25(1):990.
- Arora S, et al. Tumor lysis syndrome and infectious complications during treatment with venetoclax combined with azacitidine or decitabine in patients with acute myeloid leukemia. Leuk Res. 2022;117:106844.
- Batra A, et al. Characteristics and survival of secondary acute myeloid leukemia from myelodysplastic syndromes in older adults: a population analysis. Clin Lymphoma Myeloma Leuk. 2025;25(6):e417–e423.
- Bai L, Hao X, Keith J, Feng Y. DNA methylation in regulatory T cell differentiation and function: challenges and opportunities. Biomolecules. 2022;12(9):1282.
- Trinh A, Huang Y, Shao H, et al. Targeting the ADPKD methylome using nanoparticle-mediated combination therapy. APL Bioeng. 2023;7(2):026111.
- Yuan N, Ma Z, Xue Z, et al. DNMT1-targeted macrophages delivering drug-loaded nanoparticles attenuate heart allograft fibrosis via PTPRD-STAT3/6 axis. Cell Death Discov. 2026. doi:10.1038/s41420-026-03295-5.
- Cameron J, Martino P, Nguyen L, Li X. Cutting edge: CRISPR-based transcriptional regulators reveal transcription-dependent establishment of epigenetic memory of Foxp3 in regulatory T cells. J Immunol. 2020;205(11):2953–2958.
- Liu XS, et al. Rescue of fragile X syndrome neurons by DNA methylation editing of the FMR1 gene. Cell. 2018;172:979–992.e6.
- Velut Y, Poulet G, Bersez T, et al. Epigenetic signatures on plasma cell-free DNA to detect kidney allograft rejection in a non-invasive way: development of a 10-plex digital PCR assay. Biomark Res. 2025;13:118.