본 프로토콜은 배양된 세포를 동기화하고, 밤샘 수집 없이 24~72시간 동안 시차를 둔 시계열 샘플링을 수행하며, 서카디안 시계 유전자 발현을 분석하기 위한 실용적이고 재현 가능한 워크플로우를 제공합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
페트리 접시 속의 일주기 리듬: 일주기 시계 유전자 발현 분석을 위한 생쥐 시상하부 mHypoE-42 세포의 동기화
이 논문에서
요약
초록
생체 리듬(Circadian rhythms)은 유전자 발현, 대사 및 행동을 포함한 광범위한 세포 및 생리학적 과정을 조절하는 약 24시간 주기의 내인성 진동입니다. 이러한 리듬은 시간적 및 환경적 신호에 반응하는 상호 연결된 전사-번역 피드백 루프에서 발생합니다. 생체 리듬 조절은 매우 동적인 특성을 가지므로, 미세한 실험적 변동만으로도 위상, 진폭 및 리듬성에 영향을 줄 수 있으며, 따라서 신뢰할 수 있고 재현 가능한 결과를 얻기 위해서는 표준화된 실험 워크플로우가 필수적입니다. 본 프로토콜의 목적은 표준 실험실 조건에서 배양 세포를 동기화하고, 시계열 샘플링을 수행하며, 생체 시계 유전자 발현을 분석하기 위한 실용적이고 재현 가능한 워크플로우를 제공하는 것입니다. 본 프로토콜에서는 혈청 충격(serum shock) 기반의 동기화, 야간 샘플링을 피하기 위한 24~72시간 동안의 시차 샘플 수집, 리보핵산(RNA) 추출, 상보적 디옥시리보핵산(cDNA) 합성, 정량적 실시간 중합효소 연쇄반응(qRT-PCR) 및 적절한 통계적 접근법을 이용한 생체 리듬 분석 과정을 설명합니다. 또한, 실험 간 재현성을 높이기 위해 동기화 조건, 샘플 품질 평가, 참조 유전자 선택 및 데이터 분석을 포함한 핵심적인 실험 고려 사항을 강조합니다. 이 방법은 분자 수준의 생체 리듬 기전을 연구하고 배양 세포의 리듬성 유전자 발현을 평가하는 데 접근 가능한 방식을 제공하여, 생리학적 및 질환 관련 실험 모델에서 생체 리듬 조절 연구를 용이하게 합니다.
서론
서카디안 리듬(Circadian rhythms)은 약 24시간의 주기를 가진 내인성 사이클로, 광범위한 생리적, 대사적 및 세포적 과정을 조절합니다1. 포유류 시스템에서 이러한 리듬은 시상하부의 시교차 상핵(suprachiasmatic nucleus, SCN)에 위치한 중앙 시계와 세포 수준의 자가 유지 분자 시계에 의해 조율됩니다. 이 시계들은 circadian locomotor output cycles protein kaput (Clock), basic helix-loop-helix aryl hydrocarbon receptor nuclear translocase-like 1 (Bmal1), period (Per), 그리고 cryptochrome (Cry)을 포함하는 핵심 시계 유전자들이 관여하는 상호 연결된 전사-번역 피드백 루프로 구성됩니다2. 다양한 생물학적 과정에서 서카디안 시계가 수행하는 중심적인 역할을 고려할 때, in vitro 세포 모델은 통제된 실험 조건 하에서 시간적 조절의 분자적 메커니즘을 연구하는 데 중요한 도구가 되었습니다.
본 프로토콜의 목적은 혈청 쇼크(serum shock) 프로토콜을 사용하여 배양 세포를 동기화하고, 시차를 둔 시간 경과 샘플링을 수행하며, 밤샘 샘플 수집 없이 생체 시계 유전자 발현을 분석할 수 있는 신뢰할 수 있고 실용적이며 재현 가능한 워크플로우를 제공하는 것입니다. 데이터 품질을 저하시키지 않으면서 생체 리듬 샘플링의 실행 가능성을 높임으로써, 이 워크플로우는 표준 실험실 기술을 이용한 리듬 생물학적 과정 연구를 촉진하도록 설계되었습니다.
서카디안(Circadian) 연구는 인간 암 세포주3, rat-1 섬유아세포4, SCN 외식편5 및 오가노이드를 포함한 광범위한 in vitro 모델에서 수행되어 왔습니다6. 대부분의 포유류 세포는 기능적인 서카디안 시계를 가지고 있지만, 빛과 같은 동기화 신호가 없으면 배양 상태에서 빠르게 탈동기화가 일어나 in vitro에서 서카디안 리듬을 연구하는 데 한계가 있습니다7. 따라서 분자 시계 메커니즘과 그것이 건강 및 질병에 미치는 영향을 조사하기 위해서는 동기화 기술이 필수적입니다.
배양된 포유류 세포를 위해 여러 가지 동기화 전략이 개발되었습니다. dexamethasone을 이용한 글루코코르티코이드 기반 동기화는 많은 세포 유형에서 일주기 리듬을 강력하게 재설정하는 동시에 혈청 자극과 관련된 일부 변동성을 줄여주기 때문에 가장 널리 사용되는 방법 중 하나입니다8. 마찬가지로, cyclic adenosine monophosphate 신호 전달의 forskolin 매개 활성화는 선택된 세포 모델에서 말초 시계를 동기화하는 데 성공적으로 사용되었습니다9. 다른 접근 방식으로는 혈중 신호 물질 처리4, 다양한 화학 화합물 처리8,10, 배지 교체3, 온도 충격11, 산소 주기12 및 기계적 자극13 등이 있습니다. 종합적으로, 이러한 방법들은 일주기 연구를 상당히 발전시켰으나, 특수 장비, 특정 실험 조건 또는 추가적인 최적화가 필요할 수 있으므로 각 생물학적 모델과 실험적 응용 분야에 대해 선택한 동기화 전략을 검증하는 것이 중요합니다14.
혈청 충격(Serum shock)은 가장 널리 확립된 동기화 방법 중 하나로, 배양된 세포를 단기간의 고농도 혈청 자극에 노출시키는 방식으로 이루어집니다4. 자극이 일시적이기 때문에 세포 신호 전달 경로의 장기적인 섭동이 최소화되며4, 이는 하위 분석에 미칠 수 있는 잠재적인 혼란 효과를 줄여줍니다. 결과적으로 혈청 충격은 일주기 유전자 발현 및 분자 시계 기능 연구에 특히 적합합니다. 또한, 이 절차는 구현 방법이 간단하고 특수 장비가 필요하지 않아 여러 실험실에서 쉽게 접근하고 재현할 수 있습니다. 그러나 혈청 충격 실험의 실질적인 제약은 일주기 리듬성을 정확하게 특성화하기 위해 요구되는 집중적인 샘플링 일정입니다. 신뢰할 수 있는 리듬 분석을 위해서는 일반적으로 하나 이상의 일주기 주기(24–72 h) 동안 2–6 h 간격으로 정기적인 샘플 수집이 필요하며14, 이로 인해 종종 밤샘 수집이 수반됩니다.
여기에 설명된 워크플로우는 여러 배양 플레이트에 걸쳐 동기화 시작 시간을 시차를 두어 설정함으로써, 야간 샘플 수집을 피하면서 표준 근무 시간 동안 전체 서카디안 샘플링을 가능하게 하여 이러한 물류적 어려움을 해결합니다. 본 프로토콜은 새로운 동기화 전략을 도입하는 대신, 기존의 혈청 쇼크(serum shock) 방법의 상세하고 재현 가능한 구현 방식과 더불어 실용적인 샘플링 일정 및 하위 유전자 발현 분석을 제공합니다. 이 워크플로우는 널리 사용되는 실험실 기술을 이용하여 배양 세포의 서카디안 유전자 발현을 연구하는 실험에 특히 적합합니다. 본 프로토콜을 다른 세포 모델에 적용할 때는 세포 밀도, 동기화 조건, 샘플링 간격, 참조 유전자 선택을 포함한 실험 파라미터를 해당 특정 세포 유형에 맞게 최적화하고 검증한 후 실행해야 합니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
다음 프로토콜은 mHypoE-42 마우스 배아 시상하부 세포주를 위한 검증된 동기화 방법을 설명합니다. 다른 배양 세포 유형에 적용하기 전에 동기화 프로토콜을 독립적으로 검증하고 최적화하십시오. 워크플로우의 개요는 그림 1을, 주간 샘플링 일정은 부록 그림 1을 참조하십시오. 이 프로토콜에 사용된 모든 시약, 장비 및 기구는 재료 표를 참조하십시오. 모든 세포 배양 절차는 멸균된 시약과 장비를 사용하여 인증된 생물안전 작업대 내에서 수행하십시오.
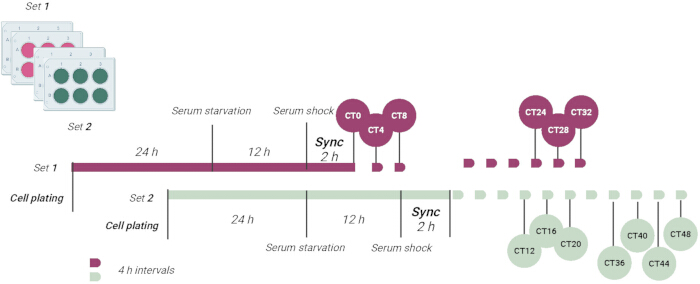
그림 1. 시차를 둔 혈청 충격 동기화 프로토콜의 모식도. 두 개의 시차 실험 세트에서 혈청 충격을 통해 mHypoE-42 세포를 동기화하는 데 사용된 워크플로우를 보여주는 모식도이다. 시차 설계는 야간 샘플링을 피하면서 표준 근무 시간 동안 일주기 샘플 수집이 가능하게 한다. 수집된 샘플은 이후 RNA 추출, 정량적 실시간 중합효소 연쇄 반응(qRT-PCR) 및 일주기 리듬 분석을 위해 처리된다. Biorender.com을 사용하여 제작됨. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
1. 세포 배양
- 부착성 mHypoE-42 세포를 10% (v/v) 열불활성화 태아 송아지 혈청(FBS), 3.7 g/L 중탄산나트륨 및 1% 항생제 용액이 첨가된 고농도 포도당(4500 mg/L) Dulbecco’s Modified Eagle Medium (DMEM)에서 배양합니다.
- 최종 배양 부피 10 mL의 T75 배양 플라스크를 사용하여, 95% 공기와 5% 이산화탄소(CO2)가 포함된 37°C 습윤 배양기에서 세포를 유지합니다.
참고: 혈청 배치마다 특성이 다를 수 있으므로, 실험을 시작하기 전 새로운 FBS 배치를 매번 테스트하십시오. - 세포가 약 80%–90% 밀집도(confluence)에 도달하면 계대 배양합니다. 멸균된 1× 인산염 완충 식염수(PBS; pH 7.4)로 세포를 세척하고, 0.5% 트립신 용액 3 mL를 첨가한 후 3–5분 동안 배양하여 세포를 분리합니다.
- 트립신을 중화시키기 위해 10% (v/v) FBS가 포함된 완전 배양 배지를 트립신 부피의 최소 2배 이상 첨가합니다.
- 신선한 성장 배지를 사용하여 세포를 최대 1:2 비율로 희석합니다.
참고: 과도하게 계대 배양된 세포(예: mHypoE-42 세포의 경우 계대 40회 초과)는 사용하지 마십시오. 모든 용액은 사용 전 예열하십시오. 정기적으로 배양물의 마이코플라즈마 오염 여부를 테스트하십시오. - 단계 2에 설명된 대로 웰당 2.0 × 10⁵개의 세포를 분주하고 24시간 후에 동기화 분석을 진행합니다. 일반적인 세포 배양은 계대 전까지 약 80%–90% 밀집도를 유지합니다.
2. mHypoE-42 세포주의 동기화
- 세포 준비
- 트립신 처리 후, 세포를 700 × g 에서 5분 동안 원심 분리한다.
- 상층액을 제거하고 세포 펠렛을 10 mL의 신선한 배양액에 재현탁한다.
- 세포 현탁액과 트립판 블루 염색약을 1:1 비율(총 부피 20 μL)로 혼합하고, 헤모사이토미터를 사용하여 세포 농도를 측정한다.
참고: 트립판 블루가 포함된 용액은 기관의 화학 폐기물 처리 지침에 따라 폐기하십시오. 사용하지 않은 염색약을 싱크대에 버리지 마십시오.
- 세포 플레이팅 및 시차 실험 설계
- 6-웰 플레이트 또는 35-mm 배양 접시에 웰당 2.0 × 10⁵개의 세포를 플레이팅한다. 배양물을 37°C에서 24시간 동안 배양한다.
참고: 세포 파종 24시간 후에 혈청 동기화를 시작한다. 따라서 동기화 전의 미리 정의된 세포 합류도(confluence)는 필요하지 않다. 대신, 동기화 절차를 시작하기 전에 현미경으로 배양물을 관찰하여 세포가 완전히 부착되었고 적절한 형태를 나타내는지 확인한다. - 배양 플레이트를 무작위로 두 개의 실험 세트로 나눈다. 첫 번째 세트를 사용하여 일주기 시간점(CT) CT0, CT4, CT8, CT24, CT28, CT32를 생성한다. 두 번째 세트를 사용하여 CT12, CT16, CT20, CT36, CT40, CT44, CT48을 생성한다 (그림 1; 부록 그림 1).
- 기술적 반복 실험(technical replicates)을 포함하기 위해 필요한 만큼 웰이나 플레이트 수를 늘린다.
참고: 모든 플레이트를 동일한 세포 현탁액으로 준비하고, 동일한 파종 밀도와 배양 조건을 유지하며, 동일한 시약과 실험 설정을 사용하여 동기화를 수행함으로써 변동성을 최소화한다. 다른 세포 유형의 경우 필요에 따라 배양 용기 형식과 플레이팅 밀도를 조정한다. 6-웰 플레이트를 사용할 때는 플레이트 활용도를 최적화하기 위해 동시에 수집되는 CT들을 결합한다.
- 6-웰 플레이트 또는 35-mm 배양 접시에 웰당 2.0 × 10⁵개의 세포를 플레이팅한다. 배양물을 37°C에서 24시간 동안 배양한다.
- 동기화
- 24시간 후, 첫 번째 세트 플레이트에서 배지를 흡입하여 제거하고 1 mL의 무혈청 DMEM을 첨가한다. 혈청 기아 상태를 유도하기 위해 12시간 동안 배양한다.
- 사용 직전에 고농도 포도당 DMEM에 50% (v/v) 말 혈청 용액을 준비한다.
- 첫 번째 세트에서 기아 배지를 제거하고, 갓 준비한 50% 말 혈청 용액 1 mL에 세포를 2시간 동안 노출시킨다.
- 동시에 두 번째 세트 플레이트에서 배지를 제거하고 1 mL의 무혈청 DMEM으로 교체한다. 12시간 동안 배양한다.
- 2시간의 혈청 쇼크 후, 배지를 제거하고 10% (v/v) 열 불활성화 FBS가 보충된 고농도 포도당 DMEM 1 mL를 첨가한다. 이 시점을 CT0로 지정한다.
- 시료 수집
- 배양 플레이트를 얼음 위에 놓는다. 배지를 제거하고, 차가운 멸균 1× PBS 1 mL로 세포를 2회 세척한 후 세척액을 버리고, 최대 1 mL의 용해 시약을 사용하여 세포를 기계적으로 용해한다.
주의: 용해 시약에는 위험한 화학 물질이 포함되어 있다. 모든 취급 단계는 적절한 개인 보호 장구를 착용한 상태에서 인증된 화학 흄 후드 내에서 수행한다. 폐기물은 기관의 화학 안전 지침에 따라 폐기한다. - 각 용해물을 멸균 튜브로 옮기고 RNA 추출 전까지 −80°C에서 보관한다.
- 단계 2.4.1 및 2.4.2를 반복하여 CT4 및 CT8에서 시료를 수집한다.
- CT8에서, 다른 세포들을 동기화하기 위해 두 번째 실험 세트에 대해 단계 2.3.2를 반복한다.
- 2시간의 혈청 쇼크 후, 배지를 10% (v/v) 열 불활성화 FBS가 보충된 고농도 포도당 DMEM 1 mL로 교체하여 두 번째 실험 세트의 동기화를 종료한다.
- 두 실험 세트에서 교대로 시료를 수집하여 CT12, CT24, CT16, CT28, CT20, CT32를 얻는다. 다음 날, 수집 절차를 반복하여 CT36, CT40, CT44, CT48을 얻는다.
참고: 혈청 기아 및 동기화는 미리 정의된 세포 합류도가 아니라 세포 파종 후 실험 타임라인에 따라 시작되었다. 동기화를 시작하기 전에 세포가 완전히 부착되었고 적절한 형태를 보이는지 확인한다. 연속적인 CT는 4시간 차이가 나지만, 수집은 4시간 간격으로 수행되지 않는다. 전체 주간 수집 일정은 부록 그림 1을 참조한다.
- 배양 플레이트를 얼음 위에 놓는다. 배지를 제거하고, 차가운 멸균 1× PBS 1 mL로 세포를 2회 세척한 후 세척액을 버리고, 최대 1 mL의 용해 시약을 사용하여 세포를 기계적으로 용해한다.
3. 시료 처리: RNA 추출
참고: 프로토콜은 실험 상황 및 응용 분야에 따라 다를 수 있습니다. 다음 워크플로우는 RNA 추출, 상보적 DNA (cDNA) 합성 및 정량적 실시간 중합효소 연쇄 반응 (qRT-PCR)을 위한 효과적인 절차의 예를 설명합니다. 페놀 기반 용해 및 상 분리 결합 방법으로 총 RNA를 추출한 후, 실리카 스핀 컬럼을 사용하여 정제하십시오.
- 시료 준비 및 상 분리
- 시료를 해동하고, 용해물을 다시 균질화한 후 실온에서 5분 동안 배양합니다.
- 용해 시약 1 mL당 200 μL의 클로로폼을 첨가합니다.
주의: 클로로폼은 휘발성이며 독성이 있습니다. 클로로폼을 사용하는 모든 절차는 적절한 개인 보호 장비를 착용한 상태로 공인된 화학 흄 후드 내에서 수행하십시오. - 튜브를 15초 동안 강하게 흔들어 섞은 후 실온에서 3분 동안 배양합니다.
- 시료를 4°C에서 12,000 × g 로 15분 동안 원심 분리합니다. 시료가 단백질을 포함하는 하층의 페놀-클로로폼 상, DNA를 포함하는 흰색 중간상, 그리고 RNA가 풍부한 상층의 수용상 등 세 개의 상으로 분리되도록 합니다.
- 중간상을 건드리지 않고 수용상을 새로운 멸균 튜브로 조심스럽게 옮깁니다. 이후 단백질 또는 DNA 분리를 계획하고 있다면 유기상을 4°C에 보관하십시오.
참고: 유기상에서 이러한 생체 분자들을 회수해야 하는 경우, 해당 프로토콜에 따라 단백질 또는 DNA 분리를 수행하십시오.
- RNA 정제
- 수용상에 동일한 부피의 70% 에탄올(RNase-free water로 제조)을 첨가하고, RNA 결합을 촉진하기 위해 15초 동안 두 번 보텍싱합니다.
- 시료를 실리카 스핀 컬럼에 로딩하고, 컬럼 정제 워크플로우에 따라 RNA를 정제합니다.
- 실온에서 15분 동안 DNase로 오염된 게놈 DNA를 분해합니다.
- 제공된 세척 버퍼를 사용하여 컬럼을 세척합니다.
- 세척 버퍼 100 μL로 추가 세척을 수행하고, 11,000 × g에서 2분 동안 원심 분리하여 실리카 멤브레인을 건조시킵니다.
- 스핀 컬럼을 깨끗한 마이크로 원심 분리 튜브로 옮깁니다. RNase-free water 40–60 μL를 실리카 멤브레인의 중앙에 직접 가하고 11,000 × g에서 1분 동안 원심 분리하여 RNA를 용출합니다.
참고: 원하는 RNA 수율과 농도에 따라 용출 부피를 선택하십시오. 일반적으로 60 μL의 용출 부피는 실리카 멤브레인으로부터 더 완전한 RNA 회수를 가능하게 하지만, 더 묽은 RNA 용액이 생성됩니다. 반면, 40 μL의 용출 부피는 더 농축된 RNA 조제물을 얻을 수 있으나 전체 RNA 회수율이 낮아질 수 있습니다. 제조사의 권장 사항과 후속 응용 프로그램의 요구 사항에 따라 용출 부피를 최적화하십시오.
- RNA 품질 평가
- RNA 시료를 얼음 위에 두고, 품질 평가를 위해 각 시료 5 μL를 새로운 멸균 마이크로 원심 분리 튜브로 옮깁니다.
- 1.5% 아가로스 겔 전기영동 또는 모세관 전기영동을 사용하여 RNA 무결성을 평가합니다. 뚜렷한 28S 및 18S 리보솜 RNA 밴드의 존재를 확인합니다.
- 분광 광도계로 흡광도를 측정하여 RNA 농도와 순도를 결정합니다.
참고: 페놀 함유 폐기물은 기관의 화학 폐기물 처리 지침에 따라 처리하십시오. 유해 화학 폐기물을 싱크대에 버리지 마십시오. 배양 세포 시료의 경우, RNA 농도는 일반적으로 200에서 1000 ng/μL 사이이며 cDNA 합성 및 qRT-PCR에 적합합니다. A260/230 비율이 2.0에서 2.2 사이이고 A260/280 비율이 약 2.0인 RNA 시료를 사용하십시오(보충 표 1 참조).
- RNA 보관
- 정제된 RNA 시료는 cDNA 합성 전까지 −80°C에 보관합니다.
4. 시료 처리: cDNA 합성
참고: 1 μg의 총 RNA로부터 1차 가닥 cDNA 합성 키트를 사용하여 cDNA를 합성하십시오. 제조사의 지침에 따라 반응 부피와 배양 조건을 조정하십시오.
- 역전사
- RNA 샘플을 얼음 위에서 해동한다. 총 RNA 1 μg, 2× Master Mix(리보핵산 억제제, 랜덤 헥사머, oligo(deoxythymidine) 프라이머, 마그네슘 이온 [Mg2+], 그리고 deoxynucleotide triphosphate 포함) 10 μL, 효소 믹스(역전사 효소 포함) 2 μL를 넣고, diethyl pyrocarbonate 처리수로 최종 부피 20 μL가 되도록 하여 20 μL의 역전사 반응액을 준비한다.
- 프라이머 결합을 위해 써멀 사이클러에서 25°C로 10분간 배양한 후, cDNA 합성을 위해 50°C에서 30분간 배양한다. 반응액을 85°C에서 5분간 배양하여 역전사 효소를 불활성화한다.
- RNase H 1 μL를 첨가하고 37°C에서 20분간 배양하여 RNA-DNA 하이브리드의 RNA 가닥을 분해한다.
- 분석 최적화 요구 사항에 따라 cDNA 준비물을 멸균수로 최대 1:20까지 희석하고, 정량적 실시간 중합효소 연쇄 반응(qRT-PCR) 분석 시까지 희석된 cDNA를 −20°C에 보관한다.
5. 시료 처리: 실시간 정량 폴리머라제 연쇄 반응 (qRT-PCR)
참고: qRT-PCR을 사용하여 생체 시계 유전자의 발현을 측정하십시오. 검증된 프라이머 서열, 어닐링 온도 및 프라이머 농도는 부록 표 2를 참조하십시오.
- 분석 최적화
- 실험 샘플을 분석하기 전, 풀링된 cDNA 샘플과 표준 곡선을 사용하여 프라이머 농도, 어닐링 온도 및 cDNA 투입량을 검증하고 최적화합니다. 분석 최적화 및 검증은 이전에 설명된 방법대로 수행합니다15,16.
- 반응 설정
- 96-well PCR 플레이트에 2× 마스터 믹스 5 μL, 정방향 및 역방향 프라이머를 각각 0.4 μL씩, diethyl pyrocarbonate 처리된 물 0.2 μL, 그리고 cDNA 템플릿 4 μL를 혼합하여 각각 10 μL의 qRT-PCR 반응액을 준비합니다.
- 광학적으로 투명한 실링 필름이나 실링 매트로 플레이트를 밀봉합니다. 기포를 제거하고 반응 혼합물이 각 웰 바닥에 모이도록 플레이트를 4°C에서 700 × g로 최대 5분 동안 원심분리합니다.
- 모든 cDNA 샘플을 분석하여 표적 유전자인 Bmal1 및 Per2의 발현을 결정합니다.
- 샘플 간 유전자 발현을 정규화하기 위해 동일한 cDNA 희석 배수를 사용하여 선택된 참조 유전자(B2m)를 분석합니다.
- 열 사이클링
- 다음 사이클 조건으로 qRT-PCR을 수행합니다: 95°C에서 2분 동안 초기 변성과 hot-start DNA 폴리머레이스 활성화를 거친 후, 95°C에서 5초, 60°C에서 30초를 39사이클 반복합니다.
- 반응액을 95°C에서 5초 동안 가열한 후, 95°C까지 0.5°C씩 단계적으로 온도를 높이며 각 단계에서 5초 동안 유지하여 멜트 곡선 분석을 수행합니다.
참고: 필요한 경우 마스터 믹스 권장 사항에 따라 유지 시간과 멜트 곡선 설정을 조정하십시오.
- 참조 유전자 검증
참고: 혈청 동기화 실험의 경우, 혈청 처리가 하우스키핑 유전자 발현을 변화시킬 수 있으므로 후보 참조 유전자를 평가하십시오17. BestKeeper18, geNorm19, NormFinder20 또는 비교 ΔCt 방법21과 같은 방법을 사용하여 발현 안정성을 평가합니다. 정규화를 위해 가장 안정적인 유전자를 선택하십시오. 본 연구에서는 여러 참조 유전자 검증 알고리즘이 통합된 RefFinder 소프트웨어22를 사용하여 β-actin (Actb)과 β-2-microglobulin (B2m)을 평가하였습니다. B2m이 일주기 시간 경과에 따라 가장 높은 발현 안정성을 보여 정규화를 위해 선택되었습니다. - 생성물 확인
- 2% 아가로스 겔 전기영동을 사용하여 PCR 생성물을 분석함으로써 증폭 특이성을 확인합니다.
참고: 여러 온도(예: 58 °C, 60°C 및 62°C)를 테스트하여 최적의 어닐링 온도를 결정하십시오. 프라이머 이량체(primer-dimer) 형성의 증거 없이 단일 멜트 곡선 피크를 유지하면서 가장 낮은 정량 사이클(Cq) 값을 생성하는 온도를 선택합니다.
참고: 증폭 효율이 90%에서 110% 사이이고 결정 계수 (R2)가 0.99 이상인 분석법을 채택합니다. 기술적 반복 간의 멜트 온도가 0.5°C 이상 차이 나지 않음을 확인합니다. 분석을 위해 Cq 차이가 ≤0.5인 기술적 반복 샘플만 채택하고, 이 값들을 사용하여 평균 발현 수준을 계산합니다. 모든 반응은 기술적 반복(예: 3반복)으로 수행하며, 템플릿 미포함 대조군(non-template control)과 역전사 미포함 대조군(no-reverse-transcription control)을 모두 포함합니다.
- 2% 아가로스 겔 전기영동을 사용하여 PCR 생성물을 분석함으로써 증폭 특이성을 확인합니다.
6. 데이터 분석
- 유전자 발현 분석
- 후속 분석 전, 각 샘플의 기술적 반복(technical replicates) 값들의 평균을 구합니다.
- 다음 식을 사용하여 각 샘플과 시간 지점의 ΔCq 값을 계산합니다:
ΔCq = Cqtarget gene - Cqhousekeeping gene - 다음 식을 사용하여 각 샘플과 시간 지점의 ΔΔCq 값을 계산합니다:
ΔΔCq = ΔCqsample - ΔCqcontrol
참고: ΔΔCq 계산 시 ΔCqcontrol은 모든 CT에 걸쳐 모든 대조군 샘플을 평균하여 얻은 평균 ΔCq 값으로 정의되었습니다. - CircaCompare23를 사용하여 리듬의 중간 추정 통계량(MESOR), 진폭, 피크 및 위상을 포함한 일주기 파라미터를 평가합니다. 온라인 애플리케이션 또는 R 패키지 구현 방식을 사용하여 분석을 수행합니다.
- 온라인 CircaCompare 분석
참고: 온라인 구현 방식은 데이터 세트가 리듬성의 통계적 기준을 충족하는 경우에만 완전한 일주기 파라미터 추정치를 보고합니다. 리듬성이 약하거나 통계적으로 유의하지 않은 경우에는 R 구현 방식을 사용하여 모든 데이터 세트에 대한 파라미터 추정치를 얻으십시오.- 쉼표로 구분된 값(.csv) 파일을 준비합니다.
- 1열에 시간 변수(수치; hours)를 입력합니다.
- 2열에 그룹화 변수(두 개의 실험군만 해당)를 입력합니다.
- 3열에 결과 변수(수치; ΔΔCq)를 입력합니다.
- .csv 파일을 온라인 CircaCompare 애플리케이션에 업로드합니다.
- 시간, 그룹 및 결과 변수를 해당 열에 할당합니다.
- Run을 선택하여 분석을 수행합니다.
- 쉼표로 구분된 값(.csv) 파일을 준비합니다.
- R을 이용한 CircaCompare 분석
- R 버전 4.5.1 및 CircaCompare 패키지 버전 0.2.024을 사용하여 분석을 수행합니다.
- 필요한 R 패키지를 설치합니다.
- devtools 패키지(버전 2.5.2)를 설치합니다.
- circacompare 패키지(버전 0.2.0)를 설치합니다.
- ggplot2 패키지(버전 4.0.3)를 설치합니다.
- svglite 패키지(버전 2.2.2)를 설치합니다.
- 입력 .csv 파일을 업로드합니다.
- alpha_threshold = 1로 설정한 후 CircaCompare 분석을 실행합니다.
참고: alpha_threshold = 1로 설정하면 통계적 유의성과 관계없이 모든 피팅된 진동에 대한 일주기 파라미터 추정치가 보고됩니다. 그러나 p-value < 0.05인 진동만이 리듬성을 가지며 통계적으로 유의한 것으로 해석되어야 합니다. - 스크립트를 실행하기 전 보충 파일 1(Supplementary File 1)을 사용자 정의합니다.
- “XXX.csv”를 입력 데이터 파일 이름으로 바꿉니다.
- “YYY.csv”를 원하는 결과 파일 이름으로 바꿉니다.
- “ZZZ.svg”를 원하는 그래프 파일 이름으로 바꿉니다.
- 데이터 세트에 따라 y축 범위(ylim) 및 기타 추가 플로팅 파라미터를 조정합니다.
- 입력 파일 예시는 보충 표 3(Supplementary Table 3)을 참조하십시오.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
동기화가 성공적으로 이루어졌는지는 대조군 조건에서 분석된 시계 유전자의 통계적으로 유의미한 일주기 리듬성(p < 0.05)으로 확인됩니다. 본 연구에서는 0.1% dimethyl sulfoxide를 음성 대조군으로 하여 세 차례의 독립적인 생물학적 실험을 수행하였습니다. Bmal1과 Per2는 분자 일주기 시계의 핵심 구성 요소이며 특성이 잘 알려진 역위상 발현 패턴을 보이기 때문에 대표적인 일주기 마커로 선정되었습니다. 동기화 후 얻어진 대표적인 리듬 발현 프로파일은 그림 2에 나타나 있습니다. 리듬성, MESOR, 진폭 및 피크 시간을 포함한 해당 일주기 파라미터는 표 1에 요약되어 있으며, Bmal1과 Per2 간의 쌍별 비교는 표 2에 제시되어 있습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
서카디안 리듬(Circadian rhythms)은 보존된 분자 시계 기전을 통해 광범위한 생리학적, 대사적 및 세포 과정들을 조절하는 약 24시간 주기의 내인성 주기입니다1,2. In vitro 동기화 모델은 이러한 기전을 조사하기 위한 통제된 실험 환경을 제공하며, 환경 오염 물질 노출 및 기타 실험적 섭동을 포함한 정상 및 병리적 조건 하에서의 서카디안 조절을 연구하는 가치 있는 도구가 되었습니다25. 본 프로토콜은 혈청 쇼크(serum shock)를 통해 배양 세포를 동기화하고, 엇갈린 샘플링 전략(staggered sampling strategy)을 사용하여 시계열 샘플을 수집하며, qRT-PCR로 서카디안 유전자 발현을 정량화하는 실용적인 워크플로우를 설명합니다. 이 워크플로우는 특히 야간 샘플 수집과 관련된 물류적 어려움을 최소화하면서 시간적 유전자 발현 ...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자들은 이해 상충이 없음을 밝힙니다.
감사의 글
본 연구는 유럽연합(EU) 회복 및 회복력 기금과 FCT – Fundação para a Ciência e a Tecnologia의 프로젝트 LA/P/0058/2020 (DOI: 10.54499/LA/P/0058/2020), UID/04539/2025, UID/PRR/04539/2025 (DOI: 10.54499/UID/PRR/04539/2025) 및 UID/PRR2/04539/2025 (DOI: 10.54499/UID/PRR2/04539/2025)를 통한 포르투갈 국가 기금의 공동 지원을 받았으며, Centro 2030 지역 운영 프로그램의 프로젝트 CENTRO2030-FEDER-02360200을 통한 유럽 지역 개발 기금(ERDF)의 지원과 FCT의 보조금 2023.17896.ICDT (DOI: 10.54499/2023.17896.ICDT), 2023.12355.PEX (DOI: 10.54499/2023.12355.PEX), 2021.02220.CEECIND/CP1656/CT0008 (DOI: 10.54499/2021.02220.CEECIND/CP1656/CT0008), 2020.04850.BD (DOI: 10.54499/2020.04850.BD) 및 2021.05334.BD (DOI: 10.54499/2021.05334.BD)를 통한 포르투갈 국가 기금의 지원을 받았습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 6-웰 세포 배양 플레이트 | Nest Biotechnology | 15140122 | 세포 배양 플레이트 |
| 아가로스 | NZYtech | MB02702 | RNA 품질 평가 |
| 항생제 혼합물(페니실린/스트렙토마이신) | Gibco, Thermo Fisher Scientific | D5648 | 세포 배양 보충제 |
| cDNA 합성 키트 (제1가닥) | NZYtech | MB12502 | 역전사 |
| 클로로포름 | Sigma-Aldrich | A5256701 | 상분리 시약 |
| DMEM, 고농도 포도당 (포도당 4500 mg/L, L-글루타민) | Sigma-Aldrich | 26050088 | 세포 배양 배지 |
| Eppendorf 마이크로 원심분리기 튜브 | Eppendorf | 30120086 | 시료 보관 |
| 에탄올 (96%) | Fisher Bioreagents | 15552393 | RNA 정제 |
| 열불활성화 소태아혈청 | Gibco, Thermo Fisher Scientific | J62692.K7 | 세포 배양 보충제 |
| 하드쉘 96웰 PCR 플레이트 | Bio-Rad Laboratories | HSP9601 | qRT-PCR 플레이트 |
| 열불활성화 말 혈청 | Gibco, Thermo Fisher Scientific | 15400054 | 혈청 쇼크 동기화 |
| mHypoE-42 세포주 (CVCL_D443) | CELLutions Biosystems Inc. | MB13402 | 배아 생쥐 시상하부 세포주 |
| 올리고뉴클레오타이드 프라이머 | NZYtech | MB12501 | qRT-PCR 프라이머 |
| 인산완충생리식염수 (PBS) | Thermo Fisher Scientific | MB18502 | 세포 세척 |
| qPCR Green Master Mix (2×) | NZYtech | MB22403 | qRT-PCR 시약 |
| 실시간 PCR 검출 시스템 | Bio-Rad Laboratories | 제공해주신 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | qRT-PCR 기기 |
| RNA 분리 키트 | NZYtech | 288306 | 실리카 스핀 컬럼 정제 |
| RNA 용해 시약 | NZYtech | MB18502 | 페놀 기반 RNA 추출 시약 |
| 탄산수소나트륨 | Sigma-Aldrich | MB22401 | 세포 배양 배지 보충제 |
| 멸균된 35mm 배양 접시 | Thermo Fisher Scientific | 121V | 세포 배양 접시 |
| T100 열 순환기 | Bio-Rad Laboratories | 1861096 | cDNA 합성 |
| T75 조직 배양 플라스크 | Corning | 죄송하지만, 번역할 소스 텍스트가 제공되지 않았습니다. 번역이 필요한 텍스트를 입력해 주세요. | 세포 배양 용기 |
| 트리판 블루 용액 (0.4%) | Gibco, Thermo Fisher Scientific | 15250061 | 세포 계수 |
| Trypsin-EDTA (0.5%) | Gibco, Thermo Fisher Scientific | 15400054 | 세포 해리 |
참고문헌
- Fuhr L, Abreu M, Pett P, Relógio A. Circadian systems biology: When time matters. Comput Struct Biotechnol J. 2015;13:417-426.
- Albrecht U. Timing to perfection: The biology of central and peripheral circadian clocks. Neuron. 2012;74(2):246-260.
- Relógio A, et al. Ras-mediated deregulation of the circadian clock in cancer. PLoS Genet. 2014;10(5):e1004338.
- Balsalobre A, Damiola F, Schibler U. A serum shock induces circadian gene expression in mammalian tissue culture cells. Cell. 1998;93(6):929-937.
- Hughes ATL, et al. Constant light enhances synchrony among circadian clock cells and promotes behavioral rhythms in VPAC2-signaling deficient mice. Sci Rep. 2015;5:12092.
- Fuhr L, et al. The circadian clock regulates metabolic phenotype rewiring via HKDC1 and modulates tumor progression and drug response in colorectal cancer. EBioMedicine. 2018;33:105-121.
- Nagoshi E, et al. Circadian gene expression in individual fibroblasts: Cell-autonomous and self-sustained oscillators pass time to daughter cells. Cell. 2004;119(5):693-705.
- Balsalobre A, et al. Resetting of circadian time in peripheral tissues by glucocorticoid signaling. Science. 2000;289(5488):2344-2347.
- Kaneko H, Kaitsuka T, Tomizawa K. Response to stimulations inducing circadian rhythm in human induced pluripotent stem cells. Cells. 2020;9(3):732.
- Chalmers JA, et al. Vascular circadian rhythms in a mouse vascular smooth muscle cell line (Movas-1). Am J Physiol Regul Integr Comp Physiol. 2008;295:R1529-R1538.
- Brown SA, et al. Rhythms of mammalian body temperature can sustain peripheral circadian clocks. Curr Biol. 2002;12(18):1574-1583.
- Adamovich Y, et al. Rhythmic oxygen levels reset circadian clocks through HIF1α. Cell Metab. 2017;25(1):93-101.
- Rogers EH, et al. Comparing circadian dynamics in primary derived stem cells from different sources of human adult tissue. Stem Cells Int. 2017;2017:2057168.
- Gaspar LS, et al. The importance of determining circadian parameters in pharmacological studies. Br J Pharmacol. 2019;176(16):2827-2847.
- Nolan T, Hands RE, Bustin SA. Quantification of mRNA using real-time RT-PCR. Nat Protoc. 2006;1(3):1559-1582.
- Derveaux S, Vandesompele J, Hellemans J. How to do successful gene expression analysis using real-time PCR. Methods. 2010;50(4):227-230.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCT method. Methods. 2001;25(4):402-408.
- Pfaffl MW, Tichopad A, Prgomet C, Neuvians TP. Determination of stable housekeeping genes, differentially regulated target genes and sample integrity: BestKeeper—Excel-based tool using pair-wise correlations. Biotechnol Lett. 2004;26(6):509-515.
- Vandesompele J, et al. Accurate normalization of real-time quantitative RT-PCR data by geometric averaging of multiple internal control genes. Genome Biol. 2002;3(7):research0034.1-research0034.11.
- Andersen CL, Jensen JL, Ørntoft TF. Normalization of real-time quantitative reverse transcription-PCR data: a model-based variance estimation approach to identify genes suited for normalization. Cancer Res. 2004;64(15):5245–5250.
- Silver N, Best S, Jiang J, Thein SL. Selection of housekeeping genes for gene expression studies in human reticulocytes using real-time PCR. BMC Mol Biol. 2006;7:33.
- Xie F, Wang J, Zhang B. RefFinder: a web-based tool for comprehensively analyzing and identifying reference genes. Funct Integr Genomics. 2023;23:125.
- Parsons R, Garner N, Oster H, Rawashdeh O. CircaCompare: A method to estimate and statistically support differences in mesor, amplitude and phase between circadian rhythms. Bioinformatics. 2020;36(4):1208-1212.
- Parsons R. circacompare: Analyses of circadian data. R package version 0.2.0. 2021. Available at: https://CRAN.R-project.org/package=circacompare
- Di Nisio A, et al. Impairment of human dopaminergic neurons at different developmental stages by perfluoro-octanoic acid (PFOA) and differential human brain areas accumulation of perfluoroalkyl chemicals. Environ Int. 2022;158:106982.
- Xiang S, et al. Oscillation of clock and clock-controlled genes induced by serum shock in human breast epithelial and breast cancer cells: Regulation by melatonin. Breast Cancer (Auckl). 2012;6:155-168.
- Chang HC, Guarente L. SIRT1 mediates central circadian control in the SCN by a mechanism that decays with aging. Cell. 2013;153(7):1448-1460.
- Yoo SH, et al. PERIOD2::LUCIFERASE real-time reporting of circadian dynamics reveals persistent circadian oscillations in mouse peripheral tissues. Proc Natl Acad Sci U S A. 2004;101(15):5339-5346.
- Ueda HR, et al. System-level identification of transcriptional circuits underlying mammalian circadian clocks. Nat Genet. 2005;37(2):187-192.
- Beaulé C, Granados-Fuentes D, Marpegan L, Herzog ED. In vitro circadian rhythms: Imaging and electrophysiology. Essays Biochem. 2011;49(1):103-117.
- Ribeiro RFN, et al. Circadian rhythms are disrupted in patients and preclinical models of Machado-Joseph disease. Brain. 2025;148(11):4127-4142.
- Masri S, Sassone-Corsi P. The emerging link between cancer, metabolism, and circadian rhythms. Nat Med. 2018;24(12):1795-1803.
- Ribeiro RFN, Cavadas C, Silva MMC. Small-molecule modulators of the circadian clock: Pharmacological potentials in circadian-related diseases. Drug Discov Today. 2021;26(7):1620-1641.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공