본 프로토콜은 입방해파리 Tripedalia cystophora의 분리된 rhopalium에서 시각 유도 수영 페이스메이커 신호의 세포외 전기생리학적 기록 방법을 설명하며, 이는 시각 정보 처리 및 감각-운동 통합의 정밀한 조사를 위해 장애물 회피 행동의 정량적 판독값을 제공합니다.
방법 논문
Tripedalia cystophora의 분리된 Rhopalium으로부터 시각 유발 수영 페이스메이커 신호의 세포 외 전기생리학적 기록
이 논문에서
요약
초록
상자해파리 Tripedalia cystophora는 상을 형성하는 렌즈 눈과 잘 규명된 시각 유도 행동, 그리고 약 10개의 뉴런으로 구성된 다루기 쉬운 로팔륨(rhopalial) 신경계를 모두 갖추고 있어, 시각 정보 처리 및 감각 운동 통합의 시스템 수준 조사를 위한 새로운 모델로 부상하고 있습니다. 수영 페이스메이커 뉴런은 벨(bell) 수축을 직접 제어하는 운동 명령을 생성하며, 이러한 신호는 분리된 로팔륨의 표피 줄기 신경(epidermal stalk nerve)에서 세포 외로 기록될 수 있어 시각적으로 유도된 운동 출력의 정량적 대리 지표를 제공합니다. 페이스메이커 신호 횟수와 순간 주파수로부터 도출된 표준화된 신경 활동으로 정량화되는 페이스메이커 반응의 강도는 결정 전이 임계값(DTT) 이상의 자극 대비에 따라 비례하며, 이를 통해 시각적으로 유도된 감각 운동 통합의 단계적 평가가 가능합니다. 본 프로토콜에서는 세포 외 흡입 전극의 제작, 로팔륨 분리, 기록 챔버 구성, 하단 렌즈 눈으로의 시각 자극 전달, 하드웨어 수준의 자극 타이밍 검증, 표피 줄기 신경에의 전극 배치, 그리고 표준 실험실 하드웨어를 이용한 전기생리학적 데이터와 자극 데이터의 동기화된 수집 방법을 다룹니다.
서론
신경계가 감각 정보를 어떻게 처리하고 이를 적응 행동으로 전환하는지 이해하는 것은 신경과학의 핵심 과제입니다. 약 200,000개의 뉴런으로 구성된 뇌를 통해 신경 회로 조직의 세부적인 분석이 가능했던 Drosophila melanogaster와 같이, 정교한 이미징 및 회로 매핑 도구를 갖춘 유전적 조작 가능 모델 생물들 덕분에 큰 진전이 있었습니다1. 하지만 이러한 시스템의 복잡성으로 인해 감각 입력, 신경 계산 및 행동 출력 사이의 관계를 시스템 수준에서 완전히 이해하는 것은 어렵습니다. 복잡성 스펙트럼의 반대편에는 302개의 뉴런으로 구성된 Caenorhabditis elegans와 같이 완전히 매핑된 소규모 시스템이 있으며2, 이러한 최소 뉴런 수 모델들은 다루기 쉬운 크기를 제공하지만, 상을 형성하는 눈과 이에 의존하는 시각 유도 행동이 부족합니다.
Tripedalia cystophora, 즉 카리브해 상자해파리(그림 1A)는 이 두 극단 사이의 독특한 위치를 차지하며, 시스템 수준의 시각 정보 처리 및 감각 운동 통합을 위한 모델 시스템으로 부상하고 있습니다3. 여기에 설명된 프로토콜(그림 1)은 더 넓은 신경과학계가 이 동물의 모든 실험적 잠재력을 활용할 수 있도록 설계되었습니다.
T. cystophora는 신경 복잡성에 비해 매우 정교한 시각 체계를 가지고 있습니다. rhopalia라고 불리는 4개의 감각 구조 각각에는 상부 렌즈안(ULE)과 하부 렌즈안(LLE)이라는 두 개의 상 형성 렌즈안을 포함하여 6개의 눈이 있습니다4 (그림 1B). 이들은 단순한 광수용 기관이 아닙니다. 척추동물의 눈에서도 발견되는 Matthiessen 유형의 점진적 굴절률 렌즈와 외전된 망막을 갖추고 있으며, LLE의 약 600개 및 ULE의 400개 광수용기가 2차 뉴런에 직접 연결되어 있습니다5,6,7. 척추동물의 c-opsins와 상동인 cnidops opsins 및 관련 광전환 구성 요소를 포함한 광수용 기제의 분자 조성은8,9,10 이들이 과분극 광수용기임을 강력하게 시사하며, 이는 T. cystophora의 시각 체계가 독립적인 진화적 기원에도 불구하고 척추동물의 눈과 동일한 광범위한 기능적 범주에 속함을 의미합니다.
결정적으로, 이러한 광학적 투자는 정교하며 실험적으로 특성화 가능한 시각 유도 행동과 일치합니다. T. cystophora는 서식지 내에서 위치를 유지하기 위해 매개되는 원거리 항법 및 빛줄기 탐지를 통해 광학적으로 복잡한 망그로브 서식지를 탐색하며11,12, 잠긴 지주뿌리를 피해 돌아가는 장애물 회피 행동을 사용합니다12,13,14. 이 연구의 기초가 되는 신경행동학적 프레임워크는 언어를 사용하지 않는 동물의 경우 행동만이 감각 처리의 유일하고 유효한 판독값이라는 관점을 견지합니다. 동물에게 무엇을 인지하는지 물어볼 수 없으므로, 실험 설계는 동물이 탐지하고 이해할 수 있는 자극과 동물이 수행할 수 있는 행동에 맞추어 조정되어야 합니다. 이는 실험적 질문이 연구자의 관점이 아닌 동물의 관점에서 공식화되어야 함을 의미합니다. T. cystophora의 장애물 회피 행동이 이러한 원리를 잘 보여줍니다. 상자해파리의 표피는 단 한 층의 세포 두께뿐이어서, 잠긴 지주뿌리와 충돌하면 취약한 신체 손상으로 인해 치명적일 수 있습니다. 상구(rhopalium) 간의 통합은 오직 환상신경을 통해 하류에서만 발생하므로15, 단일 상구 신경계(RNS)는 입체적 시차로부터 깊이를 계산하는 데 필요한 중첩된 양안 입력을 받지 못합니다. 대신, 이 동물은 수중 광학의 기본 특성, 즉 물체와 주변 물 사이의 대비가 거리가 멀어질수록 빠르게 감소한다는 점을 이용합니다. 따라서 고대비 장애물은 가까이 있는 장애물이며 즉각적인 위협이 되는 반면, 저대비 장애물은 멀리 있어 아직 위협적이지 않습니다. 이 동물은 대비를 거리의 대리 지표로 사용합니다16. 자유롭게 행동하는 동물에서 장애물 회피 행동(OAB)은 실행/비실행(go/no go) 결정에 기반합니다. 동물은 대비가 결정 전이 임계값(DTT), 즉 장애물이 위협이 될 정도로 충분히 가까운 것으로 간주되는 임계값을 초과하는 수중 장애물을 탐지했을 때 이벤트를 트리거하며 실행 반응을 시작합니다. 이 반응은 3–5회의 빠른 종 수축, 120–180° 회전, 그리고 장애물로부터 빠르게 헤엄쳐 멀어지는 행동으로 나타납니다14 (그림 1C). DTT 이상의 단계적 페이스메이커 반응은 위협의 단계적 긴급성을 반영합니다16. 따라서 OAB는 감각-운동 통합을 위한 매우 다루기 쉬운 행동 분석법을 제공합니다. 단일하고 명확하게 정의된 시각적 파라미터(대비)가 정형화되고 정량화 가능한 운동 출력을 제어하므로, 시각 기반 의사결정의 신경적 기초를 연구하는 데 이상적인 시스템이 됩니다.
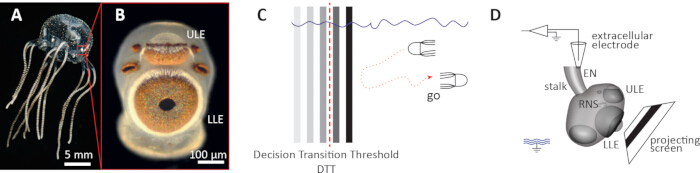
그림 1: 세포 외 전기생리학적 기록을 위한 Tripedalia cystophora 분리된로팔륨(rhopalium) 준비 과정 개요. (A) 성체 T. cystophora 메두사. 스케일 바: 5 mm. 빨간색 상자는 벨 가장자리에 위치한 하나의 로팔륨 위치를 나타냄. (B) 분리된 로팔륨의 확대 사진. 상부 렌즈 눈(ULE)과 하부 렌즈 눈(LLE)은 상을 형성하는 눈임. 스케일 바: 100 µm. Dan-Eric Nilsson 제공 이미지, 허가를 받아 재수록함. (C) 장애물 회피 행동(OAB)의 모식도. 의사결정 전이 임계값(DTT, 빨간색 점선) 미만에서는 동물이 장애물을 향해 계속해서 헤엄침(no go). DTT 이상에서는 장애물 회피 행동이 시작됨(go). (D) 분리된 로팔륨 전기생리학 준비 모식도. 로팔륨이 경사진 투사 스크린을 향하도록 배치됨. 세포 외 전극이 표피 경신경(EN)으로부터 수영 페이스메이커 신호를 기록함. RNS: 로팔륨 신경계; ULE: 상부 렌즈 눈; LLE: 하부 렌즈 눈; EN: 표피 경신경. 접지 기호는 배스 기준 전극을 나타냄. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
이러한 시각 처리를 매개하는 신경 기질은 RNS이며, 이는 rhopalium당 약 1000개의 뉴런으로 구성됩니다17. 이러한 제한적인 뉴런 수에도 불구하고, RNS는 구조적으로 매우 정교합니다. 면역조직화학적 증거에 따르면, RNS는 서로 다른 뉴로펩타이드 프로필을 발현하는 이산적인 뉴런 클러스터들로 조직되어 있으며18, 이는 구획화된 처리 아키텍처와 일치합니다. 시각 정보는 rhopalium의 특정 눈과 각각 연관된 하위 진동 클러스터(subOCs)를 통해 처리되며, 이들은 최종 진동 클러스터(trmOC)로 수렴한다고 제안되었습니다. trmOC는 종의 수축을 조절하는 운동 출력 신호를 생성하는 페이스메이커 세포 집단에 대응하는 것으로 추정됩니다3. 본 연구에서는 trmOC가 subOCs로부터 처리된 감각 정보를 통합하여 행동 운동 출력을 유도하는 수영 페이스메이커 신호를 생성하며, subOCs와 trmOC 간의 동기화가 시각적 입력을 행동 제어 출력으로 변환하는 기초가 된다고 제안합니다3 (그림 2).
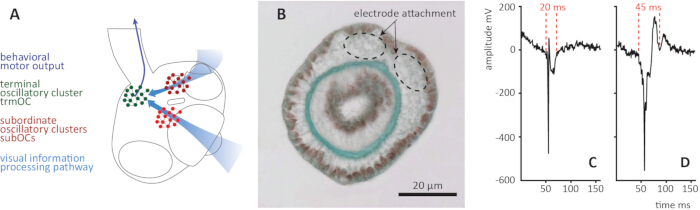
그림 2: Tripedalia cystophora의 수영 페이스메이커 신호의 신경 회로 기원 및 전기생리학적 식별. (A) 촉수 신경계의 모식도. 시각 정보는 개별 눈과 관련된 하위 진동 클러스터(subOC, 빨간색)를 통해 처리되며, 말단 진동 클러스터(trmOC, 초록색)로 수렴된다. trmOC는 subOC로부터 처리된 감각 정보를 통합하여 행동 운동 출력을 유도하는 수영 페이스메이커 신호를 생성하는 것으로 제안된다. 하늘색 화살표는 시각 정보 처리 경로를 나타내며, 진한 파란색 화살표는 행동 운동 출력을 나타낸다. (B) 절단된 표피 줄기 표면의 TEM 마이크로그래프. 점선 원은 줄기의 구강 표면에 있는 분기된 표피 줄기 신경의 두 부착 지점을 나타내며, 이는 기록 전극의 배치 지점에 해당한다. (C) 활동 전위 유사 신호. 파형은 약 20 ms(빨간색 점선으로 표시)의 지속 시간을 가진 날카롭고 좁은 편향이 특징이다. (D) trmOC에서 기원한 수영 페이스메이커 신호. 파형이 더 넓으며, 특성 지속 시간은 약 45 ms(빨간색 점선으로 표시)이고, 여러 trmOC 뉴런의 합산된 활동을 반영하는 복합적인 형태를 보인다. 두 신호 유형 간의 신호 진폭은 비슷하지만, 파형의 지속 시간과 형태가 하위 분석을 위한 신뢰할 수 있는 구별 기준이 된다. 모든 전기생리학적 값은 증폭 후 값(×1000)이다. Bielecki et al.24로부터 허가를 받아 수정됨. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
이러한 구조는 탁월한 실험적 기회를 제공합니다. trmOC에서 생성된 수영 페이스메이커 신호는 일대일 방식으로 종의 수축을 유도하며19, 분리된 로팔륨(rhopalium)의 표피 줄기 신경에서 세포 외 기록이 가능합니다13,20. 이는 시각적으로 유발된 운동 명령과, 더 나아가 시각 유도 행동 반응을 운동 작동기가 완전히 제거된 표본에서 전기생리학적 방법으로 모니터링할 수 있음을 의미합니다14. 따라서 분리된 로팔륨은 다른 시스템에서는 달성하기 어려운 방법론적 중간 지점을 점유합니다. 즉, 시공간적 시각 자극의 정밀한 규정을 포함하여 단순화된 표본의 실험적 제어력을 제공하는 동시에, 행동 관련 신경 출력에 대한 직접적이고 정량적인 판독값을 유지합니다. 안정적인 상태에서 페이스메이커 신호는 0.5–1 Hz로 발생하며, 시각적으로 유발된 장애물 회피 반응은 2–3 Hz로 증가하는 특성을 보여 분석을 위한 명확한 신호 창을 제공합니다14 (그림 1D).
이러한 특성들의 조합으로 인해 T. cystophora에서 분리된 rhopalium 표본은 시각 처리 및 감각 운동 통합의 시스템 수준 연구에 매우 적합합니다. 이 표본은 영상 형성 능력이 있는 눈과 잘 규명된 시각 유도 행동을 가진 다루기 쉬운 신경계에서 시각 처리, 감각 운동 통합 또는 진동 네트워크 역학을 조사하려는 연구자들에게 적합합니다4. 표준 전기생리학 장비, 개조된 상용 프로젝터 및 해부 현미경이 필요하며, 전문적인 기반 시설이 없는 실험실에서도 구축할 수 있습니다. 이 표본에 대해 이전에 설명된 연합 기계-시각 학습 패러다임(시각 및 기계 감각 자극의 동시 연합 쌍 형성)14은 여기에서 설명하는 기본 기록 프로토콜의 확장으로 구현될 수 있습니다.
프로토콜
본 연구에 대해 동물 윤리 승인은 필요하지 않았습니다. Tripedalia cystophora를 포함한 자포동물은 두족류와 척추동물에만 적용되는 과학적 목적의 동물 보호에 관한 지침 Directive 2010/63/EU의 범위에 해당하지 않습니다. 본 연구에 사용된 동물은 미국 푸에르토리코 라 파르게라(La Parguera) 인근의 망그로브 하천에서 채집되었으며, 해당 지역은 유전자원 접근 및 이익 공유에 관한 나고야 의정서의 당사국이 아니므로 사전 통보 승인이나 접근 및 이익 공유 합의가 필요하지 않았습니다. Tripedalia cystophora는 CITES 또는 적용 가능한 국가 보전 법률에 따라 멸종 위기종이나 보호종으로 지정되어 있지 않습니다.
1. 스테이지 및 신호 체인 설정
참고: 모든 하드웨어 구성 요소와 그 연결 상태는 그림 3에 나와 있습니다. 본 섹션 전반에 걸쳐 그림 3을 참조하십시오. 본 섹션의 모든 단계는 동물을 다루기 전에 완료해야 합니다. 이 단계에서 기록 챔버에 해수는 채워지지 않은 상태입니다.
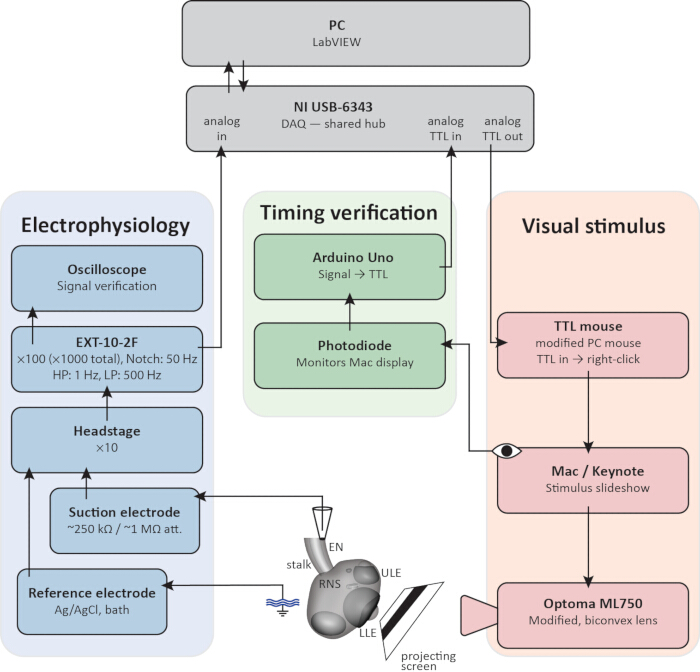
그림 3: 분리된 rhopalium 세포외 전기생리학 준비물을 위한 연결 도식. VI와 DAQ가 실행 중인 PC(상단, 회색)는 세 가지 신호 체인 모두를 위한 공통 통합 허브 역할을 합니다. 전기생리학 체인(파란색): 수영 페이스메이커 신호를 흡입 전극(~250 kΩ free tip, ~1 MΩ attached)과 bath-applied Ag/AgCl 기준 펠렛 전극을 통해 표피 자루 신경(EN)에서 기록하며, EXT-10-2F 헤드스테이지(×10)와 메인 앰프(×100, 총 ×1000)로 증폭하고 밴드패스(HP: 1 Hz, LP: 500 Hz) 및 50/60 Hz 노치 필터링을 거쳐 오실로스코프로 모니터링하고 DAQ로 획득합니다. 시각 자극 체인(빨간색): DAQ TTL 펄스가 수정된 PC 마우스(TTL 마우스)를 통해 자극 슬라이드 쇼를 진행시키며, DLP 프로젝터(수정됨, 양볼록 렌즈)를 구동하여 하단 렌즈 눈(LLE) 앞의 기록 챔버 경사 스크린 벽에 자극을 투사합니다. 타이밍 검증 체인(초록색): 포토다이오드가 컴퓨터 디스플레이 상의 흑백 표시 사각형을 모니터링하며, 이 사각형은 자극 시작 시 흰색에서 검은색으로 바뀌고 종료 시 다시 흰색으로 돌아옵니다. Arduino Uno가 이 신호를 TTL 펄스로 변환하여 DAQ에 기록함으로써 검증된 자극 창을 생성합니다. RNS: rhopalial nervous system; ULE: upper lens eye; LLE: lower lens eye; EN: epidermal stalk nerve. 모든 진폭 값은 증폭 후(×1000) 기준입니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
- 기록 챔버 제작
- 시료 준비물, 유지용 마이크로피펫 팁, 그리고 기록 전극 팁을 수용할 수 있을 만큼 충분한 내부 치수를 갖춘 기록 챔버를 설계하거나 3D 프린팅하십시오.
참고: 기능적으로 중요한 설계 특징은 커버슬립 렛지(ledge)로, 이는 투사 스크린으로부터 2mm 떨어진 커버슬립 가장자리에 촉수관(rhopalium)을 위치시키며, 스크린 크기(16mm × 12mm, 경사각으로)입니다. 60°), 이는 함께 하위 렌즈 눈에서 시각 자극의 각시야(angular subtense)를 결정합니다. 본 연구에서 설명하는 챔버는 30 mm × 30 mm의 바닥 면적과 약 5 mm의 벽 두께를 가집니다. 기술 도면은 다음에서 제공됩니다. 그림 4. - Roth 20 mm × 26 mm 헤마사이토미터 커버슬립을 기록 챔버의 커버슬립 턱 위에 놓습니다. 커버슬립은 부력의 부재로 인해 제자리에 고정되며 접착제를 이용한 고정은 필요하지 않습니다.
- M6 관통 구멍을 사용하여 기록 챔버를 현미경 스테이지에 장착하십시오. 기록 챔버의 투영 스크린 벽면에 투영된 이미지를 정밀하게 정렬하는 것이 용이하므로 x-y-z 이동 스테이지 사용을 권장합니다.
- 기록 챔버 유동 채널의 입구 및 출구 포트를 연결하십시오.그림 4A) 온도가 조절되고 물이 순환되는 항온수조에 28 °C.
참고: 기록 챔버의 온도는 28–30 °C 실험 전반에 걸쳐.
- 시료 준비물, 유지용 마이크로피펫 팁, 그리고 기록 전극 팁을 수용할 수 있을 만큼 충분한 내부 치수를 갖춘 기록 챔버를 설계하거나 3D 프린팅하십시오.
- 광학 구성 (그림 3, 시각 자극 체인)
주의: 프로젝터 출력물을 직접적으로 보지 마십시오. 특히 중성 밀도 필터를 설치하기 전(섹션 4)에 주의하십시오. 제조사의 렌즈 시스템을 제거하면 내장된 빛 감쇄 기능이 사라져 안구 손상을 일으킬 수 있습니다.- 프로젝터에서 제조사의 렌즈 시스템을 제거하십시오.
- 투사된 이미지를 기록 챔버의 투사 스크린 벽면에 초점을 맞추기 위해, 프로젝터 출력 구경 앞에 단일 양볼록 렌즈(f = 30 mm)를 장착하십시오.
- 투사된 이미지가 기록 챔버의 투사 스크린 벽면에 초점이 맞고 스크린 크기(16 mm × 12 mm)를 가득 채우도록 프로젝터를 정렬하십시오.
참고: 이 단계에서는 중성 밀도 필터를 삽입하지 않습니다. 적절한 필터 강도는 섹션 4의 생물학적 보정 과정에서 경험적으로 결정합니다.
- 신호 체인 조립 (그림 3, 전기생리학 및 타이밍 검증 체인)
- 전극 홀더를 EXT-10-2F 증폭기와 함께 제공된 헤드스테이지 암에 연결하고, 헤드스테이지 암을 하나의 MM33 마이크로매니퓰레이터에 고정하십시오.
- 헤드스테이지를 메인 앰프에 연결하십시오. 헤드스테이지 게인은 ×10입니다. 메인 앰프 게인을 ×100으로 설정하여 총 증폭도를 ×1000으로 맞추십시오.
- 앰프 출력을 아날로그-디지털 변환기(DAQ)의 아날로그 입력 채널에 연결하십시오.
- USB를 통해 DAQ를 LabVIEW(2018 버전 또는 유사 버전)가 실행 중인 PC에 연결하십시오.
- Arduino Uno의 TTL 출력을 DAQ의 전용 아날로그 입력 채널에 연결하십시오.
- 포토다이오드를 컴퓨터 디스플레이의 흑백 표시 사각형 위에 배치합니다(단계 1.4.2). 포토다이오드의 양극 단자를 Arduino Uno의 아날로그 입력 핀 A0에 연결하고, 음극 단자를 접지(ground)에 연결합니다. 포토다이오드 모니터링 및 TTL 출력 임계값 로직을 구현하는 Arduino 스케치는 보충 자료로 제공됩니다(보충 파일 1).
- 자극 기하학적 구조 설계 (그림 3, 시각 자극 체인)
- 프레젠테이션 소프트웨어에서 시각적 자극을 흰색 배경 위에 움직이는 수직 회색 막대로 디자인하여 망그로브 지주근 장애물을 모사하십시오. 배경은 최대 흰색으로 설정하십시오.
참고: 흰색 배경 대비 막대의 회색 레벨은 자극의 대비를 결정하며, 이는 섹션 4의 복사 조도 특성 분석 단계에서 설정됩니다. 막대는 다음의 각도를 형성해야 합니다. 30° 하단 렌즈 안구의 시각(시야 중심에서 측정) 및 이동 속도 10° s-1 시야의 전체 너비에 걸쳐 있으며, 항상 시야 내에 유지되어야 합니다. 투영된 장애물의 시각은 다음과 같이 결정할 수 있습니다.
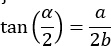
여기서 α는 시각각, a는 이미지 특징의 너비, b는 하단 렌즈 안구에서 화면까지의 거리입니다. 바의 움직임은 개별 슬라이드의 연속적인 구성이 아니라, 단일 슬라이드 내의 바 객체에 적용된 하나의 연속적인 객체 애니메이션(예: Keynote의 "이동" 빌드)으로 구현됩니다. 이 애니메이션이 구현된 대표적인 자극 파일이 보충 자료로 제공됩니다 (보충 파일 2). 막대의 너비와 속도는 물리적 단위가 아닌 시각적 각도로 지정되므로, 프레젠테이션 소프트웨어의 애니메이션 개체 크기와 지속 시간으로 입력하기 전에 기록 챔버의 특정 작동 거리와 화면 크기를 기준으로 위 식을 사용하여 두 값 모두 밀리미터(mm) 및 mm/s로 변환해야 합니다. - 슬라이드 모서리에 작고 흑백인 표시 사각형을 포함하십시오. 이 사각형은 바(bar)의 움직임이 시작되는 시점에 흰색에서 검은색으로 바뀌고, 자극이 종료될 때 다시 흰색으로 돌아와야 합니다. 3.3단계의 자극 타이밍 검증을 위해 포토다이오드를 사용하여 컴퓨터 디스플레이상의 이 사각형을 모니터링하십시오.
참고: 흑백 표시 사각형은 슬라이드의 일부여야만 프리젠테이션 중 컴퓨터 디스플레이에 나타나므로, 기록 챔버 화면의 투영 이미지 내에 반드시 나타나게 됩니다. 하지만 이 사각형의 크기는 컴퓨터 디스플레이의 포토다이오드 수신 영역만을 채우도록 설정되었습니다. 챔버 화면에 투영되었을 때, 이 사각형은 충분히 작아서 하단 렌즈 안(eye)으로는 뚜렷한 시각적 특징으로 분해되지 않으며, 전체 화면 휘도에 기여하는 바가 무시할 수 있는 수준이므로 빛의 ON/OFF 반응을 유발하지 않습니다.4,13,20. - 자동 또는 수동 트리거를 사용하여 프레젠테이션 소프트웨어 슬라이드를 넘기십시오.
- 옵션 A (자동화): 표준 PC 마우스를 개조하여 DAQ 출력으로부터 수신된 짧은 5 V TTL 펄스가 오른쪽 클릭 신호를 대체하도록 트랜지스터-트랜지스터-논리(TTL) 마우스를 제작한다. TTL 마우스를 USB를 통해 프리젠테이션 컴퓨터에 연결한다. 오른쪽 클릭 입력 시 슬라이드가 넘어가도록 프리젠테이션 소프트웨어를 설정한다.
- 옵션 B (수동): 의도한 자극 시작 시점에 수동으로 슬라이드 넘기기를 실행합니다. 분석 시 트리거 신호 자체가 아니라 Arduino로 검증된 자극 창(채널 3)을 최종 타이밍 기록으로 사용하므로(단계 6.2.1), 수동 트리거링을 하더라도 타이밍 정확성에는 영향을 주지 않습니다. 다만, 데이터 획득 과정에서 작업자의 정밀한 타이밍 조절이 필요하며 자동 옵션보다 편의성은 떨어집니다.
- 프레젠테이션 소프트웨어에서 시각적 자극을 흰색 배경 위에 움직이는 수직 회색 막대로 디자인하여 망그로브 지주근 장애물을 모사하십시오. 배경은 최대 흰색으로 설정하십시오.
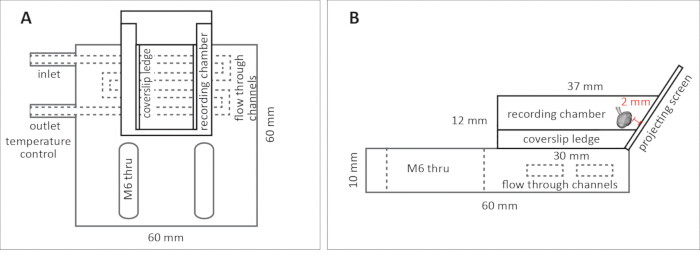
그림 4분리된 로팔리움(rhopalium) 표본을 위한 기록 챔버. (A) 상단도 도식. 기록 챔버의 양측에는 워터재킷 온도 조절을 위한 관통 유로가 있으며, 입구 및 출구 포트(외경 4.2 mm, 내경 2.5 mm)가 표시되어 있다. 커버슬립 턱은 챔버의 양쪽 내부 벽을 따라 세로로 뻗어 있어, 챔버 중간 높이에서 헤마사이토미터 커버슬립을 지지한다. M6 관통 구멍은 챔버를 현미경 스테이지에 고정하기 위한 장착 지점을 제공한다. 전체 크기: 60 mm × 60 mm. (B) 치수가 표시된 측면도 모식도. 기록 챔버의 내부 높이는 12 mm이며 상단 너비는 37 mm이다. 챔버의 한쪽 벽면은 다음 각도로 기울어진 투사 스크린을 형성한다. 60° 하단 렌즈 안구의 광축과 일치하도록 수직 방향으로 조절합니다. 커버슬립 턱은 rhopalium이 투사 스크린을 향하는 커버슬립 가장자리에 위치하도록 합니다. 여기에 표시된 2 mm의 작동 거리는 본 프로토콜에 기술된 특정 챔버, 스크린 및 프로젝터 구성에 따른 것입니다. 이 설계를 다른 하드웨어에 적용하려는 독자는 단계 1.4.1의 식을 사용하여 자신의 설정에 적합한 작동 거리를 다시 계산해야 합니다. 온도 제어를 위한 유동 채널은 기록 챔버 베이스 내부에 있으며 시료와 접촉하지 않습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
2. 전극 제작
참고: 세포외 흡입 전극은 흡입 부착 및 전기 전위 기록에 적합한 개구부를 형성하기 위해 끝을 가늘게 뽑아낸 유리 모세관 튜브로 구성됩니다. 유리 모세관은 전기 절연체 역할을 하여 팁 부분의 전위만 기록되도록 합니다. 모세관에 삽입된 은선은 증폭기와 연결됩니다. 이러한 구성으로 다중 단위 기록(multi-unit recordings)이 가능하며, 바스(bath)에 설치된 참조 전극을 기준으로 전극 팁에 위치한 페이스메이커 세포 집단의 전기 전위를 캡처합니다. 전극은 기록 세션 전, 사용하는 당일에 제작해야 합니다. 보관된 전극은 팁이 막히기 쉬우며, 이 경우 해수가 모세관 내부로 흡입되지 않아 전극이 작동하지 않게 됩니다. 뽑아낸 유리 모세관은 팁이 날카롭고 깨지기 쉽습니다. 제작 중 찔림 부상을 방지하기 위해 주의해서 취급하고, 파손되었거나 불합격된 모세관 또는 사용한 모세관은 지정된 날카로운 물건 전용 폐기함에 버리십시오.
- 유리 모세관 튜브 당기기
- 붕규산 유리 모세관 튜브(1.16 mm ID × 2.00 mm OD × 80 mm L)를 마이크로피펫 풀러(micropipette puller)에 장착합니다.
- 다음의 풀링 프로그램을 실행합니다: Line 1 (×1): heat 535, pull 0, velocity 12, time 200, pressure 600, ramp 540. Lines 2–4 (×3): heat 532, pull 0, velocity 12, time 100.
참고: 이 파라미터들은 사용된 기기, 유리 및 필라멘트에 특화된 것이며, 다른 기기에서 사용하거나 필라멘트 마모 후에는 조정이 필요할 수 있습니다. 이를 고정된 사양이 아닌 시작점으로 간주하십시오. - 당겨진 전극을 조심스럽게 제거하고, 기계적 손상을 방지하기 위해 팁이 위로 향하도록 보관합니다.
- 전극 팁 연마
- 모세관 축에 수직으로 매끄러운 진공 밀봉 표면을 만들기 위해 팁을 연마합니다. 아래에 제공된 두 가지 옵션을 참조하십시오. 옵션 A(마이크로포지)가 권장됩니다.
- 옵션 A: 마이크로포지(microforge)를 이용한 연마 (권장)
- 당겨진 전극을 마이크로포지에 장착합니다.
- 600× 배율(40× 대물렌즈, 15× 접안렌즈) 하에서 팁을 가열 필라멘트 근처에 위치시킵니다.
- 개구부의 저항값이 약 250 kΩ(조직과 접촉 시 약 1 MΩ에 해당)이 될 때까지 팁을 가열하고 연마합니다. 600× 배율에서 이는 접안렌즈 레티클 스케일의 약 3단계 증분과 일치합니다.
참고: 전극 저항을 측정하려면, 전극을 해수로 채운 후 BNC 코어(전극의 은선에 연결됨)와 배스 참조(Ag/AgCl 펠릿) 전극 사이에 멀티미터를 연결하십시오. 신호 품질이 전극 적합성의 기본 기준이 되는 표준 시각 유발 기록(단계 6.1.5)에서는 전기 저항 측정이 필요하지 않습니다. 하지만 계산된 전류 전달이 필요한 연합 학습 패러다임에 이 준비 과정을 사용할 때는 측정이 필요하며, 이는 본 프로토콜의 범위를 벗어납니다14. - 전극을 마이크로포지에서 제거하기 전에 완전히 식힙니다.
- 옵션 B: 마이크로포지 없이 수동 연마
주의: 이 단계에서는 오픈 플레임(에탄올 버너)을 사용합니다. 인화성 물질을 화염에서 멀리하고 표준 실험실 오픈 플레임 주의 사항을 준수하십시오.- 유리가 녹아 팁이 미세한 물방울 모양으로 밀봉될 때까지 당겨진 모세관 팁을 에탄올 버너의 화염에 짧게 유지합니다.
- 밀봉된 팁을 완전히 식힙니다.
- 고운 사포(1200 grit) 위에 탈이온수를 한 방울 떨어뜨리고 모세관을 종이 표면에 수직으로 세웁니다.
- 시계 방향과 반시계 방향을 번갈아 가며 작은 원형 운동으로 팁을 연마합니다.
- 모세관 현상에 의해 소량의 유리 파편이 섞인 물이 팁 안으로 빨려 들어올 때까지 조심스럽게 연마를 계속합니다.
- 모세관의 반대쪽 끝에 고무 튜브를 부착하고 이를 시린지에 연결합니다.
- 약한 흡입력을 가해 탈이온수를 팁을 통해 끌어당겨 유리 파편을 씻어냅니다.
- 파편이 제거되지 않으면, 짧은 시간 동안 다시 부드럽게 연마하고 세척 단계를 반복합니다.
참고: 완성된 팁을 통해 부드럽게 흡입했을 때의 목표 유량은 10 s당 약 1 cm의 수주(water column)입니다. 팁 제작의 성공 여부는 팁의 외형이 아니라 기록 결과(저잡음, 고진폭 신호)로 정의됩니다. 두 연마 옵션 모두 제작된 전극의 약 40%–50%만이 이러한 기록을 생성하지만, 제한 요인은 서로 다릅니다. 마이크로포지 연마(옵션 A)의 경우, 실패 원인은 주로 풀링 단계(단계 2.1) 중에 발생한 불균일한 기공 기하학적 구조이며, 이는 이후의 열 연마로 완전히 교정할 수 없습니다. 수동 연마(옵션 B)의 경우, 성공 여부는 주로 작업자의 숙련도에 달려 있으며, 가장 흔한 실패 원인은 과도한 연마로 인한 과하게 큰 기공입니다. 매끄럽고 적절한 크기의 둥근 기공은 고품질 기록의 확률을 실질적으로 높여주지만, 이를 보장하지는 않습니다. 기능적 결과만이 궁극적으로 중요한 유일한 기준입니다.
- 전극 조립
- 연마된 모세관 튜브를 전극 홀더에 삽입하여 Ag/AgCl(은/염화은) 선이 유리 모세관 내부에서 꼬임 없이 뻗어 있는지 확인하고, EXT-10-2F 앰플리파이어와 함께 제공된 헤드스테이지 암(headstage arm)에 장착합니다. 헤드스테이지 암을 MM33 마이크로매니퓰레이터에 고정합니다.
참고: 은선이 염화 처리되지 않은 경우, 전극의 은선과 별도의 고체 은 전극을 모두 2 M KCl 용액에 담그고 절연 리드를 통해 12 V DC 전원에 연결하여 전기화학적으로 염화 처리하십시오. 약 2분 간격으로 전류를 가하며 매 회차 사이에 전선을 육안으로 검사하십시오. 전선이 눈에 띄게 어두워지면 충분히 염화된 것이며, 이는 보통 총 5분 이내에 이루어집니다. 염화 처리 후 탈이온수로 충분히 헹굽니다. 염화 처리되지 않은 전선은 크고 불안정한 DC 오프셋을 유발할 수 있습니다.
주의: KCl 용액에서의 전해 염화 처리는 염소 및 수소 가스를 생성합니다. 환기 구역에서 수행하십시오. 사용한 KCl 염화 용액은 기관의 유해 폐기물 지침에 따라 폐기하십시오. - 기록 직전에, 내부 용액이 은선의 중간까지 도달할 때까지 채워진 기록 챔버에서 해수를 모세관으로 직접 흡입하여 전극을 채웁니다. 채우는 절차는 단계 3.1을 참조하십시오.
참고: 홀딩 마이크로피펫(holding micropipettes)은 기록용 전극과 같은 광학적 또는 전기적 사양이 필요하지 않습니다. 팁 직경이 너무 커서(저항 250 kΩ 미만) 또는 팁 기하학적 구조가 중심에서 벗어나 제작 단계(단계 2.2)에서 탈락한 전극들이 이 목적에 적합하므로 보관하여 사용하십시오. 전용 홀딩 마이크로피펫을 별도로 제작할 필요는 없습니다.
- 연마된 모세관 튜브를 전극 홀더에 삽입하여 Ag/AgCl(은/염화은) 선이 유리 모세관 내부에서 꼬임 없이 뻗어 있는지 확인하고, EXT-10-2F 앰플리파이어와 함께 제공된 헤드스테이지 암(headstage arm)에 장착합니다. 헤드스테이지 암을 MM33 마이크로매니퓰레이터에 고정합니다.
3. 시스템 검증
이 섹션에서는 실험 준비물을 도입하기 전에 전극, 신호 체인, 자극 전달 및 타이밍 검증을 포함한 전체 기록 시스템이 올바르게 작동하는지 확인합니다. 전체 신호 체인은 그림 3에 나와 있습니다. 계속 진행하기 전에 모든 연결 상태를 확인하십시오.
- 챔버 충전 및 전극 준비
- 배양 탱크에서 0.20 µm 필터링된 해수를 사용하여 기록 챔버를 채웁니다. 이는 배양 환경과 기록 챔버 간의 화학적 조성을 일정하게 유지하여, 페이스메이커 활동이나 표본의 생존능에 영향을 줄 수 있는 외부 화합물 노출 또는 수질 변화를 방지하기 위함입니다.
- 기록 챔버에서 직접 해수를 흡입하여 모세관 내부 용액이 은선(silver wire)의 중간 지점까지 도달할 때까지 기록 흡입 전극을 채웁니다. 홀딩 마이크로피펫에 기록 챔버의 해수를 충분히 채워 결정에 흡입 부착이 가능하도록 합니다.
- Ag/AgCl (은/염화은) 소결 펠릿 전극을 기록조에 배치하고 헤드스테이지의 참조 입력단에 연결합니다.
- 접지 및 노이즈 확인
주의: 이 설정은 해수와 매우 가까운 곳에서 전기 장비를 작동시킵니다. 모든 전기 연결부와 장비를 챔버 및 유출 가능 지역으로부터 멀리 유지하고, 습한 환경에서의 작업에 대한 기관 내 전기 안전 수칙을 준수하십시오.- 그라운드 루프를 방지하기 위해 모든 기기를 단일 공통 접지점으로 접지합니다(스타 접지 구성).
- 오실로스코프에서 신호를 모니터링합니다. 다음 단계로 진행하기 전에 베이스라인이 깨끗하고 노이즈가 없는지 확인합니다.
참고: 본 실험실에서는 세포 외 기록 시 일반적으로 패러데이 케이지를 사용하지 않는데, 이는 엄격한 스타 접지가 물리적 차폐보다 전기적 (50/60 Hz) 노이즈 제거에 일관되게 더 효과적임이 입증되었기 때문입니다.
- 타이밍 검증 체인
- LabVIEW 가상 기기(VI)(보충 자료 Supplementary File 3로 제공됨)를 실행합니다. 시스템 검증 중에 VI를 실행하십시오. 이는 TTL 마우스로 TTL 펄스를 보내 자극 생성을 트리거하며, 실험 표본을 도입하기 전에 전기생리학적 신호, LabVIEW TTL, Arduino TTL 등 모든 채널이 올바르게 수집되는지 확인할 수 있는 .txt 출력 파일을 생성합니다.
참고: LabVIEW에 기록된 TTL 명령과 Arduino로 확인된 자극 시작 사이의 지연 시간은 기록마다 예측 불가능하게 다르며, 이 단계에서는 해결되지 않습니다. 대신 분석 단계(7.2.1단계)에서 각 기록마다 개별적으로 결정하고 보정합니다. - DAQ의 TTL 펄스가 자극 생성을 올바르게 트리거하고, 시각 자극이 설계된 대로 프로젝션 스크린에 전달되는지 확인합니다.
- Arduino Uno가 컴퓨터 디스플레이의 흑백 표시 사각형의 변화를 감지하고 DAQ로 TTL 펄스를 출력하는지 확인합니다.
참고: Arduino Uno는 analogRead(A0)를 통해 포토다이오드 전압을 샘플링합니다. 샘플링된 값이 경험적으로 결정된 임계값(본 설정에서는 0–1023 analogRead 범위 중 61) 미만으로 떨어지면 디지털 출력 핀 5가 5 V (TTL high)로 설정되며, 값이 다시 임계값 위로 돌아오면 출력은 0 V로 돌아갑니다. 이 임계값은 설정에 따라 다르며 각 스크린 및 주변 조명 구성에 맞춰 재교정해야 합니다. - Arduino Uno의 자극 창 TTL이 전기생리학적 채널 및 VI 디지털 TTL 채널과 함께 LabVIEW VI에서 생성된 .txt 파일에 올바르게 기록되는지 확인합니다.
참고: 포토다이오드의 원시 출력은 DAQ 입력에서 신뢰할 수 있는 자극 검출을 하기에는 노이즈가 너무 심하므로, 포토다이오드 신호를 DAQ에서 직접 기록하지 않습니다. Arduino Uno를 통해 깨끗한 TTL 펄스로 변환함으로써 신뢰할 수 있는 저노이즈 타이밍 신호를 확보합니다. 포토다이오드 모니터링 및 TTL 출력을 구현하는 Arduino 스케치는 보충 자료(Supplementary File 1)로 제공됩니다. Arduino의 1 kHz 리프레시 속도는 DAQ 샘플링 속도와 일치하여 타이밍 정보의 손실이 없음을 보장합니다. - 모든 채널이 검증되면, 섹션 4를 준비하기 위해 기록 챔버를 비우고 챔버에서 전극을 제거합니다.
- LabVIEW 가상 기기(VI)(보충 자료 Supplementary File 3로 제공됨)를 실행합니다. 시스템 검증 중에 VI를 실행하십시오. 이는 TTL 마우스로 TTL 펄스를 보내 자극 생성을 트리거하며, 실험 표본을 도입하기 전에 전기생리학적 신호, LabVIEW TTL, Arduino TTL 등 모든 채널이 올바르게 수집되는지 확인할 수 있는 .txt 출력 파일을 생성합니다.
4. 광량 보정 및 대비 결정
참고: 이 섹션에서는 하부 렌즈 눈의 시각적 자극을 위한 올바른 광학 구성을 설정하고, 대비 계산에 필요한 조사도 값을 결정합니다. 생물학적 보정 단계에서는 희생용 rhopalium이 사용됩니다. 조사도 특성 분석은 챔버 내에 아무런 준비물 없이 수행됩니다. 이 섹션은 시간이 많이 소요됩니다. 생물학적 보정, 모든 회색조 수준에서의 조사도 특성 분석 및 대비 계산은 녹화일 이전에 별도의 세션을 할애해야 할 수도 있습니다. 생물학적 보정에 사용된 rhopalium은 이 섹션이 끝난 후 폐기해야 하며 녹화에 사용할 수 없습니다.
- 생물학적 교정
- 녹화 챔버를 다음으로 채웁니다. 0.20 µm 배양 탱크에서 얻은 여과 해수.
- 섹션 5에 설명된 절차에 따라 로팔리움(rhopalium)을 분리하여 기록 챔버로 옮기십시오.
- 홀딩 마이크로피펫을 사용하여 rhopalium을 투영 스크린을 향하도록 커버슬립 가장자리에 배치하십시오.그림 1D).
참고: 로팔리움(rhopalium)을 커버스립 표면이 아닌 가장자리에 배치하는 것은 두 가지 목적이 있습니다. 첫째, 커버스립 가장자리를 투사 스크린으로부터 일정하고 재현 가능한 거리에 배치함으로써 모든 기록 과정에서 일관된 작업 거리를 확보할 수 있습니다. 둘째, 하단 렌즈안(lower lens eye)이 스크린을 보기 위해 유리 커버스립을 통해 관찰할 필요가 없으므로, 시각적 자극의 각도 왜곡을 방지할 수 있습니다. 커버스립 가장자리에서 투사 스크린까지의 거리는 하단 렌즈안에서 바라보는 모든 투사 자극의 각크기(angular subtense)를 결정하며, 모든 기록에서 이 거리를 일정하게 유지해야 합니다. 본 프로토콜에서 설명하는 챔버의 경우, 이 거리는 2mm입니다. - 단계 6.1에 기술된 절차에 따라 기록 전극을 표피 경사 신경(epidermal stalk nerve)에 부착하십시오.
- 최대 대비 장애물(c ≈ 1.0, 흰색 배경 위의 검은색 막대)을 시야 전체 너비로 이동하며 제시하고, 이에 따른 페이스메이커 신호 반응을 평가한다.그림 1C; 그림 5).
참고: 광도 측정 결과, 사용된 투사 시스템의 가장 밝은 회색조와 가장 어두운 회색조 사이의 최대 달성 가능 대비는 c ≈ 0.99로 확인되었습니다. 이는 자극 설계의 한계가 아니라 프로젝터 블랙 포인트의 잔류 휘도를 반영하는 결과이며, 이를 바탕으로 본 프로토콜 전반에서 최대 대비 자극에 대해 근사 표기법(c ≈ 1.0)을 사용하였습니다.
참고: (중요) 만족스러운 반응은 자극 제시 전반에 걸쳐 지속되는 것이 아니라, 장애물의 앞쪽 가장자리가 시야 중심에 도달했을 때 짧고 시간에 고정된 버스트(burst) 형태로 나타나며, 이 버스트 동안 약 5~15회의 페이스메이커 신호가 발생하면서 페이스메이커 신호 빈도가 2 Hz 이상으로 강력하게 증가하는 것을 의미함.그림 5B빈도와 신호 수 모두에서 반응 강도는 자극 대비에 비례하여 증가합니다. 따라서 최대 대비 자극(c ≈ 1.0)에 대한 반응은 가능한 한 강해야 하는데, 이는 LLE 방향, 전극 부착 및 프로젝터 교정이 정확함을 반영하며, 더 낮은 대비 수준에서의 반응을 구별하기 위한 적절한 동적 범위를 보장하기 때문입니다. 이를 통해 광수용기가 동적 범위 내에서 작동하고 있으며 과도한 복사 조도에 의해 포화되지 않았음을 확인할 수 있습니다. 0.5–1 Hz의 자발적 페이스메이커 활성을 보이는 건강한 표본임에도 불구하고 페이스메이커 빈도의 조절이 관찰되지 않는다면, 과도한 조사량으로 인한 광수용체 포화를 의심해야 합니다. 렌즈 어셈블리에 중성 밀도 필터(예: Thorlabs NE01A, 광학 밀도 = 0.1, 필요에 따라 조정)를 삽입하고 캘리브레이션을 반복하십시오. 강력한 페이스메이커 빈도 반응이 나타날 때까지 감쇠 정도를 단계적으로 높이십시오. 이후의 모든 기록은 이 필터 구성이 적용된 상태에서 수행되어야 합니다. - 만족스러운 생물학적 반응을 얻은 후, 중성 밀도 필터(neutral density filter)의 설정을 기록하십시오. 이 설정은 해당 광학 장치 설정을 사용한 모든 후속 기록 과정에서 고정됩니다.
- 기록 챔버에서 로팔륨(rhopalium)을 제거하여 폐기하십시오. 생물학적 보정에 사용된 로팔륨은 보정 절차 동안 시간이 경과했기 때문에 기록에 사용할 수 없습니다.
- 복사조도 특성 분석
- 기록 챔버를 비우고 투사 스크린 표면이 건조한지 확인하십시오. 분광계 파이버를 투사 스크린 표면 위에 직접 수직으로 배치하십시오.
참고: 대부분의 분광계 광섬유는 방수가 되지 않습니다. 광섬유를 스크린 위에 배치하기 전에 챔버 내부를 비우고 스크린 표면의 물기를 제거해야 합니다. - 프레젠테이션 소프트웨어를 사용하여 측정하려는 각 회색조(gray level)로 투사 화면을 균일하게 조사하고, 분광광도계를 사용하여 복사조도(350~700 nm)를 기록하십시오.
참고: 분광계는 높은 복사 조도 수준에서 과노출될 가능성이 높으므로, 최대 회색조에서 최소 회색조(흰색에서 검은색) 순으로 작업하는 것을 권장합니다. 과노출과 저노출을 모두 방지하기 위해 회색조 범위의 서로 다른 지점에서 적분 시간의 재교정이 필요할 수 있습니다. 모든 회색조에 대해 이 과정을 수행하는 것은 시간이 많이 소요되므로 이에 맞춰 계획을 세워야 합니다. - 다음의 흡수 스펙트럼을 위해 측정된 각 복사 조도 값을 보정하십시오. T. cystophora 하부 수정체 눈에 존재하는 500 nm 옵신21,22.
참고: 옵신 보정은 각 파장에서 측정된 복사조도에 λmax 500nm인 Govardovskii 시각 색소 템플릿의 해당 수광 계수를 곱하여 수행합니다.21그런 다음, 측정된 파장 범위 전체에 대해 합산하여 단일 옵신 보정 복사 조도 값을 얻습니다. 이 계산은 가공되지 않은 분광 복사 조도 데이터가 확보되면 표준 스프레드시트 소프트웨어를 사용하여 수행할 수 있습니다. - 보정된 복사조도 값을 사용하여 각 회색조의 대비를 계산하십시오.

어디에 Iw 흰색 배경의 옵신 보정 복사조도(opsin-corrected irradiance)는 Ig 회색 또는 검은색 막대의 옵신 보정 복사조도입니다. 대비 값은 0(막대를 배경과 구별할 수 없음)에서 1(흰색 배경의 검은색 막대로 최대 대비) 사이의 범위를 가집니다. - 계산된 대비 값으로부터 실험 프로토콜에 필요한 대비 수준에 해당하는 회색조 레벨을 결정하십시오. 이 회색조 레벨을 사용하여 프레젠테이션 소프트웨어 슬라이드쇼를 업데이트하십시오.
참고: 대비는 복사조도 값의 비율이므로, 모든 회색조 수준에서 램프의 절대 출력이 균일하게 변화하는 경우에는 영향을 받지 않습니다. 광학 구성이 변경되지 않는 한, 녹화 세션 간에 복사조도 특성 분석을 반복할 필요는 없습니다. 다만, 세션 간에 자극 반응에서 예상치 못한 변화가 관찰되는 경우, 사용자는 복사조도의 안정성을 확인하는 것이 좋습니다.
- 기록 챔버를 비우고 투사 스크린 표면이 건조한지 확인하십시오. 분광계 파이버를 투사 스크린 표면 위에 직접 수직으로 배치하십시오.
<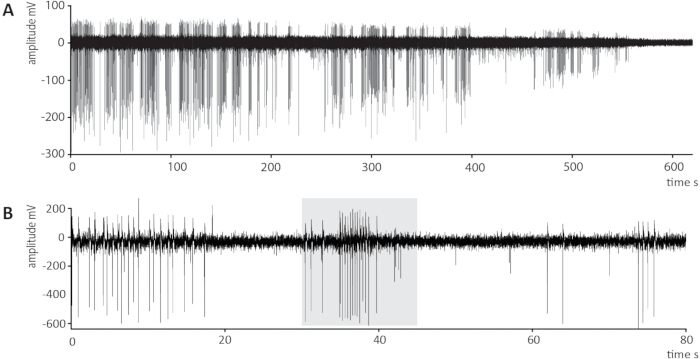
그림 5: Tripedalia cystophora의 분리된 rhopalium에서 기록한 수영 페이스메이커 신호의 대표적인 세포외 기록. (A) 장시간 기록 세션 중 전극 씰(seal)이 점진적으로 손실되는 예시. 페이스메이커 신호 진폭이 약 200–250 s에서 감소하기 시작하며, 이는 전극 팁과 표피 줄기 신경 사이의 전기적 접촉 악화를 반영하며, 약 580–600 s 즈음 신호가 완전히 소실됨. 신호 진폭과 배경 소음이 동시에 감소하는데, 이는 씰 손실의 전형적인 특징임. (B) DTT 상단에서 시각적으로 유도된 장애물 회피 반응의 대표적인 기록. 회색 음영 구역은 Arduino TTL 신호로 정의된 자극 윈도우를 나타내며, 이 기간 동안 고대비 (c = 0.80) 수직 막대 장애물을 하단 렌즈 눈 시야의 전체 너비에 걸쳐 이동시킴. 자극 윈도우 동안 페이스메이커 신호 빈도가 현저히 증가하며, 이는 시각적으로 유도된 장애물 회피 반응과 일치하고, 자극 종료 후 기저 빈도로 돌아감. 자극 윈도우 외부에서 발생하는 자발적 페이스메이커 신호는 예상되는 현상이며 시각 유도 반응에 해당하지 않음. 패널 간 y축 스케일의 차이는 표시된 기록 품질의 차이를 반영하는 것이며, 신호 강도의 차이를 의미하지 않음. 세포외 전기생리학에서 신호 진폭은 생리학적 반응 크기보다는 전극 씰 품질에 따라 결정됨. 모든 값은 증폭 후 값임 (×1000). 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
5. Rhopalium 분리 및 이송
참고: 이 절차는 rhopalium이 필요할 때마다 수행됩니다. 즉, 섹션 4의 생물학적 보정을 위해 희생용 rhopalium으로 한 번 수행하고, 이후 섹션 6에서 사용되는 각 실험용 rhopalium에 대해 수행합니다. 매회 동물을 다루기 전에 모든 하드웨어가 완전히 조립되고 검증되어야 합니다. 실험용 rhopalium의 수는 실험 설계에 의해 결정됩니다.
- 끝부분을 잘라 약 8 mm 직경의 개구부를 만든 일회용 플라스틱 전송 피펫을 사용하여, 배양 탱크에서 동물 한 마리를 배양 탱크의 0.20 µm 여과 해수가 담긴 35 mm 페트리 접시로 옮깁니다.
- 동물이 접시에 밀착되어 움직이지 않을 때까지 과잉 해수를 제거하되, 완전히 건조되지 않도록 주의합니다.
- 미세 가위(Vannas 가위, 0.025 mm × 0.015 mm 날)를 사용하여, rhopalium 부착 지점부터 측정한 stalk 길이의 약 3분의 2 지점에서 rhopalium과 bell을 연결하는 stalk을 절단합니다(즉, rhopalium의 원위부). 절단 직후, 배양 탱크의 0.20 µm 여과 해수를 페트리 접시에 다시 채웁니다.
주의: Vannas 가위는 매우 날카롭습니다. 부상을 방지하기 위해 해부 중에 주의해서 다루십시오.
참고: 절단 후 rhopalium이 rhopalial niche 안으로 후퇴할 수 있습니다. 페트리 접시에 여과 해수를 다시 채우면 대부분의 경우 rhopalium이 떨어져 나옵니다. 그렇지 않은 경우, 파스퇴르 피펫을 사용하여 부드럽게 씻어냅니다.
파스퇴르 피펫(150 mm)을 사용하여 분리된 rhopalium을 현미경 스테이지 위에 위치한 전기생리학 기록 챔버로 옮깁니다. (중요) 이동 중 및 이동 후 내내 rhopalium이 항상 해수에 잠겨 있도록 하십시오. 공기에 노출되면 표본이 가역 불가능하게 손상됩니다. - 전송 피펫을 사용하여 동물을 배양 탱크로 돌려보냅니다.
참고: 단일 rhopalium의 소실은 입방해파리의 정상적인 행동에 큰 지장을 주지 않습니다. rhopalium이 단 하나만 남아 있는 동물도 정상적인 섭식 및 광선 상호작용 행동을 계속해서 보입니다. 또한 rhopalium은 제거 후 2주 이내에 페이스메이커 신호 복구 및 정상적인 광수용체 반응을 포함하여 모든 기능이 완전히 재생됩니다23. 동물은 rhopalia가 더 이상 남아 있지 않을 때까지 후속 세션에서 다시 사용할 수 있습니다. 4개의 rhopalia가 모두 제거되면, 동물은 더 이상 수영 페이스메이커 신호나 bell 수축을 생성할 수 없으며, rhopalium 조직 폐기 방식(단계 6.2.5)에 따라 표준 실험실 싱크 폐기 절차를 통해 인도적으로 처분합니다.
6. 기록
- 로팔리움(Rhopalium) 배치 및 전극 부착
- 기록 챔버에서 해수를 모세관으로 직접 흡입하여, 내부 용액이 은선(silver wire)의 중간 지점까지 도달할 때까지 기록 흡입 전극을 채웁니다. 기록 챔버의 해수를 홀딩 마이크로피펫에 충분히 채워 결정에 흡착될 수 있도록 합니다.
- 홀딩 마이크로피펫을 마이크로조작기에 장착하십시오. 연결된 루어락(Luer-lock) 시린지를 통해 부드럽게 흡입하여, 홀딩 마이크로피펫의 팁을 로팔리움(rhopalium) 말단의 황산칼슘(CaSO₄) 결정에 부착하십시오. 이 결정은 신경 조직을 손상시키지 않으면서 견고한 기계적 고정 지점을 제공합니다.
- 홀딩 마이크로피펫을 사용하여, 투영 스크린을 향하도록 커버슬립 가장자리에 rhopalium을 배치합니다.그림 1D).
참고: (중요) 하단 렌즈 안구와 투사 스크린 사이의 거리를 측정하여 기록해야 합니다. 이 거리는 다음 식을 사용하여 하단 렌즈 안구에서 투사된 이미지 특징의 각시야(수용각)를 계산하는 데 필요합니다.
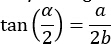
여기서 α는 시각, a는 이미지 특징의 너비, b는 하단 렌즈 안구에서 스크린까지의 거리입니다. 2mm의 작업 거리에서 16mm × 12mm(너비 × 높이)의 투영 이미지는 약 다음의 각도를 형성합니다. 150° 수평으로 그리고 120° ~의 수직 방향 170° 하단 렌즈 안구의 원형 시야. 모든 기록 과정에서 작동 거리를 일정하게 유지해야 하며, 여기서 발생하는 모든 편차는 제시된 자극에 대한 각도 계산을 무효화하고 기록 간의 직접적인 비교를 불가능하게 합니다. - 홀딩 마이크로피펫으로 rhopalium의 위치를 유지하는 동안, 두 번째 마이크로매니퓰레이터를 사용하여 기록 전극을 절단된 stalk 표면 쪽으로 전진시킵니다.
참고: 표피 자루 신경은 로팔리아(rhopalium) 부착 지점부터 고리 신경까지 자루의 전체 길이를 따라 세로로 뻗어 있습니다.15절단면에서는 분기된 표피 줄기 신경(epidermal stalk nerve)의 신경 말단이 노출되며, 렌즈 눈을 향하는 쪽인 줄기의 구측면(adoral surface)에서 전극 접촉이 가능합니다.그림 2B). - 안정적인 신호가 잡힐 때까지 Luer-lock 주사기를 통해 부드럽게 흡입하십시오.
참고: 절단면에서 신경 말단이 항상 시각적으로 구별되는 것은 아닙니다. 해부학적 지표를 바탕으로 표피경 신경(epidermal stalk nerve)이 있을 것으로 예상되는 부위에 전극 팁을 배치하고 가볍게 흡입하십시오. 전극이 적절하게 부착되면 0.5~1 Hz의 예상 주파수에서 파형이 일정한 크고 명확한 페이스메이커 신호가 나타납니다.그림 5). 페이스메이커 신호는 파형의 지속 시간과 형태를 기준으로 활동 전위 유사 신호와 구분됩니다 (그림 2C,D)13,20,24안정적인 페이스메이커 신호의 출현이 전극의 정확한 배치를 결정하는 결정적인 기준이며, 신경 접촉의 시각적 확인이 기준이 아닙니다. 신호가 검출되지 않는 경우, 흡입을 중단하고 전극 팁을 절단면에 맞춰 약간 재배치한 후 다시 적용하십시오. 과도한 흡입은 조직 파편으로 인해 팁이 막히거나 신경 말단에 기계적 손상을 줄 위험이 있습니다. 기록 중 신호 진폭의 점진적인 감소와 배경 소음의 증가는 전극 밀봉(seal)의 손실을 나타냅니다.그림 5A). - 전극 부착 후 기록을 시작하기 전, 최소 10분 동안 준비 상태를 유지하며 적응 시간을 갖도록 합니다. 이 기간 동안 투사 화면에는 흰색 배경을 켜두고, 회색 바는 시야 중심 밖의 한쪽 측면에 고정된 상태로 유지하십시오.
참고: 순응을 시작하기 전, 단일 최대 대비 자극(c ≈ 1.0)을 제시하여 표본의 반응성을 확인하십시오. 반응하지 않는 rhopalia는 데이터셋에서 제외합니다. 순응 기간은 전극 부착으로 인한 기계적 교란 이후 표본이 안정화될 수 있도록 합니다. 정지된 막대가 표시된 흰색 화면을 유지함으로써, 광수용기가 시각 자극 중에 유지될 기저 조건에 광순응되고, 첫 번째 자극이 제시되기 전 초기 페이스메이커 기저 빈도가 안정적으로 유지되도록 합니다. 이는 자극 제어를 위해 프레젠테이션 소프트웨어를 사용하는 실질적인 추가 장점입니다. 순응 중 및 기록 사이의 화면 내용은 추가 프로그래밍 없이 직접 확인 및 완전한 제어가 가능합니다. - 안정적인 페이스메이커 신호가 설정되면, 오실로스코프 디스플레이를 통해 영향을 모니터링하면서 신호 대 잡음비를 최대화하고 신호 진폭과 파형 형태를 보존할 수 있도록 세포외 증폭기의 밴드패스 필터 설정을 최적화하십시오. 다음과 같은 초기 설정을 사용하십시오: 하이패스 1 Hz 및 로우패스 500 Hz; 50/60 Hz 노치 필터(EXT-10-2F 통합 애드온)를 활성화하십시오. 관찰된 신호에 따라 필요에 맞게 조정하십시오.
참고: 하이패스 컷오프(highpass cutoff)를 1 Hz 이상으로 높이면 페이스메이커 신호의 저주파 성분이 점진적으로 감쇄되어 진폭이 감소하며, 잠재적으로 신호 검출에 영향을 줄 수 있습니다. 깨끗하고 쉽게 식별 가능한 페이스메이커 신호를 얻기 위한 증폭 후 목표 신호 진폭은 400~600 mV이며, 최대값은 약 1 V입니다.
- 데이터 수집
- VI(보충 자료로 제공됨)를 설정하십시오. 보충 파일 3) DAQ를 통해 1 kHz의 샘플링 속도로 다음 채널들을 동시에 획득합니다:
채널 1: 전기생리학적 신호 (EXT-10-2F의 증폭 및 필터링된 페이스메이커 신호)
채널 2: LabVIEW로 생성된 아날로그 TTL 출력이 TTL 마우스로 연결됨)
채널 3: Arduino Uno 아날로그 TTL 타임스탬프(컴퓨터 디스플레이상의 흑백 표시 사각형을 모니터링하는 포토다이오드에 의해 검출된 검증된 자극 창을 기록함 — TTL이 high가 될 때 시작, TTL이 low로 돌아올 때 종료로 정의됨).
참고: 채널 2는 의도된 자극 전달 시간을 기록하고, 채널 3은 검증된 실제 자극 창을 기록합니다. 모든 분석에서는 채널 3을 확정적인 자극 타이밍 기록으로 사용해야 합니다. - 실험 프로토콜에 따라 기록 시간을 설정하십시오. 30초의 자극 전 기선(baseline), 약 15초의 시각 자극, 그리고 35초의 자극 후 기간으로 구성된 표준 자극 제시 시퀀스의 경우, 총 기록 시간을 80초로 설정하십시오.
참고: 본 프로토콜은 Bielecki 등(2023)의 연구와 일관되게 반응 강도를 평가하기 위해 일반적으로 10개의 생물학적 반복 시료(rhopalia)를 사용하며, 가급적 10마리의 서로 다른 개체로부터 얻은 시료를 사용하는 것이 권장됩니다.14단일 준비 과정 내에서, 동일하게 분리된 로팔리움(rhopalium)에 가장 낮은 대조도부터 가장 높은 대조도까지 순차적으로 제시되는 전체 시각 자극 프로토콜을 적용합니다. 이러한 순서는 동물이 높은 대조도에서 혐오적 결과가 없다는 점에 습관화되는 것을 방지하기 위함이며, 그렇지 않을 경우 이후에 제시되는 낮은 대조도 자극에 대한 반응성이 감소할 수 있습니다. 연속적인 기록은 2분 간격으로 시작하며, 이에 따라 한 자극 기간의 종료와 다음 자극의 시작 사이에 105초의 간격이 발생합니다(이는 다음 자극 전까지 페이스메이커 주파수가 기저선으로 돌아오기에 충분한 시간입니다). 기술적 반복 실험(technical replicates)은 수행하지 않으며, 각 로팔리움은 자극 시퀀스 내의 대조도 수준별로 단 한 번의 제시를 받습니다. - 보충 자료로 제공된 LabVIEW VI는 보충 파일 3) DAQ에서 TTL 마우스로 기록 시퀀스 내의 적절한 시점에 TTL 펄스를 자동으로 출력하여, 슬라이드를 이동시키고 시각적 자극 시작을 유도합니다. 획득한 데이터는 탭으로 구분된 .txt 파일로 저장하십시오. 제공된 VI를 사용할 때, 기록 메타데이터는 파일 저장 시 파일 이름에 수동으로 인코딩됩니다.
참고: 사용자는 기록을 시작하기 전에 일관된 파일 명명 규칙을 설정하는 것이 좋습니다. 표본 식별자란 특정 기록을 해당 기록이 시작된 특정 rhopalium 및 실험 세션까지 추적할 수 있도록 하는 고유 코드(예: 동물 또는 세션 번호)입니다. 정확한 명명 체계는 연구자의 선호에 맡기되, 체계적이어야 하며 모든 기록을 해당 표본으로 명확하게 역추적할 수 있어야 합니다. 예를 들어, 파일 이름에 기록 날짜 및 시간과 관련 자극 파라미터(예: 대비 수준, 바 크기 및 속도)를 조합하여 구성할 수 있습니다. - 특정 rhopalium에 대한 모든 기록이 완료되면, 해당 rhopalium 조직을 표준 실험실 싱크대 폐기 절차에 따라 처리하십시오.
참고: 사용자는 녹화를 시작하기 전에 일관된 파일 명명 규칙을 설정하는 것이 좋습니다. 날짜, 시료 식별자 및 자극 조건이 포함된 체계적인 파일 이름이면 후속 분석에 충분합니다. 두 가지 실질적인 이유로 LabVIEW로 생성한 시각 자극보다 프레젠테이션 소프트웨어가 선호됩니다. 첫째, 기록 간 하단 렌즈 안구에 투사되는 이미지를 항상 인지하고 제어할 수 있어, 소프트웨어 인터페이스나 시스템 화면으로 인해 의도치 않은 시각적 자극이 발생하는 것을 방지할 수 있습니다. 둘째, 기록 세션 사이의 화면 꺼짐 현상 위험을 제거할 수 있는데, 이러한 현상은 광수용체에서 light-OFF 반응을 유도하여 이후의 기저선 기간에 가짜 페이스메이커 활성(spurious pacemaker activity)을 유발할 수 있기 때문입니다. 렌즈형 눈의 기하학적 구조로 인해, 시야 전체에서 바(bar)의 인지된 각크기와 속도는 비선형적으로 변하게 됩니다. 이러한 비선형성을 보정하지 않은 이유는 두 가지입니다. 첫째, 자유롭게 수영하는 동물은 일정한 속도나 방향으로 장애물에 접근하지 않으므로, 각도 보정의 자연적 관련성이 제한적이기 때문입니다. 둘째, 각크기를 보정하려면 화면 전체의 휘도를 변경해야 하며, 이는 망그로브 빛줄기 감지에 관여하는 light ON/OFF 반응을 유발하기 때문입니다.
- VI(보충 자료로 제공됨)를 설정하십시오. 보충 파일 3) DAQ를 통해 1 kHz의 샘플링 속도로 다음 채널들을 동시에 획득합니다:
7. 데이터 분석
- Igor Pro를 이용한 페이스메이커 신호 판별
참고: 빈도 분석에 앞서, 가공되지 않은 전기생리학적 트레이스에서 수영 페이스메이커 신호를 활동 전위 유사 신호와 판별합니다. 이 두 가지 신호 유형은 기록 중에 동시에 발생할 수 있으며, 페이스메이커 타이밍 데이터를 추출하기 전에 반드시 구분해야 합니다. 두 신호 유형의 대표적인 예시와 판별 가능한 파형 특성은 그림 2C,D에 제시되어 있습니다.- Neuromatic 플러그인(버전 2.00)을 사용하여 .txt 데이터 파일을 Igor Pro(버전 6.37 이상)로 가져옵니다.
- 신호 지속 시간과 파형 형태를 기준으로 수영 페이스메이커 신호를 활동 전위 유사 신호와 판별합니다.
참고: 수영 페이스메이커 신호는 약 45 ms의 특징적인 지속 시간을 가지며, 여러 페이스메이커 뉴런의 합산된 활동을 반영하는 복합 파형 형태를 띱니다. 활동 전위 유사 신호는 약 10 ms로 지속 시간이 더 짧고, 더 날카로운 단일 파형을 보입니다. 두 신호 유형은 비슷한 진폭에 도달할 수 있으므로24 (그림 2C,D), 신호 진폭만으로는 신뢰할 수 있는 판별 기준이 되지 않습니다. 수영 페이스메이커 신호와 활동 전위 유사 신호의 판별 파형 특성을 보여주는 대표적인 도표가 제공됩니다 (그림 2C,D). 오분류는 페이스메이커 빈도 추정의 오류를 유발하므로, 분석 전에 두 신호 유형에 익숙해지는 것이 좋습니다. 신호 파형 특성은 특정 표본 내에서는 일관되지만 표본 간에는 다소 다를 수 있습니다. 따라서 판별 기준은 위에서 설명한 파형 특성을 일반적인 지침으로 삼아 각 표본별로 개별적으로 평가해야 하며, 고정된 보편적 임계값으로 적용해서는 안 됩니다. 자신 있게 분류할 수 없는 모호하거나 중간 단계의 파형의 경우, 결과의 겉보기 강도가 부풀려지는 것을 방지하기 위해 예상되거나 가설로 설정된 결과와 반대 방향으로 모호성을 해결하십시오. 예를 들어, 신호 수가 더 많을 때 테스트 중인 가설이 지지된다면 모호한 이벤트는 제외하고, 신호 수가 더 적을 때 지지된다면 포함시키십시오. - 식별된 각 수영 페이스메이커 신호의 타임스탬프를 추출하여 각 기록에 대한 페이스메이커 이벤트의 시계열을 얻고, 이후의 통계 분석을 위해 이 타임스탬프를 내보냅니다(예: 스프레드시트 또는 .csv 파일).
- 빈도 분석
- 기록 전반에 걸쳐 신호 간 간격의 역수로 페이스메이커 신호 빈도를 계산합니다.
- LabVIEW에 기록된 TTL 명령(채널 2)과 Arduino로 확인된 자극 시작 시점(채널 3) 사이의 지연 시간을 보정한 페이스메이커 신호 타임스탬프를 사용하여, 자극 전 기저선 기간, 자극 기간, 자극 후 기간 동안의 페이스메이커 빈도를 비교함으로써 시각적 자극의 효과를 평가합니다.
참고: 하단 렌즈 눈은 소프트웨어에 기록된 명령이 아니라 확인된 TTL 타이밍에 따라 자극에 반응하므로, 각 기록의 확인된 시작 시간을 가공되지 않은 페이스메이커 및 TTL 타임스탬프와 함께 스프레드시트로 내보내고 (부록 표 1), SAS 분석 스크립트에서 이를 직접 사용하여 모든 페이스메이커 신호를 자극 전, 자극 중 또는 자극 후 창으로 분류합니다 (그림 6). 스프레드시트 단계에서 타임스탬프 값은 수정되지 않습니다. 방해받지 않은 기저선 조건에서 페이스메이커 신호 빈도는 0.5–1 Hz입니다. DTT 상단에서 시각적으로 유도된 장애물 회피 반응은 페이스메이커 빈도가 2–3 Hz로 증가하는 것이 특징입니다. 생리적 최대치는 약 4 Hz이며, 이는 최소 신호 간 간격인 250–280 ms에 해당합니다25. 기저선 페이스메이커 빈도는 표본마다 다르기 때문에, 각 기록의 빈도 값은 자극 전 및 자극 후 기간(자극 기간 자체는 제외)에서 계산된 해당 기록의 평균 빈도를 기준으로 표준화합니다. 이러한 정규화를 통해 기저선 페이스메이커 속도의 차이와 무관하게 표본 간의 반응 크기를 비교할 수 있습니다. 기저선, 자극 및 자극 후 기간을 비교하는 데 사용된 비선형 모델을 포함하여 반응 유의성을 평가하기 위한 전체 통계 절차는 Bielecki et al. (2023)14에 기술되어 있으며, 해당 SAS 분석 코드는 doi: 10.17632/csgymw8kjk.1에서 확인할 수 있습니다. 가공되지 않은 신호부터 판별, 빈도 계산, 표준화를 거쳐 최종 반응 지표에 이르는 대표적인 분석 워크플로우가 그림 7에 제시되어 있습니다.
- LabVIEW에 기록된 TTL 명령(채널 2)과 Arduino로 확인된 자극 시작 시점(채널 3) 사이의 지연 시간을 보정한 페이스메이커 신호 타임스탬프를 사용하여, 자극 전 기저선 기간, 자극 기간, 자극 후 기간 동안의 페이스메이커 빈도를 비교함으로써 시각적 자극의 효과를 평가합니다.
- 기록 전반에 걸쳐 신호 간 간격의 역수로 페이스메이커 신호 빈도를 계산합니다.
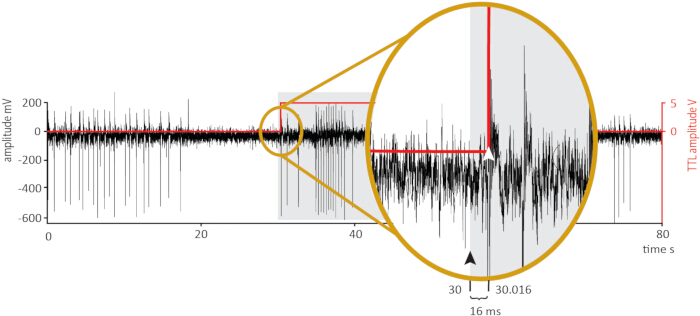
그림 6자극으로 검증된 타이밍을 위한 페이스메이커 타임스탬프 보정의 대표적 시연. VI로 기록된 TTL 명령과 Arduino로 확인된 자극 시작 시점 사이의 지연 시간을 보여주는 예시 기록으로, Arduino/포토다이오드 타이밍 체인을 통해 각 기록별로 개별 확인 후 스프레드시트로 내보낸 결과임 (부록 표 1) SAS 분석 스크립트가 각 페이스메이커 신호 타임스탬프를 자극 전, 자극 중 또는 자극 후 윈도우로 분류하는 데 직접 사용할 수 있도록 함. 검은색 선(왼쪽 y축): 전기생리학적 신호(mV). 빨간색 선(오른쪽 y축): TTL 진폭(V). 회색 음영 영역은 소프트웨어에 기록된 TTL 명령의 타임스탬프에 따른 공칭 자극 윈도우를 나타냄. 삽입도: TTL 시작 부분의 확대 보기. 검은색 화살표 머리는 LabVIEW에 기록된 TTL 송신 시간(t = 30.000 s, 채널 2)을 나타내며, 흰색 화살표 머리는 Arduino/포토다이오드 체인을 통해 검출되어 검증된 자극 시작 시간을 나타냄(t = 30.016 s, 채널 3). 표시된 16 ms의 간격은 다음 내의 대표적인 예시임 <자동 TTL-마우스 트리거링에 대해 20ms 범위가 보고되었습니다(결과). 이 지연 시간은 주어진 기록 내에서 일정하므로, 이에 해당하는 오프셋 전이는 별도로 도식화하지 않았습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
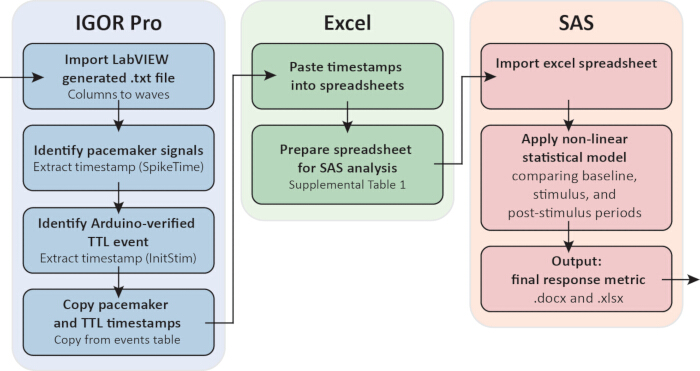
그림 7원시 기록부터 최종 반응 지표까지의 대표적인 분석 워크플로. 페이스메이커 신호와 TTL 타임스탬프는 Igor Pro/Neuromatic 이벤트 테이블에서 추출합니다. 페이스메이커 신호 이벤트는 지속 시간과 파형 형태(단계 7.1.2)로 식별하며, Arduino로 검증된 자극 시작 시점(InitStim, 채널 3)은 계산된 지연 시간이 아닌 절대 타임스탬프로 각 기록마다 추출합니다. 이 타임스탬프들은 스프레드시트로 복사됩니다(부록 표 1), 이는 각 페이스메이커 신호 이벤트에 대해 스파이크 간 간격(Intval)과 중간점 타임스탬프(MidTime)를 계산하여 SAS 분석을 위해 준비됩니다. SAS는 준비된 스프레드시트를 가져와 비선형 통계 모델(Bielecki et al., 2023)을 적용합니다.14각 기록에서 확인된 자극 시작 시점을 기준으로 분류하여 자극 전, 자극 중, 자극 후 기간의 페이스메이커 주파수를 비교함으로써 최종 응답 지표(.docx 요약본, .xlsx 데이터 테이블)를 산출함. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
결과
신호 품질 및 자발적 페이스메이커 활동
절단된 표피 줄기 신경에 전극을 성공적으로 부착하면, 오실로스코프에 자발적인 페이스메이커 신호가 즉시 나타나야 합니다. 고품질 기록은 저잡음 기선(0을 기준으로 양측 약 10–15 mV의 피크 편차, 이는 목표 진폭 범위 내에서 약 27–40:1의 신호 대 잡음비에 해당함)을 배경으로, 증폭 후 진폭이 40–60 mV이며 0.5–1 Hz의 안정적인 자발적 빈도로 발생하는 크고 명확히 구분되는 페이스메이커 신호가 특징입니다 (그림 5B). 진폭이 10 mV 정도로 낮은 기록도 분석할 수는 있으나, Igor Pro에서의 신호 판별 시간이 상당히 증가하므로 특히 미숙련자에게는 권장되지 않습니다. 여러 trmOC 뉴런의 합산된 활동을 반영하는 페이스메이커 신호의 복합 파형 형태는 기록에 함께 나타날 수 있는 더 짧고 날카로운 활동 전위 유사 신호와 구분됩니다24 (그림 2C,D). 단계 7.1에서 설명한 바와 같이, 이 두 가지 신호 유형은 신호 지속 시간(페이스메이커 신호는 ~45 ms, 활동 전위 유사 신호는 ~10 ms)과 파형 형태를 근거로 분석 전에 반드시 판별되어야 합니다. 진폭만으로는 신뢰할 수 있는 판별 기준이 되지 않습니다. 본 프로토콜의 신호 판별은 단일 숙련된 작업자가 수행하였으므로, 공식적인 평가자 간 신뢰도 통계는 계산되지 않았습니다 (토론, 제한 사항 참조).
시각 유발 페이스메이커 반응
건강하고 반응성이 좋은 표본에서, DTT 상단에 움직이는 수직 막대 자극을 하단 수정체 눈에 제시하면 명확하고 시간에 동기화된 페이스메이커 반응이 나타납니다. 페이스메이커 신호 주파수는 장애물의 앞쪽 가장자리가 시야 중심을 통과할 때 2–3 Hz로 증가하며, 자극이 종료된 후 기저 주파수로 돌아옵니다14 (그림 5B). 자극 시작 타이밍은 LabVIEW에서 보고한 타임스탬프에 의존하지 않고 Arduino/포토다이오드 타이밍 체인(단계 3.3)을 사용하여 검증했습니다. TTL 마우스를 사용하여 제시 소프트웨어를 진행시킨 경우 검증된 범위는 <20 ms이며, 수동 트리거링(운용자가 원하는 시작 시간에 맞춰 일반 마우스를 클릭함)을 사용한 경우 검증된 범위는 10–150 ms입니다. 반응 분석에는 소프트웨어 보고 트리거(채널 2)가 아닌 검증된 시작 시점(채널 3)을 사용하므로, 트리거 방식과 관계없이 이 범위는 반응 정량화에 영향을 주지 않습니다. 이러한 주파수 증가는 자유롭게 헤엄치는 동물에서 관찰되는 장애물 회피 행동의 전기생리학적 상관물이며, 이 반응의 존재는 표본의 생존력과 하단 수정체 눈과 투사 화면 간의 정확한 광학 정렬을 모두 확인시켜 줍니다.
페이스메이커 반응의 크기는 연속적인 페이스메이커 이벤트 사이의 신호 간격의 역수로 계산되는 순간 신호 주파수를 사용하여 평가합니다. 이 접근 방식은 주파수 값을 설정하기 위해 최소 두 개의 연속적인 페이스메이커 신호가 필요하며, 이를 통해 단일 고립 신호로 인한 위양성 반응 검출을 내재적으로 방지할 수 있습니다.
이동하는 바 자극의 대비는 유발 반응의 크기를 결정합니다. Bielecki 등(2023)14의 연구에서는 1 f-stop 간격으로 세 가지 대비 수준(c = 0.20, 0.40, 0.80)이 사용되었습니다. 이러한 특정 대비 값들은 전체 프로토콜 소요 시간을 약 1 h의 유효 기록 창 이내로 유지하기 위해 선택되었습니다. 하단 렌즈 눈의 대비 감도 한계나 기타 특정 시각 반응 특성을 조사하는 연구자들은 이러한 값을 규정대로 채택하기보다 자신의 실험 목적에 적합한 대비 수준을 선택해야 합니다.
최적화되지 않은 기록 및 실패 모드
실제로 순화 생존력 기준(단계 6.1.6)을 충족하는 표본의 약 90%(10개 중 9개)가 안정적인 자발적 활동과 측정 가능한 시각 유발 반응을 나타내며, 이 비율은 실험자의 숙련도에 크게 좌우됩니다. 나머지 표본이 실패하는 가장 일반적인 원인은 다음과 같습니다. 가장 흔한 실패 모드는 기록 세션 중에 전극 밀봉이 점진적으로 소실되는 것입니다. 이는 전극 팁과 신경 말단 사이의 전기적 접촉이 악화됨을 반영하며, 페이스메이커 신호 진폭과 배경 소음 수준이 모두 점차 감소하는 형태로 나타납니다(그림 5A). 이러한 양상이 관찰되면, 흡입을 해제하고 전극 팁을 절단된 줄기 표면 위에서 약간 재배치한 후 다시 흡입을 적용해야 합니다. 신호 진폭이 회복되지 않으면 자발적 페이스메이커 활동을 확인하여 표본의 생존력을 평가해야 합니다. 분리 후 1 h 이상 경과한 표본에서 재부착 시도 후에도 신호가 완전히 나타나지 않는다면, 이는 전극 결함보다는 표본의 변질을 반영할 가능성이 높으므로 새로운 표본을 사용해야 합니다.
두 번째 실패 모드는 안정적인 자발적 페이스메이커 활동에도 불구하고 시각 유발 반응이 나타나지 않는 경우입니다. 이 경우, 표본이 반응하지 않는다고 결론 내리기 전에 광학 구성을 재평가해야 합니다. 가장 흔한 원인은 투사 스크린에 대한 하단 렌즈 안구의 정렬 불량과 과도한 복사 조도로 인한 광수용체 포화입니다. 단계 4.1.5에서 설명한 생물학적 교정 절차를 반복해야 하며, 필요한 경우 중성 밀도 필터의 감쇠를 높여야 합니다. 또한 이동하는 바 자극이 움직이는 동안 시야 내에 유지되는지 확인해야 합니다. 자극이 시야 밖으로 벗어나면 light-OFF 반응을 유발하여 기록에 가짜 페이스메이커 활동이 도입될 수 있기 때문입니다.
세 번째 패턴인 페이스메이커 신호를 가리는 높은 배경 소음은 대부분 접지 문제나 전원 간섭을 반영합니다. 단계 3.2.1에서 설명한 스타 접지 구성을 확인하고, 50/60 Hz 노치 필터가 작동 중인지 확인해야 합니다.
보충 파일 1: Arduino 스케치. 포토다이오드 기반의 자극 시작 감지를 구현합니다. Arduino Uno가 포토다이오드를 샘플링하여 프레젠테이션 디스플레이(단계 1.4.2)의 흑백 표시 사각형을 1 kHz로 모니터링하고, 임계값 비교를 통해 원시 아날로그 신호를 깨끗한 디지털 TTL 펄스로 변환하며, 이 펄스를 검증된 자극 타이밍 신호(채널 3, 단계 6.2.1)로 출력합니다.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 2: 대표 자극 파일. 이동 막대 시각 자극을 단일 연속 객체 애니메이션으로 구현하고 흑백 타이밍 검증 표시 사각형(단계 1.4)을 포함한 프레젠테이션 소프트웨어(Keynote) 파일 예시입니다. 직접 자극 시퀀스를 설계하는 독자는 각 자극 시작 전 적절한 조절 기간 동안 디스플레이가 안정적으로 유지되도록 해야 합니다. 포토다이오드/Arduino 피드백 루프(단계 3.3)를 통해 사용된 특정 프레젠테이션 소프트웨어나 슬라이드 디자인에 관계없이 실제 자극 타이밍을 검증합니다.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 3: LabVIEW 가상 계측기(VI). NI USB-6343 DAQ를 두 개의 아날로그 입력 채널 — AI0(증폭기에서 나오는 전기생리학적 신호) 및 AI1(Arduino로 검증된 자극 시작 TTL, 포토다이오드 피드백 신호) — 과, 프로그램된 자극 시간에 TTL 마우스로 TTL 펄스를 전달하여 프레젠테이션 소프트웨어 슬라이드를 넘기는 하나의 아날로그 출력 채널 AO0로 구성합니다. 결과물인 .txt 출력 파일에는 전기생리학적 신호(AI0), AO0 트리거 명령의 LabVIEW 기록 타임스탬프(재획득 신호가 아닌 소프트웨어 기록), 그리고 Arduino로 검증된 TTL(AI1)의 세 개 열이 기록됩니다.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 1: SAS 입력 파일 형식. 통계 분석을 위해 SAS에 업로드하는 스프레드시트(단계 7.2.1)의 열 정의 및 작업 예시입니다. 대표 기록에서 얻은 4개의 연속적인 페이스메이커 신호 타임스탬프를 통해 주파수 계산에 사용되는 스파이크 간격(Intval) 및 중간 지점 타임스탬프(MidTime)의 도출 과정을 보여줍니다. 마지막으로 나열된 이벤트는 간격을 완성할 후속 타임스탬프가 없으므로 Intval/MidTime 값이 없습니다.이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
이 프로토콜의 여러 단계는 신뢰할 수 있는 기록을 얻는 데 매우 중요합니다. 가장 결정적인 단계는 흡입 전극(suction electrode)의 제작 및 준비입니다. 표준 시각 유발 페이스메이커 기록에는 신호 대 잡음비를 최적화하는 전극이라면 무엇이든 사용 가능하지만, 준비물이 전기적 무조건 자극 전달에 사용되는 경우에는 약 1 MΩ의 부착 저항이 특히 중요합니다. 이는 전달된 전류를 계산하는 데 필요하기 때문입니다14. 기록 목적으로만 사용하는 경우에는 특정 저항 값보다는 신호 품질이 주요 기준이 됩니다.
기록을 시작하기 전(단계 4.1.5)에 광학 시스템의 생물학적 보정을 수행하는 것 또한 매우 중요합니다. 프로젝터 출력, 렌즈 구성 및 스크린 반사율이 서로 상호작용하여 하단 렌즈 안구의 유효 조사량을 결정하기 때문에, 보편적으로 적용 가능한 조사량 값을 지정할 수 없습니다. 생물학적 보정(최대 대비 자극에 대한 페이스메이커 주파수 응답을 광수용체 동적 범위의 기준으로 사용)은 적절한 자극 강도를 설정하기 위한 자가 검증 가능하며 하드웨어 독립적인 방법을 제공합니다. 과도한 조사량으로 인한 광수용체 포화는 시각 유발 페이스메이커 응답을 소멸시켜 반응이 없는 표본으로 오인될 수 있으므로, 이 단계를 생략해서는 안 됩니다.
분리 및 이동 전 과정 동안 rhopalium이 계속 잠겨 있도록 유지하는 것이 매우 중요합니다. rhopalial 신경계는 건조에 매우 민감하며, 아주 짧은 시간 동안 공기에 노출되는 것만으로도 시료가 가역 불가능하게 손상될 수 있습니다. 모든 이동 단계는 해수가 있는 상태에서 수행해야 하며, rhopalium을 넣기 전에 기록 챔버를 0.20 µm 필터링된 배양 탱크 해수로 채워야 합니다.
마지막으로, 절단된 줄기 표면에 전극을 배치하는 과정에는 인내심이 필요합니다. 표피 줄기 신경 말단이 항상 시각적으로 식별 가능한 것은 아니므로, 오실로스코프에 자발적인 페이스메이커 신호가 나타나는 것을 통해 정확한 배치를 확인해야 합니다.
기록 실패의 가장 흔한 원인은 세션 중 전극 씰(electrode seal)의 소실입니다. 이러한 위험을 최소화하기 위해 모든 프로토콜은 rhopalium 분리 후 1시간 이내에 완료해야 합니다. 여기서 권장하는 1시간 제한은 보수적인 실무적 선택이며, 이는 동물 본체와 분리된 신경 표본이 페이스메이커 활동이 지속되더라도 무기한으로 온전한 생리적 기능을 완전히 대변한다고 가정할 수 없다는 일반적인 기대를 반영한 것입니다. 분리된 rhopalia는 검출 가능한 페이스메이커 신호를 생성한다는 의미에서 본 프로토콜에서 사용된 기록 창보다 훨씬 긴 시간, 분리 후 약 5 h까지 생존 가능합니다. 그러나 이 창의 후반부에 기록된 반응이 온전한 표본을 완전히 대변하는지 여부는 체계적으로 규명되지 않았으므로, 1 h 제한은 정밀하게 정의된 임계값이라기보다 보수적인 완충 시간으로 사용됩니다. 전극 씰의 점진적인 소실은 별도로 쉽게 식별 가능한 기술적 실패 모드이며 단일 기록 세션 내에서 신호 소실의 가장 흔한 원인이지만(아래 참조), 이것이 시간이 경과함에 따라 반응성에서 나타나는 더 미묘한 변화에 표본 상태가 기여할 가능성을 배제하는 것은 아닙니다. 기록 중 씰 소실이 발생하면 흡입을 해제하고 전극을 절단된 stalk 표면에 다시 배치한 후 흡입을 다시 적용할 수 있습니다. 하지만 표본이 분리된 지 1시간이 넘었다면, 기능이 저하되는 표본의 문제를 해결하는 데 시간을 투자하기보다 새로운 표본을 준비하는 것이 바람직합니다.
필터 설정은 고정된 파라미터가 아니라 시작점으로 취급해야 합니다. 본 프로토콜에 명시된 밴드패스 필터 값(하이패스 1 Hz, 로우패스 50 Hz, 50/60 Hz 노치)은 저자들의 기록 환경에서 신호 대 잡음비를 최적화한 값입니다. 전기적 간섭 수준이 다르거나 다른 앰프 모델을 사용하는 실험실에서는 매 세션 시작 시 오실로스코프 디스플레이로 신호를 모니터링하면서 앰프 컨트롤을 통해 이러한 설정을 경험적으로 조정해야 할 수 있습니다.
전극 부착 후 자발적인 페이스메이커 활동이 나타나지 않는 경우, 전극의 문제를 해결하기 전에 표본의 상태를 먼저 평가해야 합니다. 건강한 분리된 rhopalium은 전극 부착 후 수 분 이내에 0.5–1 Hz의 자발적인 페이스메이커 신호를 보입니다. 자발적 활동의 부재는 전극의 결함보다는 분리 또는 이송 과정 중의 표본 손상을 반영하는 경우가 가장 많습니다. 반대로, 자발적 활동은 관찰되지만 시각 유발 반응이 나타나지 않는 경우에는 표본이 무반응이라고 결론 내리기 전에 광학 보정을 다시 수행해야 합니다.
이 프로토콜을 다른 하드웨어에 적용하려는 실험실의 경우, 단계 3.3에서 설명한 TTL 마우스 및 Arduino Uno 타이밍 검증 체인을 전기생리학적 트레이스와 동기화되어 획득되는 하드웨어 수준의 소프트웨어 독립적 자극 윈도우 기록을 제공하는 모든 시스템으로 대체할 수 있습니다. 여기에서 설명한 구체적인 구현 방식은 PC의 LabVIEW 획득 환경과 별도의 컴퓨터에 있는 프레젠테이션 소프트웨어를 연결하기 위해 개발되었으며, 이는 일반적인 크로스 플랫폼 통합 문제에 대한 실질적인 공학적 해결책을 반영합니다. 소프트웨어 트리거만으로는 정밀한 자극-반응 타이밍 분석에 불충분하다는 기본 원칙은 사용되는 특정 하드웨어 플랫폼과 관계없이 동일하게 적용됩니다.
분리된 rhopalium 표본의 주요 한계는 단일 rhopalium만을 독립적으로 기록한다는 점입니다. 온전한 동물 체내에서 4개의 rhopalia는 ring nerve15를 통해 연결되어 있으며, 그 출력 신호들이 통합되어 조정된 수영 행동을 만들어냅니다. 이러한 표본 제작 방식으로는 rhopalia 간의 통신을 관찰할 수 없습니다. 그러나 단일 rhopalial 신경계 내의 시각 정보 처리 과정을 조사하려는 목적에서는 이러한 분리가 단점이 아니라 오히려 장점이 됩니다. 이는 다른 rhopalia로부터 오는 입력 신호의 혼란스러운 영향을 제거하여, 단일 RNS의 시각적 반응 특성을 온전하게 규명할 수 있게 해줍니다.
rhopalium을 분리함으로써 rhopalium 자체 이외의 다중 모드 감각 맥락 또한 배제됩니다. 표면에서 해부학적으로 기술된 추정 화학 수용체17는 페이스메이커 반응과 기능적으로 연결되지 않았으므로, 해당 신호는 비시각적 입력에 의해 거의 복잡해지지 않은 시각 처리의 결과물로 해석하는 것이 타당합니다. 더 근본적인 한계는 세포 외 stalk nerve 기록이 통합된 trmOC 운동 출력 신호만을 포착한다는 점입니다. 시각 처리에 대한 개별 subOC의 기여도는 전기생리학적으로 분해할 수 없으며, 이를 위해서는 공간적으로 분해된 in vivo 이미징 접근 방식이 필요합니다. 따라서 여기서 설명한 전기생리학적 방법은 RNS 내의 중간 처리 단계가 아니라, 최종적으로 통합된 운동 명령을 측정하는 것입니다.
이는 중요한 실질적 결과로 이어집니다. 즉, 분리된 rhopalium 전기생리학 프로토콜은 단독 방법이 아닙니다. 어떤 시각적 자극이 bell 수축 빈도를 변화시키는 행동을 유도하는지 확립하기 위해, 분리된 rhopalium 실험을 설계하기 전 반드시 전신 동물 행동 분석을 수행해야 합니다. 페이스메이커 신호 빈도의 변화를 일으키지 않는 행동은 이 접근 방식으로 평가할 수 없습니다. 전기생리학적 판독값은 구체적으로 수영 운동 출력의 측정치이며, 선택한 자극이 이 출력을 유도하는지 확인하려면 실험 설계가 반드시 사전 행동 특성 분석에 근거해야 합니다.
기록의 성공 여부와 신호 분류는 모두 실험자의 숙련도에 따라 달라집니다. 숙련된 실험자가 수행할 경우, 순응 생존 기준(단계 6.1.6)을 충족하는 표본의 약 90%에서 안정적인 자발적 활동과 측정 가능한 시각 유발 반응이 나타납니다. 학습 초기 단계에서는 이 비율이 더 낮아질 것으로 예상됩니다. 본 연구에서 페이스메이커와 활동 전위 유사 파형 간의 신호 판별(단계 7.1.2)은 한 명의 숙련된 실험자가 수행하였습니다. 공식적인 평가자 간 신뢰도 검사는 여러 명의 독립적인 관찰자가 필요하므로, 평가자 간 일치도 통계량을 산출하는 것은 불가능했습니다. 대신, 모호한 파형을 동일한 기록 내에서 정체가 확인된 신호(통상적으로 최대 대비 유발 반응)와 비교함으로써 내부 일관성을 유지하였습니다.
본 프로토콜에서 선택한 하드웨어 및 소프트웨어—개조된 프로젝터 렌즈, 맞춤형 TTL 마우스, Arduino 타이밍 체인, LabVIEW/Igor Pro/SAS—는 방법론적인 필수 요구 사항이라기보다 저자들의 실험실에서 이미 사용 가능했던 장비와 전문 지식을 반영한 것입니다. 표준 구성으로는 설정 요구 사항을 충족하지 못했기 때문에 프로젝터 렌즈를 개조하였습니다. TTL 마우스는 자극 컴퓨터와 데이터 획득 컴퓨터를 연결하는 역할을 합니다. LabVIEW가 마우스로 TTL 펄스를 보내고 송신 시간을 기록하며(Channel 2), 마우스 클릭이 USB를 통해 자극 생성을 트리거합니다. 기록된 트리거와 실제 화면 변경 사이의 지연 시간이 가변적이기 때문에, 독립적인 포토다이오드/Arduino 체인이 실제 자극 시작 시점을 확인하고 두 번째 TTL을 DAQ로 다시 보냅니다(Channel 3). 마우스를 대체할 수 있는 상용 제품이 있을 수 있으나, 저자들은 알지 못합니다. 이러한 하드웨어 중 어느 것도 전문적인 제작 기술이나 높은 비용을 요구하지 않으며, 대체 획득 시스템은 1 kHz 동기화 다채널 샘플링 요구 사항과 그에 수반되는 전자 공학 또는 프로그래밍 전문 지식만 충족하면 됩니다. 단, 한 가지 예외로, 적절한 아날로그 증폭기를 맞춤 제작하려면 독자가 갖추고 있다고 가정하지 않는 저잡음 회로 설계 전문 지식이 필요합니다.
T. cystophora ~와 같이 유전적 조작이 가능한 시스템의 시각적 정교함을 결합하여 초파리 그리고 수치적으로 단순한 시스템과 같이 회로 수준의 다루기 쉬운 특성을 가진 제브라피시(zebrafish)와 C. elegans감각기관(rhopalium) 신경계는 약 1,0개의 뉴런으로 구성되어 있으며, 이는 약 200,0개 수준인 다음의 것과 대조됩니다. 초파리 뇌1 그리고 전체에서 302개(명)의 C. elegans 신경계2이 시스템의 추가적인 장점은 다음과 같은 감각 계층 구조에 있습니다. T. cystophora 기계적 수용(연합 학습에 기능적으로 관여함)을 포함하여 여러 감각 양식을 보유하고 있으며14) 및 추정 화학수용(해부학적으로 기술되었으나 기능적으로 입증되지 않음17), 시각 외에도 다른 감각들이 존재한다. 그러나 분리된 로팔리움(rhopalium) 표본 내에서는 본 프로토콜에서 평가한 페이스메이커 반응을 유도하는 것이 기능적으로 시각뿐임이 입증되었으며, 이를 통해 해당 신호를 여러 개의 동시다발적인 활성 감각이 행동 반응을 공동으로 형성할 때 발생하는 해석상의 복잡함 없이, 시각 처리의 비교적 혼란 없는 읽기 값으로 해석할 수 있다. 시각 자극은 공간, 시간 및 대비 면에서 정밀하게 지정될 수 있으며, 페이스메이커 신호는 전신 동물 행동과 관련된, 시각 주도적 운동 출력의 정량적 대리 지표로 사용될 수 있다.14.
시각 전기생리학 외에도, 격리된 rhopalium 표본은 욕조 적용 신경전달물질 및 신경조절물질 분석을 통한 RNS의 약리학적 연구에 성공적으로 적용되어 페이스메이커 출력을 조절하는 전달체 시스템의 식별을 가능하게 하였습니다24. 이 표본은 칼슘 및 전압 이미징 방식에도 적합합니다. 세포 투과성 칼슘 지시약을 사용한 저자 연구실의 예비 미발표 연구는 이 표본에서 칼슘 이미징의 가능성을 뒷받침하며, 전압 이미징은 아직 테스트되지 않은 상태입니다. 이러한 접근 방식은 현재 가동 모델로 남아 있는 subOC–trmOC 네트워크 구조 자체를 직접 테스트할 수 있으며, 시각 자극 중 subOC와 trmOC의 활동을 독립적으로 조사하는 데 필요한 공간 분해능을 제공할 수 있는데, 이는 세포 외 기록만으로는 제공할 수 없는 기능입니다. 종합적으로, 이러한 상호 보완적인 접근 방식은 T. cystophora 격리 rhopalium을 정의된 제한적 복잡성을 가진 신경계에서 시각 처리 및 센서-운동 통합의 시스템 수준 연구를 위한 매우 다루기 쉬운 표본으로 자리매김하게 합니다.
공개 사항
저자들은 이해관계의 충돌이 없음을 밝힙니다.
감사의 글
저자들은 rhopalium 이미지(그림 1B)를 사용할 수 있게 해준 Dan-eric Nilsson, 기술적 지원을 제공한 Mathias Hoppe, Ingo Klein, Olaf Wendt, Holger Voigt(Kiel University), 그리고 배양 유지에 도움을 준 Sensory Biology Group(University of Copenhagen) 구성원들에게 감사를 표합니다. 본 연구는 Deutsche Forschungsgemeinschaft (DFG, German Research Foundation) – 프로젝트 ID 567357102 (J.B.)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 35 mm 페트리 접시 | Nunc | 153066 | 적절한 모든 동등한 페트리 접시 사용 가능 |
| Arduino Uno | 아두이노 | — | 자극 타이밍 검증을 위해 포토다이오드 신호를 TTL로 변환함; 1 kHz 재생률 |
| 양볼록 렌즈 f = 30 mm | Linos | G063-02-0 | 제조사 렌즈를 대체하며, 기록 챔버의 투사 스크린 벽면에 이미지를 초점 조정함 |
| 붕규산 유리 모세관, 내경 1.16 mm × 외경 2.0 mm × 80 mm L | 과학 제품 | GB20-8P | 흡입 전극 제작을 위해 |
| 일회용 전사 피펫 | Sarstedt | 86.1171 | 동물 이송을 위해 팁 끝을 약 8mm opening으로 절단함 |
| 전극 홀더 PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | 흡입 포트가 포함된 BNC 타입 홀더; ~0.25 mm 은(Ag) 와이어 제공 |
| EXT-10-2F 세포외 증폭기 | NPI 전자 | — | 차동 AC 결합 증폭기; 헤드스테이지 ×10, 메인 증폭기 ×10, 총 이득 ×10; 통합 밴드패스 필터: 하이패스 1 Hz, 로우패스 50 Hz; 50/60 Hz 노치 필터 애드온 활성화; 헤드스테이지 암 포함 |
| 혈구계수기 커버글라스 20 mm × 26 mm | Carl Roth | L 189 | 음성 부력으로 인해 커버슬립 가장자리에 안착하며, 표준 커버슬립보다 내구성이 뛰어납니다. |
| Igor Pro 6.37 | WaveMetrics Inc. | 버전 6.37 | 미국 오리건주 레이크오스위고; 페이스메이커 신호 분석용 |
| LabVIEW 2016 | National Instruments | 2016년 버전 | 데이터 획득 및 자극 제어 소프트웨어; 보충 자료로 제공되는 VI |
| 루어락 주사기 | — | — | 일반용; 적절한 표준 실험실용 루어락(Luer-lock) 시린지 사용 가능 |
| Microforge MF-2 | Narishige | — | 전극 팁 연마를 위해 (옵션 A) |
| 마이크로매니퓰레이터 MM3 | Mä제공해주신 텍스트가 없어 번역을 진행할 수 없습니다. 번역할 원문 텍스트를 입력해 주시기 바랍니다.ä사용자 베츨라어(Wetzlar) | 0-42-101-0 (우측) / 0-42-102-00 (좌측) | 수동 3축 조절기; 2개 필요 (피펫 및 기록 전극 고정용) |
| 마이크로피펫 풀러, Flaming/Brown P-10 | Sutter Instrument | P-100 | 인출 프로그램: 라인 1×1: 가열 535, 당기기 0, 속도 12, 시간 20, 압력 60, 램프 540; 라인 2–4 × 3: 가열 532, 당기 0, 속도 12, 시간 10 |
| Neuromatic 플러그인 v2.00 | — | 버전 2.0 | Igor Pro를 이용한 페이스메이커 신호 판별 및 타임스탬프 추출 |
| 중성 밀도 필터 | Thorlabs | NE10A | 10% 투과율; 생물학적 교정(단계 4.1)을 통해 감쇠 정도를 실험적으로 검증해야 함 |
| NI USB-6343 DAQ | National Instruments | 781438-01 | 16비트 다기능 DAQ; 전기생리학적 획득, TTL 마우스 자극 전달, Arduino TTL 입력; 샘플링 속도 1 kHz |
| Optoma ML750 DLP 프로젝터 | 옵토마 | ML750 | 제조사 렌즈 시스템을 제거하고, 초점 거리 f = 30 mm의 단일 양볼록 렌즈로 대체함 |
| 오실로스코프 DS102E | Rigol | DS102E | 전극 배치 및 필터 최적화 과정 중 실시간 신호 모니터링을 위해 |
| 파스퇴르 피펫 150 mm | Carl Roth | 4518 | 로팔리움(rhopalium) 이식을 위해 |
| 포토다이오드 BRW21 | OSRAM | BRW21 | 실리콘 포토다이오드; 컴퓨터 디스플레이의 흑백 표시 사각형을 모니터링함 |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | 미국 노스캐롤라이나주 캐리; 페이스메이커 반응의 통계 분석; 코드는 doi: 10.17632/csgymw8kjk.1에서 이용 가능 |
| 실리콘 튜빙 | Erich Eydam KG | 9205000 | 전극 홀더와 주사기 사이의 흡입 연결용 |
| Syringe filter Filtropur S, 0.20 µm 폴리에테르설폰 | Sarstedt | 83.1826.001 | 기록 챔버 및 준비 접시용 배양 탱크 해수 여과를 위해 |
| 반나스 가위 | World Precision Instruments | 500086 | 0.025 mm × 0.015 mm 칼날; 평형포(rhopalial stalk) 절단용 |
| WTE 변이 3185 | 보조자 | — | 항온수조 온도 조절기 |
참고문헌
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.