통합 생물정보학 및 실험 분석을 통해 LINC01871이 cyclin-dependent kinase 4/6 억제제 민감도의 잠재적 예측 인자임을 확인하였으며, LINC01871의 과발현이 유방암 증식을 억제하고 NF-κB 신호 전달 감소와 관련이 있음을 보여주었습니다.
이 논문에서
요약
초록
유방암은 여성에게서 가장 빈번하게 진단되는 악성 종양이며, cyclin-dependent kinase 4 및 6 (CDK4/6) 억제제에 대한 내성은 장기적인 치료 효능을 제한합니다. 본 연구는 CDK4/6 억제제에 대한 예측 감수성과 연관된 긴 비암호화 RNA (lncRNA)를 식별하고, 유방암에서 이들의 생물학적 기능을 조사하는 것을 목표로 하였습니다. The Cancer Genome Atlas (TCGA)의 전사체 데이터와 Genomics of Drug Sensitivity in Cancer 2 (GDSC2) 데이터베이스의 약물 감수성 데이터를 통합하였으며, oncoPredict 알고리즘을 사용하여 약물 감수성을 예측하였습니다. 차등 발현 분석, 가중 유전자 공발현 네트워크 분석, 예후 분석 및 머신러닝을 통해 후보 lncRNA를 식별하였습니다. 이후 in vitro 및 in vivo 실험을 통해 LINC01871의 생물학적 기능을 평가하였습니다. ribociclib 및 palbociclib에 대한 예측 감수성과 연관된 62개의 lncRNA가 식별되었으며, 이 중 6개의 핵심 lncRNA가 선정되었습니다. LINC01871은 예측된 약물 감수성에 대해 가장 높은 판별 성능을 보였습니다. LINC01871의 과발현은 유방암 세포의 ribociclib 및 palbociclib 감수성 증가, 세포 증식 억제, 세포 사멸 촉진 및 nuclear factor kappa B (NF-κB) 신호 전달 억제와 연관이 있었습니다. 단일 세포 전사체 분석 결과, T 세포와 자연 살해 (NK) 세포에서 LINC01871의 높은 발현이 확인되었으며, 전사체 기반 면역 침윤 분석에서는 LINC01871의 높은 발현이 면역 침윤 증가와 연관이 있음을 보여주었습니다. 이러한 결과는 LINC01871이 CDK4/6 억제제 감수성의 후보 바이오마커임을 식별하고 유방암에서 이의 종양 억제 효과를 입증합니다. 이의 예측 가치와 치료적 관련성을 검증하기 위해 추가적인 임상 및 기전 연구가 필요합니다.
서론
임상적 관리의 지속적인 발전에도 불구하고, 유방암은 전 세계 여성 암 사망의 주요 원인으로 남아 있습니다1,2. 치료법은 내분비 요법과 화학 요법을 넘어 분자 표적 접근법을 포함하는 방향으로 점차 확대되었습니다3. 이 중 ribociclib, palbociclib 및 abemaciclib과 같은 cyclin-dependent kinase 4 및 6 (CDK4/6) 억제제는 에스트로겐 수용체 및/또는 프로게스테론 수용체 양성 유방암에서 상당한 임상적 이점을 나타냈습니다4,5,6. 그럼에도 불구하고, 장기 치료 시 획득 내성이 동반될 수 있으며, 이는 치료 효과의 지속성을 제한합니다7.
CDK4/6 억제는 주로 Rb–E2F 세포 주기 조절 축을 통해 작용합니다. CDK4/6-cyclin D 활성을 억제하면 retinoblastoma (Rb) 단백질의 인산화가 감소하며, 이에 따라 저인산화된 Rb가 E2F 의존적 전사를 억제하여 결과적으로 G1기 정지를 촉진하고 종양 세포의 증식을 제한합니다8. CDK4/6 억제제 내성에 기여하는 여러 기전이 규명되었으나, 이것들이 치료 반응의 차이를 완전히 설명하지는 못합니다. 이러한 기전에는 phosphatidylinositol 3-kinase/protein kinase B/mammalian target of rapamycin (PI3K/AKT/mTOR) 경로의 비정상적 활성화와 cyclin-CDK 복합체의 발현 증가가 포함됩니다9,10. 특히, PI3K/AKT/mTOR 경로의 구성 요소들은 그 자체로 진행성 질환의 치료 표적이기도 합니다11. 종합적으로, 이러한 관찰 결과들은 CDK4/6 억제제 민감도와 내성을 결정하는 추가적인 분자적 결정 요인들이 여전히 규명되어야 함을 시사합니다. 예측 바이오마커의 임상적 관련성은 HR 양성 전이성 유방암을 위한 최신 바이오마커 기반 전략을 통해 알 수 있습니다. 예를 들어, 순환 종양 DNA (ctDNA)의 연속 분석을 통해 CDK4/6 억제제 기반 치료 중 ESR1 변이의 출현을 감지할 수 있습니다. PADA-1 및 SERENA-6 연구는 이러한 분자적 검출이 CDK4/6 억제를 유지하면서 내분비 요법을 조기에 변경하는 근거가 될 수 있음을 보여주었습니다12,13. 그러나 ESR1 변이는 치료 반응을 결정하는 여러 요인 중 하나일 뿐이며, 모든 민감성 또는 내성 사례를 설명할 수는 없습니다. HR 양성/HER2 음성 전이성 유방암 환자가 CDK4/6 억제제 기반 치료 중 질병이 진행될 때, 이제 경구 선택적 에스트로겐 수용체 분해제, PI3K/AKT 경로 억제제, 항체-약물 접합체(ADC)를 포함한 여러 후속 치료 옵션을 사용할 수 있게 되었으므로 이러한 한계의 임상적 관련성은 더욱 커지고 있습니다. 따라서 차등적인 CDK4/6 억제제 민감도와 관련된 추가 후보 바이오마커를 식별하면, 이러한 치료제의 혜택을 받을 가능성이 높은 환자와 더 조기 치료 조절이 필요한 환자를 구분하는 데 도움이 될 수 있습니다.
긴 비코딩 RNA(lncRNA)는 단백질 코딩 능력이 없으며 수많은 생물학적 과정의 조절에 관여하는 전사체입니다. 여러 lncRNA가 암의 진행 및 치료 반응에 관여하는 것으로 알려져 있습니다. 구강 편평 세포 암종에서 LOC100506114는 전사 인자인 RUNX와의 상호작용 및 그에 따른 하위 유전자 발현 조절을 통해 증식과 이동을 촉진하는 것으로 보고되었습니다14. 유방암의 경우, HISLA는 당분해 증가 및 세포 사멸 저항성 강화와 관련이 있으며15, LINC02568은 ESR1 및 CA12의 조절을 통해 내분비 치료 저항성에 기여합니다16. 암 생물학에서 lncRNA의 관여도가 인정되고 있음에도 불구하고, CDK4/6 억제제 저항성과의 관계는 아직 충분히 규명되지 않았습니다. 본 연구에서는 리보시클립(ribociclib) 및 팔보시클립(palbociclib)에 대한 예측 민감도와 관련된 lncRNA를 식별하기 위해 통합 멀티오믹스 및 머신러닝 전략을 사용하였으며, 이를 통해 LINC01871이 후보군으로 도출되었습니다. 이후 우리는 LINC01871과 두 약제에 대한 민감도 사이의 연관성을 조사하였으며, in vitro 및 in vivo 실험적 접근 방식을 통해 유방암 세포 증식에 미치는 영향을 평가하였습니다.
프로토콜
All procedures involving animals were performed under institutional animal-welfare requirements and received approval from the Animal Ethical and Welfare Committee of Fujian Cancer Hospital & Fujian Medical University Cancer Hospital (Approval No. SQ2021-159-01).
Data acquisition
Bulk transcriptomic profiles were downloaded from TCGA in January 2025 and converted to transcripts per million (TPM) before downstream analysis. Single-cell RNA-sequencing data were obtained from the Gene Expression Omnibus (GEO), using dataset GSE161529.
Drug sensitivity estimation of ribociclib and palbociclib
GDSC2 data were used to train the drug-response prediction model, and TCGA-BRCA transcriptomic profiles were used as the test dataset. Clinical information required for the subgroup analysis was retrieved from the TCGA Pan-Cancer Atlas Clinical with Follow-up dataset. Four clinical variables were considered: ER status (breast_carcinoma_estrogen_receptor_status), PR status (breast_carcinoma_progesterone_receptor_status), HER2 status determined by IHC (lab_proc_her2_neu_immunohistochemistry_receptor_status), and HER2 status determined by FISH (lab_procedure_her2_neu_in_situ_hybrid_outcome_type). A tumor was classified as HR-positive if either ER or PR was annotated as “Positive.” A tumor was classified as HER2-negative when at least one of the HER2 IHC or FISH results was negative and neither test had a positive result. Cases for which HR or HER2 status could not be definitively determined were excluded. Using these criteria, 601 patients were identified as HR-positive/HER2-negative. Among them, 599 had corresponding records in both the Pan-Cancer clinical dataset and the TCGA-BRCA expression matrix and were included in the subgroup analysis. Ribociclib and palbociclib IC₅₀ values were estimated with the oncoPredict R package (version 1.2) using default parameters. Scatter plots generated with ggplot2 were used to display the distribution of predicted IC₅₀ values among patients. Patients within the highest 25% of predicted IC₅₀ values were designated as resistant, whereas those within the lowest 25% were designated as sensitive.
Identification of CDK4/6 inhibitor resistance–related genes
Differential expression between the predicted sensitive and resistant groups was assessed using the limma package, and the resulting gene-expression patterns were displayed as volcano plots with ggplot2. Weighted gene co-expression network analysis (WGCNA) was then conducted with the WGCNA package to identify expression modules associated with resistance to both CDK4/6 inhibitors. Genes shared across the four resulting datasets were identified and illustrated using the VennDiagram package. The intersecting genes were subsequently evaluated by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer packages, with corresponding survival curves generated for visualization. Genes reaching statistical significance in both survival analyses were entered into LASSO regression with the glmnet package to select core prognostic factors. The ability of the selected genes to discriminate predicted drug resistance was then assessed by ROC analysis using pROC, with performance quantified by the area under the ROC curve. AUC values for the different drugs were compared graphically using bar plots generated with ggplot2.
Single-gene analysis of LINC01871
LINC01871 expression was first compared between tumor and normal tissues by differential expression analysis. Its prognostic association across multiple cancer types was subsequently examined by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer R packages. Differences in LINC01871 expression among clinicopathological groups were assessed with the Wilcoxon rank-sum test and displayed as boxplots using ggpubr. For the single-cell RNA-sequencing analysis, data preprocessing and downstream analysis were carried out with Seurat. Inter-batch variation was corrected using Harmony with its default parameter settings. Following batch correction, the resulting cell clusters were represented in a UMAP embedding. Cell identities were then assigned automatically with SingleR using reference transcriptomic profiles.
Functional enrichment analysis
Genes showing differential expression between the high- and low-LINC01871 groups were determined with the limma package. In parallel, Pearson correlation analysis was used to identify mRNAs whose expression levels were correlated with LINC01871 expression. GO and KEGG enrichment analyses were subsequently conducted with clusterProfiler. The resulting enrichment profiles were presented as bar and bubble plots generated using ggplot2.
Immune infiltration analysis
Immune cell infiltration was initially characterized using CIBERSORT with the LM22 signature matrix, which was applied to estimate the relative distribution of 22 immune cell populations. Differences in these estimates between the high- and low-LINC01871 expression groups were visualized using ggpubr. Stromal, immune, and ESTIMATE scores were then calculated for individual samples with the estimate package and displayed as violin plots. In addition, single-sample gene set enrichment analysis (ssGSEA) was performed using the GSVA package to estimate the relative abundance of immune cell populations in each sample. Differences in the resulting immune infiltration estimates between the two LINC01871 expression groups were evaluated and visualized with ggpubr.
Cell culture
MDA-MB-231, MCF-10A, and HEK293T cell lines were used in this study. MDA-MB-231 and HEK293T cells were grown in DMEM containing 10% fetal bovine serum, whereas MCF-10A cells were maintained in medium specifically formulated for this cell line. Cultures were kept at 37°C under humidified conditions with 5% CO₂. To establish LINC01871-overexpressing cells, the LINC01871 overexpression construct and lentiviral packaging plasmids were co-transfected into HEK293T cells for lentiviral production. Virus-containing supernatant was subsequently harvested and used to transduce MDA-MB-231 cells. Transduced cells were selected with 1 μg/mL puromycin. Wild-type control and transduced cells were both subjected to puromycin treatment, and selection was terminated after 3–4 days once all wild-type control cells had died.
Reverse transcription quantitative polymerase chain reaction (RT-qPCR)
Cellular RNA was isolated using RNAiso Plus reagent, and RNA concentrations were adjusted to equivalent levels before reverse transcription. Complementary DNA (cDNA) was generated with a reverse transcription kit following the manufacturer’s protocol. RT-qPCR amplification began with denaturation at 95°C for 30 s and was followed by 40 cycles consisting of 95°C for 5 s, 60°C for 30 s, and 72°C for 30 s. Transcript abundance was determined by the 2−ΔΔCt method using GAPDH for normalization. Primer sequences used for the analysis are listed in Supplementary Table 1.
Cell proliferation and cytotoxicity assays
For assessment of drug cytotoxicity, 8,000 cells per well were plated in 96-well plates and allowed to grow for 24 h. The culture medium was subsequently exchanged for fresh medium containing the indicated drug concentrations, followed by a further 24 h of incubation. CCK-8 reagent was then applied, and the plates were maintained in the dark for 2 h before absorbance was recorded at 450 nm. These measurements were used to construct drug dose–response curves and determine IC₅₀ values. For proliferation measurements, cells were prepared at a density of 1,000 cells/mL, and 100 μL of the cell suspension was added to each well of a 96-well plate. CCK-8 measurements were performed at 24 h intervals. At each time point, the reagent was added and the plates were incubated in the dark for 2 h before absorbance was measured at 450 nm to assess cell proliferation.
Colony formation assay
For colony formation experiments, 1,000 cells were plated per well in 6-well plates, with three replicates included for each experimental group. Cells were maintained for 1–2 weeks to permit visible colony development. The medium was then discarded, and the cells were fixed in 4% paraformaldehyde, rinsed with PBS, and subsequently stained with 1% crystal violet.
5-Ethynyl-2′-deoxyuridine incorporation assay
Cells from each experimental group were plated in 12-well plates and maintained overnight. The following day, cells were exposed to the EdU working solution for 2 h. After fixation and permeabilization, EdU labeling was carried out, followed by nuclear counterstaining with Hoechst. Fluorescence microscopy was then used to acquire images for evaluation of EdU incorporation.
Western blot
Cells were lysed in RIPA buffer supplemented with protease and phosphatase inhibitors to obtain total protein. Protein concentrations were quantified by BCA assay. Following addition of loading buffer, the protein samples were denatured at 95°C and resolved by SDS–PAGE before transfer to PVDF membranes. The membranes were blocked at room temperature for 1 h and subsequently incubated with the designated primary antibodies at 4°C overnight (Supplementary Table 2). After three TBST washes, the corresponding secondary antibodies were applied for 45 min at room temperature. Protein signals were detected by enhanced chemiluminescence (ECL) and subsequently imaged. GAPDH or β-actin served as the loading control.
Flow cytometry analysis
For cell-cycle assessment, cells were collected by trypsinization, rinsed with PBS, and fixed overnight in 70% ethanol at 4°C. The fixed cells were washed again with PBS and incubated with a cell-cycle detection reagent before flow cytometric measurement. For apoptosis assessment, harvested cells were washed with PBS and suspended in binding buffer. The cell suspension was stained with Annexin V and propidium iodide (PI) for 10–15 min at room temperature under light-protected conditions. Flow cytometry was subsequently performed to quantify the apoptotic cell populations.
Xenograft mouse models
In vivo experiments were conducted using five-week-old NOD/ShiLtJGpt immunodeficient mice. Animals were maintained in a specific pathogen-free (SPF) facility on a 12 h light/dark schedule, with no more than four animals housed in each cage. Before tumor-cell implantation, mice were anesthetized by inhaled isoflurane. Following confirmation of adequate anesthesia, the animals were allocated to two groups and received abdominal fat-pad injections of either control or LINC01871-overexpressing MDA-MB-231 cells. Tumor growth was designated as the primary outcome. Tumor dimensions were recorded with calipers at intervals of 3–4 days. Tumor volume was determined as V = ( L x W2 ) / 2', where L denotes the longest tumor diameter and W the shortest, with volume expressed in mm3. The study was terminated before any tumor reached a maximum diameter of 1.5 cm or a volume of 2,000 mm3. At the experimental endpoint, mice were anesthetized with isoflurane, and cervical dislocation was performed only after deep anesthesia had been confirmed. Animals were euthanized before the scheduled endpoint if substantial signs of distress were observed, including lethargy, weight loss, hunched posture, or inability to eat or drink. At study completion, tumors were removed and subsequently weighed and imaged.
Statistical analysis
Data analyses were conducted using GraphPad Prism version 10.3.1 and R version 4.3.1. The statistical method applied to each comparison was selected according to the study design and distribution of the corresponding data. As appropriate, analyses included Student’s t-test, paired t-test, Wilcoxon signed-rank test, Mann–Whitney U test, one-way or two-way analysis of variance (ANOVA), Kaplan–Meier analysis with the log-rank test, univariate Cox proportional hazards regression, and Pearson or Spearman correlation analysis. Statistical significance was defined using a two-sided P value <0.05.
결과
LINC01871은 Ribociclib 및 Palbociclib 민감도와 밀접한 관련이 있다
GDSC2 데이터를 사용하여 TCGA-BRCA 코호트 환자들의 ribociclib 및 palbociclib에 대한 예측 IC50 값을 추정하고 오름차순으로 정렬하였다. 예측 IC50 값이 하위 25%에 해당하는 환자들은 민감군으로, 상위 25%에 해당하는 환자들은 내성군으로 분류하였다 (그림 1A,B). 이들 군을 비교하여 각 약물에 대해 차등 발현되는 lncRNA를 식별하였다 (부록 그림 1A,B). WGCNA를 통해 ribociclib 및 palbociclib의 예측 민감도와 유의미하게 연관된 lncRNA 모듈을 추가로 식별하였다 (그림 1C,D; 부록 그림 1C,D). 결과로 얻은 4가지 유전자 세트를 통합하여 62개의 공통 lncRNA를 도출하였으며 (그림 1E), 이 중 18개는 단변량 Cox 회귀 분석 및 Kaplan–Meier 생존 분석 모두에서 예후와 유의미한 연관성을 보였다. 이후 LASSO 회귀 분석을 적용하여 이 세트를 더욱 정밀하게 선별한 결과, ANKRD44-AS1, AC083837.1, AC242842.1, DBH-AS1, LINC00926, LINC01871의 6가지 예후 관련 lncRNA가 선정되었다 (그림 1F,G; 부록 그림 2A). 이들의 예측 약물 내성 판별 능력을 AUC 분석을 통해 비교하였다. 6가지 후보 중 LINC01871이 ribociclib 및 palbociclib 전체에서 가장 높은 평균 AUC를 나타내었다 (그림 1H–J; 부록 그림 2B,C).
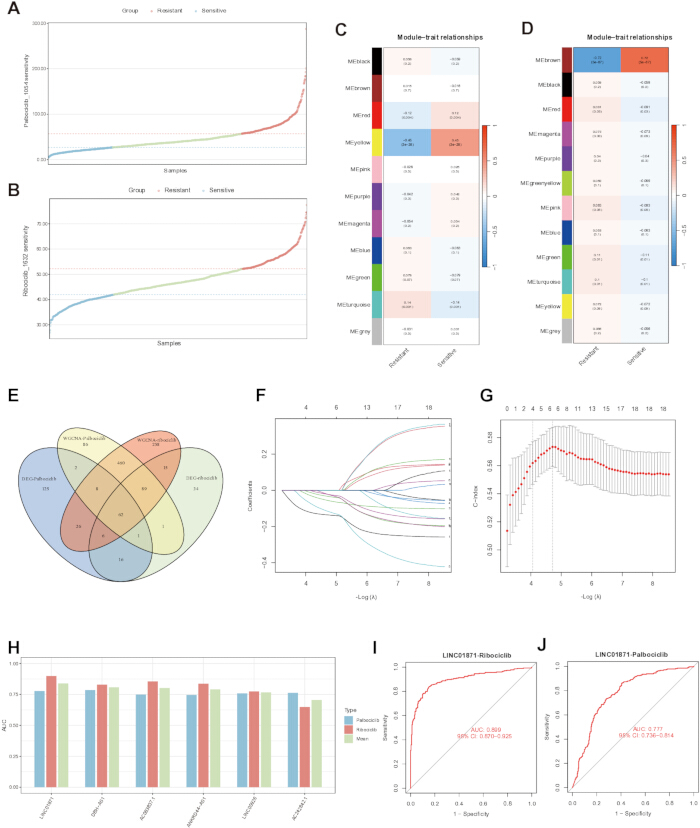
그림 1. ribociclib 및 palbociclib에 대한 예측 감수성과 관련된 long non-coding RNA의 식별.
(A,B) Genomics of Drug Sensitivity in Cancer 2 (GDSC2) 데이터셋을 사용하여 추정한 The Cancer Genome Atlas 유방 침윤성 암(TCGA-BRCA) 코호트 내 palbociclib (A) 및 ribociclib (B)의 예측 반수 최대 억제 농도 (IC50) 값 분포. (C,D) palbociclib (C) 및 ribociclib (D)에 대한 모듈-형질 연관성을 보여주는 가중 유전자 공발현 네트워크 분석 (WGCNA). (E) 두 약물과 관련된 차별 발현 유전자 세트와 WGCNA 유래 유전자 세트 간에 공유되는 유전자를 나타내는 벤 다이어그램. (F,G) 예후 관련 long non-coding RNA (lncRNA) 선별을 위한 LASSO (Least absolute shrinkage and selection operator) 회귀 분석. (H) LASSO로 선정된 6개 lncRNA의 ROC (receiver operating characteristic) 곡선 하 면적 (AUC) 값 비교. (I,J) ribociclib (I) 및 palbociclib (J)에 대한 예측 감수성을 판별하는 LINC01871의 능력을 평가한 ROC 곡선. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
LINC01871의 과발현은 유방암 세포의 약물 민감성을 향상시켰다
TCGA-BRCA 코호트 내에서, LINC01871의 발현이 높을수록 ribociclib과 palbociclib 모두에 대해 예측된 IC50 값이 더 낮게 나타났다(그림 2A,B). 이러한 관계는 임상적으로 유의미한 HR-양성/HER2-음성 하위 그룹(n = 599)에서 추가로 검토되었다. 이 하위 그룹에서, 두 약물 모두에 대한 예측 IC50 값은 LINC01871 발현이 낮은 환자들보다 발현이 높은 환자들에서 유의미하게 더 낮았다. 또한, LINC01871 발현은 ribociclib과 palbociclib의 예측 IC50 값과 역상관 관계를 보였다(부록 그림 3A,B). 이러한 계산적 연관성은 이후 실험적으로 검증되었다. 세포독성 분석 결과, LINC01871이 과발현된 유방암 세포는 벡터-대조군 세포보다 ribociclib과 palbociclib 모두에 대해 더 큰 민감성을 나타냈다(그림 2C,D). 유세포 분석 결과, LINC01871 과발현 후 G1기의 세포 비율은 높아지고 S기의 세포 비율은 낮아졌으며, 이는 G1기 정체의 강화와 일치한다(그림 2E). 콜로니 형성 분석에서 ribociclib 또는 palbociclib의 농도가 증가함에 따라 콜로니 형성이 점진적으로 감소했다(그림 2F,G). 동일한 약물 농도에서 콜로니 형성 능력은 벡터-대조군 세포보다 LINC01871 과발현 세포에서 유의미하게 더 낮았다. Western blot 분석 결과, LINC01871 과발현 세포에서 CDK4, CDK6 및 cyclin D1의 수준이 낮아졌으며, RB 인산화의 감소가 동반된 것을 확인하였다(그림 2H). 이러한 분자적 변화는 LINC01871 과발현 이후 관찰된 더 강력한 G1기 정체와 일치한다.
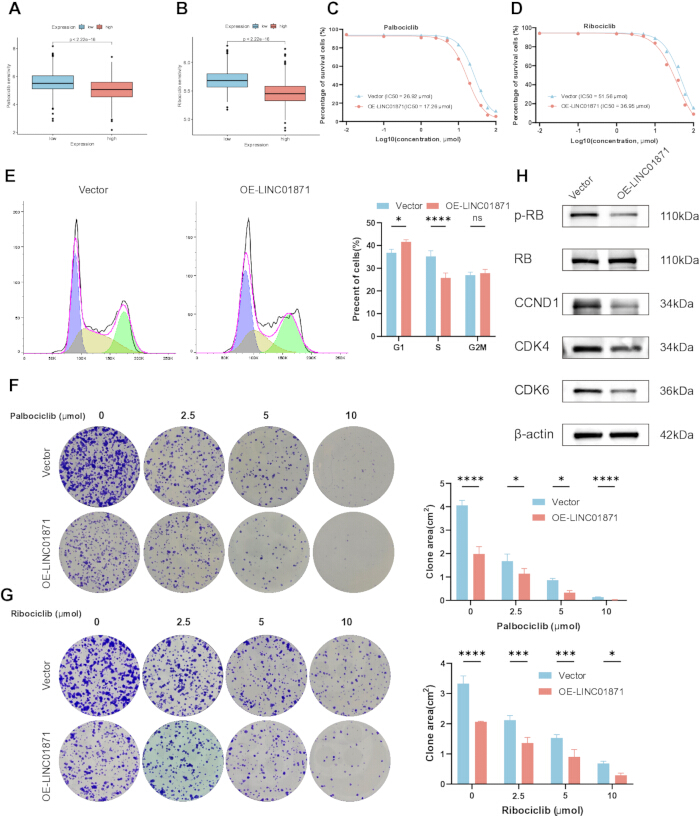
그림 2. 유방암 세포에서 LINC01871 과발현과 사이클린 의존성 인산화효소 4/6 억제제 민감성의 연관성. (A,B) LINC01871 발현 정도(낮음 또는 높음)에 따른 palbociclib (A) 및 ribociclib (B)에 대한 예측 민감도. (C,D) 벡터 대조군 및 LINC01871 과발현 세포에서 palbociclib (C) 및 ribociclib (D)의 약물 용량-반응 곡선이며, 각 패널에 해당 반최대 억제 농도 (IC50) 값이 표시됨. (E) 벡터 대조군 및 LINC01871 과발현 세포의 세포 주기 분포에 대한 유세포 분석 평가. (F,G) palbociclib (F) 및 ribociclib (G) 농도를 증가시키며 처리한 후의 콜로니 형성. (H) 사이클린 의존성 인산화효소 4 (CDK4), 사이클린 의존성 인산화효소 6 (CDK6), cyclin D1 (CCND1), 망막모세포종 단백질 (RB) 및 인산화된 RB (p-RB)에 대한 웨스턴 블롯 분석이며, β-actin을 로딩 대조군으로 사용함. OE-LINC01871, LINC01871 과발현; ns, 유의하지 않음. 모든 실험은 독립적으로 3회 반복 수행됨. 데이터는 평균 ± SD로 표시됨. IC50 값은 비선형 회귀 분석으로 결정됨. 세포 주기 분포 및 콜로니 형성 데이터는 이원 분산 분석(two-way ANOVA)을 사용하여 분석됨. *P < 0.05, **P < 0.01, ***P < 0.001, ****P < 0.0001, ns, 유의하지 않음. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
LINC01871 발현이 높은 환자에서 양호한 임상 결과가 나타나는 경향이 있음
TCGA-BRCA 코호트를 통해 LINC01871의 예후적 연관성을 추가로 조사하였다. Kaplan-Meier 분석 결과, LINC01871 발현이 높을수록 전반적으로 전체 생존 기간과 무진행 생존 기간이 더 긴 것으로 나타났다(그림 3A; 부록 그림 3C). 쌍을 이룬 샘플과 쌍을 이루지 않은 샘플 모두에서 비교했을 때, 정상 조직보다 종양 조직에서 LINC01871 발현이 유의하게 낮음을 확인하였다(그림 3B,C). 다음으로 LINC01871 발현과 임상 병리학적 특징 사이의 관계를 조사하였다. LINC01871 발현이 낮을수록 종양 크기가 더 큰 경향이 있었으며, 생존 환자에 비해 사망한 환자에서 이러한 경향이 관찰되었다(그림 3D,E). 방사선 치료를 받은 환자들을 대상으로 한 하위 그룹 분석에서는 LINC01871 발현이 높은 환자군에서 생존 결과가 유의하게 더 양호한 것으로 나타났다(부록 그림 3D). 이후 LINC01871 발현과 여러 임상적 특성을 결합한 예후 노모그램을 개발하였다(부록 그림 3E). 보정 분석 결과, 노모그램으로 추정된 생존 확률과 실제 관찰된 결과가 밀접하게 일치함을 확인하였다(부록 그림 3F).
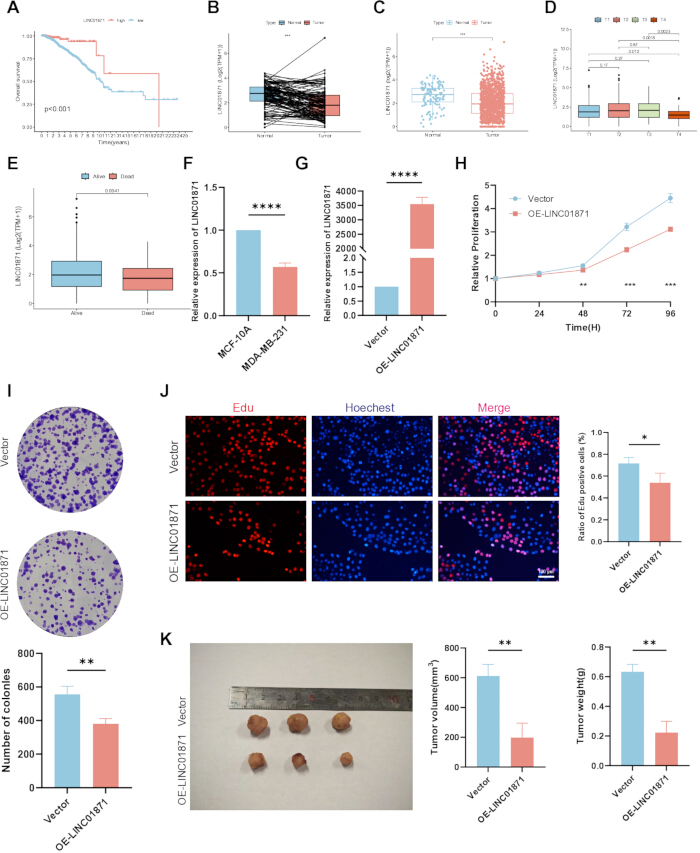
그림 3LINC01871 발현, 예후와의 연관성 및 유방암 증식 억제.
(A) LINC01871 발현에 따라 층화된 전체 생존율의 Kaplan–Meier 분석. (B,C) 정상 조직과 종양 조직 간의 LINC01871 발현을 비교한 쌍체(B) 및 비쌍체(C) 분석. (D,E) 종양 T 병기와 (D) 생존 상태(E)에 따른 LINC01871 발현. (F) MCF-10A 세포와 MDA-MB-231 세포 간의 LINC01871 상대적 발현 비교. (G) MDA-MB-231 세포에서 LINC01871 과발현을 확인한 역전사 정량 중합효소 연쇄 반응. (H–J) Cell Counting Kit-8 (CCK-8) 분석(H), 콜로니 형성 분석(I) 및 5-ethynyl-2′-deoxyuridine (EdU) 통합 분석(J). 패널 J의 스케일 바는 다음을 나타냅니다. 100 μm(K) 벡터 대조군 및 LINC01871 과발현군에서 제노그라프트 종양의 외형, 부피 및 무게. TPM, 100만 개당 전사체 수; OE-LINC01871, LINC01871 과발현. 전체 생존율은 로그 순위법(log-rank test)을 이용한 카플란-마이어(Kaplan–Meier) 분석으로 평가하였다. 종양 조직과 정상 조직 간의 쌍체 비교는 윌콕슨 부호 순위 검정(Wilcoxon signed-rank test)을 사용하여 평가하였다. 나머지 두 집단 간 비교의 경우, 샤피로-윌크(Shapiro–Wilk) 검정으로 정규성을 평가한 후 비쌍체 스튜던트 t-검정(unpaired Student’s t-test) 또는 맨-휘트니 U 검정(Mann–Whitney U test)을 선택하였다. CCK-8 측정값은 이원 분산 분석(two-way analysis of variance)으로 분석하였다. 인 비트로(in vitro) 실험은 3회의 독립적인 생물학적 반복 실험으로 구성되었으며, 제노그라프트 실험은 각 그룹당 3마리의 마우스를 포함하였다. 데이터는 평균으로 표시됨 ± 표준편차. *P < 0.05, **P < 0.01, ***P < 0.001, 그리고 ****P < 0.0001; ns, 유의미하지 않음. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
LINC01871의 과발현은 종양 세포 증식을 억제하며 NF-κB 신호 전달 감소와 관련이 있다
in vitro 및 in vivo 모델을 사용하여 종양 세포 증식에 대한 LINC01871의 억제 효과를 추가로 조사하였다. LINC01871 발현은 유방암 세포주보다 정상 유방 상피 세포주에서 유의하게 높았다(그림 3F). LINC01871 과발현 모델의 성공적인 구축은 RT-qPCR로 확인되었으며, 벡터 대조군에 비해 LINC01871 발현이 현저히 증가한 것으로 나타났다(그림 3G). 이어진 CCK-8 분석 결과, LINC01871 과발현 세포에서 증식 능력이 유의하게 감소한 것이 확인되었다(그림 3H). 이러한 결과와 일치하게, LINC01871 과발현은 콜로니 형성 능력을 감소시켰으며(그림 3I), EdU 양성 세포의 비율을 줄였다(그림 3J). 제노그라프트 모델에서 LINC01871 과발현 세포로부터 유래된 종양은 벡터 대조군 세포로부터 유래된 종양보다 유의하게 작았다(그림 3K).
이러한 효과의 기저에 있는 잠재적 기전을 탐구하기 위해, 두 가지 유전자 세트를 사용하여 기능적 풍부성 분석(functional enrichment analyses)을 수행하였다: LINC01871 발현 수준이 높은 그룹과 낮은 그룹 간에 차별적으로 발현된 유전자 세트, 그리고 피어슨 상관관계 분석(Pearson correlation analysis)을 통해 LINC01871과 공동 발현되는 것으로 확인된 유전자 세트이다. 이 유전자 세트들에 대한 GO 분석 결과, T-세포 수용체 결합, 주조직 적합성 복합체(MHC) 단백질 복합체 결합, 백혈구 활성제의 양성 조절 및 면역 수용체 활성을 포함한 여러 면역 관련 기능과의 연관성이 밝혀졌다(Figure 4A,C). KEGG 분석에서도 마찬가지로 T-세포 수용체 신호 전달, 암에서의 programmed death-ligand 1 (PD-L1) 발현 및 programmed cell death protein 1 (PD-1) 체크포인트 경로를 포함한 면역 관련 경로들이 확인되었다. 또한 Janus kinase/signal transducer and activator of transcription (JAK-STAT) 및 NF-κB 신호 전달 경로에서도 풍부성이 관찰되었다(Figure 4B,D). 두 풍부성 분석 모두에서 NF-κB 신호 전달이 확인되었기에, 웨스턴 블로팅을 통해 그 활성을 추가로 조사하였다. LINC01871 과발현 세포에서 P65 인산화 수준이 대조군보다 현저히 낮았으며(Figure 4E), 이는 NF-κB 경로 활성 감소와 일치하는 결과이다. LINC01871 과발현과 세포사멸(apoptosis) 간의 관계 또한 평가하였다. 웨스턴 블로팅 결과, LINC01871 과발현 후 pro-apoptotic 단백질인 Bax의 발현은 증가하고 anti-apoptotic 단백질인 Bcl-2의 발현은 감소한 것으로 나타났다(Figure 4F). 유세포 분석(flow cytometry)을 통해 LINC01871 과발현 그룹에서 벡터 대조군보다 세포사멸 세포의 비율이 유의미하게 더 높음을 추가로 확인하였다(Figure 4G).
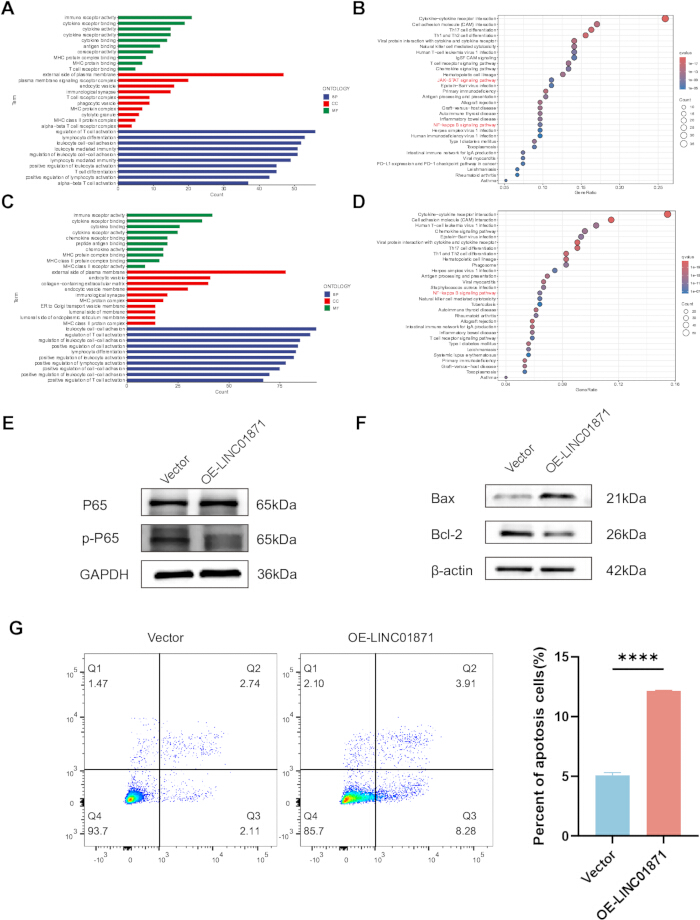
그림 4LINC01871과 핵 인자 카파 B(nuclear factor kappa B) 신호 전달 및 세포 사멸의 연관성.
(A,B) LINC01871 고발현군과 저발현군 사이에 차별적 발현을 보이는 유전자들에 대한 유전자 존재론(GO) (A) 및 교토 유전자 및 게놈 백과사전(KEGG) (B) 풍부성 분석. (C,D) LINC01871과 공동 발현되는 유전자들에 대한 GO (C) 및 KEGG (D) 풍부성 분석. (E) 핵 인자 카파 B (NF-κB) 경로 단백질 P65 및 인산화된 P65(p-P65)이며, glyceraldehyde-3-phosphate dehydrogenase(GAPDH)를 로딩 대조군으로 사용하였다. (F) Bcl-2-associated X protein(Bax) 및 B-세포 림프종 2(Bcl-2) 세포사멸 관련 단백질에 대한 웨스턴 블롯 평가이며, 다음을 이용하였다. β-actin을 로딩 대조군으로 사용하였다. (G) 벡터 대조군 및 LINC01871 과발현 세포에서 세포 사멸의 유세포 분석 평가 및 정량화. 모든 인 비트로(in vitro) 실험은 세 번의 독립적인 생물학적 반복 실험을 포함하였다. 제시된 웨스턴 블롯 이미지는 세 번의 독립적인 생물학적 실험을 대표하는 결과이다. 데이터는 평균으로 표시되었다. ± SD. 벡터 대조군 세포와 LINC01871 과발현 세포 간의 비교는 비쌍체 Student’s t-검정을 사용하여 수행되었습니다. tShapiro-Wilk 검정으로 정규성을 평가한 후, t-검정 또는 Mann-Whitney U 검정을 실시하였다. *P < 0.05, **P < 0.01, ***P < 0.001, 그리고 ****P < 0.0001; ns, 유의미하지 않음. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
LINC01871의 범암 분석
유방암에서 LINC01871과 관련된 종양 억제 특성을 바탕으로, 본 연구에서는 여러 암종으로 분석 범위를 확장하여 LINC01871의 발현 및 예후 연관성을 규명하였습니다. 유방암 외에도 여러 악성 종양에서 LINC01871의 차등 발현이 관찰되었습니다(그림 5A). 결장선암(COAD), 신세포암(KIRC), 신유두상세포암(KIRP), 폐편평상피세포암(LUSC) 및 갑상선암(THCA)에서 쌍체 및 비쌍체 비교 모두 종양 조직과 정상 조직 간의 유의미한 차이가 검출되었습니다(그림 5B). 생존 분석 결과, 두경부편평상피세포암(HNSC), KIRC, 뇌 저등급 신경교종(LGG), 직장선암(READ), 피부흑색종(SKCM), 자궁내막암(UCEC), 방광요로상피암(BLCA), 간세포암(LIHC) 및 전립선선암(PRAD)에서 LINC01871의 유의미한 예후 연관성이 확인되었습니다(그림 5C–E).
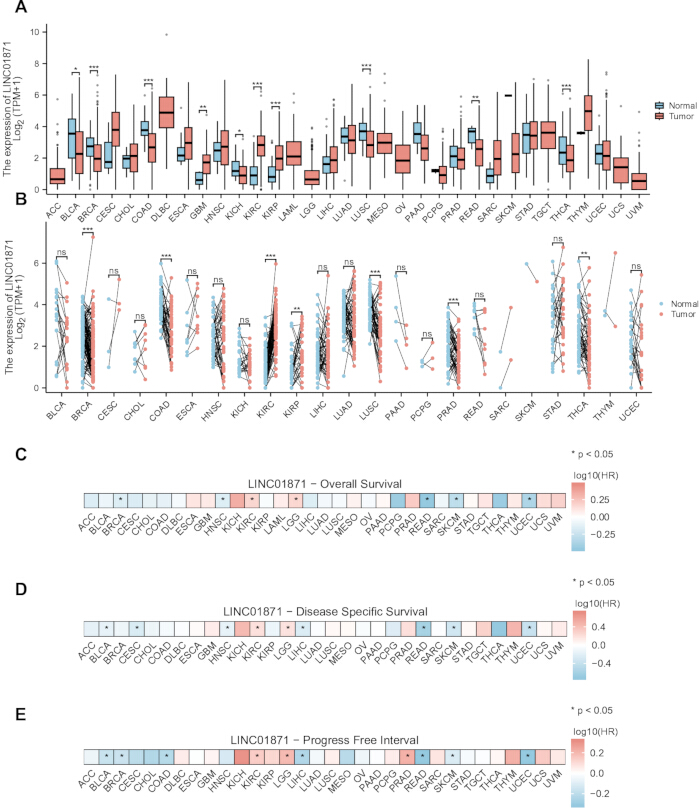
그림 5. LINC01871의 범암 발현 및 예후 분석.
(A,B) 비쌍체(A) 및 쌍체(B) 분석을 사용하여 여러 암종에 걸쳐 종양 조직과 정상 조직 간의 LINC01871 발현을 비교한 결과. (C–E) 전체 생존율(C), 질병 특이 생존율(D) 및 무진행 기간(E)에 대한 로그 변환 위험비를 보여주는 LINC01871의 예후 연관성. HR, 위험비; TPM, transcripts per million; ns, 유의하지 않음. 암종 약어는 The Cancer Genome Atlas 명명법을 기준으로 함. 비쌍체 종양-정상 데이터는 Mann–Whitney U 검정(A)을 사용하여 평가하였으며, 쌍체 종양-정상 데이터는 Wilcoxon signed-rank 검정(B)을 사용하여 평가함. 전체 생존율, 질병 특이 생존율 및 무진행 기간과의 연관성은 단변량 Cox 비례 위험 회귀 분석(C–E)을 통해 조사함. *P < 0.05, **P < 0.01, ***P < 0.001, ****P < 0.0001; ns, 유의하지 않음. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
LINC01871 발현과 면역 세포 침윤 사이의 상관관계
다음으로 유방암 샘플의 단일 세포 RNA 시퀀싱 데이터(GSE161529)를 사용하여 LINC01871의 세포별 분포 특성을 분석하였습니다. 품질 관리, 배치 효과 보정, 클러스터링 및 세포 유형 주석 지정 결과, 상피 세포, CD8⁺ T 세포, T 세포, 대식세포, 섬유아세포, 자연 살해(NK) 세포 및 B 세포 인구군이 확인되었습니다 (그림 6A). 이러한 세포군 중에서 LINC01871 발현은 T 세포와 NK 세포에서 가장 두드러졌습니다 (그림 6B,C). 이에 따라 전사체 기반의 침윤 추정치를 사용하여 LINC01871과 면역 미세환경 사이의 관계를 추가로 조사하였습니다. CIBERSORT 분석 결과, LINC01871 고발현 군은 CD8⁺ T 세포, NK 세포, M1 대식세포를 포함한 여러 면역 세포군의 추정 비율이 더 높았으며, 조절 T 세포(Tregs)와 M2 대식세포의 추정 비율은 더 낮았습니다 (그림 6D). 마찬가지로, ESTIMATE를 통해 도출된 면역 점수는 LINC01871 발현이 높은 샘플에서 더 높게 나타났습니다 (그림 6E). 이전에 보고된 면역 세포 마커 유전자를 이용한 ssGSEA 분석에서도 전반적으로 일치하는 패턴이 확인되었습니다 (그림 6F). 이러한 분석을 여러 암종으로 확장한 결과, LINC01871 발현과 다수 면역 세포군의 추정 풍부도 사이에 유의미한 상관관계가 있음이 나타났습니다 (그림 6G).
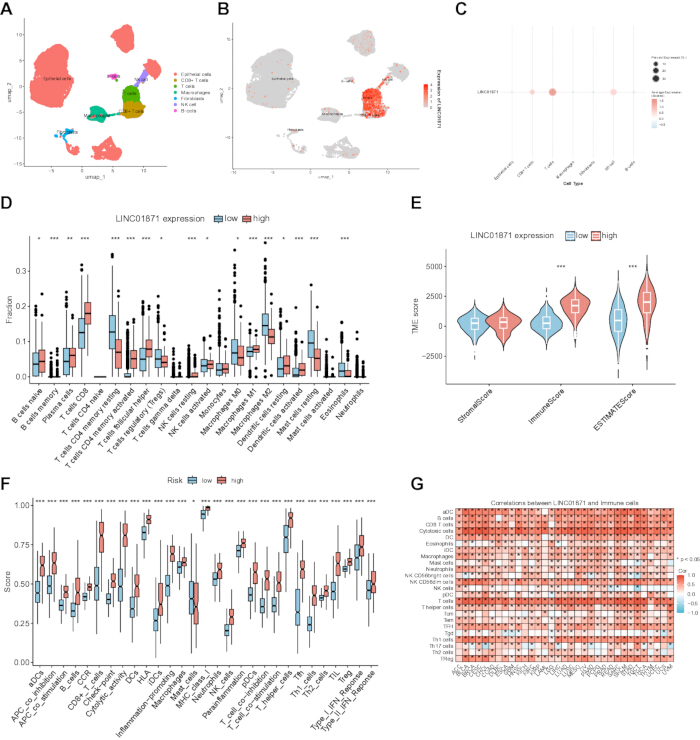
그림 6LINC01871의 단일 세포 발현 및 면역 침윤 분석.
(A) 단일 세포 RNA 시퀀싱 데이터로부터 식별된 주석 처리된 세포 집단의 균일 매니폴드 근사 및 투영(UMAP) 표현. (B) 주석 처리된 세포 집단 간의 LINC01871 발현 분포를 나타내는 UMAP 피처 플롯. (C) 각 세포 유형별 LINC01871 발현 세포의 비율과 척도 조정된 평균 발현도를 보여주는 도트 플롯. (D) RNA 전사체 상대적 하위 집합 추정을 통한 세포 유형 식별(CIBERSORT)법으로 추정한 LINC01871 저발현 및 고발현 그룹 내 22개 면역 세포 집단의 상대적 비율. (E) 발현 데이터를 이용한 악성 종양 조직 내 기질 및 면역 세포 추정(ESTIMATE)법을 통해 도출된 기질, 면역 및 종양 미세환경 점수. (F) LINC01871 저발현 및 고발현 그룹에서 단일 샘플 유전자 세트 풍부성 분석(ssGSEA)으로 얻은 면역 관련 점수. (G) ssGSEA를 사용하여 추정한 LINC01871 발현과 면역 세포 침윤 사이의 범암적 연관성. NK, 자연 살해 세포; TME, 종양 미세환경. 암 유형 약어는 The Cancer Genome Atlas 명명법을 따름. LINC01871 저발현 및 고발현 그룹 간의 차이는 Mann–Whitney U 검정으로 평가함(D–F). LINC01871 발현과 면역 세포 침윤 사이의 범암적 연관성은 Spearman 상관 분석으로 평가함(G). *P < 0.05, **P < 0.01, ***P < 0.001, 그리고 ****P < 0.0001; ns, 유의미하지 않음. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
데이터 가용성:
본 연구에서 분석된 데이터셋은 The Cancer Genome Atlas (TCGA; https://portal.gdc.cancer.gov) 및 Gene Expression Omnibus (GEO; https://www.ncbi.nlm.nih.gov/geo/)에서 공개적으로 제공됩니다. 사용된 데이터셋에는 TCGA-BRCA 코호트와 GSE161529 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE161529)가 포함됩니다. 보충 그림 1–3은 추가적인 생물정보학 및 예후 분석 결과를 제공합니다. 보충 표 1에는 역전사 정량 PCR (RT-qPCR)에 사용된 프라이머 서열이 나열되어 있으며, 보충 표 2에는 웨스턴 블롯 분석에 사용된 1차 및 2차 항체가 나열되어 있습니다. 생물정보학 및 통계 분석에 사용된 R 스크립트는 보충 파일 1로 제공됩니다.
보충 그림 1. 예측된 CDK4/6 억제제 민감도와 관련된 차등 발현 유전자 및 가중 유전자 공동 발현 네트워크 모듈의 식별.
(A,B) ribociclib (A) 및 palbociclib (B)에 대해 예측된 내성군과 예측된 민감군 사이의 차등 발현 유전자를 보여주는 화산 플롯. (C,D) ribociclib (C) 및 palbociclib (D)의 유전자 클러스터링 및 모듈 할당을 보여주는 WGCNA 생성 클러스터 덴드로그램. 차등 발현 유전자는 absolute log2 fold change가 ≥0.5이고 보정된 P 값이 <0.05인 유전자로 정의되었다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 2. 추가 후보 lncRNA 5종의 예후 및 예측 성능.
(A) LASSO 회귀 분석으로 식별된 추가 후보 lncRNA 5종의 Kaplan–Meier 생존 분석. (B,C) ribociclib(B) 및 palbociclib(C)에 대한 내성을 예측하는 이들 lncRNA 5종의 진단 성능을 보여주는 수신자 조작 특성 곡선 분석. LINC01871에 대한 해당 분석은 그림 1 및 3에 제시되어 있다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 3. 유방암에서 LINC01871의 예후 평가.
(A) 호르몬 수용체 양성/인간 표피 성장 인자 수용체 2 음성(HR-positive/HER2-negative) 하위 그룹 내 LINC01871 고발현 및 저발현 그룹의 ribociclib 및 palbociclib에 대한 예측 반최대 억제 농도(IC50) 값. (B) HR-positive/HER2-negative 하위 그룹에서 LINC01871 발현과 ribociclib 및 palbociclib의 예측 IC50 값 사이의 Spearman 상관관계 분석. (C) LINC01871 발현에 따른 무진행 간격(PFI)의 Kaplan-Meier 생존 분석. (D) LINC01871 발현으로 층화하여 방사선 치료를 받은 환자들의 Kaplan-Meier 생존 분석. (E) 전체 TCGA-BRCA 코호트에서 전체 생존율을 예측하기 위해 LINC01871 발현과 임상 병리학적 특성을 통합한 노모그램. (F) 1년, 3년, 5년 시점에서 노모그램의 예측 생존 확률과 관찰된 생존 확률 간의 일치도를 평가한 보정 곡선. 패널 A의 비교는 Mann-Whitney U 테스트를 사용하여 분석하였으며, 패널 B의 상관관계는 Spearman 상관관계 분석을 통해 평가하였다. IC50, 반최대 억제 농도; PFI, 무진행 간격; HR, 호르몬 수용체; HER2, 인간 표피 성장 인자 수용체 2. *P < 0.05, **P < 0.01, ***P < 0.001, ****P < 0.0001; ns, 유의하지 않음. 이 파일을 다운로드하시려면 여기를 클릭하십시오.
보충 표 1. 역전사 정량 PCR (RT-qPCR)에 사용된 프라이머 서열.
LINC01871 및 내인성 참조 유전자인 GAPDH의 RT-qPCR 분석에 사용된 정방향 및 역방향 프라이머 서열 (5′→3′). 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 2. 웨스턴 블롯 분석에 사용된 1차 및 2차 항체.
표적 단백질 또는 항체 특이성, 공급처, 카탈로그 번호, 숙주 종, 희석 배수 및 연구 자원 식별자(RRID)를 포함하여 웨스턴 블롯 분석에 사용된 1차 및 2차 항체 목록입니다. 여기를 클릭하여 이 파일을 다운로드하십시오.
보충 파일 1. 생물정보학 및 통계 분석에 사용된 R 스크립트.
이 보충 파일에는 전사체 분석, 차등 발현 분석, 가중 유전자 공발현 네트워크 분석(WGCNA), 최소 절대 수축 및 선택 연산자(LASSO) 회귀 분석, 생존 분석, 수신자 조작 특성(ROC) 분석, 기능적 풍부성 분석, 면역 침윤 분석, 단일 세포 RNA 시퀀싱 분석 및 그림 생성을 포함하여 본 연구에서 제시된 생물정보학 분석 및 그림을 생성하는 데 사용된 R 스크립트가 포함되어 있습니다. 개별 스크립트는 원고에 제시된 주요 그림 및 보충 그림과 대응합니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
암 생물학에 대한 이해가 확장됨에 따라 새로운 치료 표적이 식별되었으며, 표적 치료가 암 치료의 중요한 구성 요소로 자리 잡았습니다17. 그러나 치료 저항성의 발달은 이러한 치료법의 장기적인 효과를 계속해서 제한하고 있습니다. 본 연구에서는 멀티오믹스 분석과 머신러닝 접근법의 통합을 통해 ribociclib 및 palbociclib에 대한 예측 민감도와 관련된 후보 인자로 LINC01871을 식별하였습니다. 추가적인 실험 분석을 통해 LINC01871의 과발현이 in vitro에서 두 약물 모두에 대한 민감도를 증가시키고, 세포 기반 모델 및 xenograft 모델에서 유방암 세포의 증식을 억제함을 보여주었습니다. 이러한 효과는 NF-κB 경로 활성의 감소와 함께 나타났으며, 이는 LINC01871과 해당 신호 전달 경로 사이의 잠재적 관계를 시사합니다. 이러한 관찰 결과는 CDK4/6 억제제 기반 치료 중 치료 결정을 내리기 위해 바이오마커를 사용하는 사례가 증가하는 상황에서 유의미할 수 있습니다. 다만, LINC01871을 뒷받침하는 근거는 기존의 바이오마커 유도 접근법에서 사용 가능한 근거와 상당한 차이가 있습니다. 예를 들어, ESR1 변이에 대한 순환 종양 DNA 모니터링은 내분비 치료를 조정하기 위한 전략으로서 전향적 평가를 거쳤습니다. 반면, LINC01871은 여전히 후보 바이오마커 단계이며, 아직 임상적 의사결정에 적합한 것으로 간주되어서는 안 됩니다. 이러한 구분은 HR-양성/HER2-음성 전이성 유방암에서 CDK4/6 억제제 기반 치료 후 질병이 진행되었을 때의 치료 옵션에 경구 선택적 에스트로겐 수용체 분해제, PI3K/AKT 경로 억제제, 항체-약물 접합체(ADC) 등이 포함됨에 따라 더욱 중요해졌습니다18,19. 이러한 진화하는 치료 환경 내에서, CDK4/6 억제제 민감도의 차이를 구분할 수 있는 바이오마커는 잠재적으로 치료 계층화를 도울 수 있습니다. 본 연구 결과는 LINC01871과 ribociclib 및 palbociclib 민감도 사이의 연관성을 뒷받침하지만, 현재의 근거는 약물 민감도에 대한 계산적 추정치와 in vitro 실험에서 도출된 것입니다. 따라서 LINC01871이 환자에게서 예측 가치를 갖는지 결정하기 위해서는 CDK4/6 억제제 노출 및 임상 결과가 기록된 전향적 코호트 연구가 필요할 것입니다.
에스트로겐 수용체 및/또는 프로게스테론 수용체 양성 유방암에서 CDK4/6 억제제의 치료적 이점은 여러 임상 시험을 통해 입증되었습니다4,5,6. 삼중음성 유방암에서의 잠재적 유용성 또한 연구 대상이 되어 왔습니다20,21. 예를 들어, Yang 등은 CDK4/6와 CDK7을 동시에 표적으로 삼는 것이 삼중음성 유방암 세포의 증식을 억제한다는 것을 발견했습니다22. 다른 연구들은 CDK4/6 억제에 대한 반응성을 변화시킬 수 있는 분자적 변이를 확인했습니다. GPX4 억제는 에스트로겐 수용체 양성 및 삼중음성 유방암 모두에서 palbociclib 민감도를 증가시키는 것으로 보고되었으며23, 반면 C9orf142는 삼중음성 유방암에서 CDK4/6 억제제 내성과 관련이 있는 것으로 나타났습니다20. 이와 반대로, ACAA1의 억제는 유방암 세포의 CDK4/6 억제제 민감도를 향상시키는 것으로 보고되었습니다24. CDK4/6 억제제 반응의 분자적 결정 요인에 관한 기존 연구의 상당 부분은 단백질 코딩 유전자에 집중되어 있어, lncRNA의 기여도는 덜 규명된 상태입니다. 본 연구 결과는 LINC01871을 CDK4/6 억제제 반응과 관련된 잠재적 비코딩 RNA로 식별함으로써 이 분야를 확장합니다. 세포독성 및 콜로니 형성 분석을 유세포 분석 및 세포 주기 관련 단백질 분석과 함께 수행한 결과, LINC01871의 과발현이 ribociclib 및 palbociclib에 대한 더 높은 민감도와 일관되게 연관되어 있음을 확인했습니다. 별도의 증식 분석과 제노그라프트 모델은 LINC01871 과발현과 유방암 성장 사이의 억제적 연관성을 추가로 뒷받침했습니다.
이러한 관찰 결과의 기저에 있을 수 있는 메커니즘을 탐구하기 위해, 우리는 LINC01871 고발현군과 저발현군 사이에서 차등 발현된 유전자들과 LINC01871과 공동 발현된 유전자들의 기능적 프로파일을 분석하였습니다. GO 및 KEGG 분석 결과, 두 유전자 집단 모두 면역 관련 과정 및 NF-κB 신호 전달과 연관되어 있었습니다. NF-κB 신호 전달은 이전에 cyclin D 발현을 증가시켜 세포 주기 진행을 촉진하는 것으로 보고된 바 있으므로25,26, 이 발견은 세포 주기 조절과 밀접한 관련이 있습니다. Zhou 등은 NF-κB가 CDK6 프로모터와 상호작용하여 CDK6 전사를 자극할 수 있음을 추가로 보여주었습니다27. NF-κB와 PI3K/AKT/mTOR 경로 간의 상호작용 또한 기술되었으며28, 후자의 경로는 CDK4/6 억제제 내성과 관련이 있습니다11. 종합적으로, 이러한 관찰 결과는 LINC01871의 맥락에서 NF-κB 활성을 조사해야 하는 근거를 제공합니다. 농축 분석 결과와 일치하게, LINC01871 과발현 세포는 더 낮은 P65 인산화를 나타냈습니다. 그럼에도 불구하고, 이 데이터는 직접적인 조절 메커니즘보다는 연관성을 입증하는 것이며, LINC01871이 NF-κB 신호 전달에 어떻게 영향을 미치는지는 앞으로 밝혀져야 할 과제로 남아 있습니다.
면역 미세환경은 CDK4/6 억제제 반응에 기여하는 또 다른 잠재적 요인입니다. 예를 들어, γδ T 세포는 CX3CR1⁺ 대식세포에 의해 매개되는 효과를 통해 내성을 촉진하는 것으로 보고되었습니다29. Luo 등은 CDK4/6 억제제에 대해 더 늦은 시점에 내성이 발생한 환자의 종양에서 CD8⁺ T 세포 및 NK 세포의 침윤이 더 많이 관찰됨을 확인했습니다30. 당사의 단일 세포 분석 결과, LINC01871 발현은 상피 세포보다 T 세포와 NK 세포에서 더 두드러지게 나타났습니다. 보완적인 전사체 기반 분석에서는 LINC01871 발현이 높을수록 CD8⁺ T 세포, M1 대식세포 및 NK 세포의 추정 침윤 정도는 더 높고, M2 대식세포 및 Treg의 추정 침윤 정도는 더 낮은 것과 연관이 있었습니다. CD8⁺ T 세포, M1 대식세포 및 NK 세포는 항종양 면역 활성과 관련이 있는 반면, M2 대식세포는 종양 촉진 기능과 연관된 것으로 알려져 있습니다31,32,33,34. 종합하면, 이러한 결과는 LINC01871의 높은 발현이 더욱 면역 활성이 높은 종양 미세환경과 관련이 있을 수 있음을 시사합니다. 다만, 면역 세포 추정치가 직접 측정된 것이 아니라 전사체 프로파일로부터 추론된 것이므로 이 해석은 아직 예비적인 단계이며, LINC01871이 면역 미세환경 조성에 역할을 하는지 확인하기 위해서는 기능 연구가 필요할 것입니다.
이러한 결과들을 해석할 때 몇 가지 한계점을 인정해야 합니다. 첫째, LINC01871은 CDK4/6 억제제를 투여받은 환자로부터 직접 얻은 데이터가 아니라 약물 반응을 계산적으로 추론한 통합 멀티오믹스 분석을 통해 확인되었습니다. LINC01871 과발현 후 palbociclib 및 ribociclib에 대해 더 높은 민감도를 보인다는 점이 직접적인 in vitro 실험을 통해 입증되었으나, 이러한 결과가 환자에서의 예측 가치를 확립하는 것은 아닙니다. 따라서 LINC01871을 예측 바이오마커로 평가하기 위해서는 CDK4/6 억제제 노출 및 임상 반응 데이터가 기록된 독립적인 코호트가 필요할 것입니다. 둘째, 발견 분석은 초기에 임상적으로 이질적인 유방암 아형들을 포함하는 전체 TCGA-BRCA 코호트를 대상으로 수행되었습니다. LINC01871과 예측된 약물 민감도 사이의 연관성은 HR-양성/HER2-음성 하위 그룹 내에서도 관찰되었으나, 임상적으로 치료를 받은 HR-양성/HER2-음성 환자군에서의 확인이 여전히 필요합니다. 셋째, 본 연구에 사용된 GDSC2 데이터셋에 abemaciclib 반응 데이터가 포함되어 있지 않았기 때문에, 약물 반응 분석은 palbociclib과 ribociclib으로 제한되었습니다. 따라서 관찰된 연관성이 abemaciclib까지 확장되는지는 알 수 없습니다. 넷째, 세포 기반 실험 및 제노그라프트 실험에서 관찰된 종양 억제 효과에도 불구하고, LINC01871과 NF-κB 신호 전달 사이의 분자적 연결 고리는 아직 확립되지 않았습니다. LINC01871 과발현에 따라 P65 인산화가 감소했지만, 이러한 연관성을 유발하는 메커니즘에 대해서는 추가 조사가 필요합니다. 마찬가지로, 면역 관련 관찰 결과는 주로 전사체 기반의 계산 분석에서 도출되었으므로, 이는 LINC01871이 종양 면역 미세환경을 직접 조절한다는 증거라기보다는 연관성으로 해석되어야 합니다. 마지막으로, CDK4/6 억제제 내성은 여러 생물학적 과정이 관여하며, LINC01871 단독으로는 치료 반응의 모든 복잡성을 설명하기 어렵습니다. 따라서 향후 연구에서는 아형 특이적 코호트 포함, abemaciclib 평가, 면역 관련 연관성의 실험적 검증, LINC01871과 NF-κB 신호 전달 관계에 대한 기전 연구, 그리고 LINC01871이 예측 바이오마커로서 유용한지를 결정하기 위한 전향적 임상 평가가 이루어져야 합니다.
공개 사항
이해관계 충돌:
저자들은 상충하는 이해관계가 없음을 선언합니다.
감사의 글
본 연구는 Fujian Province Natural Science Foundation(Grant No. 2022J011056)의 지원을 받았습니다. 저자들은 본 연구에 사용된 공개 데이터셋을 제공한 The Cancer Genome Atlas (TCGA)와 Gene Expression Omnibus (GEO)에 감사를 표합니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 25 G 주사 바늘 | Beyotime | FS802-30pcs | 개구기 및 선택적인 치주인대 사전 이완에 사용되는 일회용 주사 바늘 |
| 4% 파라포름알데히드 용액 | Solarbio | P1110 | 시료 고정에 사용되는 4% 파라포름알데히드 용액 |
| 75% 에탄올 | Ouse Medical Devices Store | N/A | 표면 소독에 사용되는 75% 의료용 에탄올 |
| C57BL/6 마우스 | Charles River | 213 | 체중 22–29 g의 8주령 수컷 C57BL/6 마우스 |
| Carprofen | Solarbio | C5350 | 5 mg/kg으로 피하 투여하는 수술 후 진통제 |
| 탈지면 | Ouning Medical Devices | N/A | 구강 세척 및 지혈에 사용되는 멸균 탈지면 |
| CTAn v1.18.4.0+ | SkyScan | N/A | μCT 이미지 분석에 사용되는 소프트웨어 |
| DataViewer v1.5.6.2 | SkyScan | N/A | 재구성된 μCT 이미지의 확인 및 내보내기에 사용되는 소프트웨어 |
| 핑거 슬리브 | LeSu Office | MEKU-1/2/3B | 발치 중 엄지손가락 보호에 사용되는 핑거 슬리브 |
| 폼 보드 | Dongguan Lijianglong Industrial Co., Ltd. | N/A | 수술 및 고정 플랫폼으로 사용되는 폼 보드 |
| 젤 식이 | ReadyDietech | J10001 | 필요 시 3일 동안 케이지 바닥에 제공하는 수술 후 식이 |
| GraphPad Prism v10.1.2 | GraphPad | RRID: SCR_002798 | 통계 분석 및 그래프 생성에 사용되는 소프트웨어 |
| 헤드램프 | Bazhou Pengen Protective Equipment Factory | N/A | 수술 부위를 조명하는 데 사용되는 헤드램프 |
| 가열 패드 | Shijiazhuang Jianuan Electrical Appliances Co., Ltd. | N/A | 수술 후 회복을 위해 약 38 °C로 예열된 가열 패드 |
| 하이드록시아파타이트 팬텀 | QRM | QRM-70127 | CT 감쇠 값을 골밀도로 변환하는 데 사용되는 교정용 팬텀 |
| 확대 장치 | Olympus Corporation | SZX10 | 치과용 핀셋 팁과 발치窩(extraction socket)를 확대하여 검사하는 데 사용되는 장치 |
| 마스크 | Senlun Medical Devices Specialty Store | N/A | 수술용 마스크 |
| 마이크로 컴퓨터 단층촬영 스캐너 | Bruker SkyScan | SkyScan 1276 | 80 kV, 500 μA, 그리고 10 μm 복셀 해상도에서 사용되는 μCT 스캐너 |
| Mimics Research v21.0 | Materialise | RRID: SCR_015802 | 3차원 재구성에 사용되는 소프트웨어 |
| 펜토바르비탈 나트륨 | Sigma-Aldrich | P3761 | 1% 마취액으로 사용되는 펜토바르비탈 나트륨염 |
| 인산염 완충 식염수 | Solarbio | P1010 | 0.01 M 인산염 완충 식염수 분말, pH 7.2–7.4 |
| 포비돈-요오드 소독액 | Belkon Pharmacy Flagship Store | N/A | 복부 소독에 사용되는 포비돈-요오드 용액 |
| 고무줄 | Foshan Puli Rubber Products Factory | N/A | 개구기를 조립하는 데 사용되는 고무줄 |
| 식염수 | Thermo Fisher | BR0053G | 구강 세척용 용액 제조에 사용되는 식염수 정제 |
| 표준 사료 | Jiangsu Xietong Pharmaceutical and Biotechnology Engineering Co., Ltd. | XTC01WC-001 | 일상 사육에 사용되며, 수술 후 급여를 위해 연화시킨 표준 사료 |
| 고압 증기 멸균기 | Institutional facility | N/A | 치과용 핀셋과 식염수를 멸균하는 데 사용되는 장비 |
| 멸균 면봉 | Kangbailai Medical Devices Store | N/A | 일회용 멸균 면봉 |
| 멸균 장갑 | Senlun Medical Devices Specialty Store | N/A | 멸균 라텍스 장갑 |
| 멸균 부직포 | Shandong Xinhua Infection Control Supplies Hangzhou Store | N/A | 수술 표면과 가열 패드를 덮는 데 사용되는 멸균 부직포 |
| 멸균 수술모 | Senlun Medical Devices Specialty Store | N/A | 멸균 수술모 |
| 수술복 | Senlun Medical Devices Specialty Store | N/A | 시술 중 착용하는 깨끗한 수술복 |
| 테이프 | Thermo Fisher | 15947 | 마우스의 사지를 고정하는 데 사용되는 접착 테이프 |
| 치과용 안과 핀셋 | Beyotime | FS229 | 치과용 핀셋으로 사용되는 유치 안과용 포셉 |
| 수의용 안연고 | Dechra Veterinary Products | 143-16 | 각막 건조를 방지하기 위해 마취 후 도포하는 안연고 |
참고문헌
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Xiong X, et al. Breast cancer: Pathogenesis and treatments. Signal Transduct Target Ther. 2025;10(1):49.
- Ye F, et al. Advancements in clinical aspects of targeted therapy and immunotherapy in breast cancer. Mol Cancer. 2023;22(1):105.
- Johnston SRD, et al. Abemaciclib plus endocrine therapy for hormone receptor-positive, HER2-negative, node-positive, high-risk early breast cancer (monarchE): Results from a preplanned interim analysis of a randomised, open-label, phase 3 trial. Lancet Oncol. 2023;24(1):77-90.
- Slamon D, et al. Ribociclib plus endocrine therapy in early breast cancer. N Engl J Med. 2024;390(12):1080-91.
- Finn RS, et al. The cyclin-dependent kinase 4/6 inhibitor palbociclib in combination with letrozole versus letrozole alone as first-line treatment of oestrogen receptor-positive, HER2-negative, advanced breast cancer (PALOMA-1/TRIO-18): A randomised phase 2 study. Lancet Oncol. 2015;16(1):25-35.
- Morrison L, Loibl S, Turner NC. The CDK4/6 inhibitor revolution-a game-changing era for breast cancer treatment. Nat Rev Clin Oncol. 2024;21(2):89-105.
- Guo Z, et al. Cyclin-dependent kinase 4 and 6 inhibitors in breast cancer treatment. Oncogene. 2025;44(17):1135-52.
- Vora SR, et al. CDK4/6 inhibitors sensitize PIK3CA-mutant breast cancer to PI3K inhibitors. Cancer Cell. 2014;26(1):136-49.
- Foffano L, et al. Cyclin-dependent kinase 4 and 6 inhibitors (CDK4/6i): Mechanisms of resistance and where to find them. Breast. 2025;79:103863.
- Hao C, et al. PI3K/AKT/mTOR inhibitors for hormone receptor-positive advanced breast cancer. Cancer Treat Rev. 2025;132:102861.
- Bidard FC, et al. Switch to fulvestrant and palbociclib versus no switch in advanced breast cancer with rising ESR1 mutation during aromatase inhibitor and palbociclib therapy (PADA-1): A randomised, open-label, multicentre, phase 3 trial. Lancet Oncol. 2022;23(11):1367-77.
- Bidard FC, et al. First-line camizestrant for emerging ESR1-mutated advanced breast cancer. N Engl J Med. 2025;393(6):569-80.
- Zhang D, et al. Cancer-associated fibroblasts promote tumor progression by lncRNA-mediated RUNX2/GDF10 signaling in oral squamous cell carcinoma. Mol Oncol. 2022;16(3):780-94.
- Chen F, et al. Extracellular vesicle-packaged HIF-1α-stabilizing lncRNA from tumour-associated macrophages regulates aerobic glycolysis of breast cancer cells. Nat Cell Biol. 2019;21(4):498-510.
- Chen X, et al. Estrogen-induced lncRNA LINC02568 promotes estrogen receptor-positive breast cancer development and drug resistance through both in trans and in cis mechanisms. Adv Sci (Weinh). 2023;10(25):e2206663.
- Huang R, Zhou PK. DNA damage repair: Historical perspectives, mechanistic pathways and clinical translation for targeted cancer therapy. Signal Transduct Target Ther. 2021;6(1):254.
- Güren AK, et al. Post-CDK4/6 inhibitor treatment landscape in metastatic hormone receptor-positive breast cancer: A narrative review. Expert Rev Anticancer Ther. 2026;26(4):425-35.
- Güren AK, et al. Efficacy and safety of sacituzumab govitecan in hormone receptor-positive metastatic breast cancer: A systematic review and meta-analysis. J Oncol Pharm Pract. 2026. doi:10.1177/10781552261462434.
- Liao L, et al. C9orf142 transcriptionally activates MTBP to drive progression and resistance to CDK4/6 inhibitors in triple-negative breast cancer. Clin Transl Med. 2023;13(11):e1480.
- Zhu X, et al. Efficacy and mechanism of the combination of PARP and CDK4/6 inhibitors in the treatment of triple-negative breast cancer. J Exp Clin Cancer Res. 2021;40(1):122.
- Yang Y, et al. Dual inhibition of CDK4/6 and CDK7 suppresses triple-negative breast cancer progression via epigenetic modulation of SREBP1-regulated cholesterol metabolism. Adv Sci (Weinh). 2025;12(5):e2413103.
- Herrera-Abreu MT, et al. Inhibition of GPX4 enhances CDK4/6 inhibitor and endocrine therapy activity in breast cancer. Nat Commun. 2024;15(1):9550.
- Peng WT, et al. Inhibition of ACAA1 restrains proliferation and potentiates the response to CDK4/6 inhibitors in triple-negative breast cancer. Cancer Res. 2023;83(10):1711-24.
- Joyce D, et al. NF-κB and cell-cycle regulation: The cyclin connection. Cytokine Growth Factor Rev. 2001;12(1):73-90.
- Iwanaga R, et al. Activation of the cyclin D2 and CDK6 genes through NF-κB is critical for cell-cycle progression induced by HTLV-I Tax. Oncogene. 2008;27(42):5635-42.
- Zhou B, et al. Bortezomib suppresses self-renewal and leukemogenesis of leukemia stem cells by NF-κB-dependent inhibition of CDK6 in MLL-rearranged myeloid leukemia. J Cell Mol Med. 2021;25(6):3124-35.
- Yu M, et al. Baicalein increases cisplatin sensitivity of A549 lung adenocarcinoma cells via the PI3K/AKT/NF-κB pathway. Biomed Pharmacother. 2017;90:677-85.
- Petroni G, et al. IL-17A-secreting γδ T cells promote resistance to CDK4/CDK6 inhibitors in HR-positive/HER2-negative breast cancer via CX3CR1-positive macrophages. Nat Cancer. 2025;6(10):1656-75.
- Luo L, et al. Single-cell RNA sequencing identifies molecular biomarkers predicting late progression to CDK4/6 inhibition in patients with HR-positive/HER2-negative metastatic breast cancer. Mol Cancer. 2025;24(1):48.
- Komuro H, et al. Single-cell sequencing of CD8-positive tumor-infiltrating lymphocytes revealed the nature of exhausted T cells recognizing neoantigens and cancer/testis antigens in non-small cell lung cancer. J Immunother Cancer. 2023;11(8):e007180.
- Rafei H, et al. CREM is a regulatory checkpoint of CAR and IL-15 signalling in NK cells. Nature. 2025;643(8073):1076-86.
- Van Elsas MJ, et al. Immunotherapy-activated T cells recruit and skew late-stage activated M1-like macrophages that are critical for therapeutic efficacy. Cancer Cell. 2024;42(6):1032-50.e1010.
- Yang J, et al. STK11 coordinates IL-4 signaling with metabolic reprogramming to control M2 macrophage polarization and antitumor immunity. Sci Adv. 2025;11(39):eadx5495.