본 연구는 소아 폐렴 공공 전사체 데이터, 마우스 폐 단일 세포 RNA 시퀀싱, Paeonia 유래 화합물 스크리닝, 분자 도킹 및 분자 역학 시뮬레이션을 통합하여 호중구 관련 염증 표적을 식별하고, 향후 검증을 위한 카테킨의 예측 상호작용을 분석하였습니다.
이 논문에서
요약
초록
소아 폐렴은 흔히 과도한 염증 반응 및 면역 조절 장애를 동반하며, 이는 심각한 임상 결과로 이어질 수 있습니다. 카테킨(Catechin)은 여러 질병 환경에서 항염증 활성을 보였으나, 폐렴에서의 역할과 분자 기전은 여전히 불분명합니다. 소아 폐렴의 공공 bulk RNA-sequencing 데이터(GSE261482)와 실험적 폐렴 모델의 공공 마우스 폐 단일 세포 RNA-sequencing 데이터(GSE295484)를 가중 유전자 공발현 네트워크 분석, 차등 발현 분석, 세포 유형 주석 및 유전자 세트 풍부성 분석을 사용하여 분석하였습니다. 카테킨과 선정된 단백질 간의 상호작용은 분자 도킹 및 분자 역학 시뮬레이션을 통해 평가되었습니다. 폐렴 관련 특성과 연관된 핵심 유전자 모듈이 식별되었으며, 주로 염증 및 면역 관련 경로에 풍부한 18개의 후보 유전자가 스크리닝되었습니다. 단일 세포 분석 결과, 이러한 유전자들은 주로 호중구와 폐포 대식세포에서 풍부하게 나타났으며, 염증 조건에서 호중구의 비율이 증가함을 확인했습니다. MMP9, PYGL, GADD45A가 후보 유전자로 선정되었습니다. 도킹 및 역학 시뮬레이션은 카테킨과 선정된 단백질들 사이의 안정적인 예측 상호작용을 뒷받침했습니다. 카테킨은 호중구 관련 경로를 조절하고 핵심 면역 관련 단백질과 상호작용함으로써 폐렴 관련 염증 경로와 연관될 수 있습니다. 본 연구는 폐렴에서 카테킨 작용에 대한 시스템 수준의 관점을 제공하며, 향후 실험적 검증을 위한 잠재적 표적들을 제시합니다.
서론
폐렴은 소아에게 흔하며 잠재적으로 심각한 호흡기 질환으로, 주로 Mycoplasma pneumoniae와 같은 감염원에 의해 발생합니다. 이는 지역사회 획득성 폐렴의 주요 구성 요소이며, 과도한 염증 반응 및 면역 조절 장애로 인해 상당한 이환율과 관련이 있습니다1,2. 종양 괴사 인자-α (TNF-α) 및 인터루킨-6 (IL-6)를 포함한 염증성 사이토카인이 면역 세포 모집, 조직 손상 및 폐 기능 장애를 촉진함으로써 질병 진행에 결정적인 역할을 한다는 증거가 늘어나고 있습니다3. 항생제 치료의 발전에도 불구하고, 소아 폐렴에서 염증을 유발하는 분자적 기전은 여전히 완전히 이해되지 않은 상태입니다4.
플라보노이드는 항염증 및 항산화 특성으로 인해 상당한 주목을 받아 왔습니다5. 차와 식물 유래 식품에서 널리 발견되는 천연 폴리페놀인 카테킨은 다양한 질환 모델에서 산화 스트레스와 염증 반응을 완화하는 것으로 보고되었습니다6. 이전 연구들은 카테킨이 MAPK 및 NF-κB 경로를 포함한 전염증성 신호 전달 폭포를 억제하고 사이토카인 발현을 조절함으로써 염증과 대사 기능 장애를 완화할 수 있음을 입증했습니다7. 그러나 기존 연구의 대부분은 대사성 또는 심혈관 질환에 집중되어 있으며, 호흡기 염증성 질환, 특히 폐렴에서 카테킨의 역할은 여전히 충분히 연구되지 않은 상태입니다. 또한, 폐렴에서 카테킨 매개 보호 작용의 기저에 있는 분자 표적과 메커니즘은 아직 명확하지 않습니다.
본 연구의 목적은 폐렴에서 catechin의 잠재적인 분자적 메커니즘을 조사하는 것이었습니다. catechin이 면역 조절에 관여하는 주요 단백질 및 신호 전달 경로와 상호작용함으로써 염증 반응을 완화할 수 있다는 가설을 세웠습니다. 이 가설을 검증하기 위해 네트워크 약리학, 분자 도킹, 분자 역학 시뮬레이션 및 단일 세포 RNA 시퀀싱 분석을 통합하여 후보 유전자를 체계적으로 식별하고 catechin과의 상호작용을 평가하였습니다. 또한, 질병 진행 과정에서 호중구와 대식세포의 역할을 탐구하기 위해 면역 세포 분포와 유전자 발현 패턴을 추가로 분석하였습니다.
결과 분석 결과, catechin과 PYGL, MMP9, GADD45A를 포함한 선정된 단백질들 사이에 안정적인 예측 결합이 나타났으며, 분자 동역학 시뮬레이션 전반에 걸쳐 구조적 안정성이 유지되었습니다. 또한, 단일 세포 분석을 통해 염증 상태에서 특히 호중구를 비롯한 면역 세포 비율에 유의미한 변화가 있음이 밝혀졌습니다. 이러한 결과는 catechin이 면역 세포 기능 및 주요 신호 전달 경로와 관련된 항염증 메커니즘과 연관될 수 있음을 시사합니다. 본 연구는 폐렴에서 catechin과 연관된 잠재적 메커니즘에 대한 시스템 수준의 관점을 제공하며, 염증성 호흡기 질환 연구를 위한 후보 화합물로서 catechin의 추가적인 검증을 뒷받침합니다.
프로토콜
본 연구는 Gene Expression Omnibus 데이터베이스의 공개된 비식별 데이터셋에 대한 이차 분석을 수행하였습니다. 본 연구를 위해 새로운 인간 대상자 모집, 동물 실험 또는 임상 시료의 수집 및 생성은 이루어지지 않았습니다. 원본 데이터셋에 대한 윤리적 승인 및 고지된 동의는 원래의 데이터를 생성한 연구의 책임하에 수행되었습니다. 따라서 본 이차 분석을 위한 추가적인 윤리위원회 승인은 필요하지 않았습니다.
데이터 수집 및 전처리
벌크 RNA 시퀀싱(RNA-seq) 데이터는 Gene Expression Omnibus (GEO) 데이터셋 GSE2614828에서 확보하였다. 본 연구에 사용된 발현 행렬에는 소아 폐렴 샘플 139개와 건강한 대조군 샘플 38개를 포함하여 총 177개의 전혈 샘플이 포함되어 있었다. 이용 가능한 메타데이터에는 성별, 원인 분류, 수집 튜브, 배치 및 질병 상태가 포함되었다. 폐렴 샘플은 원래 데이터셋의 주석에 따라 확정적 세균성(DB), 확정적 바이러스성(DV), 추정 세균성(PB), 추정 바이러스성(PV) 또는 알 수 없음(U)으로 분류하였다.
단일 세포 RNA 시퀀싱(scRNA-seq) 데이터는 실험적 폐렴 모델의 C57BL/6 야생형 마우스 폐 조직에서 유래한 GEO 데이터셋 GSE2954849로부터 얻었습니다. 해당 데이터셋에는 상온 공기, PBS 또는 E. coli에 노출된 신생 마우스(PND05) 및 청소년기 마우스(PND12)가 포함되었으며, 흡인 후 48시간 또는 96시간에 수집되었습니다.
가중 유전자 공동발현 네트워크 분석 (Weighted gene co-expression network analysis, WGCNA)
공동발현 네트워크 구축을 위해, 먼저 발현 행렬에서 발현량이 낮은 유전자를 제거하는 필터링을 수행하였다. 저발현 유전자를 제거한 후, 중앙값 절대 편차 (median absolute deviation, MAD)를 이용하여 변동성을 평가하였다. MAD 값이 가장 높은 5,000개의 유전자를 선정하여 R에서 가중 유전자 공동발현 네트워크 분석 (WGCNA)을 진행하였다. R2> 0.8의 척도 없는 토폴로지 (scale-free topology) 기준을 충족하였기에, 소프트 임계값 전력 (soft-thresholding power)으로 15를 적용하였다. 이 임계값을 사용하여 가중 인접 행렬 (weighted adjacency matrix)을 구축하였으며, 이를 다시 토폴로지 중첩 행렬 (topological overlap matrix, TOM)로 변환하였다. 이후 TOM 기반의 계층적 클러스터링 트리로부터 유전자 모듈을 검출하였다. 폐렴 관련 특성과 연관된 모듈을 식별하기 위해, 모듈 고유유전자 (module eigengenes)를 계산하여 질병 상태 및 병인과의 상관관계를 테스트하였다.
차등 발현 분석
폐렴 그룹과 건강한 대조군 그룹을 limma R 패키지를 사용하여 비교함으로써 차등 발현 유전자를 식별하였다. 다중 테스트 보정은 Benjamini-Hochberg 방법을 사용하여 수행하였다. |log2 fold change| > 1 및 보정된 p-value < 0.05라는 두 가지 임계값을 모두 충족하는 경우에만 차등 발현 유전자로 유지하였다.
~의 확인 작약-유래 활성 화합물 및 표적 예측
Paeonia의 생리활성 화합물과 잠재적 생물학적 타겟을 체계적으로 규명하기 위해, 기설정된 네트워크 약리학 프레임워크에 따라 신뢰성과 포괄성을 보장하는 다중 데이터베이스 통합 전략을 사용하였다. 우선, 다음과 같은 활성 화합물을... 작약 전통 중의학 시스템 약리학 데이터베이스(TCMSP, https://tcmsp-e.com)와 ETCM 및 문헌 자료를 포함한 기타 공공 데이터베이스에서 추출하였습니다. 후보 생성 활성 성분을 식별하기 위해 경구 생체이용률(OB ≥ 30%) 및 약물 유사성(DL ≥ 0.18)을 포함한 약동학적 매개변수를 기반으로 화합물을 스크리닝하였습니다.
상보적인 리간드 기반 접근법을 사용하여 잠재적인 단백질 표적을 예측하였다. SwissTargetPrediction (http://www.swisstargetprediction.ch)을 통해 화합물 구조를 활성이 알려진 리간드와 비교하여 가능성 있는 인간 표적을 식별하였으며, 확률이 0.1 이상인 예측 결과만을 유지하였다. 표적 범위를 확장하기 위해 Similarity Ensemble Approach (SEA, http://sea.bkslab.org)를 사용하여 표준 표적 예측으로는 포착되지 않는 상호작용을 포함하여 단백질 가족 전체에 걸친 가능한 오프타겟 연관성을 스크리닝하였다. 리간드 기반 예측을 더욱 보완하기 위해 PharmMapper Server (http://lilab.ecust.edu.cn/pharmmapper/)를 활용하여 포괄적인 인간 단백질 데이터베이스에 대해 역 파마코포어 매핑을 수행하였으며, 정규화된 적합도 점수가 0.7 이상인 표적을 선정하였다. 또한, 표적 식별의 신뢰도를 높이기 위해 DrugBank 및 BindingDB를 포함한 공공 데이터베이스에서 실험적으로 검증된 화합물-표적 상호작용 데이터를 수집하였다. 이후 예측된 모든 표적은 UniProt 데이터베이스 (https://www.uniprot.org)를 사용하여 공식 유전자 기호로 표준화하였으며, 생물종은 “Homo sapiens”로 제한하였다. 데이터 정확성을 확보하기 위해 중복 항목은 제거하였다. 통합 표적 세트는 Paeonia에 대해 예측 및 검증된 모든 표적의 합집합으로 정의하였으며, 이는 해당 식물의 약리학적 효과에 대한 잠재적인 분자적 근거를 나타낸다. 카테킨이 Paeonia 유래 활성 화합물 중 하나로 확인되었고 항염증 활성이 잘 입증되어 있으므로, 이를 후속 분자 도킹 및 분자 역학 시뮬레이션을 위한 대표 화합물로 선정하였다.
기능적 풍부성 분석
clusterProfiler R 패키지를 사용하여 유전자 온톨로지(Gene Ontology, GO) 생물학적 과정 및 교토 유전자 및 게놈 백과사전(Kyoto Encyclopedia of Genes and Genomes, KEGG) 경로에 대한 기능적 풍부도 분석을 수행하였다. 거짓 발견율(false discovery rate, FDR)이 다음 값 미만인 경우 풍부한 항목으로 간주하였다. < 0.05.
단일 세포 RNA 시퀀싱 분석 및 다운스트림 분석
단일 세포 RNA 시퀀싱 데이터는 Seurat에서 처리되었습니다. 처리된 GSE295484 매트릭스를 다운스트림 분석에 사용하였으며, 임포트 후 추가적인 세포 수준의 필터링은 적용하지 않았습니다. 처리된 매트릭스에는 90,883개의 세포와 26,511개의 유전자가 포함되었습니다. 품질 관리 플롯은 세포당 검출된 유전자 수 200개 및 8,000개, 그리고 미토콘드리아 리드 비율 1.4%를 기준 임계값으로 사용하였습니다. 데이터는 정규화 및 스케일링을 거쳐 주성분 분석(PCA)을 수행하였습니다. 이후 세포 클러스터링을 실시하였으며, 차원 축소 공간에서 세포 집단을 시각화하기 위해 균일 매니폴드 근사 및 투영(UMAP)을 사용하였습니다. 세포 정체성은 표준 마커 유전자에 따라 할당되었습니다. 마커 유전자는 FindAllMarkers 함수를 사용하여 only.pos = TRUE, min.pct = 0.25, logfc.threshold = 0.25 조건으로 식별하였습니다.
단일 세포 수준에서 후보 유전자 세트의 활성을 평가하기 위해, AUCell R 패키지를 사용하여 AUCell 분석을 수행하였다. 미리 정의된 유전자 시그니처의 발현에 따라 세포 점수를 산출하였으며, 농축 패턴을 UMAP 플롯으로 시각화하였다. GSE295484의 경우, 흡인 후 48h 및 96h 시점에서 상온 공기, PBS 및 E. coli 군에 걸쳐 폐포 대식세포와 호중구를 포함한 면역 세포 집단의 비율을 계산하였다. 군 간의 차이는 비모수 통계 검정을 통해 평가하였다. 단일 세포 데이터 세트에서 호중구 마커 유전자를 식별하고, 이를 이전에 확인된 후보 유전자와 교차 분석하여 추가 분석을 위한 주요 호중구 관련 유전자를 도출하였다.
분자 도킹
분자 도킹은 AutoDock Vina를 사용하여 수행되었으며, 수용체 및 리간드 준비는 AutoDock Tools를 사용하여 진행되었습니다. 표적 단백질의 결정 구조는 Protein Data Bank (PDB)에서 확보하였으며, 여기에는 GADD45A (PDB ID: 2KG4), MMP9 (PDB ID: 6ESM) 및 PYGL (PDB ID: 3DDS)이 포함됩니다. 단백질 구조는 도킹 전에 물 분자와 공동 결정화된 리간드를 삭제하여 처리하였습니다. 그 후 극성 수소 원자를 추가하고 Gasteiger 전하를 할당하였습니다.
Catechin의 3차원 구조는 PubChem에서 가져와 AutoDock Tools로 준비하였다. 이후 AutoDock Vina를 사용하여 catechin을 각각의 표적 단백질에 도킹시키고, 예측된 결합 친화도와 상호작용 패턴을 평가하였다. 도킹 그리드 박스 매개변수는 다음과 같다: GADD45A-catechin, center_x = 0.131, center_y = -0.002, center_z = -0.018, size_x = 47.25, size_y = 47.25, size_z = 47.25; MMP9-catechin, center_x = -0.434, center_y = 43.036, center_z = 14.868, size_x = 47.25, size_y = 47.25, size_z = 47.25; PYGL-catechin, center_x = 88.408, center_y = -80.795, center_z = 105.959, size_x = 100.45, size_y = 100.45, size_z = 100.45.
분자 동역학 시뮬레이션
단백질 구성 요소에는 AMBER14SB 포스 필드를 사용하였다. 리간드 파라미터는 sobtop_1.0 (dev3.1)을 통해 GAFF2 포스 필드로 생성하였으며, RESP 전하를 할당하였다. 각 단백질-리간드 복합체를 정육면체 시뮬레이션 박스 내에서 용매화하기 위해 TIP3P 물을 사용하였다. Na⁺ 및 Cl⁻ 이온을 추가하여 시스템을 중성으로 만들고 0.15 M의 이온 농도를 달성하였다. 1 nm 컷오프의 particle mesh Ewald (PME) 방법을 사용하여 장거리 정전기 상호작용을 처리하였다. 결합 제약 조건은 LINCS 알고리즘을 사용하여 적용하였다. 입체 장애를 제거하기 위해 steepest-descent 및 conjugate-gradient 방법을 사용하여 에너지 최소화를 수행하였다.
평형화 후, Nosé–Hoover thermostat과 Parrinello–Rahman barostat로 제어되는 310 K 및 1 bar의 NPT 조건에서 생산 MD 시뮬레이션을 수행하였습니다. 각 시뮬레이션은 2 fs의 시간 단계로 100 ns 동안 진행되었습니다.
통계 분석
모든 통계 분석은 R 소프트웨어를 사용하여 수행되었습니다. 상관 분석은 적절한 경우 Pearson 또는 Spearman 방법을 사용하여 실시하였습니다. 그룹 간 비교는 Kruskal–Wallis 검사를 포함한 비모수 검정을 사용하여 수행하였습니다. p-value < 0.05를 통계적으로 유의한 것으로 간주하였습니다.
결과
WGCNA를 이용한 소아 폐렴 관련 주요 유전자 모듈의 식별
소아 폐렴과 관련된 유전자 모듈을 식별하기 위해, 폐렴 환자와 건강한 대조군의 전혈 전사체 데이터를 대상으로 WGCNA를 수행하였다. 샘플 클러스터링 분석 결과 뚜렷한 이상치가 발견되지 않아, 후속 분석을 위한 데이터 품질이 양호함을 확인하였다(그림 1A). PCA 분석 결과, 폐렴 그룹과 건강한 그룹 사이에 명확한 분리 경향이 나타나 질환 유무에 따라 전사체 프로파일이 뚜렷하게 다름을 시사하였다(그림 1B). 척도 없는 네트워크(scale-free network)를 구축하기 위해 유전자를 중앙값 절대 편차(median absolute deviation) 순으로 정렬하여 상위 5,000개 유전자를 선택하였으며, 상대적으로 낮은 평균 연결성을 유지하면서 척도 없는 토폴로지 적합도 지수(R2 > 0.8) 기준에 따라 소프트 임계값 전력(soft-thresholding power)을 15로 설정하였다(그림 1C). 이 임계값을 사용하여 계층적 클러스터링을 수행한 결과, 서로 다른 발현 패턴을 가진 여러 유전자 모듈이 식별되었다(그림 1D). 모듈-특성 관계 분석을 통해 여러 모듈이 임상적 표현형과 유의미한 상관관계가 있음을 확인하였다. 특히, 파란색 모듈은 질환 상태(폐렴 대 건강함)와 병인학적 분류 모두와 강한 상관관계를 보여, 질병 진행 및 숙주 반응에서 잠재적인 역할을 할 가능성을 시사하였다(그림 1E).
또한, blue 모듈 내에서 모듈 멤버십과 유전자 유의성 간의 산점도 분석 결과 강한 양의 상관관계(cor = 0.6, p = 2.1e−35)가 나타났으며, 이는 모듈 내에서 연결성이 높은 유전자들이 임상적 특성과도 강하게 연관되어 있음을 나타냅니다(그림 1F).
청색 모듈과 세균성 폐렴 원인과의 연관성
폐렴 원인별 유전자 발현 차이를 추가로 조사하기 위해 대조군(C), 확정적 세균성(DB), 확정적 바이러스성(DV), 가능성 있는 세균성(PB), 가능성 있는 바이러스성(PV), 그리고 원인 불명(U) 그룹을 포함한 다수의 임상 분류를 사용하여 WGCNA를 수행하였습니다. 모듈-특성 관계 분석 결과, 여러 모듈이 특정 원인 아형과 유의미한 상관관계를 보이는 것으로 나타났습니다. 특히, 청색 모듈은 DB 그룹과 가장 강한 양의 상관관계를 보여, 세균 감염에 특이적인 숙주 반응에 관여할 가능성이 있음을 시사하였습니다(그림 2A).
유전자 클러스터링 덴드로그램과 그에 따른 모듈 할당을 통해 모듈 구축의 견고함과 유전자 클러스터의 명확한 분리가 추가로 확인되었습니다 (그림 2B). 블루 모듈 내에서 모듈 멤버십과 유전자 유의성의 관계를 분석한 결과, 유의미한 양의 상관관계(cor = 0.41, p = 7.8e−14)가 나타났으며, 이는 해당 모듈 내에서 연결성이 높은 유전자들이 병인 형질과도 강하게 연관되어 있음을 시사합니다 (그림 2C).
또한, 서로 다른 병인 그룹 간의 모듈 고유유전자(eigengene) 발현을 비교한 결과, blue 모듈에서 유의미한 차이가 나타났습니다(Kruskal–Wallis test, p = 1.5e−13). 구체적으로, blue 모듈은 다른 병인 범주에 비해 세균성 폐렴 그룹, 특히 DB 하위 그룹에서 발현이 증가된 양상을 보였습니다(그림 2D).
통합 분석을 통해 확인된 소아 폐렴 관련 Paeonia 유래 화합물 관련 후보 유전자 18개
소아 폐렴과 관련된 후보 유전자 및 잠재적인 Paeonia 관련 표적을 확인하기 위해, 먼저 폐렴 환자와 건강한 대조군 간의 차등 발현 분석을 수행하였습니다. 이 기준을 사용하여 폐렴 샘플과 건강한 대조군 샘플 사이에서 상향 조절된 유전자 524개와 하향 조절된 유전자 586개를 포함하여 총 1,110개의 차등 발현 유전자(DEGs)를 확인하였습니다. 상향 조절된 DEG 524개는 부록 표 S1에 제공되어 있습니다(또한 그림 3A 참조). 핵심 유전자를 더욱 세분화하기 위해, 폐렴 관련 DEG를 DB 표현형 관련 유전자 및 Paeonia의 예측 표적 유전자와 교차 분석하였습니다. 이러한 통합 분석을 통해 18개의 중첩 유전자가 도출되었으며, 이는 질병 진행 및 Paeonia 관련 반응에서 이들이 잠재적인 역할을 할 수 있음을 시사합니다(그림 3B).
활성 성분 간의 관계를 시각화하기 위해 화합물-표적 상호작용 네트워크를 구축하였다. 작약 및 식별된 후보 유전자들을 통해 화합물과 표적 사이의 광범위한 연결성을 밝혔으며 (보충 표 S2 및 그림 3C). 이 18개 유전자의 생물학적 기능을 탐구하기 위해 기능적 농축 분석을 수행하였다. GO 생물학적 과정 농축 결과, 후보 유전자들은 주로 염증 반응 조절, 펩타이드 호르몬 반응, 활성 산소종 대사의 양성 조절, 제2형 인터페론 매개 신호 전달 조절을 포함한 면역 및 염증 기능과 연관된 것으로 나타났다(그림 3D). KEGG 분석 결과, 해당 유전자들이 IL-17 및 NF-κB와 같은 염증 및 면역 관련 경로에 농축되어 있음이 추가로 확인되었다.κB 신호 전달 경로뿐만 아니라 글루카곤 신호 전달 및 스테로이드 호르몬 생합성을 포함한 대사 및 내분비 관련 경로(그림 3D).
단일 세포 전사체 분석에서 호중구 및 폐포 대식세포 내 후보 유전자의 농축
실험적 폐렴 환경에서 후보 유전자의 세포 분포를 조사하기 위해, 마우스 폐 scRNA-seq 데이터셋 GSE295484를 분석하였다. 데이터 신뢰성을 평가하기 위해 품질 관리 분석을 수행하였다. 검출된 유전자 수, UMI 카운트, 미토콘드리아 및 리보솜 유전자의 비율 분포는 처리된 매트릭스 내에서 전반적으로 높은 품질의 단일 세포 데이터임을 나타냈다(그림 4A). 산점도는 품질 관리 시각화에 사용된 유전자 검출 및 미토콘드리아 함량의 참조 임계값을 보여주었다(그림 4B).
정규화 및 차원 축소 후, UMAP을 사용하여 세포를 클러스터링하고 시각화하였습니다. 호중구, 폐포 대식세포, 단핵구, 상피세포 및 기타 면역 및 기질 세포 유형을 포함한 뚜렷한 세포 집단이 확인되었으며, 이는 폐렴 발생 시 폐 미세환경의 세포 이질성을 보여줍니다 (그림 4C). 단일 세포 수준에서 18개 후보 유전자의 활성을 평가하기 위해 AUCell 분석을 수행하였습니다. 결과적으로, 해당 세포 집단에서 더 높은 AUC 점수가 나타남에 따라 유전자 시그니처가 주로 호중구와 폐포 대식세포에 농축되어 있음을 확인하였습니다 (그림 4D).
마우스 세균성 폐렴 모델에서 Paeonia 유래 화합물 타겟과 관련된 염증 유전자
마우스 실험적 폐렴 모델에서 면역 세포 역학을 추가로 조사하기 위해, 흡인 후 48시간 및 96시간 시점에서 상온 공기, PBS, E. coli 군의 폐포 대식세포와 호중구 비율을 분석하였다. 48시간째에 폐포 대식세포는 공기 및 PBS 조건에 비해 E. coli 감염 하에서 현저한 감소를 보인 반면, 호중구는 세포 비율이 크게 증가하였다(그림 5A). 96시간째에도 유사한 경향이 관찰되었으며, E. coli 자극에 반응하여 호중구 비율은 계속 높게 유지된 반면 폐포 대식세포는 상대적으로 낮은 수준을 보였다. 이러한 결과는 세균 감염 동안 호중구가 현저하게 증식함을 나타낸다. 호중구의 기능적 특성을 탐구하기 위해 호중구 마커 유전자를 식별하고 기능적 풍부도 분석을 수행하였다. KEGG 풍부도 분석 결과, 호중구 마커 유전자는 TNF, MAPK 및 C-type lectin receptor 경로를 포함한 염증 신호 전달과 연관이 있었다(그림 5B). GO 생물학적 과정 용어 또한 백혈구 이동, 백혈구 세포-세포 접착, 방어 반응의 양성 조절 및 세균 유래 분자에 대한 반응과 같은 면역 반응 기능에 집중되었다(그림 5B). 호중구 활성, 폐렴 및 Paeonia 타겟을 연결하는 핵심 유전자를 식별하기 위해, 호중구 마커 유전자를 이전에 식별된 18개의 후보 유전자와 교차 분석하였다. 이 분석을 통해 MMP9, PYGL, GADD45A의 세 가지 중첩 유전자가 도출되었다(보충 표 S3 및 그림 5C). 마지막으로, 단일 세포 유전자 발현 시각화 결과 이 세 유전자가 주로 호중구 집단에서 발현됨을 확인하였으며(그림 5D), 이는 호중구 매개 염증 반응에서 이들의 잠재적 역할을 더욱 뒷받침한다.
분자 도킹을 통한 카테킨과 선택된 단백질 간의 예측 결합 친화도
카테킨과 단백질 간의 잠재적 상호작용을 추가로 평가하기 위해, 선택된 단백질(MMP9, PYGL 및 GADD45A)과 Paeonia 유래 활성 화합물인 카테킨 사이에 분자 도킹 분석을 수행하였다. GADD45A, MMP9 및 PYGL의 결정 구조는 Protein Data Bank에서 얻었으며, 카테킨의 3D 구조는 PubChem 데이터베이스에서 검색하였다. 도킹 결과, 카테킨은 선택된 세 가지 단백질 모두의 부위에 결합할 수 있는 것으로 나타났으며, 결합 에너지는 GADD45A의 경우 −6.3 kcal/mol, MMP9의 경우 −7.6 kcal/mol, PYGL의 경우 −8.0 kcal/mol이었다(그림 6). 선택된 단백질 중 카테킨은 PYGL과 가장 강한 예측 결합 친화도를 보였으며, MMP9와 GADD45A가 그 뒤를 이었다. 이는 대사 관련 단백질과 우선적으로 상호작용할 가능성을 시사한다.
분자 수준에서 catechin은 각 단백질의 주요 아미노산 잔기와 다수의 수소 결합 및 소수성 상호작용을 형성했습니다. GADD45A의 경우, catechin은 GLN33 및 TRP135와 같은 잔기와 상호작용했습니다. MMP9에서는 GLN227, TYR248 및 HIS236을 포함한 잔기들과 안정적인 수소 결합이 관찰되었습니다. 마찬가지로 PYGL에서 catechin은 LYS554 및 ASN631과 같은 잔기와 다수의 수소 결합을 형성하여 결합 안정성에 기여했습니다. 수소 결합 외에도 상호작용 분석을 통해 반데르발스 힘과 π-관련 상호작용이 확인되었으며, 이는 예측된 리간드-단백질 복합체의 안정성을 높이는 다중 모드 결합 패턴을 나타냅니다. 종합적으로, 이러한 결과는 catechin이 MMP9, PYGL 및 GADD45A와 안정적인 예측 복합체를 형성할 수 있음을 시사합니다. 다만, 이러한 상호작용의 치료적 관련성은 추가적인 실험적 검증이 필요합니다.
카테킨과 선택된 단백질 간의 예측된 안정적 상호작용
분자 도킹을 통해 얻은 도킹 포즈를 바탕으로, 카테킨-단백질 복합체의 안정성을 추가로 평가하기 위해 100 ns 분자 역학 시뮬레이션을 수행하였다. RMSD 분석 결과, 세 가지 단백질-리간드 복합체 모두 시뮬레이션 기간 동안 평형 상태에 도달한 것으로 나타났다. 그중 PYGL–카테킨 및 MMP9–카테킨 복합체는 상대적으로 안정적인 RMSD 변동을 보였으며, GADD45A–카테킨 복합체는 약간 더 높은 변동을 보였으나 허용 가능한 범위 내에 머물렀다(그림 7A). Rg 분석에서는 모든 복합체가 시뮬레이션 전반에 걸쳐 구조적 조밀함을 안정적으로 유지했으며, 시간에 따른 변화가 최소한이었음을 보여주었다(그림 7B). 마찬가지로, SASA 분석 결과 모든 복합체에서 안정적인 노출 수준이 나타나 구조적 안정성을 더욱 뒷받침하였다(그림 7C). 수소 결합 분석을 통해 카테킨과 선택된 단백질들 사이에 지속적인 상호작용이 있음이 밝혀졌다. PYGL–카테킨 복합체는 MMP9 및 GADD45A에 비해 시간에 따라 더 많은 수의 수소 결합을 유지하였으며, 이는 더 강하고 안정적인 결합 상호작용이 이루어짐을 시사한다(그림 7D).
잔기 수준의 유연성은 RMSF를 사용하여 평가하였다. 결과에 따르면 대부분의 잔기는 낮은 변동성을 보였으며, 일부 영역에서만 더 높은 유연성이 나타났는데, 이는 리간드 결합이 단백질에 큰 구조적 불안정성을 유발하지 않았음을 나타낸다(그림 7E). 종합적으로, 이러한 결과는 catechin이 MMP9, PYGL 및 GADD45A와 안정적인 예측 복합체를 형성하며, 특히 PYGL–catechin 상호작용에서 가장 강한 안정성이 관찰됨을 시사한다. 이러한 결과는 catechin과 선택된 단백질들 사이의 안정적인 예측 상호작용을 뒷받침하며, 향후 실험적 검증을 위한 계산적 근거를 제공한다.
데이터 가용성:
본 연구에서는 공개적으로 이용 가능한 데이터셋을 분석하였습니다. 벌크 RNA-seq 데이터셋은 Gene Expression Omnibus (GEO)의 등록 번호 GSE261482 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE261482)에서 이용 가능하며, 마우스 폐 scRNA-seq 데이터셋은 등록 번호 GSE295484 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE295484)에서 이용 가능합니다. 본 논문에 사용된 처리된 결과물은 부록 표 S1, 부록 표 S2 및 부록 표 S3로 제공됩니다.
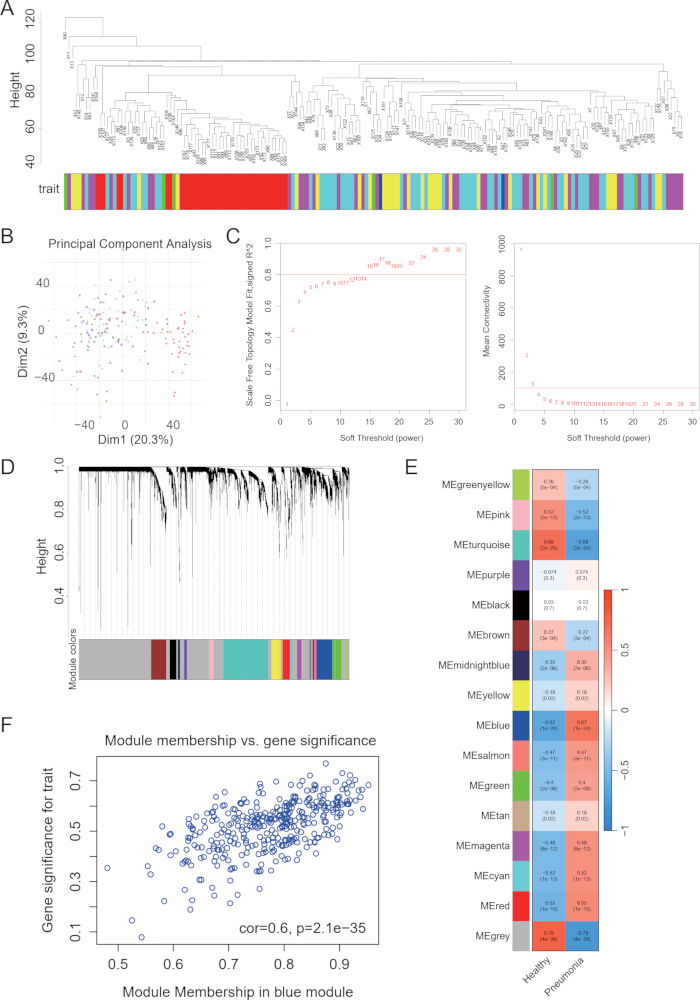
그림 1WGCNA 구축 및 질환 관련 모듈 식별 (A유전자 발현 프로파일을 기반으로 샘플 클러스터링을 수행하였으며, 이에 해당하는 형질 주석을 덴드로그램 하단에 표시하였습니다.B주성분 분석은 처음 두 개의 주성분을 따른 시료의 분포를 보여줍니다.C소프트 임계값 설정 전력(soft-thresholding power)은 척도 없는 네트워크 토폴로지 적합 지수(scale-free topology fit index)와 평균 연결성(mean connectivity)을 사용하여 평가되었습니다.D) 유전자는 위상적 중첩(topological overlap)에 따라 클러스터링되었으며, 모듈 할당은 색상으로 표시되었습니다. (E임상적 특성과 모듈 고유유전자(module eigengene) 간의 상관관계가 히트맵으로 표시되어 있습니다.F) 파란색 모듈 내 유전자들에 대한 모듈 멤버십(module membership)과 유전자 유의성(gene significance) 간의 관계를 나타낸 결과입니다. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
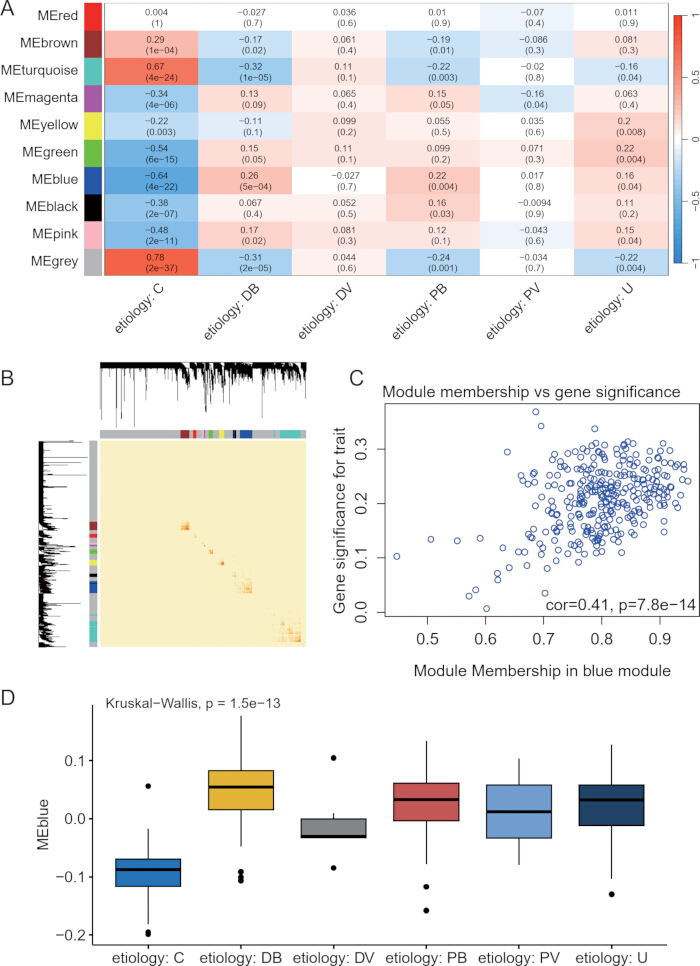
그림 2. 폐렴 원인균에 기반한 WGCNA 분석. (A) 대조군, 확정 세균성, 확정 바이러스성, 추정 세균성, 추정 바이러스성 및 불명 그룹을 포함한 원인군별 모듈 eigengene 상관관계를 보여준다. (B) 위상-중첩 기반 클러스터링 덴드로그램을 통해 유전자 모듈을 할당하였다. (C) 파란색 모듈에 대한 모듈 멤버십(module membership)과 유전자 유의성(gene significance)을 도식화하였다. (D) 원인군 간의 파란색 모듈 eigengene 발현량을 비교하였다. 약어: WGCNA = weighted gene co-expression network analysis; C = 대조군; DB = 확정 세균성; DV = 확정 바이러스성; PB = 추정 세균성; PV = 추정 바이러스성; U = 불명. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
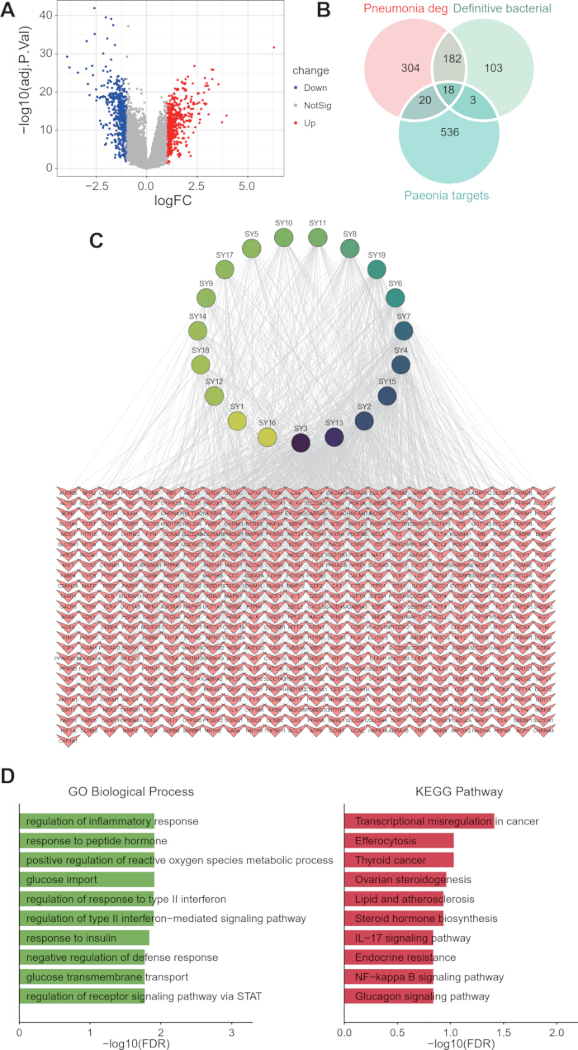
그림 3. 후보 유전자의 식별 및 기능 분석. (A) 폐렴 샘플과 대조군 샘플 간의 차별 발현 유전자를 나타내는 화산 플롯. (B) 폐렴 DEG, 확정적 세균 관련 유전자, 그리고 Paeonia 표적 유전자 간의 중첩을 나타내는 벤 다이어그램. (C) Paeonia의 활성 성분과 후보 유전자 간의 화합물-표적 상호작용 네트워크. (D) 중첩 유전자에 대한 유전자 온톨로지 생물학적 과정 농축(왼쪽) 및 KEGG 경로 농축(오른쪽)을 나타내는 막대 그래프. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
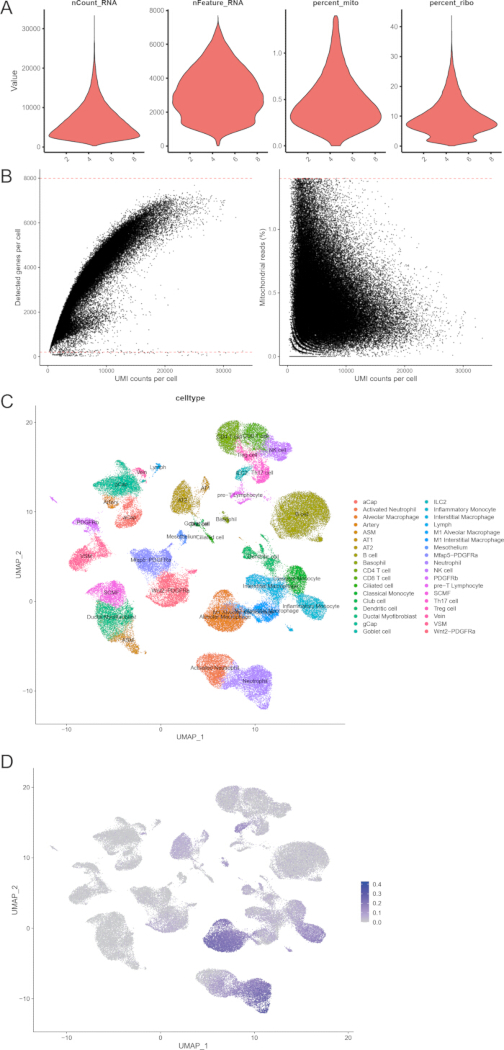
그림 4. 폐렴의 단일 세포 전사체 분석. (A) nCount_RNA, nFeature_RNA, 미토콘드리아 유전자 비율 및 리보솜 유전자 비율을 포함한 품질 관리 지표를 요약한 바이올린 도표. (B) UMI 카운트, 세포당 검출된 유전자 수 및 미토콘드리아 유전자 비율 간의 관계를 보여주는 산점도. (C) 세포 유형별로 주석이 달린 세포 클러스터의 UMAP 시각화. (D) 단일 세포 전반에 걸친 후보 유전자 시그니처의 AUCell 점수를 보여주는 UMAP 도표. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
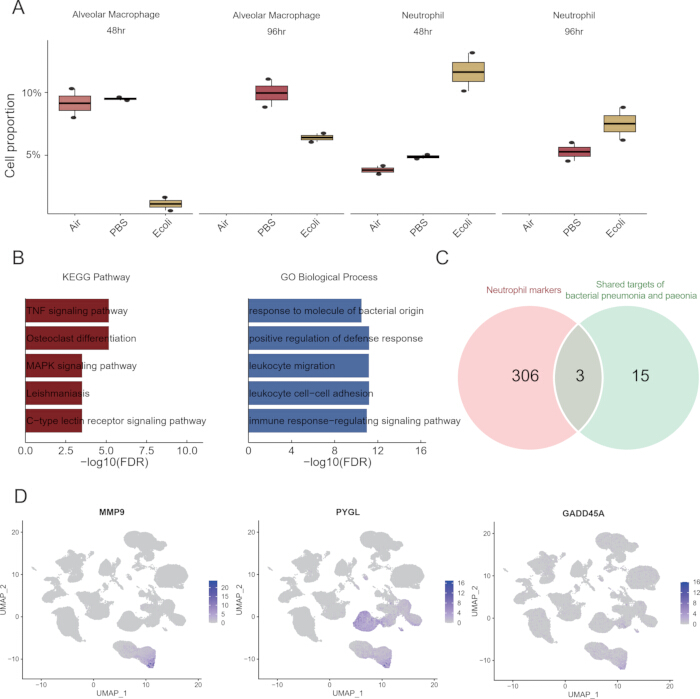
그림 5. 호중구 역학 및 핵심 유전자의 확인. (A) 48 h 및 96 h에서 서로 다른 조건(공기, PBS, 및 E. coli)에 따른 폐포 대식세포와 호중구의 세포 비율을 나타내는 박스 플롯. (B) 호중구 마커 유전자에 대한 KEGG 경로 농축(왼쪽) 및 GO 생물학적 과정 농축(오른쪽)을 나타내는 막대 그래프. (C) 호중구 마커 유전자와 세균성 폐렴 및 Paeonia의 공통 타겟 간의 중첩을 보여주는 벤 다이어그램. (D) 세포군 전체에서 MMP9, PYGL, 및 GADD45A의 발현 패턴을 보여주는 UMAP 플롯. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
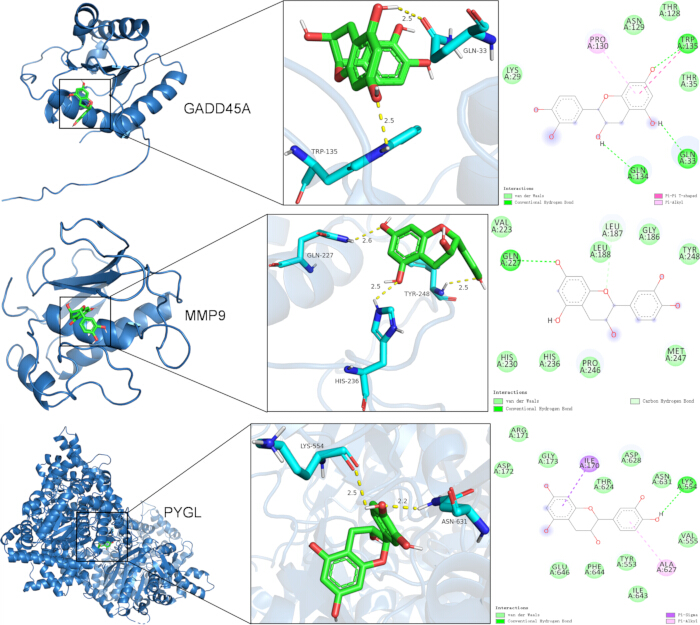
그림 6. 선택된 단백질과 catechin의 분자 도킹. GADD45A (위), MMP9 (가운데), 그리고 PYGL (아래)에 catechin이 결합된 단백질-리간드 복합체의 3차원 구조. 확대된 패널은 결합 부위와 주요 아미노산 잔기와의 접촉을 보여준다. 2차원 도식은 catechin과 선택된 단백질 사이의 수소 결합 및 기타 상호작용을 나타낸다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
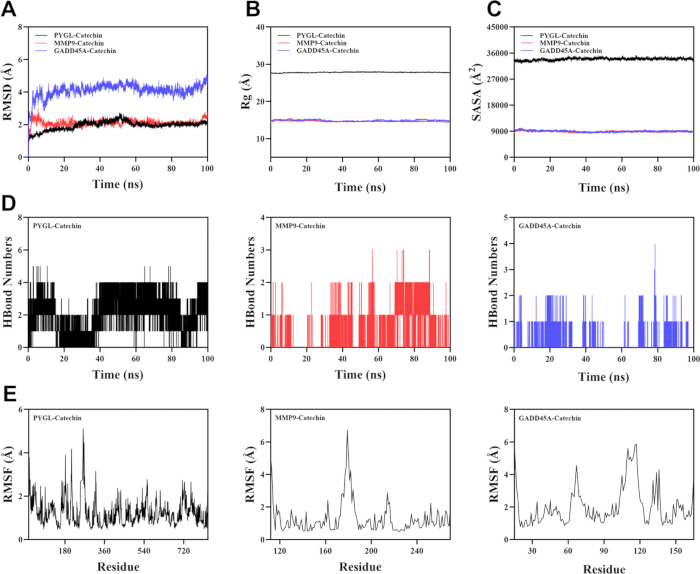
그림 7. 단백질-리간드 복합체의 분자 동역학 시뮬레이션. (A) 시뮬레이션 동안 복합체의 제곱 평균 제곱근 편차. (B) 시간에 따른 회전 반경 변화. (C) 시뮬레이션 동안의 용매 접근 가능 표면적. (D) 시간에 따른 catechin과 표적 단백질 사이의 수소 결합 수. (E) 각 복합체 내 단백질 잔기의 제곱 평균 제곱근 변동. 약어: RMSD = root mean square deviation; Rg = radius of gyration; SASA = solvent-accessible surface area; RMSF = root mean square fluctuation. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
보충 표 S1. 건강한 대조군 샘플 대비 소아 폐렴에서 상향 조절된 차등 발현 유전자; 유전자 기호, log2 fold change, P-값, 보정된 P-값 및 관련 limma 통계량 포함. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 S2. 네트워크 분석에 사용된 Paeonia 화합물-타겟 상호작용 표로, 화합물 식별자, 화합물 이름 및 관련 타겟 유전자가 포함되어 있습니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 S3. P-값, 평균 log2 배수 변화, 발현 백분율, 보정 P-값, 세포 클러스터 주석 및 유전자 기호를 포함하는 GSE295484의 단일 세포 마커 유전자 표. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
폐렴은 영유아 및 어린 아이들에게 발생하는 질병과 사망의 주요한 전 세계적 원인이며, 상당한 공중 보건 부담을 초래합니다1. 소아 폐렴의 병태생리는 복잡하며, 과도한 염증 반응, 산화 스트레스, 그리고 면역 및 대사 경로의 조절 장애를 포함한 여러 상호 연결된 과정이 관여합니다2,10,11. 이전 연구들은 특히 호중구와 대식세포와 같은 선천 면역 세포의 조절되지 않은 활성화가 전염증성 사이토카인, 단백질 분해 효소 및 활성 산소종(ROS)의 방출을 통해 폐 조직 손상에 기여한다는 점을 시사해 왔습니다12. 항균 및 보조 요법의 발전에도 불구하고, 이러한 근본적인 분자 기전을 표적으로 하는 효과적인 전략은 여전히 제한적입니다. 따라서 염증을 조절하고 면역 항상성을 회복시킬 수 있는 새로운 치료제를 발굴하는 것이 매우 중요합니다.
피토케미컬, 특히 카테킨은 잘 입증된 항염증, 항산화 및 면역 조절 특성으로 인해 점점 더 많은 관심을 받고 있습니다13,14,15. 하지만 폐렴에서 카테킨이 보호 효과를 나타내는 정확한 분자적 기전은 여전히 상당 부분 불분명합니다. 본 연구에서는 전사체학, 단일 세포 RNA 시퀀싱, 분자 도킹 및 분자 동역학 시뮬레이션을 결합한 통합적 접근법을 사용하여 소아 폐렴에서 카테킨과 관련된 잠재적 기전을 체계적으로 탐구하였습니다.
초기 가설과 일치하게, 결과는 WGCNA로 식별된 blue 모듈이 질병 상태 및 병인 분류 모두와 유의미하게 연관되어 있음을 보여주었으며, 이는 이 모듈이 소아 폐렴에 관여하는 핵심 전사 프로그램임을 시사합니다. 차등 발현 분석과 Paeonia 표적 예측을 추가로 통합한 결과 18개의 중첩 유전자가 발견되었으며, 이들은 염증 반응, 활성 산소종 대사 및 제2형 인터페론 신호 전달을 포함한 면역 관련 경로에 농축되어 있었습니다16,17. 이러한 발견은 조절 장애가 발생한 면역 반응과 산화 스트레스가 질병 진행의 중심 동력이라는 견해를 더욱 뒷받침합니다.
단일 세포 RNA 시퀀싱 분석 결과, 후보 유전자 세트가 주로 호중구와 폐포 대식세포에서 농축되어 있음이 밝혀졌으며, 이는 폐렴 진행 과정에서 선천 면역 세포의 핵심적인 역할을 강조합니다. E. coli 자극 하에서 호중구의 비율은 특히 48 h 및 96 h에서 유의하게 증가하였으며, 이는 급성 염증 동안 지속적인 활성화가 일어남을 나타냅니다. 이는 염증 매개체 및 ROS를 통해 병원균 제거와 조직 손상이라는 두 가지 역할을 수행하는 호중구의 특성과 일치합니다18. 추가 분석을 통해 면역 반응, 대사 조절 및 세포 스트레스 사이의 잠재적 연결 고리로서 MMP9, PYGL, GADD45A라는 세 가지 핵심 유전자를 확인했습니다. MMP9는 세포외 기질 리모델링 및 염증성 침윤에 관여하고19, GADD45A는 스트레스 및 면역 반응을 조절하는 반면, PYGL은 면역 활성화 과정에서 대사 재프로그래밍의 역할을 시사합니다20,21. 분자 도킹 및 동역학 시뮬레이션 결과, 유리한 결합 에너지와 안정적인 RMSD, Rg 및 SASA 프로파일, 그리고 지속적인 수소 결합과 낮은 RMSF 값에 근거하여 카테킨이 선택된 단백질들에 안정적으로 결합할 것으로 예측되었습니다. 이러한 결과는 카테킨이 이러한 염증 및 대사 표적들과 연관될 수 있음을 시사하나, 직접적인 조절 효과에 대해서는 추가적인 실험적 검증이 필요합니다22.
카테킨은 항염증 효과 외에도 산화 스트레스와 대사 균형을 조절함으로써 보호 역할을 수행할 수 있습니다. ROS 관련 경로의 농축은 카테킨이 항산화 능력을 강화하여 산화적 손상을 완화할 수 있음을 시사하며, 이는 카테킨의 항산화 특성에 관한 이전 보고들과 일치합니다. 또한, PYGL과 같은 대사 효소의 관여는 염증성 질환의 새로운 개념인 면역대사 조절에서 카테킨의 잠재적 역할을 강조합니다.
본 연구의 몇 가지 제한점을 인정해야 한다. 첫째, 본 연구는 주로 공개된 전사체 데이터셋과 계산 분석을 기반으로 하였으며, 예측된 메커니즘은 아직 실험적으로 검증되지 않았다. 분자 도킹 및 분자 역학 시뮬레이션을 통해 catechin과 후보 표적 단백질 사이의 안정적인 상호작용이 시사되었으나, 이러한 결과가 기능적 억제, 활성화 또는 치료 효능을 입증하는 것은 아니다. MMP9, PYGL 및 GADD45A에 대한 catechin의 조절 효과를 검증하고 폐렴에서의 치료적 관련성을 결정하기 위해서는 추가적인 생화학적 분석, 세포 실험 및 in vivo 연구가 필요하다. 둘째, 소아 폐렴 데이터셋에서 사용 가능한 임상 정보가 제한적이었다. GSE261482 데이터셋은 소아 폐렴 환자와 건강한 대조군의 전혈 전사체 데이터와 함께 성별, 원인 분류, 채취 튜브, 배치 및 질환 상태를 포함한 메타데이터를 제공하였다.
하지만 개별 연령, 폐렴 중증도, 샘플링 당시의 치료 상태 및 기타 질병 경과 정보를 포함한 상세한 임상 변수는 본 연구에 사용된 GEO 메타데이터에서 완전히 제공되지 않았습니다. 따라서 임상적 중증도, 치료 단계 또는 연령 하위 그룹에 따른 추가적인 층화 분석을 수행할 수 없었습니다. 셋째, 벌크 RNA-seq 및 단일 세포 RNA-seq 데이터 세트는 서로 다른 생물학적 맥락에서 유도되었습니다. GSE261482는 소아 환자의 전혈 샘플로 생성된 반면, GSE295484는 실험적 폐렴 모델의 C57BL/6 야생형 마우스 폐 조직으로 생성되었습니다. 따라서 단일 세포 분석 결과는 인간 소아 폐렴에서의 직접적인 검증이라기보다, 염증 세포 집단 및 후보 유전자 분포에 대한 보조적인 세포 맥락 증거로 해석되어야 합니다. 또한, E. coli로 유도된 마우스 폐렴 모델은 세균성, 바이러스성, 세균성 추정, 바이러스성 추정 및 원인 불명 사례를 포함한 소아 폐렴의 이질적인 병인을 완전히 대변하지 못합니다.
마지막으로, MMP9, PYGL 및 GADD45A의 선정은 통합 생물정보학적 스크리닝과 알려진 생물학적 관련성을 기반으로 하였으나, 호중구 관련 염증 및 카테킨 매개 조절에서의 정확한 역할은 확인이 필요합니다. 이러한 발견을 검증하고 카테킨의 중개 연구 잠재력을 규명하기 위해서는 소아 임상 코호트, 인간 단일 세포 데이터셋, 표적 특이적 기능 분석 및 실험적 폐렴 모델을 이용한 향후 연구가 필요합니다.
요약하자면, 본 연구는 카테킨이 폐렴에서 호중구 관련 염증 반응 및 면역 조절, 산화 스트레스, 대사 경로에 관여하는 특정 유전자들과 연관될 수 있음을 시사합니다. 벌크 RNA 시퀀싱, 단일 세포 RNA 시퀀싱, 분자 도킹 및 분자 동역학 시뮬레이션의 통합 분석을 통해, 본 연구는 질환 관련 유전자 모듈을 식별하였으며 카테킨 도킹 및 시뮬레이션 분석을 위해 MMP9, PYGL 및 GADD45A를 선정하였습니다. 호중구와 폐포 대식세포에서 후보 유전자들이 풍부하게 나타난 점과 카테킨과 선정된 단백질 사이에 관찰된 안정적인 예측 상호작용은 추가적인 실험적 검증을 위한 잠재적 메커니즘을 뒷받침합니다. 종합적으로, 이러한 결과는 폐렴에서 카테킨 관련 잠재적 메커니즘에 대한 시스템 수준의 관점을 제공하지만, 이러한 관찰 결과를 검증하고 치료적 관련성을 명확히 하기 위해서는 추가적인 실험 및 임상 연구가 필요합니다.
공개 사항
저자들은 선언할 이해관계 충돌이 없습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| AMBER14SB 포스 필드 유형: 포스 필드 | 분자 동역학 시뮬레이션을 위한 단백질 포스 필드 | ||
| AUCell R 패키지 유형: R 패키지 | 단일 세포 유전자 세트 활성 점수 산출 | ||
| AutoDock Tools 유형: 소프트웨어 | 수용체 및 리간드 준비 | ||
| AutoDock Vina 유형: 소프트웨어 | 분자 도킹 | ||
| BindingDB 유형: 데이터베이스 | BindingDB | 실험적으로 검증된 화합물-표적 상호작용; 원고에 URL/버전이 제공되지 않음 | |
| clusterProfiler R 패키지 유형: R 패키지 | GO 및 KEGG 농축 분석 | ||
| DrugBank 유형: 데이터베이스 | DrugBank | 실험적으로 검증된 화합물-표적 상호작용; 원고에 URL/버전이 제공되지 않음 | |
| ETCM 데이터베이스 유형: 데이터베이스 | ETCM | 작약 활성 화합물 스크리닝; 원고에 URL/버전 제공되지 않음 | |
| GAFF2 포스 필드 유형: 포스 필드(Force field) | 분자 동역학 시뮬레이션을 위한 리간드 포스 필드 | ||
| GROMACS 2022 유형: 소프트웨어 | GROMACS | 분자 동역학 시뮬레이션 | |
| GSE261482 유형: 공개 벌크 RNA-seq 데이터셋 | 유전자 발현 옴니버스 (Gene Expression Omnibus, GEO) | **GEO 데이터 세트: GSE261482** **제목:** 인간 유도만능줄기세포 유래 심근세포의 성숙도를 높이기 위한 3D 바이오프린팅 기반 심장 조직 공학 플랫폼 **요약:** 본 연구에서는 인간 유도만능줄기세포(hiPSC) 유래 심근세포(CMs)의 구조적 및 기능적 성숙도를 향상시키기 위해 3D 바이오프린팅 기술을 이용한 심장 조직 공학 플랫폼을 개발하였습니다. 세포외 기질(ECM)의 조성과 강도를 최적화하고, 기계적 자극과 전기적 자극을 결합하여 성인 심장 조직의 특성에 더 가까운 심근세포의 표현형을 유도하였습니다. 전사체 분석(Transcriptome analysis)을 통해 성숙 관련 유전자 발현의 증가와 태아기 유전자 발현의 감소를 확인하였으며, 이는 본 플랫폼이 심혈관 질환 모델링 및 약물 스크리닝을 위한 고도화된 인비트로(in vitro) 모델로 활용될 수 있음을 시사합니다. **샘플 정보:** * **개체:** *Homo sapiens* (인간) * **조직:** 심장 (Heart) * **세포 유형:** 인간 유도만능줄기세포 유래 심근세포 (hiPSC-CMs) * **실험군:** 3D 바이오프린팅 심장 조직 (3D Bioprinted Cardiac Tissue) * **대조군:** 2D 배양 심근세포 (2D Cultured CMs) **데이터 유형:** * **플랫폼:** Illumina NovaSeq 6000 * **분석법:** RNA-Seq (전사체 분석) * **데이터 형식:** FASTQ, Counts matrix **핵심어:** 3D 바이오프린팅, 인간 유도만능줄기세포 유래 심근세포, 심장 조직 공학, 세포 성숙, RNA-Seq, 조직 모델링 | 소아 폐렴 및 건강 대조군 전혈 발현 데이터 |
| GSE295484 유형: 공개 scRNA-seq 데이터셋 | 유전자 발현 옴니버스 (Gene Expression Omnibus, GEO) | **샘플 정보** **요약** 본 연구는 식물성 에스트로겐(phytoestrogens)이 인간 자궁내막 세포의 전사체에 미치는 영향을 조사하였습니다. 특히, 대두 이소플라본(soy isoflavones)인 제니스테인(genistein)과 다이제인(daidzein)이 에스트로겐 수용체 알파(ER$\alpha$) 및 베타(ER$\beta$)의 발현과 하위 신호 전달 경로에 미치는 영향을 분석하였습니다. **실험 설계** 본 실험은 대조군과 서로 다른 농도의 제니스테인 및 다이제인으로 처리한 인간 자궁내막 세포주를 포함하는 대조 실험 설계로 진행되었습니다. RNA-Seq을 통해 전사체 프로파일을 분석하여 유전자 발현의 변화를 측정하였습니다. **샘플 및 처리 상세 내용** - **세포주:** 인간 자궁내막 상피 세포 (Human endometrial epithelial cells) - **처리 물질:** 제니스테인(Genistein), 다이제인(Daidzein) - **처리 조건:** 농도별 및 시간별 처리 (dose- and time-dependent treatment) - **분석 방법:** 전체 RNA 시퀀싱 (Whole transcriptome RNA-Seq) **데이터 세트 정보** - **GEO 액세션 번호:** GSE295484 - **플랫폼:** Illumina HiSeq 2500 (또는 해당 시퀀싱 플랫폼) - **데이터 유형:** 발현 행렬 (Expression matrix), 가공되지 않은 서열 데이터 (Raw sequencing reads) **키워드** 자궁내막, 식물성 에스트로겐, 제니스테인, 다이제인, 전사체 분석, RNA-Seq, 에스트로겐 수용체 | 실험적 폐렴 모델의 마우스 폐 단일 세포 RNA 시퀀싱 데이터 |
| limma R 패키지 유형: R 패키지 | 차등 발현 분석 | ||
| PharmMapper 서버 유형: 데이터베이스/도구 | PharmMapper | http://lilab.ecust.edu.cn/pharmmapper/ | 역약리단 mapping (Reverse pharmacophore mapping) |
| 단백질 구조 은행 (Protein Data Bank, PDB) 유형: 데이터베이스 | 단백질 구조 데이터뱅크 | GADD45A (2KG4), MMP9 (6ESM) 및 PYGL (3DDS)의 단백질 구조 | |
| PubChem 데이터베이스 유형: 데이터베이스 | PubChem | 카테킨의 3차원 구조 | |
| R 소프트웨어 유형: 소프트웨어 | R 프로젝트 | 통계 분석 | |
| Seurat R 패키지 유형: R 패키지 | 단일 세포 RNA 시퀀싱 품질 관리, 정규화, 클러스터링, UMAP 시각화 및 세포 주석 달기 | ||
| 유사성 앙상블 접근법 (Similarity Ensemble Approach, SEA) 유형: 데이터베이스/도구 | SEA | http://sea.bkslab.org | 잠재적 오프타겟 상호작용 예측 |
| sobtop_1.0 (dev3.1) 유형: 소프트웨어 | 리간드 파라미터 생성 | ||
| SwissTargetPrediction 유형: 데이터베이스/툴 | SwissTargetPrediction | http://www.swisstargetprediction.ch | 화합물 표적 예측 |
| TIP3P 물 모델 유형: 물 모델 | 단백질-리간드 복합체의 용매화 | ||
| 전통 중의학 시스템 약리학 데이터베이스 (TCMSP) 유형: 데이터베이스 | TCMSP | https://tcmsp-e.com | 작약 활성 화합물 스크리닝 |
| UniProt 데이터베이스 유형: 데이터베이스 | UniProt | https://www.uniprot.org | 유전자 기호 표준화 |
| WGCNA R 패키지 유형: R 패키지 | 가중 유전자 공발현 네트워크 분석 |
참고문헌
- Chen L, Chen Y, Huang J, Zhang J. LncRNA LINC00707 serves as a sponge of miR-382-5p to alleviate lipopolysaccharide (LPS)-induced WI-38 cell injury through upregulating NKAP in infantile pneumonia. Autoimmunity. 2022;55(5):328-38.
- Li S et al. miRNA-302e attenuates inflammation in infantile pneumonia through the RelA/BRD4/NF-κB signaling pathway. Int J Mol Med. 2019;44(1):47-56.
- Kennedy II DE et al. Contribution of Puma to inflammatory resolution during early pneumococcal pneumonia. Front Cell Infect Microbiol. 2022;12:886901.
- Wang C et al. Suppressing neutrophil itaconate production attenuates Mycoplasma pneumoniae pneumonia. PLoS Pathog. 2024;20(11):e1012614.
- Shen N et al. Plant flavonoids: classification, distribution, biosynthesis, and antioxidant activity. Food Chem. 2022;383:132531.
- Peng X, McClements DJ, Liu X, Liu F. EGCG-based nanoparticles: synthesis, properties, and applications. Crit Rev Food Sci Nutr. 2025;65(12):2177-98.
- Li T et al. Synergistic anti-inflammatory effects of quercetin and catechin via inhibiting activation of TLR4-MyD88-mediated NF-κB and MAPK signaling pathways. Phytother Res. 2019;33(3):756-67.
- Viz-Lasheras S et al. A diagnostic host-specific transcriptome response for Mycoplasma pneumoniae pneumonia to guide pediatric patient treatment. Nat Commun. 2025;16(1):673.
- Michki SN et al. Age-dependent immune responses and resident cell dynamics in young mice following pneumonia. iScience. 2026;29(1):114219.
- Jin M et al. Catechin-functionalized cationic lipopolymer based multicomponent nanomicelles for lung-targeting delivery. Adv Mater. 2024;36(17):e2302985.
- Shin-Ya M et al. Effects of tea, catechins and catechin derivatives on Omicron subvariants of SARS-CoV-2. Sci Rep. 2023;13(1):16577.
- Zheng Q, Li J, Yang L. Systematic investigation of catechin/cyclodextrin encapsulated polymeric nanospheres for the treatment and nursing care of pediatric pneumonia-causing human pathogens. Microb Pathog. 2025;205:107524.
- Zhang Y et al. Anti-inflammatory effect of chlorogenic acid in Klebsiella pneumoniae-induced pneumonia by inactivating the p38MAPK pathway. Int J Med Microbiol. 2023;313(2):151576.
- Gleeson K, Reynolds HY. Life-threatening pneumonia. Clin Chest Med. 1994;15(3):581-602.
- Ross SM. Resveratrol: the anti-inflammatory effects of a phytochemical compound on pneumonia, respiratory syncytial virus, and severe acute respiratory syndrome (SARS-CoV-2). Holist Nurs Pract. 2023;37(2):110-2.
- Hu H et al. Hybrid biomimetic membrane coated particles-mediated bacterial ferroptosis for acute MRSA pneumonia. ACS Nano. 2023;17(12):11692-712.
- Dong L et al. A ROS-responsive nanoprodrug-engineered phage biotherapy for precision treatment of multidrug-resistant Gram-negative bacterial pneumonia. J Control Release. 2025;382:113708.
- Wiegman CH et al. Oxidative stress in ozone-induced chronic lung inflammation and emphysema: a facet of chronic obstructive pulmonary disease. Front Immunol. 2020;11:1957.
- Jiang T et al. Dual role of Baimao-Longdan-Congrong-Fang in inhibiting Staphylococcus aureus virulence factors and regulating TNF-α/TNFR1/NF-κB/MMP9 axis. Phytomedicine. 2025;139:156477.
- Zhang H et al. The attenuated Mycoplasma bovis strain promotes apoptosis of bovine macrophages by upregulation of CHOP expression. Front Microbiol. 2022;13:925209.
- Borella R et al. Metabolic reprograming shapes neutrophil functions in severe COVID-19. Eur J Immunol. 2022;52(3):484-502.
- Xu Y et al. Exosomal miR-155-5p drives widespread macrophage M1 polarization in hypervirulent Klebsiella pneumoniae-induced acute lung injury via the MSK1/p38-MAPK axis. Cell Mol Biol Lett. 2023;28(1):92.