본 연구는 만성 폐쇄성 폐질환(COPD)의 잠재적 진단 바이오마커와 조절 네트워크를 식별하기 위해 전사체학, 머신러닝 및 면역 침윤 분석을 통합한 재현 가능한 생물정보학 파이프라인을 제시합니다.
연구 논문
진단 바이오마커로서의 UPP1: COPD의 통합 생물정보학 및 면역 침윤 분석을 통한 통찰
* These authors contributed equally
이 논문에서
요약
초록
COPD는 지속적인 기류 제한과 만성 염증을 특징으로 하는 진행성 호흡기 질환이지만, 그 발병 기전에서 N4-acetylcytidine (ac4C) RNA 수식의 역할은 여전히 상당 부분 규명되지 않은 상태입니다. 본 연구는 공개된 데이터베이스로부터 ac4C 관련 유전자(ac4C-RGs)를 체계적으로 스크리닝하고 COPD에서의 조절 네트워크를 조사함으로써, 특정 유전자와 ac4C 수식 간의 직접적인 조절 관계를 가정하지 않고 추가적인 기전 연구를 위한 잠재적 바이오마커를 식별하는 것을 목표로 하였습니다. 전사체 프로파일링을 통해 차등 발현 유전자(DEGs)를 식별하였으며, 가중 유전자 공발현 네트워크 분석(WGCNA)을 적용하여 핵심 공발현 모듈을 찾아냈습니다. DEGs, 유의미한 모듈 및 ac4C-RGs 간의 교차 분석을 수행하였습니다. 핵심 유전자는 LASSO 회귀, XGBoost 및 랜덤 포레스트 알고리즘을 사용하여 스크리닝하였으며, 이어서 로지스틱 회귀 기반의 진단 모델을 구축하였습니다. 모델 성능은 수신자 조작 특성(ROC) 곡선 분석, 95% 신뢰 구간을 포함한 곡선 아래 면적(AUC), 보정 곡선 평가 및 결정 곡선 분석(DCA)을 통해 평가되었습니다. 총 160개의 중복 유전자가 식별되었으며, 6개의 허브 유전자(PTRF, PRKCDBP, UPP1, TOR3A, FAM168B, B4GALT2)가 세 가지 머신러닝 알고리즘 모두에 의해 일관되게 선택되었습니다. 진단 모델은 훈련 세트, 내부 테스트 세트, 외부 검증 세트에서 각각 0.766, 0.759, 0.723의 AUC를 나타내며 우수한 판별 성능을 보였습니다. 조절 네트워크 분석을 통해 잠재적인 ceRNA 축과 전사 인자 상호작용을 제시하였으며, 면역 침윤 프로파일링을 통해 핵심 유전자와 여러 면역 세포 서브셋 간의 유의미한 상관관계를 확인하였습니다. 약물-유전자 상호작용 분석 및 분자 도킹 결과, fluorouracil, capecitabine 및 5-benzylacyclouridine이 UPP1과 양호한 예측 결합 친화도를 보일 수 있음을 나타냈습니다. 결론적으로, PTRF, PRKCDBP, UPP1, TOR3A, FAM168B 및 B4GALT2가 COPD의 잠재적인 ac4C 관련 바이오마커로 식별되었으며, 이들은 면역 및 대사 조절에 관여할 가능성이 있어 향후 기능적 연구 및 치료적 탐색을 위한 기초를 제공합니다.
서론
COPD는 폐포 및 기도 구조의 이상으로 인해 진행성 기류 제한이 나타나는 만성적이고 이질적인 호흡기 질환입니다1,2. 프로테아제-항프로테아제 불균형, 산화 스트레스, 만성 염증 및 세포 노화는 COPD의 핵심 병태생리학적 기전을 구성하며, 이는 폐 조직의 구조적 파괴와 기능적 손상으로 이어집니다3,4. 또한, COPD는 장기 흡연, 환경 오염, 직업적 노출, 호흡기 감염 및 유전적 감수성을 포함한 여러 위험 요인의 영향을 받습니다5,6. COPD는 세계 경제에 상당한 부담을 초래해 왔으며, 2020년부터 2050년까지 매년 전 세계 GDP의 0.111%를 차지할 것으로 예측됩니다7. 기관지 확장제, 흡입성 코르티코스테로이드, 폐 재활 및 장기 산소 요법과 같은 현재의 치료 전략으로 증상을 완화할 수는 있지만, 질병의 진행을 중단시키는 것은 여전히 어려운 과제입니다. 뚜렷한 임상적 이질성으로 인해 환자의 예후는 매우 다양하게 나타납니다8. 따라서 COPD 관리를 강화하고 환자의 생존율을 높이기 위해 새로운 진단 바이오마커와 예후 지표가 시급히 필요합니다.
RNA 변형은 RNA 분자의 화학적 변화를 의미하며, 이는 RNA의 구조와 기능을 변화시켜 유전자 발현을 조절할 수 있습니다.9,10일반적인 RNA 수식에는 N6-메틸아데노신(m6A), 슈도유리딘(Ψ), 5-메틸시토신 (m5C) 및 ac4C11ac4C 수식은 mRNA 안정성을 유지하고 mRNA 번역을 촉진하는 데 중요한 역할을 합니다.12,13NAT10은 ac4C 수식을 촉매하는 것으로 알려진 유일한 진핵생물 효소이며, 그 활성은 이 수식의 형성에 필수적입니다.14연구들에 따르면 산화적 스트레스, 세포 노화, 염증 및 ac4C 수식 사이에 강한 상관관계가 있음이 밝혀졌습니다. 예를 들어, 염증성 장질환(IBD) 환자의 결장 조직 내 CD4+ T 림프구에서는 NAT10 수치가 현저히 상승되어 나타납니다.15NAT10은 케모카인 CCL2 및 CXCL1의 ac4C 아세틸화를 강화하여 대식세포와 호중구의 침윤을 촉진하고 염증성 손상을 악화시킨다16산화적 스트레스에 대한 세포 반응에는 ac4C 수식(modification)이 관여할 수 있으며, 이는 산화적 스트레스 하에서 ac4C 수준이 현저히 증가한다는 점에서 입증됩니다. 또한, NAT10은 PM을 촉진하며2.5ac4C 수식을 통해 TGFB1 mRNA를 안정화함으로써 상피-간엽 이행을 유발하여 유도된 폐섬유화증17그러나 COPD에서 ac4C 수식의 역할은 여전히 상당 부분 밝혀지지 않았으며, 이는 해당 분야의 추가적인 연구 필요성을 강조합니다.
본 연구에서는 COPD 환자와 대조군 사이의 DEG를 식별하기 위해 GEO 데이터베이스를 활용하였습니다. 그 다음, 멀티오믹스 데이터18로부터 수집되어 발표된 ac4C-RG 목록을 DEG와 통합하여 중첩되는 후보 유전자를 식별하였습니다. ac4C 수식화가 COPD의 핵심 과정인 염증 및 산화 스트레스에 영향을 미치는 것으로 알려져 있으므로, ac4C 조절 네트워크와 연관된 유전자들이 COPD에서 비정상적으로 조절될 것이라고 가설을 세웠습니다. 다만, 중첩된 유전자들을 NAT10의 직접적인 기질이나 ac4C에 의해 직접 조절되는 유전자로 간주한 것이 아니라, ac4C 관련 네트워크와 연관된 후보군으로 간주하였습니다. 여러 머신러닝 알고리즘을 사용하여 핵심 유전자를 스크리닝한 후, 진단 모델을 구축하고 검증하였습니다. 이어서 COPD 병생리에 관여하는 관련 경로를 결정하고, 잠재적인 표적 약물을 예측하였습니다. 마지막으로, RT-qPCR 분석을 수행하여 핵심 유전자의 발현 수준을 확인함으로써 COPD 병태생리에 대한 기초적인 통찰을 얻고 치료적 탐색을 위한 잠재적 방안을 제시하였습니다.
프로토콜
기관생명윤리위원회 성명서
본 연구는 헬싱키 선언을 준수하여 수행되었습니다. 연구 프로토콜은 심천 루허 중의병원 윤리위원회(승인 번호 2024-LHQZYYYXLL-KY-039)의 승인을 받았으며, 등록 전 모든 참여자로부터 서면 동의서를 얻었습니다. 본 프로토콜에 사용된 연구 도구 및 재료의 상세 내용은 재료 표에 제공되어 있습니다.
데이터 소스 및 처리
COPD 관련 유전자 발현 데이터셋을 Gene Expression Omnibus (GEO)에서 확보하였다. GSE54837 데이터셋을 전사체 데이터셋으로 사용하였으며, GSE112811 데이터셋을 검증 세트로 활용하였다(표 1). ac4C-RG는 기존 문헌18에서 수집하였다. COPD 그룹과 대조군 사이의 DEG는 R 패키지 limma를 사용하여 식별하였다. |log2FC| > 0 및 p < 0.05인 경우 DEG가 통계적으로 유의미한 것으로 간주하였다. 유전자 발현 변화의 전반적인 분포를 시각화하기 위해 화산 플롯(Volcano plot)을 생성하였다.
WGCNA 구축
COPD 관련 모듈을 식별하기 위해 R을 사용하여 GSE54837 데이터셋에 대해 WGCNA를 수행하였습니다. 네트워크 구축에 앞서, average linkage 방법과 Euclidean 거리 측정법을 적용한 hclust 함수 기반의 계층적 군집 분석을 통해 이상치 샘플을 식별하고 제거하였습니다. 최적의 soft-thresholding power(β 척도 없는 위상 적합 지수 R = 10)을 달성하기 위해 선택되었다.2 ≥ 0.85로 설정하여 척도 없는 위상(scale-free topology)과 평균 연결성을 조율하였다. 인접 행렬(adjacency matrix)을 구축한 후 이를 위상학적 중첩 행렬(topological overlap matrix, TOM)로 변환하였다. 동적 트리 절단 알고리즘(dynamic tree-cutting algorithm, deepSplit = 2, minClusterSize = 50)을 사용하여 유전자 모듈을 식별하였다. 고유유전자(eigengene) 상관관계가 있는 모듈들은 > 0.75의 값으로 이후 mergeCloseModules 함수를 사용하여 병합하였다. 그 다음, Pearson 상관계수를 이용하여 모듈 고유유전자(eigengenes)와 임상적 특성(COPD 상태, 연령, 성별, 흡연 상태) 간의 상관관계를 분석함으로써, 후속 분석을 위한 COPD 관련 모듈을 식별하였다.
중첩 유전자의 스크리닝, 농축 분석 및 PPI 네트워크 분석
DEGs, MEsalmon 모듈 유전자 및 ac4C-RGs 간에 중복되는 유전자를 식별하기 위해 R 패키지 ggvenn을 사용하여 벤 다이어그램을 생성하였습니다. 중복 유전자의 기능적 풍부도 분석은 R 패키지 clusterProfiler를 사용하여 Gene Ontology (GO) 및 Kyoto Encyclopedia of Genes and Genomes (KEGG) 데이터베이스를 통해 수행하였습니다. 중복 유전자 간의 단백질 수준 상호작용을 분석하기 위해 STRING 데이터베이스(https://string-db.org/)에서 단백질-단백질 상호작용(PPI) 정보를 확보하였습니다. 결과로 도출된 PPI 네트워크를 시각화하기 위해 Cytoscape 소프트웨어를 사용하였습니다.
머신 러닝을 통한 핵심 유전자 식별
세 가지 머신러닝 기법인 최소 절대 수축 및 선택 연산자(LASSO) 회귀, 익스트림 그라디언트 부스팅(XGBoost), 랜덤 포레스트(RF)를 적용하였습니다. LASSO 회귀는 glmnet 패키지를 사용하여 구현하였으며, 최적의 페널티 매개변수 λ를 결정하기 위해 10-겹 교차 검증을 수행하였습니다. type.measure 매개변수는 "deviance"로, family 매개변수는 "binomial"로 설정하였습니다. 교차 검증된 deviance를 최소화하는 λmin 기준을 사용하여 최적의 λ를 선택하였으며, 이를 통해 17개의 유전자를 도출하였습니다. XGBoost는 xgboost 패키지를 사용하여 수행하였으며, 하이퍼파라미터는 nrounds = 100, max_depth = 6, eta = 0.3, subsample = 0.8, colsample_bytree = 0.8, eval_metric = "logloss"로 설정하였습니다. 특성 중요도는 gain 지표로 순위를 매겨 상위 30개 유전자를 선택하였습니다. 랜덤 포레스트는 randomForest 패키지를 사용하여 ntree = 200으로 구현하였습니다. 특성 중요도는 Gini 지수의 평균 감소량으로 순위를 매겨 상위 30개 유전자를 선택하였습니다. 세 가지 머신러닝 방법으로 선택된 유전자들의 교집합을 구해 후속 분석을 위한 핵심 유전자를 식별하였습니다.
위험 예측을 위한 로지스틱 회귀 모델 구축 및 평가
GSE54837 데이터셋을 훈련 세트(70%)와 테스트 세트(30%)로 무작위로 나누었습니다. 핵심 유전자의 발현 수준을 입력 특성으로 하여 MASS 패키지의 glm 함수를 이용해 훈련 세트에서 로지스틱 회귀 모델을 구축했습니다. 모델 성능은 pROC 패키지로 생성한 ROC 곡선을 사용하여 평가했습니다. AUC의 95% 신뢰 구간은 2,000회의 부트스트랩 반복을 통해 계산했습니다. 모델 보정은 1,000회의 부트스트랩 재표집(rms 패키지)으로 생성한 보정 곡선을 사용하여 평가했습니다. 다양한 임계 확률 범위에서 순 임상 이득을 평가하기 위해 dca 패키지를 사용하여 DCA를 수행했습니다. 개별화된 위험 추정을 용이하게 하기 위해 rms 패키지의 nomogram 함수를 사용하여 노모그램을 구축했습니다.
회귀 방정식은 다음과 같습니다:
logit(P) = 0.5823 + 0.6010 × UPP1 - 0.6563 × PTRF + 0.3853 × B4GALT2 - 0.3972 × FAM168B + 0.1848 × PRKCDBP - 0.4787 × TOR3A. (1)
여기서 P는 COPD의 예측 확률을 나타내며, 각 계수는 해당 유전자 발현 값이 COPD의 로그 오즈(log odds)에 기여하는 정도를 나타냅니다.
발현 분석, GeneMANIA 네트워크 및 분자 조절 네트워크
GSE54837 데이터셋에서 COPD 그룹과 대조군 간의 유전자 발현 수준을 Wilcoxon rank-sum 검정을 사용하여 비교하였다. 발현 수준의 분포를 시각화하기 위해 ggplot2 패키지를 사용하여 박스 플롯을 생성하였으며, 중앙값, 사분위 범위(IQR) 및 개별 데이터 포인트를 겹쳐서 표시하였다. GeneMANIA를 사용하여 유전자 네트워크를 구축하고 기능적 상호작용을 예측하였다. 검색은 기본 파라미터(종 = Homo sapiens, 최대 관련 유전자 수 = 20)로 수행하였다. 생성된 네트워크를 다운로드하여 시각화하였으며, 엣지 색상으로 상호작용 유형을 나타냈다. 전사 후 조절 기전을 조사하기 위해 경쟁적 내인성 RNA(ceRNA) 네트워크를 구축하였다. 6개의 핵심 유전자를 표적으로 하는 miRNA를 DIANA-microT(점수 ≥ 0.8)와 miRanda(점수 ≥ 140, 에너지 ≤ −20 kcal/mol)라는 두 개의 독립적인 데이터베이스를 사용하여 예측하였다. 두 데이터베이스 모두에서 확인된 miRNA의 교집합을 사용하여 miRNA-mRNA 쌍을 구축하였다. 이어서, 이들 miRNA를 표적으로 하는 lncRNA를 StarBase 데이터베이스를 사용하여 예측하였다. lncRNA-miRNA-mRNA 조절 네트워크를 구축하고 Cytoscape를 사용하여 시각화하였다. 전사 조절 관계는 ChIP-X Enrichment Analysis Version 3 (ChEA3)를 사용하여 예측하였다. TF가 예측된 각 핵심 유전자에 대해 농축 점수가 가장 높은 상위 10개의 전사 인자를 선택하였다. TF-표적 조절 네트워크를 Cytoscape에서 구축하였다.
유전자 세트 농축 분석 및 면역 세포 침윤 평가
각 핵심 유전자의 생물학적 기능을 조사하기 위해 clusterProfiler 패키지를 사용하여 유전자 세트 풍부성 분석(GSEA)을 수행하였다. 각 핵심 유전자에 대해, 중앙값을 기준으로 샘플을 고발현 군과 저발현 군으로 나누었다. 두 군 간의 차별 발현 분석은 limma를 사용하여 수행하였으며, 도출된 유전자 목록을 signed log₂ fold-change 순으로 정렬하였다. GSEA는 GO 생물학적 프로세스 용어에 대해서는 gseGO 함수를, KEGG 경로에 대해서는 gseKEGG 함수를 사용하였으며, 파라미터는 minGSSize = 10, maxGSSize = 500, pvalueCutoff = 0.05, nPerm = 1,000으로 설정하였다. 28가지 면역 세포 유형의 상대적 풍부도는 GSVA 패키지에 구현된 단일 샘플 유전자 세트 풍부성 분석(ssGSEA)을 사용하여 추정하였다. 28가지 면역 세포 유형의 마커 유전자로 구성된 큐레이션된 유전자 세트 시그니처 행렬은 기존 문헌19에서 얻었다. 각 샘플에 대해 gsva 함수를 method = "ssgsea", ssgsea.norm = TRUE, kcdf = "Gaussian"으로 적용하였다. ssGSEA 풍부성 점수와 6가지 핵심 유전자의 발현 수준 사이의 Spearman 상관 계수는 cor.test 함수를 사용하여 계산하였다. p 값은 Benjamini-Hochberg 방법을 사용하여 다중 검정에 대해 보정하였다. 상관 행렬은 pheatmap 패키지를 사용하여 히트맵으로 시각화하였다.
약물 예측, 분자 도킹 및 질병 연관성 분석
DrugBank 데이터베이스를 사용하여 주요 유전자를 표적으로 하는 잠재적 치료 화합물을 식별하였습니다. 예측된 약물-유전자 상호작용을 시각화하기 위해 Cytoscape에서 "주요 유전자 표적 약물" 상호작용 네트워크를 구축하였습니다. 결합 친화도를 평가하기 위해 CB-Dock2 플랫폼을 사용하여 분자 도킹을 수행하였습니다. 인간 UPP1의 3D 단백질 구조는 Protein Data Bank(PDB ID: 7B8T)에서 검색하였습니다. 약물 분자 구조(SMILES 형식)는 PubChem에서 확보하였습니다. 도킹은 AutoDock Vina 엔진을 사용하여 수행되었으며, 결과물은 결합 자유 에너지(ΔG, kcal/mol 단위)에 따라 순위를 매겼습니다. 도킹 복합체는 PyMOL을 사용하여 시각화하였습니다. 주요 유전자와 환경 노출 관련 인간 질환 간의 연관성은 Comparative Toxicogenomics Database(CTD)를 사용하여 조사하였습니다. 각 유전자를 개별적으로 쿼리하여 가장 강력하게 연관된 상위 10개 질환을 추출하고 레이더 차트를 통해 시각화하였습니다.
RT-qPCR 프로토콜
심천 루허 중의병원을 통해 8명의 COPD 환자와 8명의 건강한 대조군으로부터 말초 정맥혈 샘플을 수집하였습니다. COPD는 기관지 확장제 투여 후 FEV1/FVC < 0.70으로 정의되는 만성 폐쇄성 폐질환 글로벌 전략(GOLD) 기준에 따라 진단되었습니다. 대조군은 호흡기 질환 병력이 없고 폐 기능 검사 결과가 정상(FEV1% 예측치 ≥ 80% 및 FEV1/FVC ≥ 0.70)인, 연령과 성별이 일치하는 건강한 지원자로 구성되었습니다. 환자의 기초 정보는 표 2에 나타나 있습니다. 혈액 RNA 추출 키트를 사용하여 COPD 혈액 샘플에서 총 RNA를 추출하였습니다. cDNA 합성을 위해, 제공된 프로토콜에 따라 게놈 DNA 제거 기능이 포함된 cDNA 합성 키트를 사용하여 500 ng의 총 RNA를 역전사하였습니다. 생성된 cDNA는 150 ng/μL로 희석하였습니다.
실시간 PCR 시스템에서 SYBR Green 기반 qPCR 마스터 믹스를 사용하여 RT-qPCR을 수행하였습니다. 각 10 μL 반응액에는 2x SYBR Green 마스터 믹스 5 μL, 정방향 및 역방향 프라이머(10 μM) 각각 0.5 μL, 희석된 cDNA(15 ng/μL) 1 μL, 그리고 nuclease-free water 3 μL가 포함되었습니다. 사이클 조건은 95 °C에서 5분간 초기 변성을 거친 후, 95 °C에서 10초, 60 °C에서 30초를 40회 반복하였으며, 증폭 특이성을 확인하기 위해 60 °C에서 95 °C까지 최종 멜팅 커브 분석을 수행하였습니다. 모든 반응은 기술적 3반복으로 진행되었습니다. 내부 참조 유전자로 β-actin을 사용하였습니다. 각 표적 유전자의 프라이머 효율은 표준 곡선 희석 시리즈를 통해 검증하였으며, 90%에서 110% 범위였습니다. 유전자 발현 수준은 β-actin으로 정규화하였으며, 상대적 발현량은 2-ΔΔCt법을 사용하여 계산하였습니다. COPD군과 대조군 간의 통계적 비교는 Mann-Whitney U 검정을 통해 수행하였습니다.
통계 분석
네트워크 시각화는 Cytoscape를 사용하여 생성하였으며, 통계 분석은 R 소프트웨어를 사용하여 수행하였습니다. 별도의 언급이 없는 한, 비정규 분포 데이터에는 Mann-Whitney U 검정을 사용하였고, 정규 분포 데이터의 두 그룹 간 비교에는 Student's t-검정을 사용하였습니다. p < 0.05인 값을 통계적으로 유의미한 것으로 간주하였습니다.
결과
중첩 유전자 식별, 풍부도 분석 및 PPI 네트워크 구축
GSE54837 데이터셋에서 발현이 증가한 1,675개의 유전자와 발현이 감소한 1,696개의 유전자를 포함하여 총 3,371개의 차등 발현 유전자(DEG)가 확인되었다. 가장 유의미하게 발현이 증가하거나 감소한 상위 10개 유전자는 다음에서 확인할 수 있다. 그림 1AGSE54837 데이터의 계층적 군집 분석을 수행하였습니다 (부록 그림 1A), 그리고 척도 없는 네트워크 토폴로지를 보장하기 위해 10의 소프트 임계값 거듭제곱(soft-thresholding power)이 적용되었습니다 (그림 1B). 유전자 공발현 모듈은 최소 모듈 크기를 50개 유전자로 설정한 동적 트리 컷(dynamic tree cut) 방법을 사용하여 구축하였으며, 각 모듈에 서로 다른 색상을 할당하였다(부록 그림 1B). 고유유전자 상관관계를 갖는 모듈 > 0.75를 이후 병합하였다 (부록 그림 1C, 그림 1C), 그 결과 14개의 뚜렷한 모듈이 도출되었다. 모듈 고유유전자(eigengene)와 임상적 특성 간의 피어슨 상관 분석 결과, MEsalmon 모듈(5,226개 유전자 포함)이 COPD와 가장 유의미한 양의 상관관계를 보였다(r = 0.35, p = 7 x 10⁻8, 그림 1D). 벤 다이어그램 분석을 통해 3,371개의 DEG, 5,226개의 MEsalmon 모듈 유전자, 그리고 2,118개의 ac4C-RG 사이에서 160개의 중첩 유전자를 확인하였다(그림 1E). 이 160개 유전자에 대한 기능적 농축 분석 결과, 유의미한 GO 용어에는 단일 가닥 RNA 결합, mRNA 대사 과정 조절 및 RIG-I 신호 전달 경로가 포함되었습니다 (그림 1F). 또한, KEGG 분석 결과 이들 유전자는 주로 Fc 감마 R 매개 식세포 작용, mRNA 감시 경로 및 초점 접착에 농축되어 있는 것으로 나타났다(그림 1G). 중첩 유전자의 PPI 네트워크는 118개의 노드와 196개의 엣지를 포함하였습니다 (그림 1H).
COPD의 6가지 핵심 유전자 식별
160개의 중복 후보 유전자 중 잠재적인 핵심 유전자를 추가로 식별하기 위해 세 가지 머신러닝 알고리즘을 적용하였습니다. 먼저 LASSO 회귀 분석을 적용하였으며, 교차 검증을 통해 최적의 패널티 매개변수 (λ) ≈ 0.091을 결정하였습니다(그림 2A). 계수 프로파일 플롯 결과, 최적의 λ 값에서 17개의 유전자가 유지되었음을 확인하였습니다(그림 2B). XGBoost 분석을 통해 이득(gain)이 가장 높은 상위 30개 유전자를 식별하였으며, 그중 PTRF, WBP11, LDOC1L이 높은 예측 가치를 나타냈습니다(그림 2C). RF 알고리즘 또한 지니 중요도(Gini importance) 점수에 따라 상위 30개 유전자의 순위를 매겼으며, PTRF, RFX5, PRKCDBP가 가장 예측력이 높은 유전자에 포함되었습니다(그림 2D). 세 가지 방법으로 선택된 유전자들의 교집합 분석을 통해 PTRF, PRKCDBP, UPP1, TOR3A, FAM168B, B4GALT2 등 6개의 핵심 중복 유전자를 식별하였습니다(그림 2E).
진단 모델 구축 및 주요 유전자의 발현 분석
GSE54837 데이터셋의 70%를 훈련 세트로 사용하여, 6개의 핵심 유전자를 포함하는 로지스틱 회귀 모델을 구축하였다. ROC 곡선 분석 결과, 훈련 세트, 내부 테스트 세트, 외부 검증 세트의 AUC가 각각 0.766 (95% CI: 0.691–0.8417), 0.759 (95% CI: 0.6368–0.8817), 0.723 (95% CI: 0.6085–0.8596)로 나타나 중간 정도의 진단 성능을 보였다(그림 3A–C). 보정 분석을 통해 높은 신뢰성을 확인하였으며, DCA 분석 결과 훈련 세트(그림 3D–E)와 검증 세트(그림 3F–G) 모두에서 광범위한 임계 확률 범위에 걸쳐 명확한 순 임상 이득이 있음이 나타났다. 각 유전자의 기여도를 시각화하고 개별화된 위험도 추정을 용이하게 하기 위해 노모그램을 제작하였다(그림 3H). 발현 분석 결과, COPD 샘플에서 B4GALT2, PRKCDBP, UPP1은 유의하게 상향 조절된 반면, FAM168B, PTRF, TOR3A는 하향 조절된 것으로 나타났다(그림 3I).
COPD 핵심 유전자의 조절 네트워크 및 기능 분석
식별된 허브 유전자와 가장 밀접하게 연관된 상위 20개 유전자로 구성된 기능적 상호작용 네트워크를 GeneMANIA 분석을 통해 구축하였다(그림 4A). 연결의 대부분은 물리적 상호작용이 차지했으며, 공동 발현 상관관계와 공유 단백질 도메인이 그 뒤를 이었다. 기능적 주석 결과, 뉴클레오베이스 함유 소분자 이화 과정, 뉴클레오사이드 이화 과정 및 세포막 래프트와 같은 프로세스에서 유의미한 농축이 나타났다. DIANA-microT 및 miRanda 데이터베이스의 miRNA 예측 결과를 교차 분석하여 전사 후 조절을 조사하였으며, 8개의 중첩되는 miRNA를 식별하였다(그림 4B). 이후 lncRNA-miRNA-mRNA 조절축을 구축하였다. Sankey 다이어그램에 따르면, 식별된 miRNA 중 FAM168B 조절과 관련된 두 가지 miRNA가 7개의 lncRNA에 의해 표적화될 것으로 예측되었으며, 나머지 5개의 허브 유전자에 대해서는 이러한 조절 상호작용이 식별되지 않았다(그림 4C). 전사 조절은 ChEA3 플랫폼을 사용하여 추가로 탐색하였으며, 이를 통해 B4GALT2, UPP1, FAM168B 및 TOR3A에 대한 상위 전사 인자(TF)를 예측하였다. 각 유전자의 상위 10개 TF를 선택하여 TF-표적 조절 네트워크를 구축하였다(그림 4D). 6개 핵심 유전자의 생물학적 기능을 조사하기 위해 GSEA를 수행하였다. UPP1은 디아실글리세롤 대사 과정 및 퓨린 뉴클레오사이드 삼인산 생합성 과정과 같은 생물학적 프로세스와 더불어, 프로테아좀 및 cytochrome P450에 의한 제노바이오틱스 대사를 포함하는 경로에서 유의미하게 농축되었다(그림 4E–F). 나머지 5개 핵심 유전자에 대한 농축 결과는 부록 그림 2A–J에 제시되어 있다.
COPD에서의 UPP1 면역 침윤 및 약물 타겟 예측
ssGSEA 알고리즘을 사용하여 대조군과 COPD 그룹에서 28가지 면역 세포 유형의 면역 침윤 수준을 평가했습니다. COPD 환자의 경우, 기억 B 세포, 골수 유래 억제 세포 및 활성화된 수지상 세포에서 유의하게 더 높은 농축 점수가 나타났습니다. 반대로, 1형 T 헬퍼 세포, 활성화된 B 세포 및 미성숙 B 세포는 유의하게 더 낮은 농축 점수를 보였습니다(그림 5A). ssGSEA는 면역 세포 비율의 직접적인 측정값이 아니라 전사체 데이터에 기반한 상대적인 면역 세포 농축 추정치를 제공한다는 점에 유의해야 합니다. 상관관계 분석 결과, 6가지 핵심 유전자가 면역 세포 서브셋과 서로 다른 연관 패턴을 보이는 것으로 나타났습니다. 구체적으로, UPP1, PRKCDBP 및 B4GALT2는 기억 B 세포, 활성화된 수지상 세포 및 골수 유래 억제 세포의 침윤 수준과 양의 상관관계를 보였으며(Spearman ρ > 0.4, p < 0.05), PTRF, TOR3A 및 FAM168B는 1형 T 헬퍼 세포 및 활성화된 B 세포와 음의 상관관계를 보였습니다(Spearman ρ < −0.3, p < 0.05). 전체 상관관계 행렬은 히트맵에 제시되어 있습니다(그림 5B). 약물 예측 분석을 통해 6가지 후보 유전자 중 UPP1만이 저분자 화합물과 상호작용할 것으로 예측되는 유전자로 확인되었습니다. 데이터베이스에서 fluorouracil, capecitabine 및 5-benzylacyclouridine을 포함한 세 가지 화합물이 잠재적인 UPP1 상호작용 화합물로 식별되었습니다(그림 5C). 이 화합물들은 주로 종양학 또는 실험적 환경에서 사용되며, COPD와의 관련성은 추가적인 조사가 필요합니다. 결합 자유 에너지 계산 결과, 5-benzylacyclouridine이 가장 강한 결합 친화도를 보였으며, 이는 상대적으로 더 높은 예측 결합 친화도를 시사합니다(표 3). 세 가지 화합물 모두에 대한 분자 도킹 시각화 결과, UPP1과 유리한 예측 결합 형태를 나타냈으며, 이는 실험적 검증보다는 컴퓨터 도킹 예측과 일치합니다(그림 5D–F). 또한, CTD 분석 결과 6가지 핵심 유전자 모두가 태아기 노출의 지연 효과, 체중 감소, 간종대 및 염증을 포함한 다양한 질병 표현형과 강하게 연관되어 있음이 나타났습니다(그림 5G–L).
임상 시료 내 주요 진단 유전자의 RT-qPCR 검증
주요 유전자의 발현 수준을 검증하기 위해 8명의 COPD 환자와 8명의 대조군으로부터 혈액 샘플을 수집하였으며, 샘플 크기가 제한적이었으므로 본 분석은 예비 검증으로 간주되었다. 그림 6A–F에 나타난 바와 같이, PTRF, TOR3A 및 FAM168B는 COPD 샘플에서 유의하게 하향 조절되었고, 반면 PRKCDBP와 UPP1은 유의하게 상향 조절되었으며, 이는 생정보학 분석에서 관찰된 경향과 일치하였다. 이와 대조적으로, B4GALT2 발현은 두 그룹 간에 유의한 차이가 관찰되지 않았다. 이러한 불일치는 제한된 샘플 크기 또는 데이터 세트와 임상 검체 간의 샘플 유형 차이로 인한 것일 수 있다.
데이터 가용성 성명서:
모든 RNA-sequencing 데이터는 Gene Expression Omnibus 데이터베이스(GEO, https://www.ncbi.nlm.nih.gov)에서 확보하였으며, GSE54837을 훈련 세트로, GSE112811을 검증 세트로 선택하였습니다. 본 분석에 사용된 코드는 https://doi.org/10.5281/zenodo.21771476에서 확인할 수 있습니다.
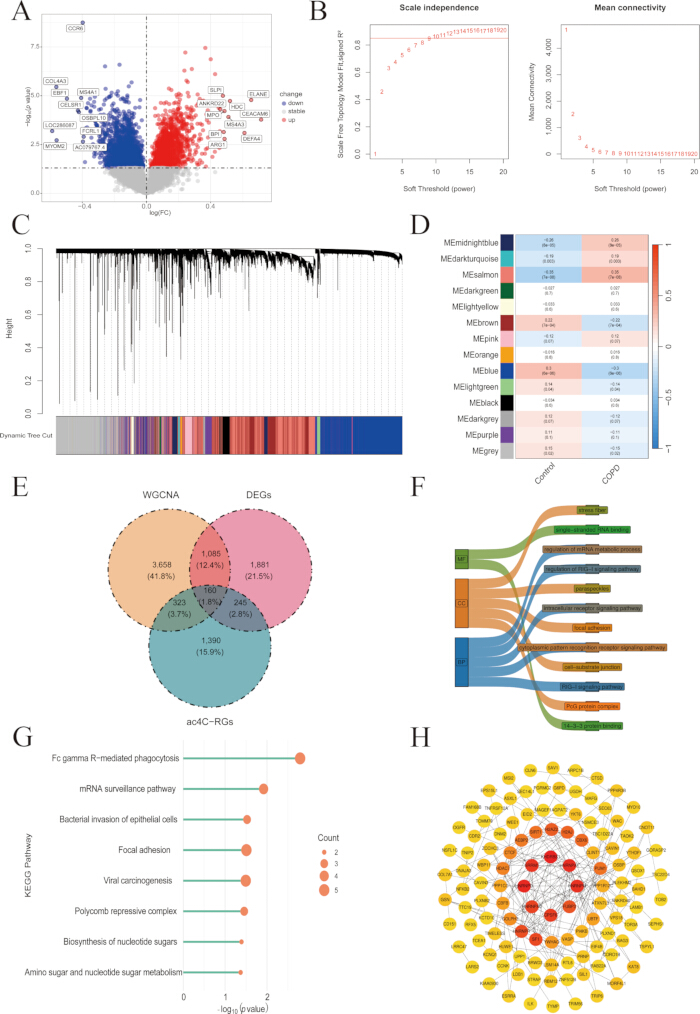
그림 1: 중첩 유전자의 식별, 농축 분석 및 PPI 네트워크 구축. (A) GSE54837 데이터셋의 DEG 볼케이노 플롯. (B) 소프트 임계값 스크리닝. (C) 모듈 클러스터링 덴드로그램 (병합 후). (D) 모듈과 특성 간 상관관계 히트맵. (E) 중첩 유전자 식별을 위한 벤 다이어그램. (F) GO 농축 분석의 멀베리 다이어그램으로, MF, CC 및 BP에서 교집합 유전자의 주요 농축 결과를 보여줌. (G) KEGG 신호 경로 농축 분석의 롤리팝 다이어그램이며, 버블 크기는 농축된 유전자의 수를 나타냄. (H) 중첩 유전자의 PPI 네트워크; 노드는 단백질을 나타내고, 엣지는 단백질-단백질 상호작용을 나타냄. 약어: DEGs = 차등 발현 유전자; PPI = 단백질-단백질 상호작용; GO = Gene Ontology; MF = 분자 기능; CC = 세포 구성 성분; BP = 생물학적 과정; KEGG = Kyoto Encyclopedia of Genes and Genomes; ac4C-RGs = N4-acetylcytidine 관련 유전자. 여기에서 이 그림의 확대 버전을 확인하십시오.
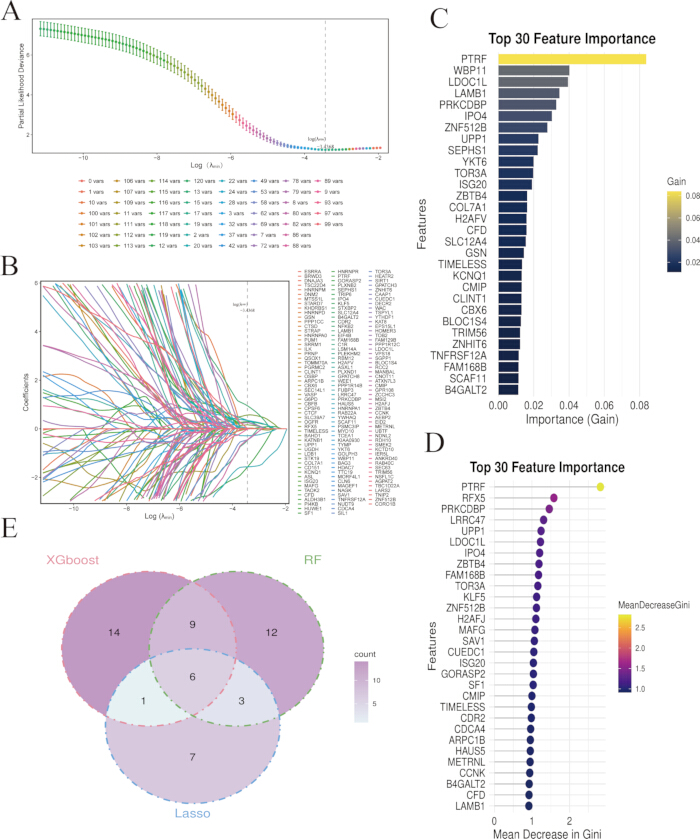
그림 2: COPD의 6가지 핵심 유전자 식별. (A) LASSO 교차 검증 곡선. (B) LASSO 회귀 계수 경로 다이어그램. λ가 증가함에 따라 중요하지 않은 유전자의 계수가 0으로 수렴한다. (C) XGBoost 특성 중요도 순위. x축은 gain 값을, y축은 유전자 이름을 나타내며, 색상의 깊이는 중요도를 나타낸다. (D) RF 특성 중요도 순위. x축은 Gini 지수의 평균 감소량을 나타낸다. (E) 세 가지 알고리즘의 교차 분석을 통해 얻은 중복 유전자의 벤 다이어그램. 약어: LASSO = least absolute shrinkage and selection operator; XGBoost = extreme gradient boosting; RF = random forest. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
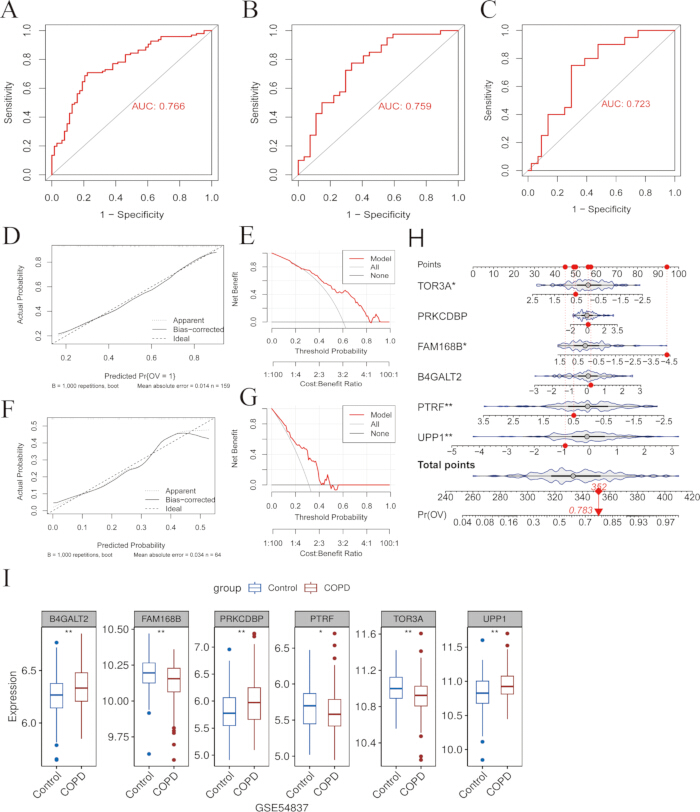
그림 3진단 모델 구축 및 핵심 유전자 발현 분석 (A) 훈련 세트의 ROC 곡선. (B) 내부 테스트 세트의 ROC 곡선. (C) 외부 검증 세트의 ROC 곡선. (D) 훈련 세트의 검정 곡선. (전자) 훈련 세트의 DCA. (F) 외부 검증 세트의 보정 곡선. (G) 외부 검증 세트의 결정 곡선 분석(DCA). (H6개 핵심 유전자의 노모그램. 개별 COPD 위험도를 예측하기 위해 각 유전자에 해당 점수를 부여합니다.I) GSE54837 데이터셋의 COPD 및 대조군 샘플 내 6개 핵심 유전자의 발현 분석. 약어: ROC = 수신기 작동 특성; AUC = 곡선 아래 면적; DCA = 결정 곡선 분석; COPD = 만성 폐쇄성 폐질환. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
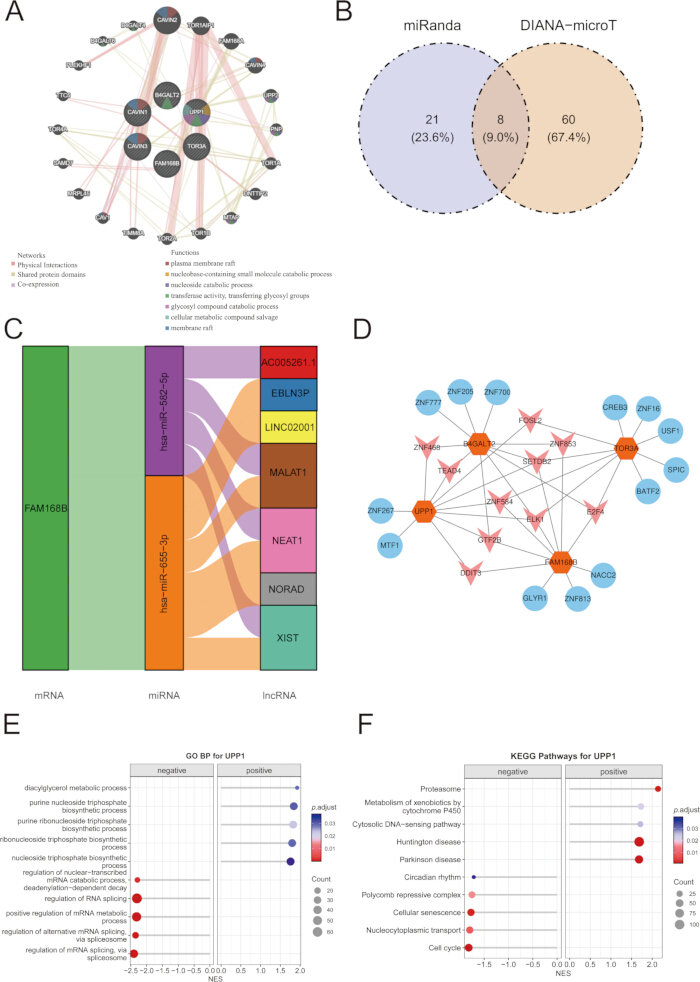
그림 4: COPD 핵심 유전자의 조절 네트워크 및 기능적 중요성. (A) 6가지 핵심 유전자의 GeneMANIA 분석 결과. 선의 색상은 유전자 간의 상관관계를 나타내며, 노드의 색상은 서로 다른 기능적 범주를 나타냄. (B) DIANA-microT 및 miRanda 데이터베이스 교차 분석의 벤 다이어그램. (C) ceRNA 조절 네트워크의 멀베리 다이어그램. (D) 잠재적 전사 인자 조절 네트워크. 파란색 노드는 전사 인자를, 주황색 노드는 표적 유전자를 나타냄. (E) GO를 포함한 UPP1의 단일 유전자 GSEA 농축 분석. (F) KEGG를 포함한 UPP1의 단일 유전자 GSEA 농축 분석. 약어: GO = Gene Ontology; KEGG = Kyoto Encyclopedia of Genes and Genomes. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
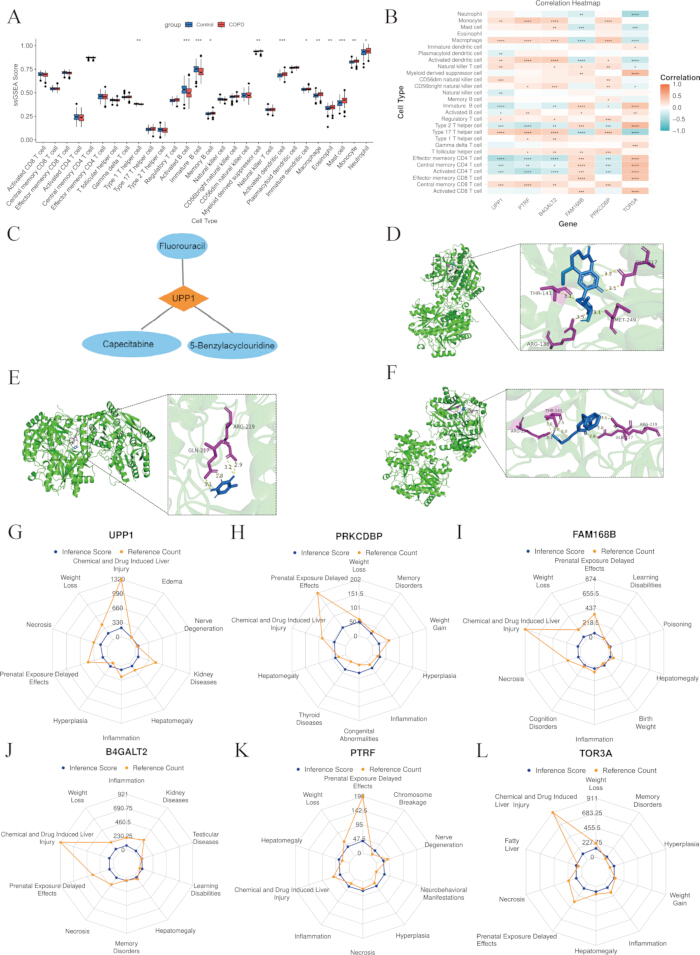
그림 5: COPD에서의 주요 유전자의 면역 침윤 및 약물 표적 예측. (A) 그룹 간 면역 세포 풍부도의 차이. (B) 면역 세포와 주요 유전자 간 상관관계의 히트맵. (C) 주요 유전자와 예측된 약물 간의 상호작용 네트워크. (D) fluorouracil과 UPP1의 분자 도킹. (E) capecitabine과 UPP1의 분자 도킹. (F) 5-benzylacyclouridine과 UPP1의 분자 도킹. 각 화합물에 대해 왼쪽 이미지는 전체 도킹 형태를, 오른쪽 이미지는 국소 결합 상호작용을 보여줌. (G) B4GALT2의 CTD 분석. (H) FAM168B의 CTD 분석. (I) PRKCDBP의 CTD 분석. (J) PTRF의 CTD 분석. (K) TOR3A의 CTD 분석. (L) UPP1의 CTD 분석. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
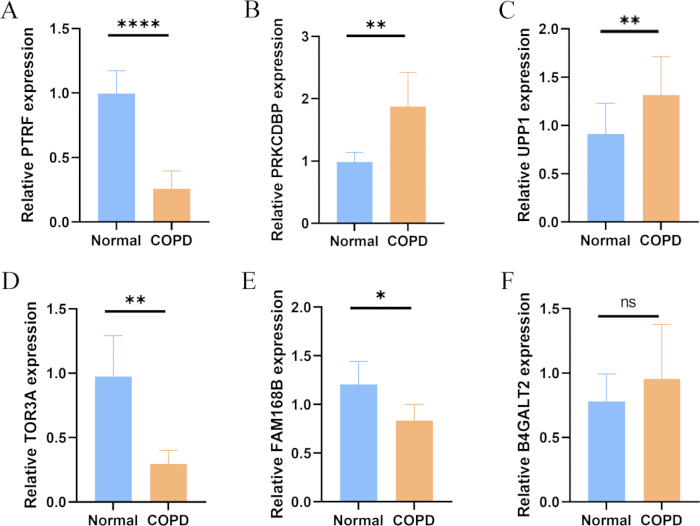
그림 6: COPD 및 대조군 샘플에서 주요 유전자 발현의 RT-qPCR 검증. (A) PTRF의 상대적 발현. (B) PRKCDBP의 상대적 발현. (C) UPP1의 상대적 발현. (D) TOR3A의 상대적 발현. (E) FAM168B의 상대적 발현. (F) B4GALT2의 상대적 발현. ns = 유의하지 않음, p > 0.05; * p < 0.05; ** p < 0.01; *** p < 0.001; **** p < 0.0001. 약어: RT-qPCR = 역전사 정량 PCR. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
보충 그림 1: GSE54837 데이터셋 샘플 및 유전자 모듈 클러스터링. (A) GSE54837 데이터셋의 샘플 클러스터링 다이어그램. (B) 병합 전 모듈 클러스터링 덴드로그램. 뚜렷한 모듈을 식별하기 위해 동적 트리 컷(dynamic tree cut) 방법을 사용하여 유전자를 그룹화하였다. (C) 모듈 고유유전자(eigengene)의 계층적 클러스터링 덴드로그램. 유사한 발현 패턴을 가진 모듈들은 고유유전자 유사도를 기반으로 클러스터링되었다.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 2: GSEA 농축 분석. (A) PRKCDBP의 GO 분석. (B) PRKCDBP의 KEGG 분석. (C) PTRF의 GO 분석. (D) PTRF의 KEGG 분석. (E) TOR3A의 GO 분석. (F) TOR3A의 KEGG 분석. (G) FAM168B의 GO 분석. (H) FAM168B의 KEGG 분석. (I) B4GALT2의 GO 분석. (J) B4GALT2의 KEGG 분석. 약어: GO = Gene Ontology; KEGG = Kyoto Encyclopedia of Genes and Genomes.이 파일을 다운로드하려면 여기를 클릭하십시오.
| 데이터세트 | 대조군 | 환자들 | 시퀀싱 플랫폼 |
| GSE54837 | 90 | 136 | GPL570 |
| GSE112811 | 44 | 20 | GPL570 |
표 1: 연구에 사용된 유전자 발현 데이터셋. 모델 개발 및 내부 테스트에 사용된 GSE54837 데이터셋과 외부 검증에 사용된 GSE112811 데이터셋의 특성.
| 환자 | 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 |
| 성별 (여/남) | M | M | M | F | M | M | M | M |
| 연령 (세) | 69 | 72 | 75 | 73 | 68 | 70 | 69 | 71 |
| 흡연 상태 | 네 | 네 | 금연(2년) | 아니요 | 네 | 네 | 네 | 금연(5년) |
| 갑년 | 하루 20개 / 30년 | 하루 15회 / 35년 | 하루 20회 / 50년 | 하루 20개 / 40년 | 하루 30개 / 40년 | 하루 15회 / 40년 | 하루 20개 / 30년 | |
| COPD 군 | 2 | 3 | 3 | 2 | 2 | 3 | 2 | 3 |
표 2: 연구 참여자의 기저 특성. RT-qPCR 검증에 포함된 COPD 환자와 건강한 대조군의 기저 인구통계학적 및 임상적 특성.
| 분자명 | 유전자 | 점수(kcal/mol) |
| 5-벤질아시클로우리딘(5-Benzylacyclouridine) | UPP1 | -9.6 |
| 카페시타빈 | UPP1 | -6.1 |
| 플루오로유라실 | UPP1 | -5.5 |
표 3: UPP1 및 후보 화합물의 분자 도킹 결과.
fluorouracil, capecitabine 및 5-benzylacyclouridine과 UPP1의 상호작용에 대해 예측된 분자 도킹 결과와 결합 친화도.
토론
주로 메신저 RNA(mRNA)와 운반 RNA(tRNA)에서 발생하는 보존된 RNA 변형인 ac4C는 mRNA의 안정성과 번역 효율을 향상시킵니다20. NAT10은 ac4C 변형을 매개하는 것으로 알려진 유일한 RNA 아세틸전이효소입니다21. 연구 결과, COPD 환자의 폐 상피 세포에서 NAT10이 상향 조절되는 것으로 나타났습니다. NAT10의 넉다운은 미토콘드리아 기능과 전사체 반응을 방해합니다22. 통합 멀티오믹스 분석을 기반으로, 본 연구에서는 COPD와 밀접하게 연관된 6개의 핵심 유전자를 식별하고 진단 모델을 개발하였으며, 이는 적절한 진단 성능과 추가 조사를 위한 잠재적 가치를 보여주었습니다. 추가 분석을 통해 전사 조절, ceRNA 네트워크 및 면역 미세환경에서 이들 유전자의 핵심적인 역할이 밝혀졌습니다. 또한, 잠재적인 표적 약물을 예측하여 COPD의 병인에 대한 통찰력을 제공하고 개인 맞춤형 정밀 치료 전략의 개발을 촉진하였습니다. 우리는 WGCNA와 차등 발현 분석을 사용하여 COPD에서 차등 발현되면서 이전에 발표된 ac4C 관련 유전자 목록에 존재하는 유전자들을 식별하였습니다. 이러한 유전자들은 NAT10 또는 ac4C 아세틸화와의 입증된 기계적 연결성이 아니라 ac4C 조절 네트워크와의 연관성을 기반으로 선택되었으며, 총 160개의 후보 유전자가 도출되었다는 점에 유의해야 합니다. 머신러닝 알고리즘을 통해 6개의 핵심 유전자(PTRF, PRKCDBP, UPP1, TOR3A, FAM168B 및 B4GALT2)가 식별되었습니다. 그중 PTRF는 IL-33-ZBP1 매개 대식세포 네크롭토시스를 조절함으로써 집먼지진드기(HDM) 유도 기도 염증에서 중요한 역할을 하며, 이는 COPD와 같은 만성 염증성 폐 질환에 관여할 수 있음을 시사합니다23. Lai 등24은 외인성 uridine 투여가 Nrf2/SLC7A11/GPX4 경로를 통해 대식세포의 페로토시스를 억제함으로써 패혈증으로 인한 급성 폐 손상을 완화한다는 것을 입증했습니다. 우리딘 대사의 핵심 효소인 UPP1의 상향 조절이 급성 폐 손상 모델의 폐 조직에서 관찰되었으나, 그 정확한 역할과 이러한 상향 조절이 보호 반응인지 아니면 조직 손상의 결과인지는 추가로 규명되어야 합니다. 그러나 이 발견은 UPP1이 COPD와 같은 염증성 폐 질환의 병태생리학적 과정과 잠재적인 연관성이 있을 수 있음을 시사하며, 추가적인 조사가 필요함을 뒷받침합니다. 나머지 4개의 핵심 유전자는 폐 관련 질환에서 연구가 덜 이루어졌으나, 다른 질병에서의 기능과 본 연구의 발견을 바탕으로 이들이 COPD 병인에 기여할 수 있는 잠재적 경로를 가설로 설정하였습니다.
6개의 핵심 유전자를 바탕으로 COPD 진단 모델을 구축하였으며, 그 예측 성능이 우수함을 검증하였습니다. 발현 분석 결과, COPD에서 UPP1, B4GALT2, PRKCDBP는 유의하게 상향 조절된 반면, FAM168B, PTRF, TOR3A는 현저하게 하향 조절된 것으로 나타났습니다. 데이터셋 분석에서는 B4GALT2가 상향 조절된 것으로 확인되었으나, RT-qPCR 검증에서는 유의미한 차이가 관찰되지 않았습니다. 이러한 불일치는 제한된 샘플 크기, 코호트의 이질성, 그리고 공공 데이터셋과 임상 혈액 샘플 간의 샘플 소스 차이로 인한 것일 수 있습니다. 유전자 세트 풍부도 분석(GSEA) 결과, 이러한 핵심 유전자들은 RNA splicing 및 mRNA 가공뿐만 아니라 세포 주기 및 니코틴 중독과 같은 경로에서 유의하게 풍부함을 보였습니다. 가역적이지 않은 세포 주기 정지는 세포 노화의 주요 기전으로 알려져 있으며, 이는 COPD의 병태생리에 상당한 영향을 미칠 수 있습니다25,26. 추가 분석 결과, DNA 손상으로 인해 유도된 노화 관련 분비 표현형(SASP)이 만성 염증을 유지하고 폐 조직 손상을 악화시킴으로써 COPD의 지속적인 진행을 촉진할 수 있음을 나타냈습니다27. 이전 연구에서도 니코틴 중독과 COPD의 기저에 있는 유전적 연결 고리를 검토한 바 있습니다28. 흡연이 COPD의 일차적인 위험 요인이지만, 흡연자 중 극소수만이 이 질병에 걸린다는 점은 유전적 요인이 COPD와 니코틴 의존성 모두에서 중요한 역할을 한다는 것을 시사합니다. Liu 등29은 COPD 및 폐고혈압(PH)에서 RNA 결합 단백질(RBP)의 역할을 요약하며, 이들이 mRNA splicing 및 전사 후 유전자 발현 조절을 통해 폐혈관 리모델링과 염증 반응에 관여함을 강조하였으며, 이를 통해 바이오마커 및 치료 표적으로서의 잠재력을 부각시켰습니다. 요약하자면, 본 연구에서 확인된 핵심 유전자와 관련 경로는 COPD의 발병 기전에 대한 이해를 심화시킬 뿐만 아니라, 향후 진단 바이오마커 및 표적 치료 전략 개발을 위한 견고한 기초를 제공합니다.
ceRNA 네트워크는 lncRNA, circRNA 및 mRNA를 포함한 다양한 RNA 종이 공유 miRNA에 경쟁적으로 결합하여 상호 조절 관계를 형성하고 유전자 발현에 영향을 미치는 체계입니다30. 이 복잡한 네트워크는 수많은 생리적 및 병리적 과정에 관여하며, 유전자 조절 메커니즘과 암 및 만성 염증성 질환과 같은 질병의 발병 기전을 규명하는 데 기여합니다. 예를 들어, Wang 등은 11개의 lncRNA, 5개의 miRNA 및 16개의 mRNA로 구성된 ceRNA 공발현 네트워크를 구축하였으며, 여기서 핵심 서브네트워크가 COPD의 면역 세포 비율 및 폐 기능 변화와 관련이 있음을 확인하였습니다31. 마찬가지로, Zhang 등32은 남성 흡연자의 말초혈액 단핵세포를 기반으로 circRNA-miRNA-mRNA ceRNA 네트워크를 개발하여, COPD와 관련된 조절 장애 circRNA 및 주요 경로를 식별하였습니다. 본 연구의 공발현 네트워크 분석 결과, 핵심 유전자들은 주로 물리적 상호작용, 공발현 및 공유 단백질 도메인을 통해 기능적 연결을 형성하며 여러 대사 관련 경로에 유의미하게 농축되어 있음을 밝혀냈습니다. 이러한 발견을 바탕으로, 전사 인자(TF)-표적 조절 네트워크와 miRNA-lncRNA-mRNA 조절 축을 추가로 구축하였습니다. 이러한 결과는 COPD에서 핵심 유전자들이 lncRNA, 전사 인자 및 miRNA가 관여하는 다단계 메커니즘을 통해 협력적으로 조절될 수 있음을 시사합니다.
면역 침윤은 조직이나 혈액 내 면역 세포의 분포와 활성을 나타냄으로써 면역 상태를 반영합니다. 이를 바탕으로 컴퓨터 스크리닝을 통해 잠재적인 후보 약물을 예측하였으며, 이후 분자 도킹 시뮬레이션을 통해 표적 단백질과의 결합 친화도 및 안정성을 평가하였습니다. 이러한 분석들을 종합하여 새로운 치료제 식별을 용이하게 하고 질병 기전에 대한 더 깊은 통찰력을 제공합니다. 본 연구에서는 6개의 핵심 유전자가 대부분의 면역 세포 침윤과 양의 상관관계를 보였습니다. 약물 예측 결과, UPP1과 fluorouracil, capecitabine, 5-benzylacyclouridine 사이의 잠재적 상호작용이 확인되었으며, 특히 5-benzylacyclouridine이 가장 강력한 결합 친화도를 나타냈으며 이는 분자 도킹을 통해 추가로 확인되었습니다. 주목할 점은, fluorouracil과 capecitabine은 주로 항종양제로 사용되며, 본 연구에서는 COPD에 대해 검증된 치료 옵션이 아니라 데이터베이스에서 예측된 UPP1 상호작용 화합물로 식별되었다는 것입니다. 이전 연구들에 따르면 fluorouracil의 국소 투여가 심각한 기도 폐쇄 사례에서 기도의 개방성을 개선할 수 있다고 보고되었습니다33. 그러나 다른 증거에 따르면 fluorouracil과 capecitabine은 특히 기존에 폐 질환이 있는 환자에게서 폐 독성을 유발할 수 있습니다34. 따라서 이들이 COPD와 가질 수 있는 잠재적 관련성에 대해서는 추가적인 실험 및 안전성 검증이 필요합니다. 또한, CTD 분석 결과 6개의 핵심 유전자 모두가 여러 병리 과정과 연관되어 있음이 나타났습니다. 종합적으로, 면역 침윤, 약물 예측 및 분자 도킹의 통합 분석은 새로운 분자 표적과 COPD 정밀 치료를 위한 이론적 근거를 제공하며, 이를 통해 관련 약물의 개발과 임상 적용을 촉진합니다.
그럼에도 불구하고 몇 가지 한계점이 인정되어야 합니다. 본 연구는 샘플 출처가 상대적으로 제한적인 공공 데이터셋에 의존하였으며, 이는 배치 효과(batch effects)와 잠재적인 모델 과적합을 유발할 수 있습니다. RT-qPCR 검증은 소규모 코호트를 대상으로 수행되었으며, B4GALT2 발현에서 관찰된 불일치는 코호트의 이질성 가능성을 시사합니다. 또한, 면역 침윤 및 약물 예측 분석은 계산 기반으로 이루어졌으며 추가적인 실험적 검증이 필요합니다. 나아가, 발견 단계의 생물정보학적 조사로서 본 진단 모델은 주로 95% 신뢰 구간이 포함된 AUC 값으로 평가되었습니다. 공공 데이터셋의 회고적 특성과 제한된 샘플 크기로 인해 민감도, 특이도, 예측도 및 상세한 보정 통계와 같은 종합적인 성능 지표가 완전히 평가되지 않았습니다. 따라서 본 모델은 개념 증명(proof-of-concept) 도구로 간주되어야 하며, 그 임상적 유용성은 더 큰 규모의 전향적 코호트에서 추가 검증이 필요합니다.
통합 생정보학 및 머신러닝 분석을 통해, 본 연구는 COPD와 유의미하게 연관된 6개의 핵심 유전자를 식별하였습니다. 여러 코호트 전체에서 신뢰할 수 있는 예측 성능을 입증하는 견고한 진단 모델이 구축되었습니다. 기능 분석 결과, 이들 유전자는 전사 및 전사 후 조절, 면역 세포 침윤, 니코틴 중독 및 세포 주기 관련 경로를 포함하는 주요 조절 네트워크에 참여하는 것으로 나타났습니다. 약물 예측 및 분자 도킹 분석을 통해 UPP1이 유망한 치료 표적임이 강조되었으며, 여러 후보 화합물이 강한 결합 친화력을 보였습니다. 종합적으로, 이러한 발견은 COPD의 병태생리에 대한 이해를 높이며, 향후 치료제 개발 및 정밀 의료 전략을 위한 가치 있는 분자 표적을 제공합니다.
공개 사항
저자들은 이해관계의 충돌이 없음을 밝힙니다. 연구에 참여한 모든 피험자로부터 고지된 동의를 얻었습니다.
감사의 글
본 연구에 필수적인 임상 시설과 행정적 지원을 제공해 주신 심천 루오후 중의병원을 통해 감사의 마음을 전합니다. 마지막으로, 본 연구에 참여해 주신 모든 환자와 건강한 자원봉사자분들께 감사드립니다. 이분들의 기여는 본 연구에 없어서는 안 될 중요한 부분이었습니다. 본 연구는 심천시 산밍 의학 프로젝트(No. SZZYSM202401018), 루오후 구 우선 전문 기금(No. LX202402021) 및 루오후 구 우선 전문 기금(No. LX202302064)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| β$\beta$-actin 프라이머 | 칭커 | 입력된 소스 텍스트가 없습니다. 번역할 내용을 제공해 주시기 바랍니다. | 정방향: 5’-CATGTACGTTGCTATCCAGGC-3’ 역전: 5’-CTCCTTAATGTCACGCACGAT-3’ |
| B4GALT2 프라이머 | 칭케 | 제공된 소스 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 정방향: 5’-GGGCAGACTGCTGATCGAG-3’ 역전: 5’-CCGGTGTCTAAAGGGGATGAT-3’ |
| CB-Dock2 | 랩셰어(LabShare) | 온라인 | 분자 도킹 |
| clusterProfiler | Bioconductor | v4.14.6 | 농축 분석 |
| Cytoscape | Cytoscape 컨소시엄 | v3.8.3 | 네트워크 시각화 |
| DrugBank | 앨버타 대학교 | 온라인 | 약물 예측 |
| FAM168B 프라이머 | 칭커(Tsingke) | 제공된 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 정방향: 5’-TCTGGGGTTCCCTATGCAAAT-3'’ 역전: 5’-GTAGGATTCGCTCCAGGATACA-3’ |
| glmnet | CRAN | v4.1 | LASSO 회귀 분석 |
| 유전자 세트 변이 분석(GSVA) | Bioconductor | v1.52.3 | ssGSEA 분석 |
| Hifair III 1차 가닥 cDNA 합성 슈퍼믹스 | YEASEN | 11141ES | cDNA 합성 |
| Hieff RTPCR SYBR Green Master Mix | YEASEN | 11201ES | qPCR 증폭 |
| limma | Bioconductor | v3.54.0 | 차등 발현 |
| LightCycler 480 II 시스템 | Roche | LightCycler 480 II | 실시간 PCR |
| PTRF 프라이머 | 칭케 | 해당 사항 없음 | 정방향: 5’-GGGCCGTAGACCAGATCCA-3’ 역전: 5’-CTTGCTCACCGTATTGCTCGT-3’ |
| PRKCDBP 프라이머 | 칭케 | 제공된 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 정방향: 5’-CACGTTCTGCTCTTCAAGGAG-3’ 역전: 5’-TGTACCTTCTGCAATCCGGTG-3’ |
| R 소프트웨어 | R 재단 | v4.4.2 | 통계 컴퓨팅 |
| 랜덤 포레스트 | CRAN | v4.7 | 랜덤 포레스트 |
| RNA 분리 장치 MolPure Blood RNA Kit | 이스트라디올(estradiol) | 19241ES50 | RNA 추출 |
| STRING 데이터베이스 | EMBL | 온라인 | 단백질-단백질 상호작용 네트워크 |
| TOR3A 프라이머 | 칭케 | 제시된 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 정방향: 5’-CCCTTGCTCTGTCGTTCCAC-3’ 역전: 5’-CCCGTCCCGATACAGGTTC-3’ |
| UPP1 프라이머 | 칭커 | 제공된 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 정방향: 5’-CTGTCAGTCATGGTATGGGCA-3’ 역전: 5’-GAGCACCGGGCATAGTACA-3’ |
| 가중치 유전자 공발현 네트워크 분석(WGCNA) | CRAN | v1.72 | 공발현 네트워크 |
| XGBoost | CRAN | v1.7 | XGBoost 알고리즘 |
참고문헌
- Hogg JC. Pathophysiology of airflow limitation in chronic obstructive pulmonary disease. Lancet. 2004;364(9435):709-21.
- Baraldo S, Turato G, Saetta M. Pathophysiology of the small airways in chronic obstructive pulmonary disease. Respiration. 2012;84(2):89-97.
- Fischer BM, Pavlisko E, Voynow JA. Pathogenic triad in COPD: oxidative stress, protease-antiprotease imbalance, and inflammation. Int J Chron Obstruct Pulmon Dis. 2011;6:413-21.
- Pandey KC, De S, Mishra PK. Role of proteases in chronic obstructive pulmonary disease. Front Pharmacol. 2017;8:512.
- Wang L, Xie J, Hu Y, Tian Y. Air pollution and risk of chronic obstructed pulmonary disease: the modifying effect of genetic susceptibility and lifestyle. EBioMedicine. 2022;79:103994.
- Elonheimo HM, et al. Environmental substances associated with chronic obstructive pulmonary disease-a scoping review. Int J Environ Res Public Health. 2022;19(7):3945.
- Chen S, et al. The global economic burden of chronic obstructive pulmonary disease for 204 countries and territories in 2020-50: a health-augmented macroeconomic modelling study. Lancet Glob Health. 2023;11(8):e1183-e93.
- Rutten-van Mölken MP, et al. Costs and effects of inhaled corticosteroids and bronchodilators in asthma and chronic obstructive pulmonary disease. Am J Respir Crit Care Med. 1995;151(4):975-82.
- Ontiveros RJ, Stoute J, Liu KF. The chemical diversity of RNA modifications. Biochem J. 2019;476(8):1227-45.
- Roundtree IA, Evans ME, Pan T, He C. Dynamic RNA modifications in gene expression regulation. Cell. 2017;169(7):1187-200.
- Wang C, et al. RNA modification in cardiovascular disease: implications for therapeutic interventions. Signal Transduct Target Ther. 2023;8(1):412.
- Zhang W, et al. ac4C acetylation regulates mRNA stability and translation efficiency in osteosarcoma. Heliyon. 2023;9(6):e17103.
- Qiu L, Jing Q, Li Y, Han J. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Luo J, Cao J, Chen C, Xie H. Emerging role of RNA acetylation modification ac4C in diseases: current advances and future challenges. Biochem Pharmacol. 2023;213:115628.
- Li H, et al. RNA cytidine acetyltransferase NAT10 maintains T cell pathogenicity in inflammatory bowel disease. Cell Discov. 2025;11(1):19.
- Wang JN, et al. NAT10 exacerbates acute renal inflammation by enhancing N4-acetylcytidine modification of the CCL2/CXCL1 axis. Proc Natl Acad Sci U S A. 2025;122(17):e2418409122.
- Shenshen W, et al. NAT10 accelerates pulmonary fibrosis through N4-acetylated TGFB1-initiated epithelial-to-mesenchymal transition upon ambient fine particulate matter exposure. Environ Pollut. 2023;322:121149.
- Liu J, et al. Unveiling ac4C modification pattern: a prospective target for improving the response to immunotherapeutic strategies in melanoma. J Transl Med. 2025;23(1):287.
- Su F, et al. Multimodal single-cell analyses outline the immune microenvironment and therapeutic effectors of interstitial cystitis/bladder pain syndrome. Adv Sci (Weinh). 2022;9(18):e2106063.
- Schiffers S, Oberdoerffer S. ac4C: a fragile modification with stabilizing functions in RNA metabolism. RNA. 2024;30(5):583-94.
- Jiao L, et al. Emerging role of N-acetyltransferase 10 in diseases: RNA ac4C modification and beyond. Mol Biomed. 2025;6(1):46.
- Zheng N, et al. Regulatory roles of NAT10 in airway epithelial cell function and metabolism in pathological conditions. Cell Biol Toxicol. 2023;39(4):1237-56.
- Du J, et al. PTRF-IL33-ZBP1 signaling mediating macrophage necroptosis contributes to HDM-induced airway inflammation. Cell Death Dis. 2023;14(7):432.
- Lai K, et al. Uridine alleviates sepsis-induced acute lung injury by inhibiting ferroptosis of macrophage. Int J Mol Sci. 2023;24(6):5093.
- Kumari R, Jat P. Mechanisms of cellular senescence: cell cycle arrest and senescence associated secretory phenotype. Front Cell Dev Biol. 2021;9:645593.
- Ogrodnik M, Salmonowicz H, Jurk D, Passos JF. Expansion and cell-cycle arrest: common denominators of cellular senescence. Trends Biochem Sci. 2019;44(12):996-1008.
- Kumar M, Seeger W, Voswinckel R. Senescence-associated secretory phenotype and its possible role in chronic obstructive pulmonary disease. Am J Respir Cell Mol Biol. 2014;51(3):323-33.
- Pérez-Rubio G, et al. Role of genetic susceptibility in nicotine addiction and chronic obstructive pulmonary disease. Rev Invest Clin. 2019;71(1):36-54.
- Liu Y, Wang R, Jiang T. RNA-binding proteins as a molecular link between COPD and pulmonary hypertension. Int J Med Sci. 2025;22(8):1979-91.
- Marques TM, Gama-Carvalho M. Network approaches to study endogenous RNA competition and its impact on tissue-specific microRNA functions. Biomolecules. 2022;12(2):332.
- Wang J, Xia B, Ma R, Ye Q. Comprehensive analysis of a competing endogenous RNA co-expression network in chronic obstructive pulmonary disease. Int J Chron Obstruct Pulmon Dis. 2023;18:2417-29.
- Zhang J, et al. Construction of a ceRNA network and screening of potential biomarkers and molecular targets in male smokers with chronic obstructive pulmonary disease. Front Genet. 2024;15:1376721.
- Celikoğlu F, Celikoğlu SI. Intratumoural chemotherapy with 5-fluorouracil for palliation of bronchial cancer in patients with severe airway obstruction. J Pharm Pharmacol. 2003;55(10):1441-8.
- Chan AK, Choo BA, Glaholm J. Pulmonary toxicity with oxaliplatin and capecitabine/5-fluorouracil chemotherapy: a case report and review of the literature. Onkologie. 2011;34(8-9):443-6.