본 프로토콜은 중증 급성 호흡기 증후군 코로나바이러스 2(severe acute respiratory syndrome coronavirus 2)와 리포폴리사카라이드(lipopolysaccharide)를 함께 비강 내로 투여하여 유도한 코로나바이러스 감염증 2019 관련 폐 손상 마우스 모델에 대해 설명합니다. 이 모델을 통해 폐 염증 반응, 저해된 제1형 인터페론 반응 및 잠재적인 치료적 개입을 조사할 수 있습니다.
방법 논문
Severe Acute Respiratory Syndrome Coronavirus 2 및 리포폴리사카라이드에 의해 유도된 코로나바이러스 감염증 2019 관련 폐 손상 마우스 모델
45 조회수
⸱
2026년 9월 11일
* These authors contributed equally
이 논문에서
요약
초록
백신 접종과 항바이러스 치료가 널리 시행되었음에도 불구하고, SARS-CoV-2 감염은 취약 계층에서 여전히 상당한 이환율과 사망률을 유발하고 있으며, 이는 COVID-19의 병인론을 조사하고 약물 작용 기전을 규명하며 잠재적 치료 전략을 평가하기 위한 신뢰할 수 있는 실험 모델의 시급한 필요성을 강조합니다. SARS-CoV-2 감염은 과도한 염증 반응과 제1형 인터페론(IFN-I) 매개 항바이러스 면역의 손상을 특징으로 하는 심각한 폐 손상을 일으킬 수 있으나, 현재의 동물 모델은 COVID-19와 관련된 불균형한 면역-염증 반응을 재현하는 데 한계가 있습니다. 이에 COVID-19의 주요 면역 병리학적 특징을 재현하기 위해 SARS-CoV-2 및 LPS 유도 COVID-19 관련 폐 손상 마우스 모델을 개발하였습니다. 이 모델은 염증 세포 침윤, 폐포 구조 파괴, 전염증성 사이토카인의 발현 증가와 더불어 IFN-I 반응의 손상을 포함한 폐 조직의 두드러진 병리학적 특징을 유도합니다. 본 연구에서는 SARS-CoV-2 및 LPS 유도 폐 손상 마우스 모델을 구축하는 데 사용된 절차를 상세히 기술하고, 폐 조직병리학적 변화, 바이러스 양, 염증성 사이토카인 및 IFN-I 수치 분석을 통해 이 모델의 특성을 체계적으로 규명합니다. 이 모델은 COVID-19 관련 폐 손상의 기저에 있는 면역-염증 기전과 폐 조직 회복 과정에 관여하는 프로세스를 연구하기 위한 실험 플랫폼을 제공하며, 면역-염증 불균형을 완화하고 폐 기능 회복을 촉진하기 위한 치료 전략을 평가하는 기초를 제공합니다.
서론
2019년 말 출현 이후, SARS-CoV-2는 전 세계적인 공중 보건 위기를 초래했으며, 지속적인 바이러스 진화는 기존 백신 및 치료 전략에 계속해서 도전 과제가 되고 있습니다1,2,3. 따라서 COVID-19 관련 폐 손상에 대한 추가 연구는 질병 기전을 규명하고 치료 전략을 발전시키는 데 필수적입니다.
SARS-CoV-2 감염은 심각한 폐 손상을 유발할 수 있으며, 급성 호흡곤란 증후군(ARDS) 및 다기관 기능 부전 증후군으로 진행될 수 있습니다4,5. 점차 많은 증거들이 COVID-19 관련 폐 손상의 발병 기전이 매우 복잡하며, 면역 및 염증 반응의 조절 장애가 핵심적인 특징임을 시사하고 있습니다6,7,8,9. 한편으로 SARS-CoV-2 감염은 과도한 염증 반응을 유도하여 interleukin-6 (IL-6), interleukin-1β (IL-1β), tumor necrosis factor-α (TNF-α)와 같은 전염증성 사이토카인의 대량 방출을 초래하며, 이를 통해 소위 “사이토카인 폭풍”을 유발하는데10,11, 이는 폐 손상 및 질병 진행의 주요 동인으로 간주됩니다. 다른 한편으로, 감염 초기 단계에서 SARS-CoV-2는 여러 기전을 통해 숙주의 IFN-I 반응을 억제하여, IFN-I 매개 항바이러스 면역을 손상시킵니다12,13,14. 따라서 전염증성 사이토카인 수치의 상승을 동반한 지연된 인터페론 반응은 COVID-19의 특징적인 특성으로 여겨집니다6,15.
현재 이용 가능한 COVID-19 동물 모델은 주로 hACE2 형질전환 마우스, 마우스 적응 바이러스 균주, 또는 페럿 및 비인간 영장류와 같은 다른 종에 의존하고 있습니다16,17. 그러나 마우스에서의 일반적인 SARS-CoV-2 감염 모델은 COVID-19의 과염증 특성을 완전히 재현하지 못하는 경우가 많습니다18,19,20. TLR4 작용제인 LPS는 강력한 염증 반응을 유도하며 급성 폐 손상 모델에서 널리 사용됩니다21. 따라서 본 연구에서 설명하는 SARS-CoV-2 및 LPS 유도 모델은 COVID-19 관련 폐 손상, 특히 과도한 염증 활성화 및 손상된 항바이러스 면역 반응의 기전에 초점을 맞춘 연구를 위해 설계되었습니다. SARS-CoV-2 단독 모델과 비교하여, 이 접근 방식은 바이러스 감염 맥락을 유지하면서 면역 염증 특성을 강조합니다. 이 모델은 바이러스 전파나 SARS-CoV-2 감염의 전체적인 자연 경과를 모델링하기보다는 면역 염증 기전을 조사하는 데 상당한 잠재력을 가지고 있습니다.
본 프로토콜은 SARS-CoV-2 및 LPS로 유도된 COVID-19 관련 폐 손상 마우스 모델의 절차적 수립 방법을 설명합니다. 기존 모델들이 COVID-19와 관련된 면역-염증 조절 장애를 재현하는 데 한계가 있다는 점을 고려하여, 이 접근 방식은 질환 기전을 연구하고 잠재적인 치료 전략을 평가하기 위한 실용적인 플랫폼을 제공합니다. 해당 모델은 폐 조직병리학, 바이러스 수치, 염증성 사이토카인 및 IFN-I 반응을 통해 체계적으로 평가되었습니다.
프로토콜
본 연구는 SARS-CoV-2와 LPS의 비강 내 점적 투여를 통해 COVID-19 관련 폐 손상 마우스 모델을 구축함으로써, 형질전환 마우스 모델을 대체할 수 있는 안정적이고 비용 효율적인 대안을 제시하였습니다. 해당 실험 프로토콜은 사천(Sichuan) 질병관리예방센터의 승인을 받았으며, 동물 실험 윤리 승인[Sichuan CDC (Animal Ethics) Approval No. 005 (2025)]을 획득하였습니다. 모든 절차는 관련 가이드라인 및 생물 안전 규정을 엄격히 준수하여 수행되었습니다.
주요 시약 및 장비에 대한 자세한 정보는 재료 표에 제공되어 있습니다.
1. 연구 프로토콜 설계
- BALB/c 마우스를 대조군 또는 모델군에 무작위로 배정합니다.
- 0일 차에 모델군 마우스의 비강 내로 SARS-CoV-2를 투여합니다.
- 2일 차에 모델군 마우스의 비강 내로 LPS를 투여합니다.
- 대조군 마우스에는 해당 시점에 동일한 부피의 생리 식염수를 비강 내로 투여합니다.
- SARS-CoV-2 감염 3일 차에 모든 마우스를 안락사시키고, 모델 검증을 위해 폐 조직을 수집합니다.
참고: 실험 워크플로우는 그림 1A에 도식화되어 있습니다.
2. 준비 단계
- 동물 준비
- 연령 6–8개월, 체중 약 25–30 g의 특정 병원체 제거(SPF) 암컷 BALB/c 마우스를 사용한다.
- 난수표를 사용하여 마우스를 대조군 또는 모델군으로 무작위 배정하며, 그룹당 4마리씩 배정한다.
- 사료와 물을 자유롭게 섭취할 수 있는 표준 실험실 조건에서 마우스를 사육한다.
참고: 이전 연구들에 따르면 고령 마우스가 어린 마우스보다 비강 내 SARS-CoV-2 감염에 더 취약한 것으로 나타났다18,22. 따라서 본 연구에서는 SARS-CoV-2 관련 폐 손상 모델 구축을 용이하게 하기 위해 고령 BALB/c 마우스를 선정하였다. - 각 마우스의 비강 내에 마우스당 최종 감염 용량이 4.5 x 10⁵ TCID₅₀에 해당하는 100 µL의 바이러스 현탁액을 접종한다.
참고: SARS-CoV-2는 Sichuan Center for Disease Control and Prevention에서 제공받았다. 본 연구에 사용된 균주는 SARS-CoV-2 오미크론 변이체이며, 바이러스 스톡 농도는 4.5 x 10⁶ TCID₅₀/mL였다.
주의: SARS-CoV-2는 고병원성 미생물이므로, 모든 바이러스 관련 절차는 동물 생물안전 3등급(ABSL-3) 시설에서 수행한다. 다른 바이러스 변이체나 동물 모델을 사용할 때는 예비 실험을 바탕으로 감염 용량을 최적화한다.
- 작업 스톡 준비
- LPS 스톡 용액 준비: LPS 분말 3 mg을 정밀히 달아 생리식염수 1 mL에 녹인다. 완전히 용해될 때까지 부드럽게 섞거나 계속해서 볼텍싱하여 3 mg/mL 농도의 스톡 용액을 얻는다. 투여 전, 마우스의 체중에 따라 생리식염수로 스톡 용액을 원하는 작업 농도로 추가 희석한다.
- 마취액 준비: Zoletil 패키지에 포함된 멸균 주사용 증류수로 분말을 재구성하여 이후 사용에 필요한 질량-부피 비율의 용액을 준비한다.
- 바이러스 작업 용액 준비: 사용 전, 바이오안전 작업대(BSC) 내의 얼음 위에서 1 mL의 SARS-CoV-2 바이러스 현탁액을 천천히 해동한다.
참고: 모든 작업 용액을 준비하고 사용할 때는 각 제조사의 지침을 따른다.
3. 마우스의 비강 내 투여
- 투여 전 각 마우스의 체중을 측정하고 기록합니다.
- 각 마우스의 체중에 따라 Zoletil과 LPS의 투여량을 계산합니다.
- 해당하는 작업 용액을 조제하고, 이후 투여를 위해 적절한 주사기로 필요한 부피를 흡입합니다.
- 마우스 보정: 왼손의 엄지와 검지로 귀와 목 뒤쪽의 피부를 잡아 마우스의 목덜미를 부드럽게 잡습니다.
- 동물을 손바닥 위에 놓고 약지와 소지로 등과 꼬리를 고정합니다. 복부가 완전히 노출되고 신체가 안정되도록 마우스를 앙와위(supine orientation)로 배치합니다.
- 소독: 멸균 면봉을 사용하여 75% ethanol로 복부 주사 부위를 소독합니다.
- 마취: Zoletil (25mg/kg)이 담긴 주사기 바늘을 하복부 중앙선에서 측면으로 약 0.5 cm 지점에 삽입합니다. 피부 관통 후 바늘을 45° 각도로 복강 내에 약 2–3 mm 깊이까지 진입시킵니다. 혈액이 섞여 나오지 않는지 확인하기 위해 흡인한 후 마취제를 천천히 투여합니다.
참고: 충분한 마취를 보장하고 폐사율을 최소화하기 위해 예비 실험을 바탕으로 마취 용량을 최적화하십시오. 조직 손상을 최소화하기 위해 반복적인 천자를 피하십시오. - 마취 확인: 호흡 곤란이나 호흡 부전의 징후 없이 안정적이고 규칙적인 호흡이 관찰되는지 확인하여 마취 상태를 확인합니다.
- SARS-CoV-2 비강 내 점적 투여 (0일차): 마이크로피펫 또는 주사기를 사용하여, 안정적인 호흡 주기 중 흡기 시작 시점에 SARS-CoV-2 바이러스 현탁액 100 µL(콧구멍당 50 µL)를 외비공에 천천히 한 방울씩 투여합니다.
- 균일한 흡입을 돕기 위해 콧구멍을 번갈아 가며 투여합니다. 대조군 마우스에는 동일한 절차를 사용하여 동일한 부피의 생리식염수를 처리합니다.
참고: 용액을 한 방울씩 투여하며, 목표 부피에 도달할 때까지 다음 방울을 투여하기 전 각 방울이 비강 내로 흡입되었는지 확인하십시오. - 투여 후 처리: 비강 내 점적 투여 후 약 30–60 s 동안 마우스의 머리를 약간 높게 유지하여 용액이 하기도로 잘 전달되도록 합니다. 마취 회복 징후가 관찰되면 마우스를 케이지로 복귀시키고 완전히 의식을 회복할 때까지 관찰합니다.
- 기록 및 모니터링: 각 마우스의 투여 부피와 식별 번호를 기록합니다. 실험 기간 동안 동물의 생존 상태와 일반적인 생리적 상태를 지속적으로 모니터링합니다.
- LPS 비강 내 점적 투여 (2일차): SARS-CoV-2 감염 후 2일차에 마우스에 LPS를 투여합니다. SARS-CoV-2 투여에 사용된 것과 동일한 프로토콜에 따라 LPS (5 mg/kg)를 비강 내로 투여합니다. 대조군 마우스에는 동일한 절차를 사용하여 동일한 부피의 생리식염수를 투여합니다.
참고: 이 단계에서 LPS와 생리식염수는 마취 및 비강 내 투여를 포함하여 SARS-CoV-2 접종과 동일한 절차로 투여되었습니다.
4. 마우스 해부 및 폐 조직 수집
- SARS-CoV-2 감염 후 3일 차에 조직 수집을 위해 마우스를 안락사시킵니다. 먼저 동물을 마취한 후 경추 탈골법으로 희생시킵니다. 대조군 마우스도 동일한 절차로 처리합니다.
참고: 경추 탈골에 관한 상세 절차는 보충 파일 1을 참조하십시오. - 안락사시킨 마우스를 해부판 위에 복부와 흉부 부위가 완전히 노출되도록 앙와위로 고정합니다. 오염을 최소화하기 위해 복부 털을 75% 에탄올로 적십니다.
- 멸균 가위를 사용하여 양측 갈비뼈 가장자리를 따라 흉골을 조심스럽게 절개하고 흉강을 서서히 엽니다. 핀셋을 사용하여 조직을 부드럽게 견인하고, 폐 조직의 기계적 손상을 최소화하면서 주변 흉부 구조물로부터 폐를 단계적으로 박리합니다.
참고: 절단 시 심장, 폐 및 주요 혈관 구조의 손상을 방지하기 위해 가위 끝의 방향을 주의 깊게 조절하십시오. - 적출한 폐 조직을 즉시 냉각된 PBS 또는 생리식염수에 넣고 2~3회 가볍게 헹구어 잔류 혈액과 부유물을 제거합니다. 보풀 없는 여과지로 표면의 과잉 액체를 조심스럽게 닦아내며, 조직의 구조적 손상을 방지하기 위해 압착하지 않도록 주의합니다.
- 처리된 폐 조직의 무게를 전자저울로 즉시 측정하고 그 값을 기록합니다.
- 우측 미엽을 절제하여 이후의 조직병리학적 분석을 위해 조직 부피의 10배에 해당하는 4% 파라포름알데히드에 즉시 고정합니다.
주의: 파라포름알데히드는 독성이 있으므로 기관 안전 가이드라인에 따라 취급하십시오. - 나머지 폐 조직을 수집하여 크라이오바이알에 분주하고, 액체 질소로 빠르게 냉동시킨 후 보존을 위해 −80 °C에 저장합니다. 우측 상엽, 우측 중엽 및 부엽은 SARS-CoV-2 바이러스 부하 및 염증성 사이토카인 검출용으로 할당하고, 좌측 폐는 ELISA 분석용으로 남겨둡니다.
주의: 액체 질소는 매우 차가우므로, 저온 화상이나 동상을 방지하기 위해 취급 시 적절한 저온 장갑과 보안경을 착용하십시오. - 해부를 완료한 후 모든 기구를 표준 절차에 따라 철저히 세척하고 멸균합니다. 동물 사체와 생물학적 폐기물은 동물 실험에 관한 기관 및 규제 가이드라인을 준수하여 처리합니다.
5. 헤마톡실린-에오신 (HE) 염색23
- 신선한 폐 조직을 4% 파라포름알데히드에 넣고 상온에서 24시간 동안 고정합니다.
참고: 고정 시간을 주의 깊게 조절하십시오. 고정이 불충분하면 조직 보존이 제대로 되지 않을 수 있으며, 고정 시간이 너무 길어지면 과도한 단백질 가교 결합이 발생하여 염색 품질에 영향을 줄 수 있습니다. - 자동 조직 처리기를 사용하여 고정된 조직의 단계적 탈수, 투명화 및 파라핀 침투 과정을 진행합니다.
참고: 자동 조직 처리기 프로토콜은 Supplementary File 2에 제공되어 있습니다. - 파라핀이 침투된 조직을 임베딩 몰드에 넣습니다. 용융된 파라핀을 붓고 조직의 방향을 주의 깊게 잡습니다.
- 몰드를 콜드 플레이트로 옮겨 응고시킵니다. 완전히 굳은 후 몰드에서 파라핀 블록을 꺼냅니다.
- 파라핀 블록을 마이크로톰에 장착하고 절단면이 칼날과 평행하도록 조정합니다. 약 3–5 µm 두께로 연속 절편을 제작합니다.
- 절편이 완전히 펴지도록 즉시 약 45 °C의 온수조로 옮겨 부상시킵니다.
- 슬라이드의 한쪽 끝을 수직으로 물에 담가 절편을 낚아올리며, 핀셋을 사용하여 절편이 슬라이드 표면에 적절히 부착되도록 돕습니다.
- 조직 부착력을 높이기 위해 슬라이드를 65 °C 슬라이드 건조기에 넣고 약 1시간 동안 건조합니다.
참고: 조직 유형, 절편 두께 및 장비 상태에 따라 건조 시간을 조정하십시오. 조직 손상을 방지하기 위해 과열되지 않도록 주의하십시오. - 자동 염색기를 사용하여 건조된 절편의 HE 염색을 수행합니다.
참고: 자동 염색기 프로토콜은 Supplementary File 3에 제공되어 있습니다. - 염색된 절편을 꺼내어 자연 건조합니다. 중성 봉입제를 한 방울 떨어뜨리고 커버글라스를 덮습니다. 봉입제가 굳은 후 광학 현미경으로 절편을 관찰합니다.
6. 폐 조직 내 SARS-CoV-2 바이러스 부하 및 염증성 사이토카인 발현
- 폐 조직 균질화
- 4~5개의 스테인리스 스틸 비드(직경 3 mm)와 균질화 매질로 사용할 900 µL의 냉각된 용해 버퍼를 넣어 RNase-free 균질화 튜브를 준비한다.
참고: 용해 버퍼의 부피는 조직 무게에 따라 조절하며, 일반적으로 조직 1 g당 약 9 mL의 비율로 사용한다. - 약 50 mg의 폐 조직을 측정하여 미세하게 다진 후, 균질화 튜브에 옮긴다.
- 조직 분쇄기(60 Hz, 60 s, 사이클 간 10 s 간격으로 2~3회 사이클)를 사용하여 조직을 균질화한다.
참고: 기기 및 조직 유형에 따라 균질화 매개변수를 최적화한다. - 균질화 후 샘플을 검사하여 완전히 분해되었는지 확인한다. 균일한 용해물이 얻어질 때까지 눈에 보이는 조직 파편이 남아 있다면 균질화 과정을 반복한다.
- 4~5개의 스테인리스 스틸 비드(직경 3 mm)와 균질화 매질로 사용할 900 µL의 냉각된 용해 버퍼를 넣어 RNase-free 균질화 튜브를 준비한다.
- 폐 조직으로부터의 컬럼 기반 총 RNA 추출
참고: 제조사의 지침에 따라 컬럼 기반 정제법을 사용하여 폐 조직에서 총 RNA를 추출한다. 해당되는 경우, 관련 제품 매뉴얼에 따라 대체 RNA 추출 방법을 수행한다.- 균질물을 새로운 2 mL RNase-free 마이크로 원심분리 튜브로 옮긴다. gDNA Eliminator 용액 100 µL를 첨가한다. 튜브 캡을 닫고 15~20 s 동안 강하게 흔든다.
- 캡을 잠시 열고 클로로포름 180 µL를 첨가한 후, 15 s 동안 철저히 볼텍싱한다.
주의: 클로로포름은 휘발성 및 독성이 있으므로 환기가 잘 되는 구역이나 화학 흄 후드 내에서 취급하고, 흡입 및 피부 접촉을 피하기 위해 적절한 개인 보호 장구를 착용한다. - 샘플을 상온에서 2분 동안 배양한 후, 4 °C에서 12,000 x g로 15분 동안 원심분리한다.
- 상층의 수성층을 주의 깊게 새 튜브로 옮긴다. 70% 에탄올을 동일한 부피로 첨가하고 볼텍싱하여 충분히 섞는다.
참고: RNA 순도를 보장하기 위해 수성층을 수집할 때 계면과 유기층을 건드리지 않도록 주의한다. 70% 에탄올을 첨가한 후 원심분리 없이 즉시 다음 단계로 진행한다. - 혼합물을 스핀 컬럼으로 옮기고 8,000 x g에서 15 s 동안 원심분리한다. 통과액은 버린다.
- 스핀 컬럼에 세척 버퍼 700 µL를 첨가하고 8,000 x g에서 15 s 동안 원심분리한다. 통과액은 버린다.
- 스핀 컬럼에 세척 버퍼 500 µL를 첨가하고 8,000 x g에서 15 s 동안 원심분리한다. 이 세척 단계를 1회 더 반복한다.
- 스핀 컬럼을 새로운 수집 튜브로 옮기고 12,000 x g에서 1분 동안 원심분리하여 잔류 세척 버퍼를 제거한다.
- 스핀 컬럼을 새로운 1.5 mL RNase-free 마이크로 원심분리 튜브에 넣는다. 멤브레인 중앙에 RNase-free water 30 µL를 직접 첨가하고 8,000 x g에서 1분 동안 원심분리하여 RNA를 용출한다.
참고: 후속 응용 분야에 따라 RNase-free water의 부피를 30~50 µL 범위에서 조절한다. 더 높은 RNA 농도가 필요한 경우 용출 부피를 낮게 설정한다.
- 역전사 디지털 PCR(RT-dPCR)을 이용한 SARS-CoV-2 바이러스 양 검출
참고: SARS-CoV-2 RNA의 절대 정량을 위해 원스텝 RT-dPCR 분석법을 사용하였다. 바이러스 RNA 복제 수를 결정하기 위해 뉴클레오캡시드(N) 유전자를 표적으로 하는 특정 프라이머-프로브 세트를 사용하였다.- RNA 샘플과 시약을 얼음 위에서 해동한다.
- 제조사의 지침에 따라 RT-dPCR 반응 혼합물을 준비한다.
- RT-dPCR 반응 혼합물 20 µL와 RNA 템플릿 20 µL를 혼합한다. 혼합물을 짧게 볼텍싱하고, 짧게 원심분리(short spin)한 후 얼음 위에 보관한다.
- 40 µL의 반응 혼합물을 디지털 PCR 칩 웰에 로딩하고, 기기 프로토콜에 따라 칩을 밀봉한다.
- 다음의 열 순환 조건으로 증폭을 수행한다: 50 °C에서 40분(1 사이클), 95 °C에서 2분(1 사이클), 이어서 95 °C에서 15 s 및 57 °C에서 60 s로 40 사이클을 수행한다. 검출 채널은 GREEN(250 ms)과 RED(150 ms)로 설정한다.
- 역전사 정량 PCR(RT-qPCR)을 이용한 염증성 사이토카인 발현 검출
- UV 분광광도계를 사용하여 RNA 농도와 순도를 측정한다.
- 제조사의 지침에 따라 역전사를 통해 상보적 DNA(cDNA)를 합성하기 위해 반응당 1,000 ng의 총 RNA를 사용한다.
- SYBR Green PCR 마스터 믹스와 유전자 특이적 프라이머를 사용하여, 반응당 100 ng의 cDNA를 템플릿으로 RT-qPCR을 수행한다. 다음의 사이클 조건을 사용한다: 95 °C에서 2분, 이어서 95 °C에서 5 s 및 60 °C에서 10 s로 40 사이클을 수행한다. 프라이머 서열은 표 1에 나열되어 있다.
참고: 사용된 특정 시약 및 기기에 따라 반응 조건을 최적화하고, 해당 제조사의 지침을 따른다. - GAPDH를 내부 참조 유전자로 사용하고 2−ΔΔCt 방법을 사용하여 상대적 유전자 발현 수준을 계산한다.
7. 효소결합 면역흡착 분석법(ELISA)을 이용한 폐 조직 내 염증성 사이토카인 검출24
참고: 각 제조사에서 제공하는 특정 프로토콜에 따라 ELISA 키트를 사용하십시오. 다른 공급업체의 키트를 사용할 때는 해당 제조사의 지침을 엄격히 따르십시오.
- 위에서 설명한 대로 폐 조직을 균질화합니다. 균질화 매질로는 PBS 또는 ELISA 전용 조직 용해 버퍼를 사용합니다.
- 균질화된 샘플을 원심분리하고(예: 12,000 x g, 4 °C, 10분), 이후 분석을 위해 상층액을 수집합니다.
- 사용 전 ELISA 키트를 실온에서 30분 동안 평형화합니다. 알루미늄 호일 파우치에서 필요한 마이크로플레이트 스트립을 꺼냅니다.
- 제조업체의 지침에 따라 표준 물질, 샘플 웰 및 공백 웰을 준비합니다. 표준 웰에는 표준 물질 50 µL를, 샘플 웰에는 샘플 10 µL와 샘플 희석 버퍼 40 µL를 첨가합니다. 각 표준 물질과 샘플에 대해 두 번의 기술적 반복 실험(technical replicates)을 수행합니다.
- 공백 웰을 제외한 각 표준 및 샘플 웰에 horseradish peroxidase (HRP)-접합 검출 항체 100 µL를 첨가합니다. 플레이트를 접착 필름으로 밀봉하고 37 °C에서 60분 동안 배양합니다.
- 배양 후 각 웰의 액체를 버리고, 플레이트를 흡수지에 가볍게 두드려 잔류 액체를 제거합니다.
- 각 웰에 세척 버퍼를 넣고 1분 동안 방치한 후 버퍼를 버립니다. 플레이트를 닦아 건조합니다. 이 세척 단계를 총 5회 반복합니다.
- 각 웰에 기질 용액 A 50 µL와 기질 용액 B 50 µL를 순차적으로 첨가합니다. 플레이트를 가볍게 섞고 암소의 37 °C에서 15분 동안 배양하여 발색시킵니다.
- 각 웰에 정지 용액 50 µL를 첨가하여 반응을 종료합니다. 마이크로플레이트 리더를 사용하여 10분 이내에 450 nm에서 흡광도(OD)를 측정합니다.
- 표준 농도(x축)를 OD 값(y축)에 대해 플롯하여 표준 곡선을 생성하고 곡선을 피팅합니다. OD 값을 표준 곡선 방정식에 대입하여 샘플 내 표적 사이토카인의 농도를 계산하고, 해당하는 희석 배수를 곱합니다.
- BCA 단백질 분석 키트를 사용하여 폐 조직의 총 단백질 농도를 결정합니다. 최종 사이토카인 수치를 총 단백질 함량으로 정규화하고, 결과를 총 단백질 1mg당 표적 사이토카인의 양(예: pg/mg protein)으로 표시합니다.
결과
대조군과 모델군 모두에서 폐의 조직병리학적 변화, SARS-CoV-2 바이러스 부하, 전염증성 사이토카인 및 제1형 인터페론 수치를 평가하여 모델 검증을 수행하였습니다.
통계 분석
데이터는 평균 ± 표준 오차(SE)로 표시되었습니다. 모델 그룹과 대조군 간의 비교를 위해 비쌍체 Student’s t-test를 사용하였습니다. 이 테스트는 두 독립 집단 간의 연속 변수 평균을 비교하는 데 적합하므로 선택되었습니다. 본 연구에서는 마우스가 두 그룹에 독립적이고 무작위로 배정되어 표본의 독립성 가정을 충족하였습니다. p-value < 0.05인 경우를 통계적으로 유의미한 것으로 간주하였습니다.
마우스의 체중 및 폐 지수의 변화
그림 1B에 나타난 바와 같이, 모델링 전의 기저값과 비교했을 때 모델군의 생쥐 체중은 감염 후 유의하게 감소했으며, 통계적으로 유의미한 차이를 보였습니다(p < 0.05). 그림 1C에 나타난 바와 같이, 모델군 생쥐의 폐 지수는 대조군에 비해 유의하게 증가했으며(p < 0.01), 이는 폐 손상의 전형적인 특징과 일치합니다. 실험 기간 동안 사망 사례는 관찰되지 않았으며, 모든 생쥐가 종료 시점까지 생존했습니다.
폐 조직의 조직병리학적 변화 및 마우스의 SARS-CoV-2 바이러스 부하
그림 2는 두 그룹의 마우스 폐 조직에서 나타난 조직병리학적 변화와 바이러스 부하량을 나타냅니다. HE 염색 결과, 대조군은 폐 구조가 온전하게 유지된 반면, 모델군은 폐포 중격의 두꺼워짐, 염증 세포 침윤 및 폐포 구조 파괴를 포함한 상당한 폐 병리학적 변화를 보였습니다(그림 2A). 정량 분석을 통해 모델군에서 폐 손상 점수와 폐포 염증 점수 모두 대조군에 비해 유의하게 증가했음이 확인되었으며(p < 0.001), 이는 폐 손상 및 염증 반응이 성공적으로 유도되었음을 입증합니다(그림 2B,C).
또한, 모델 그룹의 폐 조직에서 상당 수준의 SARS-CoV-2 RNA 발현이 검출되었습니다. 감염 후 3일째에 폐 조직 내 평균 바이러스 부하는 5.5 x 10⁸ copies/g에 도달했으며(그림 2D), 이는 바이러스 복제가 성공적으로 이루어졌으며 폐 내에서 높은 수준으로 지속적으로 존재함을 나타냅니다.
마우스 폐 조직 내 전염증성 사이토카인 및 IFN-I의 변화
그림 3은 마우스 폐 조직 내 염증성 사이토카인 및 IFN-I의 변화를 보여줍니다. 분석 결과, 대조군과 비교하여 모델군의 폐 조직에서 IL-6, IL-1β 및 TNF-α의 mRNA 발현량과 단백질 수준이 유의하게 증가하여 (p < 0.05) (그림 3A–F), 염증 반응이 현저하게 활성화되었음을 나타냈습니다. 반면, ELISA 결과 모델군의 폐 조직 내 IFN-α 및 IFN-β 수준은 대조군에 비해 유의하게 감소하여 (p < 0.001) (그림 3G,H), 항바이러스 면역 반응이 억제되었음을 시사했습니다.
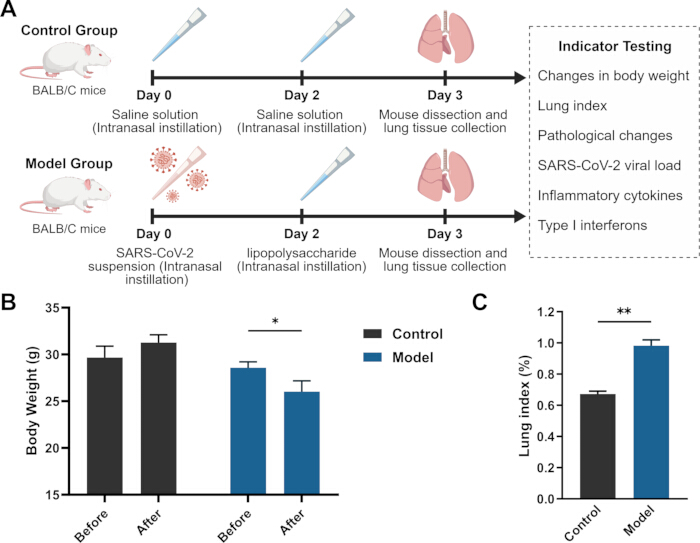
그림 1: 실험 흐름도 및 마우스의 체중과 폐 지수의 변화. (A) 실험 흐름도. (B) 마우스의 체중 변화. (C) 마우스의 폐 지수 변화. 데이터는 각 그룹의 mean ± SE로 표시됨. 그룹 간의 통계적 차이를 평가하기 위해 Student's t-test를 사용함. *p < 0.05; **p < 0.01; ***p < 0.001. 그림 1A는 BioGDP.com25으로 제작됨. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
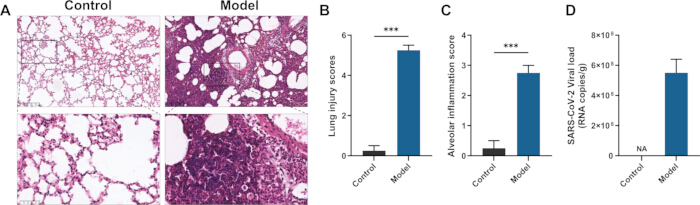
그림 2: 마우스 폐 조직의 조직병리학적 변화 및 SARS-CoV-2 바이러스 부하.(A) 마우스 폐 조직의 HE 염색. (B) 폐 손상 점수(Smith 점수). (C) 폐포 염증 점수(Szapiel 점수). (D) 폐 조직 내 SARS-CoV-2 바이러스 부하. 데이터는 각 그룹의 mean ± SE로 표시됨. 그룹 간의 통계적 차이를 평가하기 위해 Student’s t-test를 사용함. *p < 0.05; **p < 0.01; ***p < 0.001. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
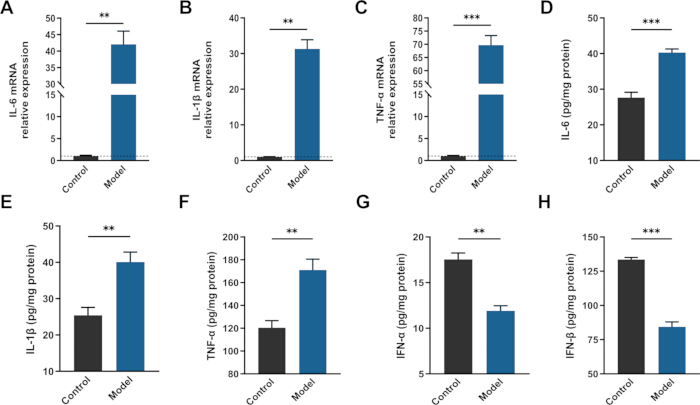
그림 3: 마우스 폐 조직 내 전염증성 사이토카인 및 IFN-I의 변화. (A–C) 마우스 폐 조직에서 전염증성 사이토카인 IL-6, IL-1β 및 TNF-α의 상대적 mRNA 발현량. (D–F) 마우스 폐 조직 내 IL-6, IL-1β 및 TNF-α의 단백질 수준. (G–H) 마우스 폐 조직 내 IFN-α 및 IFN-β의 수준. 데이터는 각 그룹의 평균 ± SE로 표시되었다. 그룹 간의 통계적 차이를 평가하기 위해 Student's t-test가 사용되었다. *p < 0.05; **p < 0.01; ***p < 0.001. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 프라이머 | 정방향 서열 (5’에서 3’ 방향) | 역서열 (5’에서 3’ 방향) |
| IL-6 | CTTCTTGGGACTGATGCTGGTGAC | AGGTCTGTTGGGAGTGGTATCCTC |
| IL-1β | TCGCAGCAGCACATCAACAAGAG | AGGTCCACGGGAAAGACACAGG |
| TNF-α | GCCTCTTCTCATTCCTGCTTGTGG | GTGGTTTGTGAGTGTGAGGGTCTG |
| GAPDH | GGCAAATTCAACGGCACAGTCAAG | TCGCTCCTGGAAGATGGTGATGG |
표 1: 본 연구에 사용된 프라이머 서열. 표적 유전자 및 내부 참조 유전자에 대한 정방향 및 역방향 프라이머 서열(5′에서 3′ 방향)이 나열되어 있습니다.
보충 파일 1 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 2 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 3 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
본 연구에서는 SARS-CoV-2와 LPS의 비강 내 투여를 통해 COVID-19 관련 폐 손상 마우스 모델을 구축하였습니다. 연구 결과, SARS-CoV-2와 LPS를 비강 내로 공동 투여하면 IFN-I 신호 전달의 억제와 함께 강력한 염증 반응이 유도되는 것으로 나타났습니다. 모델 군의 마우스는 현저한 체중 감소와 폐 지수 증가를 보였으며, 이는 전신 쇠약과 악화된 폐 손상을 나타냅니다. HE 염색을 통해 모델 군에서 폐포 구조의 파괴와 광범위한 염증 세포 침윤을 특징으로 하는 전형적인 미만성 폐 손상이 나타남을 추가로 확인하였습니다. 또한, 대조군과 비교하여 모델 군의 폐 조직에서는 IL-6, IL-1β, TNF-α를 포함한 주요 전염증성 사이토카인의 발현이 유의하게 증가한 반면, IFN-α 및 IFN-β의 수치는 현저히 감소하였습니다. 이러한 결과는 항바이러스 면역의 억제와 함께 전염증성 반응의 과도한 활성화로 특징지어지는 면역 불균형 상태를 시사하며, 질병의 면역병리학적 특성을 재현하는 데 있어 본 모델의 잠재적 가치를 뒷받침합니다.
SARS-CoV-2 감염은 COVID-19 관련 장기 손상 발생의 핵심적인 추진 요인으로 간주됩니다26,27. 본 연구에서는 모델 마우스의 폐 조직에서 높은 바이러스 부하가 검출되었으며, 이와 함께 현저한 미만성 폐 손상 및 염증 세포 침윤이 동반되어 바이러스 감염이 폐 염증 반응의 주요 트리거가 될 수 있음을 시사하였습니다. 이전 보고들과 일치하게 SARS-CoV-2 감염은 폐의 병리학적 변화와 면역 활성화를 유도할 수 있으나28, 마우스에서의 일반적인 SARS-CoV-2 감염 모델은 종종 제한적인 염증 반응을 보이며 COVID-19 환자에게서 관찰되는 과염증 표현형을 완전히 재현하지 못할 수 있습니다18,19,20. 따라서 질병과 관련된 면역-염증 조절 장애의 기전을 더 잘 조사하기 위해서는 추가적인 선천 면역 자극이 필요할 수 있습니다. 선천 면역의 전형적인 활성제인 LPS는 Toll-like receptor 4 (TLR4)에 결합하여 MyD88 의존성 및 TRIF 의존성 신호 전달 경로를 모두 트리거하며, 이를 통해 NF-κB와 같은 핵심 염증 전사 프로그램을 활성화하고 다수의 전염증성 사이토카인 발현을 유도합니다29. 또한 이전 연구들은 LPS 자극이 단독으로 또는 SARS-CoV-2 관련 성분과 결합하여 염증 반응을 강화하고 급성 폐 손상 유사 표현형에 기여할 수 있음을 입증하였으며, 이는 COVID-19 관련 연구에서 LPS를 염증 자극제로 도입하는 근거를 뒷받침합니다30,31,32. 본 연구에서 모델군의 폐 조직 내 IL-6, IL-1β 및 TNF-α 수준이 유의하게 상승한 것이 관찰되었으며, 이는 LPS가 단순히 세균성 공동 감염을 나타내는 것이 아니라 SARS-CoV-2 감염 상황에서 염증 증폭기로 작용함을 시사합니다. 바이러스 감염 배경이 없는 LPS 단독 염증 모델과 비교하여, 본 연구에서 구축한 복합 모델은 SARS-CoV-2로 유도된 면역 변화와 LPS 매개 염증 활성화를 통합함으로써 COVID-19 관련 폐 손상을 연구하기 위한 더욱 포괄적인 플랫폼을 제공합니다.
IFN-I은 숙주의 항바이러스 면역의 핵심 작동 분자이며, 광범위한 인터페론 자극 유전자(ISGs)를 유도함으로써 광범위한 항바이러스 기능을 수행합니다33. 그러나 SARS-CoV-2는 패턴 인식 수용체(PRR) 매개 신호 전달 방해, 인터페론 조절 인자(IRF) 활성화 억제, 하위 JAK-STAT 신호 전달 차단 등 여러 기전을 통해 IFN-I 신호 전달을 길항함으로써 숙주의 항바이러스 방어 능력을 손상시키는 것으로 입증되었습니다14,34. 본 연구에서는 모델 그룹의 폐 조직에서 IFN-α 및 IFN-β 수치가 유의하게 감소한 것이 관찰되었으며, 이는 바이러스 감염과 LPS 자극의 시너지 효과로 인해 숙주가 과도한 염증 활성화뿐만 아니라 항바이러스 면역의 동시적 억제를 나타냈음을 시사합니다. 이러한 면역 조절 장애는 COVID-19의 발생 및 진행 과정에서 나타나는 주요 면역학적 특징 중 하나로 간주됩니다8. 따라서 본 모델은 이러한 복잡한 병리학적 과정을 부분적으로 재현하며, COVID-19 관련 면역 조절 장애에 대한 추가 연구 및 관련 치료법 개발을 위한 가치 있는 실험적 도구를 제공합니다.
SARS-CoV-2와 LPS의 병용 투여를 기반으로 본 연구에서 구축된 COVID-19 마우스 모델은 전염증성 사이토카인의 증가와 IFN-I 신호 전달의 억제를 포함하여 질병 병리의 주요 특징을 재현할 수 있으며, 이를 통해 COVID-19 관련 폐 손상에서 관찰되는 면역 불균형을 부분적으로 모사합니다. 단일 바이러스 감염 모델과 비교하여, 이러한 병용 접근 방식은 외인성 선천 면역 자극을 통합함으로써 질병 관련 염증 반응을 강화하며, 이를 통해 과도한 염증 및 손상된 항바이러스 면역과 관련된 병리학적 과정을 연구할 수 있게 합니다. 따라서 이 모델은 특히 바이러스 복제뿐만 아니라 면역 조절 이상을 표적으로 하는 후보 항염증, 면역 조절 및 폐 회복 전략을 in vivo에서 평가하는 데 유용할 수 있습니다.
하지만 이 연구의 몇 가지 한계점을 인정해야 합니다. 첫째, LPS는 주로 TLR4 활성화를 통해 염증을 유도하는데, 이는 임상적 COVID-19에서 나타나는 복잡한 바이러스-숙주 상호작용을 완전히 반영하지 못하며 염증 반응을 변화시킬 수 있습니다. 둘째, 예비 최적화 단계에서 SARS-CoV-2 단독 처리군 및 LPS 단독 처리군과의 비교 실험을 수행하였으나, 해당 데이터는 본 논문에 포함되지 않았습니다. 향후 연구에서는 각 성분의 기여도를 더 정확하게 정의하기 위해 SARS-CoV-2와 LPS의 개별 및 병용 효과를 추가로 평가할 예정입니다. 셋째, 이 모델은 SARS-CoV-2 감염의 전체적인 자연 경과보다는 COVID-19 관련 폐 손상의 주요 면역 병리적 특성, 특히 면역-염증 조절 장애를 재현하도록 설계되었습니다. 마지막으로, SARS-CoV-2 용량과 LPS 농도는 예비 최적화 실험을 바탕으로 결정되었으나, 마우스 계통, 바이러스 변이, 분석 방법 및 실험 조건의 차이가 모델 재현성에 영향을 줄 수 있으며, 다양한 연구 환경에서의 추가 검증이 필요할 수 있습니다. 본 프로토콜에 기술된 최적화 조건 하에서 전반적인 모델 구축 성공률은 약 90%였으나, 이 비율은 실험 설정에 따라 달라질 수 있습니다. 향후 연구에서는 서로 다른 SARS-CoV-2 변이, 유전자 변형 마우스 계통 또는 단일 세포 전사체 분석과 같은 고급 면역 프로파일링 접근법을 도입하여 이 모델을 더욱 최적화함으로써, 바이러스-숙주 상호작용을 더 잘 특성화하고 치료 표적을 식별할 수 있을 것입니다. 이러한 노력은 COVID-19 연구에서 이 모델의 중개 연구적 관련성을 더욱 향상시킬 수 있을 것입니다.
공개 사항
저자들은 공개할 이해관계 충돌이 없습니다.
감사의 글
본 연구는 중국 국가자연과학재단(82374291), 쓰촨성 과학기술 프로그램(2024NSFJQ0059), 쓰촨성 중의약관리국 과학연구 특별 과제(2024zd005); 2022 "Tianfu Qingcheng Plan" Tianfu 과학기술 선도 인재 프로젝트(Chuan Qingcheng No. 1090), 청두시 위생위원회 및 청두 중의약대학교 공동 혁신 기금(WXLH202403091)의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 자동 조직 처리기 | Dakewe Biotech Co., Ltd. | HP300 | 조직 탈수에 사용됨. |
| 자동 염색기 | Leica Biosystems | LEICA ST5010 | HE 염색에 사용됨. |
| 원심분리기 | DLAB 사이언티픽 | D3024R | 시료 또는 시약의 원심분리에 사용됩니다. |
| 항온 수조 | Shanghai LICHEN-BX Instrument Technology Co., Ltd. | HH-6 | 항온 수조에 사용됩니다. |
| 디지털 PCR 시스템 | QIAGEN | QIAcuity One | RT-dPCR에 사용됨. |
| qPCR용 TransScript All-in-One First-Strand cDNA 합성 슈퍼믹스 (1단계 gDNA 제거) | TransGen Biotech Co.,Ltd. | AT341 | 역전사 과정에 사용됨. |
| 에오신 용액 | BASO | BA4024 | 조직학적 염색에 사용됨. |
| 형광 정량 PCR 시스템 | Rocgene (Beijing) Technology Co., Ltd. | Archimed X6 | RT-qPCR에 사용됨. |
| 헤마토실린 용액 | BASO | BA4041 | 조직학적 염색에 사용됨. |
| IBM SPSS Statistics 소프트웨어 | IBM Corp., 미국 뉴욕주 아몬크 | 버전 22.0 | 통계 분석에 사용됨. |
| Escherichia coli O55:B5 유래 리포폴리사카라이드 | Sigma-Aldrich (Shanghai) Trading Co., Ltd. | L2880 | 마우스 모델링에 사용됨. |
| 마이크로플레이트 리더 | Molecular Devices | SpectraMax Plus 384 | ELISA에 사용됨. |
| 마우스 IFN-α 엘라이자 키트 | ZCIBIO Technology Co., Ltd. | ZC-37863W | IFN-을 검출하는 데 사용됨α 마우스 폐 조직 내 수치. |
| 마우스 IFN-β 엘라이자 키트 | ZCIBIO Technology Co., Ltd. | ZC-37887W | IFN-을 검출하는 데 사용됨β 마우스 폐 조직 내 수준. |
| 마우스 IL-1β ELISA 키트 | ZCIBIO Technology Co., Ltd. | ZC-37974W | IL-1 검출에 사용됨β 마우스 폐 조직 내 수치. |
| 마우스 IL-6 ELISA 키트 | ZCIBIO Technology Co., Ltd. | ZC-37988W | 마우스 폐 조직 내 IL-6 수치를 검출하는 데 사용됨. |
| 마우스 TNF-α ELISA 키트 | ZCIBIO Technology Co., Ltd. | ZC-39024W | TNF-를 검출하는 데 사용됨α 마우스 폐 조직 내 수치. |
| 디지털 PCR용 원스텝 RT-PCR 키트 | QIAGEN | 4829104 | 디지털 PCR에 사용됨. |
| 파라핀 매립기 | Hubei Aristion Medical Industrial Co., Ltd. | ABM-7L | 마우스 폐 조직의 파라핀 포매에 사용됨. |
| QuantiNova SYBR PCR 믹스 키트 | QIAGEN | 1129280 | RT-qPCR에 사용됨. |
| RNeasy Plus Universal Mini Kit | QIAGEN | 1062832 | 총 RNA 추출에 사용됨. |
| 슬라이서 | Leica Biosystems | LEICA RM2235 | 파라핀 절편에 사용됨. |
| 조직 균질기용 스테인리스 스틸 비드 | Beyotime Biotechnology | F6621 | 폐 조직 균질화에 사용됨. |
| 디지털 PCR용 XG 프라이머 풀 1.0 | QIAGEN | 4828104 | 디지털 PCR에 사용됨. |
| Zoletil 50 | VIRBAC | BN9VS7A | 마우스 마취에 사용됨. |
참고문헌
- Zhang X, et al. SARS-CoV-2 Evolution: Immune Dynamics, Omicron Specificity, and Predictive Modeling in Vaccinated Populations. Adv Sci (Weinh). 2024;11(40):e2402639.
- Yu Y, et al. COVID-19 Serum Drives Spike-Mediated SARS-CoV-2 Variation. Viruses. 2024;16(5):763.
- Alhamlan FS, Al-Qahtani AA. SARS-CoV-2 Variants: Genetic Insights, Epidemiological Tracking, and Implications for Vaccine Strategies. Int J Mol Sci. 2025;26(3):1263.
- Habashi NM, Camporota L, Gatto LA, Nieman G. Functional pathophysiology of SARS-CoV-2-induced acute lung injury and clinical implications. J Appl Physiol (1985). 2021;130(3):877-891.
- Nie X, et al. Multi-organ proteomic landscape of COVID-19 autopsies. Cell. 2021;184(3):775-791.e14.
- Blanco-Melo D, et al. Imbalanced Host Response to SARS-CoV-2 Drives Development of COVID-19. Cell. 2020;181(5):1036-1045.e9.
- Wang J, Li Q, Qiu Y, Lu H. COVID-19: imbalanced cell-mediated immune response drives to immunopathology. Emerg Microbes Infect. 2022;11(1):2393-2404.
- Sa Ribero M, Jouvenet N, Dreux M, Nisole S. Interplay between SARS-CoV-2 and the type I interferon response. PLoS Pathog. 2020;16(7):e1008737.
- El-Saber Batiha G, Al-Gareeb AI, Saad HM, Al-Kuraishy HM. COVID-19 and corticosteroids: a narrative review. Inflammopharmacology. 2022;30(4):1189-1205.
- Ye Q, Wang B, Mao J. The pathogenesis and treatment of the 'Cytokine Storm' in COVID-19. J Infect. 2020;80(6):607-613.
- Jiang Y, et al. Cytokine storm in COVID-19: from viral infection to immune responses, diagnosis and therapy. Int J Biol Sci. 2022;18(2):459-472.
- Zhang S, Wang L, Cheng G. The battle between host and SARS-CoV-2: Innate immunity and viral evasion strategies. Mol Ther. 2022;30(5):1869-1884.
- Beyer DK, Forero A. Mechanisms of Antiviral Immune Evasion of SARS-CoV-2. J Mol Biol. 2022;434(6):167265.
- Lei X, et al. Activation and evasion of type I interferon responses by SARS-CoV-2. Nat Commun. 2020;11(1):3810.
- Mostafa-Hedeab G, et al. A raising dawn of pentoxifylline in management of inflammatory disorders in Covid-19. Inflammopharmacology. 2022;30(3):799-809.
- Chen Z, et al. SARS-CoV-2 immunity in animal models. Cell Mol Immunol. 2024;21(2):119-133.
- Johansen MD, et al. Animal and translational models of SARS-CoV-2 infection and COVID-19. Mucosal Immunol. 2020;13(6):877-891.
- Zhang Y, et al. SARS-CoV-2 rapidly adapts in aged BALB/c mice and induces typical pneumonia. J Virol. 2021;95(11):e02477-20.
- Sun SH, et al. A Mouse Model of SARS-CoV-2 Infection and Pathogenesis. Cell Host Microbe. 2020;28(1):124-133.e4.
- Muñoz-Fontela C, et al. Animal models for COVID-19. Nature. 2020;586(7830):509-515.
- Liu T, et al. Therapeutic potential of inosine in acute lung injury: mechanistic insights into TLR4 suppression and macrophage polarization. Phytomedicine. 2025;143:156854.
- Powers JM, et al. Divergent pathogenetic outcomes in BALB/c mice following Omicron subvariant infection. Virus Res. 2024;341:199319.
- Fan F, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule's protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Xie N, et al. Rhodiola crenulate alleviates hypobaric hypoxia-induced brain injury via adjusting NF-κB/NLRP3-mediated inflammation. Phytomedicine. 2022;103:154240.
- Jiang S, et al. Generic Diagramming Platform (GDP): a comprehensive database of high-quality biomedical graphics. Nucleic Acids Res. 2025;53(D1):D1670-D1676.
- Onohuean H, et al. Covid-19 and development of heart failure: mystery and truth. Naunyn Schmiedebergs Arch Pharmacol. 2021;394(10):2013-2021.
- Zarrilli G, et al. The Immunopathological and Histological Landscape of COVID-19-Mediated Lung Injury. Int J Mol Sci. 2021;22(2):974.
- Fernandes de Souza WD, et al. Lung Inflammation Induced by Inactivated SARS-CoV-2 in C57BL/6 Female Mice Is Controlled by Intranasal Instillation of Vitamin D. Cells. 2023;12(7):1092.
- Ciesielska A, Matyjek M, Kwiatkowska K. TLR4 and CD14 trafficking and its influence on LPS-induced pro-inflammatory signaling. Cell Mol Life Sci. 2021;78(4):1233-1261.
- Brandenburg K, et al. A Comparison between SARS-CoV-2 and Gram-Negative Bacteria-Induced Hyperinflammation and Sepsis. Int J Mol Sci. 2023;24(20):15169.
- Samsudin F, et al. SARS-CoV-2 spike protein as a bacterial lipopolysaccharide delivery system in an overzealous inflammatory cascade. J Mol Cell Biol. 2023;14(9):mjac058.
- Petruk G, et al. SARS-CoV-2 spike protein binds to bacterial lipopolysaccharide and boosts proinflammatory activity. J Mol Cell Biol. 2020;12(12):916-932.
- Martin-Sancho L, et al. Functional landscape of SARS-CoV-2 cellular restriction. Mol Cell. 2021;81(12):2656-2668.e8.
- Minkoff JM, tenOever B. Innate immune evasion strategies of SARS-CoV-2. Nat Rev Microbiol. 2023;21(3):178-194.