본 연구에서는 투명세포 신세포암에서 ARHGAP22의 발현을 평가하고, 예후, 임상병리학적 특징, 종양 면역 미세환경 및 컴퓨터로 예측된 약물 민감도와의 연관성을 분석합니다.
연구 논문
투명 세포 신세포암의 잠재적 예후 바이오마커로서의 ARHGAP22: 종양 면역 및 공동 발현 네트워크에 대한 통찰
* These authors contributed equally
이 논문에서
요약
초록
투명세포 신세포암(ccRCC)은 신장암의 가장 흔한 아형으로 상당한 임상적 이질성을 보이며, 이에 따라 신뢰할 수 있는 예후 바이오마커의 필요성이 강조되고 있습니다. 본 연구에서는 The Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma (TCGA-KIRC) 코호트의 전사체 및 임상 데이터와 외부 검증 데이터, 그리고 Human Protein Atlas (HPA)의 단백질 발현 정보를 이용하여 ccRCC에서 ARHGAP22의 발현 패턴, 예후적 관련성 및 면역 관련 연관성을 평가하였습니다. 종양 조직과 인접 정상 조직 간의 ARHGAP22 발현을 비교하였으며, 전체 생존율, 임상병리학적 특성, 종양 미세환경 점수 및 추정 면역 세포 분율과의 연관성을 분석하였습니다. 또한, 잠재적인 생물학적 연관성을 규명하기 위해 공발현 및 기능적 농축 분석을 수행하였습니다. 전사체 수준에서 ARHGAP22는 ccRCC 조직에서 유의하게 상향 조절되었으며, 면역조직화학 염색 이미지에서도 이에 상응하는 차이가 관찰되었습니다. 높은 ARHGAP22 발현은 짧은 전체 생존 기간, 진행된 임상병리학적 특징, 그리고 더 높은 ImmuneScore, StromalScore 및 ESTIMATEScore 값과 관련이 있었습니다. CIBERSORT 기반 분석 결과, 허위 발견율(false discovery rate) 보정 후 고발현 군에서 M2 대식세포와 조절 T 세포의 추정 분율은 더 높았고, 나이브 B 세포, 휴지기 비만세포 및 활성화된 수지상 세포의 추정 분율은 더 낮은 것으로 나타났습니다. 기능적 농축 분석에서는 ARHGAP22 관련 유전자가 면역 관련 프로세스, 세포 이동, 그리고 케모카인 및 사이토카인 매개 신호 전달 경로와 연관되어 있음이 밝혀졌습니다. 이러한 결과는 ARHGAP22가 ccRCC에서 잠재적인 예후 및 면역 관련 바이오마커가 될 수 있음을 시사하며, 다만 향후 독립적인 임상 및 실험적 검증이 필요합니다.
서론
투명세포 신세포암(ccRCC)은 신세포암의 가장 흔한 조직학적 아형으로, 전체 사례의 약 70%–80%를 차지하며 신장암 관련 사망률의 주요 원인이 됩니다1˒2. 신세포암의 발생률은 최근 몇 년 동안 전반적으로 증가했으며, 지역별로 뚜렷한 역학적 차이를 보입니다. 알려진 위험 요인으로는 흡연, 비만, 고혈압 및 만성 신장 질환이 있습니다3˒4. 투명세포 신세포암은 강한 공격성과 분자적 이질성을 특징으로 합니다. 일부 환자는 진단 당시 이미 전이성 질환을 보이며, 수술 후 재발 및 진행이 빈번하게 발생합니다2˒5. 분자 수준에서는 von Hippel–Lindau (VHL) 불활성화와 저산소 유도 인자 (HIF) 신호 전달의 지속적인 활성화가 ccRCC 발병의 핵심 사건으로 인식되며, 이는 광범위한 유전체 및 후성유전학적 변화를 동반합니다6˒7. 표적 치료와 면역 요법이 진행성 질환의 예후를 개선시켰으나, 치료 반응은 여전히 매우 이질적이며, 이는 신뢰할 수 있는 예후 및 면역 관련 바이오마커의 필요성을 강조합니다8,9,10.
Rho guanosine triphosphatases (Rho GTPases)는 세포 골격 재구성, 세포 극성, 접착, 이동 및 침습을 조절하는 분자 스위치로, 종양 형성 및 암 진행에서 다각적인 역할을 수행합니다11˒12. Rho GTPase 신호 전달은 종양 세포의 증식, 세포 사멸 및 운동성을 조절할 뿐만 아니라, 혈관 형성, 염증 반응 및 종양 면역 미세환경의 재구성에도 기여합니다13,14,15. ccRCC에서 Rho GTPase 신호 전달의 생물학적 중요성에 대한 관심이 높아지고 있습니다. Rac 신호 전달은 ccRCC의 성장과 혈관 형성 스위칭을 촉진하는 것으로 보고되었으며, VHL/HIF 유발 ccRCC는 Rho GTPase/Rho-associated coiled-coil-containing protein kinase (ROCK) 경로에 의존할 수 있습니다16˒17. 또한, Rho GTPase 관련 유전자 시그니처는 ccRCC의 불량한 예후, 면역 억제 상태 및 면역 요법에 대한 차별적 반응과 연관되어 있으며, 이는 이 경로가 종양 진행과 종양 면역 사이의 중요한 분자적 연결 고리가 될 수 있음을 시사합니다18˒19.
ARHGAP22는 Rho GTPase-활성화 단백질(RhoGAP) 가족 및 FilGAP 관련 하위 가족에 속하며, 주로 RhoA-Rac1 축의 길항적 조절에 관여하는 Rac 특이적 RhoGAP으로 기능합니다20˒21. 이 단백질은 pleckstrin homology (PH) 도메인과 RhoGAP 도메인을 포함하고 있으며, 엔도솜 국소화 및 세포막으로의 운송을 통해 Rac 활성을 조절함으로써 라멜리포디아 형성, 세포 확산 및 이동에 영향을 줄 수 있습니다20˒22˒23. 이전 연구들은 ARHGAP22를 세포골격 역학, 종양 세포 운동성, 종양 면역 미세환경 및 여러 악성 종양에서의 잠재적 바이오마커 역할과 연관 지어 왔습니다20,23,24,25. 그러나 ccRCC에서 ARHGAP22의 발현 패턴, 예후적 중요성, 면역 연관성 및 잠재적 치료 관련성은 아직 충분히 규명되지 않았습니다. 따라서 본 연구에서는 ARHGAP22의 예후 및 면역 관련 바이오마커로서의 잠재적 가치를 평가하기 위해, ccRCC에서 ARHGAP22 발현이 임상 병리학적 진행, 환자 예후, 면역 침윤, 컴퓨터 예측 약물 민감도 및 공동 발현 네트워크와 연관이 있는지 평가하였습니다.
프로토콜
본 연구는 TCGA, HPA 및 기타 오픈 액세스 데이터베이스에서 제공하는 공개된 익명화 데이터를 사용하였으며, 새로운 인간 대상자 모집, 동물 실험 또는 식별 가능한 개인 정보를 포함하지 않았습니다. 따라서 추가적인 기관 윤리 위원회의 승인 및 고지된 동의는 필요하지 않았습니다. 프로토콜에 사용된 도구에 대한 자세한 정보는 재료 표에 제공되어 있습니다.
1. 공개 데이터셋 및 생물정보학 분석
공개적으로 사용 가능한 데이터셋을 이용하였으며, 인간 참여자나 동물을 대상으로 하는 직접적인 연구는 수행하지 않았다. 전사체 및 임상 데이터는 The Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma (TCGA-KIRC) 프로젝트에서 얻었으며, 단백질 발현 데이터는 Human Protein Atlas에서 검색하였다. 이러한 계산적 접근 방식은 대규모 전사체 및 임상 데이터셋의 효율적인 스크리닝을 가능하게 하여 후보 바이오마커의 예비 식별을 지원하였으며, 이후의 실험적 검증을 위한 기초를 제공하였다. 모든 계산 분석은 통계 소프트웨어를 사용하여 수행되었다.
2. 데이터 획득 및 샘플 선정
Genomic Data Commons 데이터 포털에 접속하여 TCGA-KIRC 프로젝트를 선택하였다. 투명 세포 신세포암(ccRCC)의 전사체 프로파일링 데이터와 그에 해당하는 임상 정보를 다운로드하였다. 이후 전사체 분석을 위해 TPM(Transcripts per million)으로 정규화된 messenger RNA 발현 데이터를 사용하였다. TCGA-KIRC 전사체 매트릭스에서 ARHGAP22 발현 값을 추출하고, TCGA 샘플 바코드를 사용하여 해당 임상 기록과 매칭시켰다. ARHGAP22 발현 데이터와 임상 주석을 모두 갖춘 원발성 종양 조직 및 인접 정상 신장 조직을 포함하였다. ARHGAP22 발현 값이 누락되었거나, 주요 임상 및 생존 정보가 불완전한 샘플, 중복 기록, 또는 생존 기간이 30일 미만인 샘플은 제외하였다. 필터링 후, 총 533개의 종양 샘플과 72개의 인접 정상 조직 샘플이 후속 분석을 위해 유지되었다.
3. 범암 발현 분석
ARHGAP22의 범암 발현 분석은 TIMER2.0(http://timer.cistrome.org/; 2026년 4월 12일 접속)의 Gene_DE 모듈을 사용하여 수행되었다. 여러 암종에 걸쳐 종양 조직과 그에 해당하는 정상 조직 간의 ARHGAP22 발현을 비교하기 위해 TCGA RNA-sequencing 데이터를 사용하였다. 발현 값은 log2(TPM)으로 표시하였으며, 차등 발현은 TIMER2.0에 구현된 Wilcoxon rank-sum test를 사용하여 평가하였다. 양측 P 값이 0.05 미만인 경우를 통계적으로 유의미한 것으로 간주하였다.
4. 외부 GEO 검증
외부 검증은 BEST 온라인 플랫폼(https://rookieutopia.hiplot.com.cn/app_direct/BEST/; 2026년 7월 9일 접속)을 통해 Gene Expression Omnibus 데이터셋 GSE167573을 사용하여 수행되었습니다. ccRCC 및 정상 신장 조직에서의 ARHGAP22 발현량은 플랫폼에서 제공하는 정규화된 발현 데이터를 사용하여 비교하였으며, 비쌍체 Student’s t-test를 통해 평가하였습니다. 생존 분석을 위해, 플랫폼의 최적 컷오프 방법을 사용하여 환자들을 고발현 및 저발현 그룹으로 나누었으며, 전체 생존율은 로그 순위법(log-rank test)을 이용한 Kaplan–Meier 분석으로 평가하였습니다. 양측 P 값이 0.05 미만인 경우를 통계적으로 유의미한 것으로 간주하였습니다.
5. ARHGAP22 발현 분석
TPM으로 정규화된 ARHGAP22 메신저 RNA 발현 데이터를 TCGA-KIRC 코호트에서 추출하였으며, 통계 분석 전 log2(TPM + 1)로 변환하였다. 원발성 종양 조직과 인접 정상 신장 조직 간의 ARHGAP22 차등 발현을 평가하였다. 종양 조직과 정상 조직 간의 비짝지어진 비교에는 Wilcoxon 순위합 검정을 사용하였다. 짝지어진 분석을 위해 TCGA 환자 바코드를 이용하여 매칭된 종양-정상 쌍을 식별하였으며, 인접 정상 조직과 해당 종양 조직 간의 ARHGAP22 발현을 비교하기 위해 Wilcoxon 부호 순위 검정을 적용하였다. 양측 P value가 0.05 미만인 경우를 통계적으로 유의한 것으로 간주하였다.
6. 생존 분석 및 수신기 작동 특성 분석
임상 추적 관찰 데이터가 확보된 TCGA-KIRC 종양 샘플을 사용하여 생존 분석 및 시간 의존적 수신기 작동 특성(ROC) 분석을 수행하였다. 전체 생존 기간은 일(day) 단위에서 년(year) 단위로 변환하였다. ARHGAP22 발현값의 중앙값을 기준으로 환자들을 ARHGAP22 고발현군과 저발현군으로 나누었으며, 발현 기반 그룹화가 포함된 모든 분석에 동일한 컷오프 값을 일관되게 적용하였다. Kaplan–Meier 곡선은 survival 패키지와 survminer 패키지를 사용하여 생성하였다. 그룹 간의 차이는 log-rank 검정을 통해 평가하였다. 위험비와 95% 신뢰구간을 추정하기 위해 Cox 비례 위험 회귀 분석을 사용하였다. 시간 의존적 ROC 곡선은 timeROC 패키지를 사용하여 생성하였다. 1년, 3년, 5년 시점의 곡선 아래 면적(AUC)은 Aalen 가중법을 사용하여 계산하였다. 양측 P 값이 0.05 미만인 경우를 통계적으로 유의미한 것으로 간주하였다.
7. 임상병리학적 연관성 분석
TCGA-KIRC 종양 샘플을 사용하여 ARHGAP22 발현과 임상병리학적 특성 사이의 연관성을 분석하였습니다. 정상 샘플은 제외되었습니다. 연령은 65세 이하와 65세 초과로 분류하였습니다. 주석이 알려지지 않았거나 누락된 샘플은 해당 분석에서 제외되었습니다. 두 그룹 간의 비교에는 Wilcoxon 순위 합 검정을 사용하였고, 세 그룹 이상의 비교에는 Kruskal–Wallis 검정을 사용하였습니다. 바이올린 플롯은 ggpubr, ggplot2 및 scales 패키지를 사용하여 생성하였습니다. 히트맵 시각화를 위해 중앙값 컷오프를 기준으로 환자들을 ARHGAP22 고발현군과 저발현군으로 분류하였습니다. 발현 그룹과 임상병리학적 변수 간의 연관성은 카이제곱 검정을 통해 평가하였습니다. 히트맵은 limma로 전처리한 후 ComplexHeatmap을 사용하여 생성하였습니다. 양측 P 값이 0.05 미만인 경우 통계적으로 유의한 것으로 간주하였습니다.
8. 노모그램 구축
Cox 비례 위험 회귀 모델에서 ARHGAP22 발현량을 이용 가능한 임상병리학적 특성과 통합하여 예후 노모그램을 구축하였습니다. 이 모델은 TCGA-KIRC 코호트의 1년, 3년 및 5년 전체 생존율을 추정하는 데 사용되었습니다. 개별 환자의 위험 점수는 적합된 Cox 모델을 사용하여 계산되었습니다. 1,000회의 부트스트랩 재표본 추출 반복을 통한 Kaplan–Meier 방법을 사용하여 1년, 3년 및 5년 전체 생존율에 대한 보정 곡선을 생성하였습니다. 노모그램으로 예측된 생존 확률과 관찰된 생존 결과 간의 일치도를 평가하였습니다. Cox 회귀 분석은 survival 패키지를 사용하여 수행되었습니다. 노모그램 시각화 및 보정 분석은 regplot과 rms를 사용하여 수행되었습니다. 양측 P 값이 0.05 미만인 경우를 통계적으로 유의한 것으로 간주하였습니다.
9. 공발현 분석
TCGA-KIRC 종양 샘플의 전사체 데이터를 사용하여 피어슨 상관 분석(Pearson correlation analysis)을 통해 ARHGAP22와 다른 모든 유전자 간의 공발현 관계를 평가하였습니다. 피어슨 상관 계수의 절대값이 0.6보다 크고 P value가 0.001 미만인 유전자를 유의미한 공발현 유전자로 정의하였습니다. 유의미한 공발현 유전자를 상관 계수의 절대값에 따라 정렬하였습니다. 가장 높은 순위의 유전자들을 선택하여 상관 행렬을 구축하였으며, ARHGAP22 관련 공발현 네트워크를 시각화하기 위해 코드 다이어그램(chord diagram)을 생성하였습니다.
10. 차별 발현 유전자 및 기능 농축 분석
ARHGAP22 고발현 그룹과 저발현 그룹 간의 차별 발현 분석은 허위 발견율(FDR) 보정을 적용한 Wilcoxon rank-sum 검정을 사용하여 수행되었습니다. 절대값 log2 fold change가 1보다 크고 FDR이 0.05 미만인 유전자를 유의미한 차별 발현 유전자로 정의하였습니다. 결과는 volcano plot과 heatmap을 사용하여 시각화하였습니다. Gene Ontology 및 Kyoto Encyclopedia of Genes and Genomes 농축 분석은 clusterProfiler를 사용하여 수행하였습니다. 유전자 심볼은 org.Hs.eg.db를 사용하여 Entrez 식별자로 변환하였습니다. 공칭 P 값이 0.05 미만이고 FDR 보정 P 값이 0.05 미만인 Gene Ontology 용어와 Kyoto Encyclopedia of Genes and Genomes 경로를 유의미하게 농축된 것으로 간주하였습니다. Gene Set Enrichment Analysis는 Molecular Signatures Database 파일인 c2.cp.kegg.v7.4.symbols.gmt의 Kyoto Encyclopedia of Genes and Genomes 유전자 세트를 사용하여 수행하였습니다. 유전자는 log2 fold change에 따라 순위를 매겼으며, 공칭 P-value < 0.05인 유전자 세트를 유의미하게 농축된 것으로 간주하였습니다.
11. 면역 침윤 및 면역 관문 분석
TCGA-KIRC 종양 샘플을 사용하여 면역 침윤 및 면역 관문 분석을 수행하였다. estimate 패키지를 사용하여 StromalScore, ImmuneScore 및 ESTIMATEScore 값을 계산하였다. 면역 세포 분획은 1,000회의 순열 및 분위수 정규화를 적용한 CIBERSORT R 스크립트를 사용하여 추정하였다. CIBERSORT 디컨볼루션 P 값이 0.05 미만인 샘플만 유지하였다. 환자들은 ARHGAP22 발현 수준의 중앙값을 기준으로 ARHGAP22-high 그룹과 ARHGAP22-low 그룹으로 나누었다. 두 그룹 간의 ESTIMATE 점수 및 면역 세포 분획의 차이는 Wilcoxon 순위합 검정을 통해 평가하였다. ARHGAP22 발현과 면역 관문 유전자 간의 상관관계는 Pearson 상관 분석을 사용하여 평가하였다. 여러 면역 세포 비교 및 면역 관문 상관관계 테스트에서 얻은 P 값은 Benjamini–Hochberg FDR 방법으로 보정하였으며, FDR이 0.05 미만인 경우 통계적으로 유의미한 것으로 간주하였다. FDR 유의성을 보인 면역 관문 유전자들은 corrplot으로 생성한 상관관계 히트맵을 통해 시각화하였다. 데이터 전처리 및 시각화는 주로 limma, ggpubr 및 corrplot을 사용하여 수행하였다.
12. 약물 민감도 예측
정상 조직 샘플을 제외한 후 TCGA-KIRC 종양 전사체 데이터를 사용하였다. oncoPredict 패키지와 Genomics of Drug Sensitivity in Cancer 2 기반 참조 데이터셋을 사용하여 계산적으로 예측된 반최대 억제 농도 값을 산출하였다. ARHGAP22 발현값의 중앙값을 기준으로 환자들을 ARHGAP22-고발현군과 ARHGAP22-저발현군으로 나누었다. 예측된 반최대 억제 농도 값은 Wilcoxon 순위합 검정을 통해 그룹 간에 비교하였다. 여러 약물 비교에서 얻은 P 값은 Benjamini–Hochberg 방법으로 보정하였으며, FDR 0.05 미만을 통계적으로 유의미한 것으로 간주하였다. 결과는 실험적으로 검증되었거나 임상적으로 관찰된 약물 반응이 아니라 계산적으로 예측된 약물 민감도 추정치로 해석하였다.
13. 인간 단백질 아틀라스 검증
Human Protein Atlas 데이터베이스에 접속하여 ARHGAP22를 검색하였습니다. 정상 신장 조직에서의 ARHGAP22 단백질 발현을 평가하기 위해 Tissue 섹션을 검토하였습니다. Pathology 섹션을 열어 투명 세포 신세포암(clear cell renal cell carcinoma)을 선택하고, 종양 조직에서의 ARHGAP22 단백질 발현을 검토하였습니다. 정상 신장 조직과 ccRCC 조직의 대표적인 면역조직화학 염색 이미지를 추출하고, 정상 조직과 종양 조직 간의 ARHGAP22 단백질 발현을 비교하기 위해 논문에 포함할 이미지를 선택하였습니다.
결과
ARHGAP22의 범암(Pan-cancer) 발현 프로파일링
범암 전사 프로파일링 결과, 종양 유형 및 그에 해당하는 정상 조직 전반에서 ARHGAP22 발현의 뚜렷한 이질성이 나타났다(그림 1). 여러 고형암에서 ARHGAP22 발현이 증가하는 전반적인 경향이 관찰되었다. ARHGAP22 발현은 유방 침윤성 암종, 담관암, 두경부 편평세포암, 신장 색소성 세포암, 신장 투명세포암, 신장 유두상 세포암 및 간세포암의 종양 조직에서 해당 정상 조직보다 유의하게 높았다. 이러한 결과는 ARHGAP22가 여러 암종에서 차등 발현되며, 종양 관련 바이오마커로서의 관련성이 있을 수 있음을 시사한다.
투명 세포 신세포암에서 ARHGAP22의 발현 패턴 및 예후적 가치
전사체 데이터, 생존 분석, 독립적 검증 데이터 세트 및 면역조직화학 이미지를 사용하여 투명 세포 신세포암(ccRCC)에서 ARHGAP22의 발현 패턴과 임상적 관련성을 평가하였다. 비쌍 및 쌍 The Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma (TCGA-KIRC) 샘플 모두에서 ARHGAP22 발현은 정상 신장 조직보다 ccRCC 조직에서 유의하게 더 높았다(Figure 1B, C). Kaplan–Meier 분석 결과, ARHGAP22 발현이 높은 환자는 발현이 낮은 환자보다 전체 생존 기간(OS)이 유의하게 짧았다(P = 0.013; Figure 1D). 시간 의존적 ROC 분석 결과, 1년, 3년 및 5년 OS에 대한 곡선 아래 면적(AUC)은 각각 0.641, 0.637, 0.641로 나타나 중간 정도의 예후 예측 성능을 보였다(Figure 1E). 이러한 결과는 독립적인 GSE167573 데이터 세트를 사용하여 추가로 평가되었다. ARHGAP22 발현은 정상 신장 조직보다 ccRCC 조직에서 유의하게 높았으며(Figure 1F), 높은 ARHGAP22 발현은 더 짧은 OS와 관련이 있었다(Figure 1G). Human Protein Atlas에서 얻은 면역조직화학 이미지는 정상 신장 조직보다 ccRCC 조직에서 더 강한 ARHGAP22 단백질 염색을 보여주었으며, 이는 전사체 분석 결과에 대한 단백질 수준의 추가적인 근거를 제공하였다(Figure 1H, I).
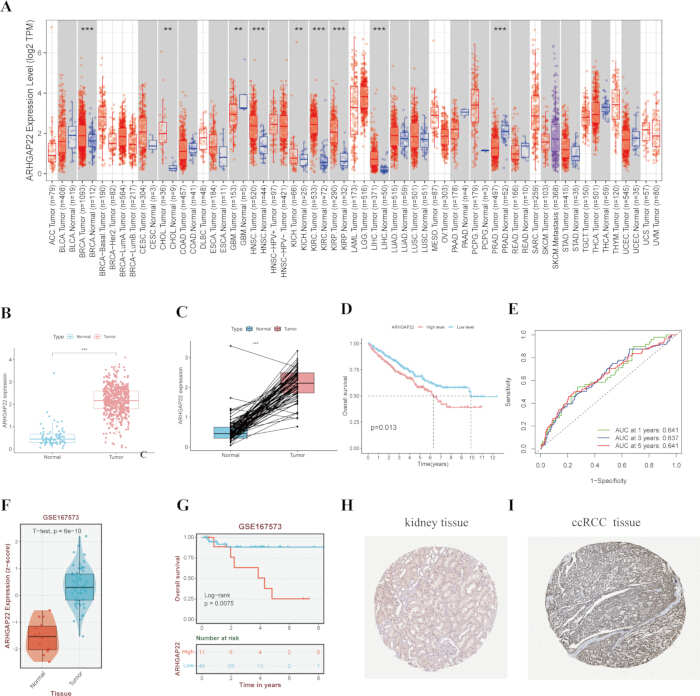
그림 1: 투명 세포 신세포암에서 ARHGAP22의 범암 발현, 발현 패턴 및 예후 가치. (A) 다양한 종양 유형 및 그에 대응하는 정상 조직에서의 ARHGAP22 범암 발현 프로파일. (B) 비짝지어진 투명 세포 신세포암(ccRCC) 및 정상 신장 조직에서의 ARHGAP22 발현. (C) 짝지어진 ccRCC 및 인접 정상 신장 조직에서의 ARHGAP22 발현. (D) ARHGAP22 발현 수준이 높은 환자와 낮은 환자를 비교한 Kaplan–Meier 전체 생존 곡선. (E) 1년, 3년 및 5년 전체 생존에 대한 ARHGAP22의 예후 성능을 평가한 시간 의존적 수신자 조작 특성 곡선. (F) GSE167573 데이터셋에서의 ARHGAP22 발현 검증. (G) GSE167573 데이터셋에서의 Kaplan–Meier 전체 생존 분석. (H, I) 정상 신장 조직(H)과 ccRCC 조직(I)의 ARHGAP22 단백질 발현을 보여주는 Human Protein Atlas의 면역조직화학 이미지. *P < 0.05; **P < 0.01; ***P < 0.001. 약어: ccRCC, 투명 세포 신세포암; OS, 전체 생존; ROC, 수신자 조작 특성; DEG, 차등 발현 유전자; GO, 유전자 온톨로지; KEGG, 교토 유전자 및 게놈 백과사전; GSEA, 유전자 세트 농축 분석; FDR, 허위 발견율; IC50, 반최대 억제 농도. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
ARHGAP22와 임상병리학적 특징의 연관성
질병의 중증도에 따라 발현량이 달라지는지 확인하기 위해 ARHGAP22 발현과 임상병리학적 특성 간의 연관성을 평가하였다. 전이성 질환 환자를 포함하여 T, M, N 분류가 진행된 환자에서 ARHGAP22 발현이 유의하게 더 높게 나타났다(그림 2A–C). 또한 조직학적 등급과 임상 단계가 진행됨에 따라 발현량이 증가하였다(그림 2D, E). 히트맵 분석 결과, 높은 ARHGAP22 발현과 더 높은 조직학적 등급, 진행된 임상 단계 및 불량한 종양-림프절-전이 분류 사이에 유의미한 연관성이 있음이 추가로 확인되었다(그림 2F). 이러한 결과는 ccRCC에서 ARHGAP22 발현의 증가가 더 공격적인 임상병리학적 특징과 연관되어 있음을 나타낸다.
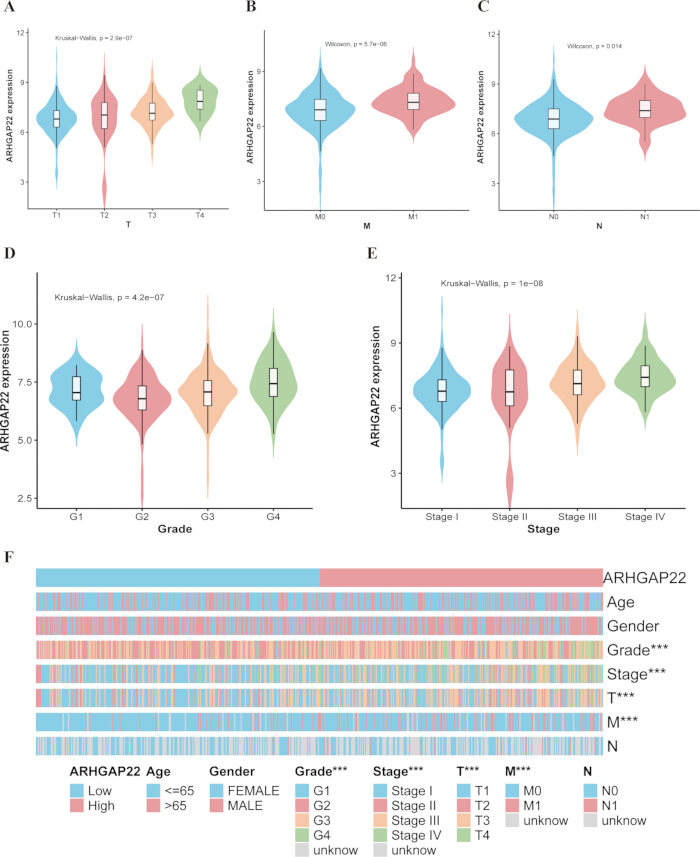
그림 2: 투명세포 신세포암에서 ARHGAP22 발현과 병리임상적 특징 간의 연관성. (A–C) 각각 T, M, N 분류에 따른 ARHGAP22 발현. (D) 조직학적 등급에 따른 ARHGAP22 발현. (E) 임상 단계에 따른 ARHGAP22 발현. (F) ARHGAP22 발현과 병리임상적 특성 간의 연관성을 보여주는 히트맵. *P < 0.05; **P < 0.01; ***P < 0.001. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
임상병리학적 특징 및 전체 생존율
Kaplan-Meier 분석 결과, 임상병리학적 하위 그룹 간에 OS의 유의미한 차이가 나타났다 (그림 3). 조직학적 등급이 더 높은 G3–G4 환자군은 G1–G2 환자군보다 OS가 유의하게 짧았다 (P < 0.0001; 그림 3A). 3~4기 질환 환자 또한 1~2기 질환 환자보다 OS가 유의하게 짧았다 (P < 0.0001; 그림 3B). 전체 생존율은 T-분류 하위 그룹 간에 유의미한 차이를 보였으며, 진행된 T-분류일수록 예후가 좋지 않은 것과 연관되었다 (P < 0.0001; 그림 3C). 림프절 전이(N1) 또는 원격 전이(M1)가 있는 환자 또한 림프절 또는 원격 전이가 없는 환자보다 OS가 유의하게 짧았다 (두 경우 모두 P < 0.0001; 그림 3D, E). 이러한 결과는 조직학적 등급, 임상 단계 및 TNM 분류가 ccRCC의 생존율과 연관되어 있음을 확인해주었다.
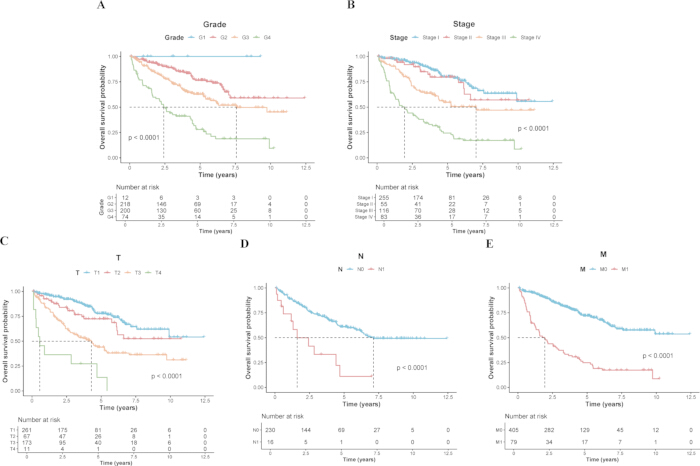
그림 3: 투명세포 신세포암의 임상병리학적 특징에 따른 전체 생존율. (A–E) 각각 조직학적 등급, 임상 병기, T 분류, N 분류 및 M 분류에 따른 Kaplan–Meier 전체 생존 곡선. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
투명 세포 신세포암의 예후 노모그램
ccRCC 환자의 1년, 3년 및 5년 OS를 추정하기 위해 ARHGAP22 발현과 이용 가능한 임상병리학적 특성을 통합한 예후 노모그램을 구축하였다(그림 4A). 보정 분석 결과, 세 가지 시점 모두에서 노모그램으로 예측된 생존 확률과 관찰된 생존 확률이 일치하는 것으로 나타났다. 보정 곡선이 이상적인 기준선에 가깝게 위치하여 만족스러운 보정 성능을 보였다(그림 4B). 임상 모델의 일치 지수(concordance index)는 0.779(95% 신뢰 구간, 0.729–0.828)였으며, ARHGAP22를 추가했을 때의 일치 지수는 0.781(95% 신뢰 구간, 0.735–0.827)로 나타나 예후 예측의 증분 개선 효과는 미미한 것으로 확인되었다.
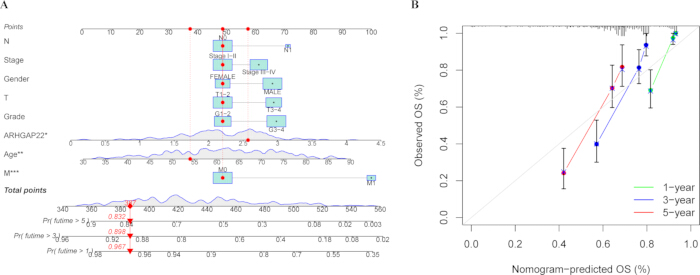
그림 4: 투명세포 신세포암에서의 ARHGAP22 기반 예후 노모그램 및 보정 분석. (A) 1년, 3년 및 5년 전체 생존율 추정을 위한 노모그램. (B) 노모그램으로 예측된 전체 생존율과 관찰된 1년, 3년 및 5년 전체 생존율을 비교한 보정 곡선. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
ARHGAP22의 분자 네트워크 분석
ARHGAP22 발현과 관련된 분자 네트워크의 특성을 규명하기 위해 상관관계 분석을 수행하였다. 상관관계 네트워크 분석 결과, ccRCC에서 ARHGAP22와 여러 유전자 간의 연관성이 나타났다(그림 5A). ARHGAP22 발현은 GMIP, TRPM2, CARD9, FMNL1, STAC3 및 MYO9B와 유의미한 양의 상관관계를 보였다. BSND, HEPACAM2, ATP6V1G3, TMEM38A 및 FOXI1과는 유의미한 음의 상관관계가 관찰되었다(그림 5B–L). 이러한 결과는 ARHGAP22 발현이 ccRCC의 복잡한 공동 발현 네트워크와 연관되어 있음을 나타낸다.
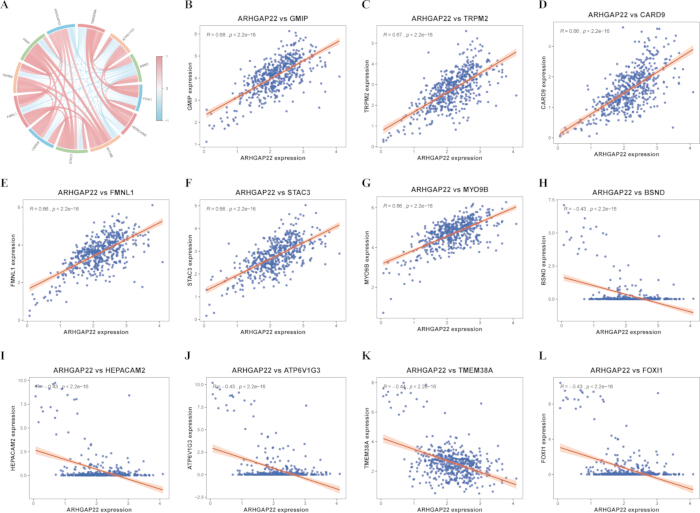
그림 5투명 세포 신세포암에서 ARHGAP22와 관련된 분자적 특징. (A) ARHGAP22 및 관련 유전자 간의 연관성을 보여주는 상관관계 네트워크. (B–G) 양성 ARHGAP22와 GMIP, TRPM2, CARD9, FMNL1, STAC3 및 MYO9B 간의 상관관계각각이다. (H–L) ARHGAP22와 BSND, HEPACAM2, ATP6V1G3, TMEM38A 및 FOXI1 간의 각각의 음의 상관관계. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
ARHGAP22 관련 차등 발현 유전자
투명 세포 신세포암 샘플을 중앙값 발현 수치를 기준으로 ARHGAP22 고발현군과 저발현군으로 나누어 차등 발현 분석을 수행하였다. 고발현군에서 총 334개의 유전자가 상향 조절되었고, 38개의 유전자가 하향 조절되었다.그림 6A). 히트맵 분석 결과, ARHGAP22 고발현군과 저발현군 사이에 뚜렷한 발현 패턴 차이가 나타났으며, 이는 확인된 차등 발현 유전자가 두 그룹을 구분함을 시사한다. (그림 6B).
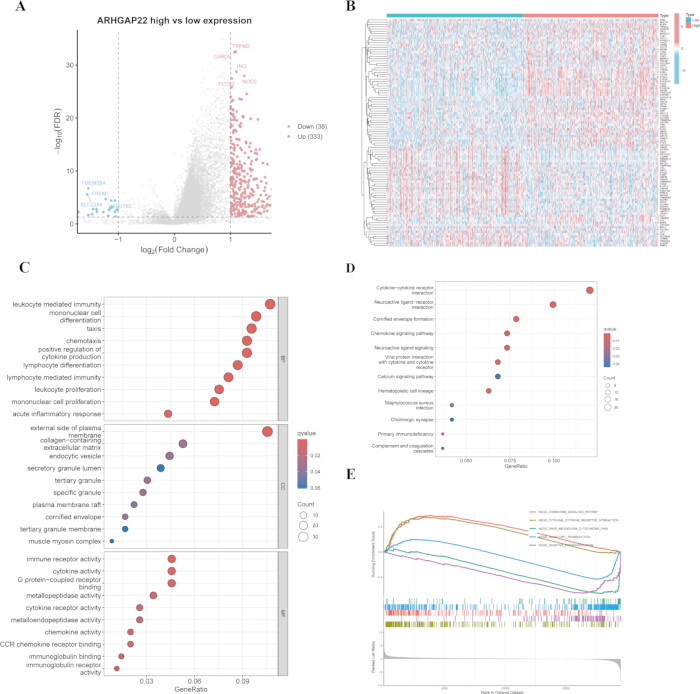
그림 6: ARHGAP22 관련 차등 발현 유전자 및 기능적 농축. (A) ARHGAP22 고발현 그룹과 저발현 그룹 간의 차등 발현 유전자를 나타낸 화산 플롯. (B) 차등 발현 유전자의 히트맵. (C) 유전자 온톨로지(Gene Ontology) 농축 분석. (D) 교토 유전자 및 게놈 백과사전(KEGG) 경로 농축 분석. (E) ARHGAP22 고발현 그룹에서 농축된 경로를 보여주는 유전자 세트 농축 분석(GSEA). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
ARHGAP22 관련 차등 발현 유전자의 기능적 농축
차등 발현된 유전자와 관련된 생물학적 과정을 특성화하기 위해 기능적 농축 분석을 수행하였다. 유전자 온톨로지 분석 결과, 백혈구 매개 면역, 화학물질 유인 작용, 사이토카인 생성, 림프구 분화 및 증식을 포함한 면역 관련 생물학적 과정에서 농축이 나타났다. 세포 구성 성분 수준에서는 세포외 기질, 분비 과립 및 세포막 관련 구조에서 농축이 관찰되었다. 분자 기능 수준에서는 사이토카인 활성, 케모카인 수용체 결합 및 메탈로펩티다제 관련 활성이 농축되었다(그림 6C). 교토 유전자 및 게놈 백과사전 분석에서는 사이토카인-사이토카인 수용체 상호작용, 케모카인 신호 전달, 칼슘 신호 전달, 그리고 감염 및 면역 관련 경로에서 유의미한 농축이 나타났다(그림 6D). 유전자 세트 농축 분석을 통해 ARHGAP22 고발현 군에서 농축된 다수의 면역 관련 경로를 추가로 확인하였다(그림 6E).
투명세포 신세포암에서의 ARHGAP22 및 면역 미세환경
CIBERSORT 기반의 추정 면역 세포 분율 분석 결과, ARHGAP22 고발현 그룹과 저발현 그룹 사이에 유의미한 차이가 나타났다(그림 7A). 거짓 발견율(false discovery rate) 보정 후, ARHGAP22 고발현 그룹은 M2 대식세포와 조절 T 세포의 추정 분율이 더 높았으며, 나이브 B 세포, 휴지기 비만세포 및 활성화된 수지상 세포의 추정 분율은 더 낮았다. 상관관계 분석 결과, ARHGAP22 발현은 M2 대식세포 및 조절 T 세포와 양의 상관관계를 보였으며, 나이브 B 세포, 휴지기 비만세포 및 활성화된 수지상 세포와는 음의 상관관계를 보였다(그림 7B). 이러한 CIBERSORT 유도 추정치는 ccRCC에서 ARHGAP22 발현의 증가가 면역 억제 프로파일과 관련이 있음을 나타낸다.
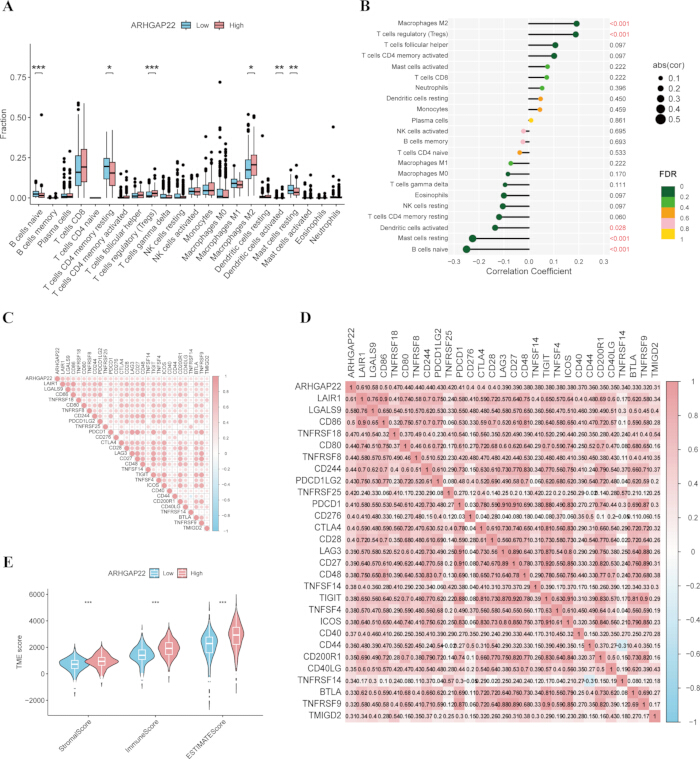
그림 7: 투명세포 신세포암에서 ARHGAP22 발현과 면역 미세환경 특성 간의 연관성. (A) ARHGAP22 고발현군과 저발현군 간의 CIBERSORT 추정 면역세포 분율 차이. (B) ARHGAP22 발현과 CIBERSORT 추정 면역세포 분율 간의 상관관계. (C) ARHGAP22 발현과 면역 관문 유전자 간의 연관성을 나타내는 상관관계 히트맵. (D) ARHGAP22와 면역 관문 분자의 상관관계 행렬. (E) ESTIMATE 알고리즘을 사용하여 계산한 ARHGAP22 고발현군과 저발현군 간의 StromalScore, ImmuneScore 및 ESTIMATEScore 차이. *P < 0.05; **P < 0.01; ***P < 0.001. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
ARHGAP22, 면역 체크포인트 및 종양 미세환경 구성 요소
ARHGAP22의 높은 발현은 PDCD1LG2, CTLA4, LAG3, TIGIT 및 ICOS를 포함한 여러 면역 체크포인트 유전자와 양의 상관관계를 보였으며(그림 7C, D), 이는 면역 회피 관련 특성과 잠재적인 연관성이 있음을 시사한다. ESTIMATE 분석 결과, ARHGAP22 고발현군에서 StromalScore, ImmuneScore 및 ESTIMATEScore 값이 유의하게 더 높게 나타났으며(그림 7E), 이는 종양 미세환경 내 기질 및 면역 구성 요소의 증가를 반영한다. 이러한 결과는 ccRCC에서 ARHGAP22 발현이 CIBERSORT로 추정된 면역 세포 분율, 면역 체크포인트 발현 및 면역 억제성 종양 미세환경 프로파일과 연관되어 있음을 나타낸다.
ARHGAP22 및 계산적으로 예측된 표적 약물 민감도
ARHGAP22 발현과 계산적으로 예측된 표적 약물 민감도 사이의 연관성은 고발현 집단과 저발현 집단 간의 예측 반최대 억제 농도(half-maximal inhibitory concentration) 값을 비교하여 평가하였다(Figure 8A–I). 저발현 집단은 axitinib, sorafenib, savolitinib, foretinib, cediranib, alpelisib, buparlisib, afuresertib 및 ipatasertib에 대해 예측 반최대 억제 농도 값이 유의하게 낮았다. 예측 반최대 억제 농도 값이 낮을수록 계산적으로 예측된 민감도가 더 높음을 나타낸다. 이러한 결과는 낮은 ARHGAP22 발현과 평가된 표적 약제들에 대한 더 높은 예측 민감도 사이에 연관성이 있음을 시사한다. 해당 결과는 계산적 예측치이며, 실험적 또는 임상적으로 검증된 약물 반응을 구성하지는 않는다.
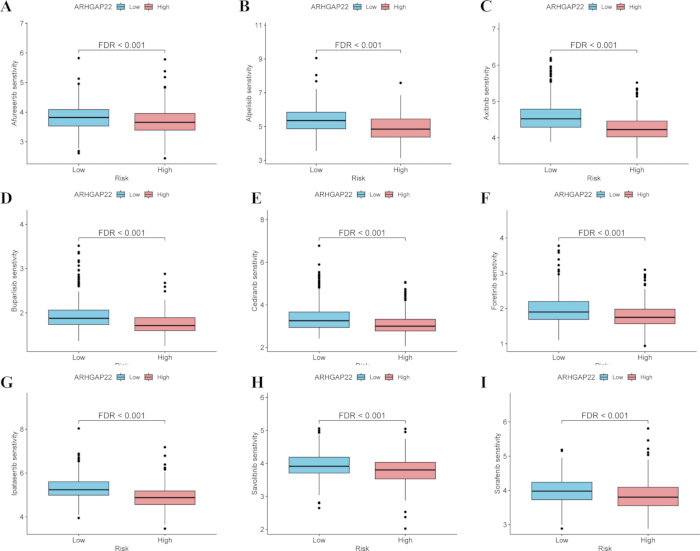
그림 8: 투명세포 신세포암에서 ARHGAP22 발현과 컴퓨터로 예측된 표적 약물 민감도 간의 연관성. (A–I) ARHGAP22 고발현군과 저발현군 간의 axitinib, sorafenib, savolitinib, foretinib, cediranib, alpelisib, buparlisib, afuresertib 및 ipatasertib에 대해 컴퓨터로 예측된 반-최대 억제 농도 값의 비교. 예측된 반-최대 억제 농도 값이 낮을수록 예측된 약물 민감도가 더 높음을 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
데이터 가용성:
본 연구에서 분석된 전사체 및 임상 데이터는 공개 데이터베이스인 The Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma (TCGA-KIRC) 프로젝트(https://portal.gdc.cancer.gov/)에서 얻었습니다. 외부 발현 및 생존 검증 데이터는 Gene Expression Omnibus 데이터셋 GSE167573에서 얻었습니다. 단백질 발현 데이터는 Human Protein Atlas(https://www.proteinatlas.org/)에서 검색하였습니다. 범암 발현 데이터는 TIMER2.0을 사용하여 분석하였으며, 외부 검증은 BEST 플랫폼을 통해 수행하였습니다. 약물 민감도 참조 데이터는 Genomics of Drug Sensitivity in Cancer 2 데이터셋에서 얻었으며, 풍부도 분석에 사용된 유전자 세트는 Molecular Signatures Database에서 얻었습니다. 원본 데이터셋은 해당 저장소 및 플랫폼을 통해 공개적으로 액세스할 수 있습니다. 데이터 처리, 통계 분석 및 시각화에 사용된 R 스크립트는 부록 파일 1(Supplementary File 1)로 제공됩니다. 처리된 결과는 전체 차별 발현 분석 결과가 포함된 부록 표 1(Supplementary Table 1), Gene Ontology 풍부도 분석 결과가 포함된 부록 표 2(Supplementary Table 2), 그리고 Kyoto Encyclopedia of Genes and Genomes 경로 풍부도 분석 결과가 포함된 부록 표 3(Supplementary Table 3)으로 제공됩니다.
보충 표 1: 전체 차등 발현 분석 결과. 이 파일에는 유전자 식별자, 그룹별 발현 값, log2 fold change, P 값, 허위 발견율(FDR) 보정 P 값 및 조절 방향을 포함하여 ARHGAP22 고발현 그룹과 저발현 그룹 간에 식별된 차등 발현 유전자의 전체 목록이 포함되어 있습니다. 여기를 클릭하여 파일을 다운로드하십시오.
부록 표 2: 유전자 온톨로지(Gene Ontology) 풍부도 분석 결과. 이 파일에는 생물학적 과정, 세포 구성 성분 및 분자 기능 범주를 포함하여 ARHGAP22 관련 차등 발현 유전자에 대한 전체 유전자 온톨로지 풍부도 결과와 풍부도 통계, P 값, 보정된 P 값, 유전자 수 및 관련 유전자 식별자가 포함되어 있습니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 3: Kyoto Encyclopedia of Genes and Genomes 경로 풍부도 분석 결과. 이 파일에는 경로 식별자 및 이름, 풍부도 통계, P 값, 보정된 P 값, q 값, 유전자 수 및 관련 유전자 식별자를 포함하여 ARHGAP22 관련 차별 발현 유전자에 대한 전체 Kyoto Encyclopedia of Genes and Genomes 경로 풍부도 결과가 포함되어 있습니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 1: 데이터 처리, 통계 분석 및 시각화를 위한 R 스크립트. 이 파일에는 데이터 전처리, 발현 분석, 생존 분석, 임상 병리학적 연관성 분석, 공발현 분석, 차별 발현 분석, 기능적 풍부도 분석, 면역 침윤 분석, 약물 민감도 예측 및 그림 생성을 위해 사용된 R 스크립트가 포함되어 있습니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
신세포암(RCC)은 비뇨기 계통에서 가장 흔한 악성 종양 중 하나이며, 투명세포 신세포암(ccRCC)은 지배적인 조직학적 아형이자 RCC 관련 사망의 주요 원인입니다. 최근 몇 년 동안 RCC의 발생률은 전반적으로 증가했으며, 지리적 차이가 뚜렷하게 나타납니다. 확립된 위험 요인으로는 흡연, 비만, 고혈압 및 만성 신장 질환이 있습니다3˒4. 진단 및 치료법의 발전에도 불구하고 ccRCC는 임상적으로 이질적인 특성을 유지하고 있으며, 일부 환자는 진행성 또는 전이성 질환으로 나타나고 수술 후 재발 및 원격 전이가 흔하게 발생합니다2˒5˒26. 따라서 종양의 거동 및 예후와 관련된 분자 생체지표를 식별하는 것은 ccRCC 연구에서 여전히 중요한 목표입니다. 본 분석 결과, ARHGAP22가 ccRCC에서 상향 조절되었으며, 이는 더 낮은 전체 생존율, 불량한 임상 병리학적 특성, 면역 관련 전사체 변화, 면역 억제성 종양 미세환경 프로파일 및 계산적으로 예측된 표적 치료제 민감도의 차이와 연관이 있는 것으로 나타났습니다. 이러한 발견은 임상적 유용성과 인과관계가 아직 확립되지 않았음에도 불구하고, ARHGAP22가 예후 및 면역 관련 생체지표 후보로서 잠재적 가치가 있음을 뒷받침합니다.
ARHGAP22는 세포골격 조절 및 세포 운동성에 관여하는 Rho GTPase 활성화 단백질을 인코딩합니다. 이 단백질은 pleckstrin homology 도메인, RhoGAP 도메인, C-말단 coiled-coil 영역을 포함하며 14-3-3 단백질과 상호작용할 수 있어, 성장 인자에 의해 조절되는 세포 이동에서 역할을 하는 것으로 시사됩니다22. FilGAP 관련 단백질로서, ARHGAP22는 RhoA-Rac1 축의 길항적 조절과 세포 이동 모드의 제어에 참여합니다21˒27. ARHGAP22는 주로 엔도솜에 위치하며 막 러플(membrane ruffles) 또는 세포막으로 운송될 수 있는데, 이곳에서 Rac 의존적 라멜리포디아(lamellipodia) 형성 및 세포 퍼짐을 억제합니다. 이러한 세포 내 위치는 RacGAP 활성과 밀접하게 연관되어 있습니다20˒23. 종양 관련 연관성 또한 보고되었습니다. 투명세포신세포암(ccRCC)에서 ARHGAP22는 브로모도메인 함유 단백질 4(bromodomain-containing protein 4) 억제 관련 전사 분석의 후보 분자로 확인되었으며, 더 낮은 전체 생존율과 연관이 있는 것으로 나타났습니다28. 또한 ARHGAP 가족 구성원들은 방광암에서의 종양 촉진 면역 침윤 및 질병 진행25, 급성 골수성 백혈병에서의 발현 변화 및 엑손 변이24, 그리고 전이성 대장암에서 bevacizumab에 대한 차등 반응29과도 연관되어 왔습니다.
본 연구 결과는 이러한 관찰 사항들과 일치하였습니다. ARHGAP22 발현은 T, N, M 분류, 조직학적 등급 및 임상 단계가 진행됨에 따라 증가하였으며, 더 높은 발현은 더 짧은 전체 생존 기간과 연관이 있었습니다. Rac 신호 전달은 이전에 ccRCC의 성장과 혈관 신생 전환을 촉진하는 것으로 밝혀졌으며16, Rho GTPase/Rho-associated coiled-coil-containing protein kinase 경로는 ccRCC의 악성 행동과 연관이 있는 것으로 알려져 있습니다17. 따라서 관찰된 ARHGAP22의 상향 조절은 공격적인 종양 표현형과 관련된 분자적 변화를 반영하는 것일 수 있습니다. 공동 발현 및 차등 발현 분석 결과, ARHGAP22가 광범위한 전사 네트워크와 연관되어 있음이 추가로 확인되었습니다. FMNL1, CARD9, TRPM2를 포함한 유전자들과는 양의 상관관계가 관찰된 반면, BSND 및 FOXI1을 포함한 유전자들과는 음의 상관관계가 관찰되었습니다. Gene Ontology, Kyoto Encyclopedia of Genes and Genomes, 그리고 Gene Set Enrichment Analysis 결과에서는 백혈구 매개 면역, 화학주성, 사이토카인 생성, 림프구 분화 및 증식, 사이토카인-수용체 상호작용 및 케모카인 신호 전달의 농축이 나타났습니다. 케모카인 네트워크는 RCC에서 면역 세포 모집, 종양 성장 및 전이에 기여하며30, 면역 관련 경로의 농축은 ccRCC에서 불량한 예후 및 변화된 종양 미세환경과 연관되어 왔습니다31. 투명 세포 신세포암 또한 임상 결과 및 면역 미세환경 복잡성과 관련된 뚜렷한 면역 전사 시그니처를 보입니다32. 비정상적인 유전자 발현, 면역 경로 농축, 불량한 예후 및 복잡한 공동 발현 패턴 사이의 유사한 관계가 다른 악성 종양에서도 보고된 바 있습니다33.
ARHGAP22 발현은 종양 면역 미세환경의 차이와도 관련이 있었습니다. 허위 발견율(false discovery rate) 보정 후, 고발현군에서는 조절 T 세포와 M2 대식세포의 추정 분율이 더 높게 나타났으며, 나이브 B 세포, 휴지기 비만세포 및 활성화된 수지상 세포의 추정 분율은 더 낮게 나타났습니다. 또한 ARHGAP22 발현과 여러 면역 관문 분자 사이의 양성 상관관계가 관찰되었으며, ImmuneScore, StromalScore 및 ESTIMATEScore 값 또한 더 높았습니다. 투명세포 신세포암은 상당한 면역 침윤이 특징이지만, 이러한 특징이 반드시 효과적인 항종양 반응을 나타내는 것은 아닙니다34. 기능 부전 상태의 면역 세포와 면역 억제 특성은 면역 관문 차단제의 효과를 제한할 수 있습니다35. 조절 T 세포와 M2 대식세포는 RCC에서 면역 억제, 종양 진행 및 불량한 예후와 관련이 있는 것으로 알려져 있으며36˒37, 면역 관문 발현의 증가는 면역 회피 관련 과정을 반영할 수 있습니다38. 따라서 본 결과는 ARHGAP22의 높은 발현이 단순히 더 많은 면역 침윤과 관련된 것이 아니라, 일반적으로 면역 억제와 연결되는 특징을 포함하는 면역 프로파일과 관련이 있음을 시사합니다. 면역 세포 추정치는 벌크 RNA 시퀀싱 데이터와 단일 계산 디콘볼루션(deconvolution) 방법을 통해 도출되었으므로, 이러한 해석은 추론적인 단계에 머물러 있습니다.
계산적으로 예측된 약물 민감도의 차이가 ARHGAP22 발현군 간에도 관찰되었습니다. 고위험 분자적 특성은 이전에 면역 침윤의 변화, 면역 경로 농축 및 차별적인 약물 반응과 연관이 있는 것으로 알려져 왔습니다39. ccRCC의 면역 관련 유전자 시그니처 또한 생존율을 층별화하고 면역요법 및 표적 치료에 대한 차별적 반응을 예측하는 것으로 보고되었습니다40˒41. 본 분석에서 low-ARHGAP22 발현군은 여러 표적 약물에 대해 더 낮은 예측 반최대 억제 농도 값을 보였습니다. 이러한 결과는 ARHGAP22 발현과 계산적으로 예측된 약물 민감도 사이의 연관성을 나타내지만, 실제 치료 반응이나 임상적 이점을 입증하는 것은 아닙니다. 샘플 품질 필터링, 균일한 중앙값 기반 발현 컷오프 사용, CIBERSORT 결과의 신뢰도 필터링, 다중 비교를 위한 위양성 발견율(false discovery rate) 보정 등 여러 방법론적 선택을 통해 분석의 일관성을 유지했습니다. 그럼에도 불구하고, 예측된 약물 민감도는 탐색적인 것으로 해석해야 하며, 실험적으로 측정되었거나 임상적으로 관찰된 약물 반응 데이터를 이용한 독립적인 검증이 필요합니다.
몇 가지 제한 사항을 고려해야 합니다. GSE167573을 통해 ARHGAP22 발현과 생존율 간의 연관성에 대한 외부 검증을 수행하였으나, 더 규모가 크고 다기관으로 구성된 임상 코호트에서의 검증이 여전히 필요합니다. 본 분석은 주로 회고적 공공 데이터셋과 bulk RNA-sequencing 데이터를 기반으로 하였으므로, 종양 세포, 기질 세포 및 침윤 면역 세포 중 ARHGAP22 발현의 구체적인 세포 기원을 구별할 수 없었습니다. 이러한 제한점은 단일 세포 RNA 시퀀싱, 다중 면역 형광 염색 또는 공간 전사체학을 통해 해결할 수 있을 것입니다. 면역 세포 침윤, 면역 관문 발현 및 약물 민감도는 계산적으로 추론되었으며, 이는 생물학적 기능이나 임상적 치료 반응을 직접적으로 나타내지 않을 수 있습니다. 독립적인 면역 디콘볼루션 방법, 기관 내 면역조직화학 코호트 또는 실험적 섭동 분석은 포함되지 않았습니다. 또한, 관찰된 연관성이 ARHGAP22 발현, 공발현 유전자, 면역 세포 침윤 및 약물 반응 사이의 인과 관계를 입증하는 것은 아닙니다. 따라서 임상 적용 전에는 기전 연구, 전향적 임상 검증 및 모델 성능 비교가 필요할 것입니다. 전반적으로 본 워크플로우는 공공 분자 데이터셋을 사용하여 후보 바이오마커를 평가하는 재현 가능한 프레임워크를 제공하지만, ARHGAP22의 생물학적 및 임상적 관련성에 대해서는 추가적인 독립적 확인이 필요합니다.
공개 사항
저자들은 이해관계의 충돌이 없음을 밝힙니다.
감사의 글
본 연구에서는 The Cancer Genome Atlas (TCGA)의 공개 데이터를 사용하였습니다. 이러한 리소스를 생성하고 제공한 TCGA 연구 네트워크에 감사드립니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| circlize R package | Version 0.4.16 | CRAN | circos plot 및 chord diagram 작성에 사용됨. |
| clusterProfiler R package | Version 4.12.0 | Bioconductor | GO, KEGG 및 GSEA 농축 분석에 사용됨. |
| ComplexHeatmap R package | Version 2.20.0 | Bioconductor | 복합 히트맵 시각화 및 임상 주석 히트맵 작성에 사용됨. |
| e1071 R package | Version 1.7.16 | CRAN | CIBERSORT 관련 분석의 서포트 벡터 회귀에 사용됨. |
| enrichplot R package | Version 1.24.0 | Bioconductor | 기능적 농축 결과의 시각화에 사용됨. |
| estimate R package | Version 1.0.13 | R package/source package | 기질, 면역 및 ESTIMATE 점수 계산에 사용됨. |
| ggExtra R package | Version 0.10.1 | CRAN | 주변 밀도 분포를 포함한 산점도 작성에 사용됨. |
| ggplot2 R package | Version 3.5.1 | CRAN | 일반적인 데이터 시각화에 사용됨. |
| ggpubr R package | Version 0.6.0 | CRAN | 박스 플롯, 바이올린 플롯 및 통계적 비교에 사용됨. |
| ggrepel R package | Version 0.9.5 | CRAN | 볼케이노 플롯에서 겹치지 않는 텍스트 레이블 작성에 사용됨. |
| limma R package | Version 3.60.4 | Bioconductor | 발현 데이터 전처리 및 차별 발현 관련 분석에 사용됨. |
| oncoPredict R package | Version 1.2 | CRAN | 전사체 데이터를 기반으로 약물 민감도를 예측하는 데 사용됨. |
| org.Hs.eg.db R package | Version 3.19.1 | Bioconductor | 유전자 주석 및 유전자 심볼과 Entrez ID 간의 변환에 사용됨. |
| pheatmap R package | Version 1.0.12 | CRAN | 히트맵 시각화에 사용됨. |
| preprocessCore R package | Version 1.68.0 | Bioconductor | CIBERSORT 관련 분석의 분위수 정규화에 사용됨. |
| R software | Version 4.4.0 | R Foundation for Statistical Computing | 통계 분석 및 시각화에 사용됨. |
| RColorBrewer R package | Version 1.1.3 | CRAN | 시각화의 컬러 팔레트 생성에 사용됨. |
| regplot R package | Version 1.1 | CRAN | 노모그램 시각화에 사용됨. |
| reshape2 R package | Version 1.4.4 | CRAN | 시각화 전 데이터 재구조화에 사용됨. |
| rms R package | Version 6.8.1 | CRAN | 예후 모델 구축, 보정 분석 및 노모그램 관련 분석에 사용됨. |
| scales R package | Version 1.4.0 | CRAN | 척도 조정 및 색상 투명도 설정에 사용됨. |
| survival R package | Version 3.5.8 | CRAN | Cox 회귀 및 Kaplan-Meier 생존 분석에 사용됨. |
| survminer R package | Version 0.4.9 | CRAN | Kaplan-Meier 생존 곡선 시각화에 사용됨. |
| timeROC R package | Version 0.4 | CRAN | 시간 의존적 ROC 곡선 분석에 사용됨. |
참고문헌
- Winter TD et al. Using Mendelian randomization to investigate etiologic heterogeneity across renal cell carcinoma subtypes. Int J Epidemiol. 2025;54(6):dyaf177. https://doi.org/10.1093/ije/dyaf177
- Hsieh JJ et al. Renal cell carcinoma. Nat Rev Dis Primers. 2017;3:17009. https://doi.org/10.1038/nrdp.2017.9
- Capitanio U et al. Epidemiology of renal cell carcinoma. Eur Urol. 2019;75(1):74-84.
- Siegel RL, Miller KD, Fuchs HE, Jemal A. Cancer statistics, 2022. CA Cancer J Clin. 2022;72(1):7-33.
- Wiechno P et al. Contemporary treatment of metastatic renal cell carcinoma. Med Oncol. 2018;35(12):156. https://doi.org/10.1007/s12032-018-1217-1
- Chen W et al. Targeting renal cell carcinoma with a HIF-2 antagonist. Nature. 2016;539(7627):112-117.
- Rydzanicz M, Wrzesiński T, Bluyssen HA, Wesoły J. Genomics and epigenomics of clear cell renal cell carcinoma: recent developments and potential applications. Cancer Lett. 2013;341(2):111-126.
- Barata PC, Rini BI. Treatment of renal cell carcinoma: current status and future directions. CA Cancer J Clin. 2017;67(6):507-524.
- Chowdhury N, Drake CG. Kidney cancer: an overview of current therapeutic approaches. Urol Clin North Am. 2020;47(4):419-431.
- Gulati S, Vaishampayan U. Current state of systemic therapies for advanced renal cell carcinoma. Curr Oncol Rep. 2020;22(3):26. https://doi.org/10.1007/s11912-020-0892-1
- Haga RB, Ridley AJ. Rho GTPases: regulation and roles in cancer cell biology. Small GTPases. 2016;7(4):207-221.
- Sahai E, Marshall CJ. RHO-GTPases and cancer. Nat Rev Cancer. 2002;2(2):133-142.
- Bustelo XR. RHO GTPases in cancer: known facts, open questions, and therapeutic challenges. Biochem Soc Trans. 2018;46(3):741-760.
- Crosas-Molist E et al. Rho GTPase signaling in cancer progression and dissemination. Physiol Rev. 2022;102(1):455-510.
- Li H, Peyrollier K, Kilic G, Brakebusch C. Rho GTPases and cancer. BioFactors. 2014;40(2):226-235.
- Goka ET, Chaturvedi P, Lopez DTM, Lippman ME. Rac signaling drives clear cell renal carcinoma tumor growth by priming the tumor microenvironment for an angiogenic switch. Mol Cancer Ther. 2020;19(7):1462-1473.
- Thompson JM, Landman J, Razorenova OV. Targeting the RhoGTPase/ROCK pathway for the treatment of VHL/HIF pathway-driven cancers. Small GTPases. 2020;11(1):32-38.
- Feng J et al. RhoJ promotes the progression of clear cell renal cell carcinoma via .the TNF-α/NF-κB axis. Transl Androl Urol. 2025;14(7):1849-1864.
- Guo K et al. Activation of RHO-GTPase gene pattern correlates with adverse clinical outcome and immune microenvironment in clear cell renal cell carcinoma. Clin Exp Med. 2025;25(1):67. https://doi.org/10.1007/s10238-025-01593-3
- Mori M, Saito K, Ohta Y. ARHGAP22 localizes at endosomes and regulates actin cytoskeleton. PLoS One. 2014;9(6):e100271. https://doi.org/10.1371/journal.pone.0100271
- Nakamura F. FilGAP and its close relatives: a mediator of Rho-Rac antagonism that regulates cell morphology and migration. Biochem J. 2013;453(1):17-25.
- Hu SH et al. The weak complex between RhoGAP protein ARHGAP22 and signal regulatory protein 14-3-3 has 1:2 stoichiometry and a single peptide binding mode. PLoS One. 2012;7(8):e41731. https://doi.org/10.1371/journal.pone.0041731
- Mori M et al. Endosomal localization of RacGAP protein ARHGAP22 regulates its GAP activity in human melanoma cells. Anticancer Res. 2022;42(12):5763-5771.
- El-Masry OS, Alamri AM, Alzahrani F, Alsamman K. ADAMTS14, ARHGAP22, and EPDR1 as potential novel targets in acute myeloid leukaemia. Heliyon. 2022;8(3):e09065. https://doi.org/10.1016/j.heliyon.2022.e09065
- Yang C et al. Transcriptomic analysis identified ARHGAP family as a novel biomarker associated with tumor-promoting immune infiltration and nanomechanical characteristics in bladder cancer. Front Cell Dev Biol. 2021;9:657219. https://doi.org/10.3389/fcell.2021.657219
- Schiavoni V et al. Recent advances in the management of clear cell renal cell carcinoma: novel biomarkers and targeted therapies. Cancers (Basel). 2023;15(12):3207. https://doi.org/10.3390/cancers15123207
- Sanz-Moreno V et al. Rac activation and inactivation control plasticity of tumor cell movement. Cell. 2008;135(3):510-523.
- Sakaguchi T et al. Bromodomain protein BRD4 inhibitor JQ1 regulates potential prognostic molecules in advanced renal cell carcinoma. Oncotarget. 2018;9(33):23003-23017.
- Stránská J et al. Copy number variation and clinical response to chemotherapy and bevacizumab in Czech patients with metastatic colorectal cancer. Klin Onkol. 2024;37(4):277-285.
- Parihar JS, Tunuguntla HS. Role of chemokines in renal cell carcinoma. Rev Urol. 2014;16(3):118-121.
- Chen Z, Wu R, Ma J, Zheng J. C chemokines are prognostic biomarkers correlated with diverse immune cell infiltrations in clear cell renal cell carcinoma. Transl Cancer Res. 2022;11(8):2501-2522.
- Şenbabaoğlu Y et al. Tumor immune microenvironment characterization in clear cell renal cell carcinoma identifies prognostic and immunotherapeutically relevant messenger RNA signatures. Genome Biol. 2016;17(1):231. https://doi.org/10.1186/s13059-016-1092-z
- Song DM et al. LIG1 is a novel marker for bladder cancer prognosis: evidence based on experimental studies, machine learning, and single-cell sequencing. Front Immunol. 2024;15:1419126. https://doi.org/10.3389/fimmu.2024.1419126
- Vuong L, Kotecha RR, Voss MH, Hakimi AA. Tumor microenvironment dynamics in clear-cell renal cell carcinoma. Cancer Discov. 2019;9(10):1349-1357.
- Burgers FH et al. Immunological features of clear-cell renal-cell carcinoma and resistance to immune checkpoint inhibitors. Nat Rev Nephrol. 2025;21(10):687-701.
- Davidsson S et al. Infiltration of M2 macrophages and regulatory T cells plays a role in recurrence of renal cell carcinoma. Eur Urol Open Sci. 2020;20:62-71.
- Zhang X et al. Tumor-associated M2 macrophages in the immune microenvironment influence the progression of renal clear cell carcinoma by regulating M2 macrophage-associated genes. Front Oncol. 2023;13:1157861. https://doi.org/10.3389/fonc.2023.1157861
- Tronik-Le Roux D et al. Comprehensive landscape of immune checkpoints uncovered in clear cell renal cell carcinoma reveals new and emerging therapeutic targets. Cancer Immunol Immunother. 2020;69(7):1237-1252.
- Hong J et al. A zinc metabolism-related gene signature for predicting prognosis and characteristics of breast cancer. Front Immunol. 2023;14:1276280. https://doi.org/10.3389/fimmu.2023.1276280
- Xu W et al. Prognostic immunophenotyping clusters of clear cell renal cell carcinoma defined by the unique tumor immune microenvironment. Front Cell Dev Biol. 2021;9:785410. https://doi.org/10.3389/fcell.2021.785410
- Gu J et al. A novel immune-related gene signature for predicting immunotherapy outcomes and survival in clear cell renal cell carcinoma. Sci Rep. 2023;13(1):18922. https://doi.org/10.1038/s41598-023-45966-8