N6-메틸아데노신(m6A) 관련 유전자는 유방암에서 조절 이상을 겪으며, 메틸화나 복제본 수 변형과의 상관관계는 제한적입니다. YTHDF3를 포함한 6개의 유전자가 예후를 제시했다. YTHDF3는 RNA 대사, DNA 수리, 텔로미어 안정성, 면역 침투에 관여하는 독립적인 예후 인자입니다. 임상적으로 상향 조절이 확인되어 추가 조사가 필요하다.
연구 논문
m6A 조절제에 대한 종합 분석, YTHDF3가 유방암의 유망한 예후 바이오마커로 확인됨
* These authors contributed equally
이 논문에서
요약
초록
N6-메틸아데노신(m6A) 관련 유전자의 발현 지형과 예후는 유방암에서 아직 거의 규명되지 않았습니다. 여기서는 이들의 발현 프로필과 임상적 관련성에 대한 통합 분석을 수행했습니다. 다중 오믹스 데이터셋과 실험적 검증을 활용하여 유방암에서 m6A 관련 유전자에 대한 체계적인 조사를 수행했습니다. 이 유전자들은 유방암에서 뚜렷한 차별 발현을 보였으나, 프로모터 메틸화나 복제수 변형과 같은 분자 특성과의 상관관계는 제한적이었습니다. 단변량 생존 분석 결과, RBM15B, METTL16, HNRNPC, YTHDF1, YTHDF3, IGF2BP1의 이상 발현이 환자 예후와 유의하게 연관되어 있음을 보여주었습니다. 다변량 콕스 회귀분석은 YTHDF3 발현 증가가 독립적인 예후 요인임을 확인하였습니다. 기능 네트워크 분석 결과, YTHDF3는 RNA 처리 및 대사뿐만 아니라 DNA 수리, pri-miRNA 처리, 텔로미어 안정성, 면역 침윤에도 잠재적으로 관여할 수 있음을 시사했습니다. 더불어, 임상 유방암 표본에서 YTHDF3 mRNA의 상향 조절이 확인되었습니다. 전체적으로 m6A 관련 유전자는 유방암에서 조절 이상을 겪으며 환자 결과와 상관관계를 맺어 바이오마커 잠재력을 강조하며, YTHDF3는 심층 연구가 필요합니다.
서론
유방암은 매우 이질적인 악성 종양으로, 전 세계적으로 가장 흔하게 진단되는 암이 되었으며, 2020년 기준 약 230만 건의 신규 확진과 68만 명 이상의 사망자가 여성 암 관련 사망의 주요 원인으로 추정됩니다. 치료법의 발전에도 불구하고 모든 환자에게 결정적인 완치법은 여전히 불가능하며, 조기 진단과 예후를 위한 분자 바이오마커를 식별할 필요성을 강조합니다.
비정상적인 후생유전학적 변형은 암의 특징입니다. 다양한 RNA 변형 중 N6-메틸아데노신(m6A)은 유방암에서 점점 더 중요한 역할을 하는 후생전사체 표지로 알려져 있습니다. m6A는 주로 포유류 mRNA의 3'-UTR에 침착되는 가역적 변형이며, "작가"(메틸트랜스퍼라제), "지우개"(탈메틸화제), "리더"(결합 단백질)에 의해 조율됩니다5. 새로운 증거는 m6A 관련 유전자가 종양 발생과 진행에 연관되어 있음을 시사합니다. 그러나 유방암에서 m6A 조절 인자의 현황은 여전히 불확실하며, 포괄적인 유전학 및 후생유전학적 분석도 부족합니다.
본 연구에서는 공개 오믹스 데이터베이스와 실험적 검증을 통해 유방암에서 차별적으로 발현된 m6A 관련 유전자를 확인했습니다. 우리는 생존 분석과 조절 네트워크 예측을 통해 이들의 임상 예후 가치를 추가로 평가하고 분자 기전을 탐구하였습니다.
프로토콜
유전자 발현 및 생존 데이터
암 게놈 아틀라스(TCGA) 코호트 데이터는 1,034개의 유방암 종양 샘플과 104개의 정상 인접 조직(NAT)으로 구성되었으며, 947명의 환자에 대한 임상 정보가 포함되었습니다. 이 데이터는 m6A 관련 유전자의 mRNA 발현 프로필과 예후와의 연관성을 분석하는 데 사용되었습니다. 또한, 여러 유방암 데이터셋을 집계하는 Kaplan-Meier Plotter(KMplotter) 온라인 도구를 사용하여 YTHDF3 발현과 생존율 간의 연관성을 검증하였습니다. 발현 패턴을 추가로 검증하기 위해, 우리는 유방암 유전자 발현 마이너 v4.7 9,10을 통해 유전형-조직 발현(GTEx) 프로젝트의 92개 건강한 유방 조직 데이터를 포함시켰습니다. 유방암 및 정상 조직의 다양한 아형에서 YTHDF3의 단백질 및 mRNA 수준은 임상 단백질체종양분석컨소시엄(CPTAC)과 TCGA 데이터셋을 기반으로 UALCAN에 의해 분석되었습니다.
유전학 및 후생유전학적 평가
유전적 변형은 cBioPortal을 사용하여 침습성 유방암 데이터셋(TCGA, 임시, 1,108건)을 중심으로 조사되었습니다12. MethHC에서 프로모터 메틸화 데이터를 수집했으며, 여기에는 839개의 유방암 샘플과 부분적으로 인접한 정상 대조군이 포함되었습니다13.
유전자 조절 네트워크 및 면역 침윤 분석
단백질-단백질 상호작용은 STRING(신뢰도 점수 0.4)을 사용해 탐구하였다14. 유전자 주석 및 경로 풍부화는 Metascape를 사용하여 수행되었습니다(p < 0.01, 최소 3, 농축 계수 > 1.5)15. 유방암에서 YTHDF3 발현이 B 세포, CD8+ T 세포, CD4+ T 세포, 대식세포, 호중구, 수지상세포(DCS)와 연관되어 종양 면역 추정 자원(TIMER)을 사용하여 분석하였습니다. 종양 순도와 정규화된 유전자 발현 수준이 가장 왼쪽패널 16에 표시되었습니다.
정량적 역전사 중합효소 연쇄반응(qRT-PCR)
모든 참가자는 서면으로 사전 동의서를 제출했으며, 연구는 남서의과대학교 제휴병원 윤리위원회(승인번호)의 승인을 받았습니다. KY2022124) 그리고 헬싱키 선언의 원칙에 따라 진행되었다. 전체 RNA 추출에는 냉동 유방 종양 표본과 인접한 비종양 표본이 사용되었습니다. 추출된 RNA의 농도와 순도는 분광광도계로 평가되었으며, A260/A 280 비율이 1.8–2.0인 샘플만 포함되었습니다. RNA 완전성은 1.5% 아가로스 겔 전기영동으로 확인되었습니다. 그 후 제조사의 지침에 따라 총 RNA 1 μg에서 20 μL 반응을 통해 첫 번째 가닥 cDNA를 생성했습니다. 정량적 실시간 PCR이 수행되었으며, 각 20 μL 반응에는 10 μL 2× SYBR Green 마스터 믹스, 0.4 μL 순방향 및 역 프라이머(각 10 μM), 희석된 cDNA 2 μL(1:10), 그리고 7.2 μL 무핵효소 물이 포함되어 있었습니다. qRT-PCR은 앞서 설명한 대로 수행되었다. 프라이머는 다음과 같습니다: β-액틴-F, GAAGATCAAGATCATTGCTCCT; β-액틴-R, 전술 작전증 수치증 수치; YTHDF3-F, AAAAGACGGGCCTCTCTC; YTHDF3-R, TTGGCCGAGTGATTGTTCCA. 열순환 조건은 95 °C에서 3분, 이어서 95 °C에서 10초, 55 °C에서 20초, 72 °C에서 20초(형광 획득은 72 °C)로 40회 사이클이 이어졌습니다. 프라이머 특이성을 확인하기 위해 용융 곡선 분석(95 °C에서 60 °C, 0.5 °C/s 증가)이 수행되었습니다. 상대 발현은 2−ΔΔCt 방법으로 계산되었습니다.
통계적 방법
2군 비교에는 쌍 없는 t-검정이 사용되었습니다. 로그랭크 검정과 다변량 콕스 회귀분석을 이용한 Kaplan-Meier 생존 분석을 통해 예후 인자를 평가하였습니다. qRT-PCR 검증을 위해 쌍 샘플을 ΔCt 값에 대해 양측 쌍 Student's t-검정을 사용해 비교하였습니다. 그림 1에서는 Dunnett-Tukey-Kramer 검정을 사용하여 쌍별 비교를 수행했습니다. P < 0.05는 통계적으로 유의한 것으로 간주되었습니다.
결과
유방암에서 m6A 관련 유전자의 mRNA 발현 차이
TCGA 및 GTEx 데이터(1,034개의 종양, 104개의 정상 질환, 92개의 건강한 조직) 분석 결과, 대부분의 m6A 관련 유전자가 차별적으로 발현된 것으로 나타났습니다(그림 1). 건강한 유방 조직에 비해 10개의 유전자가 유의미하게 상향 조절되었는데, KIAA1429, RBM15, RBM15B, HNRNPC, YTHDF1, YTHDF2, YTHDF3, IGF2BP1, IGF2BP3, ALKBH5(모두 P < 0.0001, RBM15 P < 0.001). 8개의 유전자가 하향 조정되었는데, WTAP, METTL3, METTL14, HNRNPA2B1, YTHDC1, YTHDC2, IGF2BP2, FTO(P < 0.05에서 P < 0.0001). METTL16와 eIF3A는 유의한 차이를 보이지 않았습니다. 종양과 NATs를 비교했을 때, HNRNPA2B1는 상향 조절되었고, YTHDF3, eIF3A, ALKBH5는 하향 조절되었고; RBM15, RBM15B, YTHDF2는 차이 가 없었다(그림 1). NAT를 대조군으로 사용하는 것에 의문이 제기되었으며, 이는 건강한 조직 비교와의 불일치를 설명할 수 있습니다18,19. 흥미롭게도, CPTAC 데이터셋에서는 정상 조직에 비해 모든 유방암 아형에서 YTHDF3 단백질 풍부도가 더 높은 경향이 관찰되었습니다(P < 0.0001). 또한, 정상 조직에 비해 유방암의 하위형 아형에서만 유의하게 높은 mRNA 발현이 관찰되었습니다(P = 0.004, < 0.01)(보충 그림 S1). 전반적으로 m6A 관련 유전자의 유의미한 조절 장애가 유방암에서 뚜렷하게 나타납니다.
유방암에서 m6A 관련 유전자의 프로모터 메틸화 및 유전자 증폭
DNA 메틸화는 유전자 전사의 후생유전학적 조절에 중요한 역할을 하며, 프로모터 과메틸화는 mRNA 발현을 억제합니다20. 메타HC 분석에서는 종양과 대조군 간 IGF2BP1, IGF2BP2, IGF2BP3에서만 프로모터 메틸화 차이가 유의미하게 나타났습니다(P < 0.005). IGF2BP2 mRNA의 하향 조절은 부분적으로 과메틸화에 기인할 수 있습니다. cBioPortal 분석 결과, WTAP와 ALKBH5는 mRNA 하향 조절을 보였고, KIAA1429(VIRMA), YTHDF1, YTHDF3, IGF2BP1은 상향 조절과 관련된 유전자 증폭을 보였다(보조 그림 S2, 보충 그림 S3, 보완 그림 S4). 이 발견들은 m6A 관련 유전자의 mRNA 수준이 주로 프로모터 메틸화나 유전자 증폭에 의해 좌우되지 않음을 시사합니다.
유방암에서 m6A 관련 유전자의 생존 분석
947명의 생존 환자에 대한 생존 분석에서 낮은 RBM15B 발현과 높은 발현 METTL16, HNRNPC, YTHDF1, YTHDF3, IGF2BP1 발현이 전체 생존율 감소와 유의한 상관관계가 있음이 밝혀졌습니다(그림 2 및 그림 3). 연령, 병기, 인종을 보정한 다변량 콕스 회귀 분석은 YTHDF3 상향 조절이 전체 생존율 저하의 독립적인 예측 요인임을 확인했습니다(HR: 1.024, 95% 신뢰구간: 1.003–1.046, P = 0.024)(표 1). 외부 검증을 위해 KMplotter 온라인 도구를 이용한 분석 결과, 높은 YTHDF3 발현은 질병 예후가 좋지 않음을 예측하는 것으로 나타났습니다(보충 그림 S5). 다른 유전자들은 독립적으로 유의하지 않았습니다(보충표 S1).
m6A 관련 유전자 YTHDF3의 분자망 및 면역 침윤 가능성
YTHDF3의 STRING 분석(상호작용자 제한 50명)은 224개의 간선과 유의미한 풍부도(P < 1e-16)를 가진 네트워크를 확인했습니다. YTHDF3는 METTL3, ALKBH5, WTAP, METTL14 등과 밀접하게 연관되어 있습니다 (그림 4A). 메타스케이프 풍부 분석 결과 13개의 유의미한 기능 군집이 확인되었습니다(P < 0.01, 최소 3개, 농축 인수 > 1.5; 그림 4B). 가장 높은 순위는 mRNA 대사 조절(GO1903311, 22개 유전자)이었습니다. 추가로 암과 관련된 군집으로는 DNA 딜킬화 수리(GO0006307), pri-miRNA 처리(GO0031053), 텔로머라제 안정화(GO1904356) 등이 포함되었습니다. 클러스터 이름, 관련 유전자 및 풍부도 통계의 전체 목록은 보충 표 S2에 제공되어 있습니다. 더 나아가, 결과는 YTHDF3 발현과 면역세포 간에 유의미한 양상관관계가 있음을 보여주었습니다(모두 P < 0.01)( 보충 그림 S6). 따라서 YTHDF3 상향 조절은 mRNA 대사, DNA 수리, 텔로미어 유지, 면역 침윤과 관련이 있을 수 있습니다.
유방암에서 YTHDF3 의 mRNA 발현 상향 조절
2023년 7월부터 10월까지 남서의과(Southwest Medical University 산하 유방외과) 유방외과에서 수술을 받은 20명의 환자로부터 유방암 조직과 인접한 정상 유방 조직을 수집하였습니다. 이 쌍 샘플의 qRT-PCR 분석 결과, 종양 조직에서 인접한 정상 조직보다 YTHDF3 mRNA 발현이 유의하게 높았다(P = 0.001)(보충 그림 S7 및 보충 표 S3).
데이터 이용 가능성
이 연구에서 분석된 모든 데이터셋은 다음 오픈 액세스 저장소에서 공개되어 있습니다. 유전자 발현 및 임상 데이터: 유방암 RNA-seq-발현 데이터와 관련 임상 정보는 The Cancer Genome Atlas(TCGA-BRCA)와 The Human Protein Atlas(https://www.proteinatlas.org/)에서 수집되었습니다. 추가적인 정상 유방 조직 발현 데이터는 유방암 유전자 발현 v4.7(http://bcgenex.ico.unicancer.fr/)을 통해 유전형-조직 발현(GTEx) 프로젝트(dbGaP 등록번호 phs000424.v8.p2)에서 수집되었습니다. 생존 검증은 Kaplan-Meier 플로터(https://kmplot.com)를 사용하여 수행되었습니다. 단백질 및 mRNA 발현 데이터는 UALCAN(http://ualcan.path.uab.edu/)을 통해 얻었습니다. 유전적 변이: 침습성 유방암 데이터셋(TCGA, 임시, 1108개 샘플)의 체세포 돌연변이 및 복사수 변형 데이터는 cBioPortal(https://www.cbioportal.org/)을 통해 접근하였습니다. DNA 프로모터 메틸화: 메틸화 데이터는 839개의 유방암 샘플과 부분적으로 인접한 정상 대조군을 포함하는 MethHC(http://methhc.mbc.nctu.edu.tw/)에서 얻었습니다. 단백질-단백질 상호작용 및 경로 풍부화: 기능적 네트워크 분석은 STRING v12.0(https://string-db.org/, 신뢰도 점수 0.4)과 Metascape(http://metascape.org/)를 사용하여 수행되었습니다. 면역 침윤 분석은 TIMER (https://cistrome.shinyapps.io/timer/)를 사용하여 수행되었습니다. 수치의 추가 데이터는 교신저자가 합리적인 요청 시 제공한다.
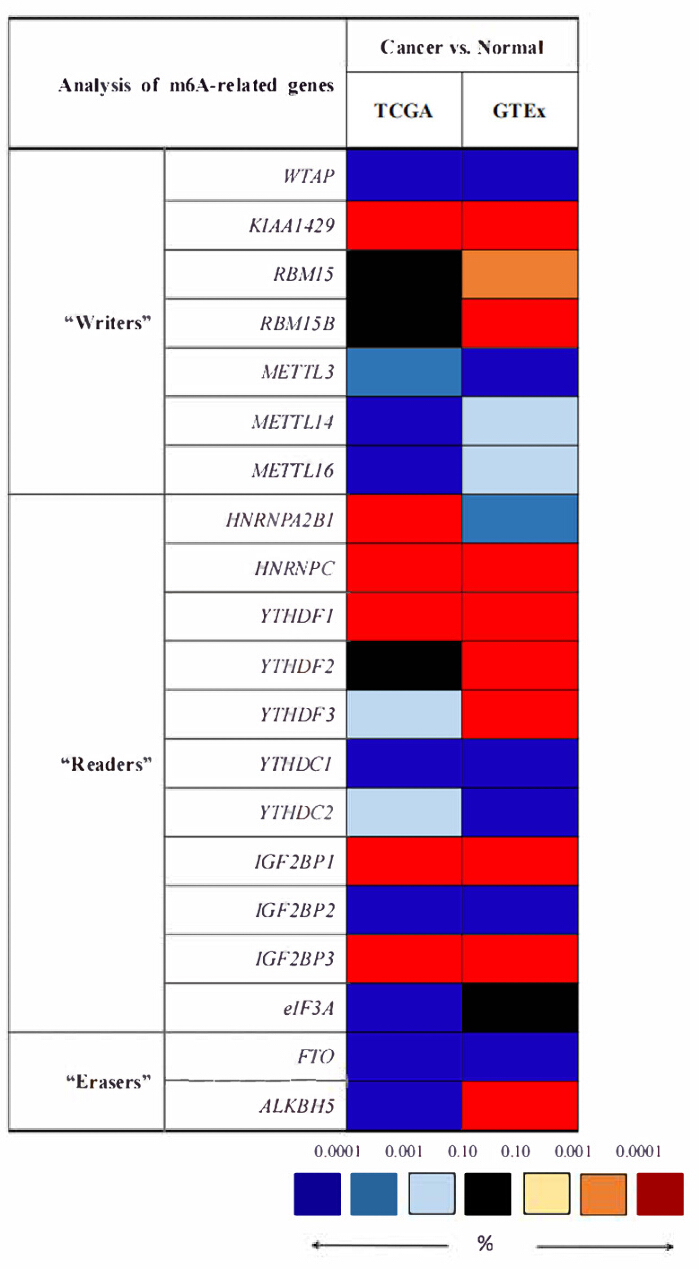
그림 1. 유방암에서 N6-메틸아데노신(m6A) 관련 유전자의 차별적 mRNA 발현. 빨간색은 상향 조절을 의미합니다; 파란색은 하향 조절을, 검은색은 발현 차이가 없음을, 흰색은 유전자 발현 데이터가 없음을 나타냅니다. 색상 코딩은 통계적 유의성을 반영합니다. Dunnett-Tukey-Kramer 검정은 쌍별 비교에 사용되었습니다. 참고: "정상"은 TCGA에서 종양과 NAT 간의 비교, 그리고 GTEx에서 종양과 건강한 조직 간의 비교를 포함합니다. 약어: NATs = 정상 인접 조직; TCGA = 암 게놈 아틀라스; GTEx = 유전자형-조직 발현. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
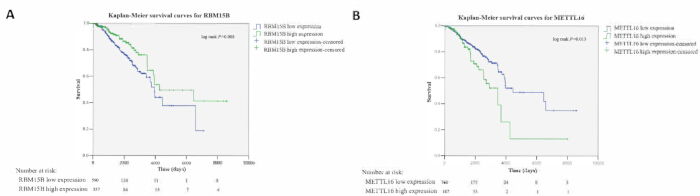
그림 2. m6A "작가" RBM15B 와 METTL16 의 mRNA 발현 이상과 유방암 환자의 전체 생존율 간의 연관성. (A) RBM15B 발현이 낮으면 전체 생존 기간이 짧아졌음(로그 랭크 검정, P = 0.008, <0.01); (B) METTL16 발현이 높으면 예후가 좋지 않음(로그 랭크 검정, P = 0.013, <0.05). 환자들은 최적 컷오프 값을 사용하여 고발현군과 저발현군으로 이분법화되었습니다. n = 947명 (TCGA-BRCA 코호트). 파란색과 초록색 곡선은 각각 저발현군과 고발현군을 나타냅니다. mRNA 발현 단위는 백만 개의 매핑된 리드당 전사체의 조각 당 킬로베이스 조각수였습니다. 약어: TCGA-BRCA = 암 게놈 아틀라스 유방 침윤성 암; m6A = N6-메틸아데노신. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
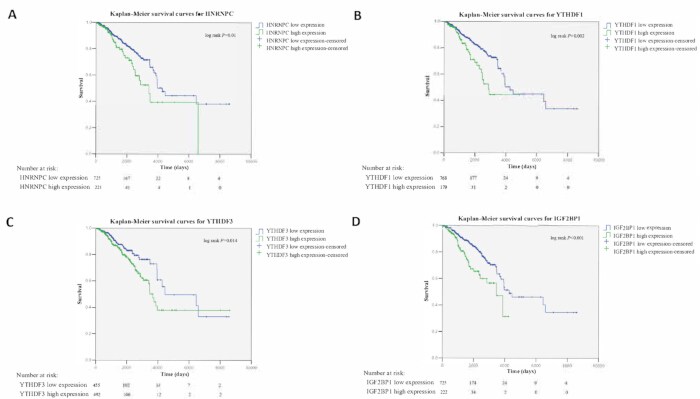
그림 3. m6A "리더" HNRNPC, YTHDF1, YTHDF3, IGF2BP1의 이상한 mRNA 발현과 유방암 환자의 전체 생존율 간의 상관관계. (A) 높은 HNRNPC mRNA 발현은 전체 생존율 감소와 연관되어 있었다(로그 랭크 검정, P = 0.01, <0.05). (B-D) YTHDF1, YTHDF3, IGF2BP1의 높은 발현은 예후가 더 좋지 않은 것과 유의하게 연관되어 있었습니다(로그 랭크 검정, 각각 P = 0.002, P = 0.014, P < 0.001). 환자들은 최적 컷오프 값을 사용하여 고발현군과 저발현군으로 이분법화되었습니다. n = 947명 (TCGA-BRCA 코호트). 파란색과 초록색 곡선은 각각 저발현군과 고발현군을 나타냅니다. 유전자 mRNA 발현 단위는 백만 개의 매핑된 리드당 전사체의 조각 단위(Fragments Per Kilobase)였습니다. 약어: TCGA-BRCA = 암 게놈 아틀라스 유방침윤암; m6A = N6-메틸아데노신. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
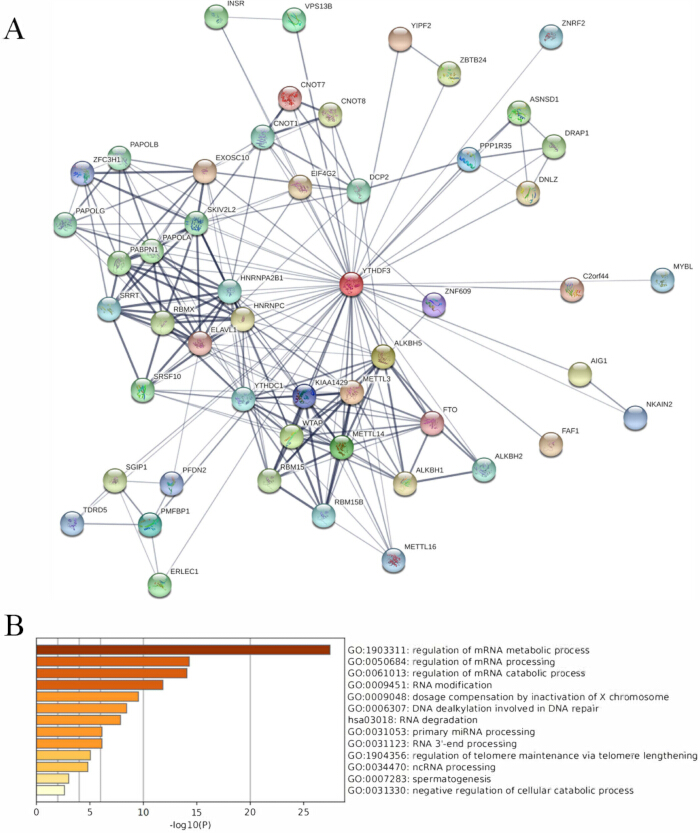
그림 4. YTHDF3의 잠재적 분자 조절 네트워크. (A) YTHDF3를 미끼로 하여 STRING 데이터베이스를 쿼리하여 구축한 단백질 상호작용 네트워크(신뢰도≥ 0.4, 최대 상호작용자 = 50). 가장자리 너비는 증거의 강도를 나타냅니다. (B) 메타스케이프 분석은 13개의 유의미한 기능 군집(P < 0.01, 최소 개체수 = 3, 농축 계수 > 1.5)을 확인했습니다. 존재론 출처로는 교토 유전자 및 유전체 경로 백과사전과 유전자 생물학적 과정 존재론이 포함되었습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
| 매개변수 | 인사 | 신뢰감시구간(95%) | p-값 |
| YTHDF3 | 1.024 | 1.003-1.046 | 0.024 |
| 연식 | 1.036 | 1.023-1.050 | <0.001 |
| 레이스 | 1.275 | 0.892-1.821 | 0.182 |
| 무대 | 2.263 | 1.796-2.851 | <0.001 |
표 1: m6A 관련 유전자 YTHDF3의 다변량 Cox 생존 회귀분석 결과. 약어: HR = 위험도; 95% 신뢰구간 = 신뢰구간.
보충 그림 S1. CPTAC 및 TCGA 데이터셋에서 유방암 및 정상 조직의 다양한 아형에서 YTHDF3의 단백질 및 mRNA 수준을 분석합니다. YTHDF3의 단백질 발현은 (A) 원발성 종양 및 정상 조직, (B) 유방 침습성 암 아형에서 이루어졌습니다. Z-값은 해당 암 유형에 대해 샘플 간 중앙값에서 표준편차가 얼마나 나은지 나타냅니다. CPTAC log2 스펙트럼 계수비 값은 각 샘플 프로필 내에서, 그리고 샘플 간에 정규화되었습니다. (C) 유방침윤암의 다양한 아형에서 YTHDF3 의 mRNA 발현(RNA-seq, 백만 개 매핑된 리드당 전사체의 조각 단위). 약어: CPTAC = 임상 단백질체 종양 분석 컨소시엄; TCGA = 암 게놈 아틀라스. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충 그림 S2. M6A 관련 유전자의 프로모터 메틸화 상태는 MethHC 데이터베이스에서 검색됨. (A) 유방암 및 정상 대조군에서 m6A '작가'의 프로모터 메틸화. (B)유방암과 정상 대조군에서 m6A '지우개'의 프로모터 메틸화. (C)유방암과 정상 대조군에서 m6A '리더'의 프로모터 메틸화. 빨간색, 유방암; 초록색, 정상 조작. *P < 0.05, **P < 0.005. 약어: m6A = N6-메틸아데노신. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충 그림 S3. cBioPortal이 분석한 m6A "작가" 및 "지우개"에 대한 유전자 돌연변이 및 복사본 수 변이(TCGA, 임시, n = 1,108). (A) m6A "작가"의 변경. (B) m6A '지우개'의 변형. 막대 그래프는 각 변형 유형의 빈도를 나타냅니다: 오의미 돌연변이, 증폭, 깊은 결실, 다중 변형. 변형 빈도가 1%≥ 있는 유전자만 표시된다. 유전자별 전체 변이 빈도는 오른쪽에 표시되어 있습니다. 약어: TCGA = 암 게놈 아틀라스; m6A = N6-메틸아데노신. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충 그림 S4. cBioPortal이 분석한 m6A "리더"(TCGA, 임시, n = 1,108)에 대한 유전자 돌연변이 및 복제수 변형. 막대 그래프 는 각 변형 유형의 빈도를 나타냅니다: 오의미 돌연변이, 증폭, 깊은 결실, 다중 변형. 변형 빈도가 1%≥ 있는 유전자만 표시된다. 유전자별 전체 변이 빈도는 오른쪽에 표시되어 있습니다. 약어: TCGA = 암 게놈 아틀라스; m6A = N6-메틸아데노신. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충 그림 S5. KMplotter에서 유방암 환자의 생존율과 YTHDF3의 상관관계. (A) 높은 YTHDF3 mRNA 발현은 전체 생존율 감소와 관련이 있었다(P = 0.011, <0.05). (B-D) YTHDF3의 높은 발현은 재발 없는 생존율, 먼 전이 없는 생존율, 진행 후 생존율(각각 P = 1.9e-09, P = 0.06, P = 0.029)과 유의하게 연관되어 있었습니다. 모든 P 값은 로그 랭크 검정으로 계산되었습니다. 각 플롯 아래에 위험 환자 수가 표시되어 있습니다. 최적의 컷오프는 도구의 자동 선택 최적 컷오프 기능에 의해 결정되었습니다. 약어: KMplotter = Kaplan-Meier Plotter. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충 그림 S6. 유방암에서 YTHDF3 발현과 면역 침윤의 상관관계. YTHDF3 발현은 TIMER 데이터셋에서 B 세포, CD4+ T 세포, CD8+ T 세포, 대식세포, 호중구 및 DC 침윤 수준과 양의 상관관계를 보였습니다. 부분 스피어먼 상관관계 분석에서 종양 순도가 공변량으로 사용되었습니다. 약어: DCs = 수지상 세포; TIMER = 종양 면역 추정 자원. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충 그림 S7. 20쌍의 유방암 조직과 인접한 정상 조직에서 YTHDF3 mRNA 발현에 대한 역전사 중합효소 연쇄반응 정량 검증. YTHDF3 mRNA 수치는 β-액틴으로 정상화되었다. 데이터는 2⁻ΔΔCt 값으로 제시됩니다. 통계적 비교는 ΔCt값(P = 0.001)에 대해 양측 쌍 학생 t-검정을 사용하여 수행되었습니다. 약어: NC = 인접한 정상 유방 조직; BrCa = 유방암 조직. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충표 S1. m6A 관련 유전자에 대한 다변량 생존 분석 결과를 요약하였습니다. 약어: HR = 위험도; 95% 신뢰구간 = 신뢰구간. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충표 S2. Metascape를 기반으로 한 13개의 YTHDF3 관련 유전자에 대한 주석 및 농축 결과.이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충 표 S3. 20개의 쌍 유방암 샘플의 임상 정보.이 파일을 다운로드하려면 여기를 클릭해 주세요.
토론
치료적 개선에도 불구하고, 유방암에 대한 조기 진단과 맞춤형 치료는 여전히 도전 과제로 남아 있어 새로운 분자 표적 발견이 필요하다21. 이 연구는 유방암에서 m6A 관련 유전자를 특성화하기 위해 다중 오믹스 데이터를 통합하였습니다. 우리의 결과는 프로모터 메틸화나 유전자 증폭과 무관하게 이들 유전자의 광범위한 조절 장애를 보여주며, 특히 YTHDF3 등 여러 유전자의 이상 발현이 예후의 악화와 연관되어 있음을 보여줍니다. 임상 샘플에서 YTHDF3 의 상향 조절을 추가로 확인하고, 암 관련 경로에서의 관여를 예측하였습니다.
m6A 메틸화는 WTAP, KIAA1429, RBM15, METTL3, METTL1422를 포함한 '라이터' 복합체에 의해 설치됩니다. WTAP는 다양한 악성 종양에서 종양성23,24,25이지만, 유방암에서의 하향 조절은 맥락 의존적 기능을 시사합니다. KIAA1429 상향 조절은 유방암에서 CDK1 조절에 관한 보고된 역할과 일치한다25. 조혈과 육종에 영향을 미치는 것으로 알려진 RBM15는 상향 조절되었고, RBM15B 상향 조절은 생존율 향상과 연관되어 BAP1과 양상관관계와 일치하였다28. let-7g를 억제한다는 보고에도 불구하고 METTL3의 하향 조절이 관찰된 바 있다29,30. METTL14 하향 조절은 m6A 변형을 통한 종양 억제 역할과 일치합니다31. METTL16 표현은 여전히 논란이 많으며 추가 연구가 필요하다29,32.
"지우개"에 관해서는, 우리 코호트에서 FTO가 일부 TCGA기반 연구와 유사하게 하향 조절되었으나, 상반된 보고서들은 FTO가 BNIP3를 통한 진행을 촉진한다고 제안한다33. ALKBH5는 대조군에 따라 발현이 달라졌으며, 저산소증 상태에서 유방암 줄기 유지에 관여하는 것으로 알려져 있다34,35.
YTH 도메인을 포함하는 "리더"는 m6A와 HNRNPC, HNRNPA2B136을 인식합니다. HNRNPA2B1 STAT3/ERK1/2에서37,38 신호를 보내는 역할에 따라 상향 조정되었습니다. HNRNPC 상향 조절은 dsRNA 유도 인터페론 반응 조절 기능과 일치합니다39.
YTHDF1과 YTHDF2는 다양한 암에서 이중 역할을 보입니다40,41. 축적된 증거는 YTHDF3가 종양 발생 과정에 연루되어 있음을 시사합니다: EGFR/STAT3를 통한 간세포암42, EGFR/ATK/ERK/p21을 통한 교모세포종43, 대사 재프로그래밍을 통한 자궁경부암 전이(44)를 촉진합니다. 본 연구는 유방암에서 YTHDF1, YTHDF2, YTHDF3가 건강한 조직과 비교했을 때 상향 조절을 보여주었으며, YTHDF3 상향 조절이 실험적으로 추가로 검증되었습니다. 이는 유방암에서 YTHDF3의 추가 연구를 뒷받침합니다. YTHDC1과 YTHDC2는 하향 조절되었으나, 다른 연구들은 이들이 자궁내막암과 대장암에서 전이성 역할을 보고하고 있다45,46.
IGF2BP 단백질은 m6A 리더 역할도 합니다47. IGF2BP1 상향 조절은 클로노젠 성장 지원에 대한 알려진 역할과 일치합니다48. IGF2BP2 프로모터 메틸화 때문일 가능성이 있는데, 이는 이동 역할에 대한 보고와 대조되는49. IGF2BP3 상향 조절은 TRIM25를 통한 증식촉진과 삼중음성 유방암에서 IGF2BP2과 협력적 전이와 일치한다51. eIF3A는 여기서 하향 조절되었으나 치료 표적으로 제안되었습니다52,53. 복제수 증가는 YTHDF1과 상관관계가 보고되었으며, 다른 암에서는 IGF2BP1 발현과 상관관계가 있습니다54. 이러한 발견은 m6A 조절 장애가 유방암에서 만연하다는 점을 강화합니다.
중요한 점은, YTHDF3가 독립적인 예후 요인임을 확인하여 최근 연구 55,56,57,58,59를 뒷받침했다는 점입니다. FTO와 IGF2BP3 같은 다른 m6A 유전자도 유방암에서 예후가 좋지 않고 화학요법 내성에 영향을 미치는 것으로 알려져 있습니다 33,60,61.
우리의 경로 풍부화는 RNA 대사에서 YTHDF3의 기대 역할을 강조했습니다62. 더 주목할 만한 점은, ALKBH 가족을 통한 DNA 딜킬화 수리 과정에 관여할 가능성을 시사했다는 점입니다63,64. 더 나아가, HNRNPA2B1, SRRT, METTL3 65,66,67,68을 통한 pri-miRNA 처리와 EXOSC10 및 DCP2 69를 통한 텔로머라제 안정화와의 연관성은 다면적인 메커니즘을 시사합니다. 흥미롭게도, YTHDF3 과발현은 ST6GALNAC5와 GJA1의 번역 증진을 통해 유방암 뇌전이와 연관되어 있습니다70. 최근 연구들은 YTHDF3의 종양 가능성을 더욱 확장시켰습니다: YTHDF3는 mTOR-HIF1α-LDHA 축을 통해 당과 증식을 증진시키는 것으로 나타났습니다. m6A 의존적 ZEB1 및 SMAD5 번역을 통해 골용해성 골 전이를 촉진하는것; 삼중음성 유방암에서는 YTHDF3가 종양 발생을 촉진하는 CENPI mRNA를 안정화시킵니다73; 또한 eIF4B를 유도하여 Notch2 번역74를 자극함으로써 상피-간엽 전이 및 전이를 촉진합니다. 최근 연구들은 뇌전이에서 piR-1170/WTAP 매개 메틸화 재프로그래밍과 TNBC76에서 POP1 의존적이고 YTHDF2가 인식하는 CDKN1A mRNA의 분해를 포함한 유방암 내 더 넓은 m6A 조절 네트워크를 더욱 강조하고 있습니다. 이 연구들은 YTHDF3가 다양한 악성 과정에 관여할 수 있음을 시사합니다. 따라서 YTHDF3는 유망한 예후 바이오마커가 될 수 있으나, 유방암 성장, 세포자멸사, 전이에서 그 역할에 대한 기전적 연구가 더 필요합니다.
흥미롭게도, TIMER 분석은 유방암에서 YTHDF3 발현과 여러 면역세포 하위 집합의 침윤 수준 사이에 전반적으로 양의 상관관계가 있음을 보여주었습니다. 이 관찰의 생물학적 근거는 현재 알려지지 않았으며, YTHDF3 고종양에서 종양 미세환경의 전반적인 변화를 반영할 수 있습니다. 유방암 면역 지형 형성에서 YTHDF3의 구체적 역할을 해부하기 위해서는 전용 면역유전체 및 기능 연구가 필요합니다.
이 연구에는 몇 가지 한계가 있습니다. 첫째, 분석은 주로 공개 데이터셋에 의존합니다; TCGA와 GTEx 데이터를 통합하면 샘플 처리, 시퀀싱 플랫폼, 정규화 파이프라인의 차이로 인해 배치 효과가 발생할 수 있으며, 이러한 데이터베이스의 회고적 특성은 선택 및 주석 편향을 내포합니다. 둘째, 임상 검증 코호트가 소규모로 추적 관찰이 제한적이었으며, 새로 발견된 m6A 관련 유전자는 포함되지 않았습니다. 셋째, YTHDF3의 예후가치에 대한 독립적인 코호트 검증이 부족하며, mRNA와 단백질 발현 간의 불일치는 여전히 해결되지 않았습니다. 더불어, 유방암에서 YTHDF3의 생물학적 기능에 대한 직접적인 생체 및 시험관 내 증거가 부족하며, 약물 민감성 또는 치료-반응 분석도 수행되지 않았고, YTHDF3가 m6A 변형을 매개하는 구체적 메커니즘도 탐구되지 않았습니다. 이러한 주의사항들은 우리의 연구 결과를 신중하게 해석할 필요가 있습니다. 표준화된 프로토콜, 더 큰 표본 크기, 기능적 실험을 통한 향후 전향적 연구가 YTHDF3를 바이오마커로 검증하고 유방암에서 기전적 역할을 명확히 하기 위해 필요합니다.
결론적으로, 이 통합 분석은 유방암에서 m6A 관련 유전자를 포괄적으로 평가하였습니다. 유전적 및 후생유전학적 변이가 유전자 발현에 미치는 영향은 제한적이었으나, 유전자들은 대체로 조절 불균형을 겪었고 예후와 연관되어 있었습니다. 우리의 연구 결과는 YTHDF3가 독립적인 예후 바이오마커로 작용할 수 있음을 시사하며, 유방암에 대한 추가 생물학적 연구를 필요로 합니다.
공개 사항
저자들은 이해 상충을 선언할 필요가 없습니다.
감사의 글
이 연구는 쓰촨성 자연과학재단(연구비 번호: 2022NSFSC1425), 쓰촨 의학회 종양 특별 연구 프로젝트(연구비: 2024HR20), 루저우-서남의과대학 연구 프로젝트(연구비: 2024LZXNYDJ051), 베이징시커 임상종양연구재단(연구비 번호: Y-SS2025MS-0009), 베이징커추앙 의학개발재단(연구비 번호: KC2023-JX-0288-BM74)의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Breast Cancer Gene-Expression Miner v4.7 | 통합 종양학 센터의 오믹스 데이터 과학 유닛 | http://bcgenex.ico.unicancer.fr/ | GTEx 정상 유방 조직 발현 데이터를 검색하는 데 사용됨; 기재된 방법/데이터 가용성 |
| cBioPortal | 해당 없음 | https://www.cbioportal.org/ | 유전 변이 및 복제수 변이 분석; 기재된 방법/ 데이터 가용성 |
| 임상 단백질 종양 분석 컨소시엄(CPTAC) | 임상 단백질 종양 분석 컨소시엄 | 해당 없음 | UALCAN을 통한 단백질 데이터 세트 사용; 기재된 방법/데이터 가용성 |
| 유전형-조직 발현(GTEx) 프로젝트 | GTEx 컨소시엄 | dbGaP 접근 phs000424.v8.p2 | 정상 유방 조직 발현 데이터 소스; 기재된 방법/데이터 가용성 |
| Hieff qPCR SYBR Green Master Mix (No Rox) | YEASEN | qPCR 마스터 믹스; 기재된 저자 개정 | |
| Hifair III 1차 스트랜드 cDNA 합성 qPCR용 SuperMix | YEASEN | 1차 스트랜드 cDNA 합성; 기재된 저자 개정 | |
| Kaplan-Meier Plotter(KMplotter) | 해당 없음 | https://kmplot.com | 온라인 생존 검증 도구; 기재된 방법/데이터 가용성 |
| Metascape | NIH 보조금에 의해 지원 U19 AI106754 U19 AI135972 R01 DA03373 | http://metascape.org/ | 유전자 주석 및 경로 강화 분석; 기재된 방법/데이터 가용성 |
| MethHC | 해당 없음 | http://methhc.mbc.nctu.edu.tw/ | DNA 프로모터 메틸화 데이터/ 자원; 기재된 방법/데이터 가용성 |
| NanoDrop 2000 분광광도계 | Thermo Fisher Scientific | RNA 농도 및 순도 측정; 기재된 저자 개정 | |
| QuantStudio 7 Flex 실시간 PCR 시스템 | Applied Biosystems | 정량적 실시간 PCR; 기재된 저자 개정 | |
| SPSS 13.0 | 원고에 제공되지 않음 | 버전 13.0 | 통계 분석; 기재된 저자 개정 |
| STRING v12.0 | STRING 컨소시엄 | https://string-db.org/ | 단백질-단백질 상호작용 네트워크 분석; 신뢰도 점수 0.4; 기재된 그림 4/데이터 가용성 |
| 암 게놈 아틀라스(TCGA-BRCA) | 암 게놈 아틀라스 | TCGA-BRCA | 유전자 발현, 임상 데이터, 유전 변이/복제수 데이터 세트 소스; 기재된 방법/ 데이터 가용성 |
| Human Protein Atlas | The Human Protein Atlas | https://www.proteinatlas.org/ | TCGA 유방암 RNA-seq 발현 및 임상 데이터를 얻는 데 사용된 소스; 기재된 방법/데이터 가용성 |
| TIMER | X Shirley Liu Lab | https://cistrome.shinyapps.io/timer/ | 면역 침투 분석; 기재된 방법/데이터 가용성 |
| TRIzol 시약 | Invitrogen | RNA 추출; 기재된 저자 개정 | |
| UALCAN | 버밍엄 앨라배마 대학교 | http://ualcan.path.uab.edu/ | CPTAC 및 TCGA 데이터를 기반으로 한 단백질 및 mRNA 발현 분석; 기재된 방법/데이터 가용성 |
참고문헌
- Yeo SK, Guan JL. Breast cancer: multiple subtypes within a tumor? Trends Cancer. 2017;3(11):753-60.
- Sung H et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-49.
- Bennett RL, Licht JD. Targeting epigenetics in cancer. Annu Rev Pharmacol Toxicol. 2018;58:187-207.
- Wu L et al. Changes of N6-methyladenosine modulators promote breast cancer progression. BMC Cancer. 2019;19(1):326.
- Roignant JY, Soller M. m6A in mRNA: an ancient mechanism for fine-tuning gene expression. Trends Genet. 2017;33(6):380-90.
- Pan Y et al. Multiple functions of m6A RNA methylation in cancer. J Hematol Oncol. 2018;11(1):48.
- Uhlen M et al. Towards a knowledge-based Human Protein Atlas. Nat Biotechnol. 2010;28(12):1248-50.
- Győrffy B. Survival analysis across the entire transcriptome identifies biomarkers with the highest prognostic power in breast cancer. Comput Struct Biotechnol J. 2021;19:4101-9.
- Jézéquel P et al. bc-GenExMiner 4.5: new mining module computes breast cancer differential gene expression analyses. Database (Oxford). 2021;2021:baab007.
- GTEx Consortium. The GTEx Consortium atlas of genetic regulatory effects across human tissues. Science. 2020;369(6509):1318-30.
- Chandrashekar DS et al. UALCAN: an update to the integrated cancer data analysis platform. Neoplasia. 2022;25:18-27.
- Cerami E et al. The cBio cancer genomics portal: an open platform for exploring multidimensional cancer genomics data. Cancer Discov. 2012;2(5):401-4.
- Huang WY et al. MethHC: a database of DNA methylation and gene expression in human cancer. Nucleic Acids Res. 2015;43(Database issue):D856-61.
- Szklarczyk D et al. STRING v10: protein-protein interaction networks, integrated over the tree of life. Nucleic Acids Res. 2015;43(Database issue):D447-52.
- Zhou Y et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 2019;10(1):1523.
- Li T et al. TIMER: a web server for comprehensive analysis of tumor-infiltrating immune cells. Cancer Res. 2017;77(21):e108-10.
- Wang Y et al. Zinc finger and SCAN domain-containing 18 suppresses the proliferation, self-renewal, and drug resistance of glioblastoma cells. Heliyon. 2023;9(6):e17000.
- Cancer Genome Atlas Research Network. The Cancer Genome Atlas Pan-Cancer analysis project. Nat Genet. 2013;45(10):1113-20.
- Aran D et al. Comprehensive analysis of normal adjacent to tumor transcriptomes. Nat Commun. 2017;8(1):1077.
- Xiang TX et al. Aberrant promoter CpG methylation and its translational applications in breast cancer. Chin J Cancer. 2013;32(1):12-20.
- Pasculli B, Barbano R, Parrella P. Epigenetics of breast cancer: biology and clinical implication in the era of precision medicine. Semin Cancer Biol. 2018;51:22-35.
- Meyer KD, Jaffrey SR. Rethinking m6A readers, writers, and erasers. Annu Rev Cell Dev Biol. 2017;33:319-42.
- Jo HJ et al. WTAP regulates migration and invasion of cholangiocarcinoma cells. J Gastroenterol. 2013;48(11):1271-82.
- Chen Y et al. WTAP facilitates progression of hepatocellular carcinoma via m6A-HuR-dependent epigenetic silencing of ETS1. Mol Cancer. 2019;18(1):127.
- Qian JY et al. KIAA1429 acts as an oncogenic factor in breast cancer by regulating CDK1 in an N6-methyladenosine-independent manner. Oncogene. 2019;38(33):6123-41.
- Garcia-Dios DA et al. MED12, TERT promoter and RBM15 mutations in primary and recurrent phyllodes tumours. Br J Cancer. 2018;118(2):277-84.
- Hu M, Yang Y, Ji Z, Luo J. RBM15 functions in blood diseases. Curr Cancer Drug Targets. 2016;16(7):579-85.
- Shahriyari L, Abdel-Rahman M, Cebulla C. BAP1 expression is prognostic in breast and uveal melanoma but not colon cancer and is highly positively correlated with RBM15B and USP19. PLoS One. 2019;14(2):e0211507.
- Zhang B et al. Expression and prognostic characteristics of m6A RNA methylation regulators in breast cancer. Front Genet. 2020;11:604597.
- Cai X et al. HBXIP-elevated methyltransferase METTL3 promotes the progression of breast cancer via inhibiting tumor suppressor let-7g. Cancer Lett. 2018;415:11-9.
- Gu C et al. Mettl14 inhibits bladder TIC self-renewal and bladder tumorigenesis through N6-methyladenosine of Notch1. Mol Cancer. 2019;18(1):168.
- Yeon SY et al. Frameshift mutations in repeat sequences of ANK3, HACD4, TCP10L, TP53BP1, MFN1, LCMT2, RNMT, TRMT6, METTL8 and METTL16 genes in colon cancers. Pathol Oncol Res. 2018;24(3):617-22.
- Niu Y et al. RNA N6-methyladenosine demethylase FTO promotes breast tumor progression through inhibiting BNIP3. Mol Cancer. 2019;18(1):46.
- Zhang C et al. Hypoxia-inducible factors regulate pluripotency factor expression by ZNF217- and ALKBH5-mediated modulation of RNA methylation in breast cancer cells. Oncotarget. 2016;7(40):64527-42.
- Zhang C et al. Hypoxia induces the breast cancer stem cell phenotype by HIF-dependent and ALKBH5-mediated m6A-demethylation of NANOG mRNA. Proc Natl Acad Sci U S A. 2016;113(14):E2047-56.
- Liao S, Sun H, Xu C. YTH domain: a family of N6-methyladenosine (m6A) readers. Genomics Proteomics Bioinformatics. 2018;16(2):99-107.
- Alarcón CR et al. HNRNPA2B1 is a mediator of m6A-dependent nuclear RNA processing events. Cell. 2015;162(6):1299-308.
- Hu Y et al. Splicing factor hnRNPA2B1 contributes to tumorigenic potential of breast cancer cells through STAT3 and ERK1/2 signaling pathway. Tumour Biol. 2017;39(3):1010428317694318.
- Wu Y et al. Function of HNRNPC in breast cancer cells by controlling the dsRNA-induced interferon response. EMBO J. 2018;37(23):e99017.
- Nishizawa Y et al. Oncogene c-Myc promotes epitranscriptome m6A reader YTHDF1 expression in colorectal cancer. Oncotarget. 2018;9(7):7476-86.
- Zhong L et al. YTHDF2 suppresses cell proliferation and growth via destabilizing the EGFR mRNA in hepatocellular carcinoma. Cancer Lett. 2019;442:252-61.
- Hu B et al. m6A reader YTHDF3 triggers the progression of hepatocellular carcinoma through the YTHDF3/m6A-EGFR/STAT3 axis and EMT. Mol Carcinog. 2023;62(10):1599-614.
- Lee HH et al. YTHDF3 modulates EGFR/AKT/ERK/p21 signaling axis to promote cancer progression and osimertinib resistance of glioblastoma cells. Anticancer Res. 2023;43(12):5485-98.
- Zhong S et al. The inhibition of YTHDF3/m6A/LRP6 reprograms fatty acid metabolism and suppresses lymph node metastasis in cervical cancer. Int J Biol Sci. 2024;20(3):916-36.
- Zhang B et al. YT521 promotes metastases of endometrial cancer by differential splicing of vascular endothelial growth factor A. Tumour Biol. 2016;37(12):15543-9.
- Tanabe A et al. RNA helicase YTHDC2 promotes cancer metastasis via the enhancement of the efficiency by which HIF-1α mRNA is translated. Cancer Lett. 2016;376(1):34-42.
- Huang H et al. Recognition of RNA N6-methyladenosine by IGF2BP proteins enhances mRNA stability and translation. Nat Cell Biol. 2018;20(3):285-95.
- Fakhraldeen SA et al. Two isoforms of the RNA binding protein, coding region determinant-binding protein (CRD-BP/IGF2BP1), are expressed in breast epithelium and support clonogenic growth of breast tumor cells. J Biol Chem. 2015;290(21):13386-400.
- Li Y, Francia G, Zhang JY. p62/IMP2 stimulates cell migration and reduces cell adhesion in breast cancer. Oncotarget. 2015;6(32):32656-68.
- Wang Z et al. Blockade of miR-3614 maturation by IGF2BP3 increases TRIM25 expression and promotes breast cancer cell proliferation. EBioMedicine. 2019;41:357-69.
- Kim HY, Ha Thi HT, Hong S. IMP2 and IMP3 cooperate to promote the metastasis of triple-negative breast cancer through destabilization of progesterone receptor. Cancer Lett. 2018;415:30-9.
- Meyer KD et al. 5′ UTR m6A promotes cap-independent translation. Cell. 2015;163(4):999-1010.
- Yin JY et al. eIF3a: a new anticancer drug target in the eIF family. Cancer Lett. 2018;412:81-7.
- Bell JL et al. IGF2BP1 harbors prognostic significance by gene gain and diverse expression in neuroblastoma. J Clin Oncol. 2015;33(11):1285-93.
- Liu L et al. N6-methyladenosine-related genomic targets are altered in breast cancer tissue and associated with poor survival. J Cancer. 2019;10(22):5447-59.
- Anita R, Paramasivam A, Priyadharsini JV, Chitra S. The m6A readers YTHDF1 and YTHDF3 aberrations associated with metastasis and predict poor prognosis in breast cancer patients. Am J Cancer Res. 2020;10(8):2546-54.
- Zhao G et al. Gene signatures and cancer-immune phenotypes based on m6A regulators in breast cancer. Front Oncol. 2021;11:756412.
- Demircan T, Yavuz M, Akgul S. m6A pathway regulators are frequently mutated in breast invasive carcinoma and may play an important role in disease pathogenesis. OMICS. 2021;25(10):660-78.
- Lv W et al. Analysis and validation of m6A regulatory network: a novel circBACH2/hsa-miR-944/HNRNPC axis in breast cancer progression. J Transl Med. 2021;19(1):527.
- Ohashi R et al. IMP3 contributes to poor prognosis of patients with metaplastic breast carcinoma: a clinicopathological study. Ann Diagn Pathol. 2017;31:30-5.
- Ohashi R et al. Prognostic value of IMP3 expression as a determinant of chemosensitivity in triple-negative breast cancer. Pathol Res Pract. 2017;213(9):1160-5.
- Chen XY, Zhang J, Zhu JS. The role of m6A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Drabløs F et al. Alkylation damage in DNA and RNA: repair mechanisms and medical significance. DNA Repair (Amst). 2004;3(11):1389-407.
- Fedeles BI et al. The AlkB family of Fe(II)/α-ketoglutarate-dependent dioxygenases: repairing nucleic acid alkylation damage and beyond. J Biol Chem. 2015;290(34):20734-42.
- Villarroya-Beltri C et al. Sumoylated hnRNPA2B1 controls the sorting of miRNAs into exosomes through binding to specific motifs. Nat Commun. 2013;4:2980.
- Hu X et al. Depletion of Ars2 inhibits cell proliferation and leukemogenesis in acute myeloid leukemia by modulating the miR-6734-3p/p27 axis. Leukemia. 2019;33(5):1090-101.
- Chen Y et al. Ars2 promotes cell proliferation and tumorigenicity in glioblastoma through regulating miR-6798-3p. Sci Rep. 2018;8(1):15602.
- Alarcón CR et al. N6-methyladenosine marks primary microRNAs for processing. Nature. 2015;519(7544):482-5.
- Shukla S et al. Inhibition of telomerase RNA decay rescues telomerase deficiency caused by dyskerin or PARN defects. Nat Struct Mol Biol. 2016;23(4):286-92.
- Chang G et al. YTHDF3 induces the translation of m6A-enriched gene transcripts to promote breast cancer brain metastasis. Cancer Cell. 2020;38(6):857-71.e7.
- Liu Z et al. YTHDF3 mediates the occurrence and development of breast cancer by regulating glycolysis through the mTOR-HIF1α-LDHA axis. J Cell Mol Med. 2026;30(9):e71105.
- Xu L et al. YTHDF3 promotes breast cancer osteolytic bone metastasis by enhancing the translation of ZEB1 and SMAD5. Oncogenesis. 2025;14(1):41.
- Zhang Y, Chen S, Wu Q. The m6A reader YTHDF3 promotes TNBC progression by regulating CENPI stabilization. Front Oncol. 2025;15:1546723.
- Chen H et al. YTHDF3 drives tumor growth and metastasis by recruiting eIF4B to promote Notch2 translation in breast cancer. Cancer Lett. 2025;614:217534.
- Luo Y et al. piR-1170 drives brain metastasis and immune evasion via WTAP-mediated m6A methylation reprogramming in triple-negative breast cancer. Mol Cancer. 2026;25(1):52.
- Zhang C et al. POP1 facilitates proliferation in triple-negative breast cancer via m6A-dependent degradation of CDKN1A mRNA. Research (Wash D C). 2024;7:0472.