본 프로토콜은 기계적 면역 조절 연구를 위해 특허받은 바이오리액터의 설정 및 작동 방법을 제시합니다. 여기서는 생리학적 힘을 재현하는 맞춤형 바이오리액터를 사용하여, 대식세포가 기계적 자극에 대해 뚜렷한 전염증성 반응을 나타냄을 입증합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
이 논문에서
요약
초록
염증은 급성 및 만성 질환 모두를 유발하는 복잡한 과정입니다. 이는 면역 세포 활성화를 초래하는 일련의 생화학적 및 생물물리학적 신호에 의해 조절됩니다. 대식세포는 암, 섬유화 및 자가면역 질환을 포함한 여러 염증 상태에 관여하는 주요 면역 세포 유형입니다. 대식세포 활성화를 조사하는 전통적인 방법은 정의된 사이토카인 또는 케모카인 신호를 이용한 생화학적 자극을 통해 대식세포를 전염증성 또는 항염증성 상태의 경계로 활성화하는 것입니다. 최근의 증거들은 조직 내의 생화학적 신호 외에도 생물물리학적 신호가 대식세포 활성화에 역할을 한다는 것을 시사합니다. 이러한 보편적인 기계적 신호 중 하나는 위장관, 자궁, 발달 중인 기도 및 요관에서 발생하는 다축 변형(strain)과 전단 응력(shear stress)으로 구성된 연동 운동입니다. 본 연구에서는 연동 운동이 대식세포를 활성화할 수 있다는 가설을 검증하였습니다. 본 프로토콜에서는 대식세포의 기계적 활성화를 조사하기 위한 연동형 바이오리액터의 사용 방법을 설명합니다. 대식세포의 부착을 강화하기 위해 폴리디메틸실록산(Polydimethyl siloxane) 막을 피브로넥틴으로 코팅하였습니다. 불멸화된 생쥐 골수 유래 대식세포(iBMDM)를 피브로넥틴 코팅 막에 파종하고, 정적 대조군으로 유지하거나 4 h 동안 연동 운동에 노출시켰습니다. 연동 운동은 대식세포를 활성화하였으며, Il6 (정적 대조군 대비 50.9배; p < 0.0001, t-test) 및 Nos2 (정적 대조군 대비 19.8배; p = 0.0046)의 유전자 발현에서 유의미한 차이가 나타났습니다. 흥미롭게도 정적 대조군과 비교했을 때 Chil3 (정적 대조군 대비 1.22배; p = 0.9726) 또는 Mrc1 (정적 대조군 대비 1.16배; p = 0.9810) 에서는 유의미한 변화가 관찰되지 않았으며, 이는 기계적 자극이 주로 전염증성 활성화를 유도했음을 나타냅니다. 본 연구 결과는 특히 많은 평활근 기반 조직에서 흔히 나타나는 연동 운동 역학에 반응하는 대식세포의 기계적 면역 조절(mechano-immunomodulation) 개념을 뒷받침합니다.
서론
대식세포는 식세포 작용과 사이토카인 분비를 통해 숙주 방어, 조직 리모델링 및 염증 조절에서 필수적인 역할을 하는 선천 면역 세포입니다1,2,3,4. in vivo 미세환경 내의 자극에 따라, 분화되지 않은 대식세포(M0)는 염증성(M1) 또는 항염증성/재생 촉진성(M2) 표현형으로 가소성 있게 분극화될 수 있습니다5,6. 대식세포 분극화를 유도하는 복잡한 메커니즘을 더 잘 이해하기 위해, 일반적으로 이러한 서로 다른 자극들을 분리하는 in vitro 모델이 사용됩니다. 고전적으로 활성화된 M1 대식세포는 일반적으로 리포폴리사카라이드(LPS) 및 인터페론 감마(IFN-γ)와 같은 생화학적 자극에 의해 in vitro에서 유도되며, 그 결과 유도성 산화질소 합성효소(iNOS), 인터루킨-6(IL6), 종양괴사인자 알파(TNF-α)를 포함한 염증 매개체의 발현이 증가합니다7,8. 대안적으로 활성화된 M2 대식세포는 흔히 인터루킨-4(IL-4) 및 인터루킨-13(IL-13) 노출을 통해 유도되어 조직 리모델링 및 상처 치유 반응을 촉진합니다8,9. M2 대식세포는 뚜렷한 활성화 경로 및 표면 마커 발현 프로필에 따라 M2a, M2b, M2c 표현형으로 추가 분류됩니다10,1. 대식세포 분극화의 생화학적 조절은 in vivo 및 in vitro 시스템 모두에서 광범위하게 규명되었으나, 대식세포는 상당한 생물리적 자극이 존재하는 매우 역동적인 미세환경 내에 상주합니다12. 수용성 사이토카인 및 케모카인 외에도, 대식세포는 세포외 기질 및 세포 간 상호작용, 기질 강성, 유체 전단 응력, 정수압 및 주기적인 조직 변형에 노출됩니다12,13,14. 기계적 자극에 민감한 세포로서, 대식세포는 이러한 물리적 신호에 반응하여 염증 표현형을 변경할 수 있으며, 이는 면역 조절에서 기계생물학의 중요성을 강조합니다.
점 더 많은 문헌을 통해 in vitro에서의 단일 기계적 자극이 대식세포의 활성화 상태에 상당한 영향을 미칠 수 있음이 입증되었습니다 (그림 1). 부드러운 기질이 재생 촉진 표현형을 유도한 것과 대조적으로, 더 단단한 기질에 노출되었을 때 M1 분극화와 염증성 사이토카인 생성이 증가했습니다15,16,17,18,19,20. 마찬가지로, 유체 전단 응력은 그 크기에 따라 대식세포의 표현형을 조절하며, 낮은 수준의 간질액 흐름은 흔히 재생 촉진 활성화를 촉진하는 반면21,2, 동맥에서 관찰되는 값과 유사한 높은 전단 응력은 전염증성 반응을 유도할 수 있습니다23,24,25,26,27,28. 근골격, 심근, 폐 및 장 조직의 역학을 모방하도록 설계된 in vitro 주기적 신장 모델에서도 염증성 매개체의 발현 증가가 나타났으나, 그 결과는 가해진 힘의 크기, 지속 시간, 빈도 및 차원성에 따라 다르게 나타납니다29,30,31,32. 또한, 대식세포의 기계적 민감도는 종과 세포 기원에 따라 다르므로, 기계생물학 연구를 위해 적절한 실험 모델을 선택하는 것이 중요합니다13,14.
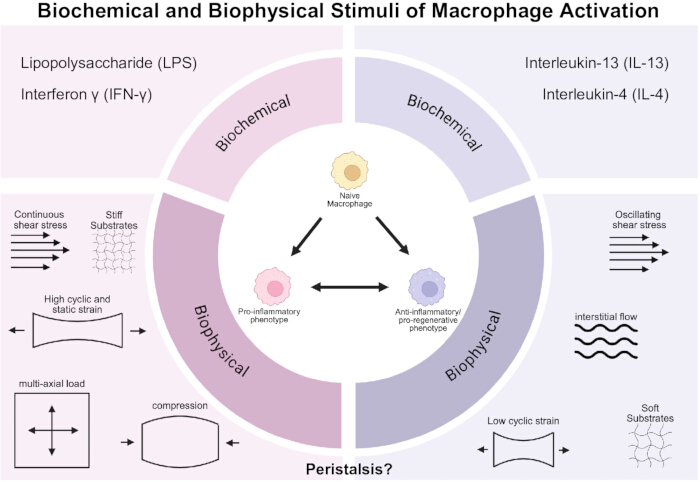
그림 1~을 묘사하는 도식도 in vitro 대식세포를 전염증성 또는 재생 촉진성 상태로 활성화하는 생화학적 및 생물물리학적 자극. 대식세포는 염증성 상태로 자극될 수 있다. 인 비트로(in vitro) 화학적 자극인 리포폴리사카라이드(Lipopolysaccharide, LPS) 및 인터페론 γ(Interferon γ, IFN-γ)의 첨가, 또는 전단 응력(shear stress), 강성 증가, 고주기 및 정적 단축 신장 유도 변형(uniaxial stretch-induced strain), 압축 및 다축 압축 유도 변형을 포함한 기계적 자극에 노출함으로써 대식세포를 재생 촉진 상태로 자극할 수 있습니다. in vitro 화학적 자극인 인터루킨-13(IL-13) 및 IL-4의 첨가. 또한 이들은 진동 전단 응력, 간질액 흐름, 연성 기질 또는 낮은 수준의 단축 주기적 변형의 형태인 기계적 자극에 노출될 때 재생 촉진성으로 변할 수 있습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
개별적인 기계적 자극을 독립적으로 조사하는 것 외에도, in vivo 상의 대식세포가 일반적으로 동시에 작용하는 복합적인 힘에 노출된다는 점을 고려할 때, 복합적인 물리적 힘의 영향을 연구하기 위해 기존 작업의 기반을 다지는 것이 중요합니다. 연동 운동은 평활근 수축을 통해 생성되는 동시 다축 주기적 변형 및 유체 전단 응력으로 구성되는 이러한 복잡한 기계적 환경의 한 예입니다3. 이러한 역학적 특성은 위장관, 발달 중인 기도, 혈관, 자궁 및 요관을 포함한 여러 장기 시스템 전반에 걸쳐 나타납니다34,35,36. 중요한 점은 섬유화, 염증성 장질환, 암 및 기도 리모델링 장애를 포함한 염증성 질환에서 연동 기능이 빈번하게 조절 장애를 일으키며, 이 모든 질환에는 대식세포 매개 염증이 상당 부분 관여한다는 것입니다33,37,38,39. 이러한 질환에서 대식세포의 역할이 인식되고 있음에도 불구하고, 연동 기계적 힘이 대식세포 활성화에 직접적으로 어떤 영향을 미치는지에 대한 이해에는 여전히 결정적인 공백이 존재합니다.
본 프로토콜은 생리학적으로 유의미한 기계적 조건 하에서 대식세포의 기계적 면역 조절(mechano-immunomodulation)을 연구하기 위한 연동성 생체 반응기(peristalsis bioreactor) 시스템의 사용법을 설명합니다. 기존의 정적인 배양 시스템이나 단일 힘 기계적 자극 플랫폼과 비교하여, 이 방법은 주기적인 다축 변형(cyclic multiaxial strain)과 유체 전단 응력(fluid shear stress)을 동시에 가할 수 있어, 평활근 기반 조직의 in vivo 기계적 미세환경을 더욱 밀접하게 재현합니다. 본 프로토콜에서 연동 조건의 생체 반응기 내에서 배양된 불멸화 마우스 골수 유래 대식세포(iBMDMs)는 M1 활성화 마커의 증가를 보였으며, M2 활성화 경향은 나타나지 않았습니다. 이러한 결과는 연동 기계적 자극이 대식세포의 염증성 행동을 조절하기에 충분하며, 동적인 평활근 구동 힘에 노출되는 조직 내 기계적 면역 조절이라는 광범위한 개념을 뒷받침한다는 점을 보여줍니다. 이 방법은 기계생물학, 염증, 조직 공학, 위장관 생리학, 폐 발달, 섬유화 및 대식세포가 복잡한 기계적 미세환경에 노출되는 기타 질환을 연구하는 연구자들에게 특히 유용합니다. 세심한 조립, 일관된 보정 및 지속적인 모니터링을 통해 사용자는 재현 가능한 생체 반응기 성능을 확보하고 본 기술의 일반적인 한계점을 방지할 수 있습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
본 프로토콜은 기계적 면역 조절 연구를 위한 특허받은40 바이오리액터 시스템의 조립 및 작동 방법을 설명합니다. 사용된 시약과 장비는 재료 표에 나열되어 있습니다.
1. 세포 배양
- 10% 열불활성화 FBS, 1% HEPES 버퍼, 1% Sodium Pyruvate 및 1% Penicillin-Streptomycin이 첨가된 완전 RPMI 1640 배지에서, 37 °C 및 5% CO2 조건으로 불멸화 마우스 골수 유래 대식세포(iBMDMs)를 배양합니다.
2. 폴리디메틸실록산 (PDMS) 제작
- 실리콘 엘라스토머 키트의 베이스와 경화제를 10:1(w/w) 비율로 정량하여 혼합합니다.
- 균일하게 혼합되도록 혼합물을 5분 동안 젓습니다.
- 혼합된 PDMS를 10 mm x 15 mm 정사각형 페트리 접시에 PDMS 높이가 3 mm가 될 때까지 조심스럽게 붓습니다.
- PDMS가 담긴 페트리 접시를 데시케이터에 넣습니다.
- 기포를 제거하기 위해 진공 상태에서 1시간 동안 탈기합니다.
- 데시케이터에서 PDMS를 꺼내 기포가 남아 있지 않은지 확인합니다.
- 경화되지 않은 PDMS 막을 60 ˚ C로 예열된 오븐으로 옮겨 4시간 동안 경화시킵니다.
- 오븐에서 PDMS 막을 꺼내 실험대 위에서 하룻밤 동안 식힙니다.
- 18~24시간 후, 경화된 PDMS 막을 페트리 접시에서 조심스럽게 떼어내고 70 mm x 40 mm x 3 mm 크기의 PDMS 막이 되도록 자릅니다.
3. PDMS 막의 멸균
- 생물안전작업대(BSC) 내부에서 PDMS 막을 70% 에탄올로 헹군 후, 생물안전작업대(BSC) 표면에 직접 놓습니다(보충 그림 1).
- UV로 10분 동안 멸균한 다음, UV에 노출된 면이 위로 향하도록 하여 PDMS 막을 조직 배양 처리가 되지 않은 90 mm 배양 접시에 옮깁니다.
참고: 오염 위험을 줄이기 위해 PDMS의 측면을 잡고, PDMS 상단으로 손이 지나가지 않도록 주의하십시오. - 연동 운동 실험의 경우, PDMS 막을 원래 크기 그대로 사용합니다.
- 정적 배양 조건의 경우, 각각의 70 mm x 40 mm PDMS 막을 동일한 크기의 35 mm x 40 mm 두 조각으로 자릅니다.
4. PDMS 막의 피브로넥틴 코팅
- BSC 내부에서, 멤브레인당 10 µL를 첨가할 수 있도록 인산염 완충 식염수(PBS)에 녹인 0.5 mg/mL 멸균 fibronectin 용액을 충분한 부피로 준비합니다.
- 각 PDMS 멤브레인의 중앙에 이 코팅 용액 100 µL를 분주하며, 코팅된 영역이 PDMS와 나사 사이의 멤브레인 접촉 부위와 정확히 일치하도록 합니다.
참고: 피펫 팁을 사용하여 용액을 얇고 고르게 펴 바릅니다. - 흡착이 일어나도록 뚜껑을 연 상태로 코팅된 PDMS 멤브레인을 배양 접시에 45분 동안 둡니다.
참고: 지속적인 공기 흐름을 유지하기 위해 BSC 새시를 열어 둡니다. - 45분 후, 각 멤브레인에서 남은 fibronectin 용액을 흡입하여 제거합니다.
- 1 mL의 멸균 PBS로 멤브레인을 부드럽게 세척합니다.
5. PDMS 막에 iBMDM 세포 파종하기
- T25 플라스크에서 배양한 iBMDM 세포의 합류도가 70%–80%에 도달하면, 트립신 처리하여 표면에서 세포를 분리합니다.
- 헤모사이토미터를 사용하여 세포 농도를 측정하고, 배지 내 세포 밀도가 100,0 cells/mL가 되도록 준비합니다.
- 피브로넥틴이 코팅된 각 PDMS 막에 준비된 세포 현탁액을 막당 1 mL씩 분주합니다.
- 조건 간의 병렬 비교를 보장하기 위해, 각 실험마다 최소 하나 이상의 정적 막과 연동 막을 분주합니다.
- 정적 조건과 연동 조건 모두에서 세포가 부착될 수 있도록, 분주된 PDMS 막을 37 °C, 5% CO2의 습윤 배양기에 넣고 최소 24시간 동안 배양합니다(보충 그림 1B).
6. 바이오리액터
- 바이오리액터 특허(US1252795)40에 제공된 컴퓨터 보조 설계(CAD) 파일 및 사양을 사용하여 바이오리액터를 제작하거나, 저자로부터 미리 조립된 유닛을 제공받으십시오.
7. Arduino 회로 조립 및 보정
- 회로 구성
- 그림에 표시된 대로 가변 저항기, 저항기, 트랜지스터 및 전도성 와이어를 사용하여 브레드보드 위에 제어 회로를 구성하십시오. 보충 자료 그림 2.
- 컴퓨터에 Arduino IDE를 설치하고 새 스케치를 엽니다.
- 모터 속도는 분당 5회전(RPM)으로, 연동 펌프는 28 mL/min으로 설정하십시오.
- Arduino 보드를 컴퓨터에 연결하십시오. ~을 통해 USB 및 제공된 코드를 업로드하십시오. 보충 파일 1 IDE의 업로드 버튼을 사용하여.
참고: 업로드하는 동안 Arduino LED는 주황색으로 변하며, 실행 준비가 완료되면 다시 녹색으로 돌아옵니다. 업로드가 완료되면, 전원이 공급될 때 Arduino가 자동으로 프로그램을 실행합니다.
- 모터 보정
- 모터를 가동하고 스톱워치를 사용하여 1분 동안 회전수를 측정하십시오.
참고: 5 RPM을 달성하기 위해 필요한 경우 Arduino 코드의 모터 속도 매개변수를 조정하십시오. - 원하는 속도가 달성될 때까지 조정을 거칠 때마다 코드를 다시 업로드하십시오.
- 모터를 가동하고 스톱워치를 사용하여 1분 동안 회전수를 측정하십시오.
- 펌프 보정
- 펌프를 30초 동안 가동하고 수집된 질량을 측정하여 유량이 28 mL/min(30초에 약 14g)인지 확인하십시오.
- 포텐셔미터를 조절하고 30초 출력값이 지속적으로 14g 근처가 될 때까지 반복하십시오.
- 모터와 펌프의 보정이 모두 완료되면, 이를 바이오리액터 유닛과 연결하십시오.
참고: 보정된 모터-펌프-생물반응기 조립체가 이제 실험에 사용할 준비가 되었습니다 (그림 2).
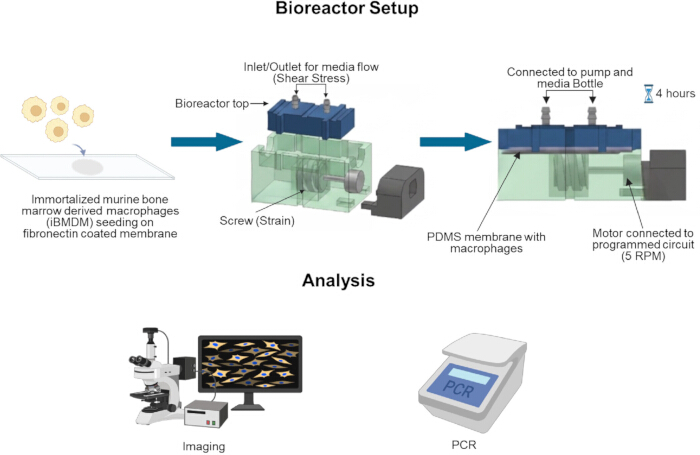
그림 2연동 운동 바이오리액터 조립 및 하위 분석 모식도. iBMDM 세포를 바이오리액터 내에 장착된 피브로넥틴 코팅 PDMS 막에 파종합니다. 연동 운동에 4시간 동안 노출시키거나 정적 대조군으로 유지한 후, qPCR, 면역형광 염색 및 이미징을 포함한 후속 분석을 위해 세포를 회수합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
8. 연동 펌프 바이오리액터의 조립 및 설정
- 구성 성분의 준비
- 배지 병, 배지 캡, 3D 프린팅된 배지 병 상단부, 3D 프린팅된 바이오리액터 상단부, 3D 프린팅된 바이오리액터 하단부, 3D 프린팅된 스크류 드라이브, 케이블 타이(바이오리액터당 3개), 슬립 조인트 플라이어, 니퍼, 150mm 조직 배양 접시, 실리콘 그리스, 3D 프린팅된 모터 지지대를 포함하여 필요한 모든 구성품을 준비하십시오. 각 품목을 생물안전작업대(BSC) 내부에 넣기 전에 70% 에탄올로 소독하십시오.
- DC 모터, 연동 펌프 및 추가 펌프 튜브를 BSC 내부에 배치하십시오.
- BSC 덮개를 닫고 10분 동안 UV 램프를 켜서 모든 구성 요소를 멸균합니다(부록 그림 1C).
- 세포 부착 및 생존능 확인
- 현미경으로 세포가 접종된 정적 및 연동 PDMS 막을 모두 관찰하십시오. 확인하십시오. >피브로넥틴이 코팅된 PDMS 표면에 세포가 80% 부착되었는지 확인하고, 세포 형태를 관찰하여 생존력을 점검하십시오.
- 필요에 따라 조립 전 세포의 대표 이미지를 캡처하십시오.
- 정적 대조군 준비
- 각 정적 막(static membrane)에서 1 mL의 완전 RPMI 배지를 흡입하여 제거하십시오.
- 각 막에 신선한 완전 RPMI 배지 1mL를 첨가하십시오.
- 디쉬에 정적(static)이라고 표시한 후 인큐베이터로 되돌려 놓습니다.
- 연동 펌프 바이오리액터의 조립
- 바이오리액터용으로 지정된 각 배지 병에 배지 15mL를 추가하십시오.
- 입구/출구 포트가 포함된 3D 프린팅 보틀 톱이 장착된 배지 캡을 배지 보틀에 부착합니다. 이를 따로 둡니다.보충 자료 그림 1D).
- 바이오리액터 베이스를 조립하십시오.
- 3D 프린팅된 스크류 드라이브를 바이오리액터 바닥의 중앙 웰에 삽입하십시오.
- DC 모터를 바이오리액터 바닥의 모터 슬롯에 삽입하십시오.
- 모터 드라이브 샤프트가 3D 프린팅된 스크류 드라이브의 중앙 구멍에 단단히 고정되었는지 확인하십시오.
- 모터 홀더를 밀어 넣어 모터를 안정적으로 고정하십시오.
- 조립이 완료된 후 BSC(생물안전작업대)에서 배양기로 이동하기 쉽도록, 부분적으로 조립된 바이오리액터를 150mm 조직 배양 접시에 넣으십시오.보충 자료 그림 1E).
- PDMS 막이 스크류 드라이브와 접촉하게 될 스크류 드라이브 홈에 실리콘 그리스를 얇게 도포하십시오. 이렇게 하면 스크류가 쉽게 회전하여 마찰을 줄일 수 있습니다.
- 세포가 파종된 PDMS 막의 장착
- 세포가 파종된 연동 운동 PDMS 막을 인큐베이터에서 생물안전작업대(BSC)로 조심스럽게 옮기십시오.
- 각 막에서 배지를 흡입하여 제거하고, 세포가 파종된 면이 그리스가 도포된 스크류 드라이브 인터페이스 반대 방향인 위쪽을 향하도록 하여 막을 바이오리액터에 넣으십시오.
- 바이오리액터 상단의 세포 챔버 함몰 부위가 PDMS 막과 일치하도록 배치하십시오. 상단을 바이오리액터 하단의 가이드 홈에 맞춰 밀어 넣으십시오.
- 바이오리액터 고정하기
- 케이블 타이와 니퍼를 사용하여 바이오리액터의 상단과 하단을 고정하십시오.
- 플라이어로 케이블 타이를 여분의 길이만큼 잘라냅니다.
- 유체 연결 및 시스템 설정
- 연동 펌프의 금속 커넥터가 모터 커넥터와 동일한 방향을 향하도록 정렬하십시오.
- 바이오리액터와 가장 가까운 펌프 튜브를 바이오리액터 상단 모터에 가장 가까운 유입구 포트에 연결하십시오. 튜브를 유입구 노즐 끝까지 완전히 밀어 넣으십시오.
- 이 튜브의 반대쪽 끝을 배지 병 내부에 잠기게 하십시오.
- 추가 펌프 튜브를 사용하여 한쪽 끝을 바이오리액터 상단의 배출구 노즐에 연결하고, 다른 쪽 끝은 역류 없는 재순환이 가능하도록 배지 액면 위의 배지 병 내부에 배치하십시오.보충 자료 그림 1F).
- 배양 및 작동
- 전체 바이오리액터 어셈블리(150mm 디쉬 내부)를 인큐베이터 안에 넣습니다.부록 그림 1G) 및 회로 기판/Arduino를 전원에 연결한 상태로 외부에 둡니다.
- 악어 클립을 연결하십시오.
- 펌프: 양극은 양극에, 음극은 음극에 연결하십시오.
- 모터: 회로 설계에 따라 극성을 반전시킵니다.
- 나중에 시료를 수집할 수 있도록 빈 멸균 페트리 접시를 배양기에 넣어 둡니다.
- 연동 펌프 바이오리액터 시스템을 4시간(또는 원하는 시간 동안) 동안 가동하십시오.보충 자료 그림 1H) 인큐베이터 내의 표준 배양 조건에서.
9. 바이오리액터 해체
- 인큐베이터를 열고 배지 병에서 유입 튜브를 들어 올려 시스템 내로 공기가 유입되게 함으로써 바이오리액터 내의 잔류 배지를 완전히 배출합니다.
- 배지 흐름이 멈추면 회로 기판에서 모터 및/또는 펌프 리드를 분리하여 기계적 작동을 중단시킵니다.
- 바이오리액터 어셈블리 전체를 BSC로 옮기고, 튜브를 제거하고 케이블 타이(zip ties)를 자른 후 바이오리액터 상부를 들어 올립니다.
- PDMS 막에서 잔류 배지를 흡입하여 제거하고, 준비 과정에서 사용했던 동일한 페트리 접시에 막을 다시 옮깁니다.
- 세포 배양 현미경으로 세포의 형태학적 특성을 평가하여 세포 부착 및 생존력을 확인한 후, 필요에 따라 후속 분석을 진행합니다.
10. 하위 분석
- qPCR 샘플 수집
- BSC 내에서 1.5 mL 마이크로원심분리 튜브에 세포 유형 및 실험 조건을 포함한 샘플 식별자를 표기합니다.
- 세포 배양 현미경을 사용하여 정적 및 연동 펌프 조건 모두에서 PDMS 위에 세포가 여전히 존재하는지 확인합니다.
- 각 PDMS 막에서 잔류 배지를 흡입하여 제거합니다.
- β‑mercaptoethanol을 Buffer RLT에 1:10 비율로 첨가하여 RNA 용해 버퍼를 즉석에서 준비합니다.
- 세포를 용해시키기 위해 각 PDMS 막에 370 µL의 Buffer RLT + β-mercaptoethanol을 첨가합니다.
- 멸균된 세포 스크레이퍼를 사용하여 PDMS의 세포가 파종된 부위를 강하게 긁어 모든 세포를 분리합니다.
- 용해액 약 350 µL를 각각의 1.5 mL 튜브로 옮깁니다.
- RNA 추출을 진행하거나 추후 사용 시까지 샘플을 -80 °C에서 보관합니다.
- BSC를 오염 제거합니다.
참고: Buffer RLT 및 β-mercaptoethanol은 각각의 SDS에 따라 취급하고 적절한 폐기물 용기에 버려야 합니다.
- 면역형광 염색
- 각 막에 4% paraformaldehyde (PFA) 1 mL를 첨가하고 실온에서 20분 동안 배양합니다.
- PFA를 흡입하여 지정된 유해 폐기물 용기에 버립니다.
- 각 막에 PBS 1 mL를 첨가하여 잔류 고정액을 제거합니다.
- 표적 마커에 적합한 면역형광 염색 프로토콜을 계속 진행합니다.
1. 바이오리액터 및 관련 구성 요소의 세척
- 바이오리액터의 입구 및 출구 포트를 포함하여 배지, 세포 또는 PDMS 막과 접촉하는 모든 바이오리액터 구성 요소에 70% 에탄올을 분무합니다.
- 배지 병에서 남아 있는 배지를 흡입하여 제거한 다음, 내부적으로 70% 에탄올을 충분히 분무하고 다시 흡입하여 헹굽니다.
- 살균된 모든 구성 요소를 BSC에서 꺼내 지정된 청결 구역에 보관합니다.
- 배지 병의 경우:
- 20% 표백제로 세척하고 흔든 후, 흐르는 물과 함께 내용물을 싱크대에 버립니다.
- 1:10으로 희석한 식초로 문질러 닦고 비누와 초순수로 세척한 다음, 70% 에탄올로 헹구고 거꾸로 세워 건조합니다.
- 배지 캡과 펌프 인서트를 70% 에탄올로 세척합니다.
- 연동 펌프 세척
- (1) 70% 에탄올, (2) 초순수, 또는 (3) 빈 폐기물 용기가 담긴 250 mL 비커를 준비합니다.
- 폐쇄형 유로의 튜브를 사용하여 펌프를 연결하고, Arduino 제어 회로 보드를 사용하여 전원을 공급합니다.
- 펌프를 70% 에탄올에서 1분 동안 작동시킨 후, 초순수에서 1분 동안 작동시켜 빈 폐기물 비커로 흘려보냅니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
본 프로토콜은 연동성 기계적 힘이 대식세포 활성화에 직접적으로 어떻게 영향을 미치는지 결정하기 위한 재현 가능한 방법을 입증하는 것을 목적으로 했습니다. 바이오리액터 실험에 앞서, iBMDMs가 표준 생화학적 자극 조건에 반응하여 적절하게 분극화되는지 확인했습니다. 본 프로토콜에 따라 PDMS 막을 피브로넥틴으로 코팅하고 iBMDMs를 파종했습니다. 세포를 24시간 동안 부착시킨 후, 시각적 검사를 통해 성공적인 부착, 막 표면의 균일한 분포, 그리고 제조사 설명에 따른 불규칙한 "계란 프라이" 모양의 형태를 통한 생존 여부를 확인했습니다(그림 3A,B). 부착 상태가 불량하거나 파종이 불균일하거나 세포 탈리 징후가 보이는 막은 실험에서 제외하였는데, 이러한 조건들은 불일치하는 기계적 자극과 가변적인 하위 신호 전달을 유발할 수 있기 때문입니다. 성공적으로 파종된 막은 연동성 자극을 위해 바이오리액터 시스템에 조립되거나 정적 대조군으로 유지되었습...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
염증성 질환에서 연동 운동의 조절 장애가 빈번하게 나타남에도 불구하고, 연동력이 대식세포 기능에 어떻게 영향을 미치는지에 대한 현재의 이해는 제한적인 실정입니다. 전단 응력 및 주기적 변형과 같은 개별적인 기계적 자극이 대식세포 활성화를 조절하는 것으로 알려져 있지만, 연동 운동을 구성하는 다축 변형과 유체 흐름의 동시 작용이 대식세포 기계생물학적 관점에서 미치는 영향은 광범위하게 연구되지 않았습니다. 본 프로토콜에서는 생리학적으로 유의미한 조건 하에서 이러한 복합적인 기계적 힘이 대식세포의 염증 반응을 어떻게 조절하는지 연구할 수 있는 재현 가능한 플랫폼을 제공합니다. 본 시스템을 사용하여 4 h 동안 연동 자극에 노출시켰을 때, Il6 및 Nos2의 발현이 유의하게 증가하며 주로 전염증성 대식세포 표현형이 촉진됨을 입증하였습니다.
중요한 점은, 대식세포의 기계적 민감성이 가해진 힘의 크기, 빈도 및 지속 시간에 크게 의존한다는 것입니다
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자들은 공개할 이해관계 충돌이 없습니다.
감사의 글
본 연구는 국립과학재단(National Science Foundation) 지원 번호 2440798의 지원을 받아 수행되었습니다. 그림 1 및 그림 2는 BioRender.com의 라이선스 버전을 사용하여 제작되었습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.25% Trypsin-EDTA | Fisher | 25200056 | |
| 1.5 mL 마이크로 원심분리 튜브 | USA Scientific | 1615-5510 | |
| 100 mm x 15 mm 페트리 접시 | Fisher | 50-190-0276 | |
| 150 mm 배양 접시 | Fisher | FB012925 | |
| 4% 파라포름알데히드 | Santa Cruz | sc-281692 | |
| 90 mm 배양 접시 | Fisher | FB012923 | |
| Alexa Fluor 488 Anti-F4/80 항체 | Abcam | ab204266 | |
| Alexa Fluor 647 Anti-CD40 항체 | Abcam | ab275158 | |
| Arduino Uno | Amazon | B008GRTSV6 | |
| 브레드보드 | Amazon | ||
| Buffer RLT | Qiagen | 79216 | |
| 셀 스크래퍼 | Fisher | 353087 | |
| DAPI | MilliporeSigma | 50-874-10001 | |
| 데시케이터 | MilliporeSigma | Z119008 | |
| 디아고날 플라이어 | Amazon | ||
| 소태아 혈청 | Innovative Biosciences | 11-01-500 | |
| 피브로넥틴 | MilliporeSigma | F1141-1MG | |
| HEPES 완충액 | Fisher (Gibco) | 15630080 | |
| iBMDM | Applied Biological Materials Inc. (abm) | T0673 | |
| 모터 | Robotshop | FT-SPARK16-360 | |
| PE Anti-Ym-1 + Ym-2 항체 | Abcam | ab211621 | |
| 페니실린-스트렙토마이신 | Fisher | 15140122 | |
| 연동 펌프 | DigiKey | 1150 | |
| 인산염 완충 식염수 | Fisher | 14190250 | |
| PLA 필라멘트 | Amazon | B0D7ZYCVTY | |
| 가변저항 B1K 1K Ohm | Amazon | B0CZ747F6F | |
| RPMI 1640 | Fisher | 11875085 | |
| 실리콘 그리스 | Amazon | B000XBH9HI | |
| 슬립 조인트 플라이어 | Amazon | ||
| 피루브산나트륨 | Cytiva Hyclone | SH3023901 | |
| Sylgard 184 실리콘 엘라스토머 키트 | Fisher | NC9285739 | |
| T-25 배양 플라스크 | Fisher | 229331 | |
| 트랜지스터 | DigiKey | IRF520NPBF-ND | |
| 배선/악어 클립 | Amazon | ||
| 케이블 타이 18인치 | Amazon | ||
| β-mercaptoethanol | Fisher | AC125472500 |
참고문헌
- Mass E, Nimmerjahn F, Kierdorf K, Schlitzer A. Tissue-specific macrophages: how they develop and choreograph tissue biology. Nat Rev Immunol. 2023;23(9):563-579.
- Kumar V, Kumar V. Macrophages: the potent immunoregulatory innate immune cells. In: Macrophage Activation - Biology and Disease. London: IntechOpen; 2019. doi:10.5772/intechopen.88013.
- Ross EA, Devitt A, Johnson JR. Macrophages: the good, the bad, and the gluttony. Front Immunol. 2021;12:708186.
- Sreejit G, Fleetwood AJ, Murphy AJ, Nagareddy PR. Origins and diversity of macrophages in health and disease. Clin Transl Immunology. 2020;9(12):e1222.
- Locati M, et al. Diversity, mechanisms, and significance of macrophage plasticity. Annu Rev Pathol. 2020;15:123-147.
- Mosser DM, Edwards JP. Exploring the full spectrum of macrophage activation. Nat Rev Immunol. 2008;8(12):958-969.
- Boutilier AJ, Elsawa SF. Macrophage polarization states in the tumor microenvironment. Int J Mol Sci. 2021;22(13):6995.
- Orecchioni M, Ghosheh Y, Pramod AB, Ley K. Macrophage polarization: different gene signatures in M1 (LPS+) versus classically and M2 (LPS−) versus alternatively activated macrophages. Front Immunol. 2019;10:1084.
- Huang X, Li Y, Fu M, Xin HB. Polarizing macrophages in vitro. Methods Mol Biol. 2018;1784:119-126.
- Gharavi AT, et al. The role of macrophage subtypes and exosomes in immunomodulation. Cell Mol Biol Lett. 2022;27(1):83.
- Peng Y, et al. Regulatory mechanism of M1/M2 macrophage polarization in the development of autoimmune diseases. Mediators Inflamm. 2023;2023:8821610.
- Clevenger AJ, Jha A, Moore E, Raghavan SA. Manipulating immune activity of macrophages: a materials and mechanics perspective. Trends Biotechnol. 2025;43(1):33-49.
- Khanmohammadi M, Mirzaalikhan Y, Baratchi S. Immunity in motion: the role of mechanics in macrophage biology. Cell Chem Biol. 2025;32(12). doi:10.1016/j.chembiol.2025.11.004.
- Adams S, et al. Mechano-immunomodulation: mechanoresponsive changes in macrophage activity and polarization. Ann Biomed Eng. 2019;47(11):2213-2231.
- Meizlish ML, et al. Mechanosensing regulates tissue repair program in macrophages. Sci Adv. 2024;10(11):adk6906.
- Lee M, Du H, Winer DA, Clemente-Casares X, Tsai S. Mechanosensing in macrophages and dendritic cells in steady-state and disease. Front Cell Dev Biol. 2022;10:1044729.
- Chen M, et al. Substrate stiffness modulates bone marrow-derived macrophage polarization through NF-κB signaling pathway. Bioact Mater. 2020;5(4):880-890.
- Blakney AK, Swartzlander MD, Bryant SJ. The effects of substrate stiffness on the in vitro activation of macrophages and in vivo host response to poly(ethylene glycol)-based hydrogels. J Biomed Mater Res A. 2012;100A(6):1375-1386.
- Sridharan R, Cavanagh B, Cameron AR, Kelly DJ, O'Brien FJ. Material stiffness influences the polarization state, function and migration mode of macrophages. Acta Biomater. 2019;89:47-59.
- Previtera ML, Sengupta A. Substrate stiffness regulates proinflammatory mediator production through TLR4 activity in macrophages. PLoS One. 2015;10(12):e0145813.
- Song C, et al. Microfluidic three-dimensional biomimetic tumor model for studying breast cancer cell migration and invasion in the presence of interstitial flow. Chin Chem Lett. 2019;30(5):1038-1042.
- Li R, et al. Interstitial flow promotes macrophage polarization toward an M2 phenotype. Mol Biol Cell. 2018;29(16):1927-1940.
- Son H, et al. Shear stress induces monocyte/macrophage-mediated inflammation by upregulating cell-surface expression of heat shock proteins. Biomed Pharmacother. 2023;161:114566.
- Zhou H, Scatena M, Tu LN, Giachelli CM, Nigam V. Monocyte adhesion to and transmigration through endothelium following cardiopulmonary bypass shearing is mediated by IL-8 signaling. Front Cardiovasc Med. 2024;11:1454302.
- Jui E, et al. Shear stress induces a time-dependent inflammatory response in human monocyte-derived macrophages. Ann Biomed Eng. 2024;52(11):2690-2705.
- Castro-Núñez L, Dienava-Verdooold I, Herczenik E, Mertens K, Meijer AB. Shear stress is required for the endocytic uptake of the factor VIII-von Willebrand factor complex by macrophages. J Thromb Haemost. 2012;10(9):1929-1937.
- Cheng C, et al. Atherosclerotic lesion size and vulnerability are determined by patterns of fluid shear stress. Circulation. 2006;113(23):2744-2753.
- Seneviratne AN, et al. Low shear stress induces M1 macrophage polarization in murine thin-cap atherosclerotic plaques. J Mol Cell Cardiol. 2015;89(Pt B):168-172.
- Bonito V, de Kort BJ, Bouten CVC, Smits AIPM. Cyclic strain affects macrophage cytokine secretion and extracellular matrix turnover in electrospun scaffolds. Tissue Eng Part A. 2019;25(17-18):1312-1325.
- Ballotta V, Driessen-Mol A, Bouten CVC, Baaijens FPT. Strain-dependent modulation of macrophage polarization within scaffolds. Biomaterials. 2014;35(18):4919-4928.
- Dziki JL, et al. The effect of mechanical loading upon extracellular matrix bioscaffold-mediated skeletal muscle remodeling. Tissue Eng Part A. 2018;24(1-2):128-139.
- Wehner S, et al. Mechanical strain and TLR4 synergistically induce cell-specific inflammatory gene expression in intestinal smooth muscle cells and peritoneal macrophages. Am J Physiol Gastrointest Liver Physiol. 2010;299(5):G1187-G1197.
- Clevenger AJ, et al. Rapid prototypable biomimetic peristalsis bioreactor capable of concurrent shear and multiaxial strain. Cells Tissues Organs. 2023;212(1):57-72.
- Huizinga JD. Gastrointestinal peristalsis: joint action of enteric nerves, smooth muscle, and interstitial cells of Cajal. Microsc Res Tech. 1999;47(4):239-247.
- Kunz G, Leyendecker G. Uterine peristaltic activity during the menstrual cycle: characterization, regulation, function and dysfunction. Reprod Biomed Online. 2002;4(Suppl 3):5-9.
- Hosseini G, et al. A computational model of ureteral peristalsis and an investigation into ureteral reflux. Biomed Eng Lett. 2018;8(1):91-101.
- Clevenger AJ, et al. Peristalsis-associated mechanotransduction drives malignant progression of colorectal cancer. Cell Mol Bioeng. 2023;16(4):315-330.
- Leyendecker G, Kunz G, Wildt L, Beil D, Deininger H. Uterine hyperperistalsis and dysperistalsis as dysfunctions of the mechanism of rapid sperm transport in patients with endometriosis and infertility. Hum Reprod. 1996;11(7):1542-1551.
- Iwakiri K, et al. Mechanisms underlying excessive esophageal acid exposure in patients with gastroesophageal reflux disease. Esophagus. 2017;14(3):213-218.
- Raghavan S, Crawford LZ. 3D rapid prototypable tunable peristalsis bioreactor. United States patent. 2022: US12522795.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.