본 프로토콜은 adenosine monophosphate-activated protein kinase alpha 1/3-hydroxy-3-methylglutaryl-coenzyme A reductase 경로에 초점을 맞추어, N-lactoyl-phenylalanine이 당뇨병성 심근병증, 심장 지질 대사 및 콜레스테롤 합성에 미치는 영향을 조사하기 위한 in vivo 및 in vitro 접근 방식을 설명합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
연구 논문
N-Lactoyl-phenylalanine가 지질 대사 조절을 통해 당뇨병성 심근병증 마우스 모델의 심장 기능을 개선함
이 논문에서
요약
초록
당뇨병성 심근병증(DCM)은 당뇨병의 가장 심각한 합병증 중 하나입니다. 내인성 대사물질인 N-lactoyl-phenylalanine(Lac-Phe)은 체중 감소를 촉진하고 포도당 항상성을 개선할 수 있습니다. 본 연구에서는 DCM에 대한 Lac-Phe의 치료 효과를 조사하고 그 기저 메커니즘을 추가로 탐구하고자 하였습니다. DCM이 동반된 제2형 당뇨병 쥐에 Lac-Phe를 투여하였습니다. Lac-Phe는 심장 수축 기능을 강화하고, 병적 리모델링을 개선하며, 심장 내 지질 축적을 감소시켰습니다. In vitro 실험에서는 고농도 포도당과 palmitic acid로 자극된 H9c2 세포에서 Lac-Phe의 효과를 조사하였습니다. Lac-Phe는 H9c2 세포 내 콜레스테롤 합성을 감소시킴으로써 지질 축적을 줄였습니다. 메커니즘적으로 Lac-Phe는 adenosine monophosphate-activated protein kinase alpha 1(AMPKα1)의 인산화 및 활성화를 촉진하였습니다. 이어서 활성화된 AMPKα1은 하위 표적인 3-hydroxy-3-methylglutaryl-coenzyme A reductase(HMGCR)를 인산화하여 억제함으로써 콜레스테롤 합성을 감소시키고, 결과적으로 H9c2 세포의 지질 대사 불균형을 개선하였습니다. 이러한 결과는 Lac-Phe가 AMPKα1/HMGCR 경로를 통해 DCM 상태의 H9c2 세포 내 지질 대사를 개선하며, 이를 통해 심장 수축 기능을 강화하고 병적 리모델링을 완화시킨다는 것을 나타냅니다. Lac-Phe는 당뇨병성 심근병증의 잠재적인 치료 방법이 될 수 있습니다.
서론
당뇨병은 지속적인 고혈당을 특징으로 하는 대사성 질환입니다1. 지난 20년 동안 당뇨병은 전 세계 사망 원인 10위 안에 드는 질병이 되었으며, 매년 600만 명 이상의 사람들이 당뇨병 및 그 합병증으로 사망하고 있습니다2. 당뇨병으로 인해 발생하는 심장 병리적 상태인 당뇨병성 심근병증(DCM)은 당뇨병과 관련된 가장 심각한 합병증 중 하나입니다3,4. 이는 심부전의 독립적인 위험 요인으로 작용하며, 심장 섬유화 및 심근세포 비대를 포함한 구조적, 기능적 심근 변화를 특징으로 하며, 궁극적으로 이완기 및 수축기 기능 장애를 모두 유발합니다5,6. 현재 DCM 관리에는 β-차단제, 안지오텐신 전환 효소 억제제 및 안지오텐신 II 1형 수용체 차단제와 같은 여러 전통적인 심혈관 치료법이 사용되고 있지만7,8, 임상 현장에서의 효능은 여전히 최적화되지 않은 상태입니다. DCM의 기저 기전이 충분히 연구되지 않았기 때문에9, 현재 이 질환을 표적으로 하는 명확한 치료 전략이 없는 실정입니다10,11. DCM의 임상적 징후는 초기 단계의 무증상 이완기 기능 장애에서 후기 단계의 수축기 기능 장애 및 임상적 심부전, 그리고 사망에 이르기까지 진행됩니다12,13. 따라서 이 상태에 대한 효과적인 치료 옵션을 탐색하고 개발하는 것이 시급합니다.
불균형한 지질 대사는 DCM의 주요 특징입니다14. DCM에서는 혈중 유리 지방산(FFAs) 수치의 증가가 심근세포의 과도한 지방산 흡수로 이어질 수 있습니다15,16. 심근세포의 지방산 대사는 주로 지방산 산화에 의존합니다. 시간이 지남에 따라 심근세포 내의 지방산 산화로는 섭취된 모든 지방산을 완전히 대사하기에 불충분해지며, 과잉 지방산과 그 중간 대사물이 심근세포에 축적됩니다17. 이러한 과도한 지질 부하는 지질 독성을 유발하고, 심근 에너지 공급을 방해하며, 심장의 산화 스트레스와 염증 반응을 촉진하여 궁극적으로 심근세포에 심각한 손상을 입힙니다18,19. 따라서 심장 지질 대사를 능동적으로 조절하는 것은 DCM의 잠재적인 치료 표적이 될 수 있습니다20.
N-lactoyl-phenylalanine (Lac-Phe)는 운동 후 농도가 급격히 상승하는 내인성 대사물질입니다21. 기전적으로, Lac-Phe는 세포질 효소인 carnosine dipeptidase 2 (CNDP2)에 의해 lactate와 phenylalanine의 응축을 통해 합성됩니다. 이러한 생합성 경로는 대식세포, 상피세포, 중간엽 줄기세포를 포함한 다양한 세포 유형에 널리 분포하며, 신체 활동 후 Lac-Phe를 혈액 순환계로 분비합니다22. Lac-Phe의 만성 투여는 음식 섭취를 효과적으로 감소시키고 비만과 체중을 줄이며, 포도당 항상성을 개선하는 것으로 나타났습니다21. 최근의 한 연구에서는 Lac-Phe가 척수 손상 후 미세아교세포/대식세포의 지질 대사 능력을 개선할 수 있음을 보여주었습니다23. 흥미롭게도, 제2형 당뇨병의 1차 치료제인 metformin의 급성 및 만성 투여 모두 Lac-Phe 수치를 높일 수 있으며, Lac-Phe가 metformin의 항비만 효과를 매개한다는 연구 결과가 있습니다22. 또한, Sha 등은 최근 Lac-Phe가 미토콘드리아 기능 장애를 완화하여 심근 세포 사멸을 개선함으로써 횡대동맥 결찰 (TAC)-유도 심부전을 개선한다는 것을 입증했습니다24. 지속적인 고혈당과 비만은 DCM의 지질 대사 조절 장애에 기여하는 중요한 요인입니다25. 종합하면, 이러한 증거들은 Lac-Phe가 DCM에 대해 잠재적인 치료 효과를 가질 수 있음을 시사합니다. 하지만 현재까지 DCM에서 Lac-Phe의 구체적인 역할은 연구되지 않았습니다.
본 연구에서 우리는 당뇨병성 심근병증(DCM)이 있는 마우스에 Lac-Phe를 외인성으로 투여했을 때 심장 수축 기능이 효과적으로 개선되고 심장의 병적 리모델링이 완화됨을 확인했습니다. 우리는 Lac-Phe가 지질 대사 불균형의 조절을 통해 DCM 마우스의 심장 기능을 개선한다는 것을 발견했습니다. Lac-Phe는 DCM 마우스 심근세포 내의 지질 방울(LD) 축적을 감소시켰으며 심장의 콜레스테롤 함량을 낮추었습니다. 기전적으로 Lac-Phe는 adenosine monophosphate-activated protein kinase alpha 1 (AMPKα1)의 인산화 및 활성화를 촉진하여 3-hydroxy-3-methylglutaryl-coenzyme A reductase (HMGCR)의 인산화를 촉진했습니다. HMGCR의 인산화는 해당 효소의 활성을 감소시켜 콜레스테롤 생성을 줄이며, 이를 통해 심근세포 내 지질 대사의 불균형을 개선합니다. 이러한 결과는 Lac-Phe를 이용한 DCM의 잠재적 치료를 위한 이론적 근거를 제공합니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
동물 연구 프로토콜은 Nanjing Drum Tower Hospital의 기관 윤리 위원회(승인 번호: 2025AE1065, 2025년 9월 26일)로부터 승인을 받았으며, 다음의 가이드라인에 따라 수행되었습니다. 실험동물의 관리 및 사용 지침 (제8판), 미국 국립보건원에서 발행함.
동물
본 연구에서는 5주령의 수컷 C57BL/6J 마우스 30마리를 사용하였습니다. 1주일간의 적응 급이 후, 모든 마우스는 온도 22°C ± 2°C, 습도 40%–60%의 환경에서 12시간 명-암 주기에 따라 먹이와 물을 자유롭게 섭취하며 사육되었습니다. DCM 마우스 모델을 구축하기 위해 저용량 STZ와 HFD를 병행하여 사용하였습니다(그림 1A). 고지방 식이(HFD; 지방 60%, 단백질 20%, 탄수화물 20%) 급이를 시작하고 4주 후, 마우스를 하룻밤 동안 금식시킨 다음, 스트렙토조토신(STZ; pH 4.5의 시트르산 완충액에 용해된 8 mg/mL)을 35 mg/kg/day의 용량으로 3일 연속 복강 내 주사하였습니다. 대조군 마우스는 대조 식이(지방 10%, 단백질 20%, 탄수화물 70%)를 섭취하고 동일한 양의 시트르산 완충액을 투여받았습니다. 이후 15주 동안 고지방 식이를 유지한 후, 무작위 혈당 ≥13.3 mmol/L 및 좌심실 박출률(LVEF) <55%라는 두 가지 기준을 모두 충족하는 마우스를 성공적으로 구축된 DCM 모델로 정의하였습니다. 이렇게 검증된 DCM 마우스들에 번호를 부여하고 난수표를 이용하여 DCM 군과 DCM + Lac-Phe 군으로 무작위 배정하였습니다. 마우스의 약 절반은 모델 구축에 실패하였으며, 이 동물들은 동물 윤리 규정에 따라 안락사되었습니다. 요약하자면, 마우스는 대조군, DCM 군, DCM + Lac-Phe 군의 세 그룹으로 나뉘었습니다(그룹당 n = 10). 각 그룹의 마우스 10마리 모두 심초음파 검사, 체중 측정 및 OGTT를 수행하였습니다. 28일간의 처리 기간 후, 후속 분석을 위해 심장을 적출하였습니다. 각 그룹에는 10마리의 마우스가 있었으며, 이 중 그룹당 3마리는 전사체 시퀀싱에, 3마리는 투과 전자 현미경 및 조직학적 염색에, 3마리는 단백질 발현 분석에 사용되었습니다. 각 그룹의 나머지 마우스 1마리는 예비용으로 확보하였습니다. DCM 모델이 성공적으로 구축된 후, Lac-Phe를 생리식염수에 녹여 최종 농도 10 mg/mL로 조제하였습니다. DCM + Lac-Phe 군의 마우스는 50 mg/kg/day의 Lac-Phe를 5 mL/kg의 주사 부피로 28일 연속 매일 1회 복강 내 투여받았습니다. 대조군과 DCM 군의 마우스에게는 용매 대조군으로서 동일한 양의 생리식염수를 투여하였습니다.
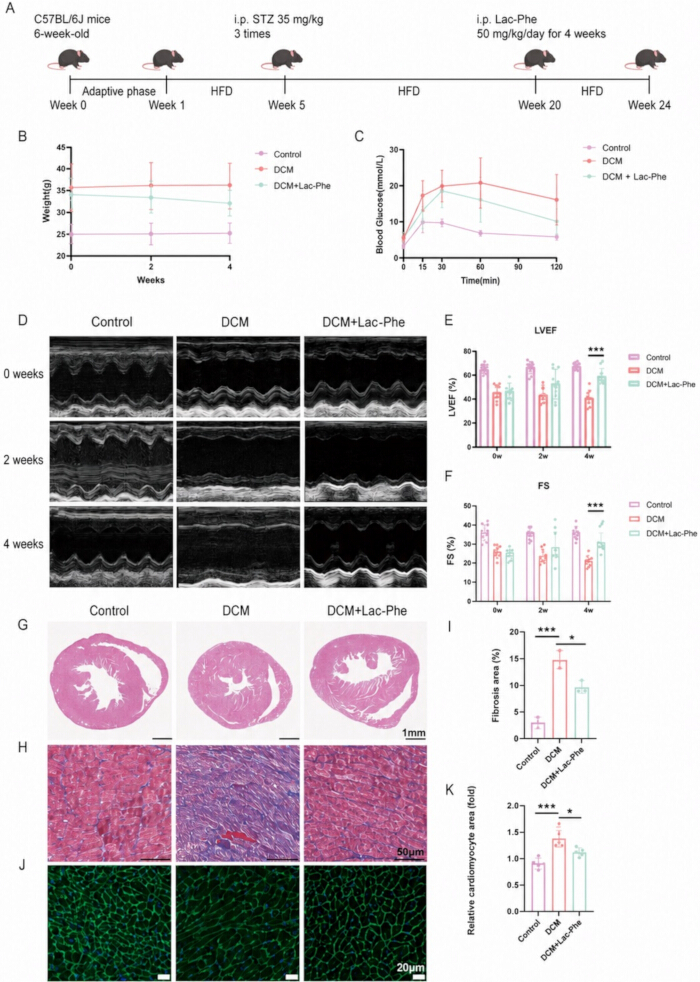
그림 1Lac-Phe는 당뇨병성 심근병증 마우스의 심장 기능 및 병적 리모델링을 개선한다. (A) HFD/STZ로 유도된 DCM 마우스 모델 및 Lac-Phe 처리 프로토콜의 모식도. (B) 4주간의 처리 기간 동안 Control, DCM 및 DCM + Lac-Phe 군 마우스의 체중; 군당 n = 10. (C) 표시된 군에서의 경구 당부하 검사(OGTT); 군당 n = 10. (D) 처리 0, 2, 4주 차의 대표 심초음파 이미지. (E,F) 좌심실 박출률(LVEF) (E) 및 분획 단축률(FS) (F)의 정량 분석; 군당 n = 10. (G) 대표적인 hematoxylin and eosin (H&(E) 염색된 심장 단면. 스케일 바 = 1 mm. (H,I) 심장 단면의 대표적인 Masson’s trichrome 염색(H) 및 섬유화 영역의 정량 분석(I); 그룹당 n = 3. 스케일 바 = 50 μm(J, K) 심장 절편의 대표적인 밀배아 응집소(WGA) 염색 사진(J) 및 상대적 심근세포 면적의 정량화 결과(K); 그룹당 n = 3. 스케일 바 = 20 μm데이터는 평균으로 나타내었습니다. ± 표준 편차 P < 0.05, **P < 0.001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
심장 기능
이소플루란(isoflurane) 흡입 마취 후, 마우스들을 온도 조절 플랫폼(37°C) 위에 앙와위로 고정하였습니다. 40 MHz 트랜스듀서가 장착된 초음파 진단기를 사용하여 이완기와 수축기 동안의 좌심실 크기와 승모판 혈류 속도를 측정하였으며, 이를 통해 좌심실 박출률(LVEF)과 단축률(FS)을 계산하였습니다. 각 마우스당 3회의 연속적인 심장 주기를 수집하였습니다.
세포 처리
H9c2 세포는 10% fetal bovine serum과 1% penicillin–streptomycin이 첨가된 Dulbecco’s modified Eagle’s medium에서 37°C, 5% CO₂를 포함하는 습윤한 환경으로 배양되었습니다. 세포는 confluence가 70%–80%에 도달할 때마다 2–3일 간격으로 계대 배양하였습니다. 실험을 위해 세포를 10 cm dish에 분주한 후 Control, high glucose/palmitic acid (HG/PA), HG/PA + Lac-Phe의 세 그룹으로 나누었습니다. HG/PA 그룹과 HG/PA + Lac-Phe 그룹의 세포를 먼저 0.25 mM palmitic acid와 50 mM glucose에 24 h 동안 노출시켰습니다. 그 후, HG/PA + Lac-Phe 그룹의 세포에는 HG/PA 노출을 유지하면서 10 μg/mL Lac-Phe를 24 h 동안 추가로 처리하였고, HG/PA 그룹의 세포에는 동일한 HG/PA 조건에서 동량의 PBS를 처리하였습니다. p-AMPK 억제 실험에서는 10 μM AMPK-IN-3 (DMSO에 용해)를 Lac-Phe와 동시에 24 h 동안 처리하였으며, 해당 대조군에는 동일한 부피의 DMSO를 처리하였습니다. atorvastatin 실험에서는 HG/PA 조건의 H9c2 세포에 10 μM atorvastatin을 단독으로 또는 10 μg/mL Lac-Phe와 병용하여 24 h 동안 처리하였습니다.
조직학적 염색
Lac-Phe를 28일 동안 투여한 후, 마우스의 심장을 적출하여 4% paraformaldehyde (pH 7.4)에 24시간 동안 침지 고정하였습니다. 고정된 심장 조직은 파라핀에 매립한 후 6-μm 두께의 절편으로 제작하였습니다. 조직 절편은 hematoxylin and eosin, wheat germ agglutinin 및 Masson’s trichrome으로 염색하였습니다. 모든 염색 과정은 제조사의 프로토콜을 엄격히 준수하여 수행되었습니다. 디지털 카메라 시스템이 장착된 고해상도 명시야 현미경을 사용하여 20× 배율로 전체 슬라이드 이미징을 수행하였습니다.
웨스턴 블롯 분석
단백질 농도는 Bradford assay를 사용하여 측정하였습니다. 조직 용해물을 10% (w/v) acrylamide 겔에서 SDS-PAGE로 분리한 후 polyvinylidene difluoride 막으로 전기영동 전이시켰습니다. 비특이적 결합 부위는 5% bovine serum albumin을 사용하여 실온에서 2시간 동안 블로킹하였습니다. 그 후 막을 1차 항체(1:1,000 희석)와 함께 4°C에서 하룻밤 동안 반응시켰으며, 이어서 쉐이커 위에서 TBST로 6회 세척(각 5분)하였습니다. 다음으로 막을 horseradish peroxidase-conjugated 2차 항체(1:5,000 희석)와 함께 실온에서 2시간 동안 반응시킨 후, 다시 TBST로 6회 세척(각 5분)하였습니다. 단백질 밴드는 enhanced chemiluminescence reagent kit를 사용하여 시각화하였습니다. Western blot 결과의 정량화는 ImageJ 소프트웨어를 이용한 밀도 분석(densitometric analysis)으로 수행하였습니다. 본 연구에 사용된 모든 항체는 재료 표(Table of Materials)에 나열되어 있습니다.
전사체학
TRIzol Reagent 및 RNeasy mini 키트를 사용하여 C57BL/6J 마우스의 심장 조직에서 총 RNA를 분리하였습니다. 2100 bioanalyzer를 사용하여 RNA 품질을 평가하였으며, 높은 RNA 순도와 무결성을 확인하였습니다. RNA-seq 라이브러리는 VAHTS Universal V10 RNA-seq Library Prep Kit에 따라 준비되었으며, Illumina NovaSeq 6000 System(single-read, 150 bp)을 사용하여 시퀀싱하였습니다. DESeq2를 사용하여 차별 발현 유전자를 식별하였으며, 보정된 P 값 < 0.05 및 절대 log₂ fold change > 1을 통계적으로 유의미한 것으로 간주하였습니다. 차별 발현 유전자에 대해 유전자 온톨로지(GO) 농축 분석을 수행하였으며, GO 용어에서 차별 발현 유전자의 농축 유의성은 초기하 분포 알고리즘을 사용하여 계산하였습니다.
Oil Red O 염색 및 LD540 지질 염색
심장 조직을 OCT 화합물에 매립한 후 10-μm 두께의 절편으로 제작하였다. 동결 절편을 실온에서 30분 동안 평형화한 후 4% 파라포름알데히드로 10분 동안 고정하였다. PBS로 세척한 후, 절편을 60% 이소프로필 알코올에 15초 동안 담갔다가 Oil Red O 작업 용액으로 30분 동안 처리하였다. 그 다음 절편을 60% 이소프로필 알코올로 15초 동안 처리하고 PBS로 3회 세척하였다. LD540 지질 염색을 위해, H9c2 세포를 PBS로 세척하고 실온에서 4% 파라포름알데히드로 10분 동안 고정하였다. 이후 세포를 10 μM LD540과 함께 실온에서 30분 동안 배양하였다.
투과 전자 현미경 (TEM)
신선한 마우스 심장 조직을 1–2 mm3 크기로 절단하여 4°C의 전자현미경 고정액에서 4시간 동안 고정한 후, 2중 증류수로 세척하고 점진적으로 농도가 높아지는 에탄올 용액에 침지시켰습니다. 샘플을 포매 및 절편화한 다음 투과 전자현미경으로 관찰하였습니다.
총 콜레스테롤(TC) 함량
혈청 및 H9c2 세포 시료의 총 콜레스테롤(TC) 수치를 Amplex Red Cholesterol and Cholesteryl Ester Assay Kit를 사용하여 제조사의 지침에 따라 측정하였습니다.
경구 당부하 검사 (OGTT)
마우스를 14시간(19:00부터 9:00까지) 동안 금식시킨 후, 포도당(20% 스톡, 2 g/kg)을 경구 투여하였습니다. 투여 후 0, 15, 30, 60, 120분 시점에 꼬리 정맥에서 혈액을 채취하여 혈당 수치를 측정하였습니다.
Cell counting kit-8 (CCK-8) 측정
세포 생존율을 측정하기 위해 CCK-8을 사용하였습니다. H9c2 세포를 96-well plate에 초기 밀도 3 × 10⁴ cells/well로 분주하였습니다. HG/PA 조건에서 다양한 농도의 Lac-Phe로 24시간 동안 처리한 후, well당 100 μL의 배지에 10 μL의 키트 시약을 첨가하고 37°C에서 4시간 동안 배양하였습니다. 광학 밀도(OD) 값을 얻기 위해 multimode microplate reader를 사용하여 450 nm에서 흡광도를 측정하였습니다.
분자 도킹
Lac-Phe와 AMPKα1의 결정 구조는 PubChem26에서 다운로드하였습니다. 분자 도킹 과정은 CB-DOCK227를 사용하여 수행하였습니다.
통계 분석
모든 심초음파 측정, 조직학적 염색 및 이미지 정량화는 그룹 배정을 알지 못하는 연구원에 의해 수행되었습니다. 모든 데이터 분석은 Prism 및 SPSS 20.0을 사용하여 수행되었습니다. 각 실험은 최소 3회 반복되었으며, 데이터는 평균 ± 표준 편차로 표시되었습니다. 분산의 균질성은 Levene 테스트를 사용하여 평가되었습니다. 정규성은 잔차의 그래프 검토를 통해 확인되었습니다. 다중 그룹 간의 비교는 일원 분산 분석(one-way analysis of variance)을 실시한 후, 쌍별 비교를 위해 Tukey 사후 검정을 수행하였습니다. OGTT 데이터의 경우, 그룹을 피험자 간 요인으로, 시간을 피험자 내 요인으로 하는 이원 반복 측정 분산 분석(two-way repeated-measures ANOVA)을 사용하였으며, 이어서 Bonferroni 사후 검정을 수행하였습니다. P < 0.05인 경우를 통계적으로 유의미한 것으로 간주하였습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
당뇨병성 심근병증 마우스에서 Lac-Phe는 심장 기능을 개선한다
저희는 HFD와 STZ 주사를 병행하여 C57BL/6J 마우스에서 DCM을 유도하였으며(그림 1A) 모델 구축이 성공적으로 이루어진 DCM 마우스를 무처리군(DCM군)과 Lac-Phe 치료군으로 무작위 배정하였고, 음성 대조군으로 정상 C57BL/6J 마우스를 사용하였다. Li 등21의 연구를 바탕으로, 저희는 치료용량으로 50 mg/kg의 Lac-Phe를 선택하였다. 모델 구축 후, Lac-Phe 치료군은 4주간 외인성 Lac-Phe를 주사받았으며, 무처리군은 동일한 부피의 생리식염수를 주사받았다. DCM군과 비교하여, Lac-Phe로 치료한 당뇨병성 심근병증 마우스는 4주 후 체중이 유의하게 감소하였다(그림 1B). OGTT 결과, ...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
본 연구에서 우리는 DCM에 대한 Lac-Phe의 치료 효과를 뒷받침하는 증거를 제공합니다. Lac-Phe는 심근세포의 콜레스테롤 생성을 줄이고 지질 대사 불균형을 개선함으로써 DCM의 심장 리모델링과 심기능 부전을 개선했습니다. 메커니즘적으로 Lac-Phe는 AMPKα1 인산화를 증가시켰습니다. 결과적으로, 증가된 AMPKα1 인산화는 하위 표적인 HMGCR의 인산화 증가 및 억제와 연관되어 콜레스테롤 합성을 감소시켰으며, 궁극적으로 심근세포의 지질 대사 불균형을 개선했습니다. 요약하자면, 본 연구는 Lac-Phe가 AMPK/HMGCR 신호 전달 경로를 통해 DCM의 심장 지질 대사를 개선함을 입증합니다. 주요 결과와 제안된 메커니즘의 도식적 요약은 그림 7에 제시되어 있습니다.
지질 대사 불균형은 DCM에서 심근 손상을 유발하는 주요 요인 중 하나입니다15. 심근세포 내의 과도한 ...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
이해관계 충돌:
저자들은 공개할 사항이 없습니다.
감사의 글
기술 지원을 제공해주신 남경 드럼 타워 병원 임상 대학 및 남경 대학교 의과대학 부속 병원의 연구원과 직원분들께 진심으로 감사드립니다. 본 연구는 중국 국가 자연과학 재단(지원 번호 81870291 및 82300384), 중국 박사후 과학 재단(지원 번호 2023M731625), 강쑤성 자연과학 재단(지원 번호 BK20220175)의 연구비를 지원받아 수행되었습니다. 또한, 남경 공과대학교 고등 합성 연구소에서 제공한 리소스와 협력 지원에 감사드립니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| AMPK-IN-3 (p-AMPK 억제제) | MedChemExpress (MCE) | HY-132921 | 사용 시점 10 μM Lac-Phe 처리 세포에서 AMPK 신호 전달을 억제하기 위한 AMPK 억제 실험 중에. |
| Amplex Red 콜레스테롤 및 콜레스테릴 에스테르 분석 키트 | Beyotime | S0211S | 혈청 및 H9c2 세포 샘플의 총 콜레스테롤 수치를 측정하는 데 사용됩니다. |
| 항-AMPKα1 | Cell Signaling Technology | 2532; RRID: AB_330331 | AMPK의 웨스턴 블랏 분석에 사용된 1차 항체α1. |
| Anti-GAPDH | 세포 신호 전달 기술 | 5174; RRID: AB_10622025 | GAPDH의 웨스턴 블롯 분석에 사용된 1차 항체. |
| 항-HMGCR | Abcam | ab174830; RRID: AB_2749818 | HMGCR의 웨스턴 블롯 분석에 사용된 1차 항체. |
| Anti-p-AMPKα1 (Thr172) | 세포 신호 전달 기술 | 2535; RRID: AB_331250 | 인산화된 AMPK의 웨스턴 블롯 분석에 사용된 1차 항체α1. |
| Anti-p-HMGCR (Ser872) | Abcam | ab124350 | 인산화된 HMGCR의 웨스턴 블롯 분석에 사용된 1차 항체. |
| HRP 결합 항-토끼 IgG 항체 | Cell Signaling Technology | 7074; RRID: AB_2099233 | 웨스턴 블롯 검출을 위해 1:5,000로 희석하여 사용함. |
| 항-β-튜불린 | 세포 신호 전달 기술 | 2128; RRID: AB_823664 | ~의 웨스턴 블롯 분석에 사용된 1차 항체 β-튜불린 |
| 아토르바스타틴 | MedChemExpress (MCE) | HY-17379 | HG/PA 처리된 H9c2 세포에서 지질 축적, 총 콜레스테롤 수치 및 HMGCR 인산화에 미치는 영향을 평가하기 위해 단독으로 또는 Lac-Phe와 병용하여 사용함. |
| 소혈청 알부민 | Sigma-Aldrich | A7906 | 웨스턴 블롯 분석 중 비특이적 결합을 차단하기 위해 5% 농도로 사용합니다. |
| 브래드포드 분석 시약/키트 | Thermo Fisher Scientific | 23200 | 웨스턴 블롯 분석 전 단백질 농도를 결정하는 데 사용됩니다. |
| C57BL/6J 마우스 (5주령, 수컷) | 난징대학교 모델 동물 연구 센터 | 제공된 텍스트가 없습니다. 번역할 내용을 입력해 주시기 바랍니다. | HFD/STZ 유도 당뇨병성 심근병증 마우스 모델을 구축하는 데 사용되었습니다. |
| 세포 계수 키트-8 (CCK-8) | Sharebio | SB-CCK8S | 처리 후 H9c2 세포의 생존율을 측정하는 데 사용됨. |
| 시트르산 완충액 | 자체 제작함 | 제공된 소스 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | pH 4.5로 조제하여 STZ를 용해하는 데 사용하였으며, 해당 용액을 매질 대조군으로 사용하였다. |
| 대조군 식단 (지방 10%, 단백질 20%, 탄수화물 70%) | Research Diets, Inc. | D12450J | 대조군 마우스의 식단으로 사용됨. |
| D-(+)-포도당 | Sigma-Aldrich | 제공된 텍스트가 없습니다. 번역할 소스 텍스트를 입력해 주세요. | HG/PA 세포 처리 및 경구 당부하 검사에 사용됨. |
| 디메틸설폭사이드 (DMSO) | Sigma-Aldrich | D2650 | AMPK-IN-3의 용매 및 그에 대응하는 용매 대조군(vehicle control)으로 사용되었습니다. |
| Dulbecco’수정된 이글(Eagle) 배지’S 배지 | Gibco, Thermo Fisher Scientific | 11965092 | H9c2 세포의 기본 배양 배지로 사용되었습니다. |
| 40 MHz 트랜스듀서가 장착된 심초음파 진단기 | FUJIFILM VisualSonics | Vevo 3100 LT; 40 MHz 트랜스듀서 | 좌심실 크기와 승모판 혈류 속도를 측정하고, 좌심실 박출률(LVEF) 및 단축률(FS)을 도출하는 데 사용됩니다. |
| 전자현미경 고정액 | 서비스바이오(ServiceBio) | G1102 | 투과전자현미경 관찰을 위해 신선한 마우스 심장 조직을 고정하는 데 사용되었습니다. |
| 에탄올 | Sigma-Aldrich | E7023 | 투과 전자 현미경 시료 준비 과정 중 탈수를 위해 농도를 점진적으로 높여 사용함. |
| 우태아혈청 | Gibco, Thermo Fisher Scientific | 10099141 | H9c2 세포 배양 배지의 보충제로 10% 농도로 사용함. |
| H9c2 세포주 | Sunncell | RRID: CVCL_0286 | HG/PA 및 Lac-Phe 처리 실험을 위한 인비트로(in vitro) 심장 세포 모델로 사용됨. |
| 헤마톡실린 및 에오신 염색 | ServiceBio | G1005-1/2 | 심장 조직의 조직학적 평가에 사용됩니다. |
| 고지방 식이 (60 kcal% 지방) | Research Diets, Inc. | D12492 | 당뇨병성 심근병증 마우스 모델을 구축하기 위해 저용량 STZ와 함께 사용되었습니다. |
| 고해상도 명시야 현미경 | Leica | DM2500 | 염색된 심장 조직의 20배율 전체 슬라이드 이미징에 사용됨× 배율 |
| ImageJ | 미국 국립보건원 | 입력된 텍스트가 없습니다. 번역할 내용을 제공해 주시기 바랍니다. | 웨스턴 블롯 결과의 밀도 분석 정량화에 사용됩니다. |
| 이소플루레인 | Sigma-Aldrich | 792632 | 마우스 심초음파 검사 중 마취용으로 사용됨. |
| 이소프로필 알코올 | Sigma-Aldrich | I9516 | 냉동 심장 절편의 Oil Red O 염색 과정에서 60% 농도로 사용됨. |
| LD540 지질 염색 | Beyotime | C2050S-1 | 사용 시점 10 μM 세포 내 지질을 염색하기 위해. |
| 마손(Masson)’삼색 염색 (Trichrome stain) | 서비스바이오(ServiceBio) | G1006 | 심장 조직의 조직학적 염색에 사용됩니다. |
| N-락토일-페닐알라닌 (Lac-Phe) | MedChemExpress (MCE) | HY-146098 | DCM 마우스에 투여되었으며, HG/PA에 노출된 H9c2 세포를 처리하는 데 사용되었다. |
| Oil Red O 작업 용액 | 서비스바이오(ServiceBio) | G1015-100ML | 동결 심장 조직 절편 내의 지질을 염색하는 데 사용됩니다. |
| Omni-ECL 고효율 화학발광 키트 | EpiZyme | SQ203L | 웨스턴 블로팅 후 단백질 밴드의 화학발광 시각화에 사용됩니다. |
| 팔미트산 | Sigma-Aldrich | P0500 | HG/PA 처리 H9c2 세포 모델을 구축하기 위해 고농도 포도당과 함께 0.25mM 농도로 사용하였다. |
| 파라포름알데히드 | Sigma-Aldrich | P6148 | 4% 용액으로 조제하여 조직학적 염색 또는 지질 염색 전 심장 조직과 세포를 고정하는 데 사용한다. |
| 페니실린-스트렙토마이신 | Gibco, Thermo Fisher Scientific | 15140122 | H9c2 세포 배양 배지에서 1% 농도로 사용함. |
| 인산완충생리식염수 (PBS) | Gibco, Thermo Fisher Scientific | 10010023 | 염색 과정 중 세척액으로 사용되며, 세포 처리 실험에서 그에 상응하는 매질(vehicle)로 사용됩니다. |
| 프리즘 | GraphPad 소프트웨어 | 버전 8.0 | 실험 데이터의 통계 분석에 사용됩니다. |
| PVDF 전이 막, 0.45 μm | Thermo Fisher Scientific | 88518 | 웨스턴 블롯 분석 중 단백질의 전기영동 전이에 사용됩니다. |
| RNeasy Mini Kit | QIAGEN | 74104 | 마우스 심장 조직으로부터 총 RNA를 분리/정제하는 데 사용됨. |
| 염화나트륨 용액, 0.9% (생리식염수) | Sigma-Aldrich | S8776 | Lac-Phe를 용해하는 데 사용되었으며, 대조군 및 DCM 마우스의 매개체 대조군(vehicle control)으로 사용되었습니다. |
| SPSS | IBM | 버전 20.0 | 실험 데이터의 통계 분석에 사용됩니다. |
| 스트렙토조토신 (STZ) | Sigma-Aldrich | S0130 | 당뇨병성 심근병증 마우스 모델을 구축하기 위해 고지방 식이(HFD) 급여와 함께 투여되었습니다. |
| TBS Tween-20 완충액 (20×) | Thermo Fisher Scientific | 28360 | 웨스턴 블롯 분석 중 1차 및 2차 항체 배양 후 멤브레인을 세척하는 데 사용됩니다. |
| Tissue-Tek O.C.T. 화합물 | Sakura Finetek | 4583 | Oil Red O 염색을 위한 동결 절편 제작 전, 심장 조직을 포매하는 데 사용됩니다. |
| 투과전자현미경 | HITACHI | HT7800 | 마우스 심장 조직의 초미세구조 변화를 조사하는 데 사용됩니다. |
| TRIzol 시약 | Invitrogen | 15596026 | 마우스 심장 조직으로부터 총 RNA를 분리하는 데 사용됩니다. |
| VAHTS Universal V10 RNA-seq 라이브러리 제작 키트 | Vazyme | NR616-01 | 전사체 분석을 위한 RNA-seq 라이브러리 제작에 사용됩니다. |
| 밀 배아 응집소 (WGA) | 서비스바이오(ServiceBio) | W7024 | 심장 조직의 조직학적 평가에 사용됨. |
참고문헌
- Pan KL, Hsu YC, Chang ST, Chung CM, Lin CL. The role of cardiac fibrosis in diabetic cardiomyopathy: from pathophysiology to clinical diagnostic tools. Int J Mol Sci. 2023;24(10):8604.
- Saeedi P, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Zou R, et al. PGAM5-mediated PHB2 dephosphorylation contributes to diabetic cardiomyopathy by disrupting mitochondrial quality surveillance. Research. 2022;2022:0001.
- Jia G, DeMarco VG, Sowers JR. Insulin resistance and hyperinsulinaemia in diabetic cardiomyopathy. Nat Rev Endocrinol. 2016;12(3):144–53.
- Low Wang CC, Hess CN, Hiatt WR, Goldfine AB. Clinical update: cardiovascular disease in diabetes mellitus: atherosclerotic cardiovascular disease and heart failure in type 2 diabetes mellitus—mechanisms, management, and clinical considerations. Circulation. 2016;133(24):2459–502.
- Liu P, Zhang Z, Chen H, Chen Q. Pyroptosis: mechanisms and links with diabetic cardiomyopathy. Ageing Res Rev. 2024;94:102182.
- Park JJ. Epidemiology, pathophysiology, diagnosis and treatment of heart failure in diabetes. Diabetes Metab J. 2021;45(2):146–57.
- Gilca GE, et al. Diabetic cardiomyopathy: current approach and potential diagnostic and therapeutic targets. J Diabetes Res. 2017;2017:1310265.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. Int J Mol Sci. 2022;23(7):3587.
- Han X, et al. Cardiomyocyte OTUD1 drives diabetic cardiomyopathy via directly deubiquitinating AMPKα2 and inducing mitochondrial dysfunction. Nat Commun. 2025;16(1):666.
- Jia G, Hill MA, Sowers JR. Diabetic cardiomyopathy: an update of mechanisms contributing to this clinical entity. Circ Res. 2018;122(4):624–38.
- Yao Y, Yang B, Shi J. TiO(x)(OH)(4-2x) nanosheets with catalytic antioxidative activity alleviate oxidative injury in diabetic cardiomyopathy. J Am Chem Soc. 2025;147(4):3885–95.
- Seferovic PM, et al. Diabetic myocardial disorder: a clinical consensus statement of the Heart Failure Association of the ESC and the ESC Working Group on Myocardial & Pericardial Diseases. Eur J Heart Fail. 2024;26(9):1893–903.
- Wang H, et al. Inhibition of fatty acid uptake by TGR5 prevents diabetic cardiomyopathy. Nat Metab. 2024;6(6):1161–77.
- Zhao Y, et al. Ferroptosis: roles and molecular mechanisms in diabetic cardiomyopathy. Front Endocrinol. 2023;14:1140644.
- Nakamura M. Lipotoxicity as a therapeutic target in obesity and diabetic cardiomyopathy. J Pharm Pharm Sci. 2024;27:12568.
- Nakamura M, et al. Glycogen synthase kinase-3α promotes fatty acid uptake and lipotoxic cardiomyopathy. Cell Metab. 2019;29(5):1119–34.e12.
- Ritchie RH, Abel ED. Basic mechanisms of diabetic heart disease. Circ Res. 2020;126(11):1501–25.
- Thakur M, Tupe RS. Lipoxin and glycation in SREBP signaling: insight into diabetic cardiomyopathy and associated lipotoxicity. Prostaglandins Other Lipid Mediat. 2023;164:106698.
- Dhar A, et al. A comprehensive review of the novel therapeutic targets for the treatment of diabetic cardiomyopathy. Ther Adv Cardiovasc Dis. 2023;17:17539447231210170.
- Li VL, et al. An exercise-inducible metabolite that suppresses feeding and obesity. Nature. 2022;606(7915):785–90.
- Xiao S, et al. Lac-Phe mediates the effects of metformin on food intake and body weight. Nat Metab. 2024;6(4):659–69.
- Ying W, et al. N-lactoyl-phenylalanine modulates lipid metabolism in microglia/macrophage via the AMPK-PGC1α-PPARγ pathway to promote recovery in mice with spinal cord injury. J Neuroinflammation. 2025;22(1):167.
- Sha L, et al. N-Lac-Phe ameliorates myocardial cell death by improving mitochondrial dysfunction, ultimately improving TAC-induced heart failure. Cardiovasc Drugs Ther. 2026;40:1391–401.
- Ke J, Pan J, Lin H, Gu J. Diabetic cardiomyopathy: a brief summary on lipid toxicity. ESC Heart Fail. 2023;10(2):776–90.
- PubChem. PubChem. Available from: https://pubchem.ncbi.nlm.nih.gov/. Accessed August 15, 2026.
- Liu Y, Yang X, Gan J, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164.
- GeneCards. GeneCards: the Human Gene Database. Version 6.1, June 17, 2026.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Jo Y, DeBose-Boyd RA. Post-translational regulation of HMG CoA reductase. Cold Spring Harb Perspect Biol. 2022;14(12):a041253.
- Steinberg GR, Hardie DG. New insights into activation and function of the AMPK. Nat Rev Mol Cell Biol. 2023;24(4):255–72.
- Istvan ES, Deisenhofer J. Structural mechanism for statin inhibition of HMG-CoA reductase. Science. 2001;292(5519):1160–4.
- Beaudry D, et al. Statin therapy in cardiovascular diseases other than atherosclerosis. Curr Atheroscler Rep. 2007;9(1):25–32.
- Koch CG. Statin therapy. Curr Pharm Des. 2012;18(38):6284–90.
- Dewanjee S, et al. Autophagy in the diabetic heart: a potential pharmacotherapeutic target in diabetic cardiomyopathy. Ageing Res Rev. 2021;68:101338.
- Madonna R, et al. Empagliflozin inhibits excessive autophagy through the AMPK/GSK3β signalling pathway in diabetic cardiomyopathy. Cardiovasc Res. 2023;119(5):1175–89.
- Madhavi YV, et al. Targeting AMPK in diabetes and diabetic complications: energy homeostasis, autophagy and mitochondrial health. Curr Med Chem. 2019;26(27):5207–29.
- Fang C, et al. The AMPK pathway in fatty liver disease. Front Physiol. 2022;13:970292.
- Liu S, et al. AICAR-induced activation of AMPK inhibits TSH/SREBP-2/HMGCR pathway in liver. PLoS One. 2015;10(5):e0124951.
- Zhou H, et al. Empagliflozin rescues diabetic myocardial microvascular injury via AMPK-mediated inhibition of mitochondrial fission. Redox Biol. 2018;15:335–46.
- Lu QB, et al. METRNL ameliorates diabetic cardiomyopathy via inactivation of cGAS/STING signaling dependent on LKB1/AMPK/ULK1-mediated autophagy. J Adv Res. 2023;51:161–79.
- Wang D, et al. FGF1(ΔHBS) prevents diabetic cardiomyopathy by maintaining mitochondrial homeostasis and reducing oxidative stress via AMPK/Nur77 suppression. Signal Transduct Target Ther. 2021;6(1):133.
- He L. Metformin and systemic metabolism. Trends Pharmacol Sci. 2020;41(11):868–81.
- Yang F, et al. Metformin inhibits the NLRP3 inflammasome via AMPK/mTOR-dependent effects in diabetic cardiomyopathy. Int J Biol Sci. 2019;15(5):1010–9.
- Regitz-Zagrosek V, Gebhard C. Gender medicine: effects of sex and gender on cardiovascular disease manifestation and outcomes. Nat Rev Cardiol. 2023;20(4):236–47.
- Evrony GD, Hinch AG, Luo C. Applications of single-cell DNA sequencing. Annu Rev Genomics Hum Genet. 2021;22:171–97.
- Verboom K, et al. Smarter single cell total RNA sequencing. Nucleic Acids Res. 2019;47(16):e93.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공