본 프로토콜은 지질 대사, 염증 반응, 산화 스트레스, 세포 사멸 및 AMP-activated protein kinase 관련 신호 전달을 평가함으로써, RAW264.7 대식세포에서 산화 저밀도 지질단백질로 유도된 기능 장애에 대한 paeoniflorin의 효과를 분석하여 대식세포 기능 장애의 기전 연구를 지원하는 방법을 설명합니다.
연구 논문
AMP-활성 단백질 키나아제의 관여를 통한 Paeoniflorin의 산화 저밀도 지질단백질 유도 RAW264.7 세포 기능 장애 완화 효과
* These authors contributed equally
이 논문에서
요약
초록
본 연구는 황금탕(HQT)과 그 생성 활성 성분 중 하나인 패오니플로린(PF)이 산화 저밀도 지질단백질(ox-LDL)로 유도된 대식세포 기능 장애에 미치는 보호 효과를 평가하고, AMPK(AMP-activated protein kinase) 관련 신호 전달을 조사하기 위해 네트워크 약리학과-in vitro 실험을 통합한 프로토콜을 설명합니다. 네트워크 약리학을 통해 동맥경화증(AS)과 관련된 HQT 표적 및 경로를 식별했습니다. ox-LDL로 유도된 RAW264.7 대식세포 모델을 사용하여 지질 축적, 콜레스테롤 유출, 아데노신 삼인산(ATP) 수치, 염증 반응, 미토콘드리아 기능, 산화 스트레스, 세포 사멸 및 대식세포 표현형 마커를 평가했습니다. 비세포독성 농도에서 HQT와 PF를 비교하였습니다. AMPK의 관여는 세포 열 이동 분석(CETSA), 약리학적 억제 및 소간섭 RNA(siRNA) 매개 넉다운을 통해 평가했습니다. ATP-binding cassette transporter A1 (ABCA1), liver X receptor alpha (LXRα), nuclear factor kappa B (NF-κB) 관련 단백질 및 세포 사멸 관련 단백질을 웨스턴 블롯팅으로 분석했습니다. 네트워크 약리학 분석 결과, TNF, PPARG, NOS3를 포함하여 지질 대사, 염증, AS 및 AMPK 신호 전달과 관련된 경로에 농축된 12개의 중복 표적을 식별했습니다. PF와 HQT 모두 AMPK 인산화를 증가시켰고, ox-LDL로 유도된 지질 축적 및 염증성 사이토카인 분비를 감소시켰으며, 콜레스테롤 유출을 개선했습니다. PF는 ATP 수치와 미토콘드리아 막 전위를 회복시켰으며, 활성 산소종 생성과 세포 사멸을 감소시키고 ABCA1 발현을 증가시켰습니다. CETSA 결과, PF 처리 후 AMPK의 열 안정성이 향상된 것으로 나타났습니다. AMPK의 약리학적 억제 또는 siRNA 매개 넉다운은 ABCA1 발현, 콜레스테롤 유출, 지질 축적, LXRα 활성화 및 NF-κB 억제에서 나타난 PF 관련 변화를 약화시켰습니다. PF는 CD86⁺ 대식세포를 감소시키고 CD206⁺ 대식세포를 증가시켰으며, AMPK 사일런싱은 이러한 변화를 부분적으로 역전시켰습니다. NF-κB 억제는 콜레스테롤 항상성과 대식세포 표현형 마커에 대해 유사한 효과를 나타냈습니다. 이 프로토콜은 ox-LDL로 유도된 대식세포 기능 장애 및 AMPK 관련 신호 전달에 대한 PF 및 HQT 매개 효과를 평가할 수 있게 합니다. 테스트 조건 하에서 PF는 ox-LDL로 유도된 지질 대사 기능 장애, 염증, 산화 스트레스, 미토콘드리아 기능 장애 및 세포 사멸로부터 RAW264.7 세포를 보호했으며, PF와 HQT는 대식세포 관련 평가지표에서 방향성적으로 유사한 변화를 생성했습니다.
서론
심혈관 질환은 전 세계적으로 주요한 이환율 및 사망 원인이며, 죽상경화증(AS)은 많은 심혈관 장애의 주요한 병리학적 근거가 됩니다1,2,3,4. AS는 지질 축적5, 만성 염증6, 그리고 동맥벽 내 플라크의 점진적인 형성이 특징입니다7. AS의 시작과 진행에는 혈관 내피 기능 장애, 산화 스트레스, 조절되지 않는 지질 대사 및 지속적인 면역 활성화가 관여합니다. 산화 저밀도 지질단백질(ox-LDL)은 혈관 내피 활성화와 단핵구 화학유인물질 단백질-1(MCP-1)과 같은 접착 분자 및 케모카인의 발현을 촉진하여, 단핵구가 동맥 내막으로 모집되는 것을 돕습니다8. 대식세포로 분화한 후, 이 세포들은 스캐빈저 수용체를 통해 ox-LDL을 섭취하며 점차 지질이 가득 찬 거품 세포로 발달합니다9. 이 과정은 활성 산소종(ROS)과 전염증성 사이토카인의 생성 증가를 동반하며10, 이는 혈관 염증과 산화적 손상을 더욱 악화시킵니다. 이러한 염증 매개체 중 종양괴사인자-알파(TNF-α)는 부분적으로 핵인자 카파 B(NF-κB) 경로의 활성화를 통해 거품 세포 형성 및 염증 신호 전달에 기여합니다11. 휴지 상태에서 NF-κB는 NF-κB 억제제 알파(IκB-α)와의 상호작용을 통해 세포질에 유지됩니다12. 자극을 받으면 IκB 키나아제(IKK)가 활성화되어 IκB-α의 분해를 유도하고, 이어 NF-κB가 핵 내로 이동하며13, 그곳에서 TNF-α, 인터루킨-1 베타(IL-1β), 인터루킨-6(IL-6)를 포함한 염증성 유전자의 전사를 촉진합니다14. 지질 저하 및 항염증 치료의 발전에도 불구하고 상당한 잔여 심혈관 위험이 남아 있으며, 이는 AS에 관여하는 여러 병리학적 과정을 동시에 표적으로 하는 추가적인 치료 전략 개발의 필요성을 강조합니다.
전통 중의학(TCM) 처방은 다양한 분자 표적 및 신호 전달 경로와의 상호작용을 통해 치료 효과를 나타낼 수 있는 여러 생물활성 성분을 포함하고 있습니다15,16. 이러한 다성분 및 다표적 작용 방식은 AS와 같은 복합 질환을 관리하는 데 잠재적인 이점을 제공할 수 있습니다. 황금탕(HQT)은 Scutellaria baicalensis(황금), Paeonia lactiflora(백작약), Glycyrrhiza uralensis(감초), 그리고 Ziziphus jujuba(대조)의 네 가지 약재로 구성된 고전적인 TCM 처방입니다17,18. 이들 약재에서 유래한 생물활성 성분들은 지질 대사를 조절하고 염증 반응을 완화하며 산화 스트레스를 감소시키는 것으로 보고되었습니다19. 그러나 HQT의 잠재적인 항동맥경화 효과의 기저에 있는 분자 표적과 신호 전달 경로는 아직 완전히 밝혀지지 않았습니다.
본 연구에서는 네트워크 약리학을 in vitro 실험과 결합하여 HQT 및 그 생성 성분 중 하나인 paeoniflorin (PF)이 ox-LDL로 유도된 대식세포 기능 장애에 대해 나타내는 보호 효과의 잠재적 기전을 조사하는 방법을 수립하였습니다. 먼저 네트워크 약리학 분석을 수행하여 HQT 및 AS와 관련된 후보 화합물, 치료 표적 및 신호 전달 경로를 식별하였습니다. AMP-activated protein kinase (AMPK) 신호 전달의 관여 예측과 기존에 발표된 근거를 바탕으로, 실험적 검증을 위해 PF를 선정하였습니다. RAW264.7 세포에서 지질 축적, 콜레스테롤 유출, 염증 반응, 에너지 대사, 미토콘드리아 기능, 산화 스트레스, 세포 사멸 및 대식세포 표현형 마커에 미치는 PF의 효과를 평가하였습니다. 또한 비독성 조건에서 HQT와 PF를 비교 분석하였습니다. 나아가, AMPK의 약리학적 억제 및 소형 간섭 RNA (siRNA) 매개 녹다운을 통해 ATP-binding cassette transporter A1 (ABCA1) 및 liver X receptor alpha (LXRα)/NF-κB 신호 전달의 AMPK 의존적 조절이 PF의 보호 효과에 기여하는지 확인하였습니다. 이러한 통합적 접근 방식은 ox-LDL로 유도된 대식세포 기능 장애에 대한 HQT 및 PF 매개 효과를 평가하고, 이 방법이 유사한 in vitro 모델에서 AMPK 관련 기전을 조사하는 데 적합한지 판단하는 틀을 제공합니다.
프로토콜
GSE100927은 공개적으로 접근 가능한 비식별 2차 데이터 세트로 분석되었습니다. 피험자를 모집하거나 새로운 인체 표본을 수집하지 않았으며, 직접적인 개인 식별 정보에 접근하지 않았으므로 추가적인 기관생명윤리위원회(IRB)의 승인 및 고지된 동의는 필요하지 않았습니다. 세포 실험에는 이미 확립된 마우스 대식세포 세포주만을 사용하였으며, 살아있는 동물, 1차 동물 조직, 인체 피험자 또는 1차 인체 재료를 포함하지 않았으므로 기관의 인체 또는 동물 윤리 승인은 해당 사항이 없었습니다.
HQT 생성 활성 화합물 및 표적 식별
2026년 7월 16일에 사용 가능한 버전을 통해 Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP), PubMed, China National Knowledge Infrastructure (CNKI) 및 UniProt 데이터베이스에 접속하였습니다. Scutellaria baicalensis Georgi, Paeonia lactiflora Pall., Glycyrrhiza uralensis Fisch. 및 Ziziphus jujuba Mill.을 라틴어, 영어 및 중국어 약재 이름으로 TCMSP 데이터베이스에서 각각 검색하였습니다. 경구 생체이용률(OB)이 30% 이상이고 약물 유사성(DL) 값이 0.18 이상인 화합물을 선정하였습니다. 두 가지 이상의 식물성 재료에서 확인된 중복 화합물은 화합물 이름과 해당 TCMSP 식별자를 사용하여 병합하였습니다.
PubMed에서 (“Huangqin Tang” OR “Huang-Qin-Tang” OR “Huang Qin Tang”) AND (constituent OR compound OR ingredient OR phytochemical OR target)라는 검색어를 사용하여 검색하였으며, CNKI에서는 “Huangqin Tang” AND (“chemical constituents” OR “active ingredients” OR “pharmacological targets”)를 사용하여 검색하였습니다. 2025년 12월 16일까지 발표된 논문들을 스크리닝하였습니다. 화합물 또는 타겟은 HQT 또는 4가지 식물 성분 중 하나와의 연관성이 명시적으로 보고된 경우에만 포함되었습니다. 추적 가능한 1차 근거가 없는 리뷰 논문, 이름이 명시되지 않은 화합물, 실험적 또는 데이터베이스 근거 없이 예측된 타겟은 제외되었습니다.
단백질 표적은 UniProt 데이터베이스의 식별자 매핑 도구를 사용하여 매핑하였으며, 생물종은 Homo sapiens (taxon identifier 9606)로 제한하였습니다. 승인된 인간 유전자 기호는 유지하였고, 매핑되지 않았거나 중복된 항목은 제거하였습니다. 중복이 제거된 화합물-표적 엣지 리스트를 Cytoscape 네트워크 시각화 소프트웨어(version 3.7.2)로 가져와 HQT 화합물-표적 네트워크를 구축하였습니다.
AS 관련 타겟의 식별 및 생물정보학적 분석
GeneCards, Online Mendelian Inheritance in Man (OMIM), Comparative Toxicogenomics Database (CTD) 및 Gene Expression Omnibus (GEO) 데이터베이스는 2026년 7월 16일 기준 가용 버전을 사용하여 접속하였습니다. GeneCards, OMIM 및 CTD 검색에는 “atherosclerosis”라는 용어가 사용되었습니다. 검색된 모든 기록의 중앙값 점수에 해당하는 Relevance Score가 ≥1.163인 GeneCards 유전자들만 유지하였습니다. OMIM 및 CTD에서는 직접적으로 기록된 AS 관련 유전자들만 포함하였습니다.
GEO에서 GSE100927 시리즈 매트릭스, 샘플 주석 파일 및 GPL17077 플랫폼 주석 파일을 다운로드하였습니다. 모든 104개의 인간 말초 동맥 샘플은 리포지토리의 표현형 메타데이터에 따라 AS 또는 대조군으로 분류되었으며, 동맥 위치에 따라 제외된 샘플은 없었습니다.
생물정보학 분석은 limma 패키지(버전 3.58.1), ggplot2 패키지(버전 3.4.4), ComplexHeatmap 패키지(버전 2.18.0), clusterProfiler 패키지(버전 4.10.1) 및 org.Hs.eg.db 패키지(버전 3.18.0)가 포함된 R 통계 소프트웨어(버전 4.3.2)를 사용하여 수행되었습니다. 프로브는 GPL17077 플랫폼 주석 파일을 사용하여 주석을 달았으며, 승인된 유전자 기호가 없는 프로브는 제거하였습니다. 동일한 유전자에 매핑되는 여러 프로브는 avereps 함수를 사용하여 평균값을 구했습니다. 99백분위수가 100을 초과하는 경우에만 log2(x + 1) 변환을 적용하였으며, 그렇지 않은 경우에는 제공된 로그 값을 그대로 유지하였습니다. 어레이는 분위수 정규화(quantile method)를 사용하여 정규화하였습니다.
샘플을 “Control” 및 “AS”로 부호화하였으며, model.matrix(~0 + group)을 사용하여 절편이 없는 설계 행렬을 생성하였다. lmFit, makeContrasts, contrasts.fit 및 eBayes 함수를 사용하여 선형 모델을 적합시켰다. topTable(number = Inf, adjust.method = “BH”)를 사용하여 모든 유전자를 추출하였다. 차별 발현 유전자는 절대 log2 fold change가 1보다 크고 공칭 p 값이 <0.05인 유전자로 정의하였으며, Benjamini–Hochberg 보정 p 값은 전체 출력 결과에 유지하였다.
Volcano plot은 log2 fold-change 값과 −log₁₀ nominal p 값을 사용하여 생성하였습니다. Heatmap은 선택된 유전자들에 대해 행별 z-score 표준화를 거친 후 작성하였습니다. 모든 샘플에 동일한 전처리 및 시각화 설정을 적용하였습니다.
GeneCards, OMIM, CTD 및 GEO에서 얻은 유전자는 UniProt 데이터베이스를 사용하여 표준화되었습니다. 유전자 식별자는 대문자로 된 승인된 유전자 기호로 변환되었으며, 각 데이터 소스 내에서 공란, 매핑되지 않은 항목 및 중복 항목은 제거되었습니다. 합의된 AS 관련 타겟은 4개 데이터 소스 중 최소 2개에서 확인된 유전자로 정의되었습니다. R의 intersect() 함수를 사용하여 표준화된 HQT 타겟 세트와 공유되는 유전자를 식별하였습니다.
중첩되는 HQT-AS 표적들을 2025년 12월 16일에 접속한 STRING 데이터베이스(버전 12.0)에 제출하였다. 분석 대상은 Homo sapiens로 제한하였으며, 최소 상호작용 점수는 0.700으로 설정하고 모든 증거 채널을 유지하였으며, 1차 또는 2차 쉘 상호작용 인자는 추가하지 않았다. 상호작용 테이블을 내보낸 후 이를 무방향 네트워크로 Cytoscape에 가져왔다. 셀프 루프와 중복 엣지를 제거하였으며, CentiScaPe 플러그인(버전 2.2)을 사용하여 연결 중심성(degree), 매개 중심성(betweenness) 및 근접 중심성(closeness centrality) 값을 계산하였다. 허브 유전자는 세 가지 중심성 측정값이 모두 해당 네트워크의 평균값을 초과하는 유전자로 정의하였다.
승인된 유전자 기호는 다음을 사용하여 Entrez 식별자로 변환되었습니다. 비트리플렉스(biTR) 기능. 매핑되지 않았거나 중복된 식별자는 제거되었으며, 주석 처리된 데이터셋에서 성공적으로 매핑된 모든 유전자를 배경군으로 사용하였다. 모든 온톨로지에 대해 유전자 온톨로지(Gene Ontology) 풍부성 분석을 다음을 사용하여 수행하였다. enrichGO (온톨로지(ontology) = “ALL”), 그리고 Kyoto Encyclopedia of Genes and Genomes 경로 풍부성 분석을 다음을 사용하여 수행하였다 enrichKEGG (생물체 = “hsa”). Benjamini-Hochberg 보정을 적용하였으며, 보정된 p-값이 기반으로 농축된 용어들을... p 값 <0.05이 유지되었습니다.
전체 전처리, 차등 발현, 시각화 및 농축 분석 스크립트는 TCMSP analysis.R 및 Transcriptome analysis.R로 제공되었습니다. 네트워크 분석 결과와 기존 문헌 근거를 바탕으로 paeoniflorin (PF), liquiritin, baicalin, wogonoside 및 glycyrrhizic acid가 HQT의 주요 성분으로 확인되었습니다20. PF는 지질 대사 및 AMP-activated protein kinase 신호 전달 조절에 관여하는 것으로 보고된 역할 때문에 대표 화합물로 선정되었습니다.
HQT 추출물 조제
인증된 S. baicalensis Georgi, P. lactiflora Pall., G. uralensis Fisch. 및 Z. jujuba Mill.을 건조 중량비 3:2:2:3으로 혼합하였다. 탈이온수를 1:10 (w/v) 비율로 첨가하고 혼합물을 1시간 동안 환류시켰다. 추출물은 뜨거운 상태에서 여과하였으며, 잔여물은 이전 문헌19에 기술된 바와 같이 탈이온수를 1:8 (w/v) 비율로 사용하여 1시간 동안 2차 추출하였다. 여과액을 합쳐 60°C의 감압 상태에서 농축한 후, 항량이 될 때까지 진공 건조하였으며, 추출 수율은 36.34%였다. 건조된 추출물을 멸균수에 1 g/mL 농도로 용해하고 0.22 µm 멤브레인으로 여과한 후, 소분하여 사용 시까지 −20°C에서 보관하였다. 실험 농도는 배양액 1 mL당 건조 추출물 마이크로그램으로 표시하였다.
세포 배양, 형질전환 및 처리
RAW264.7 마우스 대식세포를 10% fetal bovine serum, 100 U/mL penicillin, 100 µg/mL streptomycin이 첨가된 high-glucose Dulbecco's modified Eagle medium에서 5% CO2가 포함된 37°C 습윤 배양기 내에서 배양하였습니다. 세포는 약 80%의 confluence에 도달했을 때 계대 배양하였으며, 해동 후 passage 5에서 20 사이의 세포만을 사용하였습니다. 세포주의 정체성은 보관소 인증서를 통해 확인하였으며, 세포의 형태, 부착 및 성장 특성을 정기적으로 모니터링하였습니다. 마이코플라즈마 음성인 배양물만을 사용하였으며, 오염, 비정상적 성장, 심한 공포 형성, 광범위한 잔해 발생, 현저한 탈락 또는 불균일한 세포 분포가 나타나는 배양물은 폐기하였습니다.
AMPKα1 억제를 위해, 세포를 6-well plate의 웰당 2 mL 배지에 2 × 10⁵ cells/well 밀도로 분주하고, 세포 밀도가 50%–60%가 되었을 때 transfection을 수행하였다. 총 100 pmol의 si-AMPKα1 또는 non-targeting siRNA를 125 µL의 저혈청 배지에 희석하였고, 5 µL의 지질 기반 transfection 시약을 별도로 125 µL의 저혈청 배지에 희석하였다. 실온에서 15분간 배양한 후, 두 용액을 혼합하여 세포에 한 방울씩 첨가하여 최종 siRNA 농도가 50 nM이 되도록 하였다. si-AMPKα1 서열은 다음과 같다: sense, 5′-CCCATCTTATAGTTCAACCAT-3′, antisense, 5′-ATGGTTGAACTATAAGATGGG-3′. 6시간 후 배지를 교체하였으며, ox-LDL 및 PF 처리 전까지 총 48시간 동안 배양을 지속하였다. AMPKα1 넉다운 여부는 qRT-PCR과 western blotting으로 확인하였으며, 음성 대조군 siRNA 그룹 대비 유의미한 감소가 나타난 실험 결과만을 후속 분석에 포함하였다.
PF, dorsomorphin 및 BAY 11-7082는 dimethyl sulfoxide (DMSO)로 준비하였으며, HQT는 멸균수로 준비하였다. 모든 처리군의 최종 DMSO 농도는 ≤0.1%로 유지하였으며, 대조군에는 그에 해당하는 용매(vehicle)를 첨가하였다.
농도 스크리닝을 위해 세포를 0, 1, 5, 10, 20 또는 40 µM의 PF 또는 0, 12.5, 25, 50, 100 또는 200 µg/mL의 HQT로 24시간 동안 처리하였습니다. 이후 세포 생존율과 AMPK 인산화를 평가하였습니다. 이 결과에 기반하여, 이후의 모든 실험에는 20 µM PF와 100 µg/mL HQT를 선택하였습니다.
PF와 HQT를 비교하기 위해, 처리군은 대조군, 50 µg/mL ox-LDL 처리군, ox-LDL 및 20 µM PF 처리군, 그리고 ox-LDL 및 100 µg/mL HQT 처리군으로 구성하였다. 모든 군은 24시간 동안 배양하였다. AMPK의 약리학적 억제를 위해, ox-LDL 및 PF 처리군에 24시간 공동 처리 전 10 µM dorsomorphin을 1시간 동안 전처리하였다21,22.
AMPK의 유전적 억제를 위해, 세포에 si-NC 또는 si-AMPKα1을 48시간 동안 transfection한 후 Control, ox-LDL, PF 또는 si-AMPK plus PF 그룹으로 배정하였습니다. PF 및 si-AMPK plus PF 그룹에는 50 µg/mL ox-LDL과 20 µM PF를 24시간 동안 함께 처리하였습니다. ox-LDL 그룹에는 ox-LDL만 처리하였으며, Control 그룹에는 그에 해당하는 vehicle을 처리하였습니다.
NF-κB 신호 전달의 관여도를 평가하기 위해, 추가 처리군에 50 µg/mL ox-LDL을 24 h 동안 노출시키기 전 10 µM BAY 11-7082로 1 h 동안 전처리하였다23,24,25. 이후 ABCA1 발현, 콜레스테롤 유출, 지질 축적, 그리고 CD86⁺ 및 CD206⁺ 대식세포의 비율을 측정하였다.
별도로 명시되지 않는 한, 세포는 처리 12–16 h 전에 파종되었으며, 각 처리군마다 3개의 반복 웰(well)을 사용하였다. 세포 생존능 스크리닝의 경우 농도당 5개의 기술적 반복 웰을 포함하는 5회의 독립적인 실험으로 구성되었으며, 그 외의 모든 분석은 서로 다른 날에 독립적으로 배양된 3개의 세포 준비물을 사용하여 수행되었다(n = 3). 각 독립 실험에 대한 단일 값을 얻기 위해 기술적 반복, 이중 측정 및 다수의 현미경 시야를 계층적으로 평균화하였다.
균일하게 부착되었으며 약 60%–80%의 합류도(confluency)를 보이거나, 형질전환 실험의 경우 50%–60%의 합류도를 보이는 배양물만을 처리에 사용하였습니다. 필수 재료, 소프트웨어 및 장비는 함께 제공된 재료 표에 나열되어 있습니다.
세포 생존능 분석 및 정량적 실시간 PCR
RAW264.7 세포를 96-well 플레이트의 well당 5 × 10³ cells 농도로 분주하고 하룻밤 동안 부착시켰다. 세포를 섹션 4에 기술된 PF 및 HQT 농도로 24시간 동안 처리했다. 배양액을 100 µL의 세포 생존율 분석용 작업 용액으로 교체한 후, 37°C 암소에서 2시간 동안 배양하여 세포 생존율을 측정했다. 흡광도는 450 nm에서 측정했다.
시약만 포함된 공백 웰을 포함하였으며, 모든 측정값에서 해당 흡광도 값을 뺐습니다. 각 농도별로 5개의 기술적 반복 웰에서 얻은 흡광도 값을 평균 냈습니다. 세포 생존율은 (처리군 흡광도/대조군 흡광도) × 100으로 계산하였으며, 처리하지 않은 대조군을 100%로 정의하였습니다. 5회의 독립적인 실험을 수행하였습니다.
페놀-구아니디늄 RNA 추출 시약을 사용하여 총 RNA를 추출하였으며, A260/A280 값이 1.8에서 2.0 사이인 샘플만 사용하였습니다. 1 µg의 총 RNA를 역전사하였으며, 각 20 µL 정량 PCR (qPCR) 반응에는 10 µL의 2× SYBR Green 마스터 믹스, 10 µM 정방향 및 역방향 프라이머 각각 0.4 µL, 2 µL의 cDNA 및 7.2 µL의 nuclease-free water를 포함하였습니다.
Quantitative PCR은 95°C에서 30 s 동안 수행되었으며, 이어서 95°C에서 10 s, 60°C에서 30 s로 구성된 40 사이클을 반복하였다. 이후 65°C에서 95°C까지 멜팅 곡선 분석(melting-curve analysis)을 수행하였다. 프라이머 서열은 다음과 같다: Prkaa1 정방향, 5′-ACCAGAAGCGGTGCCGGAAAGCTGG-3′; Prkaa1 역방향, 5′-TGTAGTCGGTTTATGCAGCAACGAG-3′; Gapdh 정방향, 5′-CGACTTCAACAGCAACTCCCACTCTTCC-3′; Gapdh 역방향, 5′-TGGGTGGTCCAGGGTTTCTTACTCCTT-3′.
각 샘플은 기술적 3반복으로 분석하였으며, 무형태 컨트롤(no-template control)을 포함하였습니다. 단일 융해 피크가 관찰되고 무형태 컨트롤에서 증폭이 검출되지 않은 경우에만 프라이머 쌍을 사용하였습니다. 상대적인 Prkaa1 발현량은 Gapdh를 참조 유전자로 하여 2−ΔΔCt 방법을 사용하여 계산하였으며, si-NC 그룹의 발현량을 1로 정규화하였습니다.
지질 축적, ATP 수치 및 콜레스테롤 유출 측정
Oil Red O 염색을 위해, RAW264.7 세포를 24-well 플레이트의 well당 500 µL 배지에 5 × 10⁴ cells의 밀도로 분주하였다. 처리 후, 세포를 500 µL의 인산완충식염수(PBS)로 2회 세척하고, 500 µL의 10% 중성 완충 포르말린으로 20분 동안 고정한 후, PBS로 2회 세척하고 500 µL의 60% isopropanol로 1회 헹구었으며, 새로 조제한 500 µL의 Oil Red O 작업 용액으로 상온에서 15분 동안 염색하였다. 염색된 세포는 배경이 깨끗해질 때까지 증류수로 세척하였다. 섹션 8에 설명된 대로 각 well에서 5개의 현미경 시야를 확보하였으며, 고정된 색상 임계값을 사용하여 Oil Red O 양성 영역을 '양성 영역 / 전체 시야 영역 × 100'으로 계산하였다. 대조군 세포에서는 염색이 최소한으로 나타나고, ox-LDL 처리 세포에서는 뚜렷한 세포 내 지질 droplet이 관찰되며, 세포 외 배경이 깨끗한 경우에만 염색 결과를 인정하였다. 확산된 침전물, 불균일한 염색 또는 광범위한 세포 탈락이 나타나는 샘플은 제외하고 염색 과정을 반복하였다.
ATP 측정을 위해, 6-well plate의 well당 2 mL의 배양 배지에 5 × 10⁵ cells의 세포를 분주하였다. 처리 후, 세포를 ice-cold PBS 1 mL로 2회 세척하고, ATP assay lysis buffer 200 µL로 용해시킨 후 4°C에서 12,000 × g로 5분간 원심분리하였다. 상층액 10 µL를 ATP detection reagent 100 µL와 혼합하여 화학발광을 측정하였다. ATP 농도는 표준 곡선을 이용하여 계산하였다. 각 용해물은 2회 반복 측정하였으며, 3회의 독립적인 실험에서 각각 3개의 반복 well을 분석하였다.
콜레스테롤 유출 분석을 위해, 24-웰 플레이트의 웰당 500 µL의 배양액에 5 × 10⁴개의 세포를 분주하였습니다. 처리 후, 세포에 1 µg/mL NBD-cholesterol을 24시간 동안 처리하고, 500 µL의 PBS로 3회 세척한 다음, 10 µg/mL apolipoprotein A-I 또는 50 µg/mL 고밀도 지질단백질(high-density lipoprotein)이 포함된 500 µL의 무혈청 배지에서 4시간 동안 배양하였습니다. 배양 상층액을 수집하여 1,000 × g에서 5분 동안 원심분리하였습니다. 세포를 PBS로 2회 세척하고 200 µL의 용해 버퍼(lysis buffer)로 용해시켰습니다. 상층액과 용해액의 형광을 각각 485 nm 및 535 nm의 들뜸 및 방출 파장에서 2회 반복 측정하였습니다. NBD-cholesterol을 처리하지 않은 웰에서 얻은 형광 값을 뺸 후, 각 콜레스테롤 수용체에 대해 (상층액 형광 / (상층액 형광 + 용해액 형광)) × 100으로 콜레스테롤 유출량을 계산하였습니다.
염증성 사이토카인, 미토콘드리아 막 전위, 활성 산소종 및 세포 사멸의 측정
효소 결합 면역 흡착 분석법(ELISA)을 위해, RAW264.7 세포를 6-well 플레이트의 2 mL 배지에 well당 5 × 10⁵ cells로 분주하였다. 24시간 처리 후, 배양 상층액을 수집하여 4°C에서 1,000 × g로 10분간 원심분리하였으며, 즉시 분석하거나 소분하여 분석 전까지 −80°C에 보관하였다. 반복적인 동결-해동 사이클은 피하였다. 마우스 TNF-α, IL-6 및 IL-1β 농도는 샌드위치 ELISA 키트를 사용하여 측정하였다. 모든 시약은 사용 전 실온에서 평형을 맞추었다. 표준 시료, 공시료 및 샘플을 well당 100 µL씩 중복으로 로딩하였다. 각 항체 배양 후, well을 300 µL의 세척 버퍼로 5회 세척하였다. 테트라메틸벤지딘 기질을 사용하여 발색시켰으며, 제조사의 지침에 따라 반응을 중지시키고 450 nm에서 흡광도를 측정하였다. 사이토카인 농도는 4-매개변수 로지스틱 표준 곡선을 통해 계산하여 pg/mL로 표기하였다. 중복 측정값의 변동 계수가 15%보다 큰 경우 재측정하였으며, 분석 범위를 초과하는 샘플은 희석 후 재분석하였다.
미토콘드리아 막 전위 분석을 위해, 세포를 24-웰 플레이트의 웰당 500 µL 배지 속에 5 × 10⁴ cells/well 밀도로 분주하였다. 처리 후, 세포를 2회 세척하고 500 µL의 JC-1 작동 용액과 함께 37°C 암실에서 20분 동안 배양하였다. 이후 세포를 염색 버퍼로 2회 세척하였으며, 동일한 현미경 시야에서 각각 525/590 nm 및 490/530 nm의 여기/방출 파장으로 적색 응집체 및 녹색 단량체 형광을 측정하였다. 이후 배경값을 뺀 녹색 대 적색 형광 비율을 계산하였다.
세포 내 활성 산소종(ROS) 분석을 위해, 24-well 플레이트의 well당 5 × 10⁴ cells의 밀도로 세포를 분주하였다. 처리 후, 세포를 무혈청 배지로 2회 세척하고, 200 µL의 배양 배지에 희석된 10 µL의 2′,7′-dichlorodihydrofluorescein diacetate와 함께 37°C 암실에서 2시간 동안 배양하였다. 배양 중 5분마다 플레이트를 가볍게 흔들어 주었다. 이후 세포를 3회 세척하고, 들뜸 및 방출 파장을 각각 488 및 525 nm로 설정하여 형광을 측정하였다.
세포 사멸 분석을 위해, 세포를 24-well 플레이트의 웰당 5 × 10⁴ cells 밀도로 분주하였다. 처리 후, 세포를 두 번 세척하고 4% paraformaldehyde로 20분 동안 고정한 다음, 세 번 세척하고 PBS 내 0.1% Triton X-100으로 10분 동안 투과화하였다. 총 250 µL의 terminal deoxynucleotidyl transferase dUTP nick-end labeling (TUNEL) 반응 혼합물을 첨가하고, 가습된 암실의 37°C에서 60분 동안 세포를 배양하였다. 세 번의 세척 후, 4′,6-diamidino-2-phenylindole (DAPI)로 5분 동안 핵을 대조 염색하였다. 각 실험에는 terminal deoxynucleotidyl transferase가 결여된 음성 대조군을 포함하였다.
보존된 미토콘드리아 막 전위는 주로 점상으로 나타나는 적색 JC-1 형광으로 확인되었으며, 막 탈분극은 증가된 확산성 녹색 형광으로 확인되었습니다. ROS 이미지는 녹색 형광이 세포 내에 존재하고 침전물이나 신호 포화가 없는 경우에만 채택되었습니다. 세포 사멸 염색은 적색 형광이 주로 핵에 나타나고 효소가 제외된 대조군에서 배경 신호가 최소한으로 나타난 경우에만 채택되었습니다.
이미지 획득 및 정량 분석
명시야 및 형광 이미지는 디지털 카메라와 20× 대물렌즈가 장착된 도립 형광 현미경을 사용하여 획득하였습니다. 각 웰(well)에서 중앙 영역 하나와 주변 영역 네 곳을 포함하여 서로 겹치지 않는 5개의 시야를 수집하였습니다. 처리 조건이 공개되기 전, 긁힘, 웰 가장자리, 박리된 세포 시트 또는 큰 부스러기가 포함된 영역은 제외하였습니다. 자동 노출 및 게인(gain) 설정은 비활성화하였습니다. 가장 강한 형광 신호가 포화되지 않도록 대표적인 대조군(Control) 및 ox-LDL 웰을 사용하여 조명 강도, 노출 시간, 게인, 대물렌즈 및 이미지 크기를 설정하였습니다. 각 독립 실험 내의 모든 처리 그룹에 대해 동일한 이미지 획득 설정을 유지하였습니다. 현미경 스테이지를 이동하지 않고 쌍을 이루는 적색 및 녹색 형광 채널을 획득하였습니다. 조사자가 처리 할당 내용을 알지 못하는 상태에서 ImageJ 이미지 분석 소프트웨어를 사용하여 보정되지 않은 이미지를 분석하였습니다. 세포가 없는 영역의 배경 신호를 차감하였으며, 대표적인 대조군 및 ox-LDL 이미지를 사용하여 이미지 임계값(threshold)을 설정하였습니다. 동일한 임계값이 각 실험 전체에 적용되었습니다. 수치 제시를 위해 전체 이미지에 대한 균일한 조정만 적용하였습니다. JC-1 결과는 녹색 대 적색 형광 비율로 표시하였습니다. 활성 산소종(ROS) 및 세포 사멸 신호는 분석 면적으로 정규화하여 배경을 차감한 평균 형광으로 표시하였으며, 상대적 분석을 위해 대조군 그룹의 평균값을 1로 정규화하였습니다. 각 웰에 대해 5개의 현미경 시야를 평균하여 하나의 값을 얻었고, 3개 웰의 값을 평균하여 각 독립 실험에 대한 하나의 값을 생성하였습니다.
웨스턴 블롯 분석
RAW264.7 세포를 6-well 플레이트의 웰당 2 mL 배지에 5 × 10⁵ cells 농도로 분주하였으며, 각 웰에서 하나의 단백질 용해물을 준비하였다. 전세포 단백질 추출을 위해, 세포를 얼음처럼 차가운 PBS로 2회 세척한 후, 프로테아제 및 포스파타아제 억제제가 첨가된 radioimmunoprecipitation assay (RIPA) 버퍼를 사용하여 얼음 위에서 30분간 용해시킨 뒤, 4°C에서 12,000 × g로 15분간 원심분리하였다. 핵 단백질 추출을 위해, 세포를 10 mM HEPES, 10 mM KCl, 1.5 mM MgCl2, 0.5 mM dithiothreitol 및 프로테아제/포스파타아제 억제제가 포함된 버퍼에 현탁시켜 얼음 위에서 15분간 배양하였다. 비이온성 계면활성제를 최종 농도 0.5%가 되도록 첨가한 후, 짧게 볼텍싱하고 4°C에서 700 × g로 5분간 원심분리하였다. 핵 펠렛을 20 mM HEPES, 420 mM NaCl, 1.5 mM MgCl2, 0.2 mM EDTA, 25% glycerol, 0.5 mM dithiothreitol 및 프로테아제/포스파타아제 억제제가 포함된 버퍼에서 간헐적으로 혼합하며 얼음 위에서 30분간 추출하였다. 이후 추출물을 4°C에서 14,000 × g로 15분간 원심분리하였다.
단백질 농도는 bicinchoninic acid assay를 사용하여 결정하였다. 동일한 양의 단백질(25–30 µg)을 각 레인에 로딩하고 95°C에서 5분 동안 가열한 후, 8%–12% sodium dodecyl sulfate–polyacrylamide 겔에서 분리하고 냉각 조건 하에 100 V에서 90분 동안 0.45 µm polyvinylidene fluoride 막으로 전이시켰다. 전체 단백질이 포함된 막은 5% non-fat milk로 블로킹하였으며, 인산화 단백질이 포함된 막은 polysorbate 20가 포함된 Tris-buffered saline로 조제한 5% bovine serum albumin으로 1시간 동안 블로킹하였다. 막을 AMPK, phosphorylated AMPK, BAX, BCL-2, caspase-3, ABCA1, p65, phosphorylated p65, LXRα, IκB-α, phosphorylated IκB-α 및 histone H3에 대한 1차 항체와 함께 4°C에서 하룻밤 동안 반응시켰으며, 희석 배수는 histone H3의 1:2,000을 제외하고 모두 1:1,000으로 사용하였다. GAPDH 및 β-actin 항체는 1:5,000으로 희석하여 사용하였다. 1차 항체 반응 후, 막을 10분씩 3회 세척하고 1:5,000으로 희석한 horseradish peroxidase-conjugated goat anti-rabbit 또는 goat anti-mouse 2차 항체와 함께 1시간 동안 반응시켰다. 추가 세척 후, enhanced chemiluminescence detection reagent를 사용하여 단백질 밴드를 검출하였다. 모든 표적 단백질에 대해 포화되지 않은 밴드가 생성되는 최단 노출 시간을 선택하였으며, 동일한 막에 있는 모든 그룹에 대해 동일한 노출 및 이미지 획득 설정을 유지하였다.
단백질 밴드는 ImageJ 이미지 분석 소프트웨어를 사용하여 국소 배경 감산 후 정량화되었습니다. Total AMPK, ABCA1, BAX, BCL-2, caspase-3, IκB-α 및 phosphorylated IκB-α는 GAPDH 또는 β-actin으로 정규화되었습니다. Phosphorylated AMPK 대 total AMPK 및 phosphorylated p65 대 total p65 비율을 계산하였습니다. 핵 내 LXRα, p65 및 phosphorylated p65 수준은 histone H3로 정규화하였으며, 각 독립적인 실험 내 Control 또는 si-NC 그룹의 평균값을 1로 정규화하였습니다. 예상 분자량에서 뚜렷한 밴드가 나타나고, 배경이 낮으며, 신호가 포화되지 않고, 로딩 컨트롤이 일정한 블롯만 분석에 포함되었습니다. 레인이 왜곡되거나 단백질 전이가 불완전한 경우, 배경이 과도하거나 신호가 포화된 멤브레인은 재처리하거나 제외하였습니다. 별도로 준비된 단백질 용해물을 사용하여 세 번의 독립적인 실험을 수행하였습니다.
세포 열 이동 분석법
RAW264.7 세포를 100 mm 배양 접시에 10 mL의 배양액과 함께 3 × 10⁶ cells 농도로 분주하고 하룻밤 동안 배양했습니다. 세포를 수확하여 얼음처럼 차가운 PBS로 두 번 세척한 후, 0.4% NP-40 및 프로테아제/포스파타아제 억제제가 포함된 PBS 내에서 얼음 위에서 30분 동안 용해시켰으며, 4°C에서 20,000 × g로 20분 동안 원심분리했습니다. 정제된 용해물의 단백질 농도를 2 mg/mL로 조정했습니다. 정제된 용해물을 동일한 부피로 나누어 20 µM PF 또는 0.1% DMSO와 함께 상온에서 1시간 동안 반응시켰습니다. 각 시료를 50 µL씩 분주한 후 37°C, 41°C, 45°C, 49°C, 53°C, 57°C, 61°C, 65°C, 69°C 또는 73°C에서 3분 동안 가열했습니다. 시료를 즉시 4°C에서 3분 동안 냉각시킨 후, 4°C에서 20,000 × g로 20분 동안 원심분리했습니다. 수용성 상층액을 동일한 부피로 취해 western blotting으로 분석하여 AMPK 및 인산화된 AMPK를 검출했습니다. 각 온도에서 얻은 신호를 100%로 정의된 해당 37°C 신호에 대해 표준화했습니다. 수용성 단백질의 양을 온도의 함수로 도식화하였으며, 독립적으로 배양된 세포를 사용하여 전체 분석을 세 번 반복했습니다. 37°C 참조 밴드가 검출되고, 온도가 상승함에 따라 수용성 AMPK가 점진적으로 소실되며, 최고 온도에서 심각한 레인 왜곡이나 수용성 단백질의 비정상적인 증가가 나타나지 않은 실험 결과만을 분석에 포함했습니다.
유세포 분석
RAW264.7 세포를 6-well 플레이트의 well당 2 mL 배지에 5 × 10⁵ cells 농도로 분주하였다. 처리 후, 세포를 ice-cold PBS로 2회 세척하고, 2% fetal bovine serum과 2 mM EDTA가 포함된 PBS 내에서 cell scraper를 사용하여 부드럽게 떼어냈다. 세포 현탁액을 4°C에서 400 × g로 5분간 원심 분리한 후, PBS로 2회 세척하고 샘플당 약 1 × 10⁶ cells 농도로 조정하였다. 세포를 fixable amine-reactive viability dye로 상온의 암소에서 20분간 염색하였다. 세척 후, anti-mouse CD16/32 항체를 사용하여 4°C에서 15분간 Fc 수용체를 블로킹하였다. 1 × 10⁶ cells당 항체별로 5 µL씩 CD45, CD11b, F4/80, CD86 및 CD206에 대한 형광 표지 항체를 첨가하고, 4°C의 암소에서 30분간 배양하였다.
항체 염색 후, 세포를 두 번 세척하고 300 µL의 염색 완충액에 재현탁하여 유세포 분석기로 분석하였다. 각 샘플당 최소 50,000개의 총 이벤트와, 가능한 경우 최소 20,000개의 생존 CD45⁺CD11b⁺F4/80⁺ 이벤트를 획득하였다. 비염색 대조군, 단일 염색 보정 대조군, 그리고 CD86 및 CD206에 대한 fluorescence-minus-one 대조군을 포함하였다. 각 실험 내의 모든 처리군에 동일한 보정 행렬을 적용하였다. 전방 산란광(forward-scatter) 및 측방 산란광(side-scatter) 특성을 기반으로 데브리스(debris)를 제외하였으며, 전방 산란광 면적 대비 전방 산란광 높이를 이용하여 더블렛(doublets)을 제외하였다. 생존 염색약 음성 세포를 식별하고 CD45⁺ 세포를 게이팅하였으며, 대식세포는 CD11b⁺F4/80⁺ 세포로 정의하였다. 대식세포 게이트 내에서 해당 fluorescence-minus-one 대조군으로부터 설정된 임계값을 사용하여 CD86⁺ 및 CD206⁺ 세포를 정량화하였다. 모든 샘플에 동일한 게이팅 계층 구조를 적용하였다. 세 개의 반복 웰(well) 각각에서 하나의 염색된 세포 현탁액을 준비하였으며, 세 웰에서 얻은 백분율을 평균하여 각 독립 실험당 하나의 값을 생성하였다. 독립적으로 배양된 세포를 사용하여 이 실험을 세 번 반복하였다.
안전 및 폐기물 처리
모든 세포 배양 절차, ox-LDL 취급 및 세포 유래 물질의 처리는 생물안전 2등급(BSL-2) 지침에 따라 2급 생물안전작업대 내에서 수행되었습니다. 모든 절차 동안 실험복, 장갑 및 보안경을 착용하였습니다. 작업 표면과 장비는 사용 후 오염 제거를 실시하였습니다. 포름알데히드와 파라포름알데히드는 독성과 잠재적 발암성으로 인해 적절한 예방 조치를 통해 취급하였습니다. 고정액, Oil Red O 용액, DMSO 함유 용액 및 형광 염색 용액은 적절한 개인 보호 장구와 충분한 환기 시설을 갖춘 상태에서 취급하였습니다. 고정액, 염색 용액, DMSO 함유 용액 및 ox-LDL 함유 배양 배지는 별도로 수거하여 기관 규정에 따라 유해 화학 폐기물로 처리하였습니다. 세포가 포함된 배양 배지, 오염된 소모품 및 유세포 분석 샘플은 생물학적 폐기물로 처리하였습니다. 액체 생물학적 폐기물은 갓 제조한 10% 차아염소산나트륨으로 최소 30분 동안 소독하였으며, 고체 생물학적 폐기물은 기관의 생물안전 절차에 따라 폐기 전 오토클레이브 멸균을 실시하였습니다.
통계 분석
모든 통계 분석은 GraphPad Prism 통계 소프트웨어(버전 10.1.2)를 사용하여 수행되었습니다. 데이터는 평균으로 표시됩니다. ± 표준 편차. 값은 n 기술적 반복 웰, 기기 측정값 또는 현미경 시야의 수가 아니라 독립적인 실험 횟수를 나타냈습니다. 이전 섹션에서 설명한 대로 각 독립적인 실험에서 얻은 계층적 평균값을 모든 통계 분석에 사용하였습니다. 두 그룹 간의 비교는 비짝지은 양측 꼬리 Student's t-검정. 셋 이상의 그룹 간 비교는 일원 분산 분석(one-way analysis of variance) 후 Tukey의 다중 비교 검정을 사용하여 수행하였다. 모든 통계 검정은 양측 검정으로 수행되었으며, p- p 값 <0.05를 통계적 유의 수준으로 간주하였다.
결과
HQT의 활성 화합물 및 그 표적
TCM Systems Pharmacology 데이터베이스에서 얻은 데이터의 스크리닝과 통합을 통해 HQT로부터 총 137종의 후보 생성 활성 화합물을 식별하였다. 중복 항목을 제거한 후, 이들 화합물과 관련된 391종의 고유한 추정 타겟을 유지하였다. 이후 그림 1에 나타낸 바와 같이 Cytoscape 버전 3.7.2를 사용하여 HQT-화합물-타겟 상호작용 네트워크를 구축하였다.
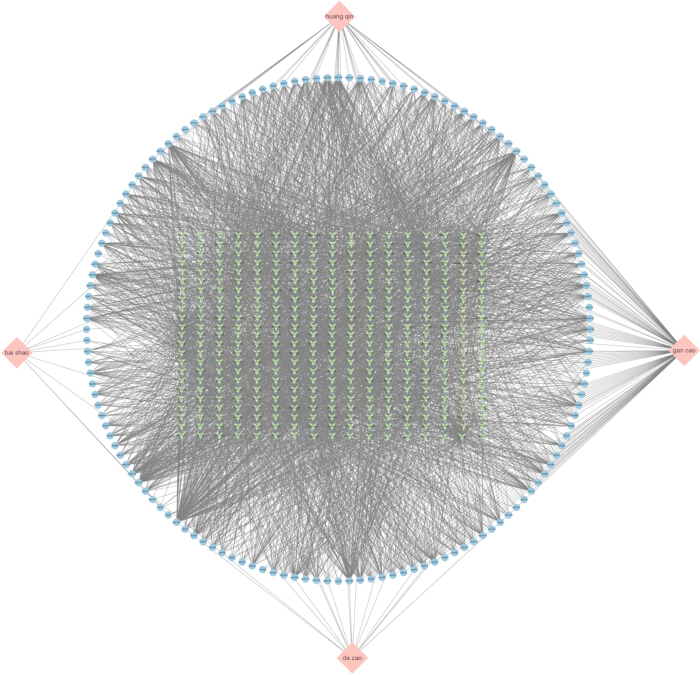
그림 1. 황금탕 성분과 추정 타겟의 예측 상호작용 네트워크. 황금탕(HQT)의 4가지 약재 성분, 후보 생성 활성 성분 및 추정 분자 타겟 간의 예측된 상호작용을 보여주는 네트워크이다. 분홍색 다이아몬드형 노드는 4가지 약재 성분을, 파란색 원형 노드는 후보 화합물을, 녹색 노드는 예측 타겟을 나타낸다. 엣지는 예측된 약재-화합물 또는 화합물-타겟 연관성을 나타낸다. 여기에서 이 그림의 확대 버전을 확인하십시오.
AS에서 HQT 중재와 관련된 표적 식별
GSE100927 데이터셋의 유전자 발현 데이터는 Gene Expression Omnibus 데이터베이스에서 확보하였다. 차등 발현 분석을 통해 대조군 동맥 샘플과 비교하여 죽상동맥경화증 동맥 샘플에서 유의하게 상향 조절된 유전자 1,513개와 유의하게 하향 조절된 유전자 922개를 확인하였다. 해당 화산 플롯(volcano plot)과 히트맵(heatmap)은 각각 그림 2A와 그림 2B에 나타내었다. 이후 GeneCards, Online Mendelian Inheritance in Man 및 Comparative Toxicogenomics 데이터베이스에서 죽상동맥경화증(AS) 관련 표적을 검색하였다. 관련성 점수 임계값 ≥1.163을 사용하여 GeneCards에서 600개의 잠재적 표적을 얻었으며, Online Mendelian Inheritance in Man과 Comparative Toxicogenomics 데이터베이스에서는 각각 188개와 64개의 표적을 검색하였으며, 그 결과는 그림 2C에 요약되어 있다. 데이터베이스 유래 표적과 차등 발현 유전자를 통합한 결과, 최소 두 개 이상의 데이터 소스에서 뒷받침되는 29개의 AS 관련 표적을 식별하였다. 이 표적들을 HQT의 예측 표적과 비교하여 12개의 중첩되는 표적을 도출하였으며, 이를 HQT가 AS에 영향을 미칠 수 있는 후보 표적으로 간주하였다(그림 2D).
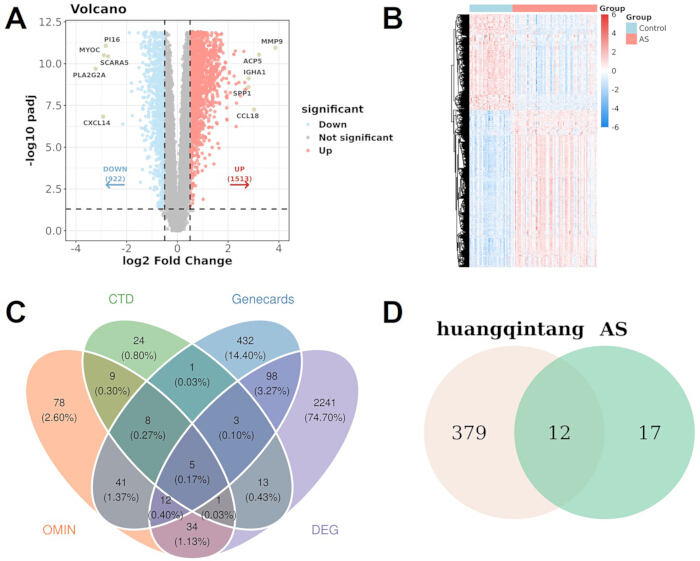
그림 2. 죽상동맥경화증 관련 유전자의 식별 및 예측된 황금탕(Huangqin Tang) 타겟과의 중복성. (A) GSE100927 데이터셋의 죽상동맥경화증(AS) 및 대조군 동맥 샘플 간 차등 발현 유전자(DEGs)를 보여주는 화산 도표(Volcano plot). 빨간색과 파란색 점은 각각 상향 조절 및 하향 조절된 유전자를 나타내며, 회색 점은 유의미하게 차등 발현되지 않은 유전자를 나타낸다. (B) 대조군 및 AS 샘플에서의 DEG 발현 패턴을 보여주는 히트맵. (C) Comparative Toxicogenomics Database, GeneCards, Online Mendelian Inheritance in Man 및 GSE100927 DEG 분석을 통해 얻은 AS 관련 유전자 간의 중복성을 보여주는 벤 다이어그램. (D) 예측된 HQT 타겟과 패널 C에서 최소 두 개 이상의 출처에서 유지된 AS 관련 타겟 간의 중복성을 보여주는 벤 다이어그램. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
후보 표적의 단백질-단백질 상호작용 네트워크 및 기능적 풍부도 분석
12개의 중첩된 타겟의 상호작용과 생물학적 관련성을 규명하기 위해, STRING 데이터베이스를 사용하여 단백질-단백질 상호작용(PPI) 네트워크를 구축한 후 Cytoscape에서 시각화 및 분석하였습니다. 이 네트워크에는 NOS3, OLR1, ALOX5, SPP1, ESR1, IL10, TNF, VCAM1을 포함하여 지질 대사, 혈관 염증 및 AS와 밀접하게 연관된 여러 타겟이 포함되었습니다(그림 3A). 더 크고 어두운 노드는 네트워크 내에서 위상학적 중요도가 더 높은 타겟을 나타내며, 이는 이러한 단백질들이 AS에 대한 HQT의 잠재적 타겟 네트워크에서 상대적으로 중심적인 위치를 차지할 수 있음을 시사합니다. 이러한 타겟들과 관련된 생물학적 기능 및 신호 전달 경로를 추가로 규명하기 위해, Gene Ontology (GO) 및 Kyoto Encyclopedia of Genes and Genomes (KEGG) 농축 분석을 수행하였습니다. GO 생물학적 과정(BP) 분석 결과, 타겟들이 주로 스테로이드 대사 과정, 스테로이드 호르몬 및 영양 수준에 대한 반응, 그리고 지질 항상성 조절과 관련되어 있음이 나타났습니다(그림 3B). GO 세포 구성 성분(CC) 분석에서는 막 래프트 및 관련 막 미세도메인에서 지배적인 농축이 확인되었으며(그림 3C), GO 분자 기능(MF) 분석에서는 저밀도 지질단백질 입자 수용체 활성, 지질단백질 입자 수용체 활성, 프로테아제 결합, 사이토카인 활성, 핵 수용체 활성, 리간드 조절 전사 인자 활성, 카고 수용체 활성, 전사 공조절 인자 결합, 핵 수용체 결합 및 인테그린 결합에서 농축이 확인되었습니다(그림 3D). KEGG 경로 분석에서는 Lipid and Atherosclerosis 경로, 당뇨 합병증에서의 최종당화산물-최종당화산물 수용체(AGE–RAGE) 신호 전달 경로, 그리고 AMPK 신호 전달 경로를 포함하여 지질 대사, AS 및 대사 조절과 관련된 경로에서 유의미한 농축이 추가로 입증되었습니다(그림 3E). 종합적으로, PPI 네트워크와 농축 분석은 후보 타겟들이 지질 항상성, 염증 신호 전달 및 에너지 대사 조절에 참여할 수 있음을 나타냈습니다. 특히, AMPK 신호 전달 경로의 농축은 이후 in vitro에서 PF의 AMPK 관련 효과를 조사하는 근거가 되었습니다.
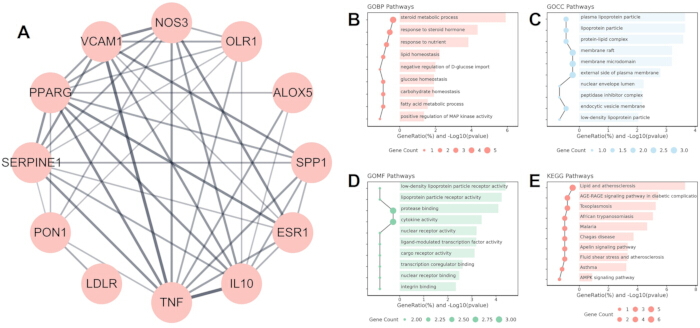
그림 3. 황금탕과 죽상동맥경화증의 공통 타겟에 대한 단백질-단백질 상호작용 네트워크 및 기능적 풍부도 분석. (A) HQT와 AS의 공통 타겟 간 단백질-단백질 상호작용 네트워크. 노드는 단백질을 나타내며, 엣지는 예측되었거나 기록된 단백질-단백질 연관성을 나타낸다. (B) Gene Ontology 생물학적 과정 풍부도 분석. (C) Gene Ontology 세포 구성 성분 풍부도 분석. (D) Gene Ontology 분자 기능 풍부도 분석. (E) Kyoto Encyclopedia of Genes and Genomes 경로 풍부도 분석. 점의 크기는 풍부해진 유전자의 수를 나타내며, 가로 막대는 축에 표시된 바와 같이 해당 풍부도 유의성과 유전자 비율을 나타낸다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
PF와 HQT는 AMPK를 활성화하며 ox-LDL로 유도된 대식세포 기능 장애에 대해 보호 효과를 나타낸다
후속 실험을 위한 적절한 농도를 결정하기 위해, 먼저 PF와 HQT가 RAW264.7 세포 생존율에 미치는 영향을 평가하였다. 1 내지 40 µM 범위의 농도로 PF를 처리했을 때, 처리하지 않은 대조군과 비교하여 세포 생존율에 뚜렷한 영향을 미치지 않았다(그림 4A). 마찬가지로, 12.5 내지 200 µg/mL 범위의 농도로 HQT를 처리했을 때 세포 생존율의 명백한 감소가 유도되지 않았다(그림 4B). 이러한 결과는 테스트된 농도의 PF와 HQT가 일반적으로 RAW264.7 대식세포에 잘 내약됨을 나타낸다. 이어서 AMPK 활성화에 대한 PF와 HQT의 효과를 평가하기 위해 웨스턴 블롯 분석을 수행하였다. 전체 AMPK 발현은 서로 다른 처리군 간에 비교적 안정적으로 유지된 반면, PF는 농도 의존적인 방식으로 p-AMPK/AMPK 비율을 증가시켰다. HQT 처리 또한 테스트된 농도에서 AMPK 인산화를 강화하였다(그림 4C). 세포 생존율의 보존과 관찰된 AMPK 활성화를 바탕으로, 후속 비교 실험을 위해 20 µM PF와 100 µg/mL HQT를 선택하였다. Oil Red O 염색 결과, ox-LDL 노출은 RAW264.7 세포 내의 지질 축적을 현저히 증가시켰다. PF 또는 HQT 처리 모두 ox-LDL 군에 비해 Oil Red O 양성 영역을 유의하게 감소시켰다(그림 4D). 이와 병행하여, ox-LDL 노출은 ApoA-I 매개 및 HDL 매개 콜레스테롤 유출을 모두 손상시켰다. PF 처리는 두 가지 형태의 콜레스테롤 유출을 모두 유의하게 회복시켰으며, HQT 또한 세포 콜레스테롤 배출에서 유사한 개선 효과를 나타냈다(그림 4E,F). ox-LDL 노출은 또한 염증성 사이토카인인 TNF-α, IL-6 및 IL-1β의 분비를 현저히 증가시켰다. PF 처리는 배양 상층액 내 세 가지 사이토카인 모두의 농도를 유의하게 감소시켰다. HQT 처리 역시 ox-LDL에 의해 유도된 사이토카인 분비를 비슷하게 완화하였다(그림 4G). 종합적으로, 이러한 결과는 PF가 AMPK 활성화, 지질 축적 감소, 콜레스테롤 유출 강화 및 염증 반응 억제를 포함하여 HQT 전체 제제에서 관찰된 여러 보호 효과를 재현한다는 것을 나타낸다. 이러한 발견은 후속 기전 연구를 위한 HQT의 생물활성 성분으로 PF를 선택하는 근거가 된다.
PF가 AMPK의 열 안정성에 영향을 미치는지 평가하기 위해 세포 열 이동 분석(CETSA)을 추가로 수행하였다. 배양 온도가 증가함에 따라, 대조군과 PF 처리군 모두에서 검출 가능한 AMPK 및 인산화된 AMPK 수준이 점진적으로 감소하였다. 그러나 PF 처리는 대조군과 비교했을 때 여러 온도에서 AMPK 및 p-AMPK의 유지율을 증가시켰다(그림 4H,I). 이러한 결과는 PF가 AMPK의 열 안정성을 향상시킨다는 것을 시사하며, PF와 AMPK 사이의 잠재적인 타겟 결합 가능성과 일치한다. 이 결과를 바탕으로, 이후 실험에서는 AMPK의 약리학적 또는 유전적 억제가 ox-LDL 처리 대식세포에서 PF의 보호 효과를 약화시키는지 조사하였다.
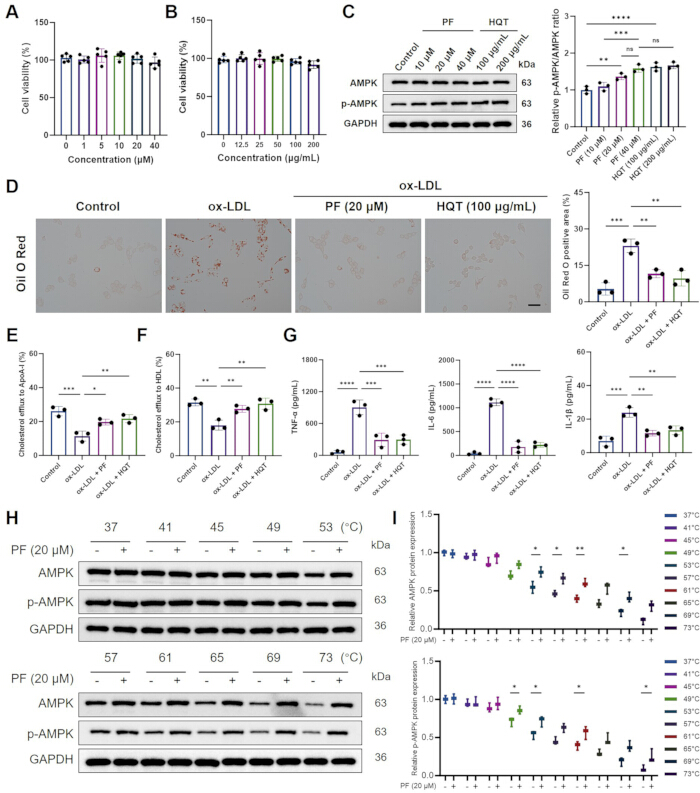
그림 4. Paeoniflorin과 Huangqin Tang은 AMPK를 활성화하여 산화 저밀도 지질단백질로 유도된 대식세포 기능 장애를 완화한다. (A) 표시된 농도의 paeoniflorin (PF; n = 5) 처리 후 RAW264.7 세포 생존율. (B) 표시된 농도의 HQT 추출물 (n = 5) 처리 후 세포 생존율. (C) PF 또는 HQT 처리 후 AMPK 및 인산화된 AMPK의 대표적 웨스턴 블롯 및 p-AMPK/AMPK 비율의 정량화 (n = 3). GAPDH를 로딩 컨트롤로 사용하였다. (D) 대표적 Oil Red O 염색 이미지 및 세포 내 지질 축적의 정량화 (n = 3). 스케일 바 = 100 µm. (E) Apolipoprotein A-I 매개 콜레스테롤 유출 (n = 3). (F) 고밀도 지질단백질 매개 콜레스테롤 유출 (n = 3). (G) ELISA로 측정한 배양 상청액 내 TNF-α, IL-6 및 IL-1β 농도 (n = 3). (H) PF 존재 또는 부재 하에 표시된 온도에서 배양 후 AMPK 및 p-AMPK의 대표적 세포 열 이동 분석(CETSA) 블롯. GAPDH를 로딩 컨트롤로 사용하였다. (I) AMPK 및 p-AMPK의 열 안정성 정량화 (n = 3). 데이터는 평균 ± SD로 표시되었다. 통계적 유의성은 *P < 0.05, **P < 0.01, ***P < 0.001, 및 ****P < 0.0001로 나타냈다. 가로 막대는 테스트된 쌍별 비교를 식별한다. 패널 C에서 표시된 비교는 Control 대 PF (20 µM), PF (10 µM) 대 PF (40 µM), PF (20 µM) 대 PF (40 µM), Control 대 HQT (100 µg/mL), 및 PF (40 µM) 대 HQT (200 µg/mL였다. 패널 D-G에서 표시된 비교는 Control 대 ox-LDL, ox-LDL 대 ox-LDL + PF, 및 ox-LDL 대 ox-LDL + HQT였다. 패널 I에서 vehicle 처리군과 PF 처리군 샘플을 가로 막대로 표시된 각 온도에서 비교하였다. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
PF는 ox-LDL로 처리된 RAW264.7 세포에서 지질 축적과 염증성 사이토카인 방출을 감소시키고 세포 내 ATP를 회복시킨다
Oil Red O 염색 결과, 대조군과 비교하여 다수의 진하게 염색된 지질 적하가 관찰됨으로써 ox-LDL 처리가 RAW264.7 세포에서 현저한 세포 내 지질 축적과 거품세포 형성을 유도함이 확인되었습니다(그림 5A,B). PF 처리는 ox-LDL 처리군과 비교하여 지질 적하의 수와 염색 면적을 모두 유의하게 감소시켰습니다. 이러한 지질 축적의 개선과 일관되게, PF는 ox-LDL로 유도된 염증 반응 또한 완화하였습니다. 배양 상청액 내 TNF-α, IL-6 및 IL-1β 수치는 ox-LDL 노출 후 유의하게 증가하였으나, PF 처리에 의해 현저히 감소하였습니다(그림 5C–E). 또한, ox-LDL은 세포 내 ATP 수치를 유의하게 감소시킨 반면, PF는 ATP 함량을 부분적으로 회복시켜 세포 에너지 상태의 개선을 나타냈습니다(그림 5F). ox-LDL은 ApoA-I 매개 및 HDL 매개 콜레스테롤 유출을 또한 손상시켰으나, PF는 ox-LDL 군과 비교하여 두 가지 형태의 콜레스테롤 유출을 모두 유의하게 강화하였습니다(그림 5G,H). AMPK 억제제인 dorsomorphin을 병용 처리했을 때 PF의 이러한 각각의 효과가 부분적으로 완화되어, PF 단독 처리군과 비교하여 지질 축적과 전염증성 사이토카인 수치가 증가하고 ATP 함량 및 콜레스테롤 유출은 감소하였습니다(그림 5B–H). 종합적으로, 이러한 결과들은 PF가 RAW264.7 세포에서 ox-LDL로 유도된 지질 처리, 염증 반응 및 세포 에너지 항상성의 교란을 완화하며, AMPK 신호 전달이 이러한 협응적인 보호 효과에 기여할 가능성이 있음을 시사합니다.
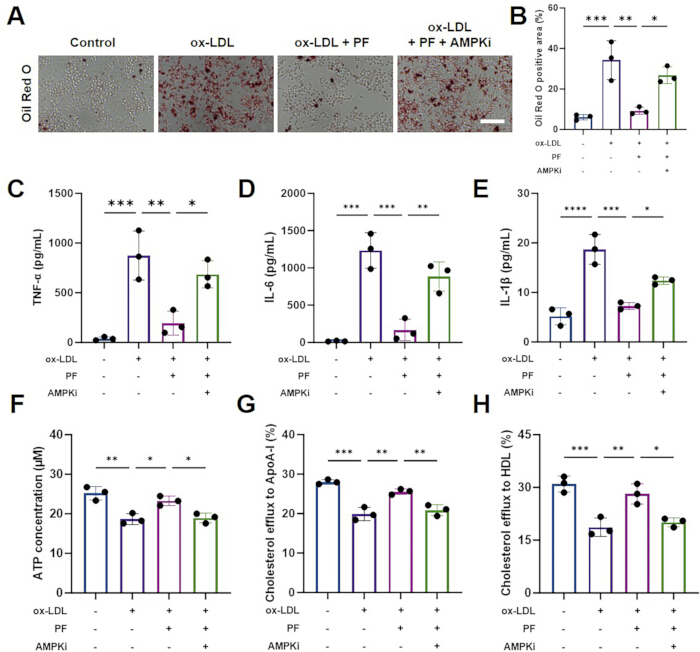
그림 5. AMPK 억제는 paeoniflorin에 의한 염증 및 지질 축적의 감소와 ATP 함량 및 콜레스테롤 유출의 개선 효과를 약화시킨다.(A) RAW264.7 세포의 대표적인 Oil Red O 염색 이미지. 스케일 바 = 100 µm. (B) Oil Red O 양성 영역의 정량화 (n = 3). (C–E) ELISA로 측정한 배양 상층액 내 TNF-α, IL-6 및 IL-1β 농도 (n = 3). (F) 세포 내 ATP 농도 (n = 3). (G) Apolipoprotein A-I 매개 콜레스테롤 유출 (n = 3). (H) 고밀도 지질단백질 매개 콜레스테롤 유출 (n = 3). AMPKi는 AMPK 억제제인 dorsomorphin을 나타낸다. 데이터는 3회 독립 실험의 평균 ± SD로 표시되었다. 통계적 유의성은 *P < 0.05, **P < 0.01, ***P < 0.001 및 ****P < 0.0001로 표시하였다. 수평 막대는 테스트된 쌍별 비교를 나타낸다. 패널 B-H에서 표시된 비교군은 Control 대 ox-LDL, ox-LDL 대 ox-LDL + PF, 그리고 ox-LDL + PF 대 ox-LDL + PF + AMPKi이다. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
PF는 ox-LDL로 유도된 미토콘드리아 기능 장애, 산화 스트레스 및 세포 사멸을 완화한다
TUNEL 염색 결과, ox-LDL은 RAW264.7 세포에서 TUNEL 형광을 현저히 증가시켜 세포사멸(apoptosis)이 촉진되었음을 나타낸 반면, PF 처리는 ox-LDL로 유도된 TUNEL 형광을 유의하게 감소시켰습니다. AMPK 억제제인 dorsomorphin을 병용 처리했을 때 PF의 항세포사멸 효과가 부분적으로 역전되었습니다(그림 6A,B). 이와 일관되게, DCFH-DA 형광 증가로 확인된 바와 같이 ox-LDL은 세포 내 ROS 수준을 현저히 증가시켰으나, PF는 ROS 축적을 유의하게 감소시켰으며, 이러한 항산화 효과는 dorsomorphin에 의해 부분적으로 역전되었습니다(그림 6C,D). JC-1 염색 결과, ox-LDL 처리는 적색 JC-1 응집체 형광을 감소시키고 녹색 JC-1 단량체 형광을 증가시켜 녹색 대 적색 형광 비율을 유의하게 증가시켰으며, 이는 미토콘드리아 막 전위의 탈분극을 나타냅니다. PF 처리는 녹색 대 적색 형광 비율을 현저히 감소시킨 반면, dorsomorphin 병용 처리는 이러한 효과를 부분적으로 역전시켰습니다 (그림 6E,F). 종합적으로, 이러한 결과는 PF가 RAW264.7 세포에서 ox-LDL로 유도된 미토콘드리아 막 탈분극, 과도한 ROS 생성 및 세포사멸을 완화하며, AMPK 신호 전달이 이러한 보호 효과에 기여할 가능성이 있음을 시사합니다.
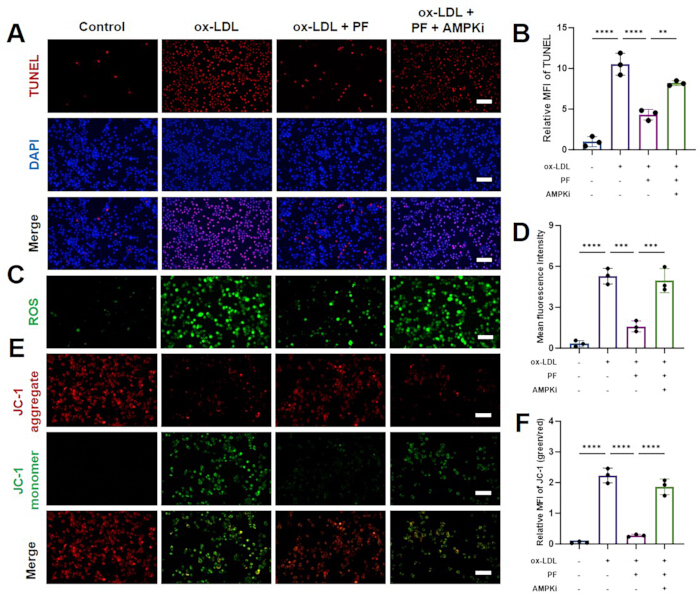
그림 6AMPK 억제는 산화 저밀도 지질단백질로 유도된 세포 사멸, 산화 스트레스 및 미토콘드리아 막 전위 소실에 대한 페오니플로린(paeoniflorin)의 효과를 감쇄시킨다. (A) RAW264.7 세포의 세포사멸 분석을 위한 TUNEL 분석법 (스케일 바 = 100 µm) 및 (B) 이에 상응하는 정량 분석(n = 3). (C) RAW264.7 세포의 ROS 염색 (스케일 바 = 100 μm) 및 (D) 정량적 결과 (n = 3). (E) RAW264.7 세포의 JC-1 염색 (스케일 바 = 100 μm) 및 (F) 이에 상응하는 정량 분석 (n = 3). 데이터는 평균값으로 표시되었습니다. ± 3회 독립 실험의 표준편차(SD). 통계적 유의성은 *로 표시됨.P < 0.05, **P < 0.01, ***P < 0.001, 그리고 ****P < 0.0001. 수평 막대는 테스트된 쌍별 비교를 나타냅니다. 패널 B, D 및 F에서 표시된 비교 항목은 대조군 대 ox-LDL, ox-LDL 대 ox-LDL + PF, 그리고 ox-LDL + PF 대 ox-LDL + PF + AMPKi입니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
AMPK 억제는 PF 관련 ABCA1 및 세포사멸 관련 단백질의 변화를 완화한다
Western blot 분석 결과, 전체 AMPK 단백질 풍부도는 처리군 전반에 걸쳐 비교적 안정적으로 유지된 반면, ox-LDL은 대조군과 비교하여 p-AMPK/AMPK 비율을 유의하게 증가시키고 ABCA1 발현을 감소시켰다. PF 처리는 ox-LDL 군에 비해 p-AMPK/AMPK 비율을 더욱 증가시켰으며 ABCA1 발현을 회복시켰다. AMPK 억제제인 dorsomorphin을 병용 처리했을 때 이러한 PF 관련 변화가 유의하게 약화되었으며, 그 결과 ox-LDL + PF 군에서 관찰된 것보다 낮은 p-AMPK/AMPK 비율과 감소된 ABCA1 발현이 나타났다(Figure 7A,B). 세포 사멸 관련 단백질 분석 결과, ox-LDL은 대조군과 비교하여 전체 caspase-3 발현을 유의하게 증가시키고 BCL-2/BAX 비율을 감소시켰다. PF 처리는 ox-LDL 군에 비해 전체 caspase-3 발현을 유의하게 감소시키고 BCL-2/BAX 비율을 증가시켰다. Dorsomorphin 병용 처리는 이러한 PF 관련 변화를 되돌려, ox-LDL + PF 군과 비교했을 때 전체 caspase-3 발현의 증가와 BCL-2/BAX 비율의 감소를 초래했다(Figure 7C,D). 이러한 결과는 AMPK 억제가 ox-LDL로 처리된 RAW264.7 세포에서 ABCA1 발현 및 세포 사멸 관련 단백질 프로필에 미치는 PF의 효과를 약화시킨다는 것을 나타낸다.
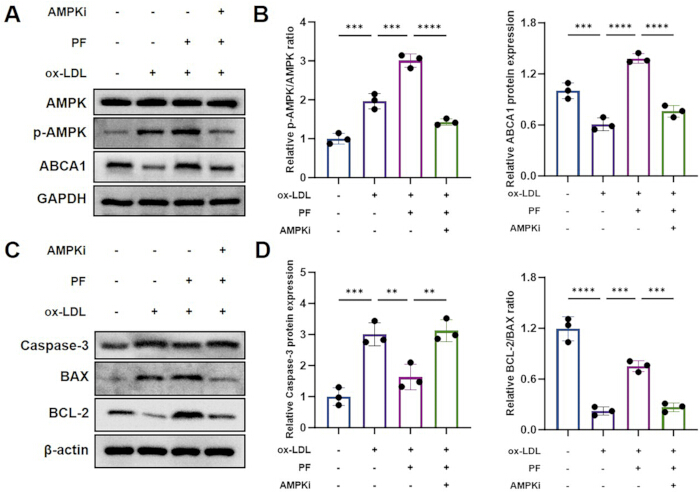
그림 7. AMPK 억제는 paeoniflorin에 의한 AMPK 인산화, ABCA1 발현 및 세포사멸 관련 단백질의 변화를 완화시킨다. (A) AMPK, p-AMPK 및 ATP-binding cassette transporter A1 (ABCA1)의 대표적인 웨스턴 블롯 결과. GAPDH를 로딩 컨트롤로 사용하였다. (B) p-AMPK/AMPK 비율 및 상대적 ABCA1 단백질 발현의 정량화 (n = 3). (C) total caspase-3, BAX 및 BCL-2의 대표적인 웨스턴 블롯 결과. β-Actin을 로딩 컨트롤로 사용하였다. (D) 상대적 total caspase-3 발현 및 BCL-2/BAX 비율의 정량화 (n = 3). AMPKi는 AMPK 억제제인 dorsomorphin을 나타낸다. 데이터는 3회의 독립적인 실험의 평균 ± SD로 표시되었다. 통계적 유의성은 *P < 0.05, **P < 0.01, ***P < 0.001, 및 ****P < 0.0001로 표시되었다. 가로 막대는 테스트된 쌍별 비교를 식별한다. 패널 B와 D의 두 정량적 결과 모두에서, 표시된 비교는 Control 대 ox-LDL, ox-LDL 대 ox-LDL + PF, 그리고 ox-LDL + PF 대 ox-LDL + PF + AMPKi였다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
AMPK 억제는 ox-LDL로 처리된 RAW264.7 세포에서 PF와 관련된 핵 내 LXRα 양의 증가 및 NF-κB 신호 전달 억제를 감쇠시킨다
PF의 효과에 AMPK가 관여하는지 추가로 확인하기 위해, siRNA를 사용하여 AMPK 발현을 억제하였다. si-AMPK가 형질전환된 세포에서는 si-NC 그룹에 비해 AMPK mRNA와 단백질 수준이 모두 유의하게 감소하여 효율적인 녹다운이 확인되었다(Figure 8A,B). ox-LDL 처리 세포에서 PF는 핵 내 LXRα 발현을 증가시키고 핵 내 p-p65/p65 비율을 감소시켰으나, AMPK 녹다운은 이러한 효과를 유의하게 감쇠시켰다(Figure 8C,D). 일관되게, ox-LDL은 전세포 p-p65/p65 비율을 현저히 증가시켰으며, 이는 PF에 의해 억제되었으나 AMPK 녹다운 후 부분적으로 회복되었다(Figure 8E). 또한 PF는 ox-LDL로 인해 유도된 IκB-α 발현의 감소와 p-IκB-α 발현의 증가를 역전시켰으나, 이러한 효과는 si-AMPK에 의해 감쇠되었다(Figure 8F). 종합적으로, 이러한 결과는 AMPK가 PF에 의한 핵 내 LXRα 양의 증가와 NF-κB 신호 전달 억제에 기여함을 시사한다.
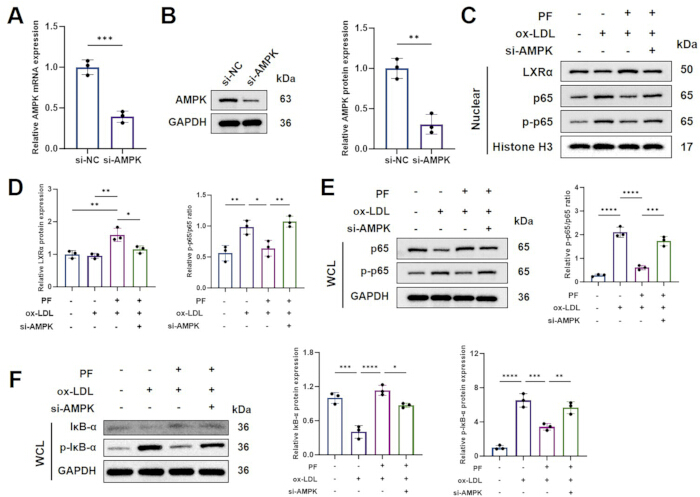
그림 8. AMPK 사일런싱은 paeoniflorin에 의한 핵 내 LXRα 함량 증가 및 NF-κB 신호 전달 억제를 약화시킨다.(A) 음성 대조군 siRNA 또는 AMPK 표적 siRNA 형질전환 후의 상대적 AMPK mRNA 발현량 (n = 3). (B) siRNA 형질전환 후 AMPK 단백질 발현의 대표적인 웨스턴 블롯 및 정량 분석 (n = 3). GAPDH를 로딩 대조군으로 사용하였다. (C) 핵 내 LXRα, p65 및 p-p65의 대표적인 웨스턴 블롯. Histone H3를 핵 로딩 대조군으로 사용하였다. (D) 상대적 핵 내 LXRα 발현량 및 핵 내 p-p65/p65 비율의 정량 분석 (n = 3). (E) 전세포 p65 및 p-p65의 대표적인 웨스턴 블롯과 p-p65/p65 비율의 정량 분석 (n = 3). GAPDH를 로딩 대조군으로 사용하였다. (F) 전세포 IκB-α 및 p-IκB-α의 대표적인 웨스턴 블롯과 그에 따른 정량 분석 (n = 3). GAPDH를 로딩 대조군으로 사용하였다. 데이터는 3회의 독립적인 실험의 평균 ± SD로 표시하였다. 통계적 유의성은 *P < 0.05, **P < 0.01, *** P < 0.001, 그리고 **** P < 0.0001로 나타내었다. 가로 막대는 테스트된 쌍별 비교를 식별한다. 패널 A와 B에서는 si-NC를 si-AMPK와 비교하였다. 패널 D의 핵 내 LXRα 발현의 경우, 표시된 비교군은 Control 대 ox-LDL + PF, ox-LDL 대 ox-LDL + PF, 그리고 ox-LDL + PF 대 ox-LDL + PF + si-AMPK였다. 패널 D의 핵 내 p-p65/p65 비율과 패널 E 및 F의 정량 분석의 경우, 표시된 비교군은 Control 대 ox-LDL, ox-LDL 대 ox-LDL + PF, 그리고 ox-LDL + PF 대 ox-LDL + PF + si-AMPK였다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
AMPK 억제는 PF 매개 콜레스테롤 유출 및 대식세포 표현형 조절을 감쇠시킨다
NF-κB의 약리학적 억제가 PF와 연관된 것과 유사한 기능적 변화를 유도하는지 확인하기 위해 ABCA1 발현, 콜레스테롤 유출, 지질 축적 및 대식세포 표현형 마커를 평가하였다. PF는 ox-LDL 처리 세포에서 ABCA1 발현을 회복시키고 ApoA-I 및 HDL 매개 콜레스테롤 유출을 증가시킨 반면, AMPK silencing은 이러한 효과를 유의하게 약화시켰다(Figure 9A–C). 일관되게, PF는 세포 내 지질 축적을 감소시켰으나, si-AMPK는 이러한 효과를 부분적으로 역전시켰다(Figure 9D,E). BAY 11-7082 처리는 ABCA1 발현 및 콜레스테롤 유출의 증가와 세포 내 지질 축적의 감소를 포함하여 PF에 의해 유도된 것과 유사한 변화를 나타냈다(Figure 9A–E). 유세포 분석은 Figure 9F에 표시된 게이팅 전략을 사용하여 수행되었다. Ox-LDL은 CD86 양성 대식세포의 비율을 현저히 증가시킨 반면, PF는 이 집단을 감소시켰으며, 이러한 효과는 AMPK silencing에 의해 약화되었다(Figure 9G,H). 대조적으로, PF는 CD206 양성 대식세포의 비율을 증가시켰으며, 이는 si-AMPK에 의해 부분적으로 역전되었다(Figure 9I,J). BAY 11-7082 또한 유사하게 CD86 양성 대식세포의 비율을 감소시키고 CD206 양성 대식세포의 비율을 증가시켰다(Figure 9G–J). 이러한 결과는 AMPK가 잠재적으로 NF-κB 신호 전달의 조절을 통해 콜레스테롤 항상성 및 대식세포 표현형 조절에 대한 PF의 효과에 기여함을 나타낸다.
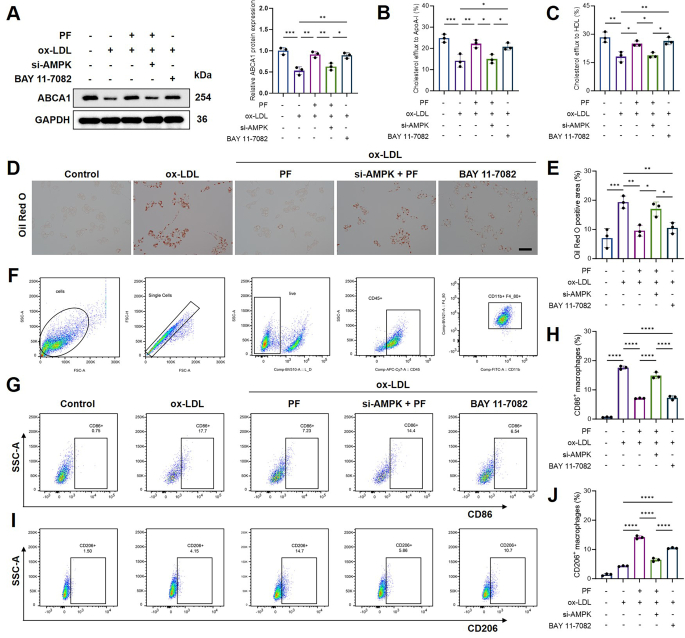
그림 9. AMPK 억제 및 NF-κB 저해는 paeoniflorin 관련 콜레스테롤 유출, 지질 축적 및 대식세포 표현형을 조절한다. (A) ABCA1 발현의 대표적 웨스턴 블롯 및 정량 결과 (n = 3). GAPDH를 로딩 컨트롤로 사용하였다. (B) Apolipoprotein A-I 매개 콜레스테롤 유출 (n = 3). (C) 고밀도 지질단백질 매개 콜레스테롤 유출 (n = 3). (D) 대표적 Oil Red O 염색 이미지. 스케일 바 = 100 µm. (E) Oil Red O 양성 영역의 정량 결과 (n = 3). (F) 세포, 싱글렛, 생존 CD45 양성 세포, 그리고 CD11b 양성/F4/80 양성 대식세포를 식별하는 데 사용된 순차적 유세포 분석 게이팅 전략. (G) CD86 양성 대식세포의 대표적 유세포 분석 도표. (H) CD86 양성 대식세포의 정량 결과 (n = 3). (I) CD206 양성 대식세포의 대표적 유세포 분석 도표. (J) CD206 양성 대식세포의 정량 결과 (n = 3). NF-κB 저해제로 BAY 11-7082를 사용하였다. 데이터는 세 차례의 독립적인 실험의 평균 ± SD로 표시하였다. 통계적 유의성은 *P < 0.05, **P < 0.01, ***P < 0.001, 및 ****P < 0.0001로 나타내었다. 가로 막대는 테스트된 쌍별 비교를 나타낸다. 패널 A–C, E, H에서 표시된 비교군은 Control 대 ox-LDL, ox-LDL 대 ox-LDL + PF, ox-LDL + PF 대 ox-LDL + PF + si-AMPK, ox-LDL + PF + si-AMPK 대 ox-LDL + BAY 11-7082, 그리고 ox-LDL 대 ox-LDL + BAY 11-7082였다. 패널 J에서 표시된 비교군은 ox-LDL 대 ox-LDL + PF, ox-LDL + PF 대 ox-LDL + PF + si-AMPK, ox-LDL + PF + si-AMPK 대 ox-LDL + BAY 11-7082, 그리고 ox-LDL 대 ox-LDL + BAY 11-7082였다. 여기에서 이 그림의 확대 버전을 확인하십시오.
데이터 가용성:
본 연구에서 분석된 공개 마이크로어레이 데이터셋은 NCBI(National Center for Biotechnology Information) Gene Expression Omnibus(GEO)에서 등록 번호 GSE100927로 확인할 수 있습니다. 본 연구에서 생성된 모든 원시 데이터 및 처리된 데이터는 본 논문의 보충 파일로 제공되며, 출판 후 제한 없이 공개될 예정입니다. 보충 데이터 1에는 그림 4-9의 기초가 되는 수치 데이터와 해당 통계 분석 결과가 포함되어 있습니다. 보충 데이터 2에는 편집되지 않은 원본 웨스턴 블롯 및 CETSA 이미지가 포함되어 있습니다. 보충 데이터 3에는 정량 분석에 사용된 원본 고해상도 현미경 이미지가 포함되어 있습니다. 보충 데이터 4에는 원시 유세포 분석 FCS 파일, 대조군 파일, 보정 정보, 게이팅 기록 및 FlowJo 워크스페이스가 포함되어 있습니다. 보충 데이터 5에는 데이터 전처리, 차별 발현 분석, 시각화, 타겟 통합 및 농축 분석을 포함하여 네트워크 약리학 및 전사체 분석에 사용된 전체 R 스크립트가 포함되어 있습니다.
보충 자료 1. 소스 수치 데이터 및 통계 분석. 근거가 되는 원천 수치 데이터와 해당 통계 분석 결과가 포함된 Excel 워크북 그림 4-9그림별로 구분된 개별 워크시트로 정리되어 있습니다. 해당 통합 문서에는 그래프 생성 및 통계적 비교에 사용된 정량적 데이터가 포함되어 있습니다.이 파일을 다운로드하시려면 여기를 클릭하십시오.
보충 데이터 2. 원본 무삭제 웨스턴 블롯 및 CETSA 이미지. 원고에 제시된 모든 웨스턴 블롯 및 CETSA 실험의 원본 무삭제 이미지가 포함된 PDF 파일로, 이미지 제작 및 정량화에 사용된 소스 데이터를 기록하기 위해 그림 및 패널별로 정리되어 있습니다.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 데이터 3. 원본 고해상도 현미경 이미지. 원고에 제시된 그림에 해당하는 대표 이미지를 포함하여, 정성적 제시 및 정량적 분석에 사용된 원본 고해상도 현미경 이미지가 포함된 PDF 파일입니다.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 데이터 4. 원시 유세포 분석 데이터. 원시 FCS 파일, 대조군 파일, 보정 정보, 게이팅 기록 및 유세포 분석에 사용된 FlowJo 워크스페이스입니다. 전체 데이터 세트는 Microsoft OneDrive(https://1drv.ms/f/c/8d1d81159583ae0f/IgA367Hi90R5CfjDR5uwoGARiUYsefUFv0_OKSUWT5jGY?e=caEpxo)를 통해 이용 가능합니다. 유세포 분석의 PDF 요약본이 백업으로 함께 제공됩니다.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 데이터 5. 네트워크 약리학 및 전사체 분석을 위한 R 스크립트. 네트워크 약리학 및 전사체 분석에 사용된 전체 계산 워크플로우가 포함된 두 개의 R 스크립트 파일입니다. 해당 스크립트에는 패키지 로드 및 설치, 데이터 전처리, 차등 발현 분석, 타겟 통합, 기능적 풍부도 분석, 데이터 시각화 및 보고된 분석 결과 생성이 포함되어 있습니다.이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
대식세포의 폼 세포(foam-cell) 형성은 변형된 지질단백질의 과도한 섭취뿐만 아니라, 콜레스테롤 배출 장애 및 지속적인 염증 활성화에 의해 유도됩니다. 본 연구는 AMPK 관련 신호 전달을 PF가 지질 처리, 염증 반응 및 세포 스트레스의 동시 변화와 연관되는 잠재적 기전으로 식별함으로써 이러한 과정들을 연결 지었으며, 이 중 여러 변화는 AMPK 억제 또는 사이런싱(silencing)에 의해 완화되었습니다. PF와 HQT의 전반적으로 일치하는 효과는 PF가 해당 처방의 생물학적으로 유의미한 성분임을 나타냅니다. 그럼에도 불구하고, HQT는 가산적 또는 시너지 효과를 낼 수 있는 여러 활성 화합물을 포함하고 있으므로, 이러한 결과는 PF를 HQT의 주된 활성 물질로 확립하기보다는 대표적인 성분으로 뒷받침하는 것입니다.
AMPK는 대식세포의 염증성 활성화를 억제할 수 있는 대사 체크포인트로 작용합니다. 이전 연구들에 따르면 AMPK 활성화는 IκB 분해를 제한하고, 염증 매개체 생성을 감소시키며, 염증성이 낮은 대식세포 표현형을 촉진하는 것으로 나타났습니다. 또한 AMPK 활성화는 PP2A/NF-κB/LOX-1 경로의 조절을 통해 ox-LDL 섭취를 억제하는 것으로 보고되었습니다26,27. 본 약리학적 및 유전학적 발견은 AMPK가 콜레스테롤 배출 및 염증 신호 전달에 미치는 PF 관련 여러 효과에 필수적임을 보여줌으로써 이러한 관찰 결과를 확장합니다. 따라서 AMPK는 단순히 PF에 대한 단일 반응을 매개하는 것이 아니라, 대식세포 내에서 PF의 대사 및 면역 조절 작용을 통합하는 역할을 할 수 있습니다. AMPK, LXRα 및 ABCA1 사이의 관계는 관찰된 콜레스테롤 유출 개선에 대한 타당한 설명을 제공합니다. LXRα는 ABCA1의 핵심 전사 조절 인자이며, LXRα–ABCA1 경로의 활성화는 대식세포로부터 과잉 콜레스테롤의 제거를 촉진합니다28. 인간 대식세포 연구에서는 AMPK가 LXRα와 그 하위 콜레스테롤 운반체를 조절할 수 있는 반면, LXR 자극 콜레스테롤 유출은 ABCA1에 크게 의존한다는 것이 추가로 밝혀졌습니다29,30. 본 연구에서 AMPK 사이런싱은 핵 내 LXRα 양, ABCA1 발현, 그리고 ApoA-I 및 HDL 매개 콜레스테롤 유출에 미치는 PF의 효과를 약화시켰습니다. 이러한 관찰 결과는 LXRα/ABCA1 관련 조절이 AMPK의 하위에서 일어난다는 모델과 일치합니다. 다만, ABCA1을 직접적으로 사이런싱하지 않았기 때문에, 본 데이터는 AMPK–LXRα–ABCA1의 인과 관계를 뒷받침하지만 완전히 확립한 것은 아닙니다.
또한 이러한 결과는 콜레스테롤 항상성과 염증성 신호 전달 사이의 상호 조절 관계를 시사합니다. 염증은 ABCA1 발현과 콜레스테롤 유출을 억제하여 대식세포 내 지질 정체를 촉진할 수 있습니다. 반대로, NF-κB의 억제는 염증성 대식세포에서 ABCA1 발현과 콜레스테롤 배출을 회복시키는 것으로 나타났습니다31. 본 연구에서 PF와 BAY 11-7082가 나타낸 유사한 효과는 이러한 상호 작용을 뒷받침합니다. 즉, NF-κB 신호 전달의 억제는 ABCA1 발현 증가, 콜레스테롤 유출 강화 및 지질 축적 감소와 동반되었습니다. AMPK साइlencing은 PF의 대사 및 염증 효과를 모두 약화시켰으며, 이는 AMPK가 두 과정을 독립적으로 조절하기보다 서로 연결된 두 프로세스를 통합적으로 조정할 수 있음을 시사합니다. 이전 연구에서는 PF가 NF-κB 신호 전달을 억제함으로써 전염증성 대식세포 활성화를 억제할 수 있음을 입증하였습니다. 또한 PF 포함 처리가 ABCA1/ABCG1 관련 콜레스테롤 배출을 강화하고 거품세포 형성을 감소시키는 것으로 보고된 바 있습니다32,33. 본 연구는 앞서 설명한 이러한 지질 조절 및 항염증 특성을 AMPK와 연결함으로써 추가적인 기전적 맥락을 제공합니다. 더욱이, 전체 HQT 제제와의 비교를 통해 단독 PF를 조사한 연구들과 본 연구를 차별화하였으며, 선택된 대식세포 분석법에서 PF와 HQT가 부분적으로 중첩되는 효과를 나타냈음을 시사합니다.
AMPK 관련 기전이 산화 스트레스 및 미토콘드리아 무결성에 미치는 PF의 효과에 기여할 수 있습니다. Ox-LDL로 유도된 지질 로딩은 대식세포에 상당한 에너지 및 산화 스트레스를 가하며, 이는 미토콘드리아 탈분극과 세포 사멸을 촉진할 수 있습니다. 따라서 PF 처리 후 관찰된 ATP 수준, 미토콘드리아 막 전위 및 항산화 능력의 동시 회복은 여러 개의 무관한 효과라기보다 조율된 대사 보호 작용과 일치합니다. 이전의 대식세포 연구에서도 PF가 ROS 축적을 감소시키고, 미토콘드리아 막 전위를 보존하며, 미토콘드리아 품질 관리 조절을 통해 염증 표현형을 변화시킨다는 유사한 결과가 발견되었습니다34. 이러한 발견은 AMPK의 구체적인 하위 작동체(downstream effector)가 아직 밝혀지지 않았음에도 불구하고, 미토콘드리아 기능의 보존이 PF의 항염증 및 항세포사멸 작용에 기여할 수 있음을 시사합니다. CETSA 결과는 PF와 AMPK를 연결하는 추가적인 증거를 제공합니다. CETSA는 리간드와 관련된 단백질 열 안정성 변화를 검출하여 세포 내 약물-표적 결합을 평가하기 위해 개발되었습니다35. 용해물 기반의 CETSA 결과는 세포 용해물 내에서 PF와 관련된 AMPK 또는 AMPK 포함 단백질 복합체의 안정화와 부합합니다. 그러나 열 안정화만으로는 직접적인 리간드 결합과 인산화 변화, 단백질 상호작용 또는 세포 환경으로 인한 간접적인 안정화를 구분할 수 없습니다. PF-AMPK 직접 결합을 확인하려면 정제된 단백질 또는 기타 생물물리학적 접근법을 통한 확인이 필요합니다.
PF는 또한 CD86 양성 세포의 비율을 감소시키고 CD206 양성 세포의 비율을 증가시켰으며, 이러한 변화는 AMPK 사이런싱에 의해 약화되었습니다. 이러한 결과는 PF가 대식세포의 염증성 표현형을 변화시킬 수 있다는 이전의 증거들과 일치합니다.32,34그럼에도 불구하고, 대식세포 활성화는 고정된 두 가지 상태인 M1과 M2로 나뉘기보다 다차원적인 스펙트럼을 따라 존재합니다.36따라서 CD86과 CD206은 완전한 M1-M2 전환의 결정적인 증거라기보다, 각각 염증성 및 회복성 프로그램과 관련된 표현형 마커로 해석되어야 합니다. 대식세포의 표현형을 더욱 종합적으로 특성화하기 위해서는 추가적인 전사, 분비 및 기능적 마커가 필요할 것입니다. 몇 가지 한계점을 인정해야 합니다. 첫째, 실험이 RAW264.7 세포에 국한되었으며, 연구 결과는 일차 대식세포 또는 인간 대식세포 및 체내(in vivo) AS 모델에서 검증이 필요합니다. 둘째, 선택된 PF 농도는 세포 독성이 없었고 AMPK 인산화를 증가시켰으나, 주요 기능적 결과에 대한 완전한 농도-반응 관계는 확립되지 않았습니다. 셋째, ABCA1 특이적 기능 상실 및 구조 실험이 수행되지 않았으며, 제안된 AMPK-LXRα따라서 ABCA1 경로는 완전히 확립된 선형 폭포(linear cascade)라기보다 지지되는 기전 모델로 간주되어야 합니다. 넷째, PF와 HQT는 서로 다른 농도 단위를 사용하여 비교되었으며, HQT 조제물의 PF 함량과 피토케미컬 일관성은 정량적으로 평가되지 않았습니다. 마지막으로, CETSA 결과는 잠재적인 세포 내 표적 결합을 나타내지만, 직접적인 분자 결합을 독립적으로 증명하지는 않습니다.
결론적으로, 본 연구 결과는 PF가 콜레스테롤 유출, 염증 신호 전달, 에너지 대사 및 미토콘드리아 항상성을 조절함으로써 ox-LDL로 유도된 대식세포 기능 장애를 완화한다는 것을 시사합니다. 약리학적 억제 및 siRNA 매개 AMPK 침묵은 PF에 의한 여러 보호 효과를 감쇄시켰으며, 이는 핵 내 LXRα 함량, ABCA1 발현, 콜레스테롤 유출 및 NF-κB 신호 전달의 변화를 동반하였습니다. PF는 테스트 조건 하에서 HQT 처리 후 관찰된 여러 보호 효과와 중첩되는 대식세포 보호 효과를 나타냈습니다. HQT의 전반적인 활성에 대한 PF의 기여도는 아직 밝혀지지 않은 상태입니다.
공개 사항
이해관계 충돌:
저자들은 상충하는 이해관계가 없음을 선언합니다.
감사의 글
없음.
저자 기여도:
윤지에 증: 개념화, 방법론, 조사, 정형 분석, 데이터 관리, 시각화 및 글쓰기 – 초안 작성
화잉 왕: 방법론, 조사, 정식 분석, 검증, 데이터 관리, 시각화 및 글쓰기 – 초안 작성
동 류: 방법론, 조사, 검증.
Yunlu Jiang: 조사, 데이터 관리, 정형 분석.
펑청 렌: 조사, 정형 분석, 시각화.
원신 송: 자원, 검증, 글쓰기 – 리뷰 & 편집.
구오펑 황: 개념 정립, 방법론, 감독, 프로젝트 관리, 자금 확보, 글쓰기 – 리뷰 & 편집.
샤오자오 허: 개념 정의, 자원 제공, 감독, 프로젝트 관리, 자금 확보, 글쓰기 – 리뷰 & 편집.
Yunjie Zeng과 Huaying Wang은 이 연구에 동등하게 기여하여 공동 제1저자이다. Guopeng Huang과 Xiaojiao He는 공동 교신저자이다. 모든 저자는 최종 원고를 검토하고 승인하였다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 화학발광 이미징 시스템 | Thermo Fisher Scientific | iBright Imaging System | |
| 유세포 분석기 | BD Biosciences | FACSCanto II | |
| 倒립 형광 현미경 | Olympus | IX73 | |
| 마이크로플레이트 리더 | PerkinElmer | VICTOR X3 | |
| 실시간 PCR 시스템 | Bio-Rad | CFX Opus 96 | |
| 분광광도계 | Thermo Fisher Scientific | NanoDrop 8000 |
참고문헌
- Zysman M et al. Risk of cardiovascular events according to the severity of an exacerbation of chronic obstructive pulmonary disease. Eur J Prev Cardiol. 2025;32(15):1436-1444. doi:10.1093/eurjpc/zwaf086.
- Zvintzou E et al. Context-dependent effects of apolipoprotein A2 on lipid metabolism and atherogenesis. FASEB J. 2026;40(12):e72032. doi:10.1096/fj.202600765R.
- Zuriaga MA et al. Colchicine prevents accelerated atherosclerosis in TET2-mutant clonal haematopoiesis. Eur Heart J. 2024;45(43):4601-4615. doi:10.1093/eurheartj/ehae546.
- Zhang Y et al. Effects and mechanisms of Zhizi Chuanxiong herb pair against atherosclerosis: an integration of network pharmacology, molecular docking, and experimental validation. Chin Med. 2024;19(1):8. doi:10.1186/s13020-023-00874-x.
- Zysset D et al. TREM-1 links dyslipidemia to inflammation and lipid deposition in atherosclerosis. Nat Commun. 2016;7:13151. doi:10.1038/ncomms13151.
- Zou Z et al. Recent advances in nanozymes for the treatment of atherosclerosis. Int J Nanomedicine. 2025;20:9447-9472. doi:10.2147/IJN.S540010.
- Zoubdane N et al. High tyrosol and hydroxytyrosol intake reduces arterial inflammation and atherosclerotic lesion microcalcification in healthy older populations. Antioxidants (Basel). 2024;13(1):130. doi:10.3390/antiox13010130.
- Zhong T et al. Adaptation of endothelial cells to shear stress under atheroprone conditions by modulating internalization of vascular endothelial cadherin and vinculin. Ann Transl Med. 2020;8(21):1423. doi:10.21037/atm-20-3426.
- Zhuo S et al. Inflammatory corpuscle AIM2 facilitates macrophage foam cell formation by inhibiting cholesterol efflux protein ABCA1. Sci Rep. 2024;14(1):10782. doi:10.1038/s41598-024-61495-4.
- Zheng H et al. Lp-PLA2 silencing protects against ox-LDL-induced oxidative stress and cell apoptosis via Akt/mTOR signaling pathway in human THP-1 macrophages. Biochem Biophys Res Commun. 2016;477(4):1017-1023. doi:10.1016/j.bbrc.2016.07.022.
- Zhou Y et al. Asperlin inhibits LPS-evoked foam cell formation and prevents atherosclerosis in ApoE(-/-) mice. Mar Drugs. 2017;15(11):358. doi:10.3390/md15110358.
- Zhong Y, Liu C, Feng J, Li JF, Fan ZC. Curcumin affects ox-LDL-induced IL-6, TNF-α, MCP-1 secretion and cholesterol efflux in THP-1 cells by suppressing the TLR4/NF-κB/miR33a signaling pathway. Exp Ther Med. 2020;20(3):1856-1870. doi:10.3892/etm.2020.8915.
- Zhu C et al. TRIM64 promotes ox-LDL-induced foam cell formation, pyroptosis, and inflammation in THP-1-derived macrophages by activating a feedback loop with NF-κB via IκBα ubiquitination. Cell Biol Toxicol. 2023;39(3):607-620. doi:10.1007/s10565-022-09768-4.
- Zhang G et al. OxLDL/β2GPI/anti-β2GPI Ab complex induces inflammatory activation via the TLR4/NF-κB pathway in HUVECs. Mol Med Rep. 2021;23(2):148. doi:10.3892/mmr.2020.11787.
- Zu YX et al. Jiang Gui Fang activated interscapular brown adipose tissue and induced epididymal white adipose tissue browning through the PPARγ/SIRT1-PGC1α pathway. J Ethnopharmacol. 2020;248:112271. doi:10.1016/j.jep.2019.112271.
- Zu X et al. Antidepressant-like effect of Bacopaside I in mice exposed to chronic unpredictable mild stress by modulating the hypothalamic-pituitary-adrenal axis function and activating BDNF signaling pathway. Neurochem Res. 2017;42(11):3233-3244. doi:10.1007/s11064-017-2360-3.
- Zong K et al. Explorating the mechanism of Huangqin Tang against skin lipid accumulation through network pharmacology and experimental validation. J Ethnopharmacol. 2023;313:116581. doi:10.1016/j.jep.2023.116581.
- Zou Y et al. Huangqin Tang ameliorates dextran sodium sulphate-induced colitis by regulating intestinal epithelial cell homeostasis, inflammation and immune response. Sci Rep. 2016;6:39299. doi:10.1038/srep39299.
- Zou Y et al. Huangqin Tang ameliorates TNBS-induced colitis by regulating effector and regulatory CD4(+) T cells. Biomed Res Int. 2015;2015:102021. doi:10.1155/2015/102021.
- Wang D et al. Huangqin tang alleviates colitis-associated colorectal cancer via amino acid homeostasis and PI3K/AKT/mTOR pathway modulation. J Ethnopharmacol. 2024;334:118597. doi:10.1016/j.jep.2024.118597.
- Zhu X, Zhou Y, Cai W, Sun H, Qiu L. Salusin-β mediates high glucose-induced endothelial injury via disruption of AMPK signaling pathway. Biochem Biophys Res Commun. 2017;491(2):515-521. doi:10.1016/j.bbrc.2017.06.126.
- Zhu J, Chen H, Guo J, Zha C, Lu D. Sodium tanshinone IIA sulfonate inhibits vascular endothelial cell pyroptosis via the AMPK signaling pathway in atherosclerosis. J Inflamm Res. 2022;15:6293-6306. doi:10.2147/JIR.S386470.
- Kim J et al. Inhibition of Toll-like receptors alters macrophage cholesterol efflux and foam cell formation. Int J Mol Sci. 2024;25(12):6808. doi:10.3390/ijms25126808.
- Zuo J, Guo S, Qin X. Bisdemethoxycurcumin suppresses the progression of atherosclerosis and VSMC-derived foam cell formation by promoting lipophagy. Naunyn Schmiedebergs Arch Pharmacol. 2023;396(12):3659-3670. doi:10.1007/s00210-023-02558-7.
- Zong P et al. TRPM2 deficiency in mice protects against atherosclerosis by inhibiting TRPM2-CD36 inflammatory axis in macrophages. Nat Cardiovasc Res. 2022;1(4):344-360. doi:10.1038/s44161-022-00027-7.
- Sag D, Carling D, Stout RD, Suttles J. Adenosine 5'-monophosphate-activated protein kinase promotes macrophage polarization to an anti-inflammatory functional phenotype. J Immunol. 2008;181(12):8633-8641. doi:10.4049/jimmunol.181.12.8633.
- Chen B, Li J, Zhu H. AMP-activated protein kinase attenuates oxLDL uptake in macrophages through PP2A/NF-κB/LOX-1 pathway. Vascul Pharmacol. 2016;85:1-10. doi:10.1016/j.vph.2015.08.012.
- Chawla A et al. A PPARγ-LXR-ABCA1 pathway in macrophages is involved in cholesterol efflux and atherogenesis. Mol Cell. 2001;7(1):161-171. doi:10.1016/S1097-2765(01)00164-2.
- Saenz J et al. Grapefruit flavonoid naringenin regulates the expression of LXRα in THP-1 macrophages by modulating AMP-activated protein kinase. Mol Pharm. 2018;15(5):1735-1745. doi:10.1021/acs.molpharmaceut.7b00797.
- Larrede S et al. Stimulation of cholesterol efflux by LXR agonists in cholesterol-loaded human macrophages is ABCA1-dependent but ABCG1-independent. Arterioscler Thromb Vasc Biol. 2009;29(11):1930-1936. doi:10.1161/ATVBAHA.109.194548.
- Zhao GJ et al. Antagonism of betulinic acid on LPS-mediated inhibition of ABCA1 and cholesterol efflux through inhibiting nuclear factor-kappaB signaling pathway and miR-33 expression. PLoS One. 2013;8(9):e74782. doi:10.1371/journal.pone.0074782.
- Zhai T et al. Unique immunomodulatory effect of paeoniflorin on type I and II macrophages activities. J Pharmacol Sci. 2016;130(3):143-150. doi:10.1016/j.jphs.2015.12.007.
- Mei J et al. Tetramethylpyrazine and Paeoniflorin Synergistically Attenuate Cholesterol Efflux in Macrophage Cells via Enhancing ABCA1 and ABCG1 Expression. Evid Based Complement Alternat Med. 2022;2022:4304790. doi:10.1155/2022/4304790.
- Cao Y et al. Paeoniflorin suppresses kidney inflammation by regulating macrophage polarization via KLF4-mediated mitophagy. Phytomedicine. 2023;116:154901. doi:10.1016/j.phymed.2023.154901.
- Martinez Molina D et al. Monitoring drug target engagement in cells and tissues using the cellular thermal shift assay. Science. 2013;341(6141):84-87. doi:10.1126/science.1233606.
- Xue J et al. Transcriptome-based network analysis reveals a spectrum model of human macrophage activation. Immunity. 2014;40(2):274-288. doi:10.1016/j.immuni.2014.01.006.