신장형 선충(Reniform nematode) 감염은 면화의 수확량과 섬유 품질을 현저히 감소시킵니다. 리그닌은 식물 세포벽을 강화하고 해충에 대한 구조적 방어에 기여하지만, 면화의 신장형 선충 저항성에서 리그닌의 역할은 아직 조사되지 않았습니다. 본 연구에서는 플로로글루시놀(phloroglucinol) 염색을 이용하여 신장형 선충 저항성 및 감수성 면화(Gossypium arboreum) 유전자형의 뿌리 내 리그닌 침착을 시각화하기 위한 조직화학적 워크플로우를 설명합니다.
이 논문에서
요약
초록
콩 모양 선충(Rotylenchulus reniformis)은 특히 미국 남부 지역의 면화 생산에 큰 제약이 되는 주요 요인입니다. 콩 모양 선충은 400종 이상의 선충 종 중에서 두 번째로 중요한 해충입니다. 이러한 선충들은 글로벌 식량 안보에 위협이 됩니다. 환경 및 인체 건강에 대한 우려가 증가하고 살선충제의 비용이 상승함에 따라 저항성 면화 유전자원에 대한 관심이 높아졌습니다. 식물 세포벽, 특히 리그닌은 생물학적 스트레스 저항성에 관여하는 중요한 바이오폴리머입니다. 선충은 뿌리 조직을 감염시키므로 리그닌과 같은 세포벽 성분이 방어에 기여할 수 있으나, 면화 뿌리의 리그닌 매개 장벽은 명확하게 규명되지 않았습니다. 본 연구에서는 비감염 조건의 진엽 단계에서 콩 모양 선충 저항성(A2-514, A2-995) 및 감수성 면화(Gossypium arboreum) 유전자형의 리그닌 침착 차이를 시각화하기 위해 표준화된 phloroglucinol-HCl 조직화학 염색 프로토콜을 사용하였습니다. 이 염색약은 결합합니다 구체적으로 산성 조건에서 리그닌의 코니페릴 알데하이드(coniferyl aldehyde) 및 시나필 알데하이드(sinapyl aldehyde)와 같은 하이드록시신나마알데하이드(hydroxy cinnamylaldehyde)와 반응하여 리그닌을 시각화할 수 있는 분홍빛 보라색을 생성합니다. 저항성 유전자형과 감수성 유전자형 사이에 뚜렷한 리그닌 염색 패턴이 관찰되었으며, 이는 리그닌 관련 구조적 방어의 잠재적 역할을 뒷받침합니다.
서론
면화는 섬유를 얻기 위해 전 세계적으로 재배되지만, 토양 전염성 병해충, 특히 상당한 수확량 손실을 초래할 수 있는 선충에 매우 취약합니다. 이 중 신장선충(Rotylenchulus reniformis)은 전 세계적으로 면화 및 기타 작물에 영향을 미치는 주요 병원균이며, 특히 미국 남부 지역에서는 감염 시 수확량이 50% 이상 감소할 수 있을 정도로 영향이 뚜렷합니다1. 이 미세한 토양 거주 생물은 면화 뿌기에 기생하며2, 수분과 영양분 흡수를 방해하고 섭식 부위를 형성함으로써 식물의 활력, 생물량 및 섬유 수확량을 저하시킵니다(그림 1). 신장선충 감염은 개화 시기를 늦추고, 다래의 크기와 수를 줄이며, 린트(lint) 품질을 저하시켜 면화 식물의 성장을 변화시킵니다3. 미시시피, 앨라배마, 루이지애나 주에서는 심각한 손실이 보고된 바 있습니다4. 선충 감염을 관리하기 위해 살선충제가 흔히 사용되지만, 높은 비용과 환경 및 인체 건강에 미치는 부정적인 영향으로 인해 대안의 필요성이 대두되었습니다5,6. 저항성 유전자원이 개발되는 것은 신장선충의 피해를 완화하는 유망한 접근 방식입니다4. 선충은 뿌리 조직 내부에서 섭식하므로, 세포벽 기반의 방어 기제, 특히 리그닌화(lignification)가 침입을 제한하고 병원균 유래 세포벽 분해 효소를 억제하며 선충 섭식 부위의 형성 및 확장을 제한한다는 가설이 세워졌습니다7,8,9. 강화된 리그닌화는 여러 식물 종에서 병원균 감수성 감소와 상관관계가 있는 것으로 나타났습니다10,11,12,13,14. 면화에 대한 이전 연구에서는 리그닌 및 laccase 유전자 발현이 Verticillium dahliae에 대한 저항성과 연관되어 있음이 밝혀졌으며15, Fusarium 저항성 및 감수성 품종에 대한 연구에서는 저항성 품종에서 더 높은 리그닌 수치가 확인되었습니다16. 리그닌 생합성 유전자의 억제가 감수성을 증가시킨 Arabidopsis 및 벼에서의 유사한 관찰 결과는 식물 방어에서 리그닌화의 중요성을 강조합니다.
리그닌은 관다발 식물의 2차 세포벽에서 발견되는 복잡한 페놀성 바이오폴리머로, 구조적 강성, 기계적 강도 및 소수성을 부여합니다17. 시키메이트 및 페닐프로파노이드 경로를 통해 합성되는 리그닌은 셀룰로오스 다음으로 가장 풍부한 지상 바이오폴리머이며, 지구 유기 탄소의 약 30%를 차지합니다18,19. 리그닌은 셀룰로오스-헤미셀룰로오스 네트워크를 강화함으로써 하중 지지 조직을 튼튼하게 하고 전반적인 식물 발달을 지원합니다. 리그닌은 특히 물관, 후각 조직, 체관 섬유 및 주피와 같은 고도로 전문화된 조직에서 두드러지며, 물과 미네랄의 효율적인 운송에 필수적인 방수 장벽을 형성합니다. 구조적 기능 외에도 리그닌은 생화학적 및 물리적 방어 장벽으로 작용하여 병원균의 침입을 제한하고 생물적 및 비생물적 스트레스로 인한 피해를 최소화합니다20,21,22. 리그닌화는 괴사성, 생물영양성 및 반생물영양성 병원균을 포함한 광범위한 병원균에 대한 저항성의 중심이 되는 역동적인 과정입니다. 주요 모노리그놀인 시나필, 코니페릴, p-쿠마릴 알코올로부터의 바이오합성은 종, 조직 유형 및 발달 단계에 따라 다르며 이는 저항성 정도에 영향을 미칩니다. 병원균의 침입이나 비생물적 스트레스는 종종 국소적인 리그닌 침착을 유발하여 식물 방어력을 더욱 강화합니다23,24.
reniform nematode 저항성에서 리그닌의 역할을 규명하는 것은 면화 관리 전략을 발전시키는 데 매우 중요합니다. 리그닌 분포에 대한 시각적 및 생화학적 특성 분석은 초기 방어 반응의 기초가 되는 세포벽 변형의 공간적 및 시간적 역동성에 대한 통찰을 제공합니다. 본 연구에서는 조직화학적 phloroglucinol 염색을 사용하여 reniform nematode 저항성 및 감수성 면화 유전자형에 자연적으로 존재하는 리그닌 침착 패턴을 분석함으로써, 세포벽 관련 저항성 형질을 평가하고 작물의 복원력 향상을 목표로 하는 육종 프로그램에 정보를 제공하기 위한 실용적인 예비 프레임워크를 제시합니다.
프로토콜
실험은 아래에 설명된 식물 재료를 사용하여 온실에서 수행되었습니다. 본 연구에 사용된 모든 화학 물질, 장비 및 시약은 재료 표에 상세히 기재되어 있습니다.
식물 재료
감수성 유전자원(A2‑20, PI 129742; A2‑40, PI 183202)과 저항성 유전자원(A2‑514, PI 616008; A2‑995, PI 629323) 모두에 대해 종자를 확보하였다. 또한, 감수성 품종인 Deltapine 16을 본 연구에 포함시켰다. 종자를 멸균수에 넣고 실온에서 24 h 동안 침지시켰다. 침지 후, 잔류 오염물을 제거하기 위해 신선한 멸균수로 종자를 충분히 세척하였다. 세척한 종자를 미리 적시고 고압 증기 멸균한 종이 타월을 깐 멸균 Petri 플레이트로 옮긴 후, 발아를 촉진하기 위해 실온에서 2일 동안 배양하였다(그림 2).
온실 식재
플라스틱 화분에 미리 적신 수분 조절용 상토를 채웠습니다. 토양은 이식 전 2일 동안 미리 적셔 두었습니다. 그 후 발아한 묘를 미리 적신 토양에 조심스럽게 이식하였으며, 본엽 단계에 도달할 때까지 28 °C/25 °C의 주야간 주기 조건의 제어된 온실 내에서 유지하였습니다(그림 2). 각 유전자형당 3개의 생물학적 반복구를 식재하였습니다.
시료 수집
본엽 단계의 식물을 뿌리 손상을 최소화하기 위해 주변 토양 배지를 헐겁게 하여 조심스럽게 흙에서 분리했습니다. 뿌리에 붙어 있는 토양 입자를 제거하기 위해 물로 2~3회 헹구었습니다. 각 유전자형의 뿌리와 줄기 조직을 절편 제작을 위해 수집했습니다(그림 3).
플로로글루시놀 염색액 준비
흄 후드 내에서 0.45 g의 phloroglucinol을 100% ethanol(10 mL) 2부와 농축 HCl(5 mL) 1부의 혼합액에 용해하여 3% phloroglucinol 용액을 조제하였다. 염색 용액은 이전에 기술된 방법16에 따라 조제하였다.
리그닌의 조직화학적 분석을 위한 절편 준비 및 염색 절차
멸균된 면도날을 사용하여 뿌리와 줄기 조직을 절단하여 얇은 횡단면을 얻었습니다(그림 3). 신선한 절편을 현미경 슬라이드로 옮기고 3% phloroglucinol 염색액 20 µL를 1분 동안 처리했습니다. 그 후 절편을 멸균수로 세척하고 커버글라스를 덮어 고정한 뒤 이미지를 촬영했습니다(그림 4, 그림 5, 그림 6). 줄기 조직에 대해서도 동일한 절차를 수행했습니다(부록 그림 1).
현미경 이미지 촬영
디지털 현미경을 사용하여 이미징을 수행하였습니다. 염색된 조직 샘플이 포함된 준비된 유리 슬라이드를 이미징을 위해 현미경 플랫폼 위에 배치하였습니다. 현미경 이미징 소프트웨어를 초기화한 후, 명시야 모드에서 100x, 200x, 300x의 원하는 배율을 선택하였습니다. 조직 절편 내의 리그닌 염색 패턴을 명확하게 시각화하기 위해 조동 및 미동 초점 조절을 수행하였습니다. 이미지는 각각의 샘플 식별 번호와 함께 기록하고 저장하였습니다. 이후 저항성 및 감수성 유전자형의 이미지를 검토하여 리그닌 염색의 차이를 평가하는 비교 분석을 수행하였습니다. ImageJ를 사용하여 저항성 및 감수성 유전자형의 이미지를 비교하였으며, 균일한 임계값을 적용하여 염색된 면적의 백분율 차이를 결정하였습니다. 세 개의 반복구가 모두 처리된 후 결과는 CSV 파일로 내보냈습니다. 그 다음 저항성 및 감수성 유전자형을 비교하기 위한 그래프를 작성하였습니다.
결과
저항성 및 감수성 면화 유전형의 조직화학적 분석
진성엽 단계에서 뿌리와 줄기의 횡단면을 조직화학적으로 검사한 결과, 그림 4, 그림 5 및 부록 그림 1(줄기 횡단면)에서 보여지는 바와 같이 저항성 유전자형과 감수성 유전자형 사이에 시각적 차이가 나타났다. 고배율(100x–300x) 관찰을 통해 이러한 차이를 상세히 확인할 수 있었다(저항성 유전자형은 그림 4A–C 및 그림 5A–C, 감수성 유전자형은 그림 4D–F 및 그림 5D–F). 리그닌 염색 패턴은 조직 유형별로 다르게 나타났는데, 저항성 유전자형은 줄기에서 낮거나 유사한 리그닌 염색 패턴을 보인 반면, 감수성 유전자형은 시각적으로 상대적으로 더 높은 줄기 리그닌화를 나타냈다(부록 그림 1A–D).
리그닌 염색의 정량적 이미지 분석
본 연구에 포함된 감수성 품종인 Deltapine 16은 염색 면적 백분율 값이 12, 17.8, 16.3으로 더 낮은 리그닌 염색 양상을 보였습니다(Figure 6A–C, Figure 6D). 감수성 유전형 A2-40의 염색 면적 백분율 값은 25.2, 19.9, 28.75였으며, 저항성 유전형인 A2-995는 54.95, 58.71, 69.85의 염색 면적 백분율 값을 나타냈습니다(Figure 7). 반면, A2-20은 16.6, 21.3, 20.4의 염색 면적 백분율 값을 가졌고, A2-514는 49.8, 34.1, 43.38의 염색 면적 백분율 값을 보였습니다(Figure 8). 비교 분석 결과 p-값은 0.06으로 나타났습니다. 이러한 값들은 서로 다른 임계값을 사용하여 생성되었기 때문에, 반복 실험 간의 재현성을 보장하기 위해 동일한 색상(hue), 채도(saturation) 및 명도(brightness) 임계값을 적용한 균일 임계값 ImageJ 분석을 수행하였습니다. 저항성 유전형(A2-514)은 감수성 유전형(A2-20)보다 상대적으로 더 강한 염색 양상을 보였습니다. 염색 면적 백분율은 절편 내 전체 조직 픽셀 대비 리그닌 양성 픽셀의 비율로 계산되었습니다. 감수성 유전형 A2-20과 저항성 유전형 A2-514의 균일 임계값 정량 비교 결과는 Figure 9에 제시되어 있습니다. 전반적으로, 균일 임계값 분석을 통해 이러한 유전형 간에 유전형 특이적인 리그닌화 차이가 존재함이 입증되었습니다.
데이터 가용성:
원시 데이터는 보충 파일로 추가되었습니다.
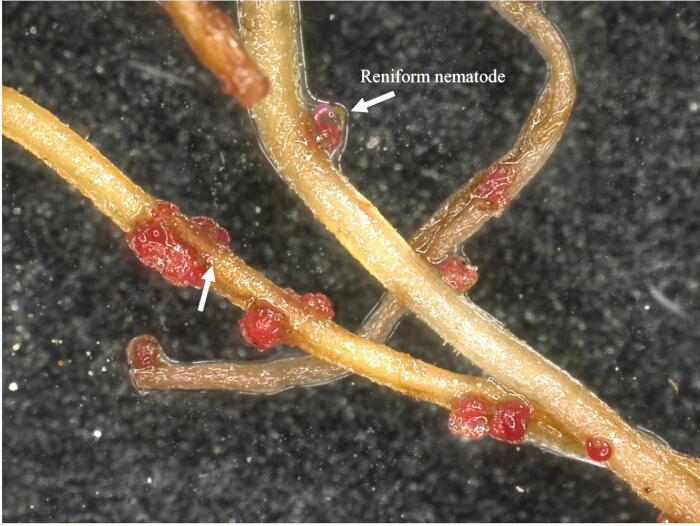
그림 1: 면화 뿌리를 섭식하는 신장형 선충의 현미경 관찰상. 빨간색 식용 색소로 염색한 후 50배 배율로 관찰한 면화 뿌리를 섭식하는 신장형 선충의 모습이다. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
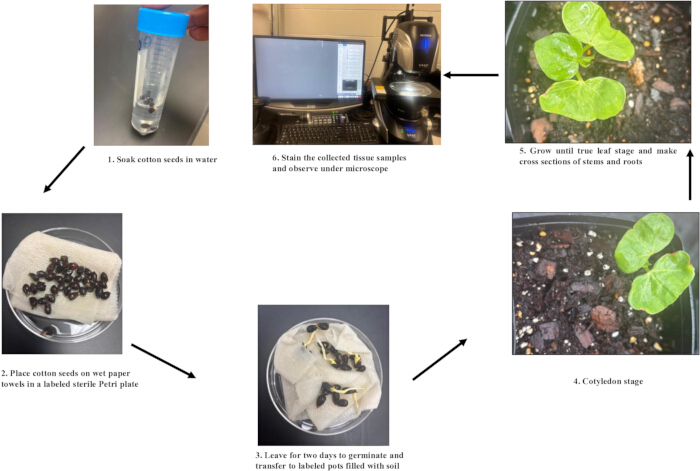
그림 2: 리그닌 조직화학 분석을 위한 식물 시료 준비. 작업 흐름은 다음 단계로 구성된다: (1) 면화 종자를 물에 담가둡니다; (2) 라벨이 부착된 멸균 페트리 접시의 젖은 종이 타월 위에 종자를 배치합니다; (3) 종자를 2일 동안 발아시킨 후, 흙이 담긴 라벨 부착 화분에 묘목을 옮깁니다; (4) 묘목을 떡잎 단계까지 성장시킵니다; (5) 식물을 본엽 단계까지 계속 성장시킨 후 줄기와 뿌리의 횡단면을 준비합니다; (6) 수집한 조직 절편을 염색하고 현미경으로 관찰합니다. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
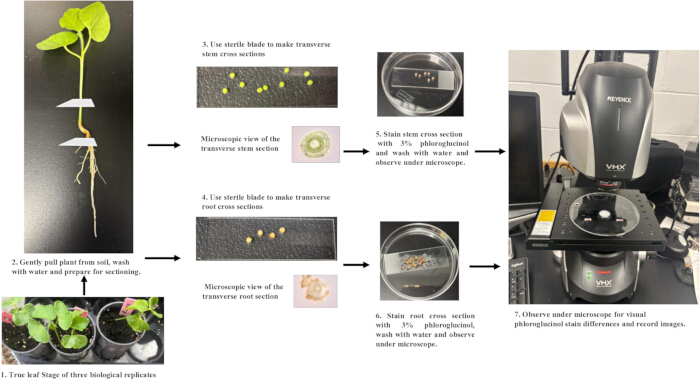
그림 3: phloroglucinol-HCl를 이용한 면화 뿌리 및 줄기 절편의 수집 및 염색. 워크플로는 다음과 같은 단계로 구성됩니다: (1) 세 개의 생물학적 반복구를 본엽 단계까지 성장시킵니다; (2) 식물을 토양에서 조심스럽게 분리하여 물로 세척하고 절편 제작 준비를 합니다; (3) 멸균된 칼날을 사용하여 줄기 횡단면 절편을 제작합니다; (4) 멸균된 칼날을 사용하여 뿌리 횡단면 절편을 제작합니다; (5) 줄기 절편을 3% phloroglucinol-HCl로 염색하고 물로 헹군 후 현미경으로 관찰합니다; (6) 뿌리 절편을 3% phloroglucinol-HCl로 염색하고 물로 헹군 후 현미경으로 관찰합니다; (7) 염색된 절편을 현미경으로 관찰하여 phloroglucinol 염색 차이를 시각화하고 이미지를 기록합니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
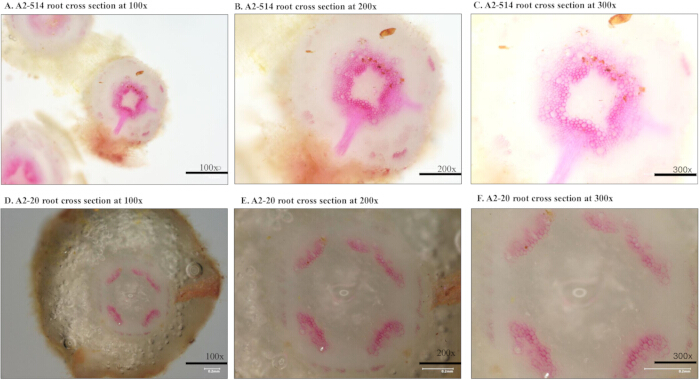
그림 4A2-514 및 A2-20 면 품종의 뿌리 횡단면 내 리그닌 염색저항성 유전자형 A2-514의 리그닌 염색된 뿌리 횡단면 (A) 100배, (B) 200배, 그리고 (C) 300배 배율. 감수성 유전자형 A2–20의 리그닌 염색된 뿌리 횡단면 (D) 100배, (E) 200배, 그리고 (F) 300배 확대. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
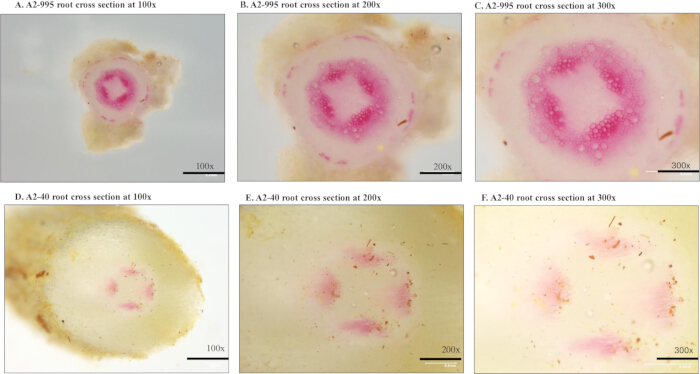
그림 5: 면화 유전자형 A2-995 및 A2-40의 뿌리 횡단면 리그닌 염색. 저항성 유전자형 A2-995의 리그닌 염색 뿌리 횡단면: (A) 100x, (B) 200x, (C) 300x 배율. 감수성 유전자형 A2-40의 리그닌 염색 뿌리 횡단면: (D) 100x, (E) 200x, (F) 300x 배율. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
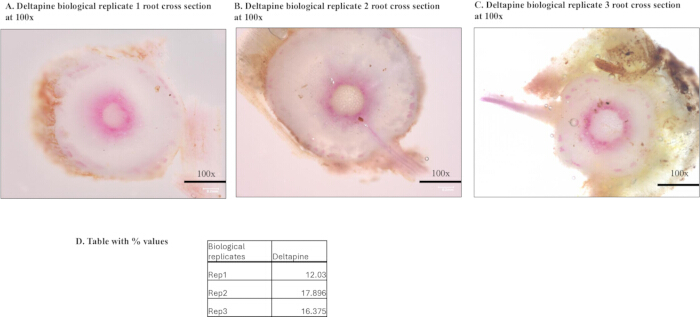
그림 6: Deltapine 16의 횡단 뿌리 단면의 리그닌 염색 및 정량 분석. 감수성 품종인 Deltapine 16의 세 가지 생물학적 반복구에 대한 100배 배율의 리그닌 염색 횡단 뿌리 단면: (A) 생물학적 반복구 1, (B) 생물학적 반복구 2, (C) 생물학적 반복구 3. (D>) 정량적 ImageJ 분석을 통해 결정된 세 가지 생물학적 반복구의 염색 면적 백분율. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
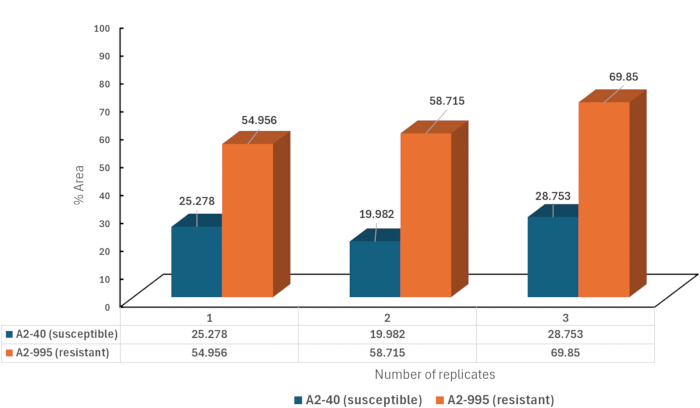
그림 7: A2-40 및 A2-995 면화 유전자형의 리그닌 염색 정량 분석. 감수성 유전자형 A2-40 및 저항성 유전자형 A2-995의 생물학적 3회 반복 실험에 대해 ImageJ 분석으로 결정한 염색 면적 백분율. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
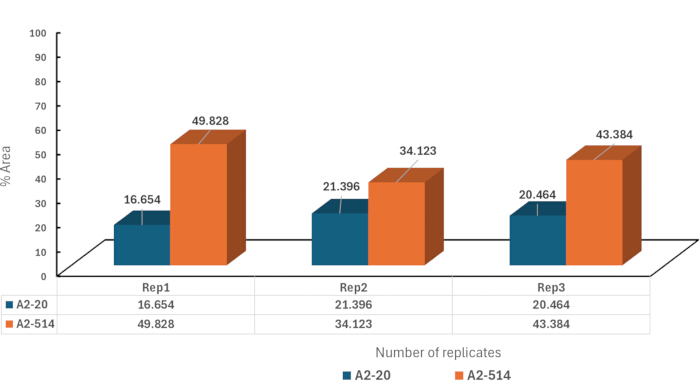
그림 8: 면화 유전자형 A2-20 및 A2-514의 리그닌 염색 정량 분석. 감수성 유전자형 A2-20 및 저항성 유전자형 A2-514의 생물학적 반복구 3회에 대해 ImageJ 분석으로 결정한 염색 면적 백분율. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
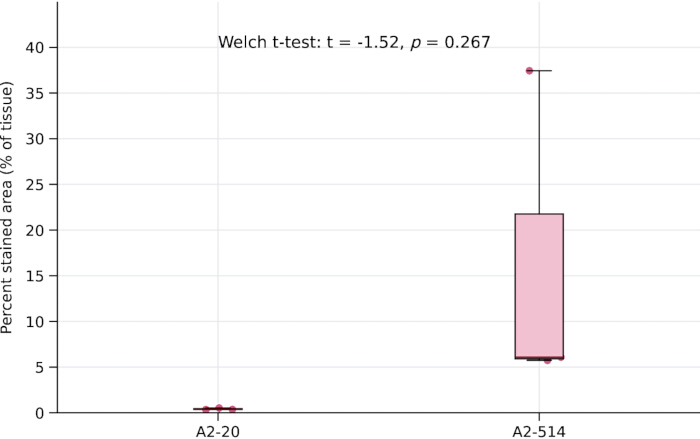
그림 9: A2-20 및 A2-514 면화 유전자형의 리그닌 염색에 대한 균일 임계값 정량 분석. 균일 임계값 이미지 분석 후 감수성 유전자형 A2-20 및 저항성 유전자형 A2-514의 염색 면적 백분율. 통계적 비교는 Welch's t-test(t = −1.52, p = 0.267)를 사용하여 수행되었다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
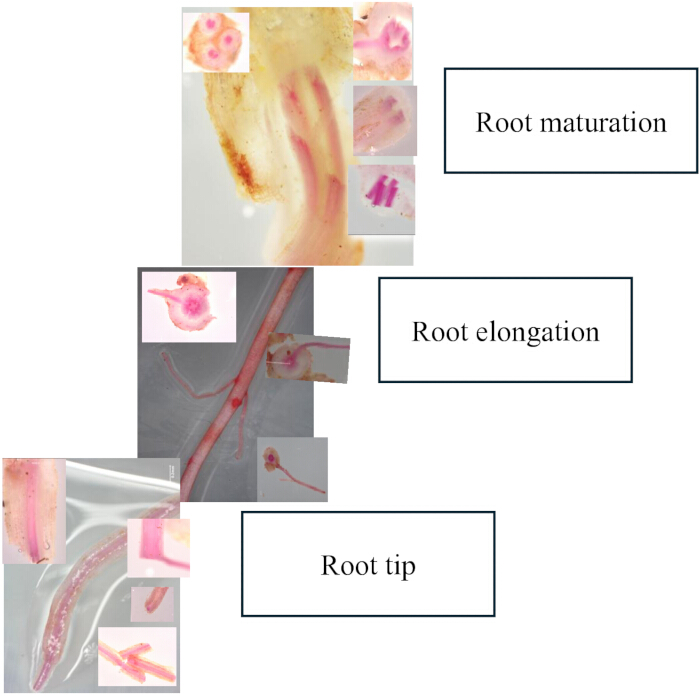
그림 10: 다양한 뿌리 영역의 리그닌 염색 시각화. 뿌리 성숙 영역, 뿌리 신장 영역 및 뿌리 끝 영역의 리그닌 염색을 보여주는 대표 이미지. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
보충 그림 1: 저항성 및 감수성 면화 유전자형의 줄기 횡단면 리그닌 염색. 100배 배율의 리그닌 염색된 줄기 횡단면으로 (A) 감수성 A2-20, (B) 저항성 A2-514, (C) 감수성 A2-40, (D) 저항성 A2-995의 모습이다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
식물 세포벽과 결합된 리그닌은 선충을 포함한 해충에 대응하는 중요한 물리적 장벽 역할을 합니다. 본 연구에서 저항성 및 감수성 면화 유전자형은 리그닌 염색에서 뚜렷한 시각적 차이를 보였으며, 이는 이전에 보고된 Fusarium 저항성 및 감수성 품종과 유사한 패턴을 나타냈습니다. 염색을 통해 뿌리의 성숙대, 신장대 및 뿌리 끝 부위 전반에 걸친 리그닌 분포를 명확하게 시각화할 수 있었으며, 리그닌 강도는 뿌리 상단에서 끝부분으로 갈수록 점진적으로 증가했습니다(그림 10). 이러한 패턴은 유용한 해부학적 통찰을 제공하지만, 선충 감염에 반응한 리그닌 역학은 본 연구에서 평가되지 않았으므로 향후 연구를 통한 확인이 필요합니다. 이전 연구들은 병원균의 존재가 리그닌 생합성을 유도할 수 있음을 시사하며, 이는 선충의 압박 하에서 리그닌 변화를 조사해야 할 필요성을 뒷받침합니다. 리그닌의 양과 성분에 대한 생화학적 분석을 통합한다면, 이들 유전자형에서 관찰된 염색 패턴의 해석을 더욱 강화할 수 있을 것입니다. 종합적으로, 이러한 결과는 면화의 신장선충 저항성에서 리그닌 매개 구조적 방어의 역할을 강조하며, 이러한 특성을 규명하는 데 있어 phloroglucinol 염색의 유용성을 입증합니다. 해부학적, 생화학적, 분자적 접근법을 지속적으로 통합함으로써 리그닌 생합성과 신장선충에 대한 지속적인 저항성 발달에 기여하는 바를 더욱 깊이 이해할 수 있을 것입니다.
공개 사항
저자들은 공개할 사항이 없습니다.
면책 조항
USDA는 기회균등 제공자, 고용주 및 대출 기관입니다. 본 간행물에서 언급된 상표 또는 상업적 제품은 오직 구체적인 정보를 제공하기 위한 목적이며, 미국 농무부의 추천이나 보증을 의미하지 않습니다. 본 논문의 결과와 결론은 저자의 의견이며, USDA나 미국 정부의 공식적인 결정이나 정책을 나타내는 것으로 해석되어서는 안 됩니다.
감사의 글
저자들은 본 연구에 사용된 현미경 실험실 시설을 이용할 수 있도록 지원해주신 Katherine Parys 박사님께 감사드립니다. 또한, 원고를 개선하는 데 도움과 제안을 주신 Junping Chen 박사님과 Abdulraheem 박사님께도 감사드립니다. 본 연구는 USDA-ARS 프로젝트 6066-21000-053-00D의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 수분 조절 배양토 | Miracle-Gro | 073561005197 032247557832 | Amazon 웹사이트 |
| 현미경 | Keyence VHX | VHX3000 | 비교 가능한 모든 명시야 현미경 사용 가능 |
| 멸균 면도날 | Workpro | W018057 | Amazon 웹사이트 |
| 커팅 보드 | Freshware | 15.75"L x 9.8"W x 0.3"Th | Amazon 웹사이트 |
| 슬라이드 및 커버글라스 | Amscope | BS-50P-100S-22X4 | 모든 브랜드 사용 가능. 본 제품은 Amazon에서 구매 가능 |
| 멸균수/ 증류수/ 오토클레이브 멸균수 | Gibco | 15230147 | 모든 브랜드의 멸균 오토클레이브 멸균수 사용 가능 |
| Phloroglucinol 염색액 | Fischer Scientific | AC241761000 | Fischer Scientific에서 구매 가능 |
| 농축 HCl | Fischer Scientific | CAS: 7647-01-0 | Fischer Scientific에서 구매 가능 |
| 절대 에탄올 | Fischer Scientific | 64-17-5 | Fischer Scientific에서 구매 가능 |
| 화분 | BTPLASTIK | B0DSBQMXHN | 모든 플라스틱 화분 사용 가능, Amazon에서 구매 가능 |
| 페트리 접시 | Kingdder | B0BS95MCGS | Amazon에서 구매 가능하며 모든 타사 브랜드 사용 가능 |
| 종이 타월 | Tork | MB540A | Amazon에서 구매 가능하며 모든 타사 브랜드 사용 가능 |
| Image J | 소프트웨어 | 온라인 이용 가능 | 무료로 사용 가능한 소프트웨어 |
참고문헌
- Robinson AF. Reniform in US cotton: when, where, why, and some remedies. Annu Rev Phytopathol. 2007;45(1):263-88.
- Li R, Erpelding JE, Stetina SR. Genome-wide association study of Gossypium arboreum resistance to reniform nematode. BMC Genet. 2018;19(1):52.
- Koebernick JC et al. Response to nematicide by cotton genotypes varying in reniform nematode resistance. Crop Sci. 2021;61(2):929-35.
- Singh B et al. Reniform nematode impact on cotton growth and management strategies: A review. Agron J. 2023;115(5):2140-58.
- Riga E. The effects of Brassica green manures on plant parasitic and free-living nematodes used in combination with reduced rates of synthetic nematicides. J Nematol. 2011;43(2):119.
- Khanal C, McGawley EC, Overstreet C, Stetina SR. The elusive search for reniform nematode resistance in cotton. Phytopathology. 2018;108(5):532-41.
- Moura JCMS et al. Abiotic and biotic stresses and changes in the lignin content and composition in plants. J Integr Plant Biol. 2010;52(4):360-76.
- Schutzendubel A, Polle A. Plant responses to abiotic stresses: heavy metal-induced oxidative stress and protection by mycorrhization. J Exp Bot. 2002;53(372):1351-65.
- Liu Q et al. Transcriptional and physiological analyses identify a regulatory role for hydrogen peroxide in the lignin biosynthesis of copper-stressed rice roots. Plant Soil. 2015;387(1-2):323-36.
- Fujimoto T, Mizukubo T, Abe H, Seo S. Sclareol induces plant resistance to root-knot nematode partially through ethylene-dependent enhancement of lignin accumulation. Mol Plant Microbe Interact. 2015;28(4):398-407.
- Wang Y et al. CmMYB19 over-expression improves aphid tolerance in chrysanthemum by promoting lignin synthesis. Int J Mol Sci. 2017;18(3):619.
- Mandal S, Kar I, Mukherjee AK, Acharya P. Elicitor-induced defense responses in Solanum lycopersicum against Ralstonia solanacearum. ScientificWorldJournal. 2013;2013(1):561056.
- Santiago R, Barros-Rios J, Malvar RA. Impact of cell wall composition on maize resistance to pests and diseases. Int J Mol Sci. 2013;14(4):6960-80.
- Gallego-Giraldo L et al. Elicitors and defense gene induction in plants with altered lignin compositions. New Phytol. 2018;219(4):1235-51.
- Smit F, Dubery IA. Cell wall reinforcement in cotton hypocotyls in response to a Verticillium dahliae elicitor. Phytochemistry. 1997;44(5):811-15.
- Mendu L et al. Lignin and cellulose content differences in roots of different cotton cultivars associated with different levels of Fusarium wilt race 4 (FOV4) resistance-response. J Agric Food Res. 2022;10:100420.
- Tiwari RK et al. Mechanistic insights on lignin-mediated plant defense against pathogen infection. Plant Physiol Biochem. 2025;228:110224.
- Ralph J et al. Lignins: Natural polymers from oxidative coupling of 4-hydroxyphenyl-propanoids. Phytochem Rev. 2004;3(1):29-60.
- Dixon RA et al. The phenylpropanoid pathway and plant defence-a genomics perspective. Mol Plant Pathol. 2002;3(5):371-90.
- Vance CP, Kirk TK, Sherwood RT. Lignification as a mechanism of disease resistance. Annu Rev Phytopathol. 1980;18(1):259-88.
- Nicholson RL, Hammerschmidt R. Phenolic compounds and their role in disease resistance. Annu Rev Phytopathol. 1992;30(1):369-89.
- Shah SWA et al. Lignin-based additive materials: A review of current status, challenges, and future perspectives. Addit Manuf. 2023;74:103711.
- Yadav S, Chattopadhyay D. Lignin: the building block of defense responses to stress in plants. J Plant Growth Regul. 2023;42(10):6652-66.
- Weng JK, Chapple C. The origin and evolution of lignin biosynthesis. New Phytol. 2010;187(2):273-85.