본 프로토콜은 Styphnolobium japonicum 싹 추출물 내 rutin과 quercetin의 표적 HPLC 정량 분석 방법을 설명하며, 미세아교세포, 미세아교세포-신경세포 공동 배양 및 산화질소 결핍성 고혈압 모델에서 해당 추출물을 평가합니다. 전체 작업 흐름은 추출물 준비 과정과 신경 염증, 신경세포 스트레스, 혈압 및 뇌실곁핵 지표를 연계합니다.
연구 논문
HPLC로 정량 분석한 Styphnolobium japonicum 추출물이 L-NAME 처리된 쥐의 미세아교세포 염증 및 고혈압을 완화함
* These authors contributed equally
이 논문에서
요약
초록
시상하부 방실핵(PVN)의 신경염증은 교감신경 흥분과 고혈압의 원인이 될 수 있습니다. 본 연구에서는 표적 고성능 액체 크로마토그래피(HPLC)를 통해 루틴(rutin)과 퀘르세틴(quercetin) 함량을 정량화한 회화나무(Styphnolobium japonicum; 과거 Sophora japonica) 꽃눈 추출물(SJBE)을 평가하였습니다. 해당 추출물을 안지오텐신 II(Ang II)로 자극된 BV-2 미세아교세포, BV-2/mHypoA-2/10 수용성 인자 공동 배양 시스템, in vitro 고나트륨 신경세포 스트레스 조건, 그리고 Nω-nitro-L-arginine methyl ester (L-NAME)로 유도된 일산화질소 결핍 고혈압 쥐 모델에서 테스트하였습니다. 세포 독성이 없는 작동 농도에서 SJBE는 BV-2 세포의 염증 및 산화 스트레스 지표를 감소시켰으며, 안지오텐신 전환 효소 2(ACE2), Mas 수용체(MasR) 및 안지오텐신-(1-7) [Ang-(1-7)] 마커의 증가와 연관이 있었습니다. 공동 배양 시, SJBE는 염증 전이와 신경세포 스트레스를 감소시켰습니다. SJBE를 경구 투여한 결과, 꼬리 커프(tail-cuff) 혈압 측정값이 낮아졌으며, 이는 PVN 내 ACE2/MasR 및 Ang-(1-7)의 증가, Iba-1 및 c-Fos 염색의 감소, 그리고 혈중 노르에피네프린 및 사이토카인의 감소와 연관되었습니다. MLN-4760은 ACE2 관여에 대한 in vitro 기능적 근거를 제공하였으나, in vivo 경로 차단이나 뇌 노출 약동학 분석은 수행되지 않았습니다. 따라서 본 결과는 SJBE 투여와 신경염증 신호 감소 및 혈압 저하 사이의 연관성을 뒷받침하지만, 중추 경로의 인과관계를 입증한 것은 아닙니다.
서론
식물 추출물은 혈관 및 신경면역 질환의 다성분 조절제로 점점 더 많이 연구되고 있습니다. 이러한 추출물에 대한 해석은 명확한 기원 식물의 정체성, 분석 범위 및 화학적 일관성에 달려 있습니다. 과거에 Sophora japonica L.로 알려졌던 Styphnolobium japonicum (L.) Schott은 건조된 꽃봉오리 약재인 회화나무꽃(Flos Sophorae Immaturus 또는 Huai Mi)1,2를 생산합니다. 루틴(Rutin)은 이 약재의 주요 품질 지표 성분이며, 여기에는 다른 생성 활성 플라보노이드들도 포함되어 있습니다3. 추출 연구를 통해 루틴 및 관련 플라보노이드를 회수하기 위한 전통적인 방식과 강화된 방식들이 평가되었습니다4,5,6. 최근의 한 연구에서는 S. japonicum을 위한 더 친환경적인 루틴 추출 워크플로우에 대해서도 기술하고 있습니다7. 표적 HPLC는 미리 정의된 지표 성분을 효율적으로 정량화할 수 있는 반면, 더 광범위한 화학적 일관성 및 배치 간 일관성을 평가하기 위해서는 크로마토그래피 지문 분석이나 다성분 프로파일링이 필요합니다. 따라서 본 연구의 루틴 및 퀘르세틴 측정값은 완전한 파이토케미컬 프로파일로 해석되어서는 안 됩니다.
루틴(Rutin)과 퀘르세틴(quercetin)은 신경혈관 염증에서 S. japonicum 유래 추출물을 연구하기 위한 타당한 약리학적 근거를 제공합니다. 루틴과 S. japonicum 꽃 제제는 NF-kappaB 관련 반응 및 신경염증을 포함한 염증성 신호 전달의 감소와 연관이 있는 것으로 알려져 있습니다8. 실험 모델에서는 루틴이 신경염증 및 NF-kappaB 관련 조직 손상의 감소와 더 밀접하게 연관되어 있음이 밝혀졌습니다9. 퀘르세틴 또한 심혈관 생체 활성 및 염증-산화 환원 균형 개선과 연관이 있습니다10,11. 미세아교세포 모델에서 퀘르세틴은 활성화, 산화 스트레스 및 Toll-like receptor 4 (TLR4) 관련 염증성 신호 전달을 억제할 수 있습니다12,13.
고혈압은 단순한 혈관 질환이 아닙니다. 중추성 염증 회로 또한 교감신경 활성을 유지시킬 수 있습니다. 시상하부 실방성핵(PVN)은 심혈관 긴장도를 조절하는 신경내분비 및 자율신경 신호를 통합합니다. 뇌와 PVN의 미세아교세포 사이토카인은 신경성 고혈압과 연관이 있는 것으로 밝혀졌으며14, PVN 미세아교세포는 혈역학적 교란을 감지하여 교감신경 흥분을 촉진할 수 있습니다15. 이러한 관찰 결과는 PVN 내의 미세아교세포-신경세포 간 통신이 신경성 혈압 상승을 감소시키려는 중재법의 유효한 표적이 될 수 있음을 시사합니다16.
레닌-안지오텐신 시스템의 ACE2/Ang-(1-7)/Mas 수용체(MasR) 경로는 이 중심 네트워크 내에서 하나의 보호 경로를 제공합니다17,18. PVN에서의 ACE2 과발현은 안지오텐신 II로 유도된 고혈압을 완화하며 신경염증 감소와 연관이 있는 것으로 밝혀졌습니다19. PVN 내의 내인성 Ang-(1-7) 신호 전달 또한 교감신경 유출을 조절합니다20. Ang II는 PVN 미세아교세포의 안지오텐신 II 1형 수용체(AT1)/TLR4 관련 산화환원 경로를 활성화하여, 레닌-안지오텐신 스트레스와 신경염증을 연결할 수 있습니다21. 고나트륨 세포 조건은 in vitro 스트레스 유발 요인으로만 사용되었으며, L-NAME 동물 모델의 대용으로 사용된 것이 아닙니다. 표적 HPLC를 통해 루틴과 퀘르세틴 함량을 정량화한 S. japonicum 싹 추출물(SJBE)이 이러한 미세아교세포-뉴런 접점에서 미세아교세포 염증을 억제할 수 있는지는 아직 규명되지 않았습니다. 본 워크플로우는 표적 마커 정량 분석을 미세아교세포 및 수용성 인자 공배양, 그리고 L-NAME으로 유도된 산화질소 결핍 고혈압 모델과 결합한 것입니다. 이는 정의된 SJBE 조제물의 가설 기반 비교를 위한 것이며, 포괄적인 식물 화학적 프로파일링이나 뇌 노출 입증을 위한 것이 아닙니다. 또한 L-NAME 실험은 특별히 PVN 중심의 신경성 고혈압을 모델링한 것이 아닙니다. 본 연구에서는 SJBE가 Ang II로 유도된 미세아교세포 염증을 억제하고, 시상하부 뉴런의 염증 신호를 제한하며, L-NAME 처리 쥐의 혈압을 낮추는지, 그리고 이러한 결과가 ACE2/Ang-(1-7)/MasR 마커와 관련이 있는지를 테스트하였습니다.
프로토콜
모든 동물 실험 절차는 산시 다퉁 대학교(Shanxi Datong University) 의생명 연구 윤리 심의 위원회의 승인을 받았으며(승인 번호 2021029; 승인 기간 2021년 8월~2024년 2월), 실험동물의 관리 및 사용에 관한 기관 지침에 따라 수행되었습니다. 사용된 시약 및 장비는 재료 표에 기재되어 있습니다.
재료 및 시약
건조된 미개화 상태의 Styphnolobium japonicum (L.) Schott (동의어 Sophora japonica L.; 콩과; Flos Sophorae Immaturus/Huai Mi) 꽃봉오리를 사용하였다. 식물 재료는 추출 전, 중국 베이징의 국가식품약품감독관리국(NIFDC)에서 제공한 인증된 Sophorae Flos 표준 물질(Cat. No. 121270; Batch No. 121270-201403)과 비교하여 확인하였다. Rutin (98%, HPLC)과 quercetin (98%, HPLC)을 표준 물질로 사용하였다. Ang II, MLN-4760, L-NAME 및 valsartan은 명시된 대로 사용하였다. 기타 시약 및 장비는 재료 표에 나열되어 있다.
S. japonicum 싹 추출물의 조제 및 품질 관리
꽃봉오리를 80 °C 오븐에서 항량에 도달할 때까지 건조한 후, 분쇄하여 85-mesh 체로 걸렀다. 분말을 85% 에탄올을 사용하여 시료 대 용매 비율 1:20 (w/v)로 80 °C에서 회전 증발 추출(reflux-extraction)하였으며, 1회 추출당 1.5 h씩 총 2회 반복하였다. 여과액을 합쳐 60 °C 감압 농축하여 걸쭉한 추출물로 만든 뒤, −80 °C에서 예비 냉동시키고 48–72 h 동안 동결 건조하였다. 추출 수율은 건조 추출물 질량을 건조 생약 질량으로 나누어 계산하였으며, 분량별로 나눈 SJBE 분말은 반복적인 동결-융해 사이클이나 수분 노출이 없는 조건에서 보관하였다.
UV-vis 포토다이오드 어레이 검출기가 장착된 장비를 사용하여 고성능 액체 크로마토그래피(HPLC)를 수행하였다. 분석물은 C18 역상 컬럼(250 mm × 4.6 mm, 5 µm)에서 메탄올-물(65:35, v/v)을 1.0 mL/min의 유속으로 등용리 용리하여 분리하였다. 컬럼 온도는 35 °C로 유지하였으며, 검출 파장은 360 nm, 주입 부피는 20 µL, 분석 시간은 20 min으로 설정하였다. SJBE는 메탄올 내에서 1.0 mg/mL 농도로 조제하였다. 루틴(rutin) 검정 표준물질은 10 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL, 300 µg/mL, 400 µg/mL의 7가지 단계로 준비하였으며, 퀘르세틴(quercetin) 검정 표준물질은 0.5 µg/mL, 1 µg/mL, 2.5 µg/mL, 5 µg/mL, 10 µg/mL, 25 µg/mL, 50 µg/mL의 7가지 단계로 준비하였다. 표준물질과 시료는 0.22 µm 폴리테트라플루오로에틸렌 막 필터로 여과하였으며, 여과액의 처음 0.5 mL는 버리고 나머지를 HPLC 바이알에 옮겼다. 각 검정 단계는 2회 반복 주입하였고, 각 SJBE 조제물은 3회 반복 주입하였다. 루틴과 퀘르세틴은 표준품과 ±2% 이내의 유지 시간 일치 여부 및 일치하는 포토다이오드 어레이 스펙트럼을 통해 확인하였다. 각 마커 성분은 외표준법으로 정량하였으며, 검출기 응답이 적용 가능한 검정 범위를 벗어난 경우 희석된 시료를 재분석하였다.
분석 성능, 시스템 적합성 및 배치 평가
지정된 7개 수준에 걸쳐 농도 대비 피크 면적의 최소제곱 회귀 분석을 통해 선형성을 평가하였습니다. R2 값이 최소 0.999 이상이고 잔차 도표에서 계통적 경향성이 나타나지 않을 때 검정 곡선을 승인하였습니다. 검출 한계와 정량 한계는 각각 신호 대 잡음비가 약 3 및 10인 지점에서 결정하였습니다. 메탄올 공시료, 혼합 표준 용액 및 SJBE 시료를 사용하여 특이성을 입증하였으며, 공용출 간섭 물질이 없고 분석 대상 물질의 스펙트럼이 표준 물질과 일치함을 확인하였습니다.
혼합 표준물질을 6회 연속으로 주입하여 주입 정밀도를 평가하였습니다. 일내 정밀도는 같은 날 수행한 6회의 측정값을 사용하여 평가하였고, 일간 정밀도는 3일 연속으로 측정하여 평가하였습니다. 반복성은 독립적으로 조제된 6개의 SJBE 용액을 사용하여 평가하였으며, 오토샘플러 안정성은 0 h, 4 h, 8 h, 12 h, 24 h에서 평가하였습니다. 회수율은 천연 마커 농도의 80%, 100%, 120% 수준에서 각 수준당 3개의 독립적인 스파이크 시료를 사용하여 평가하였습니다. 주입 정밀도는 피크 면적의 RSD ≤2.0%일 때 허용되었으며, 정밀도, 반복성 및 안정도는 RSD ≤3.0%일 때 허용되었고, 평균 회수율은 회수 RSD ≤3.0% 조건에서 95.0%–105.0%일 때 허용되었습니다.
각 분석 시퀀스 전에 혼합 표준물을 6회 주입하였다. 머무름 시간의 RSD가 ≤1.0%, 피크 면적의 RSD가 ≤2.0%, 분리능이 ≥1.5, 테일링 인자가 ≤2.0, 그리고 루틴 피크의 이론단수가 최소 5,000 이상일 때 시스템 적합성을 인정하였다. 어떤 기준이라도 충족되지 않을 경우, 컬럼을 다시 평형화하고 시스템 적합성 테스트를 반복하였다.
세 개의 독립적인 SJBE 추출 배치를 준비하여 분석하였다. 각 배치에 대해 360 nm에서의 전체 크로마토그램을 기록하였으며, rutin을 기준 피크로 정의하고, 재현 가능한 공통 피크들을 정렬한 후 상대 유지 시간, 상대 피크 면적 및 전체 프로파일 유사도를 계산하였다. 배치 수준의 지문 일관성은 유사도 ≥0.90, 공통 피크 상대 유지 시간 RSD ≤2.0%, 상대 피크 면적 RSD ≤5.0%일 때 인정되었다. 각 배치의 rutin 및 quercetin 함량을 전체 평균, 표준 편차 및 변동 계수와 함께 보고하였다.
세포 배양 및 처리
마우스 BV-2 미세아교세포주와 마우스 mHypoA-2/10 시상하부 신경세포주는 상업적 공급원으로부터 구입하였다. 세포는 공급업체에서 인증한 스톡을 해동하여 두 차례 계대 배양하며 확장하였으며, 종 특이적 PCR 방법으로 종 정체성을 확인하고, 실험 전 및 각 새 바이알 해동 후 마이코플라스마 음성임을 확인하였다. 계대 번호 3에서 20 사이의 세포를 사용하였다.
BV-2 및 mHypoA-2/10 세포는 10% fetal bovine serum과 1% penicillin-streptomycin이 첨가된 high-glucose DMEM에서 37 °C, 습도가 유지되는 5% CO₂ 인큐베이터 내에서 배양되었습니다. 배지는 2일마다 교체하였으며, 세포는 0.25% trypsin-EDTA를 사용하여 70%–80% confluence 상태에서 계대배양하였습니다. 세포는 처리 24시간 전에 분주하였으며, 70%–80% confluence 상태에서 실험을 시작하였습니다.
생존율 스크리닝을 위해 BV-2 세포를 0 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL 또는 400 µg/mL의 SJBE에 24시간 동안 노출시켰다. 염증 실험을 위해, 세포를 그림에 명시된 농도의 SJBE 또는 rutin (50 µmol/L)으로 1시간 동안 사전 배양한 후, 배지를 교체하지 않고 Ang II (100 nmol/L)를 추가하여 24시간 동안 더 배양하였다. ACE2 억제 실험의 경우, SJBE 처리 30분 전에 MLN-4760 (10 µmol/L)을 추가하고, SJBE 처리 1시간 후에 Ang II를 추가하였으며, 모든 약물을 24시간의 자극 기간 동안 유지하였다. 후속 기전 실험에는 100 µg/mL의 SJBE를 사용하였다. Ang II와 SJBE는 멸균 배양액으로 준비하였으며, MLN-4760과 rutin은 dimethyl sulfoxide 스톡으로 준비하였다. vehicle 대조군을 포함하여 모든 해당 그룹의 최종 dimethyl sulfoxide 농도는 0.1% (v/v)로 유지하였다. 세 차례의 독립적인 배양 실험을 수행하였으며, 각 실험 내 기술적 반복 웰(technical wells)의 평균값을 사용하였다.
세포 생존율 분석
BV-2 세포를 96-well 플레이트에 5 × 10³ cells/well 밀도로 분주하고 24시간 동안 배양하였습니다. 배지를 0 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL 또는 400 µg/mL의 SJBE가 포함된 신선한 배지로 교체하였습니다. 24시간 후, 10 µL의 CCK-8 시약을 첨가하고 세포를 37 °C에서 1시간 동안 배양하였습니다. 흡광도를 450 nm에서 측정하였으며, 세포 생존율은 처리하지 않은 대조군 well에 상대적인 값으로 표시하였습니다. 독립적인 배양 준비물을 생물학적 반복구로 사용하였으며, 기술적 반복 well은 실험 내 평균값을 구하는 용도로만 사용하였습니다.
ROS 수준 검출
처리 후, BV-2 세포를 10 µmol/L DCFH-DA가 포함된 무혈청 배지에서 37 °C 암실 상태로 30분 동안 배양하였다. 세포를 PBS로 두 번 세척하고, 떼어낸 후 40 µm 세포 스트레이너에 통과시켜 얼음처럼 차가운 PBS에 재부유시켰다. 488 nm 여기 및 FITC/530 ± 15 nm 방출 채널을 사용하는 유세포 분석기를 통해 샘플당 최소 10,000개의 단일 세포 이벤트를 획득하였다. 전방 산란(forward-scatter) 및 측방 산란(side-scatter) 면적을 기준으로 주요 세포군을 게이팅하였으며, 전방 산란 면적 대비 높이를 사용하여 더블릿(doublets)을 제외하였고, 무염색 대조군을 사용하여 형광 경계선을 설정하였다. 이 단색 분석에서는 스펙트럼 보정이 필요하지 않았다. 모든 코딩된 샘플에 동일한 게이트 템플릿을 적용하였으며, 평균 형광 강도를 보고하였다.
TUNEL 염색
공동 배양 후, 하단 챔버의 신경세포를 4% 파라포름알데히드로 30분 동안 고정하고, PBS로 3회 세척한 뒤, PBS에 포함된 0.3% Triton X-100으로 5분 동안 투과화했습니다. 웰당 총 50 µL의 TUNEL 반응 혼합물을 첨가하고, 세포를 37 °C 암소에서 60분 동안 배양했습니다. 시료를 3회 세척하고, 1 µg/mL DAPI로 10분 동안 핵을 대조 염색한 후 시료를 마운팅했습니다. 그룹당 독립적으로 준비된 5개의 공동 배양 시료 각각에 대해, 동일한 노출 설정으로 200× 배율에서 미리 선택된 겹치지 않는 3개 영역을 촬영했습니다. ImageJ에서 고정 임계값을 사용하여 DAPI 양성 핵 대비 TUNEL 양성 핵의 비율(%)을 정량화했습니다. 통계 분석 전, 3개 영역의 평균값을 구해 배양 수준의 단일 값으로 산출했습니다.
뉴런-미세아교세포 공동 배양 실험
수용성 인자에 의해 매개되는 비접촉성 통신을 모델링하기 위해, 0.4 µm 폴리카보네이트 막과 약 0.33 cm2의 배양 면적을 가진 24-well Transwell 인서트를 사용하였다. mHypoA-2/10 세포를 하단 웰에 600 µL 배지와 함께 1 × 10⁵ cells 농도로 분주하였고, BV-2 세포를 인서트에 100 µL 배지와 함께 2 × 10⁵ cells 농도로 분주하였다. 조립 전 세포를 하룻밤 동안 배양하였다. 상기 기술된 처리 순서에 따라 Ang II, SJBE, MLN-4760, rutin 및 각각의 대조군(vehicle)을 상단 BV-2 구획에 처리하였다. 추가적인 고나트륨 스트레스 군의 경우, 하단 신경세포 구획에 NaCl을 첨가하여 최종 농도를 30 mmol/L 증가시켰다. 조립된 공동 배양 시스템은 24 h 동안 유지되었다.
마이크로그리아 사이토카인 및 신호 전달 분석을 위해 상단 챔버 배지와 BV-2 세포를 수집하였으며, Ang-(1-7), qPCR, 면역블롯 분석 및 TUNEL 분석을 위해 하단 챔버 배지와 신경 세포를 각각 별도로 수집하였습니다. 조립된 인서트-하단 웰 한 쌍을 하나의 실험 단위로 간주하였으며, 세 차례의 독립적인 공배양 실험을 수행하였습니다. 이러한 구성은 수용성 인자의 교환을 평가할 수 있었으나, SJBE의 독점적인 직접 표적이 마이크로그리아임을 입증할 수는 없었습니다. 등삼투압 대조군이 포함되지 않았기 때문에, NaCl 조건에서 나트륨 특이적 효과와 삼투압 효과를 구분할 수 없었습니다.
고혈압 동물 모델
상업적 공급처로부터 6~8주령, 체중 180~220 g의 특정 병원체 부재(SPF) 수컷 Wistar 쥐를 확보하였다. 쥐들은 케이지당 3마리씩 22 °C ± 2 °C의 온도와 50%~60%의 상대 습도, 12시간 명/암 주기 조건에서 사육되었으며, 먹이와 물을 자유롭게 섭취할 수 있도록 하였다. 깔짚은 일주일에 두 번 교체하였으며, 동물들을 7일 동안 순화시켰다. 매일 동물을 관찰하고 체중을 일주일에 두 번 기록하였다. L-NAME(0.5% CMC-Na에 40 mg/kg/day; 10 mL/kg)을 3주 동안 경구 투여하여 산화질소 결핍 유발 고혈압을 유도하였다. 무작위 배정 전, 두 차례 연속 측정 시 수축기 혈압이 140 mmHg 이상인 경우를 모델 적합 기준으로 정의하였다. 이 모델은 산화질소 결핍으로 인한 고혈압을 재현하였으며, 신경성 고혈압에 특이적인 모델은 아니었다.
그룹화, 투여 및 시료 수집
쥐를 정상 대조군과 L-NAME 모델링 군으로 배정하였다. 모델 적합성이 확인된 후, 적격한 고혈압 쥐를 모델 용매군, SJBE 100 mg/kg/day, 200 mg/kg/day, 400 mg/kg/day 또는 valsartan 10 mg/kg/day 투여군으로 배정하였다. 모든 경구 투여 제형은 10 mL/kg의 용량으로 1일 1회 투여하였으며, 대조군에는 동일한 부피의 0.5% CMC-Na를 투여하였다. 그룹당 6마리(총 36마리)의 쥐가 최종 분석 샘플이 되었다. 초기 등록, 사망 및 제외 사례를 그룹별, 사유별로 보고하였다. 모델 유도 그룹이 L-NAME 프로토콜을 유지하는 동안 6주간 매일 경구 투여를 지속하였다.
종료 시점에서, 쥐를 펜토바르비탈 나트륨(50 mg/kg, 복강 내 투여)으로 마취하고 발바닥 회피 반사가 소실되었음을 확인하였다. 복부 대동맥에서 4–6 mL의 혈액을 EDTA 튜브에 채취하였다. 쥐는 깊은 마취 상태에서 방혈을 통해 안락사시켰으며, 약 200 mL의 얼음처럼 차가운 0.9% 식염수로 관류시킨 후 심장을 통해 세척하였다. 혈액 샘플을 4 °C에서 2,000 × g로 15분간 원심분리하고, 혈장을 −80 °C에 보관하였다. 뇌를 즉시 적출하였다. 쥐 뇌 지도를 사용하여 브레그마(bregma)로부터 약 −1.3 mm에서 −2.1 mm 범위의 관상면 블록을 준비하고, 정중선에서 외측으로 약 0.3–0.6 mm, 두개골 표면에서 복측으로 7.4–8.2 mm 이내의 양측 시상하부 뇌실곁핵(PVN)을 미세 절제하였다. 조직은 RNA 및 단백질 분석을 위해 급속 냉동하거나 20 µm 동결 절편 제작을 위해 포매하였다.
무작위 배정, 할당 은폐, 눈가림 및 제외 기준
적격한 고혈압 쥐들을 체중과 기저 수축기 혈압에 따라 층화하고, 6개 단위의 블록으로 구성된 컴퓨터 생성 블록 무작위 배정 목록을 사용하여 배정하였습니다. 투약이나 결과 평가를 수행하지 않은 연구자가 서열을 생성하고 순차적인 그룹 코드를 준비했으며, 모든 동물이 적격성 기준을 충족할 때까지 배정 목록을 은폐하였습니다. 혈압, 분자, 생화학 및 조직학적 종점의 실험 단위는 개별 동물로 간주되었습니다.
강제 투여 제제, 시료 튜브, 조직 분취물, 절편, 이미지 및 분석 플레이트에는 무작위로 부여된 세 자리 동물 코드를 표시하였다. 혈압 측정, 밀도 측정, ELISA, 이미지 획득 및 이미지 분석을 수행한 연구자들은 처리군 할당 내용을 알지 못하도록 맹검 처리되었다. 코드는 미리 정의된 품질 확인과 일차 분석이 완료된 후에만 해제되었다. 동물은 처리와 관련 없는 사망, 심각한 질환 또는 부상으로 인한 경우에만 분석에서 제외되었다. >체중 20% 감소, 경구 투여 실패, 모델 유도 실패, 반복 절차 후에도 부적절한 tail-cuff 트레이스, 샘플 손실 또는 기록된 분석 실패가 제외 기준이었습니다. 모든 제외 사례는 그룹 및 사유별로 보고되었습니다. 사전 검정력 계산이 수행되지 않았으므로, 그룹당 n = 6을 탐색적 기전 연구 샘플로 간주하였습니다.
꼬리 커프 혈압 측정
혈압은 09:00에서 12:00 사이에 조용한 방에서 비침습적 꼬리 커프(tail-cuff) 시스템을 사용하여 측정하였다. 쥐를 보정기에 하루 15분씩 5일 연속으로 배치하여 적응시켰다. 매 측정일마다 동물을 33 °C ± 1 °C에서 10분 동안 가온한 후, 보정기 내에서 추가로 5분간 유지하였다. 처음 5회의 팽창-수축 주기는 제외하였으며, 추가로 10~15회의 주기를 기록하였다. 기술적으로 유효한 측정값이 최소 5회 이상이고 변동 계수가 ≤10%인 경우 해당 세션을 인정하였다. 개체별 혈압 값은 유효한 측정값들의 평균으로 계산하였다. 이 기준을 충족하지 못한 경우, 동물을 10분 동안 휴식시킨 후 한 세트의 주기를 반복하였다. 그럼에도 기준을 충족하지 못하면 해당 세션은 다음 날 다시 수행하였으며, 개별 측정값을 선택적으로 제거하는 대신 원래의 세션을 결측치로 기록하였다. 꼬리 커프 측정은 간헐적인 혈압 추정치를 제공하였으며, 연속적인 텔레메트리(telemetry)를 제공하지는 않았다.
효소결합면역흡착측정법(ELISA)
세포 배양 상층액, PVN 균질액 상층액 및 혈장은 분석 대상 및 종에 맞는 분석 키트(mouse TNF-α, mouse IL-1β, mouse IL-6, rat TNF-α, rat IL-1β, Ang-(1-7) 및 norepinephrine)를 사용하여 처리되었습니다. 세포 상층액은 4 °C에서 1,000 × g로 10분간 원심 분리하여 불순물을 제거했습니다. PVN 조직은 프로테아제 억제제가 포함된 얼음처럼 차가운 PBS에서 1:9 (w/v) 비율로 균질화한 후, 4 °C에서 12,000 × g로 15분간 원심 분리했습니다. 혈장은 얼음 위에서 단 한 번만 해동했습니다. 시약은 실온에서 30분간 방치하여 온도를 맞추었습니다. 표준 물질과 시료를 각각 100 µL씩 기술적 반복(technical duplicate)으로 첨가하고 37 °C에서 2시간 동안 배양한 후, 300 µL 세척 완충액으로 5회 세척했습니다. 이어서 비오틴화 검출 항체 100 µL를 첨가하고 37 °C에서 1시간 동안 배양했습니다. 플레이트를 5회 세척한 후, horseradish-peroxidase 접합체 100 µL를 첨가하고 37 °C에서 30분 동안 배양했습니다. 다시 한번 세척 단계를 거친 후, TMB 기질 90 µL를 첨가하고 암소에서 15분 동안 발색시켰습니다. 그 후 정지액 50 µL를 첨가하고, 마이크로플레이트 리더를 사용하여 5분 이내에 450 nm에서 흡광도를 측정했습니다. 농도는 4-파라미터 로지스틱 표준 곡선을 사용하여 계산했습니다. 변동 계수가 ≤15%인 경우에만 중복 측정값을 인정했으며, 교정 범위를 벗어난 시료는 희석하여 재분석했습니다.
정량적 실시간 PCR
TRIzol 시약을 사용하여 세포 또는 PVN 조직에서 총 RNA를 추출하였다. A260/A280 비율을 통해 RNA 순도를 평가하였으며, Evo M-MLV reverse-transcription premix를 이용한 cDNA 합성에 1 µg RNA를 사용하였다. 각 20 µL qPCR 반응액에는 10 µL 2× SYBR Green master mix, 각각 10 µmol/L 농도의 정방향 및 역방향 프라이머 0.4 µL, 희석된 cDNA 2 µL, 그리고 nuclease-free water 7.2 µL가 포함되었다. 반응은 리얼타임 PCR 검출 시스템에서 기술적 3반복(technical triplicate)으로 수행되었다. 사이클 조건은 95 °C에서 30 s 동안 유지한 후, 95 °C에서 5 s 및 60 °C에서 30 s 과정을 40 사이클 반복하였다. 이어서 65 °C에서 95 °C까지 0.5 °C 증분으로 멜팅 커브를 생성하였다. 템플릿 미포함(No-template) 및 역전사 미포함(no-reverse-transcription) 대조군이 포함되었다. 단일 멜팅 피크가 관찰되고 표준 곡선 효율이 90%–110%인 경우에만 분석 결과로 인정하였다. 상대적 유전자 발현량은 Gapdh를 참조 유전자로 하여 2⁻ΔΔCt 방법으로 계산하였다. 본 연구에 사용된 프라이머 서열은 Table 1에 나열되어 있다.
웨스턴 블롯
프로테아제 및 포스파타아제 억제제가 포함된 ice-cold RIPA buffer를 사용하여 세포 또는 PVN 조직에서 총 단백질을 추출하였다. 용해물을 4 °C에서 12,000 × g로 15분 동안 원심분리하여 상층액을 얻었으며, BCA assay를 통해 단백질 농도를 측정하였다. 표적 단백질의 분자량에 따라 선택한 8%–12% SDS-polyacrylamide gel의 각 레인에 총 30 µg의 단백질을 로딩하고, 얼음 위에서 300 mA로 90분 동안 0.45 µm PVDF membrane으로 전사하였다. 멤브레인을 실온에서 1시간 동안 블로킹하였으며, 인산화 단백질의 경우 5% bovine serum albumin을, 다른 표적의 경우 5% nonfat milk를 사용하였다. total CREB 항체를 포함하여 Table of Materials에 명시된 희석 배율로 1차 항체를 4 °C에서 하룻밤 동안 반응시켰다. 멤브레인을 TBST로 10분씩 3회 세척한 후, 적절한 horseradish-peroxidase-conjugated 2차 항체(1:5,000)를 사용하여 실온에서 1시간 동안 반응시키고 다시 세척하였다. 밴드는 포화되지 않은 노출 조건에서 enhanced chemiluminescence를 이용해 검출하였다. 밴드 밀도는 ImageJ를 사용하여 정량화하였다. 인산화 단백질은 해당 총 단백질로 표준화하였으며, 다른 표적 단백질은 GAPDH로 표준화하였다.
면역형광 염색
Bregma 기준으로 약 −1.3에서 −2.1 mm 범위의 PVN 관통 관상 냉동 절편(20 µm)을 준비하였다. 쥐 한 마리당 120 µm 간격으로 해부학적 위치가 일치하는 3개의 절편을 선택하였다. 절편을 상온에서 20분 동안 평형화하고, PBS로 3회 세척한 후, 0.3% Triton X-100과 5% goat serum으로 1시간 동안 블로킹 및 투과화 처리를 하였다. 절편을 Iba-1 또는 c-Fos 1차 항체와 함께 4 °C에서 하룻밤 동안 반응시키고, 세척한 뒤 적절한 형광 2차 항체와 함께 상온의 암소에서 1시간 동안 반응시켰다. 핵은 DAPI로 10분 동안 대조 염색하였다. 도립 형광 현미경을 사용하여 200× 배율로 양측 PVN 이미지를 획득하였으며, 각 마커 내에서는 동일한 노출 및 게인 설정을 유지하였다. 부호화된 이미지에 미리 정의된 ImageJ 임계값을 적용하여 Iba-1 양성 영역 또는 c-Fos 양성 핵을 정량화하였다. 3개 절편의 측정값을 평균하여 동물 한 마리당 하나의 값을 얻었다.
안전 및 폐기물 처리
메탄올, 에탄올, 파라포름알데히드, DCFH-DA, 전기영동 시약 및 동물 조직은 기관의 화학 및 생물 안전 절차에 따라 처리되었습니다. 휘발성 용매와 파라포름알데히드는 인증된 화학 흄 후드 내에서 취급하였으며, 적절한 개인 보호 장구를 착용하였습니다. 할로겐 프리 유기 용매 폐기물과 포름알데히드 함유 폐기물을 분리 배출하였고, 생물학적 폐기물은 멸균 처리하였으며, 날카로운 도구 및 동물 사체는 기관의 승인된 경로를 통해 폐기하였습니다. 사용 전 해당 지역의 폐기물 분류 및 응급 절차를 확인하였습니다.
통계 분석
데이터는 평균 ± 표준 편차로 표시되었으며, 통계 및 그래프 소프트웨어를 사용하여 분석되었습니다. 독립적인 배양 준비물 또는 동물을 생물학적 실험 단위로 사용하였으며, 통계적 추론 전 각 단위 내의 기술적 웰, 시야 또는 반복 측정값의 평균을 산출하였습니다. 모수 분석 전 분포 가정과 분산 패턴을 평가하였습니다. 다중 그룹 종점 데이터 세트는 일원 분산 분석(one-way analysis of variance) 후 Tukey의 다중성 보정 비교를 통해 분석되었습니다. 종단적 수축기 혈압은 평균 ± 표준 편차로 기술적으로 표시하였으며, 종점 혈압 결과는 Tukey 보정을 적용한 일원 분산 분석을 사용하여 분석하였습니다. 보정된 p 값, 평균 차이 및 95% 신뢰 구간을 보고하였습니다. 양측 p < 0.05를 통계적으로 유의한 것으로 간주하였으며, 모든 제외 항목 및 결측값을 보고하였습니다.
결과
표적 HPLC로 정량화된 SJBE는 Ang II로 유도된 미세아교세포 염증을 억제한다
에탄올 환류 추출을 통해 출발 물질의 25.5 ± 0.7%에 해당하는 SJBE 분말을 얻었습니다(그림 1A). 표적 HPLC 분석 결과, rutin과 quercetin의 함량은 각각 276.1 mg/g ± 9.2 mg/g 및 12.5 mg/g ± 0.9 mg/g으로 정량되었으며(그림 1B), 이는 생물학적 실험 전반에 사용된 SJBE 조제물의 정량적 마커 특성을 제공합니다.
SJBE는 200 µg/mL 농도까지 BV-2 세포 생존율에 검출 가능한 영향을 미치지 않았으나, 400 µg/mL에서는 생존율이 유의미하게 감소하는 것이 관찰되었습니다(그림 1C). 이러한 결과에 근거하여, 후속 기전 실험을 위해 100 µg/mL 농도를 선정하였습니다. Ang II는 BV-2 세포로부터 TNF-α 및 IL-1β의 방출을 현저히 증가시켰으나, SJBE는 테스트한 비세포독성 농도 범위 전반에서 두 염증성 사이토카인을 모두 감소시켰으며(그림 1D,E), 이는 Ang II 자극 하에서 농도 의존적인 항염증 효과가 있음을 나타냅니다.
SJBE는 더 높은 ACE2/MasR 마커 및 더 낮은 NF-κB 신호 전달 및 산화 스트레스와 관련이 있다
Ang II 자극은 단백질 및 mRNA 수준 모두에서 ACE2와 MasR 발현을 감소시켰으며, 이는 NF-κB p65의 인산화 증가를 동반하였습니다. SJBE 처리는 이러한 변화를 되돌려 ACE2와 MasR 발현을 증가시키는 동시에 p65 인산화를 감소시켰습니다(그림 2A–E).
이러한 분자적 변화와 일관되게, SJBE는 Ang II로 자극된 배양 상층액에서 TNF-α 농도를 135 pg/mL ± 12 pg/mL에서 55 pg/mL ± 6 pg/mL로, IL-1β 농도를 102 pg/mL ± 10 pg/mL에서 42 pg/mL ± 5 pg/mL로 감소시켰습니다. ACE2 억제제인 MLN-4760을 첨가했을 때 이러한 효과가 상당히 약화되었으며, TNF-α와 IL-1β는 각각 125 pg/mL ± 11 pg/mL 및 95 pg/mL ± 9 pg/mL로 증가했습니다. Rutin 처리는 전체 추출물에서 관찰된 항염증 반응의 일부를 재현했습니다(그림 2F).
SJBE는 또한 Ang II 자극 후 세포 내 DCFH-DA 형광을 현저히 감소시켰으며, 이는 세포 내 활성 산소종 축적이 낮아졌음을 나타냅니다. 이러한 감소는 MLN-4760에 의해 약화되었습니다(그림 2G,H). 종합적으로, 이러한 결과는 Ang II로 자극된 BV-2 세포에서 SJBE의 항염증 및 항산화 효과가 ACE2/MasR 신호 전달의 회복을 동반하며, ACE2의 약리학적 억제에 민감하게 반응한다는 것을 보여줍니다.
SJBE는 미세아교세포에서 시상하부 뉴런으로의 염증 전이를 제한한다
SJBE의 항염증 효과가 미세아교세포-뉴런 간의 통신에 영향을 미치는지 확인하기 위해, BV-2 세포와 mHypoA-2/10 시상하부 뉴런을 비접촉식 Transwell 시스템에서 배양하였습니다. Ang II 자극은 공동 배양 시스템에서 TNF-α 및 IL-1β 농도를 증가시켰으나, SJBE는 TNF-α를 150 ± 15 pg/mL에서 65 ± 8 pg/mL로, IL-1β를 110 ± 12 pg/mL에서 48 ± 6 pg/mL로 감소시켰습니다(그림 3A). 또한 Ang II는 Ace2 및 Mas1의 발현을 감소시켰으며, 두 인자 모두 SJBE 처리 후 대조군 수준으로 회복되었습니다(그림 3B).
하단 챔버에서 배양된 시상하부 뉴런에서도 그에 상응하는 변화가 관찰되었습니다. Ang II로 자극된 공배양 환경에 노출되었을 때 c-Fos 및 COX-2 발현이 증가하고 Avp 및 Oxtr 발현이 변화한 반면, SJBE는 이러한 반응을 완화시켰습니다(그림 3C–G). 이러한 보호 패턴은 MLN-4760에 의해 약화되었으며, 이는 ACE2 활성과 공배양 시스템에서 관찰된 효과 사이의 연관성을 더욱 뒷받침합니다.
이러한 결과는 SJBE가 Ang II 자극 하에 생성되는 염증 환경을 억제하며, 이는 Transwell 모델에서 하위 시상하부 신경세포 반응의 활성화 감소와 동반됨을 입증합니다.
SJBE는 고나트륨/Ang II 복합 스트레스 하에서 Ang-(1-7) 신호 전달 및 신경 손상 감소와 관련이 있다
Ang II 노출은 공동 배양 상층액의 Ang-(1-7) 농도를 감소시켰고 신경세포의 phospho-CREB/CREB 비율을 증가시켰습니다. SJBE 처리는 Ang-(1-7)를 증가시키고 CREB 인산화를 대조군 수준으로 감소시켰으며(그림 4A–C), 이는 이전 실험에서 관찰된 ACE2/Ang-(1-7)/MasR 관련 신호 전달 프로파일의 회복과 일치합니다.
30 mmol/L NaCl과 Ang II의 복합 자극 하에서 시상하부 뉴런은 Avp 발현이 증가하고 TUNEL 양성 세포의 비율이 더 높게 나타났다. SJBE는 두 반응 모두를 유의하게 완화시켰으며(그림 4D–F), 이는 복합 자극 하에서 뉴런의 스트레스와 손상이 감소했음을 나타낸다. TUNEL 분석의 경우, 각 값은 독립적으로 준비된 공배양 실험을 나타내며, 통계 분석 전 각 생물학적 반복구 내에서 3개의 현미경 시야를 평균하였다(그룹당 n = 5).
SJBE는 L-NAME 처리 쥐의 꼬리-커프 혈압을 낮추며, PVN의 ACE2/Ang-(1-7)/MasR 마커 상승과 관련이 있다
모델 유도 기간 동안 매일 L-NAME을 투여한 결과 수축기 혈압이 점진적으로 증가하였습니다. 고혈압이 유도된 후, 6주간의 개입 기간 동안 SJBE 치료는 매주 측정된 꼬리 커프 혈압을 감소시켰으며, 고용량 투여군에서 가장 뚜렷한 반응이 관찰되었습니다(그림 5A).
연구 종료 시점에서 L-NAME 모델군의 수축기 혈압은 165 ± 8 mmHg였으며, 대조군 쥐의 수축기 혈압은 115 mmHg ± 5 mmHg였습니다. 고용량 SJBE 투여는 수축기 혈압을 130 mmHg ± 6 mmHg로 감소시켰습니다. 고용량 SJBE 처리 후 이완기 혈압은 110 mmHg ± 6 mmHg에서 85 mmHg ± 4 mmHg로 감소하였고, 평균 동맥압은 128 mmHg ± 7 mmHg에서 100 mmHg ± 5 mmHg로 감소하였습니다(모델군 대비 모든 조정 p < 0.0001; 그림 5B). 이러한 결과는 중재 기간 동안 SJBE에 대한 지속적인 항고혈압 반응이 나타남을 입증합니다.
PVN 조직 분석 결과, 평행한 분자적 변화가 확인되었습니다. L-NAME 처리는 ACE2 및 MasR 단백질 발현과 Ang-(1-7) 농도를 감소시킨 반면, SJBE는 용량 의존적 패턴으로 이 세 가지 마커를 모두 회복시켰습니다. 고용량 투여군에서는 모델군과 비교하여 ACE2의 상대적 발현이 0.40 ± 0.07배에서 1.50 ± 0.18배로 증가했고, MasR은 0.45 ± 0.08배에서 1.35 ± 0.16배로, Ang-(1-7)은 단백질 mg당 9 pg/mg ± 2 pg/mg에서 32 pg/mg ± 5 pg/mg로 증가했습니다(그림 5C–E). 따라서 SJBE의 혈압 강하 효과는 PVN 내 ACE2/Ang-(1-7)/MasR 관련 분자 프로파일의 회복을 동반하였습니다.
SJBE는 낮은 PVN 염증성 활성화 및 전신 교감신경 출력 마커와 연관되어 있다
L-NAME로 유도된 고혈압은 PVN 내의 뚜렷한 염증성 활성화를 동반하였습니다. 모델 쥐에서 Tnf 및 Il1b mRNA 수치가 상승하였으나, 고용량의 SJBE는 Tnf 발현을 4.5 ± 0.5배에서 1.8 ± 0.2배로, Il1b 발현을 3.8 ± 0.4배에서 1.6 ± 0.18배로 감소시켰습니다 (그림 6A).
면역형광 분석 결과 일관된 세포 변화가 나타났다. 미세아교세포 활성화를 나타내는 Iba-1 염색은 L-NAME 처리 쥐의 PVN에서 증가하였으며, SJBE 투여 후 감소하였다. c-Fos 염색에서도 유사한 패턴이 관찰되었으며, SJBE 처리 후의 신경세포 활성화는 처리하지 않은 모델군보다 낮게 나타났다(그림 6B–D).
이러한 중추성 염증 변화는 순환 염증 및 교감신경 마커의 개선과 함께 나타났습니다. 모델 쥐에서 혈장 TNF-α 및 IL-1β 농도가 상승하였으며, SJBE 처리 후 상당히 감소하였습니다. 고용량 투여군에서 TNF-α는 45 pg/mL ± 6 pg/mL에서 20 pg/mL ± 3 pg/mL로, IL-1β는 35 pg/mL ± 5 pg/mL에서 15 pg/mL ± 3 pg/mL로 감소하였습니다(그림 6E). 혈장 norepinephrine 또한 400 pg/mL ± 45 pg/mL에서 180 pg/mL ± 25 pg/mL로 유사하게 감소하였습니다(그림 6F).
종합적으로, 이러한 in vivo 결과는 SJBE 처리가 PVN ACE2/Ang-(1-7)/MasR 관련 마커의 회복, PVN 염증 활성화의 완화, 그리고 혈중 염증성 사이토카인 및 노르에피네프린의 감소와 병행하여 L-NAME 처리 쥐의 혈압을 낮춘다는 것을 보여줍니다.
데이터 가용성:
그림의 근거가 되는 수치 데이터 소스와 관련 통계 출력값은 보충 파일 1에 제공되어 있습니다.
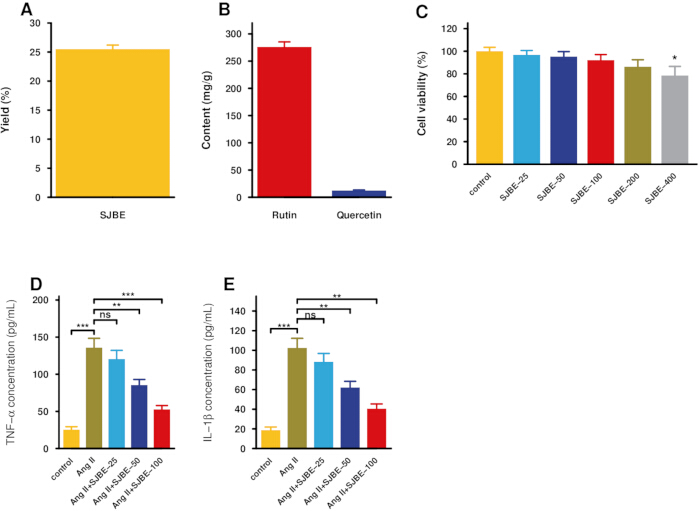
그림 1: 표적 HPLC 정량 분석 및 초기 BV-2 실험. (A) 추출 수율. (B) 표적 HPLC로 정량 분석한 SJBE 내 Rutin 및 quercetin 함량. (C) SJBE에 24시간 동안 노출시킨 후의 BV-2 생존율. (D,E) Ang II로 자극한 BV-2 상층액 내 TNF-α 및 IL-1β. 데이터는 평균 ± SD이며, 정량 분석 패널의 경우 n = 3회의 독립적인 실험 결과임. Tukey 보정 비교를 포함한 일원 분산 분석(One-way ANOVA)이 사용됨. 약어: ns, 유의하지 않음; *p < 0.05, **p < 0.01, *** p < 0.001, **** p < 0.0001. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
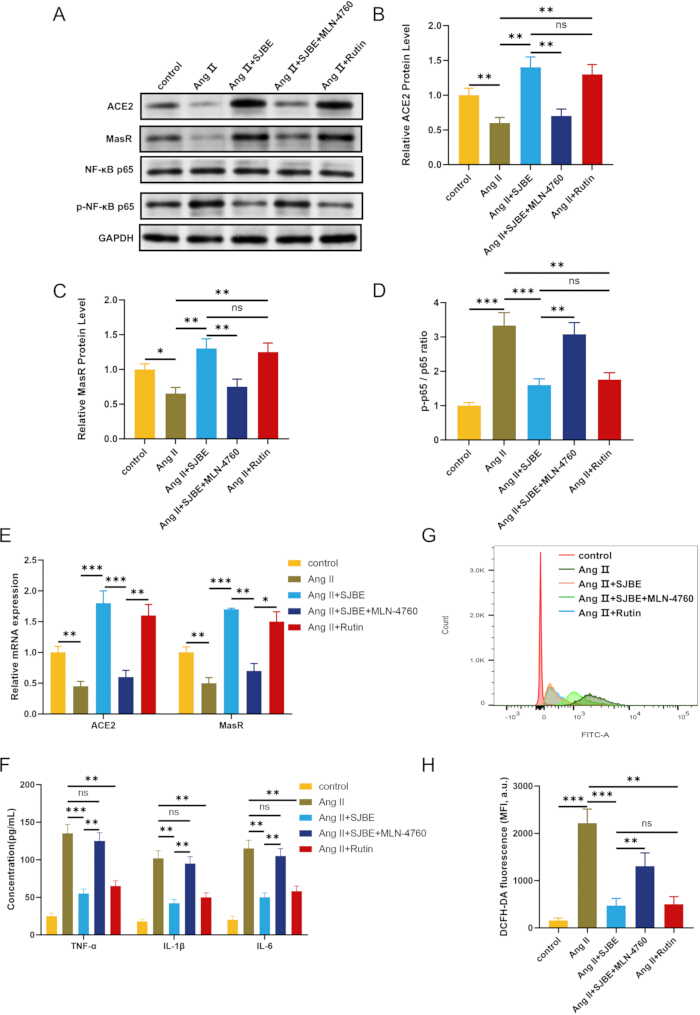
그림 2: BV-2 세포에서 SJBE는 더 높은 ACE2/MasR 마커 및 더 낮은 NF-κB 신호 전달 및 산화 스트레스와 관련이 있음. (A–D) ACE2, MasR, phospho-p65 및 total p65 면역블롯 및 정량 분석. (E) Ace2 및 Mas1 mRNA. (F) TNF-α, IL-1β 및 IL-6. (G,H) ROS 유세포 분석 결과 및 형광 정량 분석. 데이터는 평균 ± SD로 표시하며; n = 3회의 독립적인 실험 결과임. Tukey 보정 비교를 포함한 일원 분산 분석(One-way ANOVA)이 사용됨. ns, 유의미하지 않음; *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
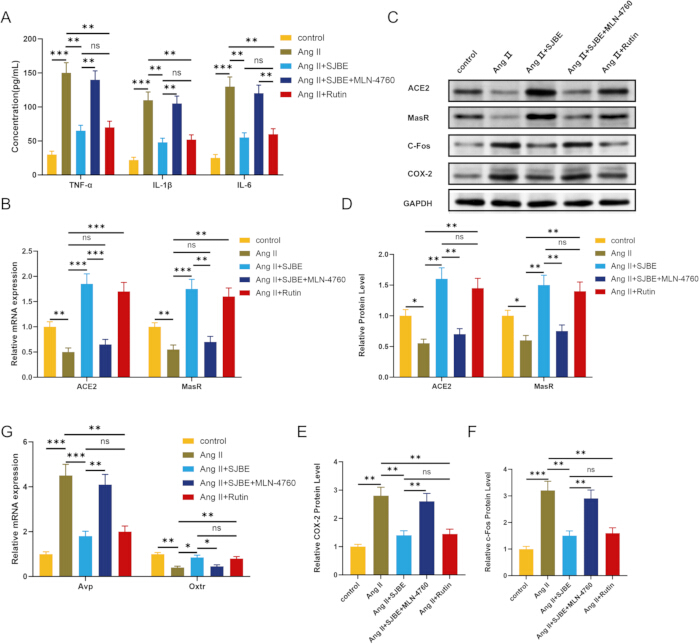
그림 3: BV-2/mHypoA-2/10 수용성 인자 공동 배양 모델에서 SJBE가 염증성 신호 전달을 제한함. (A) 공동 배양 상층액 내 사이토카인. (B) Ace2 및 Mas1 mRNA. (C–F) ACE2, MasR, c-Fos 및 COX-2 면역블롯 및 정량 분석. (G) 하단 챔버 뉴런의 Avp 및 Oxtr 발현. 데이터는 평균 ± SD이며, n = 3회의 독립적인 실험 결과임. Tukey 보정 비교를 포함한 일원 분산 분석(One-way ANOVA)이 사용됨. ns: 유의하지 않음; *p < 0.05, **p < 0.01, ***p <0.001, ****p < 0.0001. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
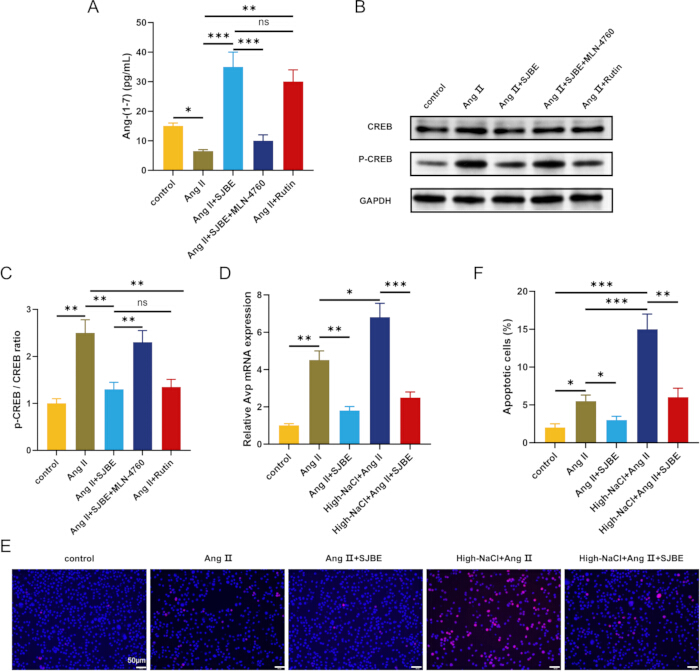
그림 4: SJBE는 Ang-(1-7) 신호 전달 및 스트레스 관련 신경 손상 감소와 연관되어 있다. (A) 공동 배양 상층액 내 Ang-(1-7). (B,C) 하단 챔버 뉴런의 Phospho-CREB 및 total CREB. (D) NaCl/Ang II 복합 스트레스 조건에서의 Avp. (E,F) 대표적인 TUNEL 이미지 및 정량 분석; 스케일 바, 50 µm. 데이터는 평균 ± SD이며; 패널 A, C, D의 경우 n = 3회의 독립적인 실험; 패널 F의 경우 n = 5회의 독립적인 공동 배양 준비물이며, 준비물당 3개 영역의 평균값을 사용하였다. Tukey 보정 비교를 포함한 일원 분산 분석(One-way ANOVA)을 사용하였다. ns, 유의미하지 않음; *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
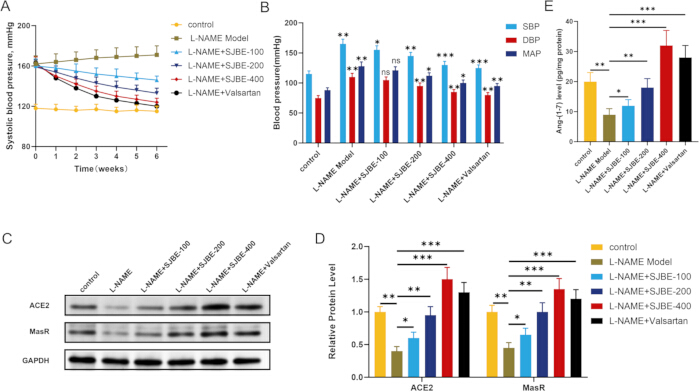
그림 5: SJBE는 L-NAME 처리 쥐의 꼬리-커프 혈압을 낮추며, PVN 내 ACE2/Ang-(1-7)/MasR 마커의 증가와 관련이 있다. (A) 종단적 수축기 혈압. (B) 최종 시점의 수축기, 이완기 및 평균 동맥압. (C,D) PVN 조직에서의 ACE2 및 MasR 면역블롯 및 정량 분석. (E) PVN 균질액 내 Ang-(1-7). 데이터는 평균 ± SD로 표시되었으며, 그룹당 n = 6마리의 쥐가 사용되었다. 종단적 SBP는 기술적으로 제시되었으며, 최종 시점 결과는 Tukey 보정 비교를 포함한 일원 분산 분석(one-way ANOVA)을 사용하여 분석되었다. ns, 유의하지 않음; *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
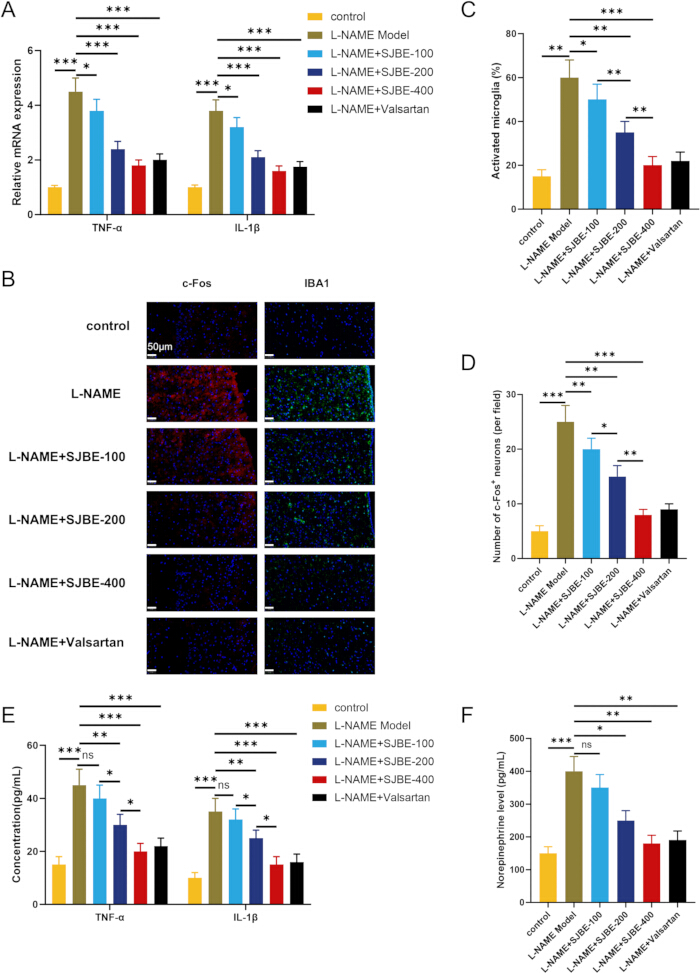
그림 6: L-NAME 처리 쥐에서 SJBE는 PVN 염증 활성화 및 전신 교감신경 출력 마커의 감소와 관련이 있음. (A) PVN 조직 내 Tnf 및 Il1b mRNA. (B–D) Iba-1 및 c-Fos 면역형광 염색 및 정량화; 스케일 바, 50 µm. (E) 혈장 TNF-α 및 IL-1β. (F) 혈장 norepinephrine. 데이터는 mean ± SD로 표시됨; n = 6 rats/group. Tukey 보정 비교를 포함한 One-way ANOVA가 사용됨. *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 유전자 | 정방향 프라이머 (5'-3') | 역방향 프라이머 (5'-3') |
| Gapdh | CACCCACTCCTCCACCTTTGAC | GTCCACCACCCTGTTGCTGTAG |
| 종양괴사인자(Tnf) | CCTGCTGCACTTTGGAGTGA | GCTTGAGGGTTTGCTACAACA |
| Il1b | CAGTGAGGAGAATGACCTGTTC | CGAGATGCTGCTGTGAGATT |
| Ace2 | TCCATTGGTCTTCTGCCATCCG | AGACCATCCACCTCCACTTCTC |
| Mas1 | TCCACCATCAATAGCAGCG | AAGCCACCCACATTCAGGC |
| 아르기닌 바소프레신(Avp) | TCGCCATGATGCTCAACACTACGC | ACACTGTCTCAGCTCCATGTCGGATG |
| Oxtr | GTGTCGAGTTGGACCTCGGG | CCAGGAACAGAATGAGGCACAG |
표 1: 연구에 사용된 프라이머 서열.
보충 파일 1: 그림의 근거가 되는 수치 소스 데이터 및 관련 통계 결과. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
본 연구는 HPLC로 정량 분석된 S. japonicum 싹 추출물이 미세아교세포 및 수용성 인자 공동 배양 모델에서 염증성 신호 전달을 낮추고, L-NAME 처리 쥐의 꼬리 커프 혈압을 낮추는 것과 연관이 있음을 보여줍니다. 여러 실험 시스템 전반에서 SJBE 처리는 ACE2/Ang-(1-7)/MasR 마커의 증가, NF-κB 활성화 및 산화 스트레스의 감소, 그리고 PVN 염증 활성화 마커의 감소와 일치하였습니다. 이러한 수렴적 관찰 결과는 신경면역 가설을 뒷받침하지만, 중추 경로가 항고혈압 효과를 매개한다는 점을 입증하는 것은 아닙니다.
이러한 결과는 S. japonicum 꽃 성분과 루틴이 염증성 신호 전달 및 신경 염증을 감소시킨다는 보고8,9,22와 퀘르세틴이 심혈관 염증 톤 및 미세아교세포의 산화환원 신호 전달을 조절한다는 증거12,13와 일치합니다. 본 연구는 전체 식물 추출물을 사용하여 이러한 관찰 결과를 시상하부 신경면역 모델로 확장했습니다. MLN-4760이 in vitro에서만 보호 반응을 약화시켰기 때문에, ACE2는 in vivo 혈압 효과의 확립된 매개체라기보다는 세포 항염증 반응의 기능적 기여자로 해석하는 것이 가장 적절합니다.
PVN 분석 결과는 세포 수준의 관찰 내용을 심혈관 조절 영역 내에서 해석할 수 있게 합니다. 이전 연구들에 따르면 미세아교세포와 염증성 사이토카인이 신경성 고혈압 및 교감신경 흥분에 기여하는 것으로 나타났습니다23,24. PVN 내의 Ang-(1-7) 신호 전달은 교감신경 유출을 조절할 수 있는 반면, Ang II는 AT1/TLR4 의존적 미세아교세포 산화 환원 스트레스를 유도할 수 있습니다20,21. 따라서 SJBE 처리 후 Iba-1, c-Fos, 염증성 사이토카인 및 혈장 노르에피네프린의 감소는 PVN의 염증성 활성화 감소와 일치하지만, 이러한 변화가 혈압 감소를 유발한 것인지 또는 전신적인 개선에 따른 결과인지는 이 데이터만으로 확립되지 않았습니다.
Ang II 모델과 L-NAME 모델은 동일한 질환 기전이라기보다 서로 보완적인 스트레스 환경을 제공합니다. Ang II 자극은 레닌-안지오텐신 유도 미세아교세포 염증을 유발하는 반면, L-NAME은 혈관 기능 장애 및 산화 스트레스를 동반한 일산화질소 결핍성 고혈압을 모델링합니다25,26. 다른 모델들 또한 교감신경 조절에서 PVN 미세아교세포 활성화의 관여를 시사하지만14,27, 본 L-NAME 연구가 PVN 유도 신경성 고혈압에만 특이적인 것은 아닙니다. 고나트륨 공동 배양 조건은 등삼투압 대조군이 없는 in vitro 신경세포 스트레스 자극이었으며, 이를 in vivo 염분 민감성 고혈압 모델로 해석해서는 안 됩니다.
재현 가능한 적용을 위해 가장 중요한 단계는 식물성 원료의 문서화, 일관된 추출 및 보관, 표준화된 세포 밀도 및 처리 시점, 정확한 Transwell 구획 할당, 꼬리 커프(tail-cuff) 적응 및 가온, 정밀한 PVN 샘플링, 그리고 블라인드 처리된 종말점 정량화입니다. 추출 수율이 가변적인 경우에는 재료의 수분, 용매 비율, 환류 조건, 여과 및 동결 건조 상태를 확인해야 하며, HPLC 머무름 시간의 이동이 발생하면 표준물질 조제, 이동상, 유속, 온도, 컬럼 평형화 및 시스템 적합성을 확인해야 합니다. 일관되지 않은 공동 배양 또는 꼬리 커프 결과가 나타날 경우, 측정값을 선택적으로 제외하기보다는 인서트의 무결성과 처리 위치를 확인하거나 표준화된 적응 과정을 반복하여 해결해야 합니다. 본 프로토콜의 범위를 벗어나는 질문에 대해서는 크로마토그래피 핑거프린팅 또는 LC-MS/MS, 일차 배양 또는 세포 선택적 공동 배양 설계, 텔레메트리, 뇌/혈장 약동학, 그리고 중추 ACE2/MasR 기능 상실 실험이 적절한 대안이 될 수 있습니다. 뉴런-미세환경 리모델링 및 이미징/인공지능 통합에 관한 최신 학제 간 연구는 복잡한 생물학적 시스템을 조사하기 위한 더 넓은 방법론적 방향을 제시합니다28,29.
몇 가지 제한 사항이 적용 범위를 규정합니다. MLN-4760은 in vitro 기능적 증거만을 제공하며, in vivo ACE2/MasR 차단이나 혈장, 뇌 또는 PVN 노출 측정은 수행되지 않았습니다. 따라서 100 µg/mL 농도는 in vivo 동등 노출량이라기보다 비세포독성 in vitro 작동 농도입니다. Transwell 설계로는 미세아교세포 특이적 작용을 증명할 수 없으며, 전향적으로 설계되지 않은 소규모 동물 코호트는 정밀도를 제한합니다. 꼬리 커프(Tail-cuff) 측정은 간헐적이며 구속 스트레스에 민감합니다. 마지막으로, 표적 rutin/quercetin 정량 분석은 화학적 지문, 완전한 분석적 검증, 성분 귀속 또는 독립적 배치 간 일관성을 확립하지 않습니다. 이러한 한계 내에서, 본 프로토콜은 확정적인 인과 관계나 중개적 주장보다는 SJBE, 신경 염증 신호 전달 및 혈압 조절에 관한 가설 생성을 지원합니다.
공개 사항
저자들은 이해관계의 충돌이 없음을 선언합니다.
감사의 글
저자들은 참여 실험실들의 제도적 및 기술적 지원에 감사드립니다.
연구비 지원:
본 연구는 중국 국가자연과학재단 (No. 82600861), 산시성 기초연구 프로그램 청년 프로젝트(Nos. 202203021212491, 202303021222205), 산시성 기초연구 프로그램 일반 프로젝트(No. 202203021221210) 및 산시 다퉁 대학교 박사 연구 시작 프로젝트(No. 2018-B-36)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.4 µm Transwell 인서트 | Corning Incorporated | 3413 | BV-2/mHypoA-2/10 비접촉 공동 배양용 24-well 폴리카보네이트 멤브레인 인서트 |
| ACE2 항체 | Cell Signaling Technology | 92485; RRID: AB_3741093 | ACE2 (E5O6J) rabbit mAb; WB 1:1,000; IHC/IF 1:100–1:200 |
| Alexa Fluor 488 anti-rabbit IgG | Cell Signaling Technology | 4412; RRID: AB_1904025 | 면역형광 2차 항체; 1:500 |
| Alexa Fluor 594 anti-rabbit IgG | Cell Signaling Technology | 8889; RRID: AB_2716249 | 면역형광 2차 항체; 1:500 |
| Angiotensin II | Sigma-Aldrich | A9525 | 합성 Ang II 펩타이드; 미세아교세포 자극 |
| Angiotensin-(1-7) 분석 키트 | Cloud-Clone Corp. | CES085Mi | Ang-(1-7) 정량 |
| BCA 단백질 분석 키트 | Beyotime Biotechnology | P0012 | 단백질 정량 |
| BV-2 세포 | Procell Life Science & Technology Co., Ltd. | CL-0493; RRID: CVCL_0182 | 마우스 미세아교세포주; 계대 3–20 |
| C18 HPLC 컬럼 | Shimadzu Corporation | Shim-pack GIST C18; P/N 227-30017-08 | 250 × 4.6 mm, 5 µm; methanol–water (65:35, v/v), 1.0 mL/min, 35 °C |
| CCK-8 시약 | Beyotime Biotechnology | C0038 | 세포 생존율 분석 |
| c-Fos 항체 | Cell Signaling Technology | 2250; RRID: AB_2247211 | c-Fos (9F6) rabbit mAb; WB 1:1,000; IF 1:200 |
| COX-2 항체 | Cell Signaling Technology | 12282; RRID: AB_2571729 | COX-2 (D5H5) rabbit mAb; WB 1:1,000; IHC/IF 1:200 |
| DCFH-DA 프로브 | Beyotime Biotechnology | S0033S | 유세포 분석을 통한 ROS 검출 |
| DMEM, high glucose | Gibco/Thermo Fisher Scientific | 11965092 | 세포 배양 배지 |
| Evo M-MLV 역전사 프리믹스 키트 | Accurate Biotechnology | AG11706 | qPCR용 cDNA 합성 |
| 소태아혈청(FBS) | Gibco/Thermo Fisher Scientific | 10099141 | 세포 배양 보충제 |
| 유세포 분석기 | BD Biosciences | BD Accuri C6 Plus | ROS 형광 획득 |
| 형광 현미경 | Olympus/Evident Scientific | IX73 | TUNEL 및 PVN 이미징용 도립 형광 현미경 |
| GAPDH 항체 | Cell Signaling Technology | 5174; RRID: AB_10622025 | GAPDH (D16H11) rabbit mAb; WB 1:1,000–1:5,000 |
| 염소 혈청 | Beyotime Biotechnology | C0265 | 면역형광 블로킹 시약 |
| HPLC 시스템 | Shimadzu Corporation, Kyoto, Japan | Prominence LC-20A | 표적 루틴/퀘르세틴 품질 관리 분석 |
| HRP-연결 anti-mouse IgG | Cell Signaling Technology | 7076; RRID: AB_330924 | 웨스턴 블롯 2차 항체; 1:3,000–1:5,000 |
| HRP-연결 anti-rabbit IgG | Cell Signaling Technology | 7074; RRID: AB_2099233 | 웨스턴 블롯 2차 항체; 1:3,000–1:5,000 |
| Iba-1/AIF-1 항체 | Cell Signaling Technology | 17198; RRID: AB_2820254 | Iba-1/AIF-1 (E4O4W) rabbit mAb; WB 1:1,000; IHC/IF 1:200 |
| IL-6 ELISA 키트 | Beyotime Biotechnology | PY2782 | 마우스 IL-6 정량 |
| L-NAME | Beyotime Biotechnology | S0006 | 산화질소 결핍성 고혈압용 NOS 억제제 |
| 수컷 Wistar 랫드 | Beijing HFK Bioscience Co., Ltd. | Wistar; SCXK (Jing) 2019-0008 | 특정 병원균 부재(SPF) 수컷, 6–8주령, 180–220 g |
| MasR 항체 | Alomone Labs | AAR-013; RRID: AB_2039972 | Anti-Mas 수용체 항체; WB 1:200; IHC/IF 1:100 |
| mHypoA-2/10 세포 | Cedarlane Laboratories Ltd. | CLU176; RRID: CVCL_D384 | 마우스 시상하부 신경세포주; 계대 3–20 |
| 마이크로플레이트 리더 | Thermo Scientific | Multiskan FC; Cat. No. 51119000 | CCK-8 및 ELISA 흡광도 측정 |
| MLN-4760 | Beyotime Biotechnology | SF1197 | ACE2 억제제; 세포 실험 시 10 µmol/L |
| 마우스 IL-1β ELISA 키트 | Invitrogen/Thermo Fisher Scientific | 88-7013A-88 | 마우스 IL-1β 정량 |
| 마우스 TNF-α ELISA 키트 | Beyotime Biotechnology | PT512 | 마우스 TNF-α 정량 |
| NF-κB p65 항체 | Cell Signaling Technology | 8242; RRID: AB_10859369 | NF-κB p65 (D14E12) XP rabbit mAb; WB 1:1,000 |
| 비침습적 테일-커프 시스템 | Visitech Systems | BP-2000-R-4 | 랫드 테일-커프 혈압 측정 및 가온 시스템 |
| 노르에피네프린 분석 키트 | Cloud-Clone Corp. | HEA907Ge | 노르에피네프린 정량 |
| p-CREB 항체 | Cell Signaling Technology | 9198; RRID: AB_2561044 | Phospho-CREB (Ser133) (87G3) rabbit mAb; WB 1:1,000 |
| Penicillin–streptomycin | Gibco/Thermo Fisher Scientific | 15140122 | 세포 배양 항생제 보충제 |
| 포토다이오드 어레이 검출기 | Shimadzu Corporation | SPD-M20A | 360 nm에서 HPLC UV–visible/PDA 검출 |
| p-NF-κB p65 항체 | Cell Signaling Technology | 3031; RRID: AB_330559 | Phospho-NF-κB p65 (Ser536) 항체; WB 1:1,000 |
| PVDF 멤브레인 | Beyotime Biotechnology | FFP77 | 0.45 µm 웨스턴 블롯 멤브레인 |
| 퀘르세틴 표준품 | Beyotime Biotechnology | SM2147 | 퀘르세틴 참조 표준품; HPLC 기준 순도 98% |
| 랫드 IL-1β ELISA 키트 | Elabscience Biotechnology Inc. | E-HSEL-R0002 | 랫드 IL-1β 정량 |
| 랫드 TNF-α ELISA 키트 | Elabscience Biotechnology Inc. | E-HSEL-R0001 | 랫드 TNF-α 정량 |
| 실시간 PCR 시스템 | Bio-Rad Laboratories, Inc. | CFX96 Touch; Cat. No. 1855195 | 실시간 qPCR 증폭 및 멜팅 커브 분석 |
| RIPA 용해 버퍼 | Beyotime Biotechnology | P0013B | 단백질 추출 |
| 루틴 표준품 | Beyotime Biotechnology | SM2159 | 루틴 참조 표준품; HPLC 기준 순도 98% |
| Sophorae Flos 참조 물질 | National Institutes for Food and Drug Control (NIFDC), Beijing, China | 121270; Batch No. 121270-201403 | S. japonicum 꽃봉오리 인증을 위한 공인 식물 참조 물질 |
| Styphnolobium japonicum 꽃봉오리 | 연구용 식물 재료 | 해당 없음 | NIFDC Sophorae Flos 참조 물질로 인증된 건조 미개화 꽃봉오리 |
| Total CREB 항체 | Proteintech Group, Inc. | 12208-1-AP; RRID: AB_2245417 | phospho-CREB 정규화를 위한 Total CREB rabbit polyclonal 항체 |
| TRIzol 시약 | Invitrogen/Thermo Fisher Scientific | 15596026 | RNA 분리 |
| TUNEL 세포사멸 검출 키트 | Beyotime Biotechnology | C1086 | 신경세포 세포사멸 검출 |
| Valsartan | Sigma-Aldrich | SML0142 | AT1 수용체 길항제; 양성 항고혈압 대조군 |
참고문헌
- He X, et al. Local and traditional uses, phytochemistry, and pharmacology of Sophora japonica L.: a review. J Ethnopharmacol. 2016;187:160-182.
- Madden E, McLachlan C, Oketch-Rabah H, Calderon AI. United States Pharmacopeia comprehensive safety review of Styphnolobium japonicum flower and flower bud. Phytother Res. 2022;36(5):2061-2071.
- Shi W, et al. Bioactive flavonoids from Flos Sophorae. J Nat Med. 2017;71(3):513-22.
- Paniwnyk L, Beaufoy E, Lorimer JP, Mason TJ. The extraction of rutin from flower buds of Sophora japonica. Ultrason Sonochem. 2001;8(3):299-301.
- Xie Z, et al. Extraction and isolation of flavonoid glycosides from Flos Sophorae Immaturus using ultrasonic-assisted extraction followed by high-speed countercurrent chromatography. J Sep Sci. 2014;37(8):957-965.
- Wang G, et al. Efficient extraction of flavonoids from Flos Sophorae Immaturus by tailored and sustainable deep eutectic solvent as green extraction media. J Pharm Biomed Anal. 2019;170:285-294.
- Le NT, Nguyen TPD, Ho DV, Phung HT, Nguyen HT. A green method to extract rutin from Sophora japonica L. MethodsX. 2023;11:102479.
- Liu Y, et al. Sophora japonica flowers and their main phytochemical, rutin, regulate chemically induced murine colitis in association with targeting the NF-kappaB signaling pathway and gut microbiota. Food Chem. 2022;393:133395.
- Hao G, et al. Rutin inhibits neuroinflammation and provides neuroprotection in an experimental rat model of subarachnoid hemorrhage, possibly through suppressing the RAGE-NF-kappaB inflammatory signaling pathway. Neurochem Res. 2016;41(6):1496-1504.
- Dabeek WM, Marra MV. Dietary quercetin and kaempferol: bioavailability and potential cardiovascular-related bioactivity in humans. Nutrients. 2019;11(10):2288.
- Patel RV, et al. Therapeutic potential of quercetin as a cardiovascular agent. Eur J Med Chem. 2018;155:889-904.
- Han X, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010.
- Le K, et al. Quercetin alleviates neonatal hypoxic-ischemic brain injury by inhibiting microglia-derived oxidative stress and TLR4-mediated inflammation. Inflamm Res. 2020;69(12):1201-1213.
- Mi Y, Wu Q, Yuan W, Chen F, Du D. Role of microglia M1/M2 polarisation in the paraventricular nucleus: new insight into the development of stress-induced hypertension in rats. Auton Neurosci. 2018;213:71-80.
- Wei B, et al. Microglia in the hypothalamic paraventricular nucleus sense hemodynamic disturbance and promote sympathetic excitation in hypertension. Immunity. 2024;57(9):2030-42.e8.
- Wang M, et al. Microglia-mediated neuroinflammation: a potential target for the treatment of cardiovascular diseases. J Inflamm Res. 2022;15:3083-3094.
- Xu P, Sriramula S, Lazartigues E. ACE2/ANG-(1-7)/Mas pathway in the brain: the axis of good. Am J Physiol Regul Integr Comp Physiol. 2011;300(4):R804-817.
- Bader M. ACE2, angiotensin-(1-7), and Mas: the other side of the coin. Pflugers Arch. 2013;465(1):79-85.
- Sriramula S, Cardinale JP, Lazartigues E, Francis J. ACE2 overexpression in the paraventricular nucleus attenuates angiotensin II-induced hypertension. Cardiovasc Res. 2011;92(3):401-408.
- Silva AQ, Santos RA, Fontes MA. Blockade of endogenous angiotensin-(1-7) in the hypothalamic paraventricular nucleus reduces renal sympathetic tone. Hypertension. 2005;46(2):341-348.
- Biancardi VC, Stranahan AM, Krause EG, de Kloet AD, Stern JE. Cross talk between AT1 receptors and Toll-like receptor 4 in microglia contributes to angiotensin II-derived ROS production in the hypothalamic paraventricular nucleus. Am J Physiol Heart Circ Physiol. 2016;310(3):H404-115.
- Sun XY, et al. Rutin prevents tau pathology and neuroinflammation in a mouse model of Alzheimer’s disease. J Neuroinflammation. 2021;18(1):131.
- Shi P, et al. Brain microglial cytokines in neurogenic hypertension. Hypertension. 2010;56(2):297-303.
- Shen XZ, et al. Microglia participate in neurogenic regulation of hypertension. Hypertension. 2015;66(2):309-316.
- Simko F, et al. Effect of melatonin on the renin-angiotensin-aldosterone system in L-NAME-induced hypertension. Molecules. 2018;23(2):265.
- Selamoglu Talas Z. Propolis reduces oxidative stress in L-NAME-induced hypertension rats. Cell Biochem Funct. 2014;32(2):150-154.
- Moreira JD, et al. Inhibition of microglial activation in rats attenuates paraventricular nucleus inflammation in Gαi2 protein-dependent, salt-sensitive hypertension. Exp Physiol. 2019;104(12):1892-910.
- Wu Y, Sun R, Ren S, Zengin G, Li M. Neuronal reshaping of the tumor microenvironment in tumorigenesis and metastasis: bench to clinic. Medicine Advances. 2025;3(4):364-371.
- Xu J et al. Advancements in imaging technologies and AI integration for neurodegenerative disease management: a narrative review. Mol Imaging. 2025;24:15353508251393056.