본 연구에서는 소의 탈핵 난자를 이용하여 멸종 위기 사슴 종의 복제 배아를 얻는 프로토콜을 제시합니다. 여기에서는 이종 간 체세포 핵 이식의 상세한 방법론과 투명대 제거 난자를 세포질체(cytoplasts)로 사용하는 방법을 설명합니다. 또한, 얻어진 결과에 대해 상세히 논의합니다.
방법 논문
소 (Bos taurus) 투명대 제거 난자와 사슴 (Mazama americana) 섬유아세포를 이용한 종간 체세포 핵 이식
이 논문에서
요약
초록
동물에게 적용되는 생식 생명공학 기술은 유전적 가치가 높은 종의 개체 수를 증가시키는 것을 가능하게 합니다. 또한, 이러한 기술은 우수한 형질을 가진 개체의 유전 물질을 보존, 유지 및 확산시키는 데 도움을 줍니다. 선택된 개체들의 유전적 구조 작업은 가축 종에 대한 수많은 연구로 이어졌으며, 이러한 연구 결과들을 다른 동물 집단이나 특정 개체에 적용하는 것을 목표로 하고 있습니다. 그러한 접근 방식 중 하나는 체세포 핵 이식(SCNT) 또는 복제를 사용하는 것으로, 이는 기존 표본과 동일한 유전 물질을 가진 배아를 생성하는 데 사용됩니다. 이 기술의 한계 중 하나는 야생 동물로부터 얻을 수 있는 난자의 가용성이 제한적이라는 점입니다. 따라서 이에 대한 대안으로, 복제 대상 종의 체세포(핵 공여자)를 핵 공여자로 사용하고 이를 다른 목(order)이나 분류군에 속하는 종에서 얻은 탈핵 난자(세포질 공여자)에 삽입하는 종간 체세포 핵 이식(iSCNT) 기술이 등장했습니다. 이 접근 방식을 통해 생존 가능한 복제 배아를 얻을 수 있습니다. 브라질에는 9종의 사슴이 있으며, 그중 상당수가 무분별한 사냥, 서식지 상실 및 기타 원인으로 인해 멸종 위기에 처해 있습니다. 레드 브로켓 사슴(Mazama americana)은 이러한 상황으로 고통받는 종 중 하나입니다. 따라서 본 연구는 이후 수혜 암컷에게 이식하여 종의 생존을 보장하는 데 도움을 주기 위한 배아 은행을 구축하기 위해, iSCNT 기술을 이용하여 레드 브로켓 사슴의 복제 배아를 얻는 방법론을 제시합니다.
서론
사슴과(Cervidae)는 현재 진성 뿔을 가진 55종의 우제류 포유류로 구성되어 있습니다. 진성 뿔이란 수컷의 두개골 상단에 노출된 뼈 구조물을 말하며, 암수 모두 뿔을 가진 순록(Rangifer tarandus)1과 암수 모두 뿔이 없는 중국물사슴(Hydropotes inermis)2은 예외입니다. 사슴류는 있어뿔사슴과, 소과, 돼지과, 페카리과, 낙타과, 톈과, 기린과 및 하마과를 포함하는 고래우제목(Cetartiodactyla)에 속합니다. 일반적으로 사슴류는 남극 대륙을 제외한 전 세계의 매우 다양한 서식지에 거주하는 초식성 반추동물입니다3.
현재 브라질에서는 사슴과(Cervidae)에 속하는 9종이 인정되고 있습니다: Odocoileus virginianus (흰꼬리사슴), Blastocerus dichotomus (습지사슴), Ozotoceros bezoarticus (팜파스 사슴), Mazama americana, Mazama rufa, Mazama jucunda, Mazama nana, Subulo gouazoubira, 그리고 Passalites nemorivagus4.
이 분류 체계는 Mazama 속이 다계통(polyphyletic)임을 보여주는 최근의 분자 연구 결과를 반영하며5, 이에 따라 Subulo6와 Passalites7가 별개의 유효한 속으로 인정되었습니다. 이러한 신열대구(Neotropical) 사슴류의 상당수는 서식지 상실, 경관 파편화, 그리고 그에 따른 개체군 격리로 인한 유전적 다양성 감소를 포함한 인위적 압박으로 인해 점점 더 위협받고 있습니다8.
지난 100년 동안 보조 생식 기술은 초기에 실험실 포유류에 성공적으로 적용되었으며, 점차 보존 우선순위가 높은 야생 종으로 확대 적용되고 있습니다9. 결과적으로 대다수의 생식 생명공학 기술은 포유류 모델을 사용하여 발전해 왔으며, 이에 따라 이 집단이 연구의 주된 관심 대상이 되었습니다. 인공 수정, 배아 이식, 체외 수정, 배우자 및 배아 성감별, 유전자원 동결 보존을 포함한 여러 생식 기술이 포유류에 성공적으로 적용되었습니다10. 그러나 특히 체세포 핵 이식(SCNT) 기술은 멸종 위기 종에 적용했을 때의 결과와 잠재적 영향력으로 인해 다른 기술들 사이에서 두드러진 주목을 받아왔습니다11.
이용 가능한 생식 생명공학 기술 중에서, 복제는 공여 동물과 유전적으로 동일한 개체를 생성할 수 있게 한다. 체세포 핵 이식(SCNT)은 복제에 사용되는 주요 전략으로, 체세포 핵을 핵이 제거된 난자에 도입하는 방식이다. 그러나 야생종의 경우, 난자 공여자의 부족과 난자 회수와 관련된 기술적 어려움으로 인해 그 적용이 제한되는 경우가 많다12. 이러한 제약으로 인해 보존 프로그램의 보완적 접근법으로서 종간 체세포 핵 이식(iSCNT)이 개발되었으며, 여기서는 가축의 난자를 멸종 위기종 유래 핵의 수용 세포질체로 사용한다 (그림 1). 이 접근법의 가능성은 iSCNT를 이용해 여러 야생종의 살아있는 새끼를 성공적으로 생산함으로써 입증되었다13,14,15.
난자와 공여 세포를 조작하는 방식에 따라 복제 배아 생산을 위한 다양한 전략들이 제안되어 왔습니다. 전통적인 방식에서는 투명대(zona pellucida)가 온전한 난자의 핵을 제거한 후, 공여 세포를 난주위강(perivitelline space)에 도입하고 전기융합을 통해 융합시킵니다16. 또 다른 방법은 미세주입법과 같은 미세조작 기술을 사용하여 체세포 핵을 투명대가 있는 난자에 직접 주입하는 것입니다17. 이와 대조적으로, 투명대 제거(ZP-free) 시스템은 복잡한 장비 없이 뭉툭한 피펫을 사용하여 핵 제거를 수행할 수 있어 여러 미세조작 단계를 생략함으로써 복제 절차를 간소화합니다18. 본 실험에서는 소의 세포질체(cytoplast)와 사슴의 핵체(karyoplast)를 사용하여 복제 배아를 얻기 위해, iSCNT 과정 중 ZP-free 난자를 세포질체로 사용할 것을 제안합니다.
프로토콜
브라질 세아라주 구아라미랑가(4°13'53.0'' S, 38°56'42.6'' W)에서 환경 당국에 의해 성체 암컷 레드 브로켓 사슴 한 마리가 수거되었습니다. 해당 동물은 브라질 포르탈레자의 세아라 주립대학교(UECE) 신열대구 사슴 보전 연구소(LACCERNE)로 사체 상태로 입고되었습니다. 부검 결과, 왼쪽 배면 외측 복부 영역으로 진입한 총기 발사체에 의한 다발성 외상성 손상으로 인해 사망한 것으로 나타났습니다. 본 표본의 사용은 세아라 주립대학교 동물실험 윤리위원회(CEUA-UECE, 프로토콜 번호 450620/2022) 및 브라질 환경 및 재생 가능 천연자원 연구소(IBAMA, 프로토콜 번호 02027.014734/99-34)의 승인을 받았습니다. 또한, 소 난소의 사용은 CEUA/UECE(프로토콜 번호 31032.004671/2024-81)의 승인을 받았습니다. 사용된 모든 시약과 장비의 상세 내용은 재료 표에 나열되어 있습니다. 본 연구를 뒷받침하는 데이터는 Zenodo의 DOI 번호 10.5281/zenodo.22129414에서 확인할 수 있습니다.
1. 용액 및 배양 배지
참고: 모든 여과 작업은 0.22 µm 멸균 필터를 통해 수행하고, 여과액은 4 °C에서 최대 일주일 동안 보관하십시오. 스톡 용액은 -20 °C에서 보관하십시오.
- 운송 배지: NaCl 8.1 g과 pentabiotic 0.045 g을 넣고 증류수로 900 mL까지 채운다.
- 인산염 완충 식염수 (PBS): NaCl 0.4 g, KCl 0.01 g, NaH2PO4 0.077 g, KH2PO4 0.01 g을 넣고 초순수로 50 mL까지 채운다.
- 세포 배양 배지: 10% (v/v) 소 태아 혈청 (FBS)과 1.0% (v/v) 페니실린, 스트렙토마이신 및 암포테리신 B 용액 (ATB)이 첨가된 Dulbecco's Modified Eagle Medium (DMEM).
- 섬유아세포 동결 보존액: 10% (v/v) FBS, 10% (v/v) dimethyl sulfoxide (DMSO) 및 2.0% (v/v) ATB 용액이 첨가된 DMEM.
- Trypsin-EDTA (0.25%).
- 조작 배지: 알부민, 젖산 및 피루브산이 함유된 HEPES 완충 Tyrode 배지 (H-TALP). 인큐베이터 외부에서 수행되는 모든 과정에 이 배지를 사용한다. 1 L 제조 시, 멸균된 embryo tested water 981.86 mL에 NaCl 6.763 g, KCl 0.239 g, CaCl2·2H2O 0.294 g, MgCl2 0.048 g, NaHCO3 0.168 g 및 HEPES 3.575 g을 넣는다. 소용돌이 방식으로 섞은 후, antibiotic–antimycotic 10 mL, phenol red 1 mL, sodium lactate 1.44 mL, 100 mM sodium pyruvate 스톡 1 mL 및 bovine serum albumin (BSA) 3 g을 추가한다. 삼투압을 280 mOsm으로, pH를 7.2에서 7.4 범위로 조정한다. 50-mL씩 소분하여 4 °C에서 한 달 동안 보관한다.
- 체외 성숙 배지: 10% (v/v) FBS, 10 ng/mL 표피 성장 인자 (EGF), 1 mM sodium pyruvate, 100 µM cysteamine, 10 µg/mL 난포 자극 호르몬 (FSH), 1 µg/mL estradiol 및 1% (v/v) ATB가 첨가된 Medium 199 (TCM-199). pH를 7.2–7.4로 조정한다.
- Hyaluronidase 용액 (최종 농도: 1 mg/mL): hyaluronidase 10 mg을 H-TALP 10 mL에 녹인다. 사용 가능하도록 1.5-mL 튜브에 200 µL씩 소분하여 준비한다.
- Pronase 용액 (최종 농도: 1.5 mg/mL): pronase 15 mg을 H-TALP 10 mL에 녹인다. 사용 가능하도록 1.5-mL 튜브에 200 µL씩 소분하여 준비한다.
- Demecolcine (최종 농도: 0.4 µg/mL): demecolcine (DMC) 5 mg을 DMSO 125 µL에 녹여 5 µL씩 소분(스톡 용액)한다. 사용 전까지 소분된 용액을 냉동 보관한다. 스톡 용액 2 µL를 TCM 1998 µL와 혼합하여 작업 스톡 용액을 제조한다. 사용 직전에 작업 스톡 용액 5 µL를 합성 난관액 (SOF) 495 µL에 추가한다.
- Hoechst (최종 농도: 10 µg/mL): Hoechst 33342 1 mg/mL를 H-TALP에 녹인다. 5 µL씩 소분하고 SOF 배양 배지로 1:100 희석액을 준비한다.
주의: UV 광선 하에서 핵 DNA를 시각화하는 데 사용되는 Hoechst 33342는 인터칼레이터(intercalating agent)이며 강력한 돌연변이 유발 물질이다. 적절한 개인 보호 장비를 착용하고 취급하십시오. - Phytohemagglutinin (최종 농도: 1 mg/mL): phytohemagglutinin (PHA) 5 mg을 H-TALP 500 µL에 녹인다. 200 µL 튜브에 10 µL씩 소분한다. 사용 시 H-TALP 90 µL를 추가한다.
- 세포 융합 배지: 초순수에 0.3 M mannitol, 0.1 mM MgSO4, 0.05 mM CaCl2, HEPES 0.5 mM 및 1 mg/mL polyvinyl alcohol (PVA)를 혼합한다. 제조 당일에 사용한다.
- Ionomycin (최종 농도: 5 µM): ionomycin 바이알 (1 mg/vial)에 DMSO 1 mL를 추가한다. TCM-199 1.67 mL를 추가한다. 1.5 mL 튜브에 10 µL씩 소분하여 -20 °C에서 냉동 보관한다. 사용 시 각 1.5 mL 튜브의 내용물에 H-TALP 990 µL를 추가한다. 빛으로부터 보호하여 보관한다.
- 6-Dimethylaminopurine (최종 농도: 2 mM): 6-dimethylaminopurine (6-DMAP) 10 mg을 녹인다. 1.5-mL 튜브에 50 µL씩 소분하여 -20 °C에서 냉동 보관한다. 사용 시 각 1.5 mL 튜브의 내용물에 SOF 950 µL를 추가한다.
- 배아 배양 배지: 0.2 mM L-glutamine, 0.2 mM sodium pyruvate, 2% essential amino acids Basal Medium Eagle (BME), 1% non-essential amino acids MEM 100×, 1.0% (v/v) ATB 용액, 2.77 mM myo-inositol, 2.5% (v/v) FBS, 10 µL/mL ITS (인슐린, human transferrin, sodium selenite 혼합물) 및 3 g/L BSA.
2. 공여 조직 샘플의 수집 및 처리
- 공여 암컷 귀의 표면을 비누와 물로 씻고 털을 깎은 후, 알코올(70%)로 해당 부위를 소독합니다.
- 메스 날을 사용하여 작은 귀 샘플(1 × 2 cm)을 채취하고, 4% ATB가 포함된 PBS 용액에 넣어 4 °C를 유지하며 실험실로 운반합니다.
- 메스 날을 사용하여 생검 표본을 작은 조각으로 자르고, 배양액이 채워진 35 mm 페트리 접시에 넣습니다. 5% CO₂ 조건의 포화 습도, 38.5 °C에서 배양합니다.
- 오염을 방지하기 위해 세포가 컨플루언스(confluence) 상태에 도달할 때까지 48시간마다 배양액을 교체합니다.
- 컨플루언스 상태의 플레이트에서 배양액을 제거하고, 35 mm 페트리 접시에 0.25% trypsin-EDTA 1 mL를 첨가하여 2분 동안 둡니다.
- 트립신을 불활성화하기 위해 세포 배양액 2 mL를 첨가합니다. 세포 현탁액을 15 mL 튜브로 옮기고 실온(≈ 25 °C)에서 200 x g로 10분 동안 원심 분리합니다.
- 상층액을 제거하고 세포 펠렛을 10 mL의 배양액에 재현탁합니다. 섬유아세포 배양물은 5일마다 계대 배양합니다.
- 세포 펠렛을 1 mL의 동결 보존액에 재현탁하여 섬유아세포를 동결 보존합니다. 세포 현탁액을 크라이오바이알로 옮겨 제어 냉각 용기에 넣고 -80 °C에서 18시간 동안 둔 후, 사용 전까지 액체 질소 탱크(-196 °C)로 옮깁니다. 섬유아세포 동결 보존 후에는 세포 조작을 일시 중단했다가 세포 주기 동기화 시점에만 다시 시작할 수 있습니다.
- iSCNT에 사용하기 1~2주 전에 섬유아세포를 해동하여 배양합니다.
3. 세포 주기 동기화
- 세포를 confluence 상태로 만들어 G0/G1 단계에서 세포 주기를 동기화합니다.
- confluent 상태의 플레이트에서 배양액을 제거하고, 0.25% trypsin-EDTA 1 mL를 35 mm 페트리 접시에 넣은 후 38.5 °C의 CO₂ 인큐베이터에서 2분 동안 처리합니다. trypsin을 불활성화하기 위해 배양액 2 mL를 첨가합니다.
- 세포 현탁액을 15 mL 튜브로 옮기고 200 x g에서 10분 동안 원심 분리합니다.
- 상층액을 제거하고 iSCNT용 세포 배양액 1-3 mL에 세포 침전물을 재현탁합니다.
4. 난자 수집
- 도축 직후 암소 또는 미경산우로부터 소 난소를 수집하고, 25-30 °C의 온도를 유지하며 운송 배지가 담긴 보온병에 넣어 실험실로 운반합니다.
- 난소를 배양액으로 두 번 세척한 후, 38.5 °C 항온수조 내의 비커에 넣습니다.
- H-TALP 배지가 담긴 10 mL 주사기에 18-gauge 바늘을 장착하여 직경 2-8 mm 크기의 난포에서 난포액을 흡입합니다.
- 흡입한 난포액을 50-mL 원심분리관(conical tube)으로 옮기고, 38.5 °C 항온수조에서 최소 15분 동안 방치합니다.
5. 난모세포 성숙 및 투명대 제거
- 15분 후, 플라스틱 파스퇴르 피펫을 사용하여 펠릿 전체를 페트리 접시(100mm)로 조심스럽게 옮깁니다. × 15 mm).
- 실체현미경을 사용하여 최소 3층의 조밀한 난구세포층을 가지고 있으며, 1등급에서 3등급에 해당하는 난구-난자 복합체(COCs)를 선택하십시오.표 1)19.
- COC를 1/2 H-TALP로 3회 세척한 후, 체외 성숙 배지로 2회 세척하십시오.
- 각각에 20-25개의 COC를 옮깁니다. 100 µL 미네랄 오일로 덮인 체외 성숙 배지 한 방울에 넣습니다. 다음 조건에서 배양합니다. 38.5 °C 5% CO가 포함된 분위기에서₂ 그리고 포화 습도에서 20-22시간 동안 유지한다.
- 피펫팅을 통해 COC 클러스터에서 세포를 조심스럽게 분리하십시오. 200 µL 히알루로니다아제 용액으로 2분 동안 처리합니다.
- H-TALP 배지 2 mL로 난자를 세척하여 난구세포를 제거하십시오.
- 실체현미경 하에서 제1극체가 방출된 난자(제2감수분열 중기 - MII)를 선택하여 다음 단계로 진행하십시오.
6. 투명대 제거, 핵 제거 및 투명대 제거 난자의 재구성
- MII 단계의 난자를 38.5 °C에서 100-µL의 pronase 용액 방울에 1-2분 동안 배양합니다. 투명대(zona pellucida)가 얇아지기 시작할 때까지 실체현미경으로 관찰합니다.
- 즉시 난자를 회수하여 pronase를 비활성화하기 위해 20% FBS가 보충된 배양액에 넣습니다.
- 투명대가 제거된 난자를 0.4 µg/mL의 demecolcine가 포함된 SOF 배지에서 20분 동안 배양하여 DNA를 포함하는 세포질 돌출부를 유도한 후, 10 µg/mL의 Hoechst가 보충된 동일한 배지에서 다시 20분 동안 배양합니다.
- 투명대가 제거된 난자를 H-TALP 방울로 옮기고, 도립현미경에 부착된 미세조작기를 사용하여 핵 제거(enucleation)를 수행합니다.
- 홀딩 피펫 옆에 난자를 위치시킵니다.
- 돌출부가 3시 방향에 오도록 난자를 회전시킨 후, 25 µm 뭉툭한 팁의 주입 피펫을 사용하여 세포질의 5-10%와 함께 돌출부를 흡입합니다.
- 흡입된 세포질을 자외선 하에서 관찰하여 핵 제거가 성공적으로 이루어졌는지 확인합니다(그림 2).
주의: 난자를 DNA 염색약과 자외선에 노출시키면 유전 물질이 손상되고 산화 스트레스가 유발됩니다. 노출 시간을 최소화하십시오.
7. 세포 융합
- 실체현미경 하에서 융합 챔버를 조립하고 pH 7의 융합 배지 2 mL를 채웁니다.
- 60 mm 페트리 접시에 H-TALP 100-µL 방울 5개와 30-µL 방울 1개를 준비하고, PHA 50 µL를 추가합니다.
- H-TALP 30 µL 방울에 섬유아세포 5 µL를 첨가하고, 굴절률이 균일한 세포를 선택하여 H-TALP 100 µL 방울로 옮깁니다.
- 탈핵된 난자를 H-TALP 100 µL 방울로 옮깁니다.
- 난자를 PHA 방울에 4초 동안 노출시킨 후 세포 위에 놓고, 두 세포가 서로 부착되었는지 확인합니다. 그런 다음 이 복합체를 아무것도 들어있지 않은 TALP-H 방울로 옮깁니다.
- 난자와 세포가 부착된 후, 이를 2 mL의 융합 배지가 담긴 플레이트로 옮겨 안착시킵니다. 그 후 복합체를 전극 사이의 융합 챔버에 배치하되, 세포가 6시 또는 12시 방향에 오도록 위치시킵니다.
주의: 전기융합 중에 사용되는 활성화 버퍼에는 세포의 칼슘 항상성을 파괴하는 ionomycin이 포함되어 있습니다. 고전압 전기장은 장비가 젖어 있거나 잘못 다루어질 경우 전기 충격 또는 아크 방전의 위험이 있습니다. - 전극 간격이 0.2 mm인 미세융합 챔버를 사용하여 융합을 수행합니다. 전기천공기를 사용하여, 각 펄스 지속 시간이 30 µs이고 펄스 간 간격이 0.1 s인 0.72 kV/cm의 단방향 직류 펄스 2개로 구성된 단일 펄스 트레인을 가합니다.
- 펄스를 가한 후, 각 난자-세포 쌍을 2.5% FBS가 첨가된 5-µL SOF 미세방울로 개별적으로 옮기고 38.5 °C, 5% CO₂ 분위기에서 배양합니다.
- 30분 후 실체현미경 하에서 개별적으로 융합 여부를 평가합니다.
- 융합되지 않은 구조물은 2차 융합 과정을 거치게 합니다.
- 융합된 복합체를 투명대(zona pellucida)가 없는 재구성된 배아로 간주하고, 활성화될 때까지(리프로그래밍 시간) 2시간 동안 배양합니다.
8. 난자 활성화 및 배아 배양
- 재구성된 구조체를 5 µM ionomycin이 포함된 100 µL H-TALP 배지 방울에서 4분 동안 배양합니다.
- 재구성된 구조체를 100 µL H-TALP 배지 네 방울로 세척합니다.
- 재구성된 구조체를 2 mM 6-DMAP가 포함된 100 µL SOF 배지 방울에서 3시간 동안 배양합니다.
- 재구성된 구조체를 100 µL SOF 배지 네 방울로 세척합니다.
- 가열된 유리 모세관을 35 × 10 mm 페트리 접시 바닥에 가볍게 눌러 마이크로웰 플레이트를 제작합니다. 직경 500 µm, 깊이 250 µm의 마이크로웰을 20~25개 제작합니다20.
- 재구성된 배아를 수정된 마이크로플레이트 웰에 개별적으로 넣고, 100 µL의 SOF 배지로 덮은 후 마지막으로 3 mL의 미네랄 오일로 덮습니다. 마이크로플레이트를 5% CO₂, 5% O₂, 90% N₂ 농도의 가스 조절 인큐베이터에서 7일 동안 배양합니다.
결과
결과는 R 소프트웨어(v.4.5.2)를 사용하여 분석되었습니다. 분할률과 배반포 형성률은 Fisher의 정확 검정을 사용하여 쌍 간(사슴/소 vs 소/소)에 비교되었습니다. 사슴/소 쌍 4회, 소/소 쌍 6회로 총 10회의 반복 실험이 수행되었습니다. 또한, 모든 분석에서 유의 수준은 5%로 설정되었습니다.
분석 과정에서 지역 도축장에서 얻은 472개의 소 난자를 세포질 수용체로 사용하였다. 그러나 체외 성숙 및 이후의 전기융합 과정에서 73개의 구조체가 융합에 실패하여 이후 단계에서 제외되었으며, 그 결과 399개의 핵이식체/세포질 수용체 구조체가 성공적으로 융합되었다. 이 전체 수량 중 다음과 같은 쌍(핵이식체/세포질 수용체)이 사용되었다: 사슴/소 4회 반복(n = 175) 및 소/소 6회 반복(n = 224) (표 2).
iSCNT의 영향을 평가하기 위해, 투명대(zona pellucida)를 제거한 재구성 배아를 7일까지 마이크로웰에서 배양하였습니다. 투명대가 없는 상실배와 포배의 대표적인 현미경 사진이 그림 3에 제시되어 있습니다.
표 2는 본 실험에서 얻은 분할률 및 배반포 형성률을 나타냅니다. 분할률은 그룹 간(사슴/소 및 소/소 쌍)에 유의미한 차이가 없었습니다(P = 0.74). 반면, 배반포 형성률의 경우 통계적 차이(P=0.02)가 관찰되었으며, 종내 복제 그룹에서 더 높은 비율을 보였습니다. 다만, 종간 복제 개체 수가 일반적으로 적은 이러한 유형의 실험에서 나타나는 통계적 검정력의 한계를 강조하는 것이 중요합니다.
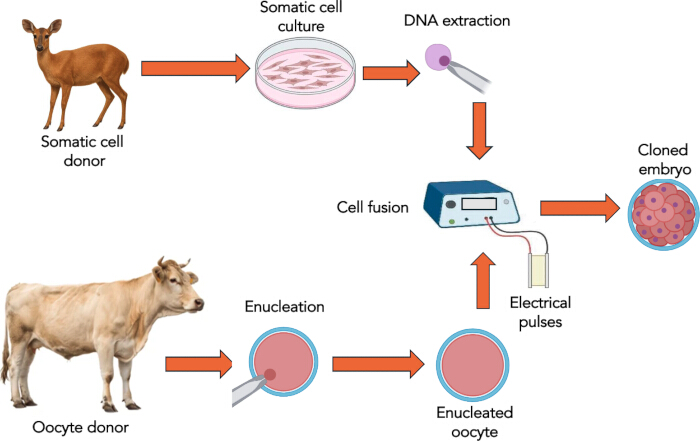
그림 1: 종간 체세포 핵 이식(Somatic Cell Nuclear Transfer)의 모식적 단계. 소를 세포질 공여자로, 사슴을 핵 공여자로 사용합니다. 복제 배아를 얻은 후, 이를 수용 암컷에게 이식하거나 향후 이식을 위해 동결 보존할 수 있습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
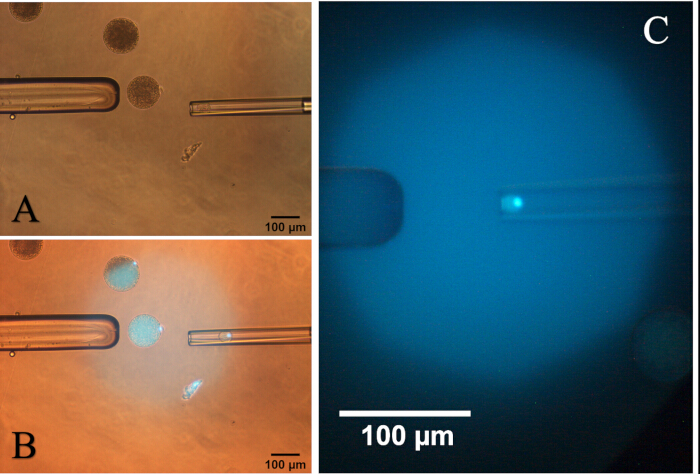
그림 2: 세포질 돌출부가 있는 활성화된 난모세포의 현미경 사진. (A) 돌출부를 3시 방향으로 위치시키기 위해 난모세포를 회전시킨 모습. (B) 자외선 조사 하에 세포질의 5-10%와 함께 돌출부를 흡입하는 모습. (C) 자외선 조사 하에 흡입 피펫 내에 있는 세포질과 그 돌출부. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
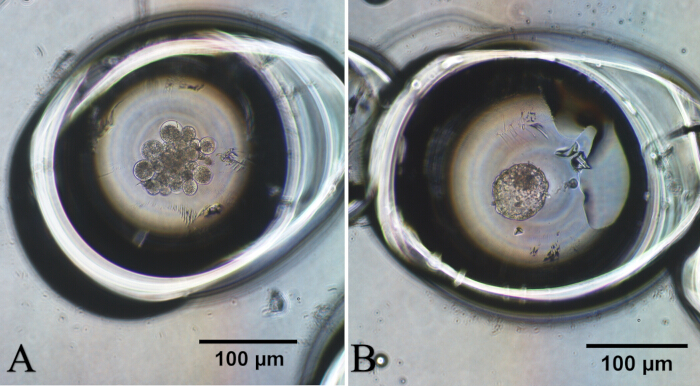
그림 3: 종간 체세포 핵 이식으로 생성된 사슴 배아의 광학 현미경 사진. (A) 상실배 단계의 복제 배아. (B) 포배 단계의 복제 배아. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 등급 | 난포세포 층수 | 난포세포 층의 확장 |
| I | > 3 | 여러 개의 조밀하고 약간 느슨한 세포층을 포함하는 완전한 적운 덮개 |
| II | 2 - 3 | 외부 세포층의 미세 팽창 |
| III | 1 | 부분적인 난구세포 덮개 및 느슨한 세포층 |
| 정맥 내 투여 | 0 | 적운 없음 |
표 1: 종간 체세포 핵 이식 과정에서 핵 제거 후 세포질 제공자로 사용될 소 난자의 분류(Aguila 등의 연구에서 수정)19.
| 그룹 (핵 제거 세포질/핵 제외 세포질) | 반복 횟수 | 재구성된 배아 수 | 절단된 수 (%) | 배반포 수 (%) |
| 사슴/소 | 4 | 175 | 122 (69.7)a | 8 (4.6)a |
| 소/소 | 6 | 224 | 160 (71.4)a | 24 (10.7)b |
| 동일한 열에서 서로 다른 문자는 통계적 유의차를 나타냅니다. | ||||
| 분할률: P = 0.74 | ||||
| 배반포 형성률: P = 0.02 | ||||
표 2: 소 세포질을 이용한 붉은브로켓사슴 복제 배아의 체외 발달. 총 10회의 반복 실험이 수행되었으며, 사슴/소 쌍이 4회, 소/소 쌍이 6회였다. 분할률과 배반포 형성률은 재구성된 배아 수를 분모로 하여 계산하였다.
토론
멸종 위기 종의 게놈은 가축, 특히 세포질 수용체(cytoplasts)의 가장 큰 공급원인 소와 돼지의 난자를 사용하여 재프로그래밍될 수 있다는 점이 이미 잘 입증되었습니다21. iSCNT에서 달성한 가장 큰 진전 중 하나는 마지막으로 알려진 개체의 죽음 이후 사라졌던 아종인 피레네 아이벡스(Capra pyrenaica pyrenaica)의 복제였습니다. 재구성된 배아는 아이벡스의 상피 세포와 염소(Capra hircus)의 난자를 융합하여 얻었습니다. 저자들은 외부 형태적 이상이 없는 암컷 한 마리의 출산에 성공했습니다. 그러나 새끼는 심각한 호흡 부전을 보였으며 출생 후 몇 분 만에 사망했습니다22.
“부활”의 가장 유력한 후보 중 하나는 매머드(Mammuthus primigenius)입니다. 복제가 가능하려면 식별 가능한 핵을 가진 생존 가능한 조직의 확보가 필수적인데, 이는 약 10,000년 전에 사라진 종에게는 어려운 일입니다. 그럼에도 불구하고, 동결 지층에서 발견된 매머드의 사체는 iSCNT23를 위한 최소 요구 사항을 충족합니다. 하지만 아마도 멸종 위기 종들이 이 기술의 혜택을 받기에 더 적합한 후보일 것입니다.
본 연구에서 관찰된 분할률은 핵과 세포질의 종간 조합이 활성화 및 첫 번째 배아 분할에 영향을 미치지 않았음을 보여주었습니다. 재구성 단계에서 구조물(핵이식체/세포질이식체)의 조작 및 융합은 두 그룹 모두에서 동일한 기술적 용이성을 나타냈으며, 이는 종 간의 구조적 호환성을 시사합니다. 포배 형성률과 관련하여, 결과는 iSCNT 배아의 재구성 및 초기 활성화는 제한 요인이 아니지만, 발달 후기 단계에서 핵-세포질 불호환성이 나타남을 시사합니다. 이는 불완전한 후성유전학적 재프로그래밍 또는 하이브리드 배아가 포배 단계에 도달하는 능력에 영향을 미치는 모계-접합자 전환과 관련이 있을 가능성이 높습니다24. iSCNT의 효율은 핵이식체와 세포질이식체가 계통학적으로 연관된 종에서 유래했을 때 더 높은 경향이 있는데, 이는 생존 가능한 하이브리드 자손의 자연적 생산이 두 종 사이의 어느 정도의 핵-세포질 호환성을 나타내기 때문입니다23. 따라서 아종 간 SCNT는 이미 건강한 자손을 생산하는 것으로 밝혀졌습니다. 저자들은 암컷 개의 세포질이식체와 늑대 섬유아세포를 사용하고 배아를 12마리의 암컷에게 이식하여 자손 한 마리를 출산시켰습니다25.
iSCNT의 사용은 생물학적 및 발달 효율성 측면에서 중대한 "능력 제한"에 직면하며, 이는 공여 핵과 수용 난자 사이의 진화적 거리가 멀어질수록 급격히 감소합니다. 밀접하게 연관된 종(예: 가축 소와 가우르)26 사이에서는 성공적이지만, 더 먼 분류학적 경계를 넘으려 할 때는 생존 가능한 자손이나 안정적인 배아 세포주를 생성하는 데 통상적으로 실패합니다.
클로닝은 유전적으로 우수한 개체의 증식을 가능하게 하고, 형질전환 동물의 생성을 지원하며, 유전자 은행을 통해 가치 있는 유전 자원의 장기 보존에 기여하므로 가축 육종 및 보존 프로그램의 중요한 도구입니다. 그럼에도 불구하고, 가축 육종 프로그램에서 클로닝의 도입은 이식된 배아 수 대비 생산되는 살아있는 동물의 수가 적다는 점으로 인해 여전히 제한적입니다18. 복제 배아 생산을 위한 현재의 접근 방식은 일반적으로 전통적 클로닝과 ZP-free 클로닝의 두 가지 범주로 나뉩니다. 전통적인 방식에서는 미세조작기를 사용하여 난자 핵을 제거하고 공여체 체세포를 수용자 세포질 내로 도입해야 합니다26. 전통적 클로닝과 달리, ZP-free 방법은 미세조작 없이 수행됩니다27. 본 연구에서 얻은 결과는 난할률이나 배반포 형성률 모두 iSCNT를 사용하여 확인한 결과와 매우 유사했습니다20,21.
마지막으로, 본 절차의 여러 단계들을 고려하여 핵심 주의 사항과 실질적인 문제 해결 방법을 강조하는 것이 중요합니다. 투명대(ZP) 제거와 관련하여, ZP-free 클로닝은 조작의 용이성, 비용 효율성, 그리고 이식된 배아당 상대적으로 향상된 생존 출산율28을 포함한 여러 장점을 제공합니다. 치명적인 세포질 손상을 유발하지 않으면서 완전한 핵 제거(탈핵)를 확인하는 것은 재구성된 구조가 클로닝 배아를 성공적으로 지원할 수 있는지를 결정합니다. UV 노출은 유해한 영향을 미치는 것으로 알려져 있으나29, 대부분의 클로닝 연구실에서 일상적으로 사용되어 왔습니다. 마지막으로, ZP-free 배아 배양은 보호 역할을 하는 외부 당단백질 껍질이 없기 때문에, 취급 중 물리적 취약성이 높고 할구 분리가 일어나는 것과 같은 주요 문제가 발생합니다30.
결론적으로, 본 연구에서 얻은 결과는 iSCNT 프로토콜이 사슴/소 조합에서 기술적으로 가능함을 보여주는 예비 증거로 해석되어야 하며, 생산적 효능에 대한 결정적인 증거로 보아서는 안 됩니다. 따라서 이러한 발견을 확인하기 위해 더 많은 반복 실험을 포함한 추가 연구가 필요합니다.
공개 사항
저자들은 공개할 이해관계 충돌이 없습니다.
감사의 글
본 연구는 Cearense Foundation for Scientific and Technological Development Support(FUNCAP, 브라질 포르탈레자, Grant 번호 11212233/2022)와 National Institutes of Science and Technology(INCT/CNPq, Grant 번호 406866/2022-8)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 흡인 바늘 (18G) | LABIMPORT | 353601 | 일회용 바늘, 단절형 |
| 6-디메틸아미노푸린 (6-DMAP) | Sigma-Aldrich | D2629 | |
| 항생제–항진균제 | Gibco, Thermo Fisher Scientific | 15240062 | |
| 소혈청알부민 | Sigma-Aldrich | A9647 | |
| 염화칼슘 이수화물 (CaCl2·2H2O)·2H2O) | Sigma-Aldrich | C7902 | |
| 세포 배양 플라스크 T-25 | Corning | 430639 | |
| CellTram 미세주입기 | Eppendorf | 5196 000.021 | |
| 원심분리기 | Eppendorf | 5702 | 세포를 200에서 원심분리하는 데 사용됨 × 핵 이식 절차 전, 샘플을 펠렛화하고 세척하기 위해 10분 동안 원심분리합니다. |
| 원심분리 튜브 (50mL) | Corning | CLS430291 | |
| 냉동 보관 튜브 (1.8 mL) | Nunc / Thermo Fisher | 368632 | |
| 시스테아민 | Sigma-Aldrich | M9768 | |
| 데메콜신 | Sigma-Aldrich | D1925 | |
| 증류수 | _ | _ | |
| DMSO (세포 동결) | Sigma-Aldrich | D2650 | 공여 세포 동결 보존을 위한 10% 동결 보호제 |
| Dulbecco's Modified Eagle Medium (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| 핵 제거 피펫 (20–25 µm ID) | Narishige | GD-1 | |
| 상피세포 성장인자 (EGF) | Sigma-Aldrich | E4127 | |
| 필수 아미노산 BME | Sigma-Aldrich | M5550 | |
| 에스트라디올 | Sigma-Aldrich | E8875 | |
| EVE 인큐베이터 (5% O2)2, 5% CO22, 90% N2) | WTA 의료 | 참조. 23578 | |
| 소태아혈청 (FBS) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| 필라멘트가 포함된 유리 모세관 | Narishige | GD-1 | 이 유리 모세관은 페트리 접시에 마이크로웰을 만드는 데 사용됩니다. |
| 가열 플레이트 | WTA 의료 | 17656 | |
| 헤페스(Hepes) | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (DNA 염색약) | Sigma-Aldrich | B2261 | |
| 홀딩 피펫 (120 μm 광학 밀도(OD) | Narishige | GD-1 | |
| 히알루로니다제 | Sigma-Aldrich | H4272 | |
| ECLIPSE 도립 현미경 | Nikon | TE2000-U | |
| 이오노마이신 (칼슘 이온ophores A23187) | Sigma-Aldrich | I0634 | |
| 내부 전사 간격 서열(Internal Transcribed Spacer) | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Isocide 층류 작업대 | Esco | 2120765 | 배아 및 세포 배양 절차를 위해 멸균된 작업 환경을 제공하는 층류 작업대. |
| L-글루타민 | Sigma-Aldrich | G8540 | |
| 액체 질소 저장 듀어 | 니트로아그로(Nitroagro) | 다양함 | |
| 황산마그네슘 (MgSO4) | Sigma-Aldrich | M2643 | |
| 만니톨 융합 배지 (0.3M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Microforge MF-900 | Narishige | MF-900 | |
| 마이크로매니퓰레이터 시스템 | Narishige | MM-89 / TransferMan 4r | |
| 마이크로피펫 풀러 | Narishige | Narishige PC-100 | |
| 마이크로피펫(10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | 리서치 플러스 시리즈 (Research Plus Series) | |
| 마이크로퓨전 챔버 | Eppendorf | 12816532 | 전기천공법 응용 분야를 위해 설계된 특수 0.2 mm 간격 액세서리입니다. |
| 미네랄 오일(배아 테스트 완료) | Sigma-Aldrich | M8410 | |
| 멀티포레이터 (Multiporator) | Eppendorf | 4308 000.015 | |
| 마이오-이노시톨 | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| 비필수 아미노산 MEM | Sigma-Aldrich | M7145 | |
| 펜타바이오틱(Pentabiotic) | Zoetis | 10005048 | 2,400,000 IU 바이알. |
| 페트리 접시 35mm (배아 테스트 완료) | Corning | 430165 | |
| 페트리 접시 60mm (배아 테스트 완료) | Corning | 430196 | |
| 페놀 레드 | Sigma-Aldrich | P0290 | |
| 피펫 팁 1000 µL | Eppendorf | 9401030 | |
| 피펫 팁 200 µL | Eppendorf | 94052300 | |
| 필터 없는 피펫 팁 (0.5–10 µL) | Axygen | T-300 | |
| 폴리비닐알코올 (PVA) | Sigma-Aldrich | P8136 | |
| Pronase (S. griseus 유래 프로테아제) | Sigma-Aldrich | P8811 | |
| 젖산나트륨 | Sigma-Aldrich | L7900 | |
| 피루브산나트륨 | Sigma-Aldrich | P4562 | |
| 실체현미경 | Nikon | SMZ800 | |
| 멸균 배아 시험수 | Sigma-Aldrich | W3500 | |
| 멸균 필터 (0.22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| 삼중 가스 배양기 (5% O2)2, 5% CO22, 90% N2) | WTA 의료 | 참조. 23578 | |
| Trypsin-EDTA (0.25%) | Gibco / Thermo Fisher | 25200056 | |
| 초순수á제공해주신 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | Sigma-Aldrich | W3500 | |
| UV 램프 / 형광 모듈 | Leica / Olympus | 다양함 | 핵 제거 여부를 확인하기 위한 짧은 UV 조사; 광독성 최소화 |
참고문헌
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공