본 연구는 네트워크 약리학, 검증된 분자 도킹 및 in vitro 실험을 통합하여 Cordyceps sinensis 성분과 만성 사구체신염 관련 과정 사이의 후보 화합물-표적 관계를 평가하였습니다. β-Sitosterol이 화합물 수준의 검증 대상으로 선정되었으며, 사구체간질세포 모델에서 염증 및 섬유화 촉진 활성화를 완화하는 것으로 나타났습니다.
방법 논문
만성 사구체신염과 관련된 염증성 및 섬유화 촉진 메산지움 세포 모델에서 네트워크 기반의 $\beta$-sitosterol 평가
* These authors contributed equally
이 논문에서
요약
초록
만성 사구체신염(CGN)은 지속적인 염증성 손상과 점진적인 섬유성 리모델링을 특징으로 하지만, 천연물 기반 중재법의 근거가 되는 화합물-타겟 관계는 아직 완전히 정의되지 않았습니다. 본 연구에서는 네트워크 약리학, 검증된 분자 도킹 및 in vitro 실험을 통합하여 CGN 관련 병리 과정에서 동충하초(Cordyceps sinensis (C. sinensis))의 후보 성분들을 평가하였습니다. C. sinensis의 후보 성분들을 스크리닝하고, Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform에서 도출된 화합물 관련 타겟들을 CGN 관련 유전자들과 교차 분석하였습니다. 기능적 풍부도 분석 및 단백질-단백질 상호작용 분석을 통해 생물학적 과정과 허브 타겟들의 우선순위를 정하였습니다. 그 결과 PTGS2가 핵심 중첩 타겟으로 확인되었습니다. 분자 도킹은 celecoxib가 결합된 COX-2 구조를 사용하여 수행되었습니다. 공동 결정화된 celecoxib 리간드의 재도킹 결과, RMSD 0.876 Å으로 결정학적 포즈가 재현되어 도킹 프로토콜의 타당성이 입증되었습니다. β-Sitosterol과 linoleyl acetate는 COX-2 도킹 영역과 예측된 적합성을 보였으며, 결합 친화도는 각각 −7.2 및 −7.5 kcal/mol이었습니다. β-Sitosterol을 선정하여 HBZY-1 쥐 사구체 메산지움 세포에서 화합물 수준의 검증을 수행하였습니다. 0.5–10 µM 농도에서 β-sitosterol은 세포 생존율을 현저하게 감소시키지 않았습니다. Lipopolysaccharide (LPS)로 자극된 세포에서 β-sitosterol은 Tnf, Il6, Ptgs2의 발현을 감소시켰고, prostaglandin E2 (PGE2) 생성을 줄였으며, cyclooxygenase-2 (COX-2) 단백질 풍부도를 감소시켰습니다. transforming growth factor β1 (TGF-β1) 처리 세포에서 β-sitosterol은 Col1a1 및 Acta2의 발현을 감소시켰고 alpha-smooth muscle actin (α-SMA) 단백질 풍부도를 감소시켰습니다. 이러한 결과는 β-sitosterol이 메산지움 세포 모델에서 염증 및 섬유화 촉진 활성을 조절한다는 가설 생성 근거를 제공하지만, 직접적인 COX-2 효소 억제나 CGN에서의 치료 효능을 확립하는 것은 아닙니다.
서론
만성 사구체신염(CGN)은 만성 신장 질환 및 말기 신질환으로 진행될 수 있는 불균일한 사구체 질환 그룹으로 구성됩니다1. 이는 지속적인 사구체 손상, 염증 활성화 및 점진적인 섬유성 리모델링을 특징으로 합니다2,3. 선택된 환자들에게 코르티코스테로이드와 면역억제제가 사용되지만, 많은 경우 장기적인 질병 조절이 여전히 어려우며 치료 관련 부작용이 흔하게 발생합니다1,4,5. CGN의 진행에는 면역 활성화, 내피 세포 기능 장애, 산화 스트레스 및 세포외 기질 축적을 포함하여 서로 상호작용하는 병리적 과정들이 관여합니다3,6,7. 따라서 염증 및 전섬유성 반응을 연결하는 분자 노드를 식별하는 것은 질병 관련 중재 전략을 위한 검증 가능한 가설을 생성하는 데 도움이 될 수 있습니다.
동충하초 (C. sinensis)는 신장 관련 임상 및 실험적 맥락에서 사용되어 왔으며, 여러 질환 모델에서 항염증, 항세포사멸 및 세포 보호 효과를 나타내는 것으로 보고되었습니다.8,9,10하지만 해당 후보 성분들이 사구체신염 관련 표적과 상호작용하는 분자적 기전은 여전히 충분히 정의되지 않은 상태이다.11~의 다성분 특성을 고려할 때, C. sinensis 그리고 CGN의 기전적 이질성으로 인해, 네트워크 약리학은 후보 화합물-표적-경로 관계의 우선순위를 정하는 데 유용한 프레임워크를 제공합니다.12,13.
본 연구에서는 C. sinensis의 후보 성분과 CGN 관련 병리 과정 사이의 잠재적인 분자적 관계를 탐색하기 위해 화합물 스크리닝, 타겟 검색, 질병-유전자 교차 분석, 기능적 풍부도 분석, 단백질-단백질 상호작용 네트워크 분석, 분자 도킹 및 in vitro 검증을 통합적으로 수행하였다. 화합물-질병 네트워크에서 허브 타겟으로 우선순위가 지정된 Prostaglandin-endoperoxide synthase 2 (PTGS2)를 대상으로, celecoxib가 결합된 cyclooxygenase-2 (COX-2) 구조를 이용한 분자 도킹 및 리도킹 검증을 통해 평가하였다. 네트워크 결과, 도킹 분석, 그리고 항염증 및 항섬유화 활성에 대한 기존 근거를 바탕으로 β-sitosterol을 후속 검증을 위한 대표 후보 화합물로 선정하였다14,15,16. 염증성 활성화 및 COX-2/prostaglandin E2 (PGE2) 관련 반응을 평가하기 위해 Lipopolysaccharide (LPS)로 자극된 메산지움 세포를 사용하였으며, 섬유화 촉진 마커 발현을 평가하기 위해 transforming growth factor β1 (TGF-β1) 유도 모델을 포함하였다.
프로토콜
네트워크 약리학 및 생물정보학 분석은 공개적으로 이용 가능한 데이터베이스를 기반으로 하였으며, 인간 참여자나 동물을 포함하지 않았습니다. in vitro 실험은 기성 세포주를 사용하여 수행되었으며, 기관 요구 사항에 따라 윤리 위원회의 승인을 필요로 하지 않았습니다.
후보 성분 스크리닝 및 타겟 검색
2025년 7월 13일, Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP)에서 검색어 “dongchongxiacao”를 사용하여 후보 성분과 그에 해당하는 표적들을 검색하였습니다. 예측 경구 생체이용률이 30% 이상이고 약물 유사성이 0.18 이상인 화합물을 유지하였습니다. 총 7개의 후보 성분이 두 가지 스크리닝 기준을 모두 충족하였습니다. 기술적 비교를 위해 TCMSP로부터 분자량, 경구 생체이용률, 약물 유사성 및 기타 가용한 약동학적 기술자를 기록하였습니다.
보존된 성분과 관련된 화합물-타겟 정보는 TCMSP에서 직접 다운로드하였다. 중복되지 않는 타겟 세트를 구축할 때 중복된 타겟 항목은 수동으로 제거하였으며, 이후의 네트워크 구축을 위해 원래의 화합물-타겟 관계는 그대로 유지하였다. TCMSP는 표준화된 유전자 심볼이 아닌 전체 명칭으로 타겟 이름을 제공하므로, 각 타겟을 UniProt 데이터베이스(2025년 7월 14일 접속)에서 검색하였다. 이에 해당하는 인간 항목을 선택하고 타겟 이름을 공식 유전자 심볼로 변환하였다. 표준화된 화합물-타겟 데이터셋은 질환-타겟 교집합 분석 및 화합물-타겟 네트워크 분석에 사용되었다.
사구체신염 관련 유전자 수집 및 타겟 교집합 분석
질환 관련 유전자는 2025년 7월 14일에 "glomerulonephritis"라는 검색어를 사용하여 GeneCards, DisGeNET, PharmGKB 및 Therapeutic Target Database에서 검색하였다. GeneCards의 경우, 관련성 점수가 중앙값인 10보다 높은 항목을 유지하였다. 다른 데이터베이스의 적격 항목들은 큐레이션된 질환-타겟 주석에 따라 포함되었다. 유전자 이름은 공식 인간 유전자 기호로 표준화하였으며, 중복 항목은 제거하였다. 이 절차를 통해 1,134개의 고유한 사구체신염 관련 유전자를 얻었다. 검색에 "glomerulonephritis"라는 광범위한 용어를 사용했기 때문에, 결과 데이터셋은 단일 조직병리학적 하위 유형에 특이적이기보다는 만성 사구체신염 관련 분자 프로세스와 관련이 있는 것으로 간주되었다.
TCMSP 유래 화합물 관련 타겟과 질병 관련 유전자 세트를 R을 사용하여 교집합 분석하였습니다. 이를 통해 23개의 중첩 타겟이 확인되었습니다. R 패키지인 venn을 사용하여 벤 다이어그램을 생성하였으며, 화합물-중첩 타겟 네트워크는 Cytoscape를 사용하여 구축 및 시각화하였습니다. 후보 성분과 중첩 타겟 간의 관계는 표 1에 요약되어 있습니다.
기능적 농축 및 단백질-단백질 상호작용 분석
clusterProfiler 및 org.Hs.eg.db를 사용하여 R에서 유전자 온톨로지(Gene Ontology, GO) 및 교토 유전자 및 게놈 백과사전(Kyoto Encyclopedia of Genes and Genomes, KEGG) 풍부도 분석을 수행하였다. 유전자 온톨로지 용어는 생물학적 과정, 세포 구성 성분 및 분자 기능 범주에서 분석되었다. P 값은 Benjamini-Hochberg 방법을 사용하여 다중 검정 보정을 거쳤으며, 보정된 P 값이 0.05 미만인 용어 또는 경로를 유지하였다. 풍부해진 용어와 경로는 독립적으로 생성된 막대 그래프와 도트 플롯을 사용하여 표시하였다.
중첩된 23개의 타겟을 STRING에 제출하였으며, 생물종은 Homo sapiens로 선택하고 최소 상호작용 점수는 0.4 초과로 설정하였습니다. 결과로 도출된 단백질-단백질 상호작용 네트워크를 Cytoscape로 가져왔습니다. 네트워크 토폴로지는 degree, betweenness, closeness, eigenvector centrality, local average connectivity 및 network centrality를 기반으로 CytoNCA를 사용하여 평가하였습니다. 허브 타겟은 degree, betweenness centrality, closeness centrality, eigenvector centrality, local average connectivity 및 network centrality 값이 모두 네트워크의 해당 중앙값보다 큰 노드로 정의하였습니다. 이 분석을 통해 후속 해석을 위한 9개의 허브 타겟을 우선적으로 선정하였습니다.
분자 도킹 및 리도킹 검증
분자 도킹은 celecoxib가 결합된 cyclooxygenase-2 구조인 PDB ID 3LN1을 사용하여 수행되었습니다. 수용체 준비 과정에서 Chain A와 관련 heme 그룹은 수용체로 유지하였으며, 결정학적 물 분자와 공동 결정화된 celecoxib 리간드는 제거하였습니다. redocking 검증을 위해 Chain A에서 천연 celecoxib 형태를 별도로 추출하였습니다. AutoDockTools를 사용하여 극성 수소 원자와 Gasteiger 전하를 추가하였으며, 수용체는 PDBQT 형식으로 저장하였습니다. PDB ID 3LN1은 celecoxib가 결합된 마우스 COX-2의 2.40 Å 구조입니다. β-sitosterol 및 linoleyl acetate의 구조는 PubChem에서 가져와 Open Babel을 사용하여 준비하였습니다. 수소 원자와 Gasteiger 부분 전하를 추가하고, 회전 가능한 결합을 할당한 후, 각 리간드를 PDBQT 형식으로 변환하였습니다. Celecoxib, β-sitosterol 및 linoleyl acetate를 동일한 수용체 및 탐색 파라미터를 사용하여 AutoDock Vina로 도킹하였습니다.
도킹 박스는 다음 좌표를 사용하여 천연 celecoxib 결합 부위에 중심을 맞추었습니다: center_x = 30.9886 center_y = -22.2836 center_z = -16.5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å. exhaustiveness 값은 16, 출력 모드 수는 10, 에너지 범위는 3 kcal/mol로 설정하였습니다. 예측된 결합 에너지가 가장 낮은 최상위 포즈를 시각화를 위해 유지하였습니다. 프로토콜 검증을 위해 동일한 조건에서 천연 celecoxib를 재도킹하였으며, 결정 구조 포즈와 재도킹된 포즈 사이의 중원자 평균 제곱근 편차(RMSD)를 PyMOL을 사용하여 계산하였습니다. 2 Å 미만의 RMSD를 기준 포즈의 허용 가능한 재현으로 간주하였습니다. 도킹된 각 리간드로부터 4 Å 이내에 위치한 잔기들을 PyMOL에서 식별하였습니다. 도킹 점수와 포즈는 구조적 적합성에 대한 추정치로 해석하였으며, 표적 결합이나 효소 억제의 직접적인 증거로 간주하지 않았습니다.
세포 배양 및 화합물 준비
HBZY-1 쥐 사구체 메산지움 세포를 10% fetal bovine serum과 1% penicillin-streptomycin이 첨가된 high-glucose Dulbecco’s modified Eagle medium에서 37 °C, 5% CO₂의 가습 조건으로 배양하였다. 모든 실험에는 계대 배양 2-7대의 세포를 사용하였으며, 사용 전 마이코플라스마 음성 상태임을 확인하였다. 화학적으로 정의된 화합물로 β-Sitosterol과 celecoxib를 사용하였다. β-Sitosterol은 절대 에탄올에 용해하여 10 mM 스톡 용액(약 4.15 mg/mL)을 제조하였다. 필요한 경우, 육안으로 투명한 용액이 될 때까지 짧은 시간 동안 초음파 처리 및 50–60 °C 가온을 수행하였다. Celecoxib는 dimethyl sulfoxide에 용해하여 10 mM 스톡 용액(약 3.81 mg/mL)을 제조하였다. 제조된 스톡 용액은 소분하여 −20 °C에서 보관하였다. 처리에 앞서, 스톡 용액을 미리 가온한 배양액에 직접 희석하여 즉시 혼합하였다.
각 실험 내에서 용매 농도를 동일하게 맞추었습니다. 세포 생존율 분석에서는 테스트한 β-sitosterol의 최고 농도가 20 µM이었으므로, 모든 군의 최종 에탄올 농도를 0.2% v/v로 조정하였습니다. LPS 유도 염증 실험에서는 모든 군의 최종 에탄올 및 dimethyl sulfoxide 농도를 각각 0.1% 및 0.01% v/v로 조정하였습니다. TGF-β1 유도 섬유화 촉진 실험에서는 모든 군의 최종 에탄올 농도를 0.1% v/v로 조정하였습니다. 대조군, LPS 군 및 TGF-β1 군에는 해당 용매를 동일한 부피로 첨가하였습니다.
세포 생존율 분석
세포를 96-well 플레이트에 well당 5 × 10³ cells의 밀도로 완전 배지 100 µL에 분주하고 24시간 동안 부착시켰다. β-sitosterol의 농도 범위를 평가하기 위해, 세포를 0.5, 1, 5, 10 또는 20 µM β-sitosterol과 함께 24시간 동안 배양하였다. LPS 관련 세포 생존율 분석을 위해, 세포를 1, 5 또는 10 µM β-sitosterol로 2시간 동안 전처리한 후, 1 µg/mL lipopolysaccharide에 24시간 동안 추가로 노출시켰다.
처리군은 대조군, 0.5 µM β-sitosterol, 1 µM β-sitosterol, 5 µM β-sitosterol, 10 µM β-sitosterol, 20 µM β-sitosterol, LPS, LPS 및 1 µM β-sitosterol, LPS 및 5 µM β-sitosterol, 그리고 LPS 및 10 µM β-sitosterol로 구성되었습니다. 웰당 10 µL의 Cell Counting Kit-8 시약을 첨가하고 플레이트를 2 h 동안 배양하였습니다. 이후 450 nm에서 흡광도를 측정하였습니다. 세포 생존율은 세포가 없는 공시료(blank) 값을 뺀 후 대조군에 대한 상대값으로 산출하였습니다. 각 조건은 6회의 독립적인 생물학적 실험에서 각각 6개의 기술적 반복 웰(technical wells)을 포함하였습니다. 통계 분석을 위해 각 실험의 기술적 반복 웰 값들을 평균하여 하나의 생물학적 반복 값을 생성하였습니다.
LPS로 유도된 염증성 활성화
염증 활성화 실험을 위해, HBZY-1 세포를 6-well plate에 well당 2 × 10⁵ cells의 밀도로 분주하고, 세포 밀도가 약 70%–80%에 도달한 후 처리하였습니다. 세포는 처리 전 12시간 동안 1% fetal bovine serum이 첨가된 배지에서 배양되었습니다. β-Sitosterol 또는 celecoxib를 LPS 자극 2시간 전에 투여하였습니다. 그 후, 세포를 1 µg/mL LPS에 24시간 동안 노출시켰습니다.
실험군은 대조군, 10 µM β-sitosterol, LPS, 1 µM β-sitosterol 첨가 LPS, 5 µM β-sitosterol 첨가 LPS, 10 µM β-sitosterol 첨가 LPS, 그리고 1 µM celecoxib 첨가 LPS로 구성하였다. Celecoxib는 COX-2 의존적 프로스타글란딘 생성 억제의 기능적 양성 대조군으로 포함되었다. 처리 종료 후, PGE2 측정을 위해 배양 상층액을 수집하였다. 세포는 Tnf, Il6, Ptgs2의 정량적 실시간 PCR 분석과 COX-2의 웨스턴 블롯 분석을 위해 별도로 수집하였다.
TGF-β1 유도 섬유화 촉진 활성화
섬유화 촉진 활성을 평가하기 위해 별도의 TGF-β1 유도 모델을 사용하였습니다. HBZY-1 세포를 6-웰 플레이트에 웰당 2 × 10⁵ cells 밀도로 분주하고, 처리 전 1% fetal bovine serum이 보충된 배지에서 12 h 동안 유지하였습니다. 세포를 β-sitosterol로 2 h 동안 전처리한 후, 10 ng/mL recombinant TGF-β1으로 48 h 동안 자극하였습니다.
처리군은 대조군, β-sitosterol (10 µM), TGF-β1, TGF-β1 + β-sitosterol (5 µM), TGF-β1 + β-sitosterol (10 µM)로 구성되었습니다. 처리 기간이 종료된 후, Col1a1 및 Acta2의 정량적 실시간 PCR 분석과 alpha-smooth muscle actin (α-SMA)의 웨스턴 블롯 분석을 위해 세포를 회수하였습니다.
정량적 실시간 PCR
제조사의 프로토콜에 따라 페놀-구아니디늄 기반의 RNA 추출 시약을 사용하여 처리된 세포로부터 총 RNA를 분리하였습니다. 분광광도계를 사용하여 RNA 농도와 순도를 측정하였습니다. A260/A280 비율이 1.8–2.0인 샘플만을 역전사 과정에 사용하였습니다. 각 샘플당 1 µg의 총 RNA를 최종 반응 부피 20 µL에서 상보적 DNA로 역전사하였습니다. 생성된 상보적 DNA는 정량 PCR 전 nuclease-free water로 5배 희석하였습니다. 정량 PCR은 10 µL의 2× SYBR Green master mix, 10 µM의 정방향 및 역방향 프라이머 각 0.4 µL, 2 µL의 희석된 상보적 DNA, 7.2 µL의 nuclease-free water를 포함하여 총 부피 20 µL로 수행하였습니다. 증폭 조건은 95 °C에서 30 s 동안 초기 변성 단계를 거친 후, 95 °C에서 5 s 동안 변성 및 60 °C에서 30 s 동안 어닐링-신장 단계를 40회 반복하였습니다. 이어서 증폭 특이성을 검증하기 위해 65 °C에서 95 °C까지 멜팅 커브 분석을 수행하였습니다.
측정된 유전자는 Tnf, Il6, Ptgs2, Col1a1, Acta2 및 Gapdh였습니다. Gapdh는 내부 참조 유전자로 사용되었습니다. 상대적 유전자 발현은 Control 그룹을 보정자로 하여 2−ΔΔCt 방법을 통해 결정되었습니다. 프라이머 서열은 부록 표 1에 제공되어 있습니다. 각 샘플은 기술적 반복으로 3회 분석되었으며, 6회의 독립적인 생물학적 실험이 수행되었습니다. 기술적 반복에서 얻은 값은 통계 분석 전 평균을 내어 사용하였습니다.
효소결합면역흡착측정법을 이용한 PGE2 측정
LPS 자극 24시간 후에 배양 상청액을 수집하고, 4 °C에서 1,000 × g로 10분간 원심분리하여 세포 잔해를 제거하였다. PGE2 농도는 제조사의 지침에 따라 시판되는 효소 결합 면역 흡착 분석(ELISA) 키트를 사용하여 측정하였다.
표준 물질과 시료를 분석 플레이트에 두 번씩 분주하였습니다. 항체 결합 및 발색 단계를 마친 후, 마이크로플레이트 리더를 사용하여 450 nm에서 흡광도를 측정하였습니다. PGE2 농도는 4-매개변수 로지스틱 표준 곡선을 통해 결정하였으며 pg/mL로 표기하였습니다. 6회의 독립적인 세포 실험에서 얻은 상층액을 분석하였습니다. 통계 분석 전, 각 생물학적 시료에 대한 중복 측정값의 평균을 산출하였습니다.
웨스턴 블로팅
처리된 세포를 프로테아제 억제제 혼합물이 첨가된 radioimmunoprecipitation assay 버퍼로 용해하였다. 용해물을 얼음 위에서 30분 동안 배양한 후 4 °C에서 12,000 × g로 15분 동안 원심분리하였다. 상층액의 단백질 농도는 bicinchoninic acid 단백질 분석법을 사용하여 측정하였다. 동일한 양의 단백질(레인당 30 µg)을 로딩 버퍼와 혼합하고 95 °C에서 5분 동안 변성시켰다. LPS 실험의 단백질은 10% sodium dodecyl sulfate-polyacrylamide 겔에서 분리하였고, TGF-β1 실험의 단백질은 12% 겔에서 분리하였다. 분리된 단백질은 이후 polyvinylidene fluoride 막으로 전이하였다.
멤브레인은 0.1% Tween 20이 포함된 Tris-buffered saline 내의 5% 무지방 우유로 상온에서 1시간 동안 블로킹한 후, COX-2 (1:1000), α-SMA (1:1000) 및 GAPDH (1:5000)에 대한 1차 항체와 함께 4 °C에서 하룻밤 동안 인큐베이션하였다. COX-2는 LPS 실험 시료에서 분석하였고, α-SMA는 TGF-β1 실험 시료에서 분석하였다. 세척 후, 멤브레인을 horseradish peroxidase-conjugated 2차 항체 (1:5000)와 함께 상온에서 1시간 동안 인큐베이션하였다. 단백질 밴드는 강화 화학발광 기질을 사용하여 시각화하고 화학발광 이미징 시스템으로 캡처하였다. 노출 시간은 COX-2의 경우 약 10 s, α-SMA의 경우 10 s, GAPDH의 경우 2 s였다.
ImageJ를 사용하여 밴드 강도를 정량화하였습니다. COX-2 및 α-SMA 신호는 이에 대응하는 GAPDH 신호를 기준으로 표준화하였습니다. Western blotting은 6회의 독립적인 세포 배양 및 처리 실험에서 얻은 단백질 샘플을 사용하여 수행되었습니다.
통계 분석
통계 분석은 GraphPad Prism을 사용하여 수행되었습니다. 데이터는 평균 ± 표준 편차로 표시되었습니다. 각 정량 분석을 위해 6회의 독립적인 세포 배양 및 처리 실험이 수행되었으며, 각 독립 실험은 하나의 생물학적 반복구(biological replicate)를 나타냅니다. 동일한 생물학적 실험에서 얻은 기술적 반복구(technical replicate) 측정값은 통계 분석 전에 평균을 내었으며, 이를 독립적인 관측치로 간주하지 않았습니다.
세포 생존능 분석을 위해, 각 생물학적 실험은 조건당 6개의 기술적 웰(technical well)을 포함하였습니다. 정량적 PCR 반응은 각 생물학적 시료에 대해 3회 반복(technical triplicate)으로 수행되었으며, PGE2 측정은 2회 반복으로 수행되었습니다. 웨스턴 블롯 정량화는 독립적으로 준비된 6개의 단백질 시료를 기반으로 하였습니다. 따라서 각 정량 막대 그래프는 6개의 개별 생물학적 반복 실험 값을 포함하고 있습니다.
여러 그룹 간의 차이는 일원 분산 분석(one-way analysis of variance) 후 Tukey의 다중 비교 검정(Tukey’s multiple-comparison test)을 사용하여 분석하였습니다. 양측 P 값 < 0.05를 통계적 유의성 기준으로 간주하였다. 개별 생물학적 반복 실험값은 평균 및 표준편차와 함께 표시하였다.
결과
후보 성분 스크리닝, 타겟 검색 및 타겟 교집합 분석
후보 화합물-질병 중첩 타겟을 식별하기 위한 워크플로우는 다음과 같이 요약됩니다. 그림 1A의 7가지 후보 화합물은 *C. sinensis* 아라키돈산(arachidonic acid), 리놀레일 아세테이트(linoleyl acetate)를 포함하여, OB ≥30% 및 DL ≥0.18이라는 사전 정의된 스크리닝 기준을 충족하였다. β-시토스테롤, 페록시에르고스테롤, 세레비스테롤, 콜레스테릴 팔미테이트, 그리고 CLR (표 2이와 병행하여, GeneCards, DisGeNET, PharmGKB 및 TTD에서 1,134개의 사구체신염 관련 유전자를 추출하였으며, 4개 데이터베이스에 걸친 이들의 분포는 다음의 [그림/표]에 나타나 있다. 그림 1B화합물 관련 표적 세트와 질환 관련 유전자 세트 간의 교집합 분석을 통해 23개의 중첩 표적을 확인하였습니다(표 1, 그림 1C). 해당 화합물-중첩 표적 네트워크는 다음에서 제시되어 있다. 그림 1D대표 후보 화합물, 중첩 타겟 및 CGN 간의 관계를 나타내며, 이러한 중첩 타겟에는 다음과 같이 염증 조절, 세포 사멸 및 혈관 관련 신호 전달과 관련된 여러 유전자가 포함되었다. PTGS2, CASP3, MAPK1, PPARG, TNFRSF1A, 그리고 NOS3.
기능적 농축 및 단백질-단백질 상호작용 분석
23개 중첩 표적의 생물학적 유의성을 조사하기 위해 GO 및 KEGG 경로 풍부도 분석을 수행하였습니다. 분석 결과, 이러한 표적들은 여러 염증 및 대사 관련 경로에 유의하게 농축되어 있는 것으로 나타났습니다.
GO 분석을 통해 타겟들을 생물학적 과정(BP), 세포 구성 성분(CC), 그리고 분자 기능(MF) 범주로 분류하였다. 가장 유의미하게 농축된 BP 용어에는 리포폴리사카라이드에 대한 반응, 박테리아 유래 분자에 대한 반응, 그리고 근육 시스템 과정의 조절이 포함되었다. 세포 수준에서 타겟들은 막 래프트, 카베올라 및 혈소판 알파 과립 구획에 농축되어 있었으며, 산화환원효소 활성 및 핵 수용체 결합과 같은 MF 용어들은 산화 스트레스 및 전사 조절에서의 역할을 추가로 시사하였다(그림 2A).
KEGG 분석 결과, 당뇨병 합병증에서의 AGE-RAGE 신호 전달, TNF 신호 전달, IL-17 신호 전달 및 HIF-1 신호 전달과 같은 경로와 더불어 지질 및 죽상경화증 경로(hsa05417)가 가장 유의하게 농축된 것으로 나타났습니다(q-value < 1 × 10⁻⁶)(그림 2B). 특히, 지질 및 죽상경화증 경로에는 CASP3, MAPK1, PPARG, NOS3, TNFRSF1A를 포함하여 23개 타겟 중 10개가 관여하였습니다.
종합적으로, 이러한 농축 결과는 중첩된 표적들이 CGN과 관련된 염증, 스트레스 반응 및 내피 관련 생물학적 과정과 기능적으로 연관되어 있음을 나타냅니다.
단백질-단백질 상호작용 네트워크 분석
STRING을 사용하여 23개의 중첩 표적에 대한 단백질-단백질 상호작용(PPI) 네트워크를 구축하였으며, 그 결과 23개의 노드와 102개의 엣지를 포함하는 네트워크가 생성되었습니다(그림 3A). CytoNCA를 이용한 위상 분석을 통해 PTGS2, MAPK1, PPARG, CASP3, EGF, JUN, PECAM1, BCL2, PRKCA의 9개 고연결성 허브 표적을 식별하였습니다(그림 3B). 이러한 표적들 중에서 PTGS2가 두드러진 네트워크 중심성을 보였으므로, 이후의 분자 도킹 분석 대상으로 선정하였습니다. 이러한 결과는 화합물-질병 교차점과 잠재적으로 관련이 있는, 네트워크 우선순위 기반의 후보 조절자 서브셋을 강조합니다.
분자 도킹 및 재도킹 검증
네트워크 분석을 통해 확인된 PTGS2 관련 후보 관계의 구조적 타당성을 추가로 평가하기 위해, celecoxib가 결합된 COX-2 구조를 사용하여 분자 도킹을 수행하였다. COX-2 활성 부위에 celecoxib가 결합되어 있어 도킹 검증을 위한 실험적으로 정의된 리간드 결합 포켓을 제공하는 결정 구조 PDB ID 3LN1을 선택하였다. 먼저 공동 결정화된 celecoxib 리간드를 추출하여 동일한 결합 포켓에 다시 도킹하였다. 재도킹된 celecoxib 포즈는 결정학적 포즈를 밀접하게 재현하였으며, 재도킹 제곱평균제곱근 편차(RMSD)는 0.876 Å, 예측 결합 친화도는 -12.3 kcal/mol이었다(그림 4A). 이 결과는 선택된 도킹 조건 하에서 해당 도킹 프로토콜이 알려진 리간드 결합 포즈를 재현할 수 있음을 나타낸다.
동일한 수용체, 그리드 박스 및 도킹 매개변수를 사용하여 β-sitosterol을 celecoxib로 정의된 COX-2 결합 부위에 도킹하였다. β-sitosterol은 -7.2 kcal/mol의 예측 결합 친화도를 나타냈다(그림 4B). 도킹된 포즈는 미리 정의된 COX-2 도킹 영역 내에 위치하였으며, 도킹된 β-sitosterol 포즈 주변의 잔기로는 ASN567, ASP333, GLN178, GLN336, GLY340, HIS337, HIS80, PRO500, THR79 및 TYR341이 포함되었다.
Linoleyl acetate는 후보 성분 목록에 유지되었고 네트워크 분석에서 PTGS2와 연결되었으므로 이차 계산 후보군으로 함께 평가되었습니다. 동일한 도킹 조건에서 linoleyl acetate는 -7.5 kcal/mol의 예측 결합 친화도를 보였으며, 이는 β-sitosterol보다 약간 더 유리한 수치였습니다(그림 4C). 예측된 포즈는 도킹 영역 내에서 기준 리간드인 celecoxib와 가까운 위치에 배치되었습니다. linoleyl acetate 주변의 잔기에는 ALA502, ALA513, ARG106, ARG499, GLN178, GLY512, HIS75, ILE503, LEU338, LEU345, LEU517, MET508, PHE504, SER339, SER516, TRP373, TYR371, VAL102, VAL335 및 VAL509가 포함되었습니다.
세포 생존율, 염증 활성화 및 섬유화 활성화
네트워크 분석에서 PTGS2 관련 후보 물질로 확인되었고, 항염증 및 항섬유화 활성에 대한 기존 실험적 근거가 있었기 때문에 β-sitosterol을 화합물 수준의 검증 대상으로 선정하였습니다. 후속 실험에 적합한 농도 범위를 결정하기 위해 먼저 세포 생존율을 평가하였습니다. 0.5, 1, 5, 10 µM의 β-sitosterol 처리는 대조군과 비교하여 세포 생존율을 현저하게 감소시키지 않았으나, 20 µM의 β-sitosterol은 약간의 감소를 유발하였습니다. LPS 노출은 세포 생존율을 감소시켰으며, LPS 자극 하에 β-sitosterol을 병용 처리했을 때 세포 생존율이 부분적으로 개선되었고, 특히 10 µM에서 가장 뚜렷한 효과가 관찰되었습니다(그림 5A). 이러한 결과를 바탕으로, 이후의 LPS 유도 염증 활성화 실험에는 1, 5, 10 µM의 β-sitosterol을 사용하였습니다.
LPS 자극은 HBZY-1 세포에서 염증 유전자의 mRNA 발현을 현저하게 증가시켰습니다. 대조군과 비교하여, LPS 처리군은 Tnf, Il6 및 Ptgs2의 더 높은 발현 수준을 보였습니다 (그림 5B-D). β-sitosterol 처리는 농도 의존적으로 이러한 유전자들의 LPS 유도 상향 조절을 감소시켰습니다. 이러한 억제 경향은 LPS와 10 µM β-sitosterol을 함께 처리한 군에서 가장 뚜렷하게 나타났습니다. 기능적 COX-2 억제제 대조군으로 포함된 Celecoxib 또한 염증 유전자 발현을 어느 정도 감소시켰으나, 그 효과는 여러 전사 마커에서 10 µM β-sitosterol로 관찰된 것보다 덜 뚜렷했습니다 (그림 5B-D).
Ptgs2가 COX-2를 인코딩하고, PGE2가 COX-2 활성의 주요 하위 프로스타글란딘 생성물이므로, ELISA를 통해 PGE2 분비량을 측정하였다. LPS 처리는 대조군과 비교하여 배양 상층액 내 PGE2 농도를 증가시켰다. β-sitosterol은 농도 의존적인 방식으로 LPS로 유도된 PGE2 생성을 감소시켰다. Celecoxib 또한 PGE2 생성을 감소시켰으며, COX-2/PGE2 축의 기능적 억제에 대한 양성 대조군으로 사용되었다(그림 5E). 웨스턴 블롯 분석 결과, LPS가 COX-2 단백질 발현량을 증가시키는 것이 추가로 확인되었다. β-sitosterol 처리는 LPS 자극 하에서 COX-2 단백질 수준을 감소시켰으며, 고농도에서 더 강력한 감소가 관찰되었다. 반면, celecoxib은 PGE2 생성은 감소시켰으나 COX-2 단백질 발현량에 미치는 영향은 더 제한적이었다(그림 5F).
LPS 유도 염증 모델을 보완하기 위해, β-sitosterol이 메산지움 세포의 섬유화 마커 발현에 영향을 미치는지 평가하고자 TGF-β1 유도 전섬유화 활성화 모델을 사용하였다. TGF-β1은 대조군에 비해 Col1a1 및 Acta2의 mRNA 발현을 현저히 증가시켰다(그림 6A,B). β-sitosterol은 TGF-β1에 의해 유도된 두 마커의 증가를 감소시켰으며, 이러한 감소 효과는 5 µM보다 10 µM에서 더 뚜렷하게 나타났다(그림 6A,B). Western blot 분석 결과, TGF-β1 자극 후 α-SMA 단백질 발현이 상응하게 증가한 반면, β-sitosterol 처리는 TGF-β1 처리 세포에서 α-SMA 단백질 양을 감소시켰다(그림 6C).
데이터 가용성:
본 연구를 뒷받침하는 가공되지 않은 데이터와 처리된 데이터는 DOI: https://zenodo.org/records/21649482의 Zenodo에 저장되었습니다. Western blot의 전체 스캔 이미지는 보충 파일 1(Supplementary File 1)에 제공됩니다.
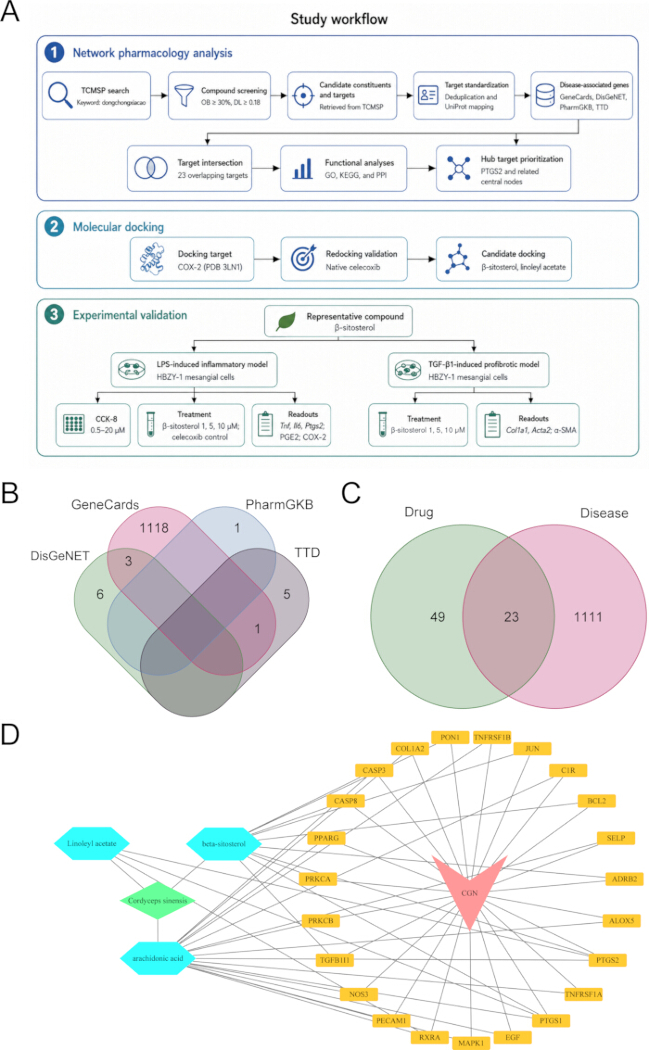
그림 1. 사구체신염에서 C. sinensis의 후보 화합물-질병 중첩 타겟의 워크플로우 및 네트워크 기반 식별. (A) 후보 화합물의 식별, 화합물 관련 타겟의 검색 및 표준화, 사구체신염 관련 유전자의 검색, 교집합 분석 및 화합물-중첩 타겟 네트워크 구축을 보여주는 도식적 워크플로우. (B) GeneCards, DisGeNET, PharmGKB 및 TTD에서 검색된 사구체신염 관련 유전자의 분포를 나타내는 벤 다이어그램. (C) TCMSP 유래 화합물 관련 타겟과 질병 관련 유전자 간의 중첩을 보여주는 벤 다이어그램으로, 23개의 중첩 타겟이 도출됨. (D) 화합물-중첩 타겟 네트워크. 녹색 다이아몬드는 C. sinensis를, 파란색 육각형은 후보 화합물을, 노란색 원은 중첩 타겟을, 분홍색 삼각형은 CGN을 나타냄. 에지는 해당 화합물-타겟 또는 질병-타겟 관계를 나타냄. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
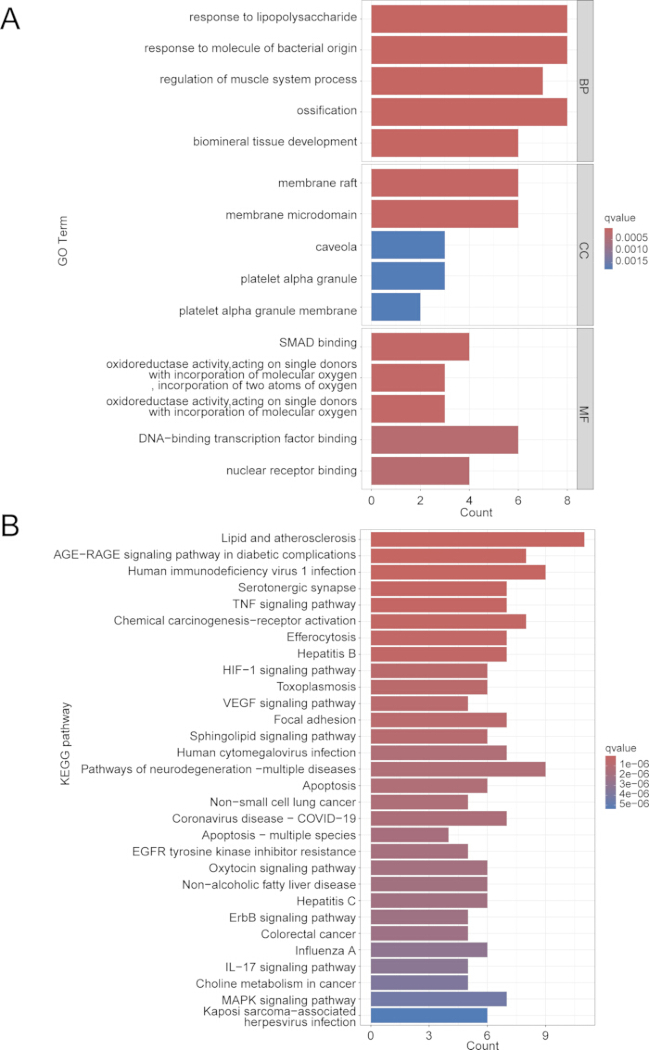
그림 2. 중첩 타겟의 기능적 풍부도 분석. (A) 23개 중첩 타겟의 GO 풍부도 분석. 주요 BP, CC 및 MF 용어들이 식별되었다. 막대의 길이는 유전자 수를 나타내며, 색상 그라데이션은 q-value를 나타낸다. (B) 23개 중첩 타겟의 KEGG 풍부도 분석. 경로들은 유전자 수와 통계적 유의성에 따라 순위가 매겨졌다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
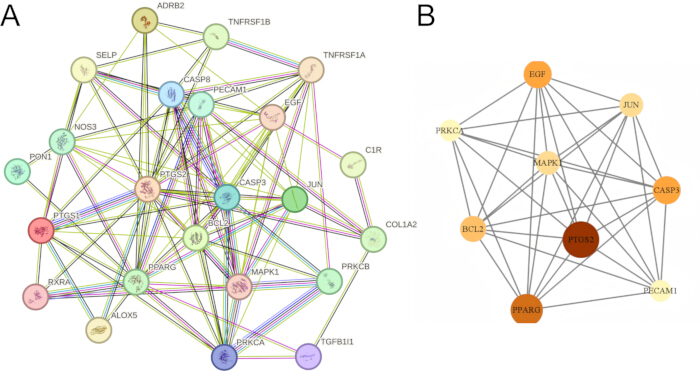
그림 3. 중첩 타겟의 단백질-단백질 상호작용 네트워크 및 허브 타겟 우선순위 선정. (A) 상호작용 점수 임계값 >0.4의 STRING을 사용하여 23개의 중첩 타겟으로부터 구축한 PPI 네트워크. (B) CytoNCA 기반 네트워크 토폴로지 분석을 통해 우선순위가 선정된 상위 9개 허브 타겟. PTGS2는 두드러진 네트워크 중심성을 보여 이후의 분자 도킹 분석 대상으로 선정되었다. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
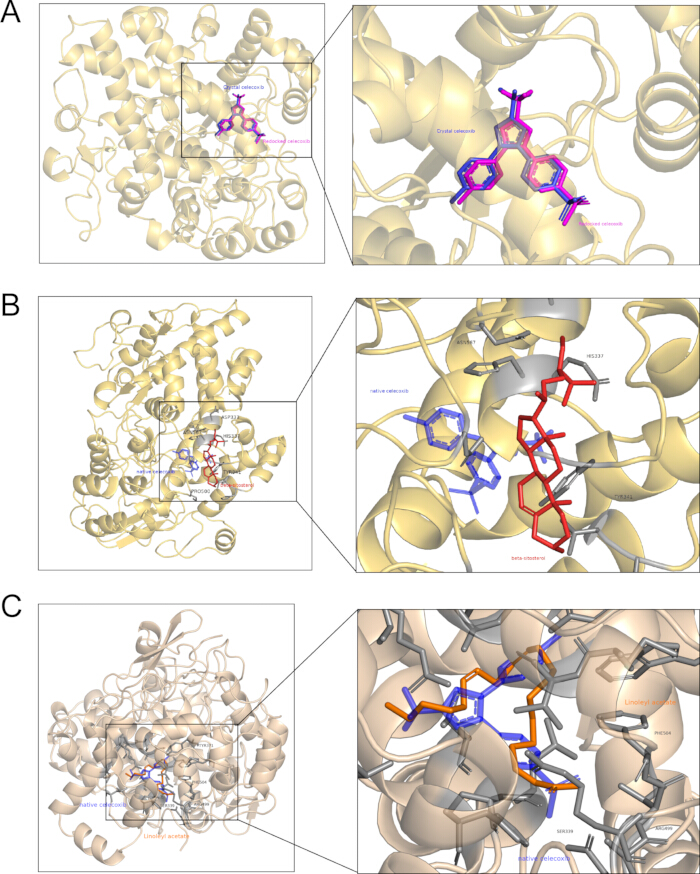
그림 4. 선정된 후보 화합물과 COX-2의 분자 도킹 및 리도킹 검증. (A) celecoxib이 결합된 마우스 COX-2 구조(PDB ID 3LN1)에서 결정학적 celecoxib 포즈와 최상위 리도킹 포즈의 중첩. 리도킹을 통해 실험적 결합 방향이 재현되었다. (B) celecoxib으로 정의된 COX-2 도킹 영역 내 β-sitosterol의 최상위 도킹 포즈. 공간적 참조를 위해 결정학적 celecoxib 포즈가 포함되었다. (C) 동일한 도킹 영역 내 linoleyl acetate의 최상위 도킹 포즈. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
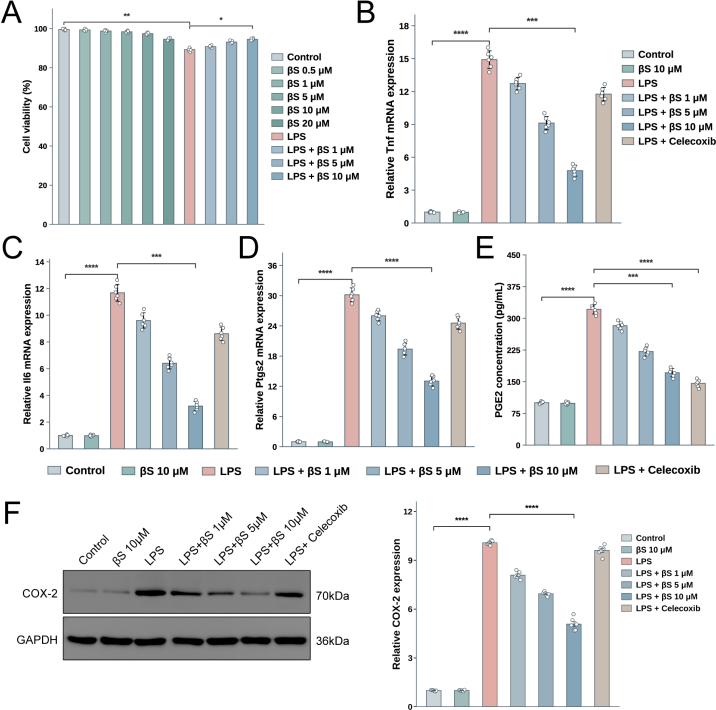
그림 5. β-Sitosterol이 HBZY-1 메산지움 세포에서 LPS로 유도된 염증 활성화 및 PGE2 생성을 감쇠시킨다. (A) Cell Counting Kit-8 분석법을 사용하여 세포 생존율을 측정하였다. 세포를 0.5, 1, 5, 10 또는 20 µM의 β-sitosterol로 24시간 동안 처리하였다. LPS 자극 군의 경우, 1 µg/mL LPS에 24시간 동안 노출시키기 전 1, 5 또는 10 µM의 β-sitosterol로 2시간 동안 전처리하였다. 세포 생존율은 대조군(Control group)에 상대적인 값으로 표시하였다. (B–D) Tnf (B), Il6 (C), 그리고 Ptgs2 (D) mRNA 발현의 정량적 실시간 PCR 분석 결과이다. 유전자 발현은 Gapdh로 정규화하여 대조군에 상대적인 값으로 표시하였다. (E) 효소결합 면역흡착 분석법(ELISA)으로 측정한 배양 상층액 내 PGE2 농도이다. Celecoxib를 COX-2 의존적 프로스타글란딘 생성 억제의 기능적 양성 대조군으로 포함하였다. (F) 표시된 처리군에서의 COX-2 및 GAPDH의 대표적인 웨스턴 블롯 이미지이다. 데이터는 6회의 독립적인 생물학적 실험의 평균 ± SD로 나타내었으며, 개별 생물학적 반복 실험 값을 표시하였다. 기술적 반복 값은 분석 전 평균을 내었다. 비교는 일원 분산 분석(one-way ANOVA) 후 Tukey의 다중 비교 검정을 사용하여 수행하였다. 유의성은 개별 패널의 대괄호로 표시하였다: *P < 0.05, **P < 0.01, ***P < 0.001, 그리고 ****P < 0.0001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
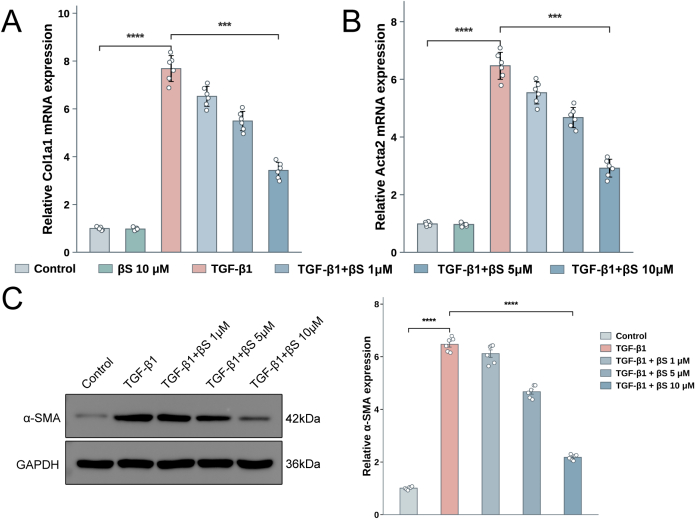
그림 6. β-Sitosterol은 HBZY-1 메산지움 세포에서 TGF-β1으로 유도된 섬유화 촉진 마커의 발현을 감소시킨다. (A–B) Col1a1 (A) 및 Acta2 (B) mRNA 발현의 정량적 실시간 PCR 분석. 유전자 발현은 Gapdh를 기준으로 표준화하였으며, 대조군(Control group)에 대한 상대적 값으로 표기하였다. (C) 표시된 처리군에서의 α-SMA 및 GAPDH의 대표적인 웨스턴 블롯 이미지. 데이터는 6회의 독립적인 생물학적 실험의 평균 ± SD로 나타내었으며, 개별 생물학적 반복 값도 함께 표시하였다. 기술적 반복 값은 분석 전 평균을 내어 사용하였다. 비교 분석은 일원 분산 분석(one-way ANOVA) 후 Tukey의 다중 비교 검정을 사용하여 수행하였다. 유의성은 개별 패널의 대괄호로 표시하였다: *P < 0.05, **P < 0.01, ***P < 0.001, 그리고 ****P < 0.0001. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
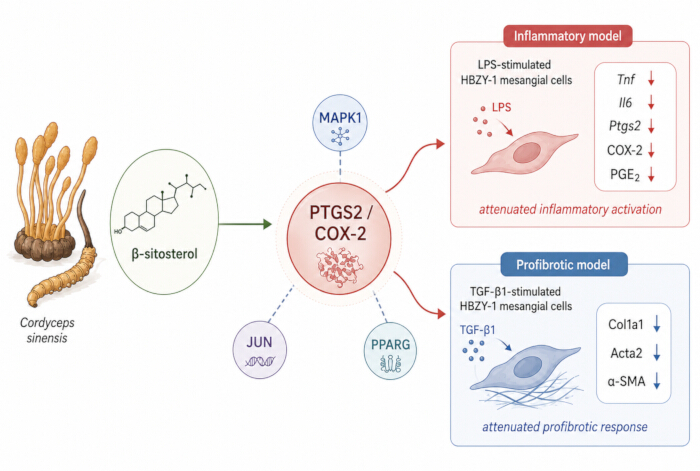
그림 7의 통합적 해석 βHBZY-1 세포에서 -sitosterol과 관련된 염증 및 섬유화 촉진 반응. 네트워크 및 도킹 분석을 통한 우선순위 선정 PTGS2/COX-2를 포함하는 더 넓은 맥락 내에서 MAPK1, JUN, 그리고 PPARG. β-Sitosterol 처리는 LPS로 유도된 다음 항목들의 감소와 연관이 있었다. Tnf, Il6, 그리고 Ptgs2 발현, COX-2 단백질 풍부도 및 PGE2 생성, 그리고 TGF-의 감소와 더불어β1-유도된 Col1a1, Acta2, 그리고 α-SMA 발현. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
| 번호 | 중첩 타겟 | 타겟과 연관된 후보 화합물 |
| 1 | PTGS1 | β-sitosterol; linoleyl acetate; arachidonic acid |
| 2 | PTGS2 | β-sitosterol; linoleyl acetate; arachidonic acid |
| 3 | CASP3 | β-sitosterol; arachidonic acid |
| 4 | CASP8 | β-sitosterol |
| 5 | BCL2 | β-sitosterol |
| 6 | JUN | β-sitosterol |
| 7 | PON1 | β-sitosterol |
| 8 | PRKCA | β-sitosterol |
| 9 | TGFB1I1 | β-sitosterol |
| 10 | ADRB2 | β-sitosterol |
| 11 | RXRA | linoleyl acetate; arachidonic acid |
| 12 | TNFRSF1A | arachidonic acid |
| 13 | TNFRSF1B | arachidonic acid |
| 14 | ALOX5 | arachidonic acid |
| 15 | SELP | arachidonic acid |
| 16 | C1R | arachidonic acid |
| 17 | COL1A2 | arachidonic acid |
| 18 | PPARG | arachidonic acid |
| 19 | PRKCB | arachidonic acid |
| 20 | NOS3 | arachidonic acid |
| 21 | PECAM1 | arachidonic acid |
| 22 | MAPK1 | arachidonic acid |
| 23 | EGF | arachidonic acid |
표 1: TCMSP 유래 화합물 관련 표적과 사구체신염 관련 유전자 간의 중첩 표적.TCMSP에서 화합물-표적 기록을 검색하여 수동으로 중복을 제거하였으며, UniProt을 사용하여 공식 인간 유전자 기호로 표준화하였습니다.
| 분자 명칭 | 분자량 | AlogP | OB (%) | Caco-2 | 혈뇌장벽 | 심층 학습 | FASA | HL |
| 아라키돈산 | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| 리놀레일 아세테이트 | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| β-시토스테롤 | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| 페록시에르고스테롤 | 428.72 | 6.73 | 44.39 | 0.86 | 0.43 | 0.82 | 0.24 | 4.06 |
| 세레비스테롤 | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| 콜레스테릴 팔미테이트 | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| 콜레스테롤 (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
표 2: 경구 생체이용률 및 약물 유사성 스크리닝 기준을 사용하여 TCMSP에서 검색한 C. sinensis의 후보 성분. 경구 생체이용률 30% 이상 및 약물 유사성 0.18 이상인 화합물을 유지하였다. MW, 분자량; ALogP, 예측 옥탄올-물 분배 계수; OB, 경구 생체이용률; Caco-2, 예측 Caco-2 투과성; BBB, 혈뇌 장벽 투과성; DL, 약물 유사성; FASA, 분율 음전하 접근 가능 표면적; HL, 반감기.
부록 표 1. HBZY-1 쥐 사구체 메산지움 세포의 정량적 실시간 PCR에 사용된 프라이머 서열. 모든 서열은 5′에서 3′ 방향으로 표시되었다.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 1. Western blot 전체 스캔 이미지.이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
본 연구에서는 C. sinensis의 후보 성분으로부터 도출된 PTGS2 관련 가설을 검증하기 위해 네트워크 약리학, 참조 리간드 검증 분자 도킹 및 화합물 수준의 실험을 통합적으로 수행하였습니다. 사전 정의된 TCMSP 스크리닝 기준을 충족하는 7가지 성분이 확인되었으며, 이 중 23개의 타겟이 사구체신염 관련 유전자 세트와 중첩되었습니다. 단백질 상호작용 분석을 통해 9개의 핵심 타겟을 우선순위화하였고, 그중 PTGS2를 도킹 및 실험적 평가 대상으로 선정하였습니다. 세레콕시브(celecoxib)의 재도킹 결과 결정학적 포즈가 재현되었으며, β-시토스테롤(β-sitosterol)과 리놀레일 아세테이트(linoleyl acetate)는 COX-2 도킹 영역과 중간 정도의 예측 적합성을 보였습니다. HBZY-1 메산지움 세포에서 β-시토스테롤은 LPS로 유도된 염증 유전자 발현, COX-2 발현량 및 PGE2 생성을 감소시켰으며, TGF-β1로 유도된 섬유화 촉진 마커의 발현을 억제하였습니다. 이러한 결과는 계산적 우선순위 지정과 세포 표현형 간의 연관성을 입증하며, 확정적인 치료 메커니즘보다는 잠재적인 조절 관계를 뒷받침합니다.
농축 분석 결과, 중첩되는 타겟들이 염증 자극, 세포 스트레스, 지질 조절, 혈관 기능 및 조직 리모델링과 관련된 생물학적 과정 내에 위치하는 것으로 나타났습니다. 리포폴리사카라이드 및 세균 생성물에 대한 반응의 농축은 실험적 검증에 사용된 염증 모델과 일치했습니다. TNF, IL-17, AGE-RAGE 및 HIF-1 관련 경로 또한 사구체 염증 및 부적응성 리모델링에 대한 타당한 기능적 맥락을 제공했습니다6,17,18,19. 그럼에도 불구하고, 경로 농축은 주석이 달린 유전자들의 통계적 집중도를 반영하는 것이며, β-sitosterol에 의한 경로의 활성화 또는 억제를 입증하는 것은 아닙니다12. 따라서 두드러진 지질 및 죽상동맥경화증 주석은 죽상동맥경화증이 CGN의 주요 질환 기전이라는 증거라기보다, 공유된 염증성, 세포사멸성 및 혈관 생물학적 특성으로 해석되어야 합니다. 마찬가지로, 후보 물질의 우선순위를 정하기 위해 TCMSP 기반의 경구 생체이용률, 약물 유사성 및 타겟 기록이 사용되었습니다.
PTGS2는 화합물-질병 교차점에 존재하고, 높은 네트워크 중심성을 나타내며, Ptgs2 전사, COX-2 단백질 풍부도 및 PGE2 생성의 변화와 실험적으로 연결되었기 때문에 관련 노드로 부각되었습니다. 이러한 계산 및 세포 수준 전반의 일치는 PTGS2-관련 반응을 조사하는 근거를 강화합니다. 그러나 이것이 PTGS2가 신장에서 일관되게 병원성을 가진다는 것을 의미하지는 않습니다. COX 유래 프로스타노이드는 신혈류, 염분 조절 및 적응적 항상성에 관여하며, 세포 유형, 수용체 분포, 질병 단계 및 국소 농도에 따라 보호 또는 유해 효과를 나타낼 수 있습니다20,21. 실험적 신염에서 celecoxib는 PGE2 관련 산출물을 감소시킨 반면, PGE2 자체는 메산지움 세포의 프로스타글란딘 수용체 발현에 영향을 미쳤습니다22. 이러한 관찰 결과는 COX-2 및 PGE2의 생물학적 결과가 단순한 선형 염증 촉진 경로 그 이상임을 보여줍니다20,23. celecoxib와의 비교는 표적 발현과 효소 기능을 구분하는 데 도움이 됩니다. Celecoxib는 기능적 COX-2 억제제로서의 역할과 일치하게 PGE2의 가장 뚜렷한 감소를 유도했지만, Ptgs2 발현 및 COX-2 단백질 풍부도에는 더 제한적인 영향을 미쳤습니다22. β-Sitosterol은 Tnf, Il6, Ptgs2, COX-2 및 PGE2의 감소를 포함하는 더 광범위한 패턴을 보였습니다. 이러한 차이가 더 우수한 COX-2 억제 효능을 나타내는 것은 아닙니다. 오히려 이는 celecoxib가 주로 촉매 활성 억제를 통해 프로스타글란딘 합성을 제한하는 반면, β-sitosterol은 PTGS2가 유도되는 염증 상태 자체를 변화시킬 수 있음을 시사합니다. β-sitosterol이 COX-2와 기능적으로 상호작용하는지 확인하기 위해서는 직접적인 효소 분석, 표적 결합 연구 및 PTGS2 섭동 연구가 필요할 것입니다.
네트워크 분석 결과는 또한 다음과 같은 가능성을 시사합니다. PTGS2 고립된 분자 노드로 해석해서는 안 됩니다. MAPK1, JUN, 및 PPARG 단백질 상호작용 네트워크에서 공동 우선순위로 지정되어, 프로스타노이드 합성을 더 광범위한 신호 전달 및 전사 맥락 내에 배치하였습니다. 신장 메산지움 세포에서 sphingosine 1-phosphate는 S1P 수용체 2 의존적 p42/p44 MAPK 신호 전달을 통해 COX-2 발현과 PGE2 형성을 증가시켰으며, 이는 해당 세포 유형에서 MAPK 활성이 COX-2/PGE2 반응의 상위 단계에 위치할 수 있다는 직접적인 증거를 제공합니다.24때문에 JUN AP-1 전사 인자 복합체의 주요 구성 요소인 AP-1은 MAPK 활성화와 그 사이의 인터페이스를 제공할 수 있으며 PTGS2 전사. 이러한 가능성과 일치하게, 15-deoxy-Δ12,14-프로스타글란딘 J2는 IL-1을 억제했다β배양된 메산지움 세포에서 AP-1 활성과 함께 유도된 COX-2 발현25비신장 세포 모델에서는, β-sitosterol은 ERK 및 p38 활성화를 감소시켰으며, NF-κLPS 노출 후 B 신호 전달, COX-2 발현 및 염증성 사이토카인 생성14,15이러한 관찰 결과는 ~의 협응적 감소에 대한 타당한 맥락을 제공합니다. Tnf, Il6, Ptgs2, COX-2 및 PGE2가 본 연구에서 관찰되었다. 하지만 인용된 β-시토스테롤 연구는 신장 메산지움 세포보다는 미세아교세포 또는 혈관 내피세포를 대상으로 수행되었으며, MAPK1 인산화 및 JUN 활성은 여기서 측정되지 않았습니다. 따라서 본 결과는 ~을 입증하지 않습니다. MAPK1-의존성 또는 JUN~에 의존적인 기전의 PTGS2 ~에 의한 조절 β-시토스테롤. PPARG ~와 교차할 수 있습니다 PTGS2단순한 선형 하위 작동자가 아니라, 지질 민감성 전사 조절 및 항섬유화 중간세포 표현형의 조절을 통한 중심 네트워크로서 PTGS2사구체 메산지움 세포에서, 천연 및 합성 PPARγ 리간드가 TGF-를 억제하였습니다.β1-유도 피브로넥틴 발현을 보여주었으며, 별도의 연구에서는 PPARγ 효능제가 TGF-를 감소시켰다β-로 유도된 메산지움 세포 활성화, α-PKA 및 CREB 신호 전달의 감쇠를 통한 α-SMA 발현 및 콜라겐 IV 축적26,27당뇨병 쥐 및 고농도 포도당으로 자극된 사구체 메산지움 세포를 대상으로 한 보다 최근의 연구에서는 NF-κB/COX-2 및 PPARγ신장 염증 및 섬유화와 관련된 평행 조절 축 내의 UCP2는 직접적인 관계를 입증하지 않으면서도 잠재적인 기능적 수렴을 뒷받침한다. PTGS2-PPARG 커플링28이러한 결과는 ~의 감소에 대한 생물학적으로 타당한 맥락을 제공합니다. Col1a1, Acta2, 그리고 α본 TGF- 유도 실험에서 관찰된 SMA-β1 모델. 하지만, PPARG 발현, 전사 활성 및 리간드 결합은 평가되지 않았습니다. 따라서 현재의 데이터로는 관찰된 섬유화 촉진 반응의 원인을 ~로 돌릴 수 없습니다. PPARG 활성화 또는 순차적 정의 MAPK1-PTGS2-PPARG 신호 전달 경로. 중요한 점은, MAPK1 및 PPARG 통합 화합물-질병 네트워크 수준에서 우선순위가 지정되었으며, 이를 직접적인 것으로 해석해서는 안 됩니다. β현재 분석을 기반으로 한 -sitosterol 표적들.
도킹 분석은 동일한 증거 범위 내에서 해석되어야 합니다. 0.876 Å의 redocking RMSD는 선택된 도킹 프로토콜이 3LN1 구조 내 celecoxib의 알려진 배향을 재현할 수 있음을 나타냈습니다. celecoxib에 비해 β-sitosterol과 linoleyl acetate의 예측 친화도가 상당히 낮게 나타난 것은 미리 정의된 영역 내의 공간적 수용 가능성은 뒷받침하지만, 동등한 결합 강도나 약리학적 작용을 의미하는 것은 아닙니다29,30. linoleyl acetate와 β-sitosterol 사이의 0.3 kcal/mol 차이는 단독으로 생물학적 순위를 결정하기에는 너무 작습니다. β-sitosterol은 네트워크 연관성과 더불어 염증 및 섬유화와 관련된 실험 문헌이 더 광범위했기 때문에 후속 테스트 대상으로 선택되었습니다14,15,16. 이전 연구에서는 LPS에 노출된 미세아교세포 및 혈관내피세포에서 TNF-α, IL-6 및 COX-2의 감소와 함께 MAPK 및 NF-κB 신호 전달의 변화가 보고되었습니다14,15. Arachidonic acid는 내인성 COX 기질이므로 다른 해석이 필요합니다21. TCMSP 유래 네트워크에 arachidonic acid가 존재한다는 것이 항염증 억제 작용을 나타내는 것은 아니며, 이는 데이터베이스 기반의 화합물-표적 관계가 방향성을 정의하지 않음을 보여줍니다. HBZY-1 세포에서 관찰된 염증 마커의 농도 관련 감소는 이러한 이전의 세포 연구 결과와 일치하며, 증거를 사구체 메산지움 맥락으로 확장한 것입니다14,15. TGF-β1 모델은 질병 과정의 별개 측면을 다루었습니다31. β-sitosterol은 TGF-β1 자극 후 Col1a1 및 Acta2 전사를 감소시켰으며 α-SMA 양을 줄였습니다. 인간 폐포 상피 세포를 대상으로 한 이전 연구에서도 β-sitosterol이 TGF-β1으로 유도된 콜라겐, 피브로넥틴 및 α-SMA 발현을 감소시키는 것이 유사하게 발견되었으나, 해당 연구는 다른 조직과 세포 과정과 관련이 있었습니다16. 따라서 본 연구 결과는 메산지움 세포의 전섬유화 표현형에 대한 활성을 뒷받침하지만, 특정 TGF-β 수용체 또는 SMAD 의존적 메커니즘의 억제를 확립하는 것은 아닙니다31.
해석의 범위는 몇 가지 제한 사항으로 정의됩니다. 질환 유전자 세트는 사구체신염이라는 광범위한 용어를 사용하여 생성되었으며, 특정 임상적 또는 조직학적 CGN 하위 유형에 국한되지 않습니다. 계산 분석에는 인간 주석이 사용되었고, 도킹에는 마우스 COX-2 구조가 사용되었으며, 실험은 쥐 HBZY-1 세포에서 수행되었습니다. 오솔로그 관계가 비교를 뒷받침하지만, 조절 및 리간드 인식에서의 종 간 차이가 존재할 가능성이 있습니다. 단일 불멸화 메산지움 세포주로는 메산지움 세포, 족세포, 내피세포, 침윤된 면역 세포 및 세뇨관 간질 구획 간의 상호작용을 대표할 수 없습니다. 또한 본 연구에서는 직접 결합, COX-2 효소 활성, PTGS2 의존성, 일차 인간 신장 세포, in vivo 효능, 약동학 또는 신장 노출을 평가하지 않았습니다. 마지막으로, 정의된 β-sitosterol 제제를 테스트함으로써 예측된 성분과 특성이 정의되지 않은 추출물 사이의 이전 불일치를 해결했으나, 이것이 β-sitosterol이 C. sinensis 전체의 효과를 설명한다거나 다른 성분들이 비활성임을 입증하는 것은 아닙니다.
종합적으로, 네트워크 분석, 도킹 및 세포 기반 연구 결과는 β-sitosterol이 HBZY-1 세포에서 염증 및 섬유화 활성 감소와 관련된 대표적인 후보 물질임을 뒷받침합니다. 이러한 결과는 PTGS2/COX-2/PGE2 관련 반응의 조절과 일치하지만, 직접적인 COX-2 결합, PTGS2 의존적 인과 관계 또는 CGN에서의 치료 효능을 확립하는 것은 아닙니다. 추가적인 타겟 결합, 유전적 섭동, 일차 세포 및 in vivo 연구가 필요합니다(그림 7).
공개 사항
저자들은 이해관계의 충돌이 없음을 선언합니다. 언어 교정 및 도식적 그림의 예비 설계를 돕기 위해 인공지능 기반 도구(ChatGPT, OpenAI)가 사용되었습니다. 생성형 인공지능은 그림 1A와 7의 예비 그래픽 초안 작성을 돕는 데 사용되었으며, 이후 보고된 방법 및 결과와의 일관성을 보장하기 위해 저자들에 의해 검토 및 수정되었습니다. AI 지원을 통해 생성된 모든 결과물은 저자들에 의해 비판적으로 평가되고 승인되었습니다. 저자들은 최종 그림 내용을 확인하였으며 원고의 무결성과 정확성에 대해 모든 책임을 집니다.
감사의 글
본 연구는 중의-서의 통합 신병증 특성화 전문분야(ZYTSZK2-3) 및 만성질환 관리 관점에서의 만성 신장질환에 대한 중의약 개입 전략 연구(202240169)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 절대 에탄올 | Sigma-Aldrich/Merck | E7023 | 200 proof, 비변성 분자생물학 등급 에탄올; ~용 용매 β-시토스테롤 스톡 용액. |
| AutoDock Vina | 스크립스 연구소 | 버전 1.1.2 | 분자 도킹 시뮬레이션 |
| 생물안전작업대 | Thermo Fisher Scientific | 1300 시리즈 A2 | 무균 세포 배양 작업 |
| 셀레콕시브 | MedChemExpress | HY-14398 | 양성 대조군으로 사용되는 선택적 COX-2 억제제; DMSO 내 10 mM 스톡 용액. |
| 세포 계수 키트-8 | Dojindo Molecular Technologies, Inc. | CK04 | 세포 생존율 측정을 위한 WST-8 비색 분석; 450 nm에서 흡광도 측정. |
| 화학발광 이미징 시스템 | Bio-Rad Laboratories | ChemiDoc MP | 웨스턴 블롯 이미지 획득 |
| clusterProfiler R 패키지 | Bioconductor | 버전 4.10.0 | GO 및 KEGG 농축 분석 |
| 일산화탄소2 세포 배양 배양기 | Thermo Fisher Scientific | Forma Series II 3111 | 다음 조건에서 세포 배양 배양: 37 °C 및 5% CO₂2 |
| COX-2 (D5H5) 토끼 단일클론 항체 | Cell Signaling Technology | 12282 | 인간, 생쥐 및 쥐 COX-2에 대해 웨스턴 블롯 검증 완료; 1:1,000 비율로 사용. |
| CytoNCA 플러그인 | Cytoscape 앱 스토어 | 버전 2.1.6 | 허브 표적 위상 분석 |
| Cytoscape 소프트웨어 | Cytoscape 컨소시엄 | 버전 3.8.0 | 네트워크 시각화 및 분석 |
| 디메틸설폭사이드 | Sigma-Aldrich/Merck | D2650 | 멸균 여과된 바이오시약, ≥99.7%; celecoxib 스톡 용액용 용매. |
| DisGeNET 데이터베이스 | 통합 생의학 정보학 그룹 | 해당 사항 없음 | 사구체신염의 질환-유전자 검색 |
| Dulbecco's Modified Eagle Medium (DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | HBZY-1 세포 배양을 위한 기초 배지 |
| 강화 화학발광 기질 | Beyotime Biotechnology | P0018S | 웨스턴 블롯 밴드 시각화 |
| 소태아혈청 | Gibco/Thermo Fisher Scientific | 10099-141C | 세포 배양 혈청 보충제 |
| GAPDH (D16H11) 토끼 단클론 항체 | Cell Signaling Technology | 5174 | 웨스턴 블롯 로딩 컨트롤; 인간, 생쥐 및 쥐의 GAPDH와 반응함; 자체 최적화 후 1:5,000 비율로 사용함. |
| GeneCards 데이터베이스 | 와이즈만 과학 연구소 | 해당 사항 없음 | 사구체신염 관련 유전자 추출 |
| GraphPad Prism | GraphPad 소프트웨어 | 버전 9.0.0.121 | 인비트로(in vitro) 실험 데이터의 통계 분석 |
| HRP-접합 염소 항-토끼 IgG | Proteintech 그룹 | SA00001-2 | 토끼 1차 항체용 2차 항체 |
| ImageJ 소프트웨어 | 미국 국립보건원 | 버전 1.54 | 웨스턴 블롯 밀도 분석 |
| 도립 위상차 현미경 | Olympus | CKX53 | 세포 형태 관찰 |
| org.Hs.eg.db R 패키지 | Bioconductor | 버전 3.18.0 | 농축 분석을 위한 인간 유전자 주석 처리 |
| 페니실린-스트렙토마이신 용액 | Gibco/Thermo Fisher Scientific | 15140122 | 세포 배양용 항생제 보충제 |
| 프로스타글란딘 E2 파라미터 분석 키트 | R&Bio-Techne 브랜드인 D Systems | KGE004B | 세포 배양 상청액을 위한 다종 경쟁적 ELISA; 분석 범위 39–2,500 pg/mL; 450 nm에서 비색 검출. |
| PharmGKB 데이터베이스 | 약물유전체학 지식베이스 | 해당 없음 | 질환 관련 표적 검색 |
| PubChem 데이터베이스 | 국립생물공학정보센터 | 해당 없음 | 리간드 구조의 검색 |
| PVDF 막 | Millipore/Merck | IPVH00010 | 웨스턴 블로팅을 위한 단백질 전이 막 |
| PyMOL 분자 그래픽 시스템 | 슈뢰딩거ödinger, LLC | 버전 2.6.2 | 도킹 포즈 시각화 |
| R 소프트웨어 | R 통계 계산 재단 | 버전 4.3.2 | 표적 교집합 및 풍부성 분석 |
| 쥐 사구체 메산지움 세포주 (HBZY-1) | Procell Life Science & Technology 주식회사 | CL-0117 | 인비트로 메산지움 세포 검증 모델 |
| RCSB 단백질 구조 은행 | 구조 생물정보학 연구 협력체 | PDB ID: 3LN1 | PTGS2/COX2 결정 구조의 검색 |
| 재조합 인간 TGF-β1 단백질 | Thermo Fisher Scientific 브랜드인 PeproTech | 100-21-10UG | HEK293 유래 재조합 인간 TGF-β1; 10 ng/mL 농도의 섬유화 촉진 자극. |
| SDS-PAGE 전기영동 시스템 | Bio-Rad Laboratories | Mini-PROTEAN Tetra | SDS-PAGE를 이용한 단백질 분리 |
| STRING 데이터베이스 | ELIXIR/STRING 컨소시엄 | 버전 12.0 | 단백질-단백질 상호작용 네트워크 구축 |
| TCMSP 데이터베이스 | 전통 중의학 시스템 약리학 데이터베이스 | 해당 없음 | 동충하초 후보 화합물 스크리닝 |
| 치료 표적 데이터베이스 | 혁신 신약 연구 및 생물정보학 그룹 | 해당 없음 | 치료 표적 검색 |
| α-SMA 1차 항체 | Proteintech Group | 14395-1-AP | ~의 검출 α-SMA 단백질 발현 |
| β-시토스테롤 (순도 >98%) | MedChemExpress | HY-N0171A | CAS 83-46-5; 세포 처리에 사용되는 정의된 화합물; 절대 에탄올 내 10 mM 스톡 용액. |
참고문헌
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).