본 연구에서는 벌크(bulk), 단일 세포 및 공간 전사체 분석과 더불어 머신러닝 기반의 생존 모델링 및 실험적 검증을 통해, PPARG를 골육종의 노화 관련 예후 후보 유전자로 지명하였으며, TARGET-OS 데이터셋에서 PPARG의 발현 감소가 불량한 생존율 및 혈관 및 미세환경 특성과 관련이 있음을 확인하였습니다.
연구 논문
통합 벌크, 단일 세포 및 공간 전사체 분석을 통한 골육종의 노화 관련 예후 후보 유전자로서의 PPARG 발굴
* These authors contributed equally
이 논문에서
요약
초록
골육종은 전이성, 재발성 또는 치료 저항성 질환의 경우 여전히 까다로운 과제로 남아 있습니다. 본 연구는 노화 관련 예후 유전자를 식별하고 그 공간적 맥락을 규명하는 것을 목표로 했습니다. DESeq2를 사용하여 GSE99671에서 쌍체 차등 발현 분석을 수행한 후, CellAge 노화 유전자 세트와의 교집합을 분석했습니다. TARGET-OS 코호트의 전사체 데이터는 UCSC Xena에서 확보했습니다. 후보 유전자는 단변량 Cox 회귀 분석, Kaplan-Meier 분석, 시간 의존적 수신자 작동 특성(ROC) 분석, LASSO Cox 회귀 분석, 반복 LASSO 분석 및 랜덤 생존 포레스트 모델링을 사용하여 평가했으며, 임상 공변량은 조정된 Cox 모델에 통합되었습니다. 기능적 농축 분석, 면역 미세환경 분석, 단일 세포 전사체 분석, SP_BS3 공간 전사체 분석, GSE36001 발현 검증, 그리고 골육종 143B 세포 및 조골세포에서의 qRT-PCR 및 Western blot 검증을 통해 이를 규명했습니다. GSE99671에서 조정된 P < 0.05 기준 2,248개의 유전자가 차등 발현되었으며, 866개의 CellAge 유전자와의 교집합을 통해 105개의 노화 관련 차등 발현 유전자를 도출했습니다. TARGET-OS에서 PPARG 발현이 낮을수록 사망 위험이 더 높은 것으로 나타났습니다(단변량 HR = 0.603, 95% CI = 0.454–0.802, P = 0.000494; 조정된 HR = 0.224, 95% CI = 0.085–0.589, P = 0.00241). 임상 모델에 PPARG를 추가했을 때 C-index가 0.707에서 0.829로 증가했습니다. PPARG는 GSE99671과 GSE36001 모두에서 하향 조절되었으며, qRT-PCR 및 Western blotting을 통해 골육종 143B 세포가 조골세포보다 낮은 PPARG mRNA 및 단백질 발현을 보임을 확인했습니다. 단일 세포 분석 결과 PPARG는 혈관 내피 세포, 혈관 주위 세포, 대식세포/단핵구 및 종양 관련 기질 세포에 위치하는 것으로 나타났습니다. 공간 전사체 분석에서는 PPARG 발현과 CellAge 노화, 내피 관련 및 혈관 주위 세포 관련 점수 사이에 약하지만 유의미한 정적 상관관계가 관찰되었습니다. 이러한 결과는 PPARG가 골육종에서 불량한 생존율 및 혈관 미세환경 특성과 관련된 CellAge 유래 후보 예후 바이오마커임을 시사하며, 위험 층화 및 노화 관련 종양 미세환경과의 잠재적 관련성에 대한 연구를 뒷받침합니다. GSE36001은 외부 발현 검증으로만 사용되었으며, 독립적인 생존 검증은 수행되지 않았습니다.
서론
골육종은 어린이, 청소년 및 젊은 성인에게서 가장 흔하게 발생하는 원발성 악성 골종양입니다1. 수술을 병행한 다약제 화학요법이 국소 질환의 예후를 개선시켰으나2,3, 전이성, 재발성 또는 치료 저항성 골육종 환자의 장기 생존율은 여전히 낮은 상태입니다3,4. 최근의 연구 결과들은 산화 스트레스로 유도된 후성유전학적 리모델링이 전이 적응과 종양 진행을 촉진할 수 있음을 시사하며, 이는 공격적인 암 표현형의 기초가 되는 복잡한 분자적 가소성을 강조합니다5. 임상적으로 해석 가능하면서도 생물학적 정보를 제공하는 강력한 바이오마커는 여전히 제한적입니다. 따라서 다층적 데이터 전반에 걸쳐 골육종의 이질성과 예후 위험을 포착할 수 있는 분자적 특성을 식별하는 것이 중요합니다.
세포 노화는 텔로미어 기능 장애, DNA 손상, 산화 스트레스, 온코진 활성화 및 치료 압력에 의해 유도되는 안정적인 세포 주기 정지 프로그램입니다6. 노화는 비정상적인 증식을 억제할 수 있으나, 노화 세포는 염증성, 케모카인, 성장 인자 및 세포외 기질 리모델링 프로그램을 통해 종양 미세환경을 재구성할 수도 있습니다7,8. 골육종에서 노화 관련 유전자는 종양 세포 고유의 스트레스 상태와 비악성 미세환경 구획 모두를 반영할 수 있지만, 이들의 예후적 관련성과 공간적 조직화에 대해서는 아직 체계적으로 평가되지 않았습니다.
PPARG는 지질 대사, 염증 조절, 세포 분화 및 면역 조절에 관여하는 리간드 활성 핵 수용체인 peroxisome proliferator-activated receptor gamma를 인코딩합니다9. 암에서 PPARG의 역할은 상황에 따라 다릅니다10. 어떤 경우에는 PPARG가 분화 및 항염증 상태와 관련이 있는 반면, 다른 경우에는 적응형 종양 또는 기질 프로그램을 지원할 수 있습니다. 그러나 골육종에서의 발현 패턴, 예후 가치, 그리고 세포 및 공간적 국소화는 아직 완전히 규명되지 않았습니다.
본 연구에서는 GSE99671에서 차등 발현 유전자를 식별하고 이를 CellAge 노화 유전자 세트와 교차 분석하여 105개의 노화 관련 차등 발현 유전자를 도출하였습니다. 이후 TARGET-OS 생존 데이터, 다양한 머신러닝 및 생존 모델링 접근법, 그리고 임상적 보정 작업을 통해 PPARG를 핵심 유전자로 선정하였습니다. PPARG는 벌크 기능 및 면역 미세환경 분석, 단일 세포 전사체 분석, 공간 전사체 분석, GSE36001을 이용한 외부 발현 검증, 그리고 골육종 세포주 143B와 인간 조골세포에서의 qRT-PCR 및 Western blot 검증을 통해 추가적으로 특성화되었습니다.
프로토콜
본 연구는 분석 및 검증을 위해 공개 데이터셋과 세포주를 사용하였으며, 인간 참여자나 임상 조직 샘플을 포함하지 않았으므로 윤리 위원회의 승인이 필요하지 않았습니다.
GSE99671 및 CellAge 교집합의 차별 발현 분석
GSE99671의 raw count 데이터와 샘플 그룹화 정보는 GEO에서 확보하였다11,12. 18쌍의 골육종 및 매칭된 정상 샘플을 분석하였다. 쌍체 차별 발현 분석은 DESeq2를 사용하여 design formula ~ pair_id + condition으로 수행하였으며, 여기서 pair_id는 쌍체 개인별 효과를, condition은 종양 조직과 정상 조직의 비교를 나타낸다13. 최소 3개 이상의 샘플에서 read count가 10 이상인 유전자를 유지하였다. 차별 발현은 보정된 P < 0.05로 정의하였으며, 시각화를 위해서는 보정된 P < 0.05 및 |log2FC| ≥ 1이라는 더 엄격한 임계값을 적용하였다. 유전자 심볼을 대문자로 변환한 후, 차별 발현 유전자를 866개의 CellAge 노화 유전자와 교집합 분석하였다14. 차별 발현 분석은 R (version 4.3.2)과 DESeq2 (version 1.40.2)를 사용하여 수행하였으며, 보정된 P 값은 Benjamini-Hochberg 방법으로 산출하였다.
TARGET-OS 코호트 및 예후 모델링
TARGET-OS 전사체 및 임상 데이터는 UCSC Xena15에서 확보하였다. 105개의 노화 관련 차등 발현 유전자에 대한 발현 값을 추출하였다. 생존 시간, 생존 상태 및 후보 유전자 발현 데이터가 모두 포함된 85명의 환자를 대상으로 하였으며, 이 중 사망 사례는 27건이었다. 표준화된 유전자 발현 값은 단변량 Cox 회귀 분석16, Kaplan-Meier 생존 분석 및 시간 의존적 수신자 조작 특성(ROC) 분석17을 통해 분석하였다. 선택 안정성 및 변수 중요도를 평가하기 위해 LASSO Cox 회귀 분석18, 반복 LASSO 안정성 분석 및 랜덤 생존 포레스트 모델링을 사용하였다19. 통합 허브 점수 및 임상 통합 순위는 아래에 상세히 설명된 명시적 이진 기준을 사용하여 계산하였다. 생존 분석은 R의 survival (version 3.5-7), timeROC (version 0.4), glmnet (version 4.1-8) 및 randomForestSRC (version 3.2.2) 패키지를 사용하여 수행하였다. 105개 후보 유전자의 단변량 Cox 스크리닝에 대해 Benjamini-Hochberg 허위 발견율(FDR) 보정을 적용하였으며, FDR < 0.05인 유전자를 통계적으로 유의한 것으로 간주하였다.
모델 전처리, PPARG 그룹화 및 시간 의존적 ROC 분석
사망 사례 27건이 포함된 85명의 환자 데이터에서 분산이 0인 유전자는 제외하였으며, 누락된 후보 유전자 발현값은 중앙값으로 대체하고 각 후보 유전자를 z-점수로 표준화하였다. Kaplan-Meier 분석을 위해 발현값을 코호트 중앙값을 기준으로 이분화하였으며, 중앙값보다 엄격히 높은 값은 고발현 그룹으로, 중앙값 이하의 값은 저발현 그룹으로 할당하였다(PPARG: 고발현 n = 42, 저발현 n = 43). Log-rank 검정은 양측 검정으로 수행하였다. 시간 의존적 ROC 분석에는 timeROC를 사용하였으며, event cause = 1, 주변부 검열 역확률 가중치(marginal inverse-probability-of-censoring weighting) 적용, 평가 시점은 365, 1,095, 1,825일, 그리고 iid = FALSE로 설정하였다. 마커 값이 클수록 일관되게 더 높은 위험도를 나타내도록 하기 위해, Cox 계수가 양수인 유전자는 표준화된 발현값을 그대로 사용하였고, 계수가 음수인 보호 유전자의 경우 -1을 곱하여 처리하였다.
LASSO 및 반복 LASSO
Cox LASSO는 glmnet을 사용하여 family = "cox", alpha = 1, 사전 z-score 표준화(따라서 standardize = FALSE), 5-겹 교차 검증, type.measure = "deviance" 및 랜덤 시드 123으로 적합되었습니다. 기본 계수 솔루션으로는 lambda.min을 사용하였습니다. 안정성 분석을 위해 동일한 5-겹 교차 검증을 300회 반복하였으며, 반복 횟수 b에 대해 시드 1000 + b (b = 1,...,300)를 사용하였습니다. 각 유전자에 대해, 선택 빈도는 lambda.min에서 계수가 0이 아닌 반복 횟수의 비율로 정의하였으며, lambda.1se에서의 0이 아닌 선택 여부 또한 기록하였습니다.
랜덤 생존 포레스트
randomForestSRC(버전 3.2.2)를 사용하여 seed 123, ntree = 1,000, importance = TRUE, na.action = "na.impute"로 설정하고 105개의 표준화된 후보 유전자 전체에 대해 생존 포레스트 모델을 적합시켰다. 생존 데이터에 대해서는 패키지 기본값을 유지하였다: 로그-순위 분할(log-rank splitting), mtry = 11(105개 예측 변수의 제곱근 올림값), 최소 터미널 노드 크기 = 15, nsplit = 10개의 랜덤 분할 지점, 0.632 샘플링 비율의 비복원 추출, 그리고 안티-스플릿(anti-split) 변수 중요도를 적용하였다.
통합 허브 점수
105개의 CellAge 관련 차별 발현 후보 유전자 각각에 대해 다음 6가지 이진 기준당 1점씩 부여하였다: (1) 차별 발현/CellAge 교집합 포함 여부 (점수 산정 전 보정된 P < 0.05가 요구되었으므로 모든 후보 유전자가 이 점수를 획득함); (2) 공변량 단변량 Cox P < 0.05; (3) Kaplan-Meier log-rank P < 0.05; (4) 평균 3년 및 5년 시간 의존적 AUC ≥ 0.65; (5) lambda.min 반복-LASSO 선택 빈도가 후보군 내 70번째 백분위수 이상이며 > 0; (6) random-survival-forest 중요도가 후보군 내 70번째 백분위수 이상이며 > 0. 모든 기준은 동일한 단위 가중치를 가지며, 이에 따라 0점에서 6점 사이의 허브 점수가 부여되었다. 점수가 4점 이상인 유전자(18개 유전자)는 임상 보정 단계로 진행되었다. 단변량 Cox FDR 값 또한 보고되었으며, 다중 검정 유의성을 나타내기 위해 FDR < 0.05를 사용하였으나, 사전 지정된 점수 지표에는 명목 P < 0.05를 사용하였다.
임상 통합 순위
발현 데이터와 임상 기록을 병합한 후, 보정 분석에는 공변량 기록이 완전한 환자 40명과 사망자 13명이 포함되었습니다. 최종 점수는 초기 허브 점수에 다음 7가지 기준 각각에 대해 1점씩을 더하여 산출하였습니다: 보정 Cox P < 0.05, 보정 Cox P < 0.10, 확정적 수술 제거 후 민감도 Cox P < 0.05, 민감도 Cox P < 0.10, 평균 3년 및 5년 AUC ≥ 0.65, 임상 단독 모델 대비 임상 및 유전자 결합 모델의 우도비 검정 P < 0.10, 그리고 delta AIC < 0. 0.05와 0.10 임계값은 중첩되어 있으므로, P < 0.05인 경우 2점이 부여되어 명확하게 유의미한 보정 및 민감도 Cox 증거에 더 큰 가중치를 두었습니다. 총점 범위는 0점에서 13점이었으며, 동점일 경우 보정 Cox P 값이 더 작은 순으로, 그다음으로는 평균 3/5년 AUC가 더 큰 순으로 결정하였습니다. PPARG는 초기 점수 6점과 임상 통합 점수 7점을 모두 획득하여(13/13) 1위를 차지했습니다. C-index 개선도는 서술적으로 보고되었으며 점수에는 반영되지 않았습니다.
임상적 조정
후보 허브 유전자를 성별, 연령, 진단 시 질환 상태, 원발성 종양 부위, 특정 종양 영역 및 확정적 수술을 포함한 TARGET-OS 임상 변수와 통합하였습니다. 13명의 사망자를 포함하여 발현 및 임상 기록이 완전한 40명의 환자가 임상 조정 분석에 포함되었습니다. 임상 변수만 포함된 Cox 모델을 임상 변수와 유전자 발현이 모두 포함된 모델과 비교하였습니다. 모델의 개선 정도를 평가하기 위해 C-index, Akaike 정보 기준(AIC) 및 가능도비 검정 P 값을 사용하였습니다. 수술 변수를 제거한 후 민감도 분석을 수행하였습니다.
기능적 풍부도 및 면역 미세환경 분석
TARGET-OS 샘플을 PPARG 발현 수준에 따라 층화하였다. PPARG-high 그룹과 PPARG-low 그룹 간의 차등 발현을 이용하여 유전자 세트 풍부도 분석(GSEA)20를 위한 순위 유전자 목록을 생성하였다. 표시된 경로에는 Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway 및 Reactome: Fatty Acids가 포함되었다. 벌크 CellAge 노화 점수를 산출하였으며, Spearman 상관관계 분석을 사용하여 PPARG와 노화 유전자 또는 면역 미세환경 시그니처 간의 연관성을 평가하였다21. PPARG-high 그룹과 PPARG-low 그룹 간의 미세환경 점수 차이는 다중 검정 보정을 적용한 비모수 검정을 통해 평가하였다.
단일 세포 전사체 분석
이미 품질 관리, 차원 축소, 클러스터링 및 수동 주석 달기가 완료된 전처리 객체를 사용하여 기발표된 인간 골육종 단일 세포 전사체 데이터셋을 분석하였다22,23,24. 총 68,336개의 세포와 32,297개의 유전자가 포함되었다. 본문 해석을 위해 주석을 B 세포, CAF, 주기 세포, 내피 세포, 적혈구계 세포, 대식세포/단핵구, 악성 골육종 세포, 근원성 세포, 호중구, 파골세포 유사 세포, 혈관주위세포, T/NK 세포 및 종양 관련 기질 세포의 13가지 주요 세포 유형으로 단순화하였다. PPARG 국소화를 시각화하기 위해 차원 축소, 특성 발현, 도트 플롯 및 바이올린 플롯을 사용하였다. PPARG 양성 세포는 발현량이 0보다 큰 세포로 정의하였다. 세포 유형 간의 차이는 Benjamini-Hochberg 보정을 적용한 Kruskal-Wallis 및 Wilcoxon 순위 합 검정을 사용하여 평가하였다. 단일 세포 분석은 R의 Seurat(버전 5.0.1)을 사용하여 수행되었다.
공간 전사체 분석
SP_BS3 공간 전사체 샘플을 사용하여 공간 발현 객체를 구축하였다25,26. 품질 관리 임계값은 nFeature_Spatial ≥ 200 및 percent.mt ≤ 30으로 설정하였으며, 분석을 위해 4,572개의 spot을 남겼다. 데이터를 정규화하고, 3,000개의 고변이 유전자를 선택하였으며, 데이터 스케일링, 주성분 분석, 이웃 그래프 구축, 공간 spot 클러스터링 및 차원 축소를 수행하였다. 순환 상관관계를 방지하기 위해 유전자 세트에서 PPARG를 제거한 후 공간 CellAge 노화 점수를 계산하였다. 혈관 내피세포, pericyte, 대식세포/단핵구, 종양 관련 기질, 악성 골육종 및 파골세포 유사 시그니처를 구축하고 점수를 매겼다. PPARG 발현과 공간 점수 간의 연관성을 평가하기 위해 Spearman 상관 분석을 사용하였다. 단일 세포 데이터 세트를 참조로, 공간 데이터 세트를 쿼리로 사용하여 레이블 전이를 수행함으로써 각 spot의 예측 세포 유형 점수를 추론하였다23,24. 공간 전사체 분석은 R의 Seurat (version 5.0.1)을 사용하여 수행되었으며, 모든 공간 상관 P 값에 Benjamini-Hochberg FDR 보정을 적용하였다.
GSE36001에서의 외부 발현 검증
GEO 데이터셋 GSE36001은 독립적인 발현 검증 코호트로만 사용되었으며, 생존 결과 데이터를 사용할 수 없었으므로 예후 검증에는 사용되지 않았습니다11,27. 해당 데이터셋에는 19개의 골육종 샘플과 6개의 정상 대조군 샘플이 포함되었습니다. 프로브 식별자를 유전자 심볼로 변환하기 위해 GPL6102 플랫폼 주석이 사용되었습니다. 여러 프로브가 동일한 유전자에 매핑된 경우, 평균 발현량이 가장 높은 프로브를 유지했습니다. 종양 그룹과 정상 그룹 간의 차등 발현은 limma를 사용하여 평가되었습니다28. 분석은 R의 limma(버전 3.56.2)를 사용하여 수행되었으며, 보정된 P 값은 Benjamini-Hochberg 방법을 사용하여 계산되었습니다.
qRT-PCR 및 Western blot 검증
인간 골육종 세포주 143B와 인간 조골세포를 사용하여 실험적 검증을 수행하였다. 골육종 세포는 10% fetal bovine serum과 1% penicillin-streptomycin이 첨가된 Dulbecco's modified Eagle's medium에서 5% CO₂가 포함된 습윤 상태의 37 °C 조건으로 배양하였으며, 80%–90% confluence에 도달했을 때 0.25% trypsin-EDTA로 계대 배양하였다. 인간 조골세포는 권장 배양 조건 하에 유지하였다. 모든 세포주는 mycoplasma 오염이 없음을 확인하였다. qRT-PCR을 위해 phenol-guanidinium 기반의 RNA 추출 시약을 사용하여 총 RNA를 추출하였으며, 분광 광도법으로 RNA 농도와 순도를 평가하였다. 권장 프로토콜에 따라 역전사 시약을 사용하여 1 µg의 총 RNA를 역전사하였다. qRT-PCR은 형광 DNA 결합 염료 기반의 화학 반응을 이용하여 다음과 같은 사이클 조건으로 수행하였다: 95 °C에서 30 s 동안 초기 변성 후, 95 °C에서 5 s 및 60 °C에서 30 s 과정을 40회 반복하였으며, 증폭 특이성을 확인하기 위해 melt-curve 분석을 수행하였다. 각 반응은 기술적 3반복(technical triplicate)으로 수행되었으며, 3회의 독립적인 생물학적 실험을 실시하였다. GAPDH를 내부 대조군으로 사용하였으며, 상대적 PPARG 발현량은 2-ΔΔCt 방법29을 사용하여 계산하였다. PPARG forward primer는 5'-CGAAGACATTCCATTCACAAGAACAG-3'였으며, reverse primer는 5'-AGATGCAGGCTCCACTTTGATTG-3'였다.
PPARG 단백질 발현을 조사하기 위해 Western blotting을 수행하였다. 단백질 분해 효소 억제제가 첨가된 radioimmunoprecipitation assay 버퍼로 세포를 용해시켰으며, bicinchoninic acid 분석법을 사용하여 단백질 농도를 측정하였다. 동일한 양의 단백질(레인당 30 µg)을 10% sodium dodecyl sulfate-polyacrylamide gel electrophoresis로 분리한 후 polyvinylidene difluoride 막으로 전이시켰다. 실온에서 5% 탈지분유로 1시간 동안 블로킹한 후, PPARG (1:1,000) 및 GAPDH (1:5,000)에 대한 1차 항체와 함께 4 °C에서 하룻밤 동안 배양하였고, 이어서 horseradish peroxidase-결합 2차 항체 (1:5,000)와 함께 실온에서 1시간 동안 배양하였다. 단백질 밴드는 화학발광 검출법을 사용하여 시각화하였으며, 세 번의 독립적인 실험을 수행하였다. 밴드 강도는 이미지 분석 소프트웨어30를 사용하여 정량화하였다. 그룹 간 차이는 양측 unpaired Student's t test를 사용하여 분석하였다. 데이터는 세 번의 독립적인 실험에서 얻은 평균 ± 표준편차(SD)로 나타냈으며, P < 0.05를 통계적으로 유의한 것으로 간주하였다. 실험 데이터의 통계 분석은 통계 분석 소프트웨어(version 9.0)를 사용하여 수행하였다.
통계 분석
별도로 명시되지 않는 한, 모든 생물정보학 분석은 R(버전 4.3.2)에서 수행되었습니다. 양측 P 값 < 0.05 미만인 경우를 통계적으로 유의미한 것으로 간주하였다. 상관관계는 Spearman 서열 상관계수를 사용하여 평가하였다.ρ). 해당되는 경우, Benjamini-Hochberg FDR 방법을 사용하여 다중 검정 보정을 수행하였습니다. 실험 데이터는 평균으로 표시하였습니다. ± 표준편차(SD)로 나타내었으며, 양측 비쌍체 Student's t-검정을 통해 비교하였다. t 검사. 실험 통계 분석은 통계 분석 소프트웨어(버전 9.0)를 사용하여 수행되었다.
결과
GSE99671에서 105개의 CellAge 노화 관련 차별 발현 유전자 확인
GSE99671에는 18쌍의 조직에서 얻은 36개의 샘플이 포함되었습니다. 저발현 필터링 후 16,683개의 유전자가 유지되었습니다. 보정 P < 0.05 기준으로 2,248개의 유전자가 차별 발현되었습니다. 보정 P < 0.05 및 |log2FC| ≥ 1이라는 더 엄격한 임계값 하에서는 594개의 유전자가 유의미했으며, 여기에는 종양에서 상향 조절된 102개 유전자와 하향 조절된 492개 유전자가 포함되었습니다 (그림 1A,B). 2,248개의 차별 발현 유전자와 866개의 CellAge 유전자의 교집합을 통해 105개의 노화 관련 차별 발현 유전자를 도출하였습니다 (그림 1C). PPARG는 GSE99671에서 log2FC = -0.644, P = 0.00451, 보정 P 값 = 0.0309로 하향 조절되었습니다. 18쌍 중 13쌍에서 PPARG 발현은 종양 조직보다 정상 조직에서 더 높았으며, paired Wilcoxon P 값은 0.0294였습니다 (그림 1D).
다중 모델 예후 스크리닝을 통해 PPARG를 핵심 후보 유전자로 선정함
TARGET-OS에서 27건의 사망 사례가 포함된 85명의 환자를 분석 대상으로 하였다. 단변량 Cox 회귀 분석, Kaplan-Meier 분석, 생존 ROC 분석, LASSO, 반복 LASSO 및 랜덤 생존 포레스트(random survival forest) 모델링을 사용하여 105개의 노화 관련 차별 발현 유전자를 통합 스크리닝한 결과, 임상 보정 전 18개의 후보 허브 유전자가 도출되었다(그림 2A). 단변량 Cox 분석에서 PPARG는 전체 생존율과 연관이 있었으며(HR = 0.603, 95% CI = 0.454–0.802, P = 0.000494, FDR = 0.0447), 이는 PPARG 발현이 높을수록 사망 위험이 낮음을 나타낸다. 고발현군과 저발현군을 비교한 Kaplan-Meier 분석 결과 P = 0.00784로 나타났다(그림 2B). 1년, 3년, 5년 시점의 시간 의존적 AUC는 각각 0.603, 0.760, 0.776이었다(그림 2C). PPARG는 0.920의 반복 LASSO 선택 빈도와 0.0398의 랜덤 생존 포레스트 중요도를 보였다(그림 2D–F). PPARG는 미리 지정된 6가지 스크리닝 기준을 모두 충족하였으므로 초기 허브 점수가 6/6점으로 산출되었다.
임상적 보정을 통한 PPARG의 예후 연관성 입증
임상 공변량을 포함시킨 후에도 PPARG는 전체 생존율과 유의미한 연관성을 유지했습니다 (보정된 HR = 0.224, 95% CI = 0.085–0.589, P = 0.00241; 그림 2G). 임상 단독 모델의 C-index는 0.707, AIC는 89.921이었습니다 (보충 표 1). PPARG를 추가했을 때 C-index는 0.829로 증가하고 AIC는 78.466으로 감소했으며, 우도비 검정 결과 모델 적합도가 유의미하게 향상되었습니다 (P = 0.000244; 보충 표 2, 그림 2H,I). 근치적 수술 사례를 제외한 민감도 분석에서도 PPARG의 보호 효과 연관성이 유지되었습니다 (HR = 0.249, P = 0.00185; 보충 표 3, 그림 2J). PPARG는 임상 통합 점수에서 가장 높은 13점(초기 허브 점수 6점에 임상 통합 가산점 7점)을 기록했으며, 최종 3년 및 5년 AUC는 각각 0.770과 0.813으로 나타났습니다 (그림 2K).
PPARG 관련 기능적 및 면역 미세환경 특징
PPARG 고발현 그룹과 저발현 그룹을 비교한 GSEA 결과, Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway 및 Reactome: Fatty Acids가 나타났다(그림 3A). 벌크 TARGET-OS 데이터에서 PPARG는 전체 CellAge 노화 점수와 유의미한 상관관계를 보이지 않았으나(Spearman ρ = 0.022, P = 0.837; 그림 3B), 여러 개별 CellAge 유전자와는 상관관계를 보였다(그림 3C). 면역 미세환경 분석 결과, PPARG는 대식세포(ρ = 0.485, FDR = 2.7 × 10⁻⁵), CD8 T 세포(ρ = 0.410, FDR = 5.88 × 10⁻⁴), 파골세포 유사 시그니처(ρ = 0.383, FDR = 0.00120), 중성구(ρ = 0.376, FDR = 0.00120) 및 수지상세포(ρ = 0.370, FDR = 0.00123)와 양의 상관관계를 나타냈다. FDR 보정 후, PPARG 고발현 종양은 파골세포 유사, 대식세포, CD8 T 세포, 수지상세포, 단핵구, 중성구, NK 세포 및 혈관내피세포 시그니처가 더 높게 나타났다(보충 표 4, 그림 3D,E).
단일 세포 전사체 분석을 통해 혈관 및 미세환경 구획에서 PPARG의 위치를 확인하였다
단일 세포 데이터셋에는 68,336개의 세포와 32,297개의 유전자가 포함되었다. PPARG 발현은 세포 유형 간에 유의미한 차이를 보였다(그림 4A). 평균 발현량이 가장 높게 관찰된 세포는 내피세포(평균 발현량 = 0.540; 양성 비율 = 44.33%), 혈관주위세포(평균 발현량 = 0.439; 양성 비율 = 41.61%), 대식세포/단핵구(평균 발현량 = 0.363; 양성 비율 = 31.62%), 그리고 종양 관련 기질 세포(평균 발현량 = 0.361; 양성 비율 = 44.10%; 그림 4B–E)였다. 악성 골육종 세포의 일부 하위 집합에서 PPARG가 발현되었으나(평균 발현량 = 0.163; 양성 비율 = 16.70%), 악성 골육종 세포에서의 발현은 다른 세포들에 비해 유의미하게 높지 않았다(FDR = 0.151). 이러한 결과는 골육종에서 PPARG 발현이 악성 세포에 국한되기보다 주로 혈관, 골수 및 기질 미세환경 상태를 반영함을 시사한다(그림 4F).
공간 전사체학을 통해 PPARG와 노화 관련 공간 상태 및 혈관 니치의 연관성을 규명함
품질 관리 후, 4,572개의 SP_BS3 공간 스팟이 유지되었으며 7개의 공간 클러스터로 그룹화되었습니다(그림 5A). 그림 5B는 nFeature_Spatial(스팟당 검출된 유전자 수)의 공간적 분포를 보여줍니다. 별도로, 866개의 CellAge 유전자 중 845개가 공간 발현 행렬에서 일치했습니다(97.58%). PPARG는 국소적인 공간 발현을 보였습니다(그림 5C). PPARG를 제거한 후 계산된 CellAge 공간 노화 점수는 PPARG 발현과 약하지만 통계적으로 유의미한 양의 상관관계를 보였습니다(ρ = 0.0692, P = 3.0 × 10⁻⁶, FDR = 1.9 × 10⁻⁵; 그림 5D). 공간 니치 점수 산출 결과, PPARG는 내피세포 점수(ρ = 0.0433, FDR = 0.00592) 및 혈관주위세포 점수(ρ = 0.0367, FDR = 0.0181)와 양의 상관관계를 보인 반면, 악성 골육종 점수(ρ = -0.0592, FDR = 0.000219) 및 종양 기질 점수(ρ = -0.0531, FDR = 0.000774)와는 음의 상관관계를 보였습니다(부록 표 5, 그림 5E). 레이블 전이 분석에서도 마찬가지로 내피세포 예측 점수(ρ = 0.0507, FDR = 0.00120) 및 혈관주위세포 예측 점수(ρ = 0.0394, FDR = 0.0123)와는 양의 상관관계를, 악성 골육종 세포 예측 점수(ρ = -0.0699, FDR = 1.1 × 10⁻⁵)와는 음의 상관관계를 보였습니다(그림 5F–H).
외부 발현 및 실험적 검증을 통한 PPARG 하향 조절 확인
GSE36001에는 19개의 골육종 샘플과 6개의 정상 대조군이 포함되었습니다. PPARG는 골육종에서 유의하게 하향 조절되었습니다(logFC = -1.429, P = 0.00730, 보정 P 값 = 0.0435; 그림 6A). 세포 기반 검증에서, qRT-PCR 분석 결과 PPARG mRNA 발현은 인간 조골세포보다 골육종 143B 세포에서 유의하게 낮았습니다(P < 0.001; 그림 6B). Western blotting을 통해 분석한 결과, 143B 세포에서 PPARG 단백질 발현 또한 유의하게 감소한 것으로 나타났습니다(P < 0.01; 그림 6C,D). 이러한 외부 코호트, mRNA 및 단백질 수준의 결과들은 골육종에서 PPARG 발현이 감소한다는 점을 일관되게 뒷받침하였습니다. GSE36001에는 생존 결과가 포함되지 않았으므로, 독립적인 예후 검증이 아닌 외부 발현 검증 결과만을 제공하였습니다.
데이터 가용성:
본 연구에 사용된 모든 데이터 세트는 공개적으로 이용 가능합니다. GSE99671 및 GSE36001은 Gene Expression Omnibus 데이터베이스(https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE99671; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE36001)에서 획득하였습니다. TARGET-OS 전사체 및 임상 데이터는 UCSC Xena(https://xena.ucsc.edu/)에서 다운로드하였습니다. 노화 관련 유전자는 Human Ageing Genomic Resources의 일부인 CellAge: The Database of Cell Senescence Genes(https://genomics.senescence.info/cells/)에서 획득하였습니다. 인간 골육종 단일 세포 및 공간 전사체 데이터 세트는 기출판된 아틀라스 및 관련 GitHub 리포지토리(https://github.com/zhengxj1/A-Single-Cell-and-Spatially-Resolved-Atlas-of-Human-Osteosarcomas)에서 획득하였습니다. 농축 분석을 위한 유전자 세트는 MSigDB(https://www.gsea-msigdb.org/gsea/msigdb/)에서 획득하였습니다. 본 연구에서 생성된 처리된 데이터와 보고된 결과를 재현하는 데 사용된 분석 스크립트는 Supplementary File 1로 편집하여 제출하였습니다.
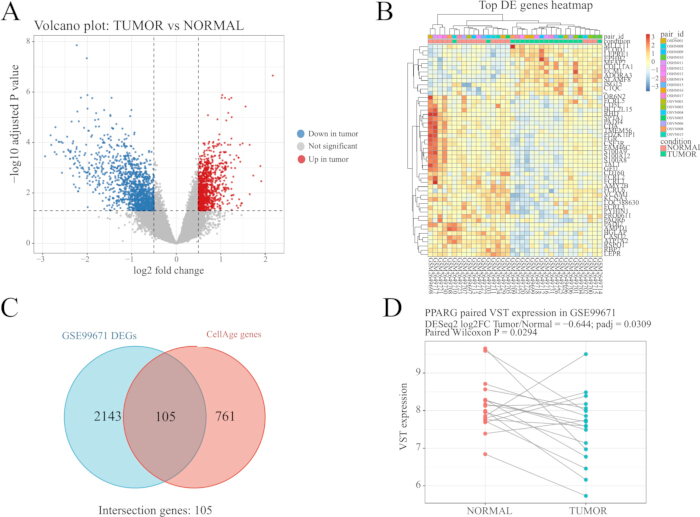
그림 1: 골육종에서 차별적으로 발현되는 유전자 및 CellAge 유래 노화 관련 후보 유전자의 식별. (A) GSE99671 데이터셋에서 골육종 조직과 쌍을 이룬 비종양 대조군 조직 간의 차별적으로 발현되는 유전자를 보여주는 화산 플롯. 사전 정의된 컷오프 기준에 따라 유의하게 상향 조절 및 하향 조절된 유전자가 표시됨. (B) GSE99671의 골육종 및 쌍을 이룬 대조군 샘플 전체에서 대표적인 차별 발현 유전자의 발현 패턴을 보여주는 히트맵. (C) GSE99671 차별 발현 유전자와 CellAge 노화 관련 유전자 간의 교집합을 보여주는 벤 다이어그램. (D) GSE99671에서 골육종 조직과 매칭된 비종양 대조군 조직 간의 PPARG 쌍 발현 비교. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
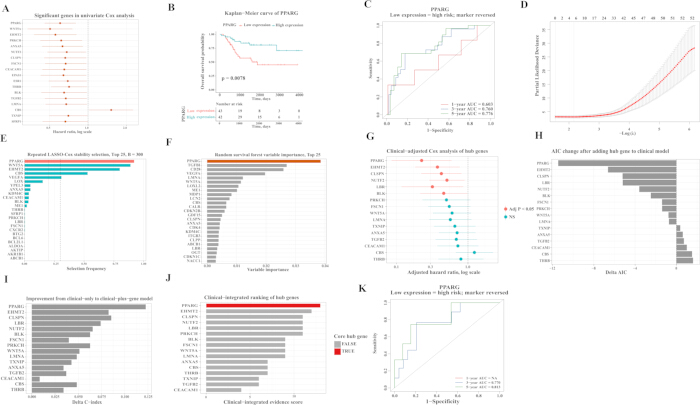
그림 2: 머신러닝 및 임상 보정 생존 분석을 통해 골육종의 핵심 노화 관련 예후 허브 유전자로 PPARG를 식별함. (A) TARGET-OS 코호트 내 노화 관련 후보 유전자에 대한 단변량 Cox 회귀 분석 결과를 나타내는 포레스트 플롯. (B) PPARG-고발현 환자와 PPARG-저발현 환자 간의 전체 생존율을 비교한 Kaplan–Meier 생존 곡선. (C) 전체 생존율에 대한 PPARG의 예측 성능을 평가한 시간 의존적 ROC 곡선. (D) 예후 후보 유전자 선별을 위한 LASSO Cox 회귀 분석의 교차 검증 곡선. (E) 300회의 5-겹 반복 분석을 통한 lambda.min 선택 빈도를 나타내는 반복 LASSO 안정성 분석. (F) 1,000개의 결정 트리로부터 얻은 변수 중요도 점수를 나타내는 랜덤 생존 포레스트 분석. (G) 후보 허브 유전자에 대한 임상 보정 Cox 회귀 분석 결과를 나타내는 포레스트 플롯. (H) 임상 모델에 개별 허브 유전자를 추가한 후의 AIC 변화. (I) 임상 모델에 개별 허브 유전자를 추가한 후의 C-index 개선도. (J) 후보 허브 유전자의 최종 임상 통합 점수(범위 0–13) 순위. (K) 40명의 환자로 구성된 임상 분석 서브셋에서 PPARG의 시간 의존적 ROC 곡선이며, 3년 및 5년 AUC를 나타냄; 1년 AUC는 추정할 수 없었음. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
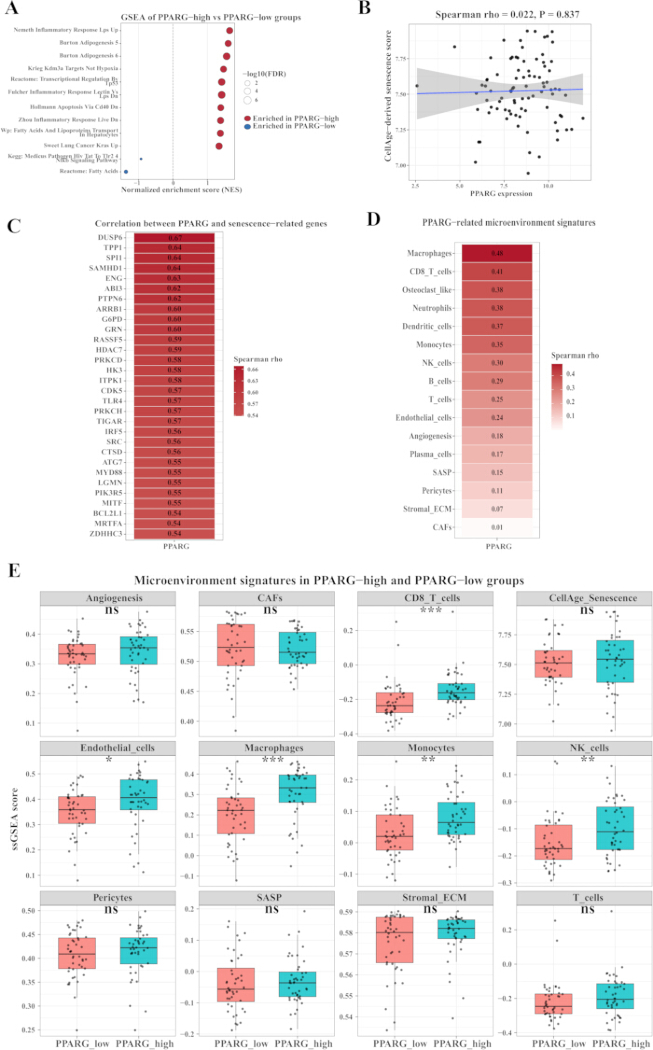
그림 3: PPARG 관련 기능적 풍부도 및 면역 미세환경 분석. (A) PPARG-high 그룹과 PPARG-low 그룹을 비교하여 Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway 및 Reactome: Fatty Acids를 나타내는 GSEA 버블 플롯. (B) bulk TARGET-OS 데이터에서 PPARG와 전체 CellAge 노화 점수 간의 상관관계. (C) PPARG와 개별 CellAge 유전자 간의 상관관계. (D) PPARG와 면역 미세환경 시그니처 간의 상관관계. (E) PPARG-high 그룹과 PPARG-low 그룹 간의 미세환경 점수 차이. 상관관계는 Spearman 순위 상관계수(ρ)를 사용하여 평가하였으며, 보정된 P 값은 Benjamini-Hochberg 방법을 사용하여 계산하였다. 약어: GSEA = 유전자 세트 풍부도 분석; NF-κB = 핵 인자 카파-B; JAK-STAT = Janus 인산화효소-신호 전달 및 전사 활성자; IL-12 = 인터루킨-12; FDR = 거짓 발견율. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
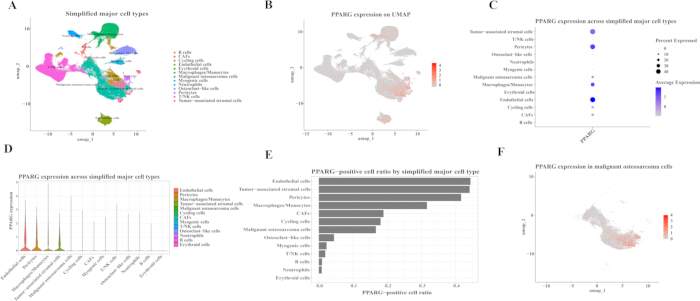
그림 4: 골육종 단일 세포 전사체 데이터에서 세포 구획별 PPARG 분포. (A) 단순화된 수동 주석 처리 후 인간 골육종 단일 세포 전사체 데이터셋의 주요 세포 유형을 나타낸 UMAP 시각화. (B) 단일 세포 전체에 걸친 PPARG 발현의 전역적 분포를 보여주는 FeaturePlot. (C) 주요 세포 유형별 PPARG 발현을 보여주는 DotPlot. (D) 서로 다른 세포 유형에서의 PPARG 발현 수준을 보여주는 바이올린 플롯. (E) 각 주요 세포 유형에서 PPARG 양성 세포의 비율을 보여주는 막대 그래프. (F) 악성 골육종 세포에서의 PPARG 발현을 보여주는 UMAP 시각화. 약어: UMAP = uniform manifold approximation and projection. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
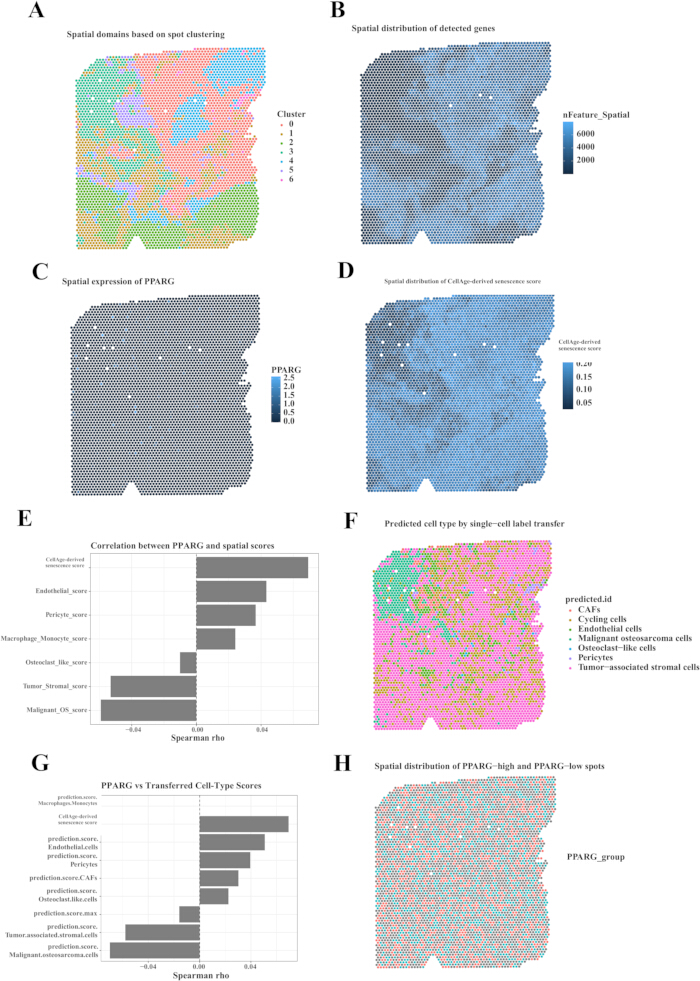
그림 5: 골육종에서 PPARG 및 노화 관련 공간적 특징의 공간 전사체 국소화. (A) SP_BS3 골육종 공간 전사체 절편에서 전사체 정의 클러스터의 공간적 분포. (B) nFeature_Spatial로 표시된 스팟당 검출된 유전자의 공간적 분포. (C) SP_BS3 스팟 전체에서의 PPARG 공간적 발현 패턴. (D) CellAge 기반 노화 점수의 공간적 분포. (E) PPARG 발현과 공간적 CellAge 기반 노화 점수 또는 세포 생태적 틈새 점수 간의 상관관계 분석. (F) 각 공간적 스팟에 대해 우세한 단일 세포 기반 세포 유형을 보여주는 라벨 전이 예측 지도. (G) PPARG 발현, CellAge 기반 노화 점수 및 라벨 전이 기반 세포 유형 예측 점수 간의 상관관계 분석. (H) PPARG-high 및 PPARG-low 스팟의 공간적 분포. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
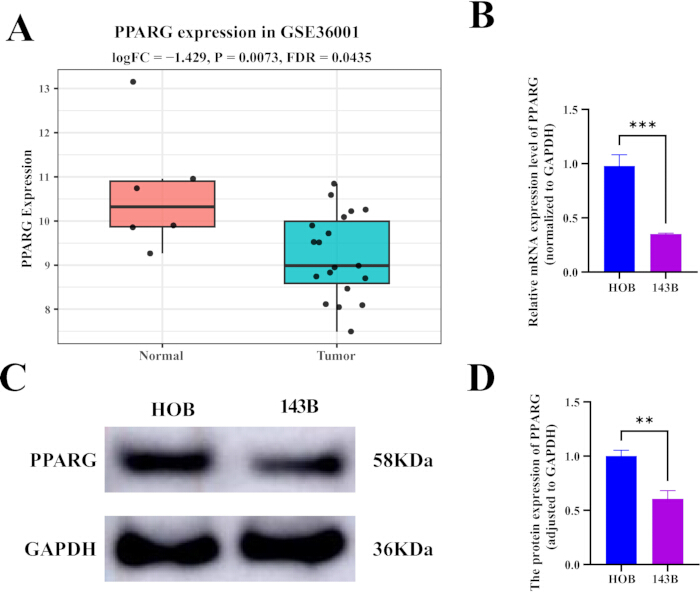
그림 6: 골육종에서 PPARG 하향 조절의 외부 발현 및 실험적 검증. (A) GSE36001 데이터셋의 골육종 샘플(n = 19)과 정상 대조군 샘플(n = 6)에서의 PPARG 발현 수준을 보여주는 박스플롯. (B) 인간 골육종 143B 세포와 인간 조골세포 대조군 세포에서의 PPARG mRNA 발현에 대한 qRT-PCR 분석. (C) 인간 조골세포 대조군 세포와 골육종 143B 세포에서 PPARG 및 GAPDH 단백질 발현을 보여주는 대표적인 Western blot. GAPDH를 로딩 대조군으로 사용하였다. (D) GAPDH로 표준화한 상대적 PPARG 단백질 수준을 보여주는 Western blot 밴드의 밀도 분석 정량화. (B)와 (D)에서 데이터는 3회의 독립적인 실험에서 얻은 평균 ± SD로 표시되었다. 양측 비쌍체 Student’s t-test를 통해 결정된 결과, 인간 조골세포 대조군 그룹 대비 P < 0.01 및 P < 0.001이다. 약어: qRT-PCR = quantitative reverse-transcription polymerase chain reaction; GAPDH = glyceraldehyde-3-phosphate dehydrogenase; SD = 표준 편차. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
보충 표 1: TARGET-OS 코호트에서 임상 변수 전용 Cox 모델의 성능. 성별, 연령, 진단 시 질환 상태, 원발성 종양 부위, 특정 종양 영역 및 확정적 수술 여부를 포함하여 임상 변수만으로 구축한 Cox 모델의 C-index, AIC 및 모델 요약. 약어: AIC = Akaike 정보 기준. 이 파일을 다운로드하려면 여기를 클릭하십시오.
부록 표 2: 임상 단독 Cox 모델과 임상 및 유전자 결합 Cox 모델의 비교. 임상 모델에 개별 후보 허브 유전자를 추가한 후의 모델 비교 결과로, C-index, AIC, 우도비 검정 통계량 및 모델 개선 지표를 포함함. 약어: AIC = Akaike 정보 기준. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 3: 근치적 수술 변수 제거 후의 민감도 분석. 조정된 임상 모델에서 근치적 수술 변수를 제외한 후에도 후보 허브 유전자, 특히 PPARG의 예후적 연관성이 안정적으로 유지되는지 평가한 민감도 Cox 회귀 분석 결과입니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 표 4: TARGET-OS에서의 PPARG 관련 면역 및 기질 미세환경 시그니처. Spearman 상관 계수, P 값, 보정된 P 값, 그리고 PPARG 고발현 그룹과 저발현 그룹 간의 비교를 포함하여, PPARG 발현과 면역, 기질, 혈관, 염증 및 SASP 관련 ssGSEA 시그니처 간의 상관관계 및 그룹 비교 결과. 약어: SASP = 노화 관련 분비 표현형; ssGSEA = 단일 샘플 유전자 세트 농축 분석. 여기를 클릭하여 이 파일을 다운로드하십시오.
보충 표 5: SP_BS3에서 PPARG의 공간 전사체 상관관계 분석. SP_BS3 골육종 공간 전사체 절편에서 PPARG 발현과 공간 CellAge 유래 노화 점수, 세포 생태적 니치(niche) 점수 및 라벨 전이 유래 세포 유형 예측 점수 간의 상관관계 결과. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
본 연구는 차등 발현 분석, CellAge 유전자 교집합 분석, TARGET-OS 생존 모델링, 임상 보정, 멀티오믹스 국소화 및 실험적 검증을 통합하여 PPARG를 골육종의 노화 관련 예후 유전자 후보로 선정하였습니다. 이러한 분석 프레임워크는 분자 정보 기반의 골육종 연구와 노화 관련 생물학 해석을 위해 큐레이션된 노화 유전자 리소스에 대한 최근의 강조 흐름과 일치합니다14,31. PPARG는 정상 조직에 비해 골육종에서 발현이 감소되어 있었으며, 낮은 PPARG 발현은 TARGET-OS에서 더 낮은 전체 생존율과 관련이 있었습니다. 이러한 결과는 PPARG가 골육종에서 전사적으로 변화되었을 뿐만 아니라, 임상적으로 유의미한 예후 정보를 가지고 있을 수 있음을 시사합니다. 그러나 후보 선정과 모델 평가가 동일한 TARGET-OS 코호트(환자 85명, 사망 사례 27건)에서 수행되었기 때문에, 관찰된 모델 성능의 향상은 낙관적 편향과 과적합의 영향을 받았을 가능성이 있습니다. 따라서 PPARG의 예후 가치는 독립적인 골육종 생존 코호트에서 검증될 때까지 가설 생성 단계로 간주되어야 합니다. 그럼에도 불구하고, 실험적 골육종 연구에서 PPAR-gamma/핵 수용체 조절의 항종양 효과와 질병 진행을 지원할 수 있는 PPARG 관련 파골세포 프로그램이 모두 보고되었으므로, PPARG의 생물학적 특성은 상황 의존적인 방식으로 해석되어야 합니다32,33,34.
중요한 세부 사항은 PPARG를 전체 CellAge 점수를 대신하는 단순한 대리 지표로 해석해서는 안 된다는 점이었습니다. bulk TARGET-OS 데이터에서 PPARG는 전역 CellAge 노화 점수와 유의미한 상관관계를 보이지 않았으나, 공간 전사체 분석(spatial transcriptomics)에서는 PPARG를 제외하고 계산한 CellAge 점수와 약하지만 유의미한 상관관계를 보였습니다. 이러한 차이는 bulk 데이터의 세포 구성 효과, 노화 유전자 세트의 다기능적 성격, 그리고 공간적 스팟(spatial spots) 내 미세환경 틈새(microenvironmental niches)의 국소적 농축이 반영된 결과일 수 있습니다. 합의 및 전사체 연구들은 세포 노화가 이질적이고 역동적이며, 세포 유형, 스트레스 요인 및 조직 맥락에 따라 달라진다는 점과 SASP 프로그램이 암 진행 과정에서 상반된 효과를 나타낼 수 있다는 점을 강조해 왔습니다25,35,36,37. 따라서 PPARG는 입증된 노화 유도 인자라기보다 CellAge에서 유도된 노화 관련 예후 유전자로 보수적으로 정의되었습니다. 이에 따라 PPARG의 노화 관련 지정은 노화에 대한 기전적 관여가 입증된 것이 아니라 CellAge 유전자 세트에 포함되었음을 반영하는 것이며, PPARG를 전체 노화 활성에 대한 정량적 대리 지표로 사용해서는 안 됩니다.
보다 일반적으로, 이러한 공간적 결과는 통계적 유의성과 생물학적 관련성 사이의 구분을 보여주었습니다. 4,572개의 공간적 스팟이 있는 경우, 매우 약한 상관관계조차 일반적인 유의성 임계값을 초과할 수 있습니다. 예를 들어, PPARG와 공간적 CellAge 노화 점수 사이의 상관관계(ρ = 0.0692)는 분산의 약 0.48%만을 설명했지만, 방대한 스팟의 수가 상당한 통계적 검정력을 제공했기 때문에 P 값은 3.0 × 10⁻⁶에 도달했습니다. 따라서 이러한 스팟 수준의 연관성은 통계적으로 검출 가능하지만 생물학적으로는 미미한, 가설 생성 신호로 간주해야 하며, P 값만으로 판단하기보다 효과 크기를 바탕으로 생물학적 해석을 진행해야 합니다. 대규모 스팟 수준 데이터셋에서의 통계적 유의성을 강한 생물학적 효과와 동일시해서는 안 됩니다.
단일 세포 및 공간 분석을 통해 PPARG에 대한 생물학적 맥락을 제공하였습니다. PPARG는 혈관 내피 세포, 혈관주위 세포, 대식세포/단핵구 및 종양 관련 기질 세포에서 풍부하게 나타났으며, 공간적으로 혈관 내피 및 혈관주위 세포 점수와 연관되어 있었습니다. 이러한 결과는 PPARG가 보유한 예후 정보가 골육종의 혈관 및 미세환경 구획과 연결되어 있을 수 있음을 시사합니다. 이러한 해석은 최근의 골육종 단일 세포/공간 지도 및 면역, 혈관, 기질 니치(niche)가 종양의 이질성, 치료 반응 및 진행을 형성한다는 광범위한 증거와 일치합니다25,38,39. 악성 골육종 세포는 일부 세포군에서만 PPARG를 발현하였고 다른 세포보다 유의하게 높은 발현을 보이지 않았기 때문에, 종양 세포만으로 해석하는 것은 불완전했을 것입니다. 반대로, GSE99671 및 GSE36001에서 관찰된 벌크 수준의 PPARG 하향 조절은 악성 골육종 세포 자체의 실제 하향 조절이라기보다, 종양 조직과 정상 조직 간의 기질, 혈관, 골수, 지방 생성 또는 면역 세포 구성의 차이를 부분적으로 반영한 것일 수 있습니다. 벌크 분석에서 종양 순도와 세포 유형 풍부도가 명시적으로 조정되지 않았으므로, 이러한 가능성을 배제할 수 없으며 표적 조사가 필요했습니다.
기능 및 면역 미세환경 분석 결과는 이러한 해석과 일치했다. PPARG는 대식세포, CD8 T-세포, 수지상세포, 호중구, NK 세포 및 혈관 내피세포 시그니처와 상관관계를 보였으며, GSEA는 염증, NF-κB, JAK-STAT/IL-12 신호 전달, TP53 조절 및 DNA 손상 체크포인트와 관련된 경로를 강조했다. 종합하면, 이러한 결과는 PPARG가 노화 관련 스트레스, 면역 침윤, 혈관 및 기질 구획을 포함하는 복합적인 미세환경 상태를 나타낼 수 있음을 시사했다. PPAR-gamma가 AP-1, STAT 및 NF-κB 관련 전사 프로그램에 미치는 영향을 포함하여 대식세포/단핵구의 염증성 활성화를 억제하는 확립된 역할을 가지고 있으며, 골육종 면역 미세환경이 종양 촉진 및 종양 억제 기능을 모두 가진 골수성, 림프성 및 혈관 요소를 포함하고 있기 때문에 이러한 해석은 생물학적으로 타당하다38,40,41. 이러한 단일 세포 및 공간적 관찰 결과는 기술적이며 가설 생성 단계의 데이터로, 그 자체만으로는 혈관 니치 기전, 노화 프로그램 또는 예후 경로를 확립한 것은 아니다.
몇 가지 제한 점을 인정해야 합니다. 첫째, 주요 예후 분석은 표본 크기와 이벤트 수가 제한적인 회고적 TARGET-OS 공개 코호트를 기반으로 하였습니다. 따라서 PPARG의 예후 가치는 공인된 종양 마커 보고 및 검증 원칙에 따라 독립적인 코호트에서 검증되어야 합니다42. 특히, 후보 스크리닝은 27명의 사망자가 포함된 85명의 TARGET-OS 환자를 대상으로 수행되었으며, 임상 보정 모델 평가는 13명의 사망자가 포함된 중첩된 40명의 환자 하위 집합을 사용하였습니다. 두 분석 모두 동일한 소스 코호트에서 도출되었기 때문에, 보고된 C-index 개선(0.707에서 0.829로) 및 AIC 감소는 낙관적일 가능성이 큽니다. PPARG의 예후 가치를 외부적으로 검증할 독립적인 생존 코호트를 사용할 수 없었으며, GSE36001은 종양 대 정상 조직의 발현 검증용으로만 사용되었습니다. 또한, 통합 허브 점수는 검증된 예후 도구라기보다 탐색적인 내부 순위 결정 휴리스틱이었습니다. 둘째, 공간 전사체 분석은 단일 SP_BS3 샘플을 기반으로 하였습니다. 상관관계는 통계적으로 유의미했으나 효과 크기가 작았으며, 추가적인 공간 샘플을 통한 검증이 필요합니다. 특히, 독립적인 환자들로부터 공간 전사체 샘플 수를 늘리는 것이 이러한 약한 연관성에 대해 더 강력한 추정치를 얻는 데 필수적이며, 더 큰 공간 코호트를 기반으로 한 연구가 필요합니다. 공간 전사체학은 가치 있는 in situ 분자적 맥락을 제공하지만, 해석은 플랫폼 해상도, 샘플링 전략, 조직 품질 및 계산적 통합 선택의 영향을 받습니다43. 더욱이, 공간 분석은 단순화된 주석이 포함된 전처리된 공개 단일 세포 객체와 계산적 점수 산출 및 라벨 전이에 의존하였습니다. 효과 크기가 매우 작다는 점을 고려할 때, 이 데이터는 혈관 니치나 노화 프로그램에 대한 기전적 주장보다는 기술적인 위치 확인 진술을 뒷받침합니다. 셋째, 실험적 검증은 골육종 세포주 143B와 인간 조골세포를 기반으로 하였습니다. 추가적인 골육종 세포주와 임상 샘플이 필요하며, 단일 세포주에서의 검증만으로는 세포 유형 특이성, 임상적 예후 관련성 또는 노화 생물학을 확립할 수 없습니다. 넷째, 본 연구는 인과 관계보다는 연관성을 입증하였습니다. PPARG가 노화 관련 프로그램, 혈관 니치 또는 종양 진행을 직접적으로 조절하는지 확인하기 위해서는 골육종 세포 및 미세환경 모델에서 PPARG의 기능적 섭동 연구가 필요할 것입니다. 다섯째, 노화 관련성은 CellAge 유전자 세트와의 중첩으로 정의되었으며, PPARG는 TARGET-OS의 벌크 CellAge 노화 점수와 상관관계가 없었습니다. 또한, 벌크 종양 대 정상 조직 비교 시 종양 순도나 세포 유형 구성에 대한 보정이 이루어지지 않았으므로, 관찰된 발현 감소는 악성 세포 고유의 변화보다는 미세환경 구성의 차이를 부분적으로 반영하는 것일 수 있습니다.
PPARG는 CellAge 유래 유전자로, TARGET-OS 코호트에서 낮은 발현 수준이 불량한 전체 생존율과 연관되어 있습니다. 벌크 골육종 비교 시 나타난 PPARG의 하향 조절과 혈관, 골수 및 기질 구획에서의 농축은 벌크 PPARG 수준이 악성 세포 자체의 발현보다는 미세환경의 세포 구성물을 부분적으로 반영할 수 있음을 시사합니다. 단일 세포 및 공간적 분석 결과는 기술적인 수준이며, 예후적 연관성은 생존율에 대해 독립적으로 검증되지 않았으므로 생존 결과가 포함된 외부 코호트에서의 검증이 필요합니다. 이러한 발견은 외부 검증과 기능 연구를 전제로, PPARG를 골육종의 예후 평가 및 노화 관련 미세환경 연구를 위한 후보 바이오마커로 제시합니다. 공간 전사체 분석에서 PPARG와 노화 관련 또는 혈관 니치 점수 간의 상관관계는 공간 스팟의 수가 많아 통계적으로는 유의미했으나 효과 크기는 작았으므로, 해석에 주의가 필요합니다.
공개 사항
저자들은 이해상충 관계가 없음을 선언합니다.
저자 기여도:
Yongwen Li와 Wentao Qin이 연구를 구상하고 설계했습니다. Yongwen Li가 생물정보학 및 계산 분석을 수행했습니다. Tuo Liang이 실험적 검증을 수행했습니다. Rubiao Qiu와 Zide Zhang이 그림 작성에 기여했습니다. Rubiao Qiu와 Zide Zhang이 연구를 감독하고 원고를 비판적으로 수정했습니다. 모든 저자가 최종 원고를 검토하고 승인했습니다.
감사의 글
저자들은 본 연구를 가능하게 한 공개 데이터 세트와 리소스를 제공해 준 GEO, TARGET-OS, UCSC Xena, CellAge, MSigDB 및 인간 골육종 단일 세포 및 공간 전사체 지도 프로젝트의 연구진과 기여자들에게 깊은 감사를 표합니다. 본 연구는 Guangxi Natural Science Foundation(No. 2023GXNSFAA026111)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Anti-GAPDH 1차 항체 | Proteintech Group, 중국 우한 | 10494-1-AP | 웨스턴 블로팅에서 로딩 컨트롤로 GAPDH를 검출하는 데 사용된 1차 항체; 희석 배수 1:5,000. |
| Anti-PPARG 일차 항체 | Proteintech Group, 중국 우한 | 16643-1-AP | 웨스턴 블로팅을 통한 PPARG 단백질 검출에 사용된 1차 항체; 희석 배수 1:1,000. |
| BCA 단백질 정량 분석 키트 | Beijing Solarbio Science & Technology Co., Ltd., 중국 베이징 | PC0020 | 전기영동 전 총 단백질 농도를 결정하는 데 사용되는 비색 분석법. |
| DESeq2 | Bioconductor | 버전 1.40.2 | 카운트 기반 전사체 데이터의 차별 발현 유전자 분석에 사용되는 R 패키지. |
| Dulbecco's modified Eagle's medium (DMEM) | Beijing Solarbio Science & Technology Co., Ltd., 중국 베이징 | 11995 | 143B 골육종 세포 유지에 사용되는 기초 배양 배지. |
| ECL 검출 시약 | Beijing Solarbio Science & Technology Co., Ltd., 중국 베이징 | PE0010 | 웨스턴 블로팅에서 HRP-접합 항체 검출에 사용되는 화학발광 기질. |
| 소태아혈청 (FBS) | Zhejiang Tianhang Biotechnology Co., Ltd. (Sijiqing), 중국 저장성 후저우 | 11011-8611 | 세포의 성장과 생존력을 지원하기 위해 배양 배지에 첨가하는 혈청 보충제. |
| glmnet | CRAN | 버전 4.1-8 | LASSO 및 elastic-net 모델링을 포함한 벌점 회귀 분석에 사용되는 R 패키지. |
| GraphPad Prism | GraphPad Software, 미국 캘리포니아주 샌디에이고 | 버전 9.0 | 통계 분석, 그래프 생성 및 실험 데이터 시각화에 사용된 소프트웨어. |
| HRP-접합 2차 항체 | Proteintech Group, 중국 우한 | SA00001-2 | 웨스턴 블롯 검출에 사용되는 서구마 peroxidase 접합 2차 항체; 희석 배수 1:5,000. |
| 인간 골모세포 | Cell Applications, Inc., 미국 캘리포니아주 샌디에이고 | 406-05A | 비악성 비교/대조 세포 유형으로 사용된 일차 인간 조골세포. |
| 인간 골육종 143B 세포주 | American Type Culture Collection (ATCC), 미국 버지니아주 매나사스 | CRL-8303 | 인 비트로(in vitro) 검증 실험 및 분자 분석에 사용된 인간 골육종 세포주. |
| ImageJ | 미국 국립보건원 (NIH) | 버전 1.53 | 실험 이미지의 정량 분석에 사용되는 이미지 분석 소프트웨어. |
| limma | Bioconductor | 버전 3.56.2 | 차등 발현 분석 및 선형 모델 기반 통계 검정에 사용되는 R 패키지. |
| 페니실린-스트렙토마이신 | Beijing Solarbio Science & Technology Co., Ltd., 중국 베이징 | P1400 | 세균 오염을 줄이기 위해 세포 배양 배지에 사용하는 항생제 보충제. |
| PPARG 및 GAPDH 프라이머 | Sangon Biotech (Shanghai) Co., Ltd., 중국 상하이 | 맞춤 합성; 서열은 방법 섹션에 제공됨 | PPARG 및 GAPDH 발현의 qPCR 분석에 사용된 맞춤형 올리고뉴클레오타이드 프라이머. |
| PVDF 막, 0.45 µm | Beijing Solarbio Science & Technology Co., Ltd., 중국 베이징 | YA1701 | 웨스턴 블로팅 중 단백질 전사에 사용되는 막. |
| R 통계 소프트웨어 | R Foundation for Statistical Computing, 오스트리아 빈 | 버전 4.3.2 | 생물정보학 분석, 모델 구축 및 시각화에 사용된 통계 컴퓨팅 환경. |
| randomForestSRC | CRAN | 버전 3.2.2 | 무작위 생존 포레스트 모델링 및 특성 중요도 분석에 사용되는 R 패키지. |
| 역전사 키트 | Beyotime Biotech Inc., 중국 상하이 | D7168M | 정량적 PCR 전, 분리된 RNA로부터 상보적 DNA(cDNA)를 합성하는 데 사용됨. |
| RIPA 용해 완충액 | Beijing Solarbio Science & Technology Co., Ltd., 중국 베이징 | R0010 | 웨스턴 블롯 분석을 위해 세포를 용해하는 데 사용되는 단백질 추출 완충액. |
| Seurat | Satija 연구실 | 버전 5.0.1 | 단일 세포 RNA 시퀀싱 데이터 처리, 통합, 클러스터링 및 시각화에 사용되는 R 패키지. |
| 생존율 | CRAN | 버전 3.5-7 | Cox 비례 위험도 모델링을 포함하여 생존 분석에 사용되는 R 패키지. |
| SYBR Green qPCR 마스터 믹스 | Beijing Solarbio Science & Technology Co., Ltd., 중국 베이징 | SR1110 | 정량적 실시간 PCR 증폭에 사용되는 형광 마스터 믹스. |
| timeROC | CRAN | 버전 0.4 | 시간 의존적 수신자 작동 특성 곡선을 생성하고 시간에 따른 예측 성능을 계산하는 데 사용되는 R 패키지. |
| TRIzol 시약 | Invitrogen, Thermo Fisher Scientific, Waltham, MA, USA | 15596026CN | 배양 세포로부터 총 RNA를 추출하는 데 사용되는 시약. |
| Trypsin-EDTA, 0.25% | Beijing Solarbio Science & Technology Co., Ltd., 중국 베이징 | T1300 | 부착 세포의 계대 배양 및 수집에 사용되는 세포 해리 시약. |
참고문헌
- Mirabello L, Troisi RJ, Savage SA. Osteosarcoma incidence and survival rates from 1973 to 2004: data from the Surveillance, Epidemiology, and End Results Program. Cancer. 2009;115:1531-1543.
- Bielack SS, et al. Prognostic factors in high-grade osteosarcoma of the extremities or trunk: an analysis of 1,702 patients treated on neoadjuvant cooperative osteosarcoma study group protocols. J Clin Oncol. 2002;20:776-790.
- Isakoff MS, Bielack SS, Meltzer P, Gorlick R. Osteosarcoma: Current Treatment and a Collaborative Pathway to Success. J Clin Oncol. 2015;33:3029-3035.
- Kansara M, Teng MW, Smyth MJ, Thomas DM. Translational biology of osteosarcoma. Nat Rev Cancer. 2014;14:722-735.
- Peng P, et al. Epigenetic remodeling under oxidative stress: Mechanisms driving tumor metastasis. MedComm - Oncology. 2024;3.
- Muñoz-Espín D, Serrano M. Cellular senescence: from physiology to pathology. Nat Rev Mol Cell Biol. 2014;15:482-496.
- Coppé JP, Desprez PY, Krtolica A, Campisi J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annu Rev Pathol. 2010;5:99-118.
- Collado M, Serrano M. Senescence in tumours: evidence from mice and humans. Nat Rev Cancer. 2010;10:51-57.
- Lehrke M, Lazar MA. The many faces of PPARgamma. Cell. 2005;123:993-999.
- Peters JM, Shah YM, Gonzalez FJ. The role of peroxisome proliferator-activated receptors in carcinogenesis and chemoprevention. Nat Rev Cancer. 2012;12:181-195.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets--update. Nucleic Acids Res. 2013;41.
- Ho XD, et al. Whole transcriptome analysis identifies differentially regulated networks between osteosarcoma and normal bone samples. Exp Biol Med (Maywood). 2017;242:1802-1811.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Avelar RA, et al. A multidimensional systems biology analysis of cellular senescence in aging and disease. Genome Biol. 2020;21:91.
- Goldman MJ, et al. Visualizing and interpreting cancer genomics data via the Xena platform. Nat Biotechnol. 2020;38:675-678.
- Prentice RL, Zhao S. Regression Models and Multivariate Life Tables. J Am Stat Assoc. 2021;116:1330-1345.
- Heagerty PJ, Lumley T, Pepe MS. Time-dependent ROC curves for censored survival data and a diagnostic marker. Biometrics. 2000;56:337-344.
- Tibshirani R. The lasso method for variable selection in the Cox model. Stat Med. 1997;16:385-395.
- Jaeger BC, et al. OBLIQUE RANDOM SURVIVAL FORESTS. Ann Appl Stat. 2019;13:1847-1883.
- Subramanian A, et al. Gene set enrichment analysis: a knowledge-based approach for interpreting genome-wide expression profiles. Proc Natl Acad Sci U S A. 2005;102:15545-15550.
- Newman AM, et al. Robust enumeration of cell subsets from tissue expression profiles. Nat Methods. 2015;12:453-457.
- Zhou Y, et al. Single-cell RNA landscape of intratumoral heterogeneity and immunosuppressive microenvironment in advanced osteosarcoma. Nat Commun. 2020;11:6322.
- Stuart T, et al. Comprehensive Integration of Single-Cell Data. Cell. 2019;177:1888-1902.e21.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184:3573-3587.e29.
- Zheng X, et al. A single-cell and spatially resolved atlas of human osteosarcomas. J Hematol Oncol. 2024;17:71.
- Ståhl PL, et al. Visualization and analysis of gene expression in tissue sections by spatial transcriptomics. Science. 2016;353:78-82.
- Kresse SH, et al. Integrative analysis reveals relationships of genetic and epigenetic alterations in osteosarcoma. PLoS One. 2012;7.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 2001;25:402-408.
- Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012;9:671-675.
- Gill J, Gorlick R. Advancing therapy for osteosarcoma. Nat Rev Clin Oncol. 2021;18:609-624.
- Sun L, et al. Single-cell RNA sequencing revealed PPARG promoted osteosarcoma progression: based on osteoclast proliferation. Front Immunol. 2024;15:1506225.
- Yuan B, et al. Nuclear receptor modulators inhibit osteosarcoma cell proliferation and tumour growth by regulating the mTOR signaling pathway. Cell Death Dis. 2023;14:51.
- Lu Y, et al. Oridonin exerts anticancer effect on osteosarcoma by activating PPAR-γ and inhibiting Nrf2 pathway. Cell Death Dis. 2018;9:15.
- Gorgoulis V, et al. Cellular Senescence: Defining a Path Forward. Cell. 2019;179:813-827.
- Faget DV, Ren Q, Stewart SA. Unmasking senescence: context-dependent effects of SASP in cancer. Nat Rev Cancer. 2019;19:439-453.
- Hernandez-Segura A, et al. Unmasking Transcriptional Heterogeneity in Senescent Cells. Curr Biol. 2017;27:2652-2660.e4.
- Tian H, et al. Managing the immune microenvironment of osteosarcoma: the outlook for osteosarcoma treatment. Bone Res. 2023;11:11.
- Hanahan D. Hallmarks of Cancer: New Dimensions. Cancer Discov. 2022;12:31-46.
- Ricote M, Li AC, Willson TM, Kelly CJ, Glass CK. The peroxisome proliferator-activated receptor-gamma is a negative regulator of macrophage activation. Nature. 1998;391:79-82.
- Jiang C, Ting AT, Seed B. PPAR-gamma agonists inhibit production of monocyte inflammatory cytokines. Nature. 1998;391:82-86.
- McShane LM, et al. REporting recommendations for tumour MARKer prognostic studies (REMARK). Br J Cancer. 2005;93:387-391.
- Moses L, Pachter L. Publisher Correction: Museum of spatial transcriptomics. Nat Methods. 2022;19:628.