본 연구는 miR-1298이 대장암(CRC)의 침습 및 이동과 밀접하게 연관되어 있으며, 대장암의 진행을 억제함으로써 종양 억제제로 작용할 수 있음을 입증하여, 대장암 치료를 위한 새로운 치료 표적으로서의 잠재력을 강조합니다.
연구 논문
대장암에서 miR-1298/골 형성 단백질 7 축의 역할
* These authors contributed equally
이 논문에서
요약
초록
최근 몇 년 동안 대장암(CRC)의 발생률이 증가하고 있습니다. 본 연구에서는 대장암에서 miR-1298의 임상적 유의성과 분자적 기전을 탐구하였습니다. 총 85명의 대장암 환자가 등록되었습니다. 모든 유전자 수준은 RT-qPCR로 평가되었습니다. 대장암 세포에서 miR-1298과 골형성단백질 7(BMP7)의 수준은 세포 형질전환을 통해 조절되었습니다. miR-1298의 표적은 생물정보학 분석을 사용하여 예측하였으며, 이중 루시퍼레이즈 리포터 시스템으로 확인하였습니다. 대장암 세포의 기능은 CCK-8 분석, Transwell 분석 및 유세포 분석을 이용하여 평가하였습니다. 대장암 조직 내 miR-1298과 BMP7 간의 상관관계는 Pearson 상관분석을 통해 분석하였습니다. miR-1298은 대장암에서 유의하게 하향 조절되었으며 악성 임상병리학적 특징과 관련이 있었습니다. 대장암 세포에서 miR-1298은 증식, 이동 및 침습을 억제하고 세포 사멸을 증가시켰습니다. BMP7은 miR-1298의 하위 표적이었으며 miR-1298과 음의 상관관계를 보였습니다. BMP7의 과발현은 대장암 세포의 증식, 이동 및 침습에 대한 miR-1298의 억제 효과와 세포 사멸 촉진 효과를 부분적으로 반전시켰습니다. miR-1298은 침습 및 이동과 관련이 있으며 대장암의 진행을 억제할 수 있습니다. BMP7은 대장암에서 miR-1298의 잠재적인 기능적 매개체일 수 있습니다.
서론
대장암은 전 세계적으로 암 관련 사망의 주요 원인으로 꼽히며, 전 세계적으로 상당한 건강 부담을 초래하고 있습니다.1대장암(CRC)은 결장-직장의 상피세포에서 발생하며, 일반적으로 선종-암 진행으로 알려진 다단계 과정을 통해 수년에 걸쳐 점진적으로 발달합니다.2대장암의 결과는 광범위하고 다각적입니다. 사망 위험 외에도 대장암은 환자의 일상생활에 상당한 영향을 미칠 수 있습니다. 치료에는 일반적으로 대수술이 필요하며, 이는 영구적 결장루, 장 기능 장애, 또는 성 및 비뇨기 기능 장애와 같은 합병증을 초래할 수 있습니다.3또한, 화학요법, 표적 치료 및 장기 모니터링에 따른 경제적 부담은 환자와 보건 의료 시스템 모두에 상당한 압박을 줍니다. 따라서 대장암(CRC)의 기저에 있는 분자적 메커니즘을 규명하는 것은 공중 보건 분야의 핵심 우선 과제로 남아 있습니다.
대장암(CRC)에서 특정 마이크로RNA(miRNA)의 조절 장애는 종양 형성의 두드러진 특징이며 핵심 과정에 영향을 미칩니다4. 이러한 차별적으로 발현되는 miRNA를 식별하는 것은 CRC의 발병 기전에 대한 이해를 높일 뿐만 아니라, 새로운 진단 바이오마커 및 치료 표적을 위한 잠재적인 경로를 제공합니다. 암 관련 miRNA 중에서도 miR-1298이 주요 연구 표적으로 부상했습니다. 현재의 증거에 따르면 miR-1298은 다양한 암에서 종양 억제제로 자주 작용합니다. 예를 들어, 비소세포폐암(NSCLC)에서 miR-1298은 주요 발암 경로를 표적으로 삼아 세포 성장과 침윤을 억제합니다5. 마찬가지로 뇌종양에서는 miR-1298의 하향 조절이 종양 발생과 관련이 있으며, 이를 복원하면 종양 진행이 억제됩니다6. 다른 암에서 확립된 종양 억제 역할에도 불구하고, 대장암 발생 과정에서 miR-1298의 구체적인 역할, 특히 CRC에서의 하위 표적 및 기능적 결과는 여전히 거의 탐구되지 않은 상태입니다. 다른 악성 종양과 비교하여 CRC의 분자적 환경이 뚜렷하다는 점을 고려할 때, 이러한 지식의 공백은 매우 중요합니다.
BMP7은 transforming growth factor-β (TGF-β) 상과에 속하는 분비성 및 기능적으로 다재다능한 사이토카인입니다7. CRC에서 BMP7은 주로 종양 촉진 역할을 수행합니다. BMP7은 일반적으로 CRC 조직과 세포에서 상향 조절됩니다8. BMP7은 침습 촉진 신호 전달 폭포를 활성화하고 전이를 촉진하도록 종양 미세환경을 조절함으로써 암세포의 침습, 이동 및 줄기세포 유사 특성을 높이는 것으로 보입니다9. 다양한 유형의 암에서 특정 miRNA들이 BMP7의 직접적인 전사 후 억제제로 확인되었습니다. 예를 들어, miR-137은 NSCLC에서 BMP7을 표적으로 삼아 세포 성장을 억제합니다10. 이러한 발견을 바탕으로, 본 연구진은 BMP7이 CRC에 관여할 것이라는 가설을 세웠습니다. 하지만 CRC에서 miR-1298이 BMP7을 직접적으로 표적으로 하는지에 대해서는 실험적으로 검증되지 않았습니다. 또한, 기전 검증, 기능적 표현형 분석 및 임상적 상관관계를 통합하여 CRC 내 miR-1298/BMP7 축을 종합적으로 특성화한 연구는 아직 없습니다.
따라서 본 연구의 목적은 다음과 같습니다: (1) CRC에서 miR-1298의 조절 패턴과 임상병리학적 특징과의 연관성을 조사하고, (2) CRC의 증식, 세포사멸, 침윤 및 이동에 미치는 miR-1298의 효과를 기능적으로 규명하며, (3) CRC에서 BMP7이 miR-1298의 표적임을 실험적으로 검증하고, (4) CRC 환자에서 miR-1298의 진단 및 예후적 가치를 평가하는 것입니다. 이러한 상호 보완적인 접근법을 통합함으로써, 우리는 CRC에서 miR-1298/BMP7 축에 대한 포괄적인 이해를 제공하고, 이 질환에 대한 새로운 바이오마커 및 치료 표적을 발견하고자 하였습니다.
프로토콜
본 연구는 우한 뇌병원 윤리위원회(승인 번호: 20220826)의 승인을 받았습니다. 모든 참여자는 등록 전 서면 동의서를 제출하였습니다. 본 연구는 헬싱키 선언을 준수하여 수행되었습니다. 데이터가 포함된 모든 참여자로부터 출판 동의를 얻었습니다. 제조사 및 카탈로그 정보를 포함하여 본 연구에 사용된 시약, 키트, 항체, 세포주, 플라스미드 및 장비의 상세 내용은 재료 표에 제공되어 있습니다.
환자 및 시료
2022년 5월부터 2024년 8월까지, CRC 환자 85명으로부터 암 조직과 인접 비암 조직의 쌍으로 된 샘플을 수집하였습니다. 참가자 중 암 병력, 화학요법 또는 방사선 치료 경험이 있는 경우는 없었습니다. 또한, 신체 검사를 받는 건강한 피험자 71명을 본 연구에 포함하였습니다.
예후
miR-1298의 고발현/저발현 그룹을 나누는 임계값은 CRC 조직 샘플의 중앙값 발현 수준을 기준으로 결정되었습니다. 추적 관찰 기간은 12개월이었으며, 전화 또는 재검진을 통해 추적 관찰을 수행하였습니다. 종점 사건은 사망으로 정의하였습니다. 85명의 환자 중 추적 관찰 기간 동안 14명의 사망이 기록되었으며, 중도 절단된 환자는 없었습니다.
세포 배양 및 세포 형질전환
정상 인간 결장 세포주 FHC와 인간 CRC 세포주 SW480 및 HCT-116을 확보하였다. 세포는 10% fetal bovine serum (FBS)가 첨가된 Dulbecco's Modified Eagle Medium (DMEM)에서 배양하였다. Lipofectamine 3000을 사용하여 miR-1298 mimic 또는 inhibitor를 SW480 및 HCT-116 세포에 형질전환하였다. 그 후, miR-1298 mimic과 pcDNA3.1-BMP7 (OE-BMP7) 또는 pcDNA3.1 vector (OE-NC)를 SW480 세포와 HCT-116 세포에 공동 형질전환하였다. 구체적인 단계는 다음과 같다: 세포를 37 °C, 5% CO₂ 조건에서 confluence가 70%–80%에 도달할 때까지 배양하였다. 24-well plate의 well당 5 x 10⁴ cells의 밀도로 세포를 분주하고 하룻밤 동안 배양하였다. 250 µL의 Opti-MEM, 1.25 µL의 Lipofectamine 3000, 1.5 µL의 P3000, 50 nM miRNA, 그리고 1 µg의 plasmid를 포함하는 형질전환 혼합물을 준비하여 15분 동안 반응시킨 후 세포에 첨가하였다. 6시간 후 배지를 완전 DMEM으로 교체하였으며, 48시간 후에 샘플을 수집하였다.
생물정보학 분석
TargetScan 8.0 데이터베이스(https://www.targetscan.org/vert_80/)를 사용하여 miR-1298의 표적을 예측하였습니다. 그 후 miR-1298과 BMP7 사이의 예측된 결합 부위를 확인하였습니다.
이중 루시페라제 리포터 분석법
야생형 및 돌연변이 3′예측된 miR-1298 결합 부위를 포함하는 BMP7의 3'-UTR 서열을 pmirGLO dual-luciferase 리포터 벡터에 클로닝하여 각각 BMP7 Wt 및 BMP7 Mut 리포터 플라스미드를 제작하였다. 루시페라아제 분석(luciferase assay)을 위해, SW480 및 HCT-116 세포에 BMP7 Wt 또는 BMP7 Mut 플라스미드를 miR-1298 mimic, inhibitor 또는 각각의 음성 대조군과 함께 공동 transfection하였다. 구체적인 단계는 다음과 같다: 세포를 24-웰 플레이트에 4 x 10^5개로 분주하였다.4 웰당 세포 수. 각 웰에 다음을 함께 형질전환하였다. 0.8 µg 리포터 플라스미드, 50 nM miR-1298 mimic, 억제제 또는 해당 음성 대조군, 그리고 Lipofectamine 3000을 넣었습니다. 8시간 후, 배양액을 흡입하여 제거하고 다음을 첨가하여 세포를 용해했습니다. 100 µL 15분 동안 수동 용해 버퍼(passive lysis buffer, PLB)를 처리합니다. A 20 µL 용해물(lysate)의 일부를 흰색 분석 플레이트에 옮겼으며, 50 µL LAR II를 추가하고, 반딧불이 루시퍼라제(firefly luciferase) 활성을 측정하였다. 추가적인 50 µL 중단&Renilla를 측정하기 위해 Glo 시약을 첨가하였습니다. 마지막으로, 데이터 정규화를 완료하였습니다.
RT-qPCR
TRIzol 시약을 사용하여 배양 세포, 혈청 및 동결된 CRC 조직에서 RNA를 추출하였다. 간단히 설명하면, 세포는 10 cm 디쉬당 1 mL의 TRIzol에서 직접 용해시켰으며, 조직 조각은 얼음 위에서 TRIzol로 균질화하였다. 클로로포름 층 분리와 이소프로판올 침전 후, RNA 펠렛을 75% 에탄올로 세척하고 공기 건조시킨 뒤 RNase-free water에 용해하였다. microvolume spectrophotometer를 사용하여 RNA 순도와 농도를 측정하였다(A260/A280 = 1.8–2.1, A260/A230 > 2.0). mRNA 분석을 위해 gDNA Eraser로 잔류 게놈 DNA를 제거하였으며, oligo(dT)와 random hexamer를 포함한 PrimeScript RT Reagent Kit를 사용하여 500 ng의 RNA를 역전사하였다(37 °C에서 15 min, 85 °C에서 5 s). miRNA 분석을 위해 Mir-X miRNA First-Strand Synthesis Kit를 사용하여 miR-1298-5p 또는 U6에 특이적인 stem-loop 프라이머로 100 ng의 RNA를 역전사하였다(16 °C에서 30 min, 42 °C에서 30 min, 85 °C에서 5 s). 모든 실험군에는 No-RT 및 no-template 대조군을 포함하였다. cDNA는 적절히 희석하여 qPCR 전까지 −80 °C에 보관하였다. miR-1298 및 BMP7의 수준은 SYBR Green 화학법을 사용하여 정량하였다. miRNA와 mRNA의 표준화를 위해 각각 U6와 GAPDH를 내인성 대조군으로 사용하였다. 상대적 발현량은 비교 2−ΔΔCt 방법으로 계산하였다. 프라이머 서열(5′–3′)은 다음과 같다: miR-1298-forward: TCGGCAGGTTCATTCGGCTGTC, reverse: CTCAACTGGTGTCGTGGA; U6-forward: CTCGCTTCGGCAGCACA, reverse: AACGCTTCACGAATTTGCGT; BMP7-forward: CAAGAACCAGGAAGCCCTGC, reverse: TTCTTACAGGCCTGCCTCTGG; GAPDH-forward: GACATGCCGCCTGGAGAAAC, reverse: AGCCCAGGATGCCCTTTAGT. qPCR 반응 조건은 다음과 같다: 95 °C에서 2 min, 이어서 95 °C에서 30 s, 60 °C에서 30 s, 72 °C에서 60 s로 총 35회 반복하였다. 표준 곡선을 생성하기 위해 cDNA 템플릿을 단계별로 희석(5배)하였다. 증폭 효율 E는 E = (10-1/slope-1) x 100% 공식을 사용하여 계산하였다. 프라이머의 증폭 효율은 다음과 같이 계산되었다: EmiR-1298 = 102.1%, EBMP7 = 96.3%, EGAPDH = 100.3%, EU6 = 99.8%. 모든 프라이머는 90–110%의 허용 효율 범위를 충족하였다. 모든 RT-qPCR 실험은 3회의 독립적인 생물학적 반복 실험을 수행하였으며, 각 실험당 3회의 기술적 반복 실험을 진행하였다. U6와 GAPDH의 안정성은 geNorm 알고리즘을 사용하여 평가하였다. 두 유전자의 M 값 모두 권장 임계값인 1.5 미만으로 나타나 적합함을 확인하였다.
Cell counting kit-8 (CCK-8) 분석
SW480 및 HCT-116 세포를 100 µL의 완전 DMEM이 담긴 96-well plate에 well당 2 x 10³ cells로 분주하고 24시간 동안 배양하였다. transfection 후 48시간째에 plate를 37 °C에서 1시간 동안 배양하였다. microplate reader를 사용하여 450 nm에서 흡광도를 측정하였다. 그룹당 6개의 반복 well을 사용하였으며, 세포 없이 배지와 CCK-8만 포함된 blank 값을 차감하였다.
유세포 분석법
Annexin V-FITC/PI Apoptosis Detection Kit를 이용한 유세포 분석법으로 세포사멸을 평가하였다. 형질전환 48시간 후, SW480 및 HCT-116 세포를 트립신 처리하여 수확하고, 차가운 PBS로 2회 세척한 후 1x 결합 버퍼에 1 x 10⁶ cells/mL. 1 x 10의 분주량5 세포를 FACS 튜브로 옮긴 후, 다음으로 염색하였다. 5 µL Annexin V-FITC 및 5 µL 실온의 암소에서 PI로 15분 동안 처리한 후, 다음으로 희석하였습니다. 400 µL 측정 전 결합 버퍼(binding buffer)로 세척하였다. 보정(compensation) 및 게이트 설정(gate setting)을 위해 염색하지 않은 대조군, 단일 염색 대조군, 그리고 스타우로스포린(staurosporine) 처리 양성 대조군을 포함하였다. 데이터 분석에는 FlowJo 소프트웨어(FlowJo 10.2)를 이용하였다.
세포 이동 및 침윤
세포 이동 및 침윤은 8 µm 공극 크기의 PET 막이 있는 24-well Transwell 챔버를 사용하여 평가하였다. 침윤 분석의 경우, 세포 파종 전 상단 막을 37 °C에서 50 µL의 Matrigel로 2시간 동안 사전 코팅한 후, 무혈청 DMEM으로 30분 동안 재수화시켰으며, 이동 분석에서는 이 코팅 단계를 생략하였다. 형질전환된 SW480 및 HCT-116 세포를 무혈청 DMEM에서 12시간 동안 기아 상태로 유지한 후, 0.1% BSA가 함유된 100 µL의 무혈청 DMEM에 부유된 2 x 10⁴개의 세포를 상단 챔버에 파종하였다. 하단 챔버에는 화학 유인 물질로서 10% FBS가 함유된 600 µL DMEM을 채웠다. 37 °C에서 24시간(이동) 또는 48시간(침윤) 배양 후, 상단 표면에 이동하지 않은 세포를 면봉으로 제거하였다. 하단 표면의 세포를 4% 파라포름알데히드로 15분 동안 고정하고, 0.1% crystal violet으로 20분 동안 염색한 후, 세척하고 자연 건조시켰다. 막당 5개의 임의 영역을 도립 현미경을 사용하여 200배 배율로 촬영하였으며, 두 명의 독립적인 관찰자가 수동으로 세포 수를 측정하였다.
웨스턴 블롯
프로테아제 억제제 칵테일이 첨가된 RIPA 용해 완충액으로 세포를 균질화하여 총 세포 단백질을 추출하였다. 단백질 농도는 BCA Protein Assay Kit를 사용하여 측정하였다. 동일한 양의 단백질 용해물(50 µg)을 10% SDS-PAGE로 분리한 후 PVDF 막으로 전이시켰다. 2% BSA로 비특이적 결합 부위를 블로킹한 후, BMP7(1:1,000) 및 GAPDH(1:2,000)에 대한 1차 항체를 사용하여 37 °C에서 90분 동안 반응시켰다. PBST로 3회 세척한 후, 막을 서양고추냉이 퍼옥시다아제(HRP)가 결합된 2차 항체와 함께 배양하였다. 단백질 밴드는 ECL 화학발광 시약을 사용하여 시각화하였다.
통계 분석
데이터 분석에는 SPSS 27.0이 사용되었다. 별도의 언급이 없는 한 모든 수치는 평균 ± 표준편차(SD)로 표기하였다. 정규 분포 여부를 확인하기 위해 Shapiro-Wilk 검정을 적용하였다. 두 그룹 간의 집단 간 차이는 비쌍체 꼬리 양방향 Student's t-test를 통해 결정하였다. CRC 종양 조직과 인접 비암성 조직 간의 miR-1298 발현 비교는 쌍체 Student's t-test를 사용하여 수행하였다. 모수 검정을 실시하기 전, 분산의 동질성을 평가하기 위해 Levene 검정을 활용하였다. 다중 그룹 비교의 경우, 모수 데이터는 일원 분산 분석(one-way ANOVA)을 통해 분석하였으며, 사후 쌍별 비교에는 Tukey's HSD 검정을 사용하였다. CRC 조직 내 miR-1298과 BMP7 간의 상관관계는 Pearson 상관 분석을 통해 평가하였다. p < 0.05를 통계적 유의성 기준으로 간주하였다.
결과
CRC에서 miR-1298이 상당히 감소되었다.
CRC 조직에서 miR-1298의 수치는 인접한 비암성 조직보다 낮았습니다(그림 1A림프절 전이 분석 결과, 림프절 전이가 있는 환자의 miR-1298 수치가 림프절 전이가 없는 환자보다 더 낮은 것으로 나타났다(그림 1B). 종양 크기가 다음과 같았던 대장암(CRC) 환자들에서 > 5 cm인 환자에서 miR-1298의 발현 수준이 종양 크기가 5 cm 이하인 환자보다 유의하게 낮았습니다 (p = 0.017; 그림 1C). 종양 단계가 진행됨에 따라 miR-1298은 감소하였으며, 1단계와 3단계 사이에 유의미한 차이가 있었다 (p = 0.047) 및 1단계와 4단계 사이(p = 0.009; 그림 1D). 대장암(CRC) 환자의 혈청에서 miR-1298은 상당히 감소되어 있었다(그림 1E), 그리고 ROC 곡선 분석 결과 AUC는 0.889였으며, 민감도는 78.82%, 특이도는 83.10%로 나타났다(그림 1F).
miR-1298의 중앙값 발현 수준을 기준으로, 대장암(CRC) 환자들을 저발현군과 고발현군으로 나누었습니다. 대장암 환자에서 miR-1298은 TNM 병기(p < 0.001), 종양 크기(p = 0.003), 림프절 전이 (p = 0.003), 그리고 종양 분화도(p = 0.035). 하지만 miR-1298은 연령과 관련이 없었다(p = 0.832) 또는 성별 (p = 0.165) (표 1). Kaplan-Meier 분석 결과, miR-1298 발현 수준이 낮은 대장암(CRC) 환자는 miR-1298 발현 수준이 높은 환자보다 전체 생존 기간이 더 짧은 것으로 나타났다(log-rank p = 0.039; 그림 1G). Cox 회귀 분석 결과, miR-1298 발현의 감소가 대장암(CRC) 환자의 잠재적인 예후 지표가 될 수 있음이 나타났다. (p = 0.035, 표 2).
miR-1298은 CRC 세포의 증식을 억제하고 세포 사멸을 촉진했다
SW480 세포에서 miR-1298 mimic 또는 inhibitor를 통한 형질전환은 miR-1298 발현을 효과적으로 변화시켰으며, inhibitor NC 그룹과 miR-1298 inhibitor 그룹 사이에 유의미한 차이가 나타났다 (p = 0.005; 그림 2A). miR-1298의 과발현은 세포 생존력을 감소시키고 세포 사멸을 촉진한 반면, miR-1298의 억제는 세포 생존력을 증가시키고 세포 사멸을 감소시켰다. 세포 사멸은 inhibitor NC 그룹과 miR-1298 inhibitor 그룹 간에 유의미한 차이를 보였다 (p = 0.008; 그림 2B,C). HCT-116 세포에서도 형질전환을 통해 miR-1298 발현이 유사하게 변화되었으며 (p = 0.002; 그림 2D), inhibitor NC 그룹과 miR-1298 inhibitor 그룹 간에 세포 생존력 (p = 0.007; 그림 2E) 및 세포 사멸 (p = 0.005; 그림 2F)에서 유의미한 차이가 관찰되었다.
miR-1298은 CRC 세포의 이동 및 침윤을 억제하였다
miR-1298을 과발현시키면 이동 및 침윤하는 SW480 및 HCT-116 세포의 수가 감소한 반면, miR-1298을 억제하면 세포 이동 및 침윤이 증가하였다(Figure 3A–D). SW480 세포에서 침윤 세포의 수는 mimic NC 그룹보다 miR-1298 mimic 그룹에서 상당히 더 낮게 나타났다(p = 0.004; Figure 3B).
BMP7은 CRC에서 miR-1298의 표적이었다
TargetScan 분석 결과, BMP7이 miR-1298의 표적일 가능성이 있음을 확인하였다 (그림 4A). SW480 및 HCT-116 세포에서의 이중 루시퍼레이즈 리포터 분석(Dual-luciferase reporter assays) 결과, miR-1298의 과발현 또는 억제는 BMP7 Wt 리포터의 루시퍼레이즈 활성은 변화시켰으나, BMP7 Mut 리포터의 활성에는 영향을 주지 않았다 (그림 4B,C). HCT-116 세포에서 BMP7 Wt 리포터의 루시퍼레이즈 활성은 mimic NC 그룹에 비해 miR-1298 mimic 그룹에서 유의하게 낮았다 (p = 0.002; 그림 4C). CRC 조직에서 BMP7의 발현은 상당히 증가되어 있었다 (그림 4D). 또한, BMP7과 miR-1298은 음의 상관관계를 나타냈다 (그림 4E). SW480 세포와 HCT-116 세포에서 miR-1298의 과발현은 RNA 및 단백질 수준 모두에서 BMP7을 억제한 반면, miR-1298의 억제는 BMP7의 발현을 상향 조절하였다 (그림 4F,G).
miR-1298은 BMP7 조절을 통해 CRC에서 종양 억제 효과를 나타낼 수 있다
SW480 세포에서 BMP7 발현의 성공적인 조절이 확인되었다 (그림 5A). BMP7 과발현은 miR-1298 과발현으로 유도된 세포 생존력 감소와 세포 사멸 증가를 부분적으로 되돌린 반면, BMP7 넉다운은 세포 생존력을 더욱 감소시키고 세포 사멸을 증가시켰다 (그림 5B,C). HCT-116 세포에서도 BMP7 발현의 성공적인 조절이 확인되었으며 (그림 5D), 세포 생존력과 세포 사멸에 상응하는 효과가 나타났다 (그림 5E,F). SW480 세포에서 BMP7 발현과 세포 생존력은 miR-1298 mimic + si-BMP7 군이 miR-1298 mimic + si-NC 군보다 유의하게 낮았다 (p = 0.002 및 p = 0.005; 그림 5A,B). 세포 사멸은 miR-1298 mimic + OE-BMP7 군과 miR-1298 mimic + OE-NC 군 사이에 유의한 차이가 있었다 (p = 0.001; 그림 5C). HCT-116 세포에서 세포 생존력은 miR-1298 mimic + si-BMP7 군이 miR-1298 mimic + si-NC 군보다 유의하게 낮았다 (p = 0.002; 그림 5E). 고발현된 BMP7은 CRC 세포의 이동 및 침윤에 대한 miR-1298의 억제 효과를 부분적으로 되돌린 반면, BMP7 넉다운은 이러한 억제 효과를 강화했다 (그림 6A–D). SW480 세포에서 BMP7 넉다운은 si-NC 군에 비해 이동 및 침윤 세포 수를 유의하게 감소시켰다 (p = 0.003 및 p = 0.020; 그림 6A,B). HCT-116 세포에서 BMP7 과발현은 OE-NC 군에 비해 이동 세포 수를 유의하게 변화시켰으며 (p = 0.030; 그림 6C), BMP7 넉다운은 si-NC 군에 비해 침윤 세포 수를 유의하게 감소시켰다 (p = 0.007; 그림 6D).
데이터 가용성:
본 연구의 결과를 뒷받침하는 데이터는 보충 파일(Supplementary File)로 제공됩니다.
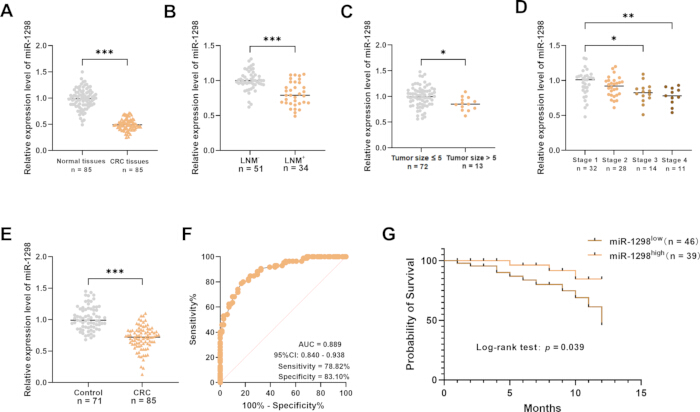
그림 1대장암(CRC) 조직 내 miR-1298의 발현. (A) 대장암(CRC) 조직 및 인접 비암성 조직에서의 miR-1298 상대적 발현량. (B) 림프절 전이가 있는 (LNM+) 환자와 림프절 전이가 없는 (LNM−) 환자의 대장암(CRC) 조직 내 miR-1298의 상대적 발현량. (C) 종양 크기에 따른 CRC 조직 내 miR-1298의 상대적 발현량. (D종양 단계에 따른 대장암(CRC) 조직 내 miR-1298의 상대적 발현량.E) 대장암(CRC) 환자와 건강한 대조군에서의 혈청 miR-1298 상대적 발현량. (F) 대장암(CRC) 환자와 건강한 대조군을 구분하는 혈청 miR-1298의 수신자 조작 특성(ROC) 곡선. (G) miR-1298 발현 수준(저발현 및 고발현)에 따른 대장암(CRC) 환자의 카플란-마이어(Kaplan–Meier) 전체 생존 곡선. *p < 0.05; **p < 0.01; ***p < 0.001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
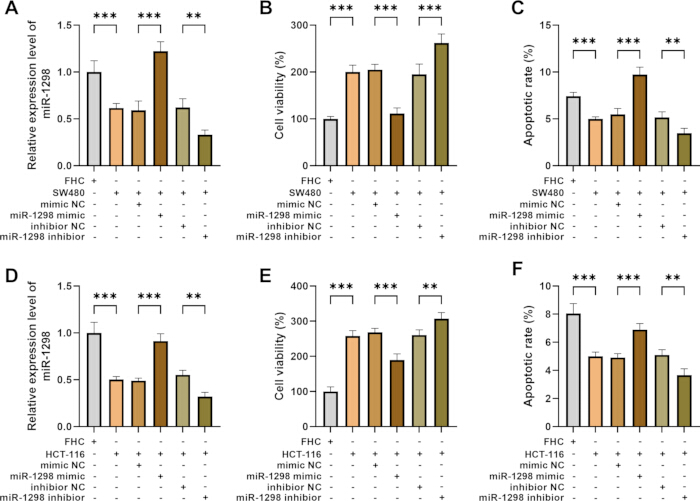
그림 2: CRC 세포의 증식 및 세포사멸에 미치는 miR-1298의 영향. (A>) miR-1298 mimic, mimic NC, miR-1298 inhibitor 또는 inhibitor NC를 트랜스펙션한 후 FHC 및 SW480 세포에서 miR-1298의 상대적 발현량. (B>) miR-1298 과발현 또는 억제 후 SW480 세포의 세포 생존율. (C>) miR-1298 과발현 또는 억제 후 SW480 세포의 세포사멸. (D>) miR-1298 mimic, mimic NC, miR-1298 inhibitor 또는 inhibitor NC를 트랜스펙션한 후 FHC 및 HCT-116 세포에서 miR-1298의 상대적 발현량. (E>) miR-1298 과발현 또는 억제 후 HCT-116 세포의 세포 생존율. (F>) miR-1298 과발현 또는 억제 후 HCT-116 세포의 세포사멸. 데이터는 평균 ± SD로 표시됨. 오차 막대는 SD를 나타냄. **p < 0.01; ***p < 0.001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
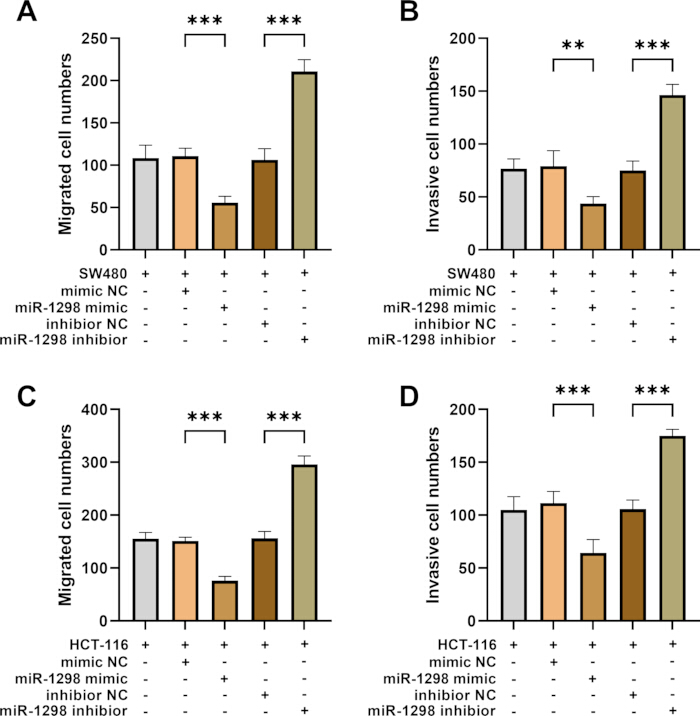
그림 3: miR-1298이 CRC 세포의 이동 및 침습에 미치는 영향. (A) miR-1298 mimic, mimic NC, miR-1298 inhibitor 또는 inhibitor NC를 transfection한 SW480 세포의 이동 세포 수. (B) miR-1298 mimic, mimic NC, miR-1298 inhibitor 또는 inhibitor NC를 transfection한 SW480 세포의 침습 세포 수. (C) miR-1298 mimic, mimic NC, miR-1298 inhibitor 또는 inhibitor NC를 transfection한 HCT-116 세포의 이동 세포 수. (D) miR-1298 mimic, mimic NC, miR-1298 inhibitor 또는 inhibitor NC를 transfection한 HCT-116 세포의 침습 세포 수. 데이터는 mean ± SD로 표시됨. 오차 막대는 SD를 나타냄. **p < 0.01; ***p < 0.001. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
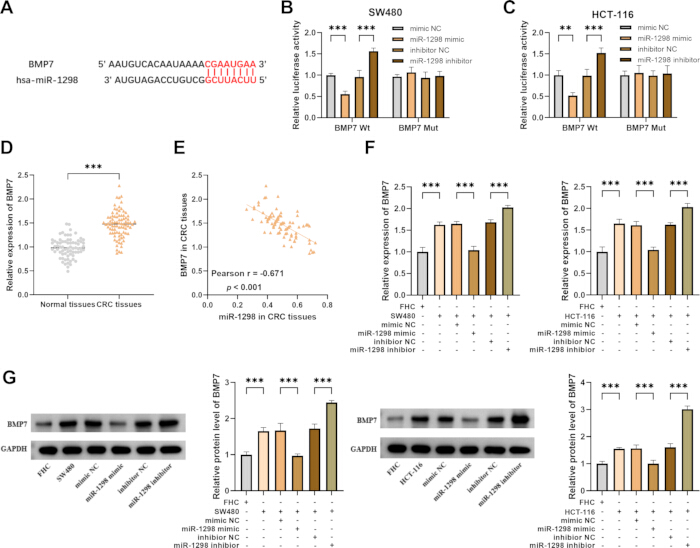
그림 4: miR-1298과 BMP7 간의 표적 관계. (A) miR-1298과 BMP7 3′ UTR 사이의 예측된 결합 부위. (B) SW480 세포에서 miR-1298 과발현 또는 억제 후 BMP7 Wt 및 BMP7 Mut 리포터의 상대적 루시퍼레이스 활성. (C) HCT-116 세포에서 miR-1298 과발현 또는 억제 후 BMP7 Wt 및 BMP7 Mut 리포터의 상대적 루시퍼레이스 활성. (D) CRC 조직 및 인접 비암성 조직에서 BMP7의 상대적 발현. (E) CRC 조직에서 miR-1298과 BMP7 발현 간의 상관관계. (F) miR-1298 mimic, mimic NC, miR-1298 inhibitor 또는 inhibitor NC를 트랜스펙션한 후 SW480 및 HCT-116 세포에서의 상대적 BMP7 발현. (G) miR-1298 mimic, mimic NC, miR-1298 inhibitor 또는 inhibitor NC를 트랜스펙션한 후 SW480 및 HCT-116 세포에서의 상대적 BMP7 단백질 수준. **p < 0.01; ***p < 0.001. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
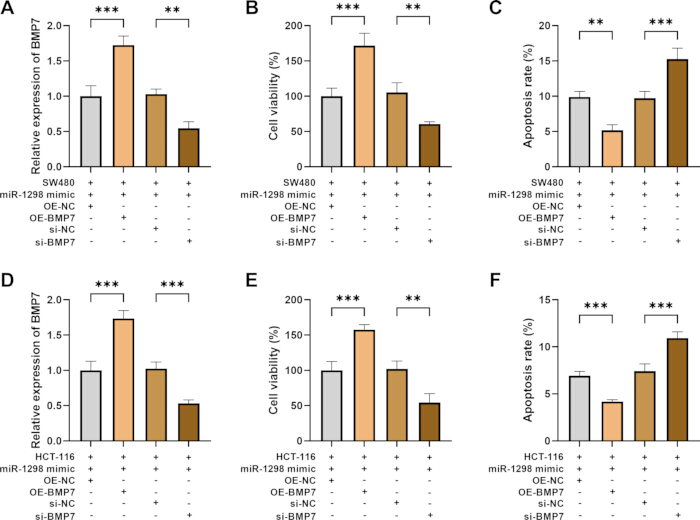
그림 5: CRC 세포의 증식 및 아포토시스에 미치는 miR-1298과 BMP7의 공동 조절 효과. SW480 및 HCT-116 세포에 miR-1298 mimic과 OE-NC, OE-BMP7, si-NC 또는 si-BMP7를 공동 형질전환시켰다. (A) SW480 세포에서의 상대적인 BMP7 발현량. (B) SW480 세포의 세포 생존율. (C) SW480 세포의 아포토시스. (D) HCT-116 세포에서의 상대적인 BMP7 발현량. (E) HCT-116 세포의 세포 생존율. (F) HCT-116 세포의 아포토시스. 데이터는 평균 ± SD로 표시되었다. 오차 막대는 SD를 나타낸다. **p < 0.01; ***p < 0.001. 약어: OE-NC = 과발현 음성 대조군; OE-BMP7 = BMP7 과발현; si-NC = 소간섭 RNA 음성 대조군; si-BMP7 = BMP7 표적 소간섭 RNA. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
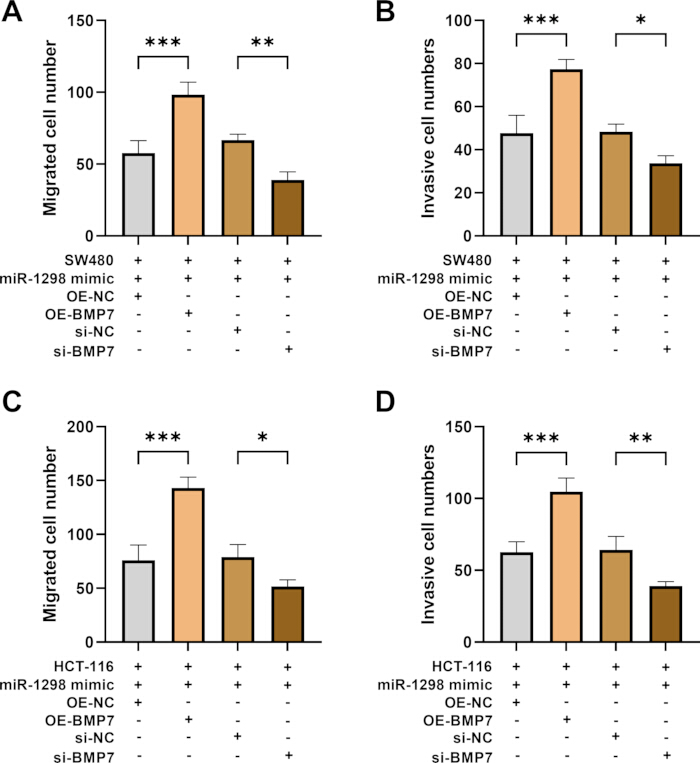
그림 6: CRC 세포의 이동 및 침습에 대한 miR-1298과 BMP7의 공동 조절. SW480 및 HCT-116 세포에 miR-1298 mimic과 OE-NC, OE-BMP7, si-NC 또는 si-BMP7를 공동 전이시켰다. (A) SW480 세포의 이동된 세포 수. (B) SW480 세포의 침습된 세포 수. (C) HCT-116 세포의 이동된 세포 수. (D) HCT-116 세포의 침습된 세포 수. 데이터는 평균 ± SD로 표시되었다. 오차 막대는 SD를 나타낸다. *p < 0.05; **p < 0.01; ***p < 0.001. 약어: OE-NC = 과발현 음성 대조군; OE-BMP7 = BMP7 과발현; si-NC = 소간섭 RNA 음성 대조군; si-BMP7 = BMP7 표적 소간섭 RNA. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 변수 | 전체 | miR-1298 | p 값 | |
| (n = 85) | 낮음 (n = 46) | 높음 (n = 39) | ||
| 연령 (years) | ||||
| ≤50 | 49 | 27 | 22 | 0.832 |
| >50 | 36 | 19 | 17 | |
| 성별 (남성/여성) | ||||
| 남성 | 44 | 27 | 17 | 0.165 |
| 여성 | 41 | 19 | 22 | |
| TNM 병기 | ||||
| 1–2 | 60 | 41 | 19 | <0.001*** |
| 3–4 | 25 | 5 | 20 | |
| 종양 크기 (cm) | ||||
| ≤5 | 72 | 34 | 38 | 0.003** |
| >5 | 13 | 12 | 1 | |
| 림프절 전이 | ||||
| 있음 | 34 | 25 | 9 | 0.003** |
| 없음 | 51 | 21 | 30 | |
| 종양 분화도 | ||||
| 저등급 | 53 | 24 | 29 | 0.035* |
| 고등급 | 32 | 22 | 10 | |
표 1: CRC 환자의 임상병리학적 특징과 miR-1298 발현 수준 간의 연관성. 환자를 miR-1298 발현량이 낮은 그룹(n = 46)과 높은 그룹(n = 39)으로 분류하여, miR-1298 발현과 임상병리학적 특성 간의 연관성을 평가하였다. *p < 0.05; **p < 0.01; ***p < 0.001. 약어: CRC = 대장암; TNM = 종양 림프절 전이.
| 변수 | 위험비 | 95% CI | p 값 | |
| 하한값 | 상한값 | |||
| 연령 | 0.776 | 0.186 | 3.242 | 0.728 |
| 성별 | 0.614 | 0.152 | 2.474 | 0.492 |
| TNM 병기 | 4.62 | 1.181 | 18.078 | 0.028* |
| 종양 크기 | 8.078 | 1.833 | 35.587 | 0.006** |
| 림프절 전이 | 6.584 | 1.134 | 38.245 | 0.036* |
| 종양 분화도 | 6.392 | 1.748 | 23.377 | 0.005** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
표 2: CRC 환자의 예후 인자에 대한 Cox 회귀 분석.CRC 환자의 임상병리학적 특성 및 miR-1298 발현과 예후 사이의 연관성을 평가하기 위해 Cox 회귀 분석을 수행하였습니다. *p < 0.05; **p < 0.01. 약어: CI = 신뢰 구간; CRC = 대장암; TNM = 종양-림프절-전이.
보충 파일. 여기에서 이 파일을 다운로드하십시오.
토론
대장암(CRC)은 높은 발생률과 사망률로 인해 개인과 사회에 상당한 부담을 줍니다. 대장내시경과 같은 선별 검사 프로그램에도 불구하고, 여전히 많은 대장암 환자가 진행된 단계에서 진단되고 있으며, 이는 조기 진단을 위한 보다 효과적이고 비침습적인 바이오마커의 절실한 필요성을 강조합니다11. 또한, 전이성 대장암의 예후는 여전히 좋지 않으며, 약물 내성과 질병 재발이 비교적 흔하게 나타납니다12. 따라서 대장암의 발병, 진행 및 전이에 내재된 분자적 메커니즘을 철저히 이해하는 것은 새로운 표적 치료제를 개발하고 치료 내성을 극복하는 데 필수적입니다. 대장암은 이질성이 매우 높아, 비슷해 보이는 종양이라도 행동 양식에서 상당한 차이를 보일 수 있습니다13. 그러므로 조기 진단을 개선하고, 맞춤형 치료를 발전시키며, 궁극적으로 대장암 환자의 생존율을 높이기 위해 지속적인 연구가 중요합니다.
miRNA의 이상은 대장암(CRC)의 발생, 병기 결정 및 예후와 관련이 있는 것으로 알려져 있습니다14. miRNA는 체액 내에서 안정성이 높기 때문에 비침습적 진단 및 예후 바이오마커로서의 큰 잠재력을 가지고 있습니다15. 본 연구에서 miR-1298은 대장암 조직에서 발현이 감소되어 있었으며, 그 발현 수준은 TNM 병기 및 림프절 전이와 연관되어 있어 대장암 진행에 잠재적인 역할을 할 가능성을 시사했습니다. 특히, 본 연구는 임상 대장암 코호트에서 miR-1298의 발현을 종합적으로 특성화하고, TNM 병기, 림프절 전이, 종양 분화도를 포함한 주요 임상 병리학적 파라미터와의 연관성을 입증한 첫 번째 연구입니다.
증식, 세포사멸, 이동 및 침윤을 포함한 핵심 세포 과정의 조절 장애는 암의 발생과 사망률을 결정짓는 근본적인 동인입니다16. 통제되지 않는 증식은 종양 세포의 초기 클론 확장을 가능하게 하며, 동시에 세포사멸의 회피는 이러한 세포들이 내부 손상이나 외부 스트레스 상황에서도 생존하고 축적될 수 있게 합니다. 이러한 결합은 원발성 종양의 성장으로 이어집니다17,18. 따라서 이러한 특성의 분자적 동인을 표적으로 하는 치료법은 대장암(CRC)의 효과적인 치료제를 개발하는 데 핵심적입니다. miRNA는 암세포의 악성 표현형을 조절함으로써 종양 발달에 기여합니다19. miR-1298이 그러한 miRNA 중 하나입니다. 예를 들어, miR-1298-5p의 발현 감소는 위암의 진행을 촉진합니다20. 발현이 증가된 miR-1298은 유방암 세포의 증식을 억제하고, 세포사멸을 유도하며, 세포 주기 정지를 일으킵니다21. 또한, miR-1298-5p는 방광암에서도 종양 억제제로 작용합니다22. 본 연구의 결과는 miR-1298의 과발현이 증식, 이동 및 침윤을 억제하고 세포사멸을 증가시켰음을 나타내며, 이는 miR-1298이 대장암의 악성 표현형을 억제할 수 있음을 시사합니다. 특히, 본 연구는 대장암 세포의 주요 악성 표현형을 체계적으로 평가함으로써 이전 보고보다 범위를 확장하여, 이 특정 암종에서 miR-1298의 기능적 특성을 보다 완전하게 규명하였습니다.
종양 촉진 효과 측면에서, BMP7은 PI3K/AKT와 같은 신호 전달 경로를 조절함으로써 암세포의 증식을 촉진할 수 있습니다23. BMP7은 Bcl-2와 같은 항-세포사멸 인자의 수준을 조절하여 암세포에 세포사멸 저항성을 부여합니다24. 또한, BMP7은 주로 상피-間엽 이행(EMT)을 유도함으로써 암세포의 이동과 침윤을 강화합니다25. 암 촉진에 관여하는 BMP7의 이러한 특성은 CRC 조직에서 BMP7이 증가했다는 우리의 발견과 일치합니다. 생정보학 분석 결과 BMP7이 miR-1298의 표적이 될 수 있음이 시사되었으며, miR-1298과 BMP7 사이의 예측 결합 부위가 확인되었습니다. 나아가, 구조 실험(rescue experiments)을 통해 BMP7이 CRC에서 miR-1298의 기능적 매개체로 작용할 가능성이 높음이 나타났습니다. 암에서 BMP7과 관련된 신호 전달 경로를 고려하여, 우리는 miR-1298/BMP7 축이 CRC 세포의 거동을 제어하는 하위 신호 전달 경로(SMAD, PI3K/AKT, EMT)를 조절한다는 가설을 추가로 세웠습니다. 결정적으로, 우리는 루시퍼레이스 리포터 분석(luciferase reporter assays)을 통해 miR-1298이 BMP7의 3′ UTR에 직접 결합함을 확인함으로써 이 예측을 실험적으로 검증했습니다. 또한, 구조 실험을 통해 BMP7의 복구가 miR-1298 과발현의 종양 억제 효과를 부분적으로 역전시킴을 입증하여, BMP7이 CRC에서 miR-1298의 하위 매개체라는 기능적 근거를 제공했습니다. 우리가 알고 있는 바로는, 본 연구는 대장암에서 miR-1298/BMP7 조절 축을 확립한 최초의 연구입니다.
기전적 통찰뿐만 아니라, 본 연구는 miR-1298의 임상적 유용성을 뒷받침하는 중개 연구 증거를 제공하였습니다. ROC 곡선 분석 결과, miR-1298이 CRC에서 진단적 가치를 가질 수 있음이 입증되었습니다. 생존 분석을 통해 miR-1298의 낮은 발현이 더 나쁜 예후와 관련이 있음이 추가로 밝혀졌으며, Cox 회귀 분석 결과 miR-1298의 감소가 CRC의 예후 인자가 될 수 있음이 나타났습니다. 이는 CRC의 진단 및 예후 바이오마커로서 miR-1298이 가진 잠재적 가치를 뒷받침합니다.
본 연구에는 몇 가지 한계점이 있습니다. 임상 시료와 관련하여, 본 연구는 주로 단일 기관의 데이터를 활용하였으므로, CRC에서 miR-1298의 종양 억제 역할을 더욱 강력하게 확인하기 위해서는 향후 다기관 검증 연구가 필요합니다. 본 연구는 in vitro 세포 실험에 집중하여 in vivo 종양 미세환경의 복잡성을 충분히 반영하지 못했습니다. 제노그라프트(xenograft) 종양 모델의 부재는 본 연구의 한계점 중 하나였습니다. 향후 연구에서는 종양 미세환경 내 miR-1298/BMP7 축의 역할을 더욱 명확히 규명하기 위해 in vivo 검증이 포함되어야 합니다. 또한, 향후 실험에서 생물정보학적 예측과 in vitro 및 in vivo 실험을 통해 miR-1298/BMP7 축의 상위 및 하위 경로를 추가로 검증할 수 있을 것입니다. 추적 관찰 기간이 상대적으로 짧아 장기 생존율 추정의 성숙도가 제한적이었습니다. Kaplan–Meier 및 Cox 회귀 분석을 수행하였으나, 결과가 상대적으로 짧은 추적 관찰 기간의 영향을 받았을 수 있습니다. 현재 CRC에서 miR-1298의 예후적 가치를 검증하기 위해 추적 관찰 기간을 연장하여 진행 중입니다. 아울러, CRC 세포의 행동을 제어하는 miR-1298/BMP7 축에 의해 조절되는 하위 신호 전달 경로(SMAD, PI3K/AKT, EMT)는 본 연구에서 실험적으로 검증되지 않았으므로 추가적인 탐색이 필요합니다. 본 연구에서는 역구원 실험(miR-1298 억제제 + BMP7 siRNA)을 수행하지 않았습니다. 이러한 실험은 BMP7 넉다운이 miR-1298 억제의 종양 촉진 효과를 되돌릴 수 있는지에 대한 보완적 증거를 제공할 것입니다. 이러한 유형의 구원 실험이 없었다는 점은 기전적 결론의 근거를 약화시킵니다. CRC에서 miR-1298/BMP7 축의 기능을 완전히 확립하기 위해서는 이러한 역구원 실험 설계와 in vivo 검증을 포함하는 향후 연구가 필요합니다.
요약하자면, miR-1298은 CRC 진행과 연관되어 있을 수 있습니다. 기능적으로 miR-1298은 CRC 세포의 증식, 침습 및 이동을 억제할 수 있습니다. BMP7은 CRC에서 miR-1298의 잠재적인 기능적 매개체일 수 있습니다.
공개 사항
저자들은 공개해야 할 관련 재정적 또는 비재정적 이해관계가 없습니다.
감사의 글
저자들은 본 원고의 작성 과정에서 어떠한 자금, 보조금 또는 기타 지원을 받지 않았음을 밝힙니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.1% 크리스탈 바이올렛 용액 | Sigma-Aldrich | C0775 | |
| 10% SDS-PAGE 키트 | Epizyme | PG112 | |
| 4% 파라포름알데히드 | Sigma-Aldrich | P6148 | |
| 6-웰 세포 배양 플레이트 | Corning | 3516 | |
| 96-웰 세포 배양 플레이트 | Corning | 3599 | |
| Annexin V-FITC/PI 세포사멸 검출 키트 | 다양함 (예: Elabscience, BD Biosciences) | E-CK-A211 (Elabscience) 또는 556547 (BD) | |
| 항-BMP7 | Abcam | ab176707 | |
| 항-GAPDH | Abcam | ab181602 | |
| BCA 키트 | 상온 | C503021 | |
| BMP7 돌연변이체 3‘-UTR 리포터 플라스미드 | 사용자 정의 제작 (pmirGLO로 클로닝됨) | 사용자 정의 | |
| BMP7 프라이머 | Sangon Biotech (중국 상하이) | 맞춤형 합성 | |
| BMP7 야생형 3‘-UTR 리포터 플라스미드 | 사용자 정의 제작(pmirGLO로 클로닝됨) | 사용자 정의 | |
| 세포 계수 키트-8 (CCK-8) | Dojindo (일본) | CK04 | |
| 세포 배양 플라스크 (T-25) | Corning | 430639 | |
| DMEM (Dulbecco‘수정된 이글 배지(Modified Eagle Medium) | Invitrogen (Thermo Fisher Scientific) | 11995065 | |
| 소태아혈청 (FBS) | Invitrogen (Thermo Fisher Scientific) | 16140071 | |
| FHC 세포주 (정상 인간 결장 상피세포) | ATCC | CRL-1831 | |
| 유세포 분석기 | BD Biosciences | FACSCanto™ II | |
| FlowJo V10 소프트웨어 | FlowJo, LLC | — | |
| GAPDH 프라이머 (mRNA용 내인성 대조군) | Sangon Biotech (중국 상하이) | 맞춤형 합성 | |
| HCT-116 세포주 (인간 대장암) | ATCC | CCL-247 | |
| HRP-결합 2차 항체 | Beyotime | A0208 | |
| 도립 현미경 | Nikon (또는 동등 제품) | Eclipse Ts2 | |
| Lipofectamin 3000 형질도입 시약 | Invitrogen (Thermo Fisher Scientific) | L3000015 | |
| 루시페레이스 분석 시스템 | Promega | E1500 | |
| Matrigel 기저막 매트릭스 | Corning | 354230 | |
| 마이크로플레이트 리더 | BioTek (Agilent) | 시너지 H1 | |
| miR-1298 억제제 | GenePharma (중국 상하이) | 맞춤형 (주문 시 합성) | |
| miR-1298 mimic | GenePharma (중국 상하이) | 맞춤형 (주문 시 합성) | |
| miR-1298 프라이머 | Sangon Biotech (중국 상하이) | 맞춤형 합성 | |
| Mir-X miRNA 제1가닥 합성 키트 | Takara Bio | 638313 | |
| OE-NC | GenePharma (중국 상하이) | 맞춤형 (주문 시 합성) | |
| Opti-MEM | Gibco | 31985070 | |
| 수동 용해 버퍼 | Promega | E194A | |
| pcDNA3.1 벡터 (공벡터 대조군) | Invitrogen (Thermo Fisher Scientific) | V79020 | |
| pcDNA3.1-BMP7 (OE-BMP7 과발현 플라스미드) | GenePharma (중국 상하이) | 맞춤 제작(주문 시 합성) | |
| pmirGLO 이중 루시퍼레이즈 miRNA 표적 발현 벡터 | Promega | E1330 | |
| PMSF | Beyotime | ST506 | |
| PrimeScript RT Reagent Kit (Perfect Real Time) | Takara (일본) | RR037A | |
| gDNA Eraser 포함 PrimeScript RT reagent Kit | Takara Bio | RR047A | |
| 프로테아제 억제제 칵테일 | 써모(Thermo) | 78429 | |
| PVDF | 압신 | abs935 | |
| RIPA 완충액 | Abcam | ab156034 | |
| RNase-free 마이크로원심분리 튜브 (1.5 mL) | Axygen (Corning) | MCT-150-C | |
| RNase-free 피펫 팁 | Axygen (Corning) | T-300 (10 µL), T-200-Y (200 µL), T-1000-B (1000 µL) | |
| si-BMP7 | GenePharma (중국 상하이) | 맞춤형 (주문 시 합성) | |
| si-NC | GenePharma (중국 상하이) | 주문 제작 (주문 시 합성) | |
| 스타우로스포린 (세포사멸 양성 대조군) | Sigma-Aldrich | S5921 | |
| SW480 세포주 (인간 대장 선암종) | ATCC | CCL-228 | |
| SYBR Green qPCR 마스터 믹스 | Takara (일본) | RR036A | |
| Transwell 챔버 (24-웰, 8.0 µm 공극 크기) | Corning (Costar) | 3422 | |
| TRIzol 시약 | Invitrogen (Thermo Fisher Scientific) | 15596026 | |
| U6 프라이머 (miRNA의 내인성 대조군) | Sangon Biotech (중국 상하이) | 맞춤 합성 |
참고문헌
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.