본 프로토콜에서는 알팔파(Medicago sativa L.) 줄기 횡단면에서 리그닌과 펙틴 세포벽 성분의 침착을 시각화합니다. 본 연구의 목적은 바람직한 줄기 소화율 특성을 가진 새로운 알팔파 라인을 개발하기 위해 표적이 될 수 있는 줄기의 특정 조직을 식별하는 것입니다.
방법 논문
알팔파(Medicago sativa L.) 줄기의 선택적 세포벽 성분에 대한 반추위액 In vitro 배양 및 조직학적 염색
이 논문에서
요약
초록
식물이 성장함에 따라 세포벽 성분이 축적되면 반추동물의 사료 영양가가 제한됩니다. 특히, 식물 조직 내의 리그닌 침착은 세포벽 탄수화물인 셀룰로오스와 헤미셀룰로오스의 분해를 방해하여, 사료로부터 얻을 수 있는 에너지 양을 감소시킵니다. 반면, 세포벽의 소화율이 높은 펙틴 성분은 쉽게 분해될 수 있습니다. 다양한 줄기 세포 유형에서의 리그닌 및 펙틴 침착에 관한 정보는 알팔파 계통 간의 줄기 소화율 차이를 일으키는 요인에 대한 기전적 통찰력을 제공할 수 있습니다. 반추위액 내에서 줄기 횡단면을 in vitro 배양하면 줄기 조직이 반추위 내에서 겪는 과정을 모사할 수 있습니다. 이 방법은 조직학적 염색 및 현미경 관찰과 결합하여, 시간에 따른 조직 분해 과정의 변화와 줄기 내 리그닌 및 펙틴의 위치를 시각화할 수 있게 합니다. Wiesner 염색은 리그닌의 guaiacyl (G) 알데히드 단위와 반응하여 이를 푸크시아색으로 염색합니다. 마찬가지로, ruthenium red는 펙틴의 카복실기와 상호작용하여 줄기 내 펙틴을 분홍색에서 오렌지색, 갈색 범위의 색조로 염색합니다. 본 프로토콜에서는 반추위 미생물에 노출시킨 후 알팔파 줄기 횡단면을 소화시키고, 이어 염색을 통해 세포벽 내의 리그닌 및 펙틴 패턴을 시각화하는 방법을 설명합니다. 이 방법은 리그닌과 펙틴의 존재 또는 부재 여부를 통해 줄기 조직을 식별하는 데 사용할 수 있으며, 알팔파 계통 간의 비교 분석을 용이하게 합니다.
서론
모든 식물 세포는 세포벽으로 둘러싸여 있습니다. 셀룰로스, 헤미셀룰로스, 리그닌, 펙틴은 세포벽의 구성 성분이며, 반추동물 식이의 필수 요소인 식물 섬유의 일부가 됩니다. 펙틴은 소화율이 매우 높은(수용성) 다당류인 반면1, 리그닌은 섬유 분해를 제한하는 소화 불가능한 폴리머입니다2. 따라서 리그닌은 식물의 소화율을 낮추며, 결과적으로 반추동물이 조사료로부터 얻을 수 있는 에너지를 감소시킵니다. 하지만 리그닌은 가도관 요소를 강화함으로써 식물 전체에 물을 전달하는 것과 같은 중요한 식물 생리 기능을 지원합니다3. 이전 연구에 따르면 리그닌을 줄이거나 펙틴을 증가시키는 줄기 섬유의 변화가 줄기의 소화율과 조사료의 영양 가치를 높일 수 있음을 보여주었습니다4. 따라서 본 프로토콜은 이 두 가지 세포벽 성분에 집중합니다. 줄기 세포벽 내 리그닌과 펙틴의 총 농도만으로는 줄기 섬유 소화율의 기저 기전을 설명하기에 불충분합니다5. 반추위액을 이용한 in vitro 배양과 조직학적 염색을 통해, 줄기 섬유 소화율이 각기 다른 식물들 간의 세포벽 성분 차이를 시각화함으로써 세포 수준에서의 통찰을 얻을 수 있습니다4,6. 본 프로토콜에서는 일반적인 다년생 사료용 콩과 식물인 알팔파(Medicago sativa L.)를 모델 종으로 사용하여, 잎보다 리그닌 함량이 높고 펙틴 함량이 낮은 줄기 조직 내 리그닌과 펙틴의 패턴을 설명합니다.
In vitro 반추위액 배양은 반추 동물의 위 내 사료 소화를 모사하여, 사료의 해부학적 구조가 소화율에 미치는 영향을 관찰할 수 있게 해줍니다. 시험관 내에 반추위와 유사한 조건을 조성함으로써, 유리 슬라이드에 부착된 줄기 횡단면을 여러 시점에서 회수하여 반추위액 노출에 따른 조직 분해 정도를 평가할 수 있습니다6. 이 방법은 알팔파 줄기의 해부학적 구조를 시각화하고7 줄기가 소화됨에 따라 서로 다른 세포벽 성분을 포함하는 세포 유형들이 어떻게 변화하는지 조사하는 비교적 단순하고 신속하며 비용 효율적인 접근 방식을 제공합니다.
줄기 횡단면의 조직학적 염색을 통해 세포벽 성분을 시각화할 수 있습니다. 플로로글루시놀과 염산(HCl)이 결합하여 Wiesner 염색액을 형성하며, 이는 G C6C3 알데하이드(coniferaldehyde) 단량체9와 반응함으로써 guaiacyl-rich 리그닌 단위가 포함된 줄기 조직을 강조합니다8. 리그닌은 여러 단량체 하위 단위로 구성되지만, 본 논문 전체에서 "리그닌"이라는 용어는 Wiesner 염색액과 반응하여10 본 프로토콜을 통해 시각화되는 G-단위 단량체만을 지칭합니다. 물관(xylem vessels)과 같은 일부 조직은 항상 리그닌화되어 있습니다6. 그 외의 경우, 알팔파 줄기 조직의 리그닌 침적은 2차(형성층) 성장이 시작될 때 시작되며, 이는 줄기 마디 간의 신장 정지와 일치합니다6. 루테늄 레드는 때때로 에스테르화되어 있으며 일부 측쇄를 공유하는 카르복실기를 포함하는 펙틴 물질에 결합합니다11. 중층(middle lamella)과 1차 세포벽에 존재하는 펙틴의 카르복실기는 루테늄 레드와 상호작용합니다11. 펙틴은 세포 신장에 관여하므로 1차 성장 중인 세포에 존재합니다. 본 원고 전반에서 "펙틴"이라는 용어는 존재할 수 있는 펙틴 전체 군을 일반적으로 지칭합니다. 조직학적 염색을 반추위 in vitro 배양과 병행하면 줄기 내 세포벽 성분의 위치 관찰이 용이해지며, 반추위 소화 과정 동안 서로 다른 세포 유형이 어떻게 변화하는지 확인할 수 있습니다. 궁극적으로 이 프로토콜은 리그닌 및 펙틴을 함유한 줄기 세포를 식별하고, 알팔파 계통 및 배양 시간에 따른 패턴을 특성화하는 데 사용될 수 있습니다.
프로토콜
본 연구는 동물 실험에 관한 기관 지침(IACUC 2301-40689B)을 준수하여 수행되었습니다.
1. 샘플 튜브 라벨링
- 배양, 보관 및 염색을 위한 샘플 튜브 준비 및 라벨링
- 각 샘플당 5세트로 나누어 일회용 스크류 캡 50 mL 원추형 원심분리 튜브를 미리 라벨링합니다. 아래에 기술된 용도에 따라 각 튜브에 샘플 식별자와 배양 시간을 기입합니다.
- 배양 전 보관 튜브에 라벨을 붙이고 초순수 35 mL를 넣습니다.
- 섹션 3 및 4에서 사용할 배양 튜브에 라벨을 붙입니다. 배양 시간(0, 4, 8, 24, 48 또는 96 h)에 따라 튜브를 별도의 랙에 정리합니다.
참고: 워터배스에서 라벨이 지워지는 것을 방지하기 위해 공업용 유성 마커를 사용하십시오. - 배양 후 보관 튜브에 라벨을 붙이고 100% glycerol과 초순수를 50:50으로 혼합한 용액 35 mL를 넣습니다. 이 튜브를 사용하여 염색 전까지 슬라이드 위의 소화된 횡단면을 보관합니다.
- 염색 전 처리 튜브에 라벨을 붙이고 200-proof ethanol과 초순수를 50:50으로 혼합한 용액 35 mL를 넣습니다. 이 튜브를 사용하여 염색 전 횡단면에서 glycerol을 제거합니다.
- 수화 튜브에 라벨을 붙이고 초순수 35 mL를 넣습니다.
2. 줄기 횡단면 절편 제작 및 슬라이드 마운팅
- 포셉을 사용하여 샘플 줄기에서 줄기 분절을 한 번에 하나씩 선택하고 분절의 중앙 부분을 절제합니다.
참고: 각 생물학적 반복구당 기술적 반복구로 샘플당 4개의 줄기를 사용하십시오. 샘플당 가능한 모든 줄기 중에서 4개의 줄기를 무작위로 선택합니다. 모든 배양 실험 전반에 걸쳐 대조군으로 사용할 표준 줄기 세트를 추가로 준비하십시오. - 압출 폴리스티렌 강성 폼 단열재를 길이 약 2.5 cm, 두께 0.6 cm의 직사각형으로 2개 자릅니다. 각 조각의 길이를 따라 작은 쐐기 모양으로 깎아 줄기 마디 사이 부분이 두 폼 조각 사이에 꼭 맞게 합니다.
- 100 μm 두께의 절편을 만들 수 있는 슬라이딩 마이크로톰의 스테이지에 줄기 "샌드위치"를 고정합니다. 세밀한 붓을 사용하여 줄기와 마이크로톰 칼날에 물 한 방울을 떨어뜨려 깨끗하게 절단되도록 합니다.
- 줄기 횡단면을 100 μm 두께로 자릅니다. 붓을 사용하여 각 횡단면을 임시 보관용 초순수가 담긴 라벨이 부착된 페트리 접시에 옮기고, 접시에서 폼 조각을 제거합니다.
참고: 폼이 찢어지면 칼날이 무뎌졌을 수 있으므로 마이크로톰 칼날을 교체하십시오. - 각 배양 시간별 샘플당 두 장의 표준 25 mm × 75 mm 유리 슬라이드에 수기로 라벨을 붙입니다 (염색 2종 × 시간대 6개 = 각 생물학적 반복구의 샘플당 슬라이드 12장). 각 라벨에 샘플 식별자, 배양 시간 및 염색 종류를 기입합니다.
- 2 mm 폭의 양면테이프를 2.5 cm 길이로 자릅니다. 테이프의 짧은 면이 슬라이드 하단에서 0.5 cm 떨어진 곳에 오도록 하고 접착면이 아래를 향하게 배치한 뒤, 장갑을 착용한 상태에서 테이프의 박리지를 세게 눌러 밀착시킵니다.
참고: 유리 슬라이드가 깨지는 것을 방지하기 위해 이 단계는 평평한 표면에서 수행하십시오. - 해부 현미경을 사용하여 모든 횡단면을 동일한 방향으로 정렬합니다. 양면테이프에서 박리지를 제거하고, 횡단면의 방향을 유지하면서 물을 묻힌 세밀한 붓을 사용하여 라벨이 붙은 유리 슬라이드의 테이프 위로 옮깁니다. 횡단면이 약간 촉촉한 상태를 유지하도록 합니다.
- 횡단면 위에 박리지를 덮고 붓으로 가볍게 굴려 횡단면이 양면테이프에 단단히 고정되도록 합니다. 박리지를 제거하고 4개의 횡단면이 고정된 슬라이드를 단계 1.1.2에서 설명한 라벨이 붙은 보관 튜브에 넣으며, 초순수가 고정된 횡단면을 충분히 덮도록 합니다.
- 루테늄 레드(ruthenium red)와 위스너(Wiesner) 염색을 모두 수행하는 경우, 양면테이프 면이 바깥쪽을 향하도록 하여 각 보관 튜브에 슬라이드 두 장을 서로 맞대어 넣습니다.
참고: 모든 슬라이드를 고정하여 초순수가 담긴 튜브에 넣은 후, 필요한 경우 실온에서 하룻밤 동안 보관하십시오.
3. 줄기 횡단면의 in vitro 배양 준비
- 배양용으로 준비된 일회용 50 mL 나사 캡 원심분리 튜브를 사용하십시오(1.1.3 참조). 각 배양 간격별 모든 샘플 튜브를 하나의 플라스틱 랙에 그룹화하여 배치하십시오.
- 소수점 넷째 자리까지 측정 가능한 분석 저울을 사용하여 1 mm로 분쇄된 옥수수 대 표준물질 0.2 g을 유량지에 칭량하고, 비배양 대조군으로 사용될 0 h 튜브를 제외한 각 배양 튜브에 조심스럽게 옮기십시오. 튜브 캡을 닫고 사용 전까지 보관하십시오.
참고: 줄기 횡단면의 바이오매스 양으로는 미생물 활성을 유지하기에 불충분하므로, 배양 중 반추위 미생물을 유지시키기 위한 에너지원으로 옥수수 대 표준물질을 제공합니다. - 순환식 항온 수조에 충분한 양의 물을 채우고, 배양을 시작하기 전 39 °C로 평형을 맞추십시오. 수위가 50 mL 튜브의 35 mL 표시선까지 덮이도록 조절하고, 필요한 경우 에어레이터를 사용하여 균일한 물 순환과 온도를 유지하십시오.
- 접종액용 McDougall 완충액 준비
- 배양 시작 전 2일 이내에 McDougall 완충액을 준비하십시오.
참고: 접종액을 준비하려면 McDougall 완충액과 반추위액을 4:1 비율로 혼합하십시오. 샘플 수에 맞게 완충액 부피를 조절하고, 튜브당 30 mL를 제공할 수 있도록 충분한 양의 접종액을 준비하십시오. - 초순수 1,600 mL를 측정하십시오. 이 중 1 L는 3 L 평저 삼각플라스크에 옮기고, 나머지 600 mL는 시약 전이 및 세척용으로 남겨두십시오.
- 삼각플라스크에 마그네틱 바를 넣고 교반기 위에 플라스크를 배치하십시오.
- 삼각플라스크에 플라스틱 깔때기를 배치하십시오. 탄산수소나트륨(NaHCO₃) 15.7 g, 무수 인산수소나트륨(Na₂HPO₄) 5.9 g, 염화칼륨(KCl) 0.91 g, 염화나트륨(NaCl) 0.75 g, 황산마그네슘 칠수화물(MgSO₄·7H₂O) 0.19 g, 염화칼슘 이수화물(CaCl₂) 0.06 g을 순서대로 하나씩 첨가하며, 다음 시약을 넣기 전에 각 시약이 완전히 용해되도록 하십시오. 각 시약을 첨가한 후 남겨둔 600 mL의 초순수를 사용하여 깔때기를 세척하십시오.
- 염화칼슘 이수화물을 첨가한 후, 용해를 돕기 위해 CO₂ 디퓨저를 삽입하여 용액을 스파징(sparging)하십시오. 용액이 투명해지면 10~15분 더 스파징을 계속하십시오.
- 완충액을 가열할 때 용기 내 압력이 상승할 수 있으므로, 플라스크 마개를 단단히 닫고 마스킹 테이프로 고정하십시오.
- 용액을 20 °C에서 최대 2일 동안 보관하십시오. 사용 전날 39 °C 항온 수조에 넣어두거나, 다음 날 바로 사용할 예정인 경우 즉시 39 °C 항온 수조에 넣으십시오.
- 배양 시작 전 2일 이내에 McDougall 완충액을 준비하십시오.
4. 줄기 횡단면의 in vitro 배양
- 배양 당일에 흄 후드 내의 100 mL 비커에 물 47 mL와 1 N NaOH 4 mL를 넣고, cysteine-HCl 0.625 g을 추가합니다. 두 번째 100 mL 비커에 물 47 mL와 황화나트륨 0.625 g을 넣고, 접종액이 준비될 때까지 두 용액을 분리하여 보관합니다.
- 소에서 실험실로 반추위 미생물을 운송하기 위한 온열 환경을 조성하기 위해 단열 보온병에 뜨거운 물을 채웁니다. 보온병에서 뜨거운 물을 옮겨 담기 위한 5갤런 용량의 버킷을 준비합니다.
- 축사 관리자가 실험 대상으로 지정한 캐뉼라 장착 소로부터 반추위액을 수집하기 위해 축사로 이동하십시오.
참고: 변동성을 최소화하기 위해 실험 전 기간 동안 매일 거의 동일한 시간대에 동일한 소로부터 반추위액을 수집하십시오. 반추위액 수집을 위해 축사에 방문할 시간을 미리 알릴 수 있도록 축사 관리자와 협의하십시오. - 실험 대상 소를 확인하고 실험복, 보안경, 신발 덮개, 어깨 길이의 장갑을 포함한 적절한 개인 보호 장구를 착용하십시오.
참고: 4.4~4.8단계의 절차는 해당 IACUC 프로토콜에 따라 권한을 부여받은 인원으로 제한하십시오. - 보온병에 담긴 따뜻한 물을 5갤런 용기(bucket)로 옮깁니다. 반추위 물질을 여과하기 위해 50그레이드 거즈(치즈클로스)를 두 겹으로 준비합니다.
- 캐뉼라를 장착한 소로부터의 반추위액 수집
- 캐뉼라를 조심스럽게 열고, 마개(stopper)가 오염되지 않도록 따뜻한 물이 담긴 5갤런 버킷에 마개를 넣으십시오. 장갑을 낀 손을 사용하여, 반추위의 고체-액체 인터페이스에 도달할 수 있을 만큼 충분한 양의 반추위 내용물을 제거하십시오.
- 고체-액체 계면에 도달하면, 재료를 여러 번 한 줌씩 채취하여 약 45cm 정사각형 크기의 50메시(grade 50) 거즈 두 겹을 통해 미리 가온된 스크루 캡 보온병에 짜내어 수집합니다. 거즈를 통해 반추위액을 모두 짜낸 후 사용한 재료는 폐기합니다.
- 배양할 시료 수에 따라 부피를 적절히 조절하여, 60개의 접종 튜브 한 세트당 보온병에 1L의 반추위액이 담길 때까지 단계 4.6.2를 반복하십시오.
참고: 캐뉼라가 장착된 소는 일주일 동안 추출 가능한 반추위액의 양에 특정 제한이 있습니다. 소당 반추위액 추출량이 제한치를 초과하지 않도록 축사 관리자와 상의하십시오.
- 충분한 양의 반추위액을 수집한 후, 온도를 유지하기 위해 보온병을 단단히 닫으십시오. 캐뉼라를 다시 장착하고, 5갤런 버킷에 담긴 따뜻한 물을 사용하여 세척하십시오.
- 축사를 나설 때 오염된 신발 덮개, 장갑 및 거즈를 적절한 폐기물 수거함에 버리십시오. 반추위액의 온도와 무산소 조건을 유지하기 위해 가능한 한 빨리 실험실로 복귀하십시오.
- 실험실로 돌아온 후, 흄 후드 내에서 두 가지 환원제 용액(4.1 참조)을 합쳐 혼합하여 환원 용액을 준비하십시오.
- 대형 마그네틱 바가 들어 있는 2 L 이상의 용량의 유리 비커를 설정된 가열 교반기에 놓으십시오. <30 °C, 그리고 CO를 배치하십시오.₂ 액체 상단에 디퓨저를 배치합니다. McDougall 완충액 1,600 mL를 첨가하고, CO2가 유입되지 않도록 천천히 교반합니다.₂ 디퓨저가 액체에 닿도록 합니다.
참고: 이 낮은 온도에서는 필요한 경우 폴리프로필렌 비커를 사용하십시오. CO를 사용하십시오.₂ O를 치환하기 위해₂ 그리고 무산소 조건을 유지하는 데 도움을 줍니다. - 대형 깔때기에 50메시 치즈클로스(cheesecloth)를 두 겹으로 겹쳐 깔고, 이를 2L 메스실린더 위에 놓습니다. 반추위액 400mL를 여과하여 McDougall 완충액(3.4.7 참조)에 첨가해 접종액을 준비합니다.
- 접종액에 환원액 80mL(4.9 참조)를 가하고 천천히 혼합하십시오. CO2를 유지하십시오.₂ 디퓨저가 액체와 접촉하는 것을 방지합니다.
- 흄 후드 내에서 배양 튜브의 캡을 제거하고, 배양 시간별로 각각 다른 랙에 정리하십시오. 슬라이드 전송을 준비하며 사전 배양 보관 튜브의 캡을 여십시오 (1.1.2 참조).
- 사전 배양 대기 튜브를 한 번에 하나씩 무작위로 선택하고, 핀셋을 사용하여 장착된 유리 슬라이드를 해당 배양 튜브(1.1.3 참조)로 옮깁니다. 장착된 슬라이드가 들어 있는 각 배양 튜브를 소형 샘플 랙에 넣고, 사전 배양 대기 튜브는 옆으로 치워 둡니다.
참고: 4.14~4.15단계는 두 사람이 함께 수행하십시오. 가능한 한 반추위액-완충액 혼합물의 냉각을 최소화하십시오. - 뭉툭한 대구경 바늘이 장착된 60 mL 주사기로 접종액 30 mL를 흡입하십시오. 배양관 벽면을 따라 용액을 천천히 분주하고, 관 내부를 CO2로 퍼지하십시오.₂ 약 20초 동안 처리한 후, 튜브의 캡을 닫고 랙으로 되돌립니다.
- 접종된 튜브가 담긴 랙을 다음의 장소에 배치하십시오. 39 °C 항온수조. 불균일한 가열을 최소화하기 위해 매일 최소 한 번 이상 튜브를 부드럽게 흔들어 섞고, 매일 랙의 위치를 변경하십시오.
참고: 튜브 내에 가스 기포가 형성되는 것은 활발한 발효가 일어나고 있음을 나타냅니다. - 각 배양 기간이 종료되면 해당 랙을 항온수조에서 꺼냅니다. 튜브를 하나씩 열어 슬라이드를 꺼내고, 초순수로 고형물과 잔류 접종액을 부드럽게 씻어냅니다.
- 세척한 슬라이드를 1.1.4단계에서 설명한 글리세롤-물 혼합액이 들어 있는 배양 후 보관 튜브에 넣으십시오.
5. 리그닌 확인을 위한 횡단면 염색
- 슬라이드를 50:50 글리세롤-물 혼합액에 보관했다면, 횡단면이 부착된 두 슬라이드를 에탄올-초순수 용액(1.1.5 참조)이 들어 있는 염색 전 세척 튜브로 옮깁니다. 염색 전 글리세롤을 제거하기 위해 튜브를 냉장고에 하룻밤 동안 보관하십시오.
- 빛에 민감한 시약을 보호하기 위해 알루미늄 호일로 감싼 25 mL 삼각 플라스크에 PG 0.3 g을 절대 에탄올 10 mL에 녹여 3% 플로로글루시놀(PG) 용액을 준비합니다. 플라스크를 마개로 막고 용액 이름, 제조일, 제조자 이름을 라벨로 부착한 후 20 °C에서 보관하십시오.
- 냉장 보관된 튜브에서 슬라이드를 꺼내 100% 초순수가 들어 있는 1.1.6단계의 수화 튜브로 일시적으로 옮깁니다.
참고: 취급 중에 횡단면이 수화된 상태를 유지하여, 조직을 손상시키고 이후의 이미징에 영향을 줄 수 있는 산화를 최소화하십시오. - 흄 후드 내에서 피펫을 사용하여 50 mL 비커에 3% 에탄올 PG 용액(5.2 참조) 50 μL와 염산(HCl) 25 μL를 혼합하여 Wiesner 염색액을 준비합니다.
참고: PG와 HCl의 비율을 2:1로 유지하면서 슬라이드 수에 맞게 양을 조절하십시오.
주의: 염산은 금속을 부식시키고 심한 피부 화상 및 안구 손상을 유발하며 호흡기 자극을 일으킬 수 있으므로 반드시 흄 후드에서 취급하십시오. 증기나 에어로졸의 흡입을 피하고, 적절한 보호 장갑, 의복, 안구 보호구 및 안면 보호구를 착용하며, 취급 후에는 노출된 피부를 철저히 씻어내십시오. - 튜브에서 슬라이드 하나를 꺼내고, 염색액이 테이프 밖으로 흘러내리는 것을 방지하기 위해 양면테이프 주변의 유리를 저보풀 티슈로 부드럽게 닦아냅니다. 슬라이드를 작은 플라스틱 트레이에 놓고 피펫을 사용하여 횡단면 위에 Wiesner 염색액을 몇 방울 떨어뜨립니다.
- 타이머를 12분으로 설정하고 슬라이드를 알루미늄 호일로 덮어 빛으로부터 보호합니다. 염색 중에 횡단면을 확인하고, 건조를 방지하기 위해 필요에 따라 염색액을 다시 도포하십시오.
참고: 산화가 조직을 손상시키고 이후의 이미징에 영향을 줄 수 있으므로 횡단면이 건조되지 않도록 하십시오. - 12분 후, 저보풀 티슈로 과잉 도포된 Wiesner 염색액을 부드럽게 제거합니다. 현미경 대물렌즈가 부식성 HCl 증기에 노출되는 것을 최소화하기 위해, 마운팅 전에 티슈를 세척하십시오.
- 각 횡단면 위에 50% 글리세롤-초순수를 1~2방울 떨어뜨리고 24 mm × 30 mm 커버슬립(두께 No. 1.5)으로 덮습니다. 즉시 현미경 분석 및 이미징을 진행하십시오.
참고: Wiesner 염색은 시간에 민감하여 시간이 지남에 따라 노랗게 변하거나 횡단면에서 확산될 수 있으므로 6~8시간 이내에 이미지를 획득하십시오.
6. 펙틴 확인을 위한 횡단면 염색
- 염색 전, 단계 5.1에 따라 보관된 슬라이드에서 글리세롤-초순수 혼합액을 제거하십시오.
- 빛에 민감한 시약을 보호하기 위해 알루미늄 호일로 감싼 125 mL 삼각플라스크에 루테늄 레드 0.02 g을 초순수 100 mL에 녹여 0.02% 루테늄 레드 용액을 준비하십시오. 플라스크에 마개를 막고 용액 이름, 제조일, 제조자 이름을 기입한 라벨을 부착하여 20 °C에서 보관하십시오.
- 냉장 보관된 에탄올-초순수 튜브에서 슬라이드를 꺼내어, 절편이 부착되고 라벨이 정확히 부착된 슬라이드를 임시 보관을 위해 100% 초순수(1.1.6 참조)가 담긴 튜브로 옮기십시오.
참고: 단계 5.3에 설명된 수화 주의사항을 따르십시오. - 핀셋을 사용하여 초순수에서 슬라이드 하나를 꺼내고, 염색약이 유리에 흐르는 것을 방지하기 위해 테이프 주변의 물기를 보풀이 적은 티슈로 닦아내십시오. 슬라이드를 작은 플라스틱 트레이 위에 놓으십시오.
- 루테늄 레드 용액(6.2 참조)을 여러 방울 떨어뜨려 횡단면을 고르게 덮으십시오. 빛으로부터 보호하기 위해 슬라이드를 알루미늄 호일로 10분 동안 덮어둔 다음, 초순수로 2분 동안 슬라이드의 염색약을 부드럽게 헹궈내십시오.
- 슬라이드에서 과잉 수분을 닦아내고, 각 횡단면 위에 50% 글리세롤-초순수를 1~2방울 떨어뜨리십시오. 24 mm × 30 mm 커버슬립(두께 No. 1.5)으로 횡단면을 덮고 현미경 분석 및 이미징을 진행하십시오.
참고: 최적의 결과를 위해 현미경 분석은 당일에 수행하십시오.
7. 명시야 이미지 촬영
- 현미경의 명시야 조명 하에서 10배율로 횡단면을 관찰하십시오.×, 20×, 그리고 40× 배율. 참조 표 1 이미지 획득 파라미터 및 설정에 대하여.
결과
원심분리 튜브를 사용하여 반추위 조건을 시뮬레이션함으로써 Medicago sativa 줄기 횡단면의 상대적으로 빠르고 저렴한 in vitro 소화를 가능하게 했습니다. 슬라이딩 마이크로톰을 사용하여 100 μm 두께의 M. sativa 줄기 횡단면을 제작했습니다(그림 1A). 줄기 횡단면을 양면테이프로 유리 슬라이드에 부착하고(그림 1B), 4 h에서 96 h까지의 배양 기간 동안 반추위액 접종액에 침지시켰습니다(그림 1C). in vitro 배양을 위해 캡이 있는 일회용 50 mL 원심분리 튜브를 배양 용기로 사용하였으며, 배양 기간 동안 반추위 미생물을 유지하기 위해 1 mm로 분쇄한 옥수수대 기질 0.2 g을 첨가했습니다. 튜브는 39 °C로 유지되는 항온수조에서 배양했습니다(그림 1D). 반추위 미생물에 의한 활성 발효는 접종액 내에 형성되는 기포를 통해 시각적으로 확인되었습니다. 이 프로토콜에 필요한 재료들은 일반적인 습식 화학 실험실에서 쉽게 구할 수 있습니다. 양면테이프는 반추위액 노출 중 조직 분해를 막지는 못했으나, 소화 후 남아있는 줄기 부분을 고정하여 이후의 염색 및 현미경 시각화가 가능하게 했습니다.
in vitro 배양을 거치지 않은 (0 h) 줄기 횡단면을 통해 다양한 줄기 조직에 걸친 초기 세포벽 성분을 시각화할 수 있었다. Wiesner 염색을 처리한 횡단면에서는 리그닌 관련 염색을 나타내는 조직이 확인되었으며(Figure 2A–E), ruthenium red 염색을 처리한 횡단면에서는 펙틴 관련 염색을 나타내는 조직이 강조되었다(Figure 3A–E). Wiesner 염색 절편에서 성숙한 1차 사부 섬유는 푸시아색 염색을 나타냈다(Figure 2B–E). 물관부와 속관다발간 xylem 또한 푸시아색 염색을 나타냈다(Figure 2B–D). Ruthenium red 염색은 표피, 후각 조직, 엽육 조직, 2차 사부(Figure 3B–E) 및 수(Figure 3B–D)에서 관찰되었다. 일부 속관다발간 xylem과 1차 사부 섬유 또한 ruthenium red로 염색되었다(Figure 3B–E). 전체 줄기 횡단면은 10× 배율로 획득한 이미지들을 5 × 5 그리드로 이어 붙여 시각화하였다(Figure 2A 및 Figure 3A). 줄기 횡단면의 한 영역에 대한 추가 이미지는 관다발 형성층의 위쪽(Figure 2D 및 Figure 3D)과 아래쪽(Figure 2E 및 Figure 3E)에서 10×(Figure 2B 및 Figure 3B), 20×(Figure 2C 및 Figure 3C), 40× 배율로 획득하였다.
~의 Wiesner 염색 조직 M. sativa 모든 시료에서 줄기 횡단면이 뚜렷하게 관찰되었습니다. 인비트로(in vitro) 0시간부터 96시간까지의 배양 (그림 4A–F). 0시간째에 모든 세포는 명확한 경계를 가지고 있습니다 (그림 4A). 후에 8시간 후, 얇고 목질화되지 않은(즉, 염색되지 않은) 세포벽을 가진 세포(예: 후각조직)의 가장자리가 흐려지고 세포(예: 2차 사관부)가 소실되는 등 조직 분해의 증거가 뚜렷하게 나타났다. 24시간 후에는 주변 조직이 분해됨에 따라 물관의 나선형 3차원 구조가 더욱 분명하게 드러났다.그림 4D). 24시간 이후에는 염색되지 않은 세포들이 점진적으로 분해되어 소실되었다(그림 4D–F). 이러한 조직들이 분해됨에 따라 해부학적 지지 구조가 소실되었고, 이로 인해 염색되지 않은 표피가 측면으로 허탈되어 24, 48, 96시간에 얇고 투명한 세포 리본 형태의 외관이 나타났습니다.그림 4D–F).
M. sativa 줄기 횡단면을 in vitro 배양한 후 루테늄 레드(ruthenium red) 염색을 통해, 반추위액에 0–96 h 동안 노출시킨 줄기 조직 내 펙틴 관련 염색 양상을 시각화할 수 있었다(그림 5A–F). 0~4 h에서는 모든 세포 주변의 경계가 뚜렷하여 세포가 온전함을 나타냈다(그림 5A,B)). 배양 시간이 8 h로 진행됨에 따라, 후각 조직(collenchyma), 엽육 조직(chlorenchyma) 및 2차 체관부를 포함하여 피층 내의 얇고 목질화되지 않은 세포벽을 가진 조직들이 점진적으로 구조적 무결성을 잃어 세포 경계가 흐릿해졌다(그림 5C). 24, 48, 96 h에서는 주변 피층 조직의 상당 부분이 소실된 반면, 표피, 속속 xylem(interfascicular xylem), 수(pith) 및 관다발 조직의 일부는 여전히 관찰되었다(그림 5D–F). 주변 해부학적 구조의 소실과 함께 표피 영역의 측면 붕괴가 수반되었다. 96 h에 이르러서는 이전 배양 시간보다 루테늄 레드 염색 조직이 실질적으로 훨씬 적게 남아 있었다(그림 5F). 전반적으로, 배양 중 줄기 조직의 점진적인 소실은 루테늄 레드 양성 염색 세포의 감소를 동반했다. 펙틴은 시간이 지남에 따라 쉽게 분해되므로, 얇고 목질화되지 않은 펙틴 관련 세포들의 분해와 소실은 예상된 결과였다.
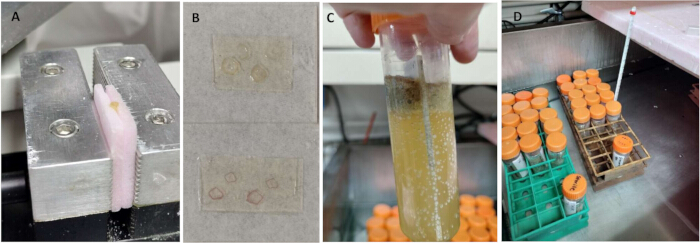
그림 1: In vitro 알파파 줄기 횡단면 배양. (A) 알파파 줄기 세그먼트를 두 조각의 압출 폴리스티렌 강성 폼 단열재 사이에 끼워 횡단면 절편 제작을 위해 슬라이딩 마이크로톰 스테이지에 장착했다. (B) 두께가 각각 100 μm인 4개의 횡단면 절편을 양면테이프를 사용하여 유리 슬라이드에 고정하여 in vitro 배양 및 조직학적 염색을 준비했다. (C) 30 mL의 반추위액-버퍼 접종액과 0.2 g의 1-mm 분쇄 옥수수 대가 들어 있는 50 mL 튜브에 양면테이프가 바깥쪽을 향하도록 두 개의 유리 슬라이드를 서로 맞대어 배치했다. 튜브 내부를 CO₂로 치환하고 캡을 닫아 배양했다. 튜브 측면의 기포는 배양 중 반추위 미생물에 의한 활발한 발효가 일어나고 있음을 나타낸다. (D) 50 mL 튜브가 담긴 랙을 배양 기간 내내 39 °C 항온 수조에서 유지했다. 수위는 접종액을 덮었으나 튜브 입구보다는 낮게 유지하여 튜브 내부로 물이 들어가는 것을 방지했다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
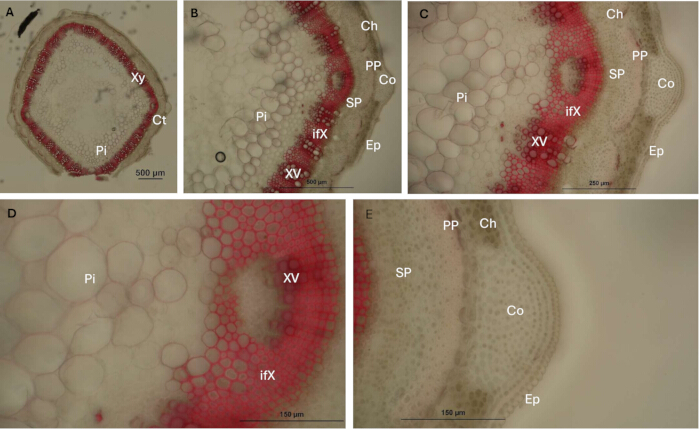
그림 2: 알팔파 줄기 조직의 Wiesner 염색 결과는 리그닌화된 세포벽 성분의 분포를 나타낸다. (A–E) 소화되지 않은 알팔파 줄기 횡단면(배양 시간 = 0 h)을 Wiesner 염색이 나타나는 줄기 조직을 식별하기 위한 초기 참조로 사용하였다. xylem vessel (XV), interfascicular xylem (ifX) 및 성숙한 primary phloem fiber (PP)가 fuchsia색으로 염색되었다. 배율 및 스케일 바: (A) 10× 배율로 획득하여 합성한 5 × 5 그리드 이미지, 스케일 바 = 500 μm; (B) 10×, 스케일 바 = 500 μm; (C) 20×, 스케일 바 = 250 μm; (D, E) 40×, 스케일 바 = 150 μm. 약어: Xy = xylem; Ct = cortex; Pi = pith; Ep = epidermis; Co = collenchyma; Ch = chlorenchyma; SP = secondary phloem; XV = xylem vessels; ifX = interfascicular xylem; PP = mature primary phloem fibers. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
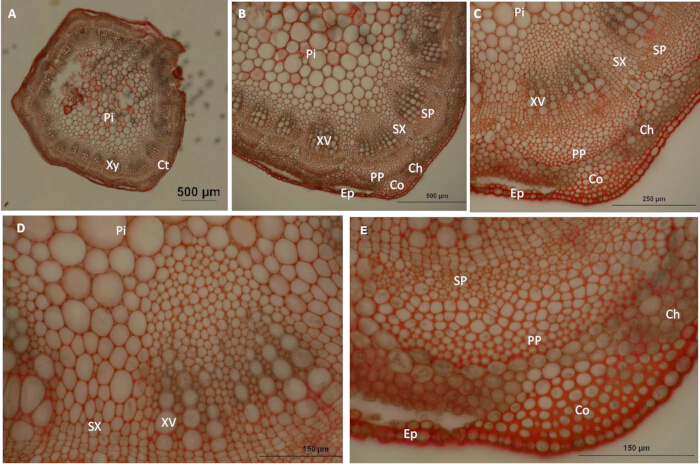
그림 3: 알팔파 줄기 조직의 루테늄 레드 염색은 세포벽 내 펙틴 다당류의 분포를 나타낸다.(A–E) 미소화된 알팔파 줄기 횡단면(배양 시간 = 0 h)은 루테늄 레드 염색이 나타나는 줄기 조직을 확인하기 위한 초기 참조물로 사용되었다. 표피(Ep), 후각조직(Co), 엽육조직(Ch), 이차 체관(SP) 및 수(Pi)에서 붉은색 염색이 관찰되었다. 이차 물관(SX)과 성숙한 일차 체관(PP)에서도 염색이 나타난 반면, 물관 요소(XV)는 상대적으로 염색되지 않은 상태로 남아 있었다. 배율 및 스케일 바: (A) 10× 배율로 획득하여 접합한 5 × 5 그리드 이미지, 스케일 바 = 500 μm; (B) 10×, 스케일 바 = 500 μm; (C) 20×, 스케일 바 = 250 μm; (D, E) 40×, 스케일 바 = 150 μm. 약어: Xy = 물관; Ct = 피층; Pi = 수; Ep = 표피; Co = 후각조직; Ch = 엽육조직; SP = 이차 체관; XV = 물관 요소; SX = 이차 물관; PP = 성숙한 일차 체관. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
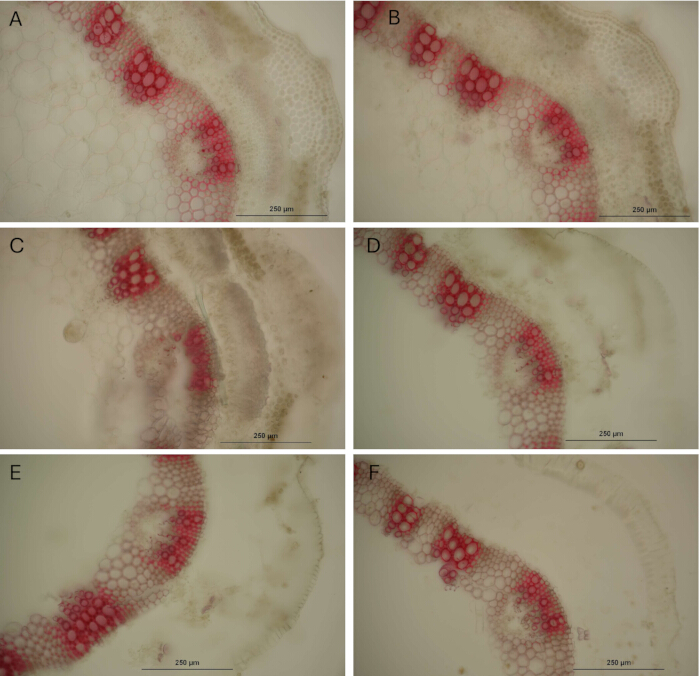
그림 4: in vitro 배양 및 Wiesner 염색 후 알팔파 줄기 조직의 변화. 동일한 마디 사이에서 얻은 알팔파 줄기 횡단면을 반추위액과 함께 (A) 0 h, (B) 4 h, (C) 8 h, (D) 24 h, (E) 48 h, 및 (F) 96 h 동안 in vitro 배양하였다. 물관(XV), 속간 물관(ifX) 및 성숙한 1차 체관 섬유(PP)는 배양 기간 동안 Wiesner 염색을 유지하였다. 미성숙 줄기 조직에서는 ifX의 희미한 염색이 관찰되었다. 배양 시간이 증가함에 따라 주변 조직의 구조적 무결성이 점진적으로 상실되었으며, 이로 인해 염색된 나머지 관다발 구조가 점점 더 뚜렷하게 나타났다. 스케일 바 = 250 μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
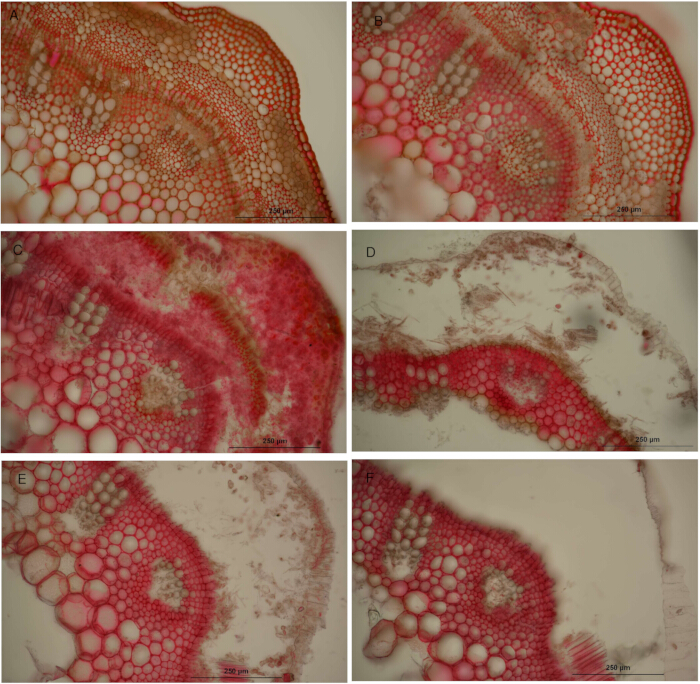
그림 5: in vitro 배양 및 루테늄 레드 염색 후 알팔파 줄기 조직의 변화. 동일한 마디 사이에서 얻은 알팔파 줄기 횡단면을 반추위액과 함께 (A) 0 h, (B) 4 h, (C) 8 h, (D) 24 h, (E) 48 h, (F) 96 h 동안 in vitro 배양하였다. 루테늄 레드 염색이 여러 줄기 조직에서 관찰된 반면, 물관(XV)은 상대적으로 염색되지 않은 상태로 유지되었다. 배양 시간이 증가함에 따라 조직 구조의 점진적인 손실과 루테늄 레드 염색의 감소가 관찰되었다. 배양 후기 단계에서도 물관의 일부, 속속 xylem(ifX) 및 표피 영역(Ep)은 계속해서 관찰되었다. 스케일 바 = 250 μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 매개변수 | 설정 |
| 빠른(초점) | 2000 × 1328 |
| 품질(캡처) | 2000 × 1328 |
| 색상 모드 | RGB 색상 |
| 비트 심도 | 채널당 8비트 |
| 유효 색 심도 | 24비트 RGB (8비트 R + 8비트 G + 8비트 B) |
| 이득 | 2 |
| 10배 배율 노출 시간(ms) | 30 |
| 20배 배율 노출 시간(ms) | 50 |
| 150배 배율 노출 시간(ms) | 150 |
표 1: 이미징을 위한 현미경 및 카메라 설정. 디지털 컬러 카메라와 이미징 소프트웨어가 장착된 정립 현미경을 이용한 명시야 이미징에 사용된 현미경, 카메라 및 이미지 획득 설정.
토론
본 연구에 사용된 알팔파 재료는 5개 알팔파 라인의 클론으로 구성되었습니다. 두 개의 실험 라인은 16 h IVNDFD와 96 h IVNDFD가 모두 낮거나, 또는 16 h IVNDFD와 96 h IVNDFD가 모두 높은 모주를 대상으로 in vitro 중성 세제 섬유 소화율(IVNDFD)에 대한 두 차례의 이질적 선택을 거쳐 선정되었습니다12. 유전적 배경이 알려지지 않은 세 개의 상업적 라인도 연구에 포함되었으며, 근적외선 분광 분석을 통해 (a) 리그닌 함량이 가장 높은 개체, (b) 리그닌 함량이 가장 낮은 개체, (c) 중성 세제 섬유 및 산성 세제 섬유 함량이 가장 낮은 개체를 모주로 선정하였습니다. 이 5가지 알팔파 라인은 2021년 5월 온실에서 미국 미네소타주의 두 곳에 위치한 반복 필드 시험지로 이식되었습니다. 각 성장 시즌의 1차 및 2차 수확 시기에, 식물 성숙도의 영양 생장기, 초기 꽃봉오리 형성기, 초기 개화기, 개화기 및 녹색 꼬투리 형성기에서 각 알팔파 라인당 10개의 줄기를 수확하였습니다. 각 줄기 기부에서 7번째 마디절을 절단하여, 단면 배양 전까지 보관하기 위해 200-proof 에탄올과 초순수 혼합액(50:50)이 담긴 50 mL 튜브에 넣었습니다. 이 방법은 1990년대에 본 연구팀이 7번째 마디절을 연구 단위로 선정하여 수행한 이전 연구를 바탕으로 개발되었습니다4,6.
In vitro 반추위액 배양과 알팔파 줄기의 조직학적 염색을 통해 분해된 줄기 조직 전반의 세포벽 성분 침착 패턴을 분석하였습니다. in vitro 배양은 알팔파 줄기가 반추위 내에서 겪는 분해 정도를 모사하며, 이후의 조직학적 염색을 통해 일정 시간 미생물 소화 후에도 검출 가능한 상태로 남아 있는 세포 내 리그닌과 펙틴을 확인하였습니다. 슬라이딩 마이크로톰을 사용하여 단면 두께를 표준화함으로써 결과에 영향을 줄 수 있는 절편 제작 아티팩트를 최소화하였습니다13. 본 프로토콜에서는 리그닌과 펙틴만을 조사하였으나, toluidine blue, Astra blue, Direct Red 23과 같은 대체 염색약을 사용하여 이들 및 기타 세포벽 성분의 조직학적 염색을 수행할 수 있습니다14,15,16. 또한, 편광을 이용하여 세포벽의 셀룰로스를 검출할 수 있으며, safranin O와 같은 형광 시약으로 리그닌17 및 세포벽 다당류를 시각화할 수 있습니다. 더불어, 항체를 사용하여 특정 펙틴을 라벨링할 수 있습니다18. 본 프로토콜은 알팔파 외의 다른 종에도 적용 가능합니다. 다만, 염색 반응은 종, 유전자형, 발달 단계 및 환경 조건에 따라 다를 수 있습니다19.
줄기 횡단면을 유리 슬라이드에 부착하기 위해 저렴한 양면테이프를 사용하는 방법이 이전에 기술된 바 있습니다6,20. 본 in vitro 배양 프로토콜을 시작하기 전, 며칠 동안 액체에 잠겨 있어도 견딜 수 있으며 쉽게 구할 수 있는 양면테이프를 확인하는 과정이 필요했습니다. 산업용 용도와 두께가 서로 다른 여러 종류의 테이프를 평가하였습니다. 간단히 설명하면, 1인치 길이의 양면테이프 조각과 줄기 횡단면을 유리 슬라이드에 부착하고 1주일에 걸쳐 다양한 시간 동안 물에 담가 슬라이드에 계속 부착되어 있는지 확인하였습니다. 일부 양면테이프는 유리 슬라이드에서 떨어졌으며, 일부는 액체에 오래 노출된 후 불투명해졌습니다. 테이프의 투명도가 떨어지면 현미경 관찰에 방해가 되어 줄기 횡단면의 고품질 이미지를 얻을 수 없었습니다. 테스트한 접착제 중 비닐 양면테이프의 성능이 가장 우수했습니다. 원래 실험에 사용된 테이프는 1990년대에 구매한 것으로 여전히 효과적이었으나, 이후 실험을 위해 동일한 제품을 구할 수 없었습니다. 따라서 선택한 테이프는 배양 기간 동안 테이프와 횡단면이 모두 부착된 상태를 유지하는지 사용 전에 테스트해야 합니다. 또한, 고품질 이미지를 획득할 수 있도록 테이프가 투명하게 유지되어야 합니다.
프로토콜의 in vitro 배양 단계에는 세심한 계획과 조정이 필요한 여러 시간 민감한 단계들이 포함되었습니다. in vitro 배양 절차에 소요되는 총 시간은 실험 규모에 따라 달라질 수 있습니다. 예를 들어, 줄기 단면의 견고한 데이터 세트를 생성하기 위해 각 샘플 × in vitro 배양 간격 × 염색 조합당 4개의 고유한 알팔파 줄기를 각 슬라이드에 장착했습니다. 16개의 샘플, 6개의 배양 간격, 2가지 염색법을 사용한 경우, 한 번의 in vitro 배양 실행에 총 768개의 줄기 단면이 필요했습니다. 768개의 단면을 준비하는 데 약 8h가 소요되었으며, 준비된 단면은 초순수가 담긴 페트리 접시에 넣어 하룻밤 동안 보관한 후 다음 날 장착할 수 있었습니다. 장착 전에는 192개의 유리 슬라이드와 96개의 원심분리 튜브(50 mL)에 라벨링이 필요했습니다. 줄기 조직 간의 비교를 용이하게 하기 위해 배양 간격과 염색법 전반에 걸쳐 단면을 일관되게 정렬하여 장착해야 했으므로, 단면 장착에 추가로 8h가 소요되었습니다. 이 방식은 단면을 무작위로 장착하는 것보다 더 많은 시간이 필요했습니다. 장착된 슬라이드는 다음 날 in vitro 배양을 시작하기 전까지 초순수에 담가 하룻밤 동안 보관했습니다. 알팔파 줄기 단면을 준비하고 장착하는 동안 McDougall’s 완충액도 준비해야 했습니다. 완충액은 in vitro 배양 시작 전 최대 2일 이내에 준비해야 하며, 장착된 단면을 접종하기 전에 39 °C로 가온해야 했습니다. 따라서 프로토콜을 성공적으로 완료하기 위해서는 세심한 계획과 준비가 필수적이었습니다.
Wiesner 염색은 식물 조직 내의 리그닌 관련 구조를 시각화하는 데 흔히 사용됩니다. 이 염색 방법은 비교적 간단하지만21 그리고 상당히 구체적인22이는 구아야실(G) 리그닌 단위와 연관된 신남알데히드 말단기를 염색합니다.13알팔파와 같은 쌍자엽 속씨식물에서 G 및 시링길(S) 단위는 리그닌 중합체의 주요 성분이며, H-고리 서브유닛 또한 존재한다. 따라서 Wiesner 염색은 S-리그닌과 반응하지 않으므로 줄기의 총 리그닌 양을 과소평가할 수 있다. G 및 S 단위 모두 속관 사이의 물관부와 1차 체관부 섬유(즉, 후벽조직)에 존재할 수 있다. 그러므로 S 단위는 Wiesner 염색과 반응하지 않을 수 있지만, G 단위의 염색을 통해 이러한 조직 내 리그닌 관련 구조의 존재를 확인할 수 있다. Mäule 염색을 사용하면 S 단위를 시각화하여 줄기 내 리그닌 단위의 더 완전한 표현을 제공할 수 있다.13펙틴의 루테늄 레드(ruthenium red) 염색 강도의 차이는 펙트산(pectic acid)의 에스테르화 또는 탈에스테르화 상태에 따라 나타날 수 있습니다.23염색 결과는 황색-오렌지색 톤에서 밝은 붉은색 색조까지 다양하게 나타날 수 있습니다. 루테늄 레드(ruthenium red)는 여러 가지 탄수화물과 상호작용할 수 있으므로, 이 염색법을 사용할 경우 조직 내 펙틴의 양이 과다 산정될 수 있습니다.11알팔파 줄기가 성숙함에 따라 리그닌의 비율이 증가하므로, 오래된 줄기에서는 리그닌이 펙틴 염색을 방해할 수 있습니다. 특정 염색제의 색조 차이를 시각적으로 구분하는 것은 어려울 수 있으나, 이미지 분석 기술을 통해 이러한 한계를 극복하는 데 도움이 될 수 있습니다.
반추위액을 이용한 in vitro 배양 및 조직학적 염색 후, 줄기 횡단면을 현미경으로 관찰하고 이후 분석을 위해 이미지를 획득할 수 있습니다. Wiesner 염색은 24시간 이내에 퇴색되므로9, 이미지 간의 일관된 색상을 보장하기 위해 리그닌 염색을 거친 줄기의 명시야 현미경 분석은 염색 당일, 가급적 6–8시간 이내에 완료해야 합니다. Ruthenium red 염색은 시간이 지나도 강도가 유지되므로 당일 촬영의 중요성이 상대적으로 낮습니다. 그럼에도 불구하고, 일관성을 위해 ruthenium red로 염색된 이미지 또한 6–8시간 이내에 획득하였습니다. 이미지는 대형 CMOS 이미지 센서가 장착된 고화질, 고해상도 디지털 컬러 현미경 카메라를 사용하여 획득하였습니다. 이미지 간의 비교 가능성을 확보하고 획득 설정 차이로 인한 변동을 최소화하기 위해 동일한 노출, 아날로그 게인, 비트 깊이, 이미지 품질 및 초점 설정을 사용하였습니다. 과노출 또는 저노출을 방지하고 고품질 이미지를 생성하기 위해 배율(10×, 20×, 40×)에 따라 노출 시간을 조정하였습니다. 따라서 서로 다른 노출 설정과 관련된 변동을 최소화하려면 동일한 배율에서 획득한 이미지들끼리 비교해야 합니다. 사용하는 현미경과 카메라에 따라 이미징 설정의 조정이 필요할 수 있습니다(Table 1). 본 프로토콜에서는 명시야 현미경을 사용하였으나, 세포벽 성분을 시각화하기 위해 주사전자현미경6,20 및 형광현미경14,15,17을 포함한 다른 현미경 기술들도 사용되어 왔습니다.
본 프로토콜을 통해 대규모의 줄기 횡단면 이미지 데이터셋(>15,000개)이 생성되었으며, 이는 본 프로토콜의 조직학적 염색으로 생성된 정성적 정보를 머신러닝 기술을 이용한 정량적 분석으로 확장하는 데 활용될 수 있습니다. 효율적인 이미지 분석 파이프라인을 통해 이미지로부터 정량적 데이터를 추출하는 과정을 자동화하고 가속화할 수 있습니다. 컴퓨터 과학자와의 협업은 여러 가설을 해결하기 위해 이미지를 전처리하고, 불필요한 노이즈를 제거하며, 관심 특징을 추출하는 도구의 개발을 용이하게 할 수 있습니다. 머신러닝 접근 방식은 견고한 모델 성능을 보장하기 위해 충분한 크기의 적절한 훈련 및 테스트 데이터셋이 필요합니다. 더 작은 데이터셋은 ImageJ24 와 같은 이미지 분석 소프트웨어나 현미경에 연결된 이미지 분석 소프트웨어25를 사용하여 관심 형질을 수동으로 측정하는 것과 같은 더 단순한 이미지 분석 접근 방식으로 분석할 수 있습니다. 따라서 이미지의 의도된 후속 활용 방안을 고려한다면, 획득할 이미지의 유형과 수뿐만 아니라 이후의 분석 접근 방식을 결정하는 효율성을 높일 수 있습니다.
공개 사항
저자들은 잠재적인 이해 상충으로 해석될 수 있는 어떠한 상업적 또는 재정적 관계 없이 본 연구가 수행되었음을 밝힙니다. 본 출판물에 언급된 상표명 또는 상업적 제품은 오직 구체적인 정보를 제공하기 위한 목적이며, 미국 농무부(U.S. Department of Agriculture)의 추천이나 지지를 의미하지 않습니다. USDA는 기회균등 제공자이자 고용주입니다. 모든 실험은 실험이 수행된 국가인 미국의 현행 법률을 준수하였습니다.
감사의 글
저자들은 이전의 관련 연구에 대한 통찰력을 제공해 준 R. Ted Jeo에게 감사를 표합니다. 출판용 이미지를 제작하기 위해 현미경 이미지 획득 및 분석 소프트웨어를 사용할 수 있도록 지원해 준 University of Minnesota - Twin Cities의 University Imaging Center에 감사드립니다. 본 연구는 미국 농무부 농업연구청[062-21500-001-000D]과 비원조 협력 협정(No. 58-5062-2-016)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 알루미늄 호일 | 보드워크 | 7106BW | 18인치 × 1,000피트; 광민감성 염색액을 빛으로부터 보호하는 데 사용됨 |
| 염화칼슘 이수화물, 최소 99% | Sigma Life Science | C7902-500G | CAS No. 10035-04-8; McDougall용 시약’S 완충액 |
| 카메라 소프트웨어 | Nikon | NIS-Elements AR 5.42.04 | 이미지 획득 및 분석에 사용되는 64비트 이미징 소프트웨어 |
| 이산화탄소 가스 | Matheson | UN1013 | 유틸리티 등급; 조제 및 배양 동안 무산소 상태를 유지하는 데 사용됨 |
| 순환식 항온수조 | 정밀도 | — | 시료를 일정 온도로 유지하는 데 사용되는 온도 조절 순환식 항온수조 39 °C |
| 옥수수 대 표준물질 | 미네소타 대학교 | 제공된 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 2023년 가을 미국 미네소타주 세인트폴에서 수확하여 1mm 크기로 분쇄한 후 미생물 배지로 사용함 |
| 커버글라스 | Thermo Scientific | 3419 | 24 mm × 30 mm, No. 1.5 두께, 1 oz |
| FX 대형 포맷 CMOS 이미지 센서가 탑재된 Digital Sight 10 컬러 현미경 카메라 | Nikon | MQA20000 | 명시야 현미경 이미지를 획득하는 데 사용되는 디지털 컬러 카메라 |
| 해부 현미경 | Nikon | SMZ18 | 줄기 횡단면의 방향 설정 및 배치를 위해 사용되는 실체 현미경 |
| 양면 테이프 | SelloTape Office Vinyl 양면 테이프 | 4270 | 2 mm × 53 μm; 줄기 횡단면을 유리 슬라이드에 고정하는 데 사용됨 |
| 전자저울 | 및 | GH-202 | 소수점 넷째 자리까지 읽기 가능한 분석 저울 |
| 삼각 플라스크 (125 mL) | Kimax | 25600 | 125 mL 플라스크; 5번 마개와 호환됨 |
| 삼각 플라스크 (25 mL) | Pyrex | 4980 | 25 mL 플라스크; 0번 마개와 호환 가능 |
| 에탄올 (200 proof) | Fisher Scientific | 04-355-720 | 염색액 조제 및 염색 전 세척에 사용되는 절대 에탄올 |
| 압출법 보온판 (압출 polystyrene 강성 폼 단열재) | Owens Corning | 1407788 | 1인치 × 2피트 × 2피트, R-5, 15 PSI 폼 보드; 절편 제작 시 줄기 마디 간격을 지지하는 데 사용됨 |
| 포셉 | Fisher Scientific | 10-316A | 줄기 세그먼트, 슬라이드 및 마운팅된 절편을 다루는 데 사용되는 실험실용 핀셋 |
| 슬라이드 글라스 | FisherBrand | 125503 | 25 mm × 75 mm × 1 mm; 줄기 횡단면 고정용으로 사용됨 |
| 구형 플라스크 (6 L) | Pyrex | CLS43205L-4EA | 더 많은 양의 용액 조제 또는 취급에 사용되는 6 L 유리 플라스크 |
| 글리세린, 실험실 등급 액체 | Fisher 과학 교육 | 525342C | CAS No. 56-81-5; 봉입 및 보관 용액에 사용되는 글리세롤 |
| 50등급 2겹 치즈클로스 | JINIOHEE 숍 | B0FL27KXRN | 100% 면, 표백 백색; 반추위 물질 및 반추위액 여과에 사용 |
| 메스실린더 (10 mL) | Pyrex | 700024 | 액체 부피 측정을 위해 사용되는 10 mL 메스실린더 |
| 염산 | Fisher | A1445-500 | CAS No. 7647-01-0; 플로로글루시놀(phloroglucinol)과 함께 사용하여 비즈너 염색약(Wiesner stain)을 조제하는 데 사용됨 |
| 산업용 초강력 매직 마커 | 샤피(Sharpie) | 13601 | 가는 팁; 내수성 표시로 배양 튜브에 라벨을 부착하는 데 사용됨 |
| L-시스테인 염산염 수화물 | Sigma-Aldrich | C121800-10G | CAS No. 345909-32-2; 배양액 조제에 사용되는 환원제 |
| 저보풀 티슈 | Kimberly-Clark | 34155 | 4.5인치 × 8.5인치; 섬유가 남지 않게 슬라이드에서 과잉 액체를 흡수하는 데 사용됨 |
| 저프로파일 마이크로톰 칼날 | Leica 819 | 63065-LP | 균일한 줄기 횡단면 제작에 사용되는 교체용 로우 프로파일 블레이드 |
| 황산마그네슘 칠수화물 | Fisher Chemical | M80-500 | CAS No. 10034-99-8; McDougall용 시약’s 완충액 |
| 마그네틱 스터링 바 | Fisher Scientific | 03-411-783 | 76 mm × 12 mm; 버퍼 및 접종액 혼합용으로 사용됨 |
| 우편 주소 라벨 | 에이버리 | 5167 | 1/2 인치 × 1 3/4인치; 시료 및 슬라이드 식별용으로 사용됨 |
| 페인트 브러시 | Loew-Cornell | — | Series 7000, 3번 라운드; 줄기 횡단면의 이동 및 조작에 사용되는 세밀 붓 |
| 덮개가 있는 페트리 접시 | Becton Dickinson 실험실 소모품 | 81731119 | 60 mm × 15 mm; 초순수 내 줄기 횡단면의 일시적 보관에 사용됨 |
| 플로로글루시놀, 1,3,5-트리하이드록시벤젠 | Sigma-Aldrich | P3502-25G | CAS 번호 108-73-6; Wiesner 염색액 조제에 사용되는 시약 |
| 피펫 (100 μL) | Gilson | P 1000; 767547M | 염색액 분주에 사용되는 가변 부피 피펫 |
| 플라스틱 다용도 깔때기 | Nalgene | 10-437-23E | 150 mm; 시약 옮기기 및 여과에 사용됨 |
| 폴리프로필렌 비커 (4 L) | Nalgene | 1201-4000 | 접종액의 조제 및 혼합에 사용되는 4 L 화학 내성 비커 |
| 염화칼륨 | Fisher Chemical | P217-500 | CAS No. 7447-40-7; McDougall용 시약’S 완충액 |
| 면도날 | 페르소나 | 66-0089 | 두께 0.009인치; 줄기 시료의 수동 트리밍에 사용됨 |
| 루테늄 레드, 암모니아화 루테늄 옥시클로라이드 | 시그마 | R-2751 | CAS No. 11103-72-3; 펙틴성 물질을 시각화하는 데 사용되는 조직학적 염색제 |
| 가위 | Fiskars | 1063071 | 테이프, 폼 및 기타 소모품 절단에 사용되는 범용 가위 |
| 나사캡 원추형 원심분리 튜브 (50 mL) | Corning | 430828 | 폴리프로필렌, 비발열성; 시료 보관, 배양, 세척 및 저장에 사용됨 |
| 슬레지 마이크로톰 | Leica | 2000R | 제작에 사용된 슬라이딩/슬레지 마이크로톰 100 μm- 두꺼운 줄기 횡단면 |
| 탄산수소나트륨, ACS 등급 | Fisher Chemical | S233-3 | CAS No. 144-55-8; McDougall용 시약’s 완충액 |
| 염화나트륨 | Fisher Chemical | — | CAS 번호 7647-14-5; McDougall용 시약’s 완충액 |
| 수산화나트륨 | Fisher Chemical | S318-500 | CAS 번호 1310-73-2; 환원 용액 조제에 사용됨 |
| 무수 인산수소나트륨 (Na2HPO (고배율 광학 현미경)4) | Sigma Aldrich | S-9763 | CAS 7558-79-4 |
| 무수 황화나트륨, ACS, 최소 98.0% | Oakwood Chemicals | 245960 | CAS No. 1313-84-4; 배양액 조제에 사용되는 환원제 |
| 스푼뉴라 실험실용 스푼 | Fisher Scientific | 14-375-10 | 분말 시약 전송에 사용되는 실험실용 스파툴라 |
| 교반기 | Sybron 사의 Thermolyne | 7200 | 완충액과 접종액을 혼합하는 데 사용되는 마그네틱 교반기 |
| 광구 니들이 장착된 주사기 (60 mL) | Monoject | 935401028 | 접종액 분주에 사용되는 굵은 바늘이 장착된 60 mL 주사기 |
| 시험관 랙 | Thermo Scientific | 14-809-44 | 50 mL 배양 튜브를 정리하고 지지하는 데 사용되는 랙 |
| 온도계 | FisherBrand | 13201663 | 용액 및 항온수조 온도를 확인하는 데 사용되는 실험실용 온도계 |
| 정립 현미경 | Nikon | Eclipse Ni | 염색된 줄기 횡단면의 시각화 및 이미징에 사용되는 정립 명시야 현미경 |
| 유틸리티 펌프 | Little Giant Pump Co. | 502203 | 모델 2E-38N; 115 VAC, 60 Hz, 1.7 A; 물을 순환시키고 일정한 중탕 온도를 유지하는 데 사용됨 |
| 약포지 | VWR 과학 제품 | 12578-165 | 고체 시약 및 옥수수대 배지를 칭량하고 옮기는 데 사용되는 일회용 칭량지 |
참고문헌
- Cosgrove DJ. Growth of the plant cell wall. Nature Reviews Molecular Cell Biology. 2005;6(11):850-861.
- Moore KJ, Jung H-JG. Lignin and fiber digestion. Journal of Range Management. 2001;54(4):420-430.
- Barros J, Serk H, Granlund I, Pesquet E. The cell biology of lignification in higher plants. Annals of Botany. 2015;115(7):1053-1074.
- Jung HG, Engels FM. Alfalfa stem tissues: cell wall deposition, composition, and degradability. Crop Science. 2002;42(2):524-534.
- Jung HG, Lamb JFS. Stem morphological and cell wall traits associated with divergent in vitro neutral detergent fiber digestibility in alfalfa clones. Crop Science. 2006;46(5):2054-2061.
- Engels FM, Jung HG. Alfalfa stem tissues: cell-wall development and lignification. Annals of Botany. 1998;82(5):561-568.
- Akin DE. Section to slide technique for study of forage anatomy and digestion. Crop Science. 1982;22(2):444-446.
- Jung HG, Deetz DA. Cell wall lignification and degradability. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:315-346.
- Blaschek L, et al. Cellular and genetic regulation of coniferaldehyde incorporation in lignin of herbaceous and woody plants by quantitative Wiesner staining. Frontiers in Plant Science. 2020;11:109.
- Blaschek L, et al. Different combinations of laccase paralogs nonredundantly control the amount and composition of lignin in specific cell types and cell wall layers in Arabidopsis. The Plant Cell. 2023;35(2):889-909.
- Nevins DJ. Analysis of forage cell wall polysaccharides. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:105-132.
- Xu Z, Heuschele DJ, Lamb JFS, Jung H-JG, Samac DA. Improved forage quality in alfalfa (Medicago sativa L.) via selection for increased stem fiber digestibility. Agronomy. 2023;13(3):770.
- Pradhan Mitra P, Loqué D. Histochemical staining of Arabidopsis thaliana secondary cell wall elements. Journal of Visualized Experiments. 2014;(87):51381.
- De Micco V, Aronne G. Combined histochemistry and autofluorescence for identifying lignin distribution in cell walls. Biotechnic & Histochemistry. 2007;82(4–5):209-216.
- Kraus JE, et al. Astra Blue and Basic Fuchsin double staining of plant materials. Biotechnic & Histochemistry. 1998;73(5):235-243.
- Ursache R, Andersen TG, Marhavý P, Geldner N. A protocol for combining fluorescent proteins with histological stains for diverse cell wall components. The Plant Journal. 2018;93(2):399-412.
- Baldacci-Cresp F, et al. A rapid and quantitative safranin-based fluorescent microscopy method to evaluate cell wall lignification. The Plant Journal. 2020;102(5):1074-1089.
- Casero PJ, Knox JP. The monoclonal antibody JIM5 indicates patterns of pectin deposition in relation to pit fields at the plasma-membrane-face of tomato pericarp cell walls. Protoplasma. 1995;188(1-2):133-137.
- Pesquet E, Cesarino I, Kajita S, Pawlowski K. Physiological roles of lignins – tuning cell wall hygroscopy and biomechanics. New Phytologist. 2025;248(6):2674-2706.
- Jung HG, Engels FM. Alfalfa stem tissues: rate and extent of cell-wall thinning during ruminal degradation. NJAS: Wageningen Journal of Life Sciences. 2001;49(1):3-13.
- Yeung EC. A beginner’s guide to the study of plant structure. Tested Studies for Laboratory Teaching. 1998;19:125-142.
- Jensen, W.A. Botanical Histochemistry: Principles and Practice. Freeman W.H. & Co. San Francisco, CA. (1962).
- Ruzin, SE. Plant Microtechnique and Microscopy. Oxford University Press; New York, NY; 1999.
- Gronwald JW, Bucciarelli B. Comparison of stem morphology and anatomy of two alfalfa clonal lines exhibiting divergent cell wall composition. Journal of the Science of Food and Agriculture. 2013;93(11):2858-2863.
- Dai R, et al. Overexpression MsJAR1 gene increased lateral branches and plant height in alfalfa (Medicago sativa L.). Scientific Reports. 2025;15(1):16956.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공