본 프로토콜은 흉부 및 복부 영역에서 일차 마우스 대동맥 평활근 세포를 분리하고 배양하는 재현 가능한 방법을 설명합니다. 이 방법은 혈관 리모델링 및 동맥류 관련 생물학의 in vitro 연구에 적합한 생존 세포를 얻을 수 있게 합니다.
방법 논문
혈관 리모델링 및 대동맥류 생물학 관련 In vitro 연구를 위한 일차 마우스 대동맥 평활근 세포의 분리 및 배양
이 논문에서
요약
초록
일차 대동맥 평활근 세포(SMCs)의 분리 및 배양은 대동맥류를 포함한 혈관 질환의 근저에 있는 세포 메커니즘을 연구하는 데 귀중한 접근 방법을 제공합니다. 본 논문은 흉부 및 복부 대동맥 분절에서 마우스 대동맥 SMC를 분리하고 배양하기 위한 상세하고 최적화된 프로토콜을 설명합니다. 현재의 절차에는 정밀한 대동맥 박리, 주변 조직 제거, collagenase, elastase 및 soybean trypsin inhibitor를 이용한 2단계 효소 소화, 그리고 이어서 수행되는 기계적 분리 및 정의된 배양 조건 하에서의 세포 증식이 포함됩니다. 외막 제거와 조절된 소화 시간 등 세포 수율, 순도 및 재현성을 향상시키는 단계에 특히 중점을 두었습니다. 이 방법을 사용하면 일차 SMC를 성공적으로 분리 및 증식시킬 수 있으며, 특징적인 형태와 성장 패턴을 나타냅니다. 본 프로토콜은 일차 대동맥 SMC를 생성하기 위한 재현 가능하고 적응 가능한 접근 방식을 제공하며, 혈관 리모델링 및 대동맥류 생물학과 관련된 in vitro 연구를 위한 플랫폼 역할을 합니다.
서론
대동맥 평활근 세포(SMCs)는 혈관벽의 필수 구성 요소이며, 대동맥의 구조적 무결성과 기능적 조절 모두에 기여합니다. 건강한 혈관에서 SMC는 α-smooth muscle actin (α-SMA) 및 smooth muscle myosin heavy chain (MYH11)과 같은 수축 단백질의 발현을 특징으로 하는 수축성 표현형을 유지합니다1,2,3. 이러한 표현형은 혈관 긴장도를 유지하고 세포외 기질의 조직화를 보존합니다. 그러나 복부 대동맥류(AAA)와 같은 병리적 상태에서 SMC는 합성 및 염증 촉진 상태로 표현형 변형을 겪습니다1,2,3. 이러한 전환은 증식 증가, 사이토카인 분비 및 기질 분해 효소 생성과 관련이 있으며, 궁극적으로 대동맥벽의 약화를 초래합니다4,5.
Angiotensin II (Ang II)로 유도된 대동맥류 형성을 포함한 동물 모델은 복부대동맥류(AAA)의 병인 기전 이해를 크게 증진시켰습니다1,6,7,8,9,10,11. 그럼에도 불구하고, 이러한 모델들은 세포 경로의 정밀한 조작이나 평활근세포(SMC) 특이적 메커니즘의 직접적인 관찰이 어렵습니다. 일차 배양된 SMC를 이용한 In vitro 시스템은 보완적인 접근 방식을 제공하며, 제어된 조건 하에서 신호 전달 경로, 유전자 조절 및 세포 반응에 대한 세부적인 조사를 가능하게 합니다12.
그 유용성에도 불구하고, 일차 마우스 대동맥 평활근세포(SMC)의 분리는 기술적으로 어렵습니다. 마우스 대동맥의 작은 크기, 주변의 지방 및 결합 조직의 존재, 그리고 외막 섬유아세포에 의한 오염 가능성은 모두 세포 순도를 저하시킬 수 있습니다. 또한, 조직 해리와 세포 생존력 유지 사이의 균형을 맞추기 위해 효소 소화 과정을 세심하게 조절해야 합니다. 이러한 단계들에서의 변동성은 흔히 실험 및 연구소 간의 일관되지 않은 결과로 이어집니다.
일차 마우스 대동맥 평활근 세포의 분리 및 배양을 설명하는 여러 프로토콜이 발표되었으며, 이들 대부분은 효소 소화 전 외막을 완전히 기계적으로 제거하는 방식에 의존하며 주로 전체 대동맥이나 흉부 대동맥 분절에 집중하고 있습니다13,14. 본 프로토콜은 이러한 방법들을 기반으로 하며, 조직의 완전한 해리 전 외막과 중막의 분리를 용이하게 하기 위한 짧은 효소 전소화 단계, 간헐적인 부드러운 기계적 해리를 동반한 표준화된 소화 조건, 그리고 흉부(THX) 및 복부(ABD) 대동맥 평활근 세포를 각각 분리하여 배양하는 워크플로우를 포함한 여러 기술적 개선 사항을 통합하였습니다. 이러한 개선 사항들은 혈관 리모델링 및 동맥류 생물학에 관한 부위별 연구를 용이하게 하는 동시에, 조직 처리의 일관성과 재현성을 높이기 위한 것입니다. 이렇게 얻어진 SMC 배양물은 유전자 साइ런싱, 약리학적 연구, 혈관 리모델링 및 동맥류 생물학 관련 기전 연구 등 광범위한 후속 응용 분야에 적합합니다. 질환이 없는 대동맥에서 분리한 일차 SMC가 본질적으로 동맥류 표현형을 그대로 재현하지는 않지만, 표적 실험적 조작 후 동맥류 발생에 관여하는 세포 경로를 조사하기 위한 통제된 in vitro 시스템을 제공합니다.
프로토콜
아래에 설명된 절차에는 체중 18~20g인 8~10주령의 성체 암컷 C57BL/6J 마우스가 사용되었습니다. 분리당 두 마리의 마우스가 사용되었습니다. 모든 동물 실험 절차는 켄터키 대학교(University of Kentucky) 동물실험윤리위원회(IACUC)의 가이드라인에 따라 수행되었으며, 프로토콜 번호 2022-4153에 따라 승인되었습니다. 사용된 모든 시약 및 장비의 세부 사항은 다음 목록에 기재되어 있습니다. 재료 목록전체 분리 및 배양 워크플로의 도식적 개요가 다음에 나타나 있습니다. 그림 1.
주의: Ketamine과 xylazine은 관리대상 물질이므로 기관 정책 및 관련 규정에 따라 취급, 보관 및 폐기해야 합니다. Collagenase type II와 elastase는 피부, 눈 및 호흡기 자극을 유발할 수 있는 단백질 분해 효소입니다. Trypan blue는 유해 염료이므로 피부 및 눈과의 접촉을 피하고 적절한 개인 보호 장비를 착용하여 취급해야 합니다. 모든 유해 시약은 기관의 안전 가이드라인과 제조사의 지침에 따라 취급하고 폐기해야 합니다.
1. 시약 및 배양 배지의 준비
- 분리 당일에 멸균된 15 mL 원추형 튜브에 효소 소화액 10 mL를 신선하게 준비합니다:
- collagenase type II 10 mg(최종 농도 1 mg/mL)을 첨가합니다(재료 표 참조).
- soybean trypsin inhibitor 10 mg(최종 농도 1 mg/mL)을 첨가합니다(재료 표 참조).
- elastase 현탁액 71 µL(최종 농도 0.744 U/mL)를 첨가합니다(재료 표 참조).
- phenol red가 포함되지 않은 칼슘 및 마그네슘 함유 HBSS로 용액을 준비합니다(재료 표 참조).
- penicillin/streptomycin 100 µL(최종 부피의 1%)를 첨가합니다(재료 표 참조).
- 용액을 충분히 혼합하고 0.2 µm 나일론 시린지 필터를 사용하여 여과 멸균합니다(재료 표 참조).
- 완전 SMC 배양 배지(500 mL)를 준비합니다:
- 기초 배지로 phenol red가 포함되지 않은 Dulbecco’s Modified Eagle Medium/Nutrient Mixture F-12 (DMEM/F12) 385 mL를 첨가합니다(재료 표 참조).
- charcoal/dextran 처리된 fetal bovine serum 100 mL(최종 부피의 20%)를 보충합니다(재료 표 참조).
- penicillin/streptomycin 10 mL(최종 부피의 2%)를 첨가합니다(재료 표 참조).
- amphotericin B 5 mL(최종 부피의 1%)를 첨가합니다(재료 표 참조).
- 배지를 여과 멸균하여 4 °C에서 보관합니다.
- 사용 전 모든 시약을 37 °C로 예열합니다.
2. 조직 처리 준비
- 조직 처리 전, 6-웰 배양 플레이트의 4개 웰에 효소 소화 용액을 동일하게(각 2.5 mL) 미리 분주하고 37 °C, 5% CO₂ 배양기에서 예열한다. 대동맥 분절을 위해 2개 웰은 'THX'로, 2개 웰은 'ABD'로 지정해야 한다. 동일한 해부학적 부위에서 얻은 여러 분절은 하나의 웰에서 처리할 수 있다.
- 완전 SMC 배양 배지가 담긴 2개의 별도 배양 접시(재료 표 참조)를 준비하고 각각 THX와 ABD로 라벨을 붙인다.
- 배지가 담긴 배양 접시를 가습 배양기에서 예열한다.
- 혈관 관류 및 조직 핸들링을 위해 멸균된 HBSS 20 mL를 미리 준비한다.
- 분리된 대동맥의 순차적 세척을 위해 HBSS 3 mL가 각각 담긴 배양 접시 2개를 추가로 준비한다.
- THX 및 ABD 대동맥 분절의 임시 보관 및 분리를 위해 HBSS 5 mL가 각각 담긴 라벨링된 15 mL 원심 분리 튜브(재료 표 참조)를 준비한다.
- 동물 간 수술 기구는 세제로 세척하고 증류수로 헹군 뒤, 70% 에탄올로 소독하고 비드 멸균기(재료 표 참조)를 사용하여 멸균한다.
3. 동물 준비 및 대동맥 박리
- 켄터키 대학교 IACUC 프로토콜 2022-4153에 따라 승인된 말기 절차대로, 케타민 (300 mg/kg)과 자일라진 (30 mg/kg) (재료 표 참조)을 복강 내 (IP) 주사하여 마우스에 마취를 실시한다.
- 발가락 꼬집기에 대한 반사 반응이 없는 것을 통해 마취 깊이가 적절한지 확인한다.
- 70% 에탄올을 사용하여 수술 부위를 멸균한다.
- 심부 수술 마취 상태에서, 기관 및 AVMA 가이드라인에 따라 심장 천자를 통한 방혈 후 HBSS로 경심장 관류를 실시하여 마우스를 안락사시킨다.
- 흉강을 열고 심장 천자를 수행하여 혈액을 수집한다.
- 25-gauge 바늘이 장착된 10 mL 주사기를 사용하여 좌심실을 통해 10 mL의 멸균 HBSS를 천천히 주입하여 혈관계를 관류한다. 잔류 혈액을 효율적으로 제거하기 위해 약 0.5 mL/s의 관류 속도를 권장한다.
- 주변 장기(간, 폐, 비장, 위장관, 신장)를 조심스럽게 제거한다. 횡격막의 일부는 대동맥에 연결된 상태로 둔다.
- 횡격막이 온전한 상태에서 대동맥 기부부터 장골 분지까지의 대동맥을 분리한다. 횡격막은 THX 영역과 ABD 영역 사이의 해부학적 경계 역할을 한다 (그림 2B).
- 분리한 대동맥을 즉시 멸균 HBSS로 옮긴다 (그림 2A).
4. 대동맥 세척 및 분절
- 대동맥이 담긴 멸균 배양 접시를 해부 현미경 아래에 둡니다(재료 표 참조).
- 미세 핀셋을 사용하여 지방 조직과 결합 조직을 조심스럽게 제거합니다(재료 표 참조).
- 대동맥을 THX 및 ABD 분절로 분리합니다.
참고: THX 분절은 횡격막 바로 위의 대동맥 영역부터 대동맥 기저부까지이며, ABD 분절은 횡격막 바로 아래의 대동맥 영역부터 장골 분기점까지입니다(그림 2B). - 추후 처리를 위해 세척된 분절들을 신선한 HBSS가 담긴 각각의 15 mL 원심 분리 튜브로 옮깁니다.
5. 효소 소화 및 세포 분리
- 대동맥 절편을 효소 용액에서 다음 조건으로 배양하십시오. 37 °C 8~10분 동안.
- 효소 용액에서 대동맥 분절을 제거하십시오.
- 지정된 완전 SMC 배지가 담긴 개별 배양 접시에 분절들을 옮긴다. THX 및 ABD 샘플의 경우.
- 거친 핀셋과 미세 핀셋을 사용하여 대동맥에서 외막층을 제거하십시오. 대동맥의 외표면이 매끄럽고 투명하게 보이며, 잔류 결합 조직이나 지방 조직이 보이지 않을 때 외막 제거가 완료된 것으로 확인합니다.그림 2C).
- 대동맥 분절을 신선한 효소 용액으로 옮긴 후, 용액 내에서 중막 층을 작은 조각으로 직접 잘게 다집니다 (그림 3A).
- 조직 조각을 다음 조건에서 배양하십시오. 37 °C 5% CO2가 포함된 습윤 배양기에서₂ 1시간 동안.
- 세포 분리를 촉진하기 위해 피펫팅을 약 10~15회 반복하여 부드럽게 기계적 해리를 수행합니다 (그림 3B).
- 총 소화 시간이 2~3시간이 되거나 균일한 세포 현탁액이 얻어질 때까지, 계속해서 배양하면서 30~60분 간격으로 기계적 해리 단계를 반복하십시오.
6. 세포 수집, 세척, 분주 및 초기 배양
- 해리된 세포가 포함된 효소 소화액을 THX 및 ABD 샘플용으로 지정된 각각의 15 mL 원뿔형 튜브(재료 표 참조)로 옮긴다.
- 각 소화 웰을 5 mL의 배양액으로 헹구고 이를 해당 튜브에 합친다.
- 세포 현탁액을 실온에서 400 × g로 5분 동안 원심분리한다.
- 펠렛 형성이 불충분한 경우 원심분리를 반복한다.
- 세포 펠렛이 흐트러지지 않도록 상층액을 제거한다(그림 3C).
- 5 mL의 신선한 배양액으로 세포를 재현탁하고, 동일한 조건에서 추가 세척 단계와 원심분리를 수행한다.
- 상층액을 제거하고 최종 세포 펠렛을 적절한 부피(통상 6 mL)의 완전 SMC 배양 배지에 재현탁한다.
- 흉부 또는 복부 대동맥 분절에서 얻은 전체 세포 현탁액을 6-웰 배양 플레이트의 두 웰에 분주하고(웰당 3 mL 현탁 배지), 37 °C, 5.0% CO₂ 조건에서 배양한다. 세포는 분리 직후 별도의 세포 계수 없이 분주하므로, 이 단계에서는 목표 파종 밀도를 설정하지 않는다.
- 세포 부착 및 초기 증식을 위해 5~7일 동안 배양물을 건드리지 않고 유지한다.
일시 중단 지점: 분주 후, 섹션 7의 세포 유지 및 증식 단계로 넘어가기 전까지 배양물을 배양기에서 5~7일 동안 유지할 수 있다.
7. 세포 유지 및 증식
- 배양액을 3~4일마다 교체합니다.
- 세포의 형태와 합류도(confluence)를 정기적으로 모니터링합니다.
- 합류도가 약 80~90%에 도달하면 세포를 계대 배양합니다.
- 배양액을 흡입하여 제거하고, 미리 데워둔 인산염 완충 식염수(PBS)(재료 표 참조)로 세포를 세척합니다.
- 0.05% trypsin-EDTA를 첨가하고 37 °C에서 5~10분 동안 배양합니다.
- 세포의 80%~90%가 떨어져 나왔을 때 다음 단계로 진행합니다.
- 배양 플레이트를 가볍게 두드려 세포의 분리를 돕습니다.
- trypsin을 중화시키기 위해 동일한 부피의 완전 배양액을 첨가합니다.
- 파이펫으로 조심스럽게 섞어 남아있는 세포를 분리합니다.
- 세포 현탁액을 원추형 튜브로 옮기고 400 × g에서 5분 동안 원심 분리합니다.
- 상층액을 제거하고 신선한 배양액으로 세포 펠릿을 재현탁합니다.
- 세포를 1:2 분할 비율(또는 원하는 실험 밀도)로 플레이트에 분주하고 37 °C, 5% CO₂ 조건에서 배양합니다. 세포가 안정적으로 부착될 때까지 24~48시간 동안 그대로 둡니다.
참고: 후속 실험을 위해서는 배양으로 인한 표현형 변화(phenotypic drift)를 최소화하기 위해 계대 3~7세대(P3–P7)의 세포를 사용하십시오. 7세대를 넘어선 세포는 표현형 변화가 일어나기 더 쉬우며, 형태 및 기능이 변할 수 있습니다.
8. α-SMA 면역형광 염색을 통한 검증
- 형광 현미경 관찰에 적합한 재료에서 세포를 배양한다.
- 96-well 광학 바닥 플레이트에 웰당 15,000 cells의 세포를 분주한다. 세포가 원하는 밀도(confluency)에 도달할 때까지 배양한다.
- 세포 고정 준비
- 부착 세포로부터 배양액을 흡입하여 제거한다. 0.1% Tween 20이 포함된 Tris-buffered saline (TBS-T) 를 웰당 200 µL씩 사용하여 1회당 5분씩 3회 세척한 후, 생물학적 안전 작업대(biological hood)의 진공 흡입기로 제거한다.
- 세포 고정
- 1x PBS에 희석된 4% paraformaldehyde (PFA)를 웰당 200 µL씩 첨가한다. 실온에서 10–20분간 배양한 후 흡입하여 제거한다.
- 투과화(Permeabilization)
- 1x PBS에 희석된 0.1% Triton X-100을 웰당 200 µL씩 첨가한다. 실온에서 10–15분간 배양한 후 흡입하여 제거한다.
- 비특이적 결합 차단(Blocking)
- TBS-T를 웰당 200 µL씩 사용하여 1회당 5분씩 3회 세포를 세척한다. TBS-T에 희석된 5% bovine serum albumin (BSA)를 웰당 200 µL씩 첨가한다.
- 플레이트를 오비탈 셰이커(orbital shaker)에 놓고 실온에서 약 200 rpm으로 1시간 동안 흔들어준다.
- 1차 항체 염색
- 5% BSA/TBS-T 용액으로 1차 α-SMA 항체를 1:1,000 비율로 희석하여 준비한다.
- 플레이트를 오비탈 셰이커에서 꺼내고 α-SMA 염색용 웰에서 차단 용액을 흡입하여 제거한다. 2차 항체 전용 대조군의 경우, 1차 항체 단계를 생략하고 웰을 5% BSA/TBS-T 상태로 유지한다.
- 희석된 1차 α-SMA 항체 200 µL를 실험군 웰에 각각 첨가한다. 실험군 웰과 2차 항체 전용 대조군 웰을 완만한 속도의 오비탈 셰이커 위에서 4 °C로 하룻밤 동안 배양한다.
- 2차 항체 염색
- 0.1% Tween 20이 포함된 TBS-T로 형광 2차 항체를 1:2,500 비율로 희석하여 준비한다.
- 플레이트를 오비탈 셰이커에서 꺼내고 모든 웰의 용액을 흡입하여 제거한다.
- 모든 웰을 TBS-T 200 µL로 1회당 5분씩 3회 세척한 후 흡입하여 제거한다.
- 2차 항체 전용 대조군을 포함한 모든 웰에 희석된 형광 2차 항체를 웰당 200 µL씩 첨가한다.
- 플레이트를 빛으로부터 차단하고 오비탈 셰이커에서 약 200 rpm으로 실온에서 1시간 동안 배양한다.
- 핵 염색 및 형광 이미지 촬영
- 2 µg/mL 농도의 Hoechst 33342 용액을 준비한다.
- TBS-T 200 µL로 1회당 5분씩 3회 세포를 세척한다. 세포가 충분히 덮일 정도의 Hoechst 33342 염색액을 첨가하고 빛을 차단한 상태에서 실온으로 10분간 배양한다.
- 도립 형광 현미경을 사용하여 형광 이미지를 획득한다. α-SMA가 염색된 THX 및 ABD 배양물은 20배 배율로, 2차 항체 전용 대조군은 10배 배율로 촬영하며, Hoechst 33342에는 385 nm 들뜸 파장을, 형광체 접합 2차 항체에는 475 nm 들뜸 파장을 사용한다. 2차 항체 전용 대조군은 시야 내에 충분한 수의 핵이 포함되도록 10배 배율로 촬영하였다.
- α-SMA 양성 세포의 정량 분석
- 명확한 α-SMA 양성 방추형 세포질 염색을 보이는 세포와 연관된 Hoechst 양성 핵의 수를 세어 α-SMA 양성 여부를 평가한다. 형광 신호가 모호하거나 불분명한 세포는 보수적으로 α-SMA 음성으로 판정한다.
- 평가된 현미경 시야 전체에서 확인된 Hoechst 양성 핵의 총 수에 대해 α-SMA 양성 세포 수의 비율을 계산하고 100을 곱하여 α-SMA 양성률을 산출한다.
결과
분리 후 24~48시간 이내에 일부 세포들이 배양 표면에 부착되어 퍼지기 시작하며, 초기에는 둥근 형태를 보입니다. 초기 시점에서는 세포 부착 정도가 다양할 수 있으며, 초기 분리 과정에서 회수된 생존 세포 수가 제한적이기 때문에 배양 상태가 희소해 보일 수 있습니다. 3~5일째가 되면 부착된 세포들은 혈관 평활근 세포(SMCs)의 전형적인 특징인 방추형의 길쭉한 형태를 점진적으로 띠게 되며, 증식을 시작하여 작은 군집을 형성합니다. 대동맥 분리, 분절화, 효소 소화, 기계적 해리 및 세포 도말을 포함한 실험 워크플로우의 개략적인 개요는 그림 1에 나타나 있습니다.
대동맥 분리, THX 및 ABD 영역으로의 해부학적 분할, 그리고 외막 층 제거의 대표 이미지가 그림 2에 제시되어 있다. THX 및 ABD 대동맥 영역은 그림 2B에 표시된 바와 같이 횡격막에 대한 해부학적 위치를 기준으로 구분하였다. 효소 소화, 기계적 분리, 그리고 원심분리 후 가시적인 세포 펠렛 형성의 대표 이미지가 그림 3에 제시되어 있다.
세포 수와 생존율은 Trypan blue 배제법 (1:1) 및 Countess 자동 세포 계수기를 사용하여 계대 배양 3세대에서 평가하였다. 데이터는 총 6마리의 마우스(분리당 마우스 2마리)를 이용한 3회의 독립적인 분리 실험을 통해 얻었다. THX 배양물은 평균 세포 수 5.10 × 10⁵ ± 7.81 × 10⁴ cells (범위, 4.20 × 10⁵–5.60 × 10⁵) 및 생존율 66.33 ± 18.18% (범위, 46–81%)를 나타냈다. ABD 배양물은 평균 세포 수 4.63 × 10⁵ ± 2.31 × 10⁴ cells (범위, 4.50 × 10⁵–4.90 × 10⁵) 및 생존율 61.66% ± 12.01% (범위, 50%–74%)를 나타냈다 (표 1).
5~7일째가 되면 배양 세포는 일반적으로 약 70%~90%의 합류도(confluence)에 도달하며, 조밀하고 비교적 균일한 단층을 형성합니다. 세포들은 일반적으로 수축성 계통을 반영하여 평행한 방향으로 정렬됩니다. THX와 ABD SMC 간에 증식 속도와 세포 밀도의 차이가 관찰될 수 있으며, 이는 대동맥의 알려진 지역적 이질성과 일치합니다. 저배율(10x) 및 고배율(20x)에서 촬영한 THX 및 ABD 대동맥 분절 유래 일차 SMC 형태의 대표적인 위상차 이미지들이 그림 4에 제시되어 있습니다.
SMC는 특징적인 길쭉한 방추형 형태, 합류 시 평행한 배열, 그리고 균일한 성장 패턴을 보이는 반면, 섬유아세포 유사 세포는 일반적으로 더 납작하고 불규칙한 형태와 덜 조직적인 방향성 및 불균일한 퍼짐성을 나타냅니다. 이러한 형태적 및 성장적 특성은 분자적 검증이 없는 상태에서 일차 배양 내 SMC 집단을 식별할 수 있는 실용적이고 재현 가능한 방법을 제공합니다. 성공적인 분리는 24–48 h 이내의 빠른 세포 부착, 점진적인 방추형 형태 획득, 그리고 5–7일 차까지의 합류 단층 형성로 확인할 수 있습니다. 세포는 일반적으로 더 높은 합류도에서 평행 배열로 정렬되며, 이는 평활근 표현형과 일치합니다. 최적이지 않은 결과로는 세포 부착 불량, 낮은 세포 수율, 또는 납작하고 불규칙한 모양의 세포 출현 등이 있으며, 이는 불완전한 소화, 과도한 효소 노출 또는 비평활근 세포 집단의 오염을 나타낼 수 있습니다.
일관된 세포 생존율과 최소한의 섬유아세포 유사 오염은 성공적인 분리를 더욱 뒷받침합니다. SMC 정체성을 추가로 검증하기 위해, 섹션 8에 기술된 절차를 사용하여 대표적인 일차 배양 세포를 α-SMA로 면역염색하였습니다(그림 5). THX 및 ABD 배양 세포 모두 혈관 SMC에서 기대되는 특유의 필라멘트형 α-SMA 염색 패턴을 나타냈습니다. 4개의 현미경 시야에 걸쳐 정량 분석한 결과, 평가된 72개의 Hoechst 양성 세포 중 69개의 α-SMA 양성 세포가 확인되었으며, 이는 전체 α-SMA 양성률 95.8%(95% CI, 88.5%–98.9%)에 해당합니다. 구체적으로 THX 세포 20/20개와 ABD 세포 49/52개가 α-SMA 양성이었습니다. 그림 5는 평가된 시야 중 대표적인 이미지를 보여줍니다.
초기 계대 배양 동안 세포는 안정적인 형태와 증식 능력을 유지합니다. 그러나 배양 기간이 길어지면 세포의 퍼짐 증가, 정렬 감소 및 성장 패턴의 변화를 포함하여 표현형 변조의 특성이 점차 나타날 수 있습니다.
이러한 조건 하에서 일차 SMC 배양물은 유전자 녹다운, 약물 처리, 그리고 혈관 리모델링 및 대동맥류 발생에 관여하는 경로의 기전 연구를 포함한 후속 응용 연구에 적합합니다.
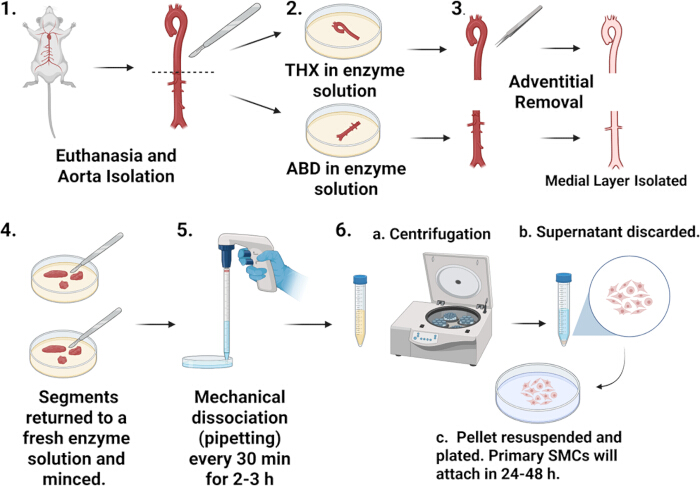
그림 1: 작업 흐름도 개요. 마우스 대동맥 평활근 세포 분리의 주요 작업 흐름을 나타낸 모식도입니다. 패널 1은 안락사와 대동맥 분리를 보여줍니다. 패널 2는 THX 및 ABD 대동맥 분절을 효소 소화액으로 분리하는 과정을 보여줍니다. 패널 3은 외막 제거 및 중막 층의 분리를 보여줍니다. 패널 4는 조직 분절을 신선한 효소 용액으로 되돌려 잘게 다지는 과정을 보여줍니다. 패널 5는 2–3 h 동안 매 30 min마다 파이펫팅을 통한 기계적 해리를 보여줍니다. 패널 6은 세포 회수 및 도말 과정으로, 6a 원심분리, 6b 상층액 제거, 6c 펠렛 재현탁 및 도말을 포함합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
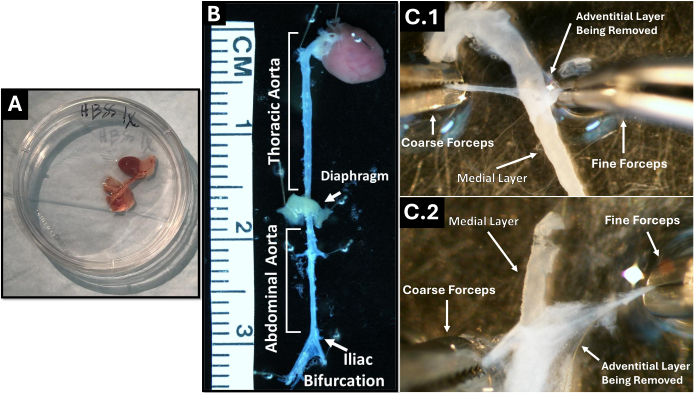
그림 2: 마우스 대동맥 분절의 분리 및 준비. (A) 분리하여 배양 접시에 놓은 전체 대동맥. (B) 횡격막과 장골 분지부를 포함하여 THX 및 ABD 영역을 나타내는 해부학적 지표가 표시된 세척된 대동맥. (C) 미세 및 거친 핀셋을 사용하여 THX(위) 및 ABD(아래) 분절에서 외막을 제거한 대표 이미지로, 평활근 세포 분리에 중요한 하부의 중막 층이 드러나 있음. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
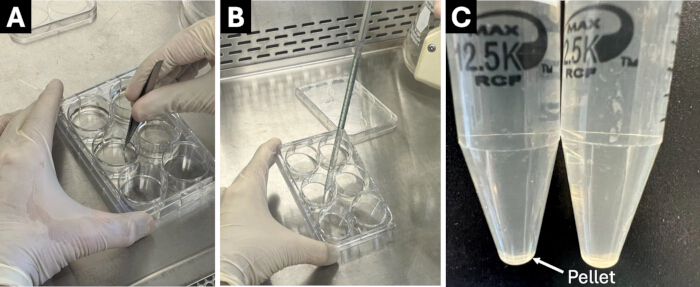
그림 3: 대동맥 조직의 효소 소화 및 기계적 해리. (A) 외막층을 제거한 후, 중막층을 신선한 효소 용액으로 옮기고 작은 가위로 잘게 다진다. (B) 부드러운 피펫팅을 통한 대동맥 조각의 기계적 해리 예시. (C) 효소 소화 및 원심분리 후, 가시적인 세포 펠릿이 관찰된다. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
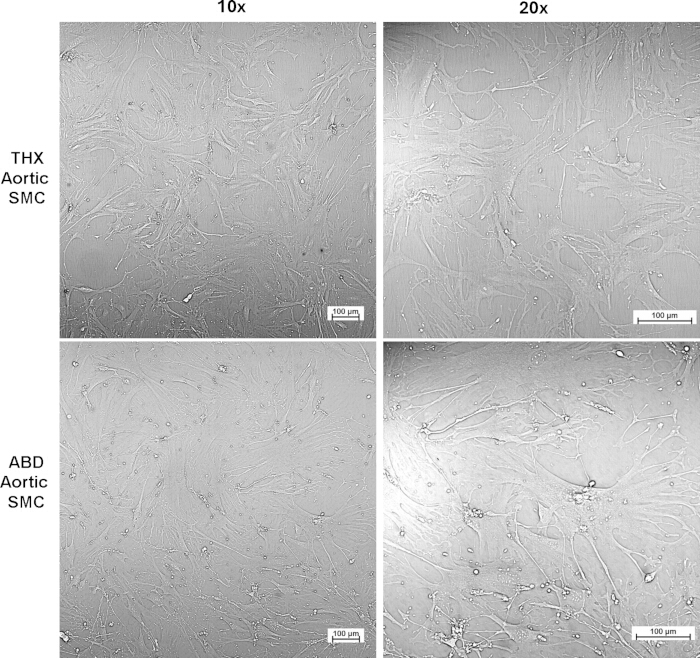
그림 4: 일차 마우스 대동맥 평활근 세포(SMCs)의 대표적인 형태. 흉부 및 복부 대동맥 절편에서 분리한 일차 SMC를 표준 조건에서 배양하고 계대 4세대에 이미지화하였다. 저배율(10x) 및 고배율(20x)에서의 대표적인 위상차 이미지를 보여준다. 세포는 수축성 SMC 표현형과 일치하는 특징적인 방추형의 길쭉한 형태와 정렬을 나타낸다. THX 유래 SMC와 ABD 유래 SMC 간에 세포 밀도 및 조직의 차이가 관찰될 수 있으며, 이는 지역적 이질성을 반영한다. 스케일 바 = 100 µm. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
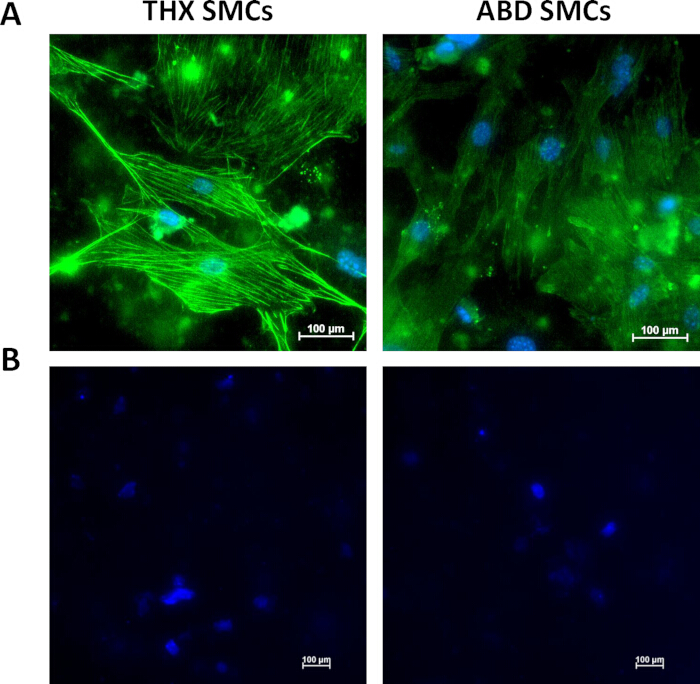
그림 5: 일차 마우스 대동맥 SMC의 면역형광 검증. (A) THX(왼쪽) 및 ABD(오른쪽) 대동맥에서 분리하여 α-SMA(녹색)로 염색한 일차 SMC의 대표 면역형광 이미지. 핵은 Hoechst 33342(청색)로 대조 염색되었다. 이미지는 20배 배율에서 획득되었다. (B) α-SMA 일차 항체 없이 처리하고 Hoechst 33342(청색)로 대조 염색한 THX(왼쪽) 및 ABD(오른쪽) 일차 SMC의 대표적인 이차 항체 단독 대조군 이미지. 이미지는 10배 배율에서 획득되었다. 4개의 현미경 시야에 걸쳐 정량 분석한 결과, 72개 세포 중 69개가 α-SMA 양성(95.8%)으로 확인되었다. 스케일 바 = 100 µm. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
| 일차 마우스 대동맥 평활근 세포 배양의 세포 수 및 생존율 측정 | |||
| 대동맥 분절 | 독립적 분리, n | 세포 수 (평균) ± 표준편차(SD)* | 세포 생존율 (평균 ± 표준편차(SD)† |
| 감사합니다 | 3 | 5.10 x 10⁵ ± 7.81 x 10⁴ 세포 | 66.33 ± 18.18 % |
| 복부(ABD) | 3 | 4.63 x 10⁵ ± 2.31 x 10⁴ 세포 | 61.66 ± 12.01 % |
| 세포 수는 3회의 독립적인 분리 과정으로부터 얻은 계대 배양 3세대의 세포를 통해 측정되었습니다. | |||
| †세포 수와 생존율은 Countess 자동 세포 계수기를 사용하여 1:1 트립판 블루 배제법으로 측정하였다. | |||
표 1: 일차 마우스 대동맥 평활근 세포 배양의 세포 수 및 생존율
| 단계 | 문제점 | 가능한 원인 | 권장 해결책 |
| 대동맥 박리 | 낮은 세포 수율 | 대동맥 회수 미흡 또는 박리 중 조직 손상 | 대동맥 근부부터 장골 분지점까지 완전히 분리되었는지 확인하고, 손상을 방지하기 위해 조직을 부드럽게 다룸 |
| 대동맥 세척 | 섬유아세포 오염 | 외막 조직 제거 미흡 | 1차 소화 후 외막을 조심스럽게 제거함; 이는 SMC 순도 유지에 매우 중요함 |
| 1차 소화 | 외막 제거의 어려움 | 효소에 의한 이완 부족 | 기계적 제거를 시도하기 전 적절한 배양 시간(8-10 min)을 준수함 |
| 효소 소화 | 낮은 세포 수율 | 조직의 소화 부족 | 소화 시간을 약간 연장하거나 기계적 해리 빈도를 높임 |
| 효소 소화 | 낮은 세포 생존율 | 과도한 소화 또는 효소 노출 과다 | 소화 시간을 단축하고 장시간 배양을 피함 |
| 기계적 해리 | 세포 방출 불량 | 피펫팅 부족 | 30-60 min마다 부드럽게 반복적으로 피펫팅을 수행함 |
| 세포 부착 | 플레이트 부착 불량 | 세포 손상 또는 낮은 배지 온도 | 미리 데워진 배지를 사용하고 조작 스트레스를 최소화함 |
| 초기 배양 | 세포 성장 없음 | 낮은 생존율 또는 오염 | 소화 조건 및 무균 상태를 확인하고, 필요 시 분리 과정을 반복함 |
| 세포 형태 | 비방추형 모양(둥글거나 납작한 세포가 지속됨) | 오염 또는 표현형 변이 | 외막 제거 여부를 확인하고, 과성장 및 장기 배양을 피함 |
| 세포 성장 | 느린 증식 | 혈청 농도 부적절 | 초기 확장 단계에서 20% FBS를 사용함 |
| 합일도 | 과합일된 세포의 계대 배양 어려움 | 분할 시기 지연 | 합일도가 80-90%일 때 세포를 계대 배양함 |
| 계대 배양 | 탈착 불량 | 세포가 과하게 합일되었거나 트립신 처리 부족 | 트립신 노출 시간을 약간 늘리고 기계적으로 탈착을 도움 |
| 장기 배양 | SMC 표현형 소실 | 높은 계대 횟수 또는 장기 배양 | 계대 3-7 세대 사이의 세포를 사용함 |
| 재현성 | 분리 시마다 발생하는 변동성 | 기술적 차이 또는 생물학적 변이 | 실험 전반에 걸쳐 효소 준비, 타이밍 및 조작 과정을 표준화함 |
표 2: 1차 마우스 대동맥 평활근 세포의 분리 및 배양을 위한 문제 해결 가이드. 1차 마우스 대동맥 평활근 세포의 분리, 소화 및 배양 과정에서 발생하는 일반적인 기술적 문제들과 재현성을 높이기 위한 잠재적 원인 및 권장 해결 방법의 요약.
토론
본 프로토콜은 in vitro 연구를 위해 일차 마우스 대동맥 평활근 세포(SMCs)를 분리하고 배양하는 견고하고 재현 가능한 방법을 제공합니다. 이러한 접근 방식은 기술적인 유용성 외에도 혈관 리모델링 및 대동맥류 발생의 근저에 있는 메커니즘을 조사하는 데 매우 적합합니다. 혈관 염증 및 동맥류 형성에 있어 레닌-안지오텐신 시스템(RAS)과 Ang II의 확립된 역할15,16을 고려할 때, 일차 대동맥 SMC의 분리는 이러한 경로를 세포 수준에서 심층 연구할 수 있는 가치 있는 접근법을 제공합니다.
성공을 결정짓는 핵심 요인은 외막 조직을 철저하게 제거하는 것입니다. 외막에는 섬유아세포 및 기타 비-SMC 세포군이 포함되어 있으며, 이를 적절히 제거하지 않으면 배양 시 SMC보다 더 빠르게 증식할 수 있습니다. 짧은 초기 효소 소화 단계는 외막과 중막의 기계적 분리를 용이하게 하여 더욱 정밀한 박리를 가능하게 합니다. 이 단계를 효과적으로 수행하지 못하는 것은 SMC 분리 프로토콜에서 오염과 변동성이 발생하는 가장 흔한 원인 중 하나입니다.
효소 소화 조건 또한 세심하게 최적화해야 합니다. collagenase type II, elastase 및 soybean trypsin inhibitor의 조합은 세포 생존력을 유지하면서 세포외 기질 성분을 효율적으로 분해할 수 있게 합니다. 그러나 소화 과정은 면밀히 모니터링해야 합니다. 소화가 불충분하면 조직 해리가 불완전해져 세포 수율이 감소하며, 반대로 과도한 소화는 세포를 손상시키고 부착력을 저하시키며 생존력을 떨어뜨릴 수 있습니다. 따라서 부드럽게 반복적으로 피펫팅하는 기계적 해리 과정은 효소에 과도하게 노출되는 것을 최소화하면서 세포 방출을 촉진하는 필수적인 보완 단계입니다. 이러한 단계들은 세포 수율과 생존력을 모두 최적화하기 위해 효소적 처리와 기계적 처리의 균형을 맞추는 것이 중요함을 보여줍니다. 또한, 분리 작업 간의 재현성을 높이기 위해서는 전체 과정 동안 소화 시간, 조직 취급 및 기계적 해리를 일관되게 유지하는 것이 매우 중요합니다.
배양 조건은 SMC의 표현형과 기능을 유지하는 데 핵심적인 역할을 합니다. 고농도 혈청 배지(20% fetal bovine serum)는 분리 후 일차 세포의 초기 부착과 증식을 돕습니다. 표준 혈청 제제에 포함된 호르몬 및 지질 성분으로 인한 변동성을 줄이기 위해 Charcoal/dextran 처리 혈청이 사용되었습니다. 하지만 고농도 혈청에 장기간 노출되거나 배양 기간이 길어지면 합성 또는 섬유아세포 유사 상태로의 표현형 변화가 촉진될 수 있습니다. 이러한 영향을 최소화하기 위해 초기에서 중기 계대(P3–P7)의 세포를 사용하고, 형태를 변화시키고 증식 능력을 저하시킬 수 있는 과밀 성장 조건을 피하는 것이 권장됩니다.
분리된 세포의 형태는 배양 품질을 판단하는 중요한 초기 지표가 됩니다. 건강한 SMC는 특유의 방추형의 길쭉한 형태를 보이며, 세포 밀도가 높아짐에 따라 평행하게 배열됩니다. 세포가 납작해지거나 불규칙한 모양을 띠는 등 이러한 형태에서 벗어나는 것은 오염, 최적화되지 않은 배양 조건 또는 표현형 변화(phenotypic drift)를 나타낼 수 있습니다. 수축형에서 합성형 상태로의 표현형 전환을 시사하는 형태학적 특징으로는 세포 퍼짐 증가, 방추형 형태의 감소, 평행 배열의 상실 및 더 불균일한 성장 패턴 등이 있습니다.
형태학적 평가는 유용한 정보를 제공하지만, 평활근세포(SMC)의 표현형을 확정적으로 결정하기에는 불충분하며, 다음과 같은 마커를 이용한 분자적 검증으로 보완되어야 합니다. α-응용 분야에 따라 SMA 및 MYH11을 사용합니다. 본 연구에서는, α-SMA 면역형광 염색을 통해 분리된 세포의 동일성을 확인하였으며, 높은 비율의 αTHX 및 ABD 배양 모두에서 SMA 양성 세포 (그림 5). 이 프로토콜의 주요 장점은 흉부(THX) 및 복부(ABD) 분절을 포함한 서로 다른 대동맥 부위에서 평활근세포(SMC)를 분리할 수 있다는 점입니다. 이러한 부위들은 세포외 기질 구성, 배아기 기원 및 질병 취약성을 포함하여 내재적인 생물학적 차이를 보입니다. 부위 특이적 평활근세포의 분리를 통해 혈관 생물학의 공간적 이질성을 조사할 수 있으며, 이는 부위 특이적인 동맥류 형성 취약성에 대한 통찰을 제공할 수 있습니다.16,17,18기존의 마우스 대동맥 혈관평활근세포(VSMC) 분리 방법은 하룻밤 동안 콜라게나아제(collagenase)를 처리하여 소화시키거나13 효소 소화를 4~6시간 동안 진행하며, 5~6시간 진행했을 때 더 나은 회수율을 보이는 것으로 보고되었다.14본 프로토콜에서 사용된 8~10분간의 전소화 후 2~3시간의 소화 과정과 비교하면, 안락사부터 세포 도말까지 총 처리 시간은 약 4시간이 소요됩니다. Adhikari 등은 25~35 × 103 5일 배양 후 mL당 생존 세포 수 및 sm22에 대해 97%–99%의 양성률α 및 Acta2였으나, 본 프로토콜에서는 계대 3세대 세포 수가 5.10으로 측정되었다. × 105 ± 7.81 × 10⁴ THX 및 4.63용 세포 × 105 ± 2.31 × 10⁴ 전반적인 ABD용 세포들 α-SMA 양성률 95.8%. Hubert 등은 하룻밤 동안 소화를 진행하였으나, 정량적인 세포 수율이나 순도 백분율은 보고하지 않았다.13,14이와 대조적으로, McMurray 등이 제시한 외식편 기반 방법은 정상 대동맥 외식편으로부터 평활근세포(SMC)가 성장하기까지 평균 약 7.6일의 지체기가 필요했으며, >10일 차까지 외식편의 90%에서 성장이 관찰되었으며 >12일 차에 95%에 도달하는 반면, 본 효소법은 세포 분리 당일에 분리된 세포를 직접 플레이팅하는 것을 가능하게 한다.18본 프로토콜은 외막 제거를 용이하게 하는 짧은 사전 소화 단계와 표준화된 소화 및 기계적 해리 조건을 결합하여, 일관된 조직 처리와 세포 회수를 촉진합니다. 흉부(THX) 및 복부(ABD) 평활근세포(SMC)의 부위 특이적 분리와 더불어, 단축된 처리 시간과 세포 회수의 정량적 특성 분석 및 α-SMA 양성 반응은 재현성을 위한 실질적인 이점을 제공합니다 인비트로(in vitro) 연구들.
이 방법은 유전적 및 약리학적 조작을 포함하는 기전 연구에 매우 적합합니다. 일차 SMC 배양은 siRNA 매개 넉다운을 포함한 유전자 침묵 접근법뿐만 아니라 과발현 연구 및 약물 처리에 활용될 수 있습니다. 이러한 접근법을 통해 대동맥류의 발생 및 진행에 핵심적인 과정인 SMC 표현형 전환, 염증 및 세포외 기질 리모델링에 관여하는 신호 전달 경로를 직접적으로 조사할 수 있습니다1,5.
질병 모델링의 관점에서 이 프로토콜의 한계점을 고려하는 것이 중요합니다. 본 프로토콜에서 사용되는 평활근 세포는 질병이 없는 마우스 대동맥에서 분리되었으므로, 본질적으로 동맥류 관련 표현형을 나타내지 않습니다. 따라서 염증성 활성화, 세포외 기질 리모델링, 표현형 전환과 같은 질병 관련 과정을 재현하려면 약리학적 자극, 유전자 조작 또는 인비보(in vivo) 모델과의 통합을 포함한 추가적인 실험적 접근 방식이 필요합니다. 위에 설명한 고려 사항 외에도 이 프로토콜에는 몇 가지 한계가 있습니다. 동물 간의 생물학적 차이 또는 기술적인 미세한 차이로 인해 분리 시마다 세포 수율과 성장 역학에 변동이 발생할 수 있습니다. 또한, 효소 소화 기반의 분리 방식은 세포 표면 수용체 발현이나 신호 전달 경로에 영향을 줄 수 있으며, 이는 이후의 기능 연구 결과를 해석할 때 고려되어야 합니다. 일차 배양된 SMC는 계대 배양 횟수가 증가함에 따라 수축성 표현형을 점진적으로 상실하며, 이는 실험 결과에 영향을 미칠 수 있습니다. 절차의 세심한 표준화와 초기 계대 세포의 사용을 통해 이러한 한계점을 완화할 수 있습니다. 이 프로토콜의 일반적인 기술적 문제와 권장 해결책은 표 2에 요약되어 있습니다.
요약하자면, 본 프로토콜은 일차 마우스 대동맥 SMC의 분리 및 배양을 위한 신뢰할 수 있고 유연한 프레임워크를 제공합니다. 이 접근법을 in vivo 모델과 결합하면 혈관 리모델링 및 대동맥류 병인 기저에 있는 세포 및 분자 메커니즘을 종합적으로 조사할 수 있습니다.
공개 사항
저자들은 이해관계의 충돌이 없음을 밝힙니다. 언어 편집 및 문법 교정을 위해 Grammarly가 사용되었으며, 모든 과학적 내용과 해석은 저자들에 의해 작성되었습니다.
감사의 글
본 연구는 켄터키 대학교 의과대학의 부분적인 재정 지원을 받았습니다. 그래픽 초록(그림 1)은 학술 출판 라이선스(출판 합의 번호 GI2A3W9TY8)에 따라 BioRender.com을 사용하여 제작되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.2 μm 나일론 시린지 필터 | VWR | 76439-080 | 멸균 여과 |
| 15 mL 원뿔형 튜브 | VWR | — | 세척 후 대동맥 이송 및 세포 수집용 |
| 6-well / 12-well 배양 플레이트 (미처리) | Corning | — | 세포 배양 |
| 50 mL 원뿔형 튜브 | VWR | — | 세포 수집 |
| 96-well 광학 바닥 마이크로플레이트 | Thermo Fisher Scientific | 165305 | SMC 검증용 |
| α-평활근 액틴 항체 (단클론) | Cell Signaling Technology | 19245S | SMC 검증용; 1:1000 희석 사용 |
| Alexa Fluor 488 IgG 2차 항체 (다클론) | Invitrogen | A-11008 | SMC 검증용; 1:2500 희석 사용 |
| Amphotericin B | Thermo Fisher Scientific | 15290018 | 항진균제 |
| 소혈청 알부민 (Bovine Serum Albumin) | Sigma-Aldrich | A7906 | SMC 검증용 |
| CO2 인큐베이터 (37 °C) | Various | — | 세포 배양 조건 유지 |
| Collagenase Type II | Worthington Biochemical | LS004174 | 효소 소화용; 260 U/mg 사용 |
| Countess 자동 세포 계수기 | Invitrogen | C10281 | 세포 수 측정용 |
| 해부 현미경 | Various | — | 조직 세척 |
| DMEM/F12 배지 | Thermo Fisher Scientific | 21041-025 | 기본 배양 배지 |
| Elastase | Worthington Biochemical | LS002279 | 매트릭스 분해용; 단백질 mg당 4.17 U 사용 |
| 태아 송아지 혈청 (숯/덱스트란 처리) | Cytiva (Hyclone) | SH30068.03 | 배양 시 20% 농도로 사용 |
| Ca2+ 및 Mg2+ 함유 HBSS | Thermo Fisher Scientific | 14025-092 | 소화 완충액으로 사용 |
| Hoechst 33342 용액 | BD Pharmingen | 561908 | SMC 검증용 |
| Hot Bead 멸균기 | Fine Science Tools | 18000-45 | 대동맥 추출용 |
| Ketamine | Dechra | — | 마우스 마취용 |
| Penicillin/Streptomycin | Thermo Fisher Scientific | 15140122 | 항생제 |
| 인산 완충 식염수 (PBS) | Thermo Fisher Scientific | 20012-027 | 세척 완충액 |
| 염화나트륨 | Fisher Scientific | BDH9286 | SMC 검증용; 150 mM 작동 농도 (1 L당 8.8 g) |
| 대두 트립신 억제제 (Soybean Trypsin Inhibitor) | Worthington Biochemical | LS003570 | 과도한 소화 방지 |
| Tris Base | Fisher Scientific | BP152 | SMC 검증용; 20 mM 작동 농도 (1 L당 2.4 g) |
| Triton X-100 | Fisher Scientific | BP151 | SMC 검증용; 0.1% 작동 농도 |
| Trypan Blue 염색약 | Thermo Fisher Scientific | T10282 | 세포 수 측정용 |
| Trypsin-EDTA (0.05%) | Thermo Fisher Scientific | 15400054 | 계대 배양용 |
| Tween 20 | Fisher Scientific | BP337 | SMC 검증용; 0.1% 작동 농도 |
| Xylazine | Covetrus | 61035 | 마우스 마취용 |
| 선택 사항 재료 (사용 시) | |||
| 배양 플라스크 (T25/T75) | Corning | — | 세포 확장 |
참고문헌
- Ensor M, et al. Nicotine promotes Ang II-induced abdominal aortic aortopathies in female and male mice: role of sex hormones. Clin Sci (Lond). 2025;139(8):411-429.
- Ailawadi G, et al. Smooth muscle phenotypic modulation is an early event in aortic aneurysms. J Thorac Cardiovasc Surg. 2009;138(6):1392-1399.
- Frismantiene A, Philippova M, Erne P, Resink TJ. Smooth muscle cell-driven vascular diseases and molecular mechanisms of VSMC plasticity. Cell Signal. 2018;52:48-64.
- Alsiraj Y, et al. Female mice with an XY sex chromosome complement develop severe angiotensin II-induced abdominal aortic aneurysms. Circulation. 2017;135(4):379-391.
- Thatcher SE, et al. Exogenous 17-β estradiol administration blunts progression of established angiotensin II-induced abdominal aortic aneurysms in female ovariectomized mice. Biol Sex Differ. 2015;6:12.
- Daugherty A, Manning MW, Cassis LA. Angiotensin II promotes atherosclerotic lesions and aneurysms in apolipoprotein E-deficient mice. J Clin Invest. 2000;105(11):1605-1612.
- AlSiraj Y, et al. Monosomy X in female mice influences the regional formation and augments the severity of angiotensin II-induced aortopathies. Arterioscler Thromb Vasc Biol. 2021;41(1):269-283.
- Alsiraj Y, et al. Sex chromosome complement defines diffuse versus focal angiotensin II-induced aortic pathology. Arterioscler Thromb Vasc Biol. 2018;38(1):143-153.
- Alsiraj Y, et al. Therapeutic assessment of combination therapy with a neprilysin inhibitor and angiotensin type 1 receptor antagonist on angiotensin II-induced atherosclerosis, abdominal aortic aneurysms, and hypertension. J Pharmacol Exp Ther. 2021;377(3):326-335.
- AlSiraj Y, et al. Serotonin 3 receptor antagonism reduces angiotensin II-induced abdominal aortic aneurysms: contribution of periaortic fat-derived serotonin. J Pharmacol Exp Ther. 2025;392(2):100533.
- AlSiraj Y et al. Role of adipocyte angiotensinogen or angiotensin type 1A receptors in the development of diet-induced atherosclerosis or angiotensin II-induced abdominal aortic aneurysms. JVS Vasc Sci. 2025;7:100397.
- Alexander MR, Owens GK. Epigenetic control of smooth muscle cell differentiation and phenotypic switching in vascular development and disease. Annu Rev Physiol. 2012;74:13-40.
- Hubert MO, Rodriguez-Vita J, Wiedmann L, Fischer A. Isolation of murine primary aortic smooth muscle cells. Bio Protoc. 2021;11(3):e3907.
- Adhikari N, et al. Guidelines for the isolation and characterization of murine vascular smooth muscle cells. A report from the International Society of Cardiovascular Translational Research. J Cardiovasc Transl Res. 2015;8(3):158-163.
- AlSiraj Y, Woolley C, Thatcher SE, Cassis LA. Sex differences and the role of the renin-angiotensin system in atherosclerosis and abdominal aortic aneurysms. In: Sex Differences in Cardiovascular Physiology and Pathophysiology. Academic Press; 2019:167-184.
- Boese AC, et al. Sex differences in vascular physiology and pathophysiology: estrogen and androgen signaling in health and disease. Am J Physiol Heart Circ Physiol. 2017;313(3):H524-H545.
- Majesky MW. Developmental basis of vascular smooth muscle diversity. Arterioscler Thromb Vasc Biol. 2007;27(6):1248-1258.
- McMurray HF, Parrott DP, Bowyer DE. A standardised method of culturing aortic explants, suitable for the study of factors affecting the phenotypic modulation, migration and proliferation of aortic smooth muscle cells. Atherosclerosis. 1991;86(2-3):227-237.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공