본 논문은 공공 전사체 데이터셋, 머신러닝, 외부 검증, 정량적 역전사 PCR, Connectivity Map 스크리닝 및 분자 도킹을 통합하여 폐고혈압 바이오마커와 후보 치료 화합물을 식별하는 재현 가능한 생물정보학 워크플로우를 제시합니다.
이 논문에서
요약
초록
본 연구는 공공 전사체 데이터와 독립적인 검증 리소스를 사용하여 폐고혈압(PH) 관련 분자 바이오마커와 후보 저분자 화합물을 식별하는 것을 목표로 하였다. 정규화, 프로브 주석 달기 및 ComBat 배치 효과 보정을 거쳐 세 개의 Gene Expression Omnibus 데이터 세트(GSE22356, GSE33463, GSE48149)를 통합하였다. 핵심 특징 유전자를 식별하기 위해 차별 발현 분석, 가중 유전자 공발현 네트워크 분석, 기능적 농축 분석, 단백질-단백질 상호작용 네트워크 분석 및 세 가지 머신러닝 알고리즘이 사용되었다. 진단 성능은 수신자 조작 특성 곡선을 사용하여 평가하였다. 외부 검증에는 독립적인 폐 조직 코호트(GSE117261), 폐동맥 단일 세포 RNA 시퀀싱 데이터 세트(GSE210248) 및 독립적인 폐 조직 샘플에서의 정량적 역전사 PCR 검증이 포함되었다. 후보 화합물을 스크리닝하기 위해 Connectivity Map 기반의 약물 재창출 및 분자 도킹이 사용되었다. 78개의 차별 발현 유전자가 식별되었으며, CXCL10, JUN, IFIH1, MX1, TLR7이 핵심 특징 유전자로 선정되었다. 독립적인 GSE117261 폐 조직 코호트에서 JUN이 가장 강력한 외부 지지력을 보인 반면, 다른 유전자들의 재현성은 다양하게 나타났다. 20개의 생물학적으로 독립적인 폐동맥 고혈압 샘플과 20개의 대조군 샘플을 대상으로 한 정량적 역전사 PCR 결과, 5개 유전자 모두의 발현 증가가 확인되었다. 겉보기 5개 유전자 qRT-PCR 모델과 100회 반복 층화 5겹 교차 검증 분석 모두 곡선 아래 면적 1.000을 나타냈으나, 소규모 코호트 특성상 신중한 해석과 독립적인 전향적 검증이 필요하다. GSE210248의 단일 세포 분석은 면역 세포와 구조 세포 간의 소통 변화 및 평활근 세포의 표현형 전환을 뒷받침하였다. Connectivity Map 스크리닝에서는 BRD-K91900765/VX-745가 가장 높은 순위를 차지했다. VX-745의 확립된 약리학적 표적인 MAPK14/p38α는 양성 참조 도킹 단백질로 포함되었으며, 5가지 바이오마커 관련 단백질에 대한 도킹은 탐색적으로 처리되었다. 이러한 결과는 5개 유전자가 PH 후보 바이오마커이며, VX-745가 실험적 검증이 필요한 계산적 약물 재창출 가설임을 뒷받침한다.
서론
폐고혈압(PH)은 지속적으로 상승된 폐동맥압, 증가된 폐혈관 저항, 그리고 최종적인 우심실 부전으로 특징지어지는 진행성 심폐 증후군입니다. 현재의 혈역학적 기준에 따르면, 폐고혈압은 휴식 시 평균 폐동맥압이 >우심카테터 삽입술로 측정한 20 mmHg1다양한 임상적 하위 유형 중 폐동맥 고혈압(PAH)은 가장 심각한 형태 중 하나이며, 진행성 폐혈관 리모델링을 특징으로 합니다. 그 병리적 특성으로는 내피세포 기능 장애, 폐동맥 평활근 세포의 비정상적인 증식 및 이동, 외막 섬유아세포 활성화, 세포외 기질 침착, 염증 세포 침윤, 그리고 말단 폐동맥의 협착 또는 폐쇄 등이 있습니다.2이러한 변화는 PH/PAH가 단순한 혈관 수축 장애뿐만 아니라, 조절된 분자적, 세포적 및 면역 염증 기전에 의해 유도되는 복합적인 혈관 리모델링 질환임을 나타냅니다.
현재의 PAH 치료법은 주로 프로스타사이클린, 엔도텔린, 산화질소-可溶性 guanylate cyclase 및 phosphodiesterase type 5 경로를 대상으로 합니다3˒4. 이러한 치료법들은 증상, 운동 능력 및 혈역학적 파라미터를 개선시키지만, 그 효과는 주로 혈관 확장 및 혈역학적 작용에 머물러 있습니다. 이미 진행된 폐혈관 리모델링을 되돌리는 능력은 제한적이며, 많은 환자들이 병용 요법에도 불구하고 계속해서 질환의 진행을 경험합니다. 따라서 리모델링 과정을 반영하는 새로운 분자 생체지표 및 치료 후보 물질을 발굴하는 것은 매우 중요한 미충족 수요입니다. 특히 면역-염증 활성화, 인터페론 관련 신호 전달, Toll-like receptor 경로, 케모카인 매개 면역 세포 모집 및 평활근 세포의 표현형 전환이 PH/PAH 진행의 잠재적 기여 요인으로 부상했습니다5˒6.
고처리량 전사체 데이터셋은 PH/PAH에서 질병 관련 분자 시그니처를 식별하는 데 귀중한 자원을 제공합니다. 그러나 단일 데이터셋 기반의 연구는 종종 적은 샘플 크기, 배치 효과, 플랫폼의 이질성 및 불충분한 검증으로 인해 제한적입니다. 차등 발현 분석은 발현이 변화된 유전자를 식별할 수 있지만, 질병 관련 공동 발현 모듈이나 네트워크 수준의 상호작용을 완전히 포착하지 못할 수 있습니다. 가중 유전자 공동 발현 네트워크 분석(WGCNA)은 질병 특성과 관련된 유전자 모듈을 식별할 수 있는 반면, 단백질-단백질 상호작용(PPI) 네트워크 분석은 생물학적 네트워크 내에서 연결성이 높은 유전자를 밝혀낼 수 있습니다. 또한 기계 학습 방법은 진단 또는 분류 가치가 있는 유전자의 우선순위를 정할 수 있습니다. 하지만 단일 알고리즘에 의존하면 모델 특유의 편향이 발생할 수 있습니다. 따라서 차등 발현 분석, WGCNA, PPI 네트워크 분석 및 여러 기계 학습 알고리즘을 통합하면 바이오마커 발굴의 견고성을 향상시킬 수 있습니다.
전사체 바이오마커 연구의 또 다른 주요 과제는 생물학적 해석입니다. 벌크 조직 신호는 상주 혈관 세포 내의 유전자 발현 변화, 면역 세포 침윤 또는 다수의 세포 집단 비율 변화를 반영할 수 있습니다. 단일 세포 RNA 시퀀싱은 벌크 유래 후보 유전자를 세포 맥락 내에서 파악할 수 있는 기회를 제공합니다. PH/PAH에서 폐혈관 리모델링에는 내피 세포, 평활근 세포, 섬유아세포, 단핵구/대식세포, 림프구 및 기타 면역 또는 구조 세포가 관여합니다. 질병의 진행은 또한 변화된 세포 간 통신 및 평활근 세포의 표현형 전환과 관련이 있습니다. 따라서 벌크 전사체 스크리닝과 단일 세포 검증을 결합하면 후보 바이오마커가 면역 활성화, 혈관 구조 리모델링 또는 다세포 통신의 불균형과 관련이 있는지 판단하는 데 도움이 될 수 있습니다.
바이오마커 발굴 외에도, 전사체 시그니처는 컴퓨터 기반의 약물 재창출에 활용될 수 있습니다. Connectivity Map(CMap)은 질병 관련 유전자 발현 프로파일과 해당 시그니처를 역전시키거나 조절할 수 있는 저분자 화합물을 연결합니다7. 화합물 큐레이션 및 분자 도킹과 결합하면, 이 전략을 통해 실험적 검증이 가능한 치료 가설을 생성할 수 있습니다. CMap 예측과 분자 도킹만으로는 약효를 확립할 수 없으나, 향후 표적 결합 분석, 세포 기반 실험 및 동물 모델 검증을 위한 후보 화합물의 우선순위를 정하는 데 유용합니다.
PH/PAH 바이오마커와 후보 치료 화합물을 식별하기 위해 통합적이고 재현 가능한 워크플로우가 개발되었습니다. 정규화 및 배치 효과 보정 후, 세 개의 공개 Gene Expression Omnibus 전사체 데이터셋을 통합하였습니다. 강건한 특성 유전자를 선별하기 위해 차등 발현 분석, WGCNA, 기능적 풍부도 분석, PPI 네트워크 분석 및 세 가지 머신러닝 알고리즘이 사용되었습니다. 선택된 유전자들을 추가로 평가하기 위해 수신자 작동 특성 분석, 독립적인 폐 조직 검증 코호트, 폐동맥 단일 세포 RNA-sequencing 증거 및 독립적 샘플에서의 정량적 역전사 PCR 검증이 수행되었습니다. 마지막으로, 후보 화합물을 식별하기 위해 CMap 기반의 약물 재창출 및 분자 도킹이 적용되었습니다. 이 연구의 독창성은 벌크 전사체 발견, 머신러닝 우선순위 지정, 독립적 검증, 실험적 정량 역전사 PCR 확인, 단일 세포 기전 해석 및 계산 기반 화합물 스크리닝을 연결하는 다층적 검증 프레임워크에 있습니다. 본 연구의 가설은 PH/PAH가 면역-염증 및 혈관 리모델링 프로그램의 협력적 작용으로 인해 발생하며, 이 프로그램 내의 강건한 유전자들이 후보 바이오마커로 작용하고 약물 재창출의 기회를 제공할 수 있다는 것입니다.
프로토콜
본 연구에서 분석된 공공 Gene Expression Omnibus (GEO) 데이터 세트는 이전에 발표된 연구의 비식별 처리된 전사체 데이터를 포함하고 있으며, 추가적인 윤리적 승인이 필요하지 않았습니다. 화이화 대학교(Huaihua University) 윤리위원회는 독립적인 인간 폐 조직 정량적 역전사 PCR (qRT-PCR) 검증 연구를 승인하였습니다(승인 번호: 2024(A05112)). 샘플 수집 전 모든 참여자 또는 그들의 법적 대리인으로부터 서면 동의서를 받았습니다. 승인 및 동의 절차는 qRT-PCR 검증에 포함된 20개의 폐동맥 고혈압 (PAH) 및 20개의 대조군 폐 조직 샘플 모두에 적용되었습니다. 본 프로토콜에 사용된 연구 도구는 재료 표에 나열되어 있습니다.
1. 공개 전사체 데이터셋의 수집 및 전처리
폐고혈압(PH) 관련 마이크로어레이 데이터 세트 GSE22356, GSE33463 및 GSE48149를 GEO 데이터베이스에서 확보하였다. 원래의 표현형 주석에 따라 PH/폐동맥고혈압(PAH) 및 대조군 샘플을 추출하였다. 재현 가능한 R 스크립트와 GEOquery 패키지를 사용하여 발현 행렬과 플랫폼 주석 파일을 다운로드하였다.
프로브 주석 처리 및 유전자 기호 매핑은 모든 데이터셋에 걸쳐 일관되게 수행되었습니다. 여러 개의 프로브가 동일한 유전자에 매핑된 경우, 평균 발현값을 계산하였습니다. 분위수 정규화를 적용하였으며, 발현량이 낮거나 분산이 작은 유전자는 제거하였습니다. 데이터셋을 병합한 후, sva 패키지8의 ComBat 알고리즘을 사용하여 배치 효과를 보정하였습니다. 보정 결과는 박스 플롯과 주성분 분석을 통해 평가하였습니다.
2. 차별 발현 유전자의 식별
배치 교정된 발현 행렬9에서 PH 샘플과 대조군 샘플 간의 발현 수준을 비교하기 위해 limma 패키지를 사용하였다. 선형 모델을 적합시키고 경험적 베이즈 통계 분석을 적용하였다. 차등 발현 유전자는 보정된 P 값 <0.05 및 절대 log2 fold change > 0.585를 기준으로 정의하였다. 결과는 화산 도표(volcano plot)와 히트맵을 통해 시각화하였다.
3. 가중 유전자 공발현 네트워크 구축
WGCNA 패키지10를 사용하여 가중 유전자 공동 발현 네트워크를 구축하였습니다. 이상치를 탐지하기 위해 샘플 클러스터링을 수행하였습니다. 소프트 임계값 전력(soft-thresholding power)은 척도 없는 토폴로지 적합 지수(scale-free topology fit index)를 기준으로 선택하였습니다. 동적 트리 절단 알고리즘을 사용하여 유전자 모듈을 식별하였습니다. 모듈 고유유전자(module eigengenes)와 PH 표현형 간의 상관관계를 분석하였으며, 가장 강한 상관관계를 보이는 질환 관련 모듈을 선택하였습니다. 핵심 모듈 내의 유전자들을 차등 발현 유전자들과 교차 분석하여 합의 유전자를 도출하였습니다.
4. 기능적 풍부도 분석
clusterProfiler11를 사용하여 Gene Ontology의 생물학적 과정, 세포 구성 성분 및 분자 기능 범주를 분석하였습니다. 신호 전달 경로를 식별하기 위해 Kyoto Encyclopedia of Genes and Genomes 경로 풍부도 분석을 수행하였습니다12. 풍부도 임계값으로는 P value < 0.05 및 q value < 0.2를 사용하였으며, 풍부한 항들은 버블 플롯을 사용하여 시각화하였습니다11.
5. 단백질-단백질 상호작용 네트워크 구축 및 허브 유전자 식별
합의된 유전자 목록을 STRING 데이터베이스에 제출하였으며, 종은 Homo sapiens로 선택하고 상호작용 신뢰도 임계값은 > 0.413로 설정하였다. 상호작용 파일을 Cytoscape로 가져온 후, CytoHubba 플러그인을 사용하여 노드 차수(node degree)에 따라 유전자의 순위를 매겼다. 연결성이 높은 유전자를 허브 유전자로 정의하였다.
6. 머신러닝을 이용한 진단 특징 유전자의 선정
세 가지의 독립적인 특성 선택 알고리즘이 적용되었습니다. 첫째, glmnet 패키지와 10-겹 교차 검증을 이용하여 LASSO(least absolute shrinkage and selection operator) 로지스틱 회귀 분석을 수행함으로써 계수 값이 0이 아닌 유전자를 식별하였습니다14. 둘째, 서포트 벡터 머신(support vector machines) 기반의 재귀적 특성 제거(recursive feature elimination)를 적용하여 중복 특성을 제거하고, 교차 검증 정확도가 가장 높은 특성 하위 집합을 선택하였습니다15. 셋째, 랜덤 포레스트 모델을 구축하고, Gini 불순도 평균 감소량(mean decrease in Gini impurity)에 따라 특성들의 순위를 매겼습니다16. 세 가지 알고리즘에서 도출된 유전자 집합의 교집합을 사용하여 최종 핵심 특성 유전자 세트를 정의하였습니다. pROC 패키지를 사용하여 ROC(receiver operating characteristic) 곡선을 생성하고 AUC(area under the curve) 값을 산출하였습니다17.
7. 독립적인 벌크 및 단일 세포 데이터셋을 이용한 핵심 유전자 검증
58개의 PAH 샘플과 25개의 부적합 기증자 대조군 샘플이 포함된 GSE117261을 독립적인 외부 폐 조직 검증 코호트로 사용하였습니다18. 이 데이터셋은 차별 발현 분석, 가중 유전자 공동 발현 네트워크 구축 또는 머신러닝 특성 선택의 발견 단계에서는 사용되지 않았습니다. 발현 행렬을 정규화 및 주석 처리하였으며, limma v3.68.0을 사용하여 차별 발현을 분석하였습니다. 주석 처리된 전체 전사체에 대해 Benjamini-Hochberg 허위 발견율 보정을 적용하였습니다. pROC v1.19.0.1, DeLong 95% 신뢰 구간 및 Youden-index 컷오프를 사용하여 단일 유전자 수신자 조작 특성(ROC) 곡선을 계산하였습니다. GSE117261 내에서 탐색적 5-유전자 로지스틱 회귀 모델을 적합시켰으며, 반복 중첩 교차 검증을 통해 내부 성능을 추가로 평가하였습니다.
PAH 환자 3명과 건강한 기증자 3명의 샘플이 포함된 단일 세포 폐동맥 검증 데이터셋으로 GSE210248(표 1)이 사용되었습니다19. 데이터는 품질 관리, 정규화, 차원 축소, 클러스터링 및 세포 주석 처리를 위해 Seurat v5.5.1을 사용하여 처리되었습니다20. 내피 세포, 평활근 세포, 섬유아세포, 단핵구/대식세포, T/자연 살해 세포를 포함한 주요 세포 집단이 식별되었습니다. 세포 간 통신은 CellChat v2.1.2 및 CellChatDB.human 리간드-수용체 데이터베이스를 사용하여 분석되었습니다21. 정규화된 Seurat 발현 행렬과 세포 유형 메타데이터로부터 CellChat 객체를 생성하였습니다. 과발현 유전자와 리간드-수용체 상호작용을 식별하고, 통신 확률을 계산하였으며, 세포 수가 10개 미만인 세포 그룹이 포함된 상호작용은 제거하였습니다. 이후 경로 수준의 통신 네트워크를 추론하고 집계하였습니다. 이 데이터셋은 외부 기전 검증용으로만 사용되었으며, 모델 학습에는 사용되지 않았습니다.
| 항목 | 설명 |
| 데이터 세트 | GSE210248 |
| 데이터 유형 | 10x Genomics/액적 기반 단일 세포 RNA 시퀀싱; 고처리량 전사체 프로파일링 |
| 인체 시료 | PAH 폐동맥 시료 3개 및 건강한 공여자 폐동맥 시료 3개 |
| 조직 공급원 | 폐혈관벽의 세포 생태계와 혈관 리모델링 과정을 주로 반영하는 ex vivo 폐동맥 조직 |
| 주요 분석 목적 | 세포 유형 국소화, 평활근 세포 표현형 전환, 면역-구조 세포 간 통신 및 후보 유전자의 기전적 일관성 검증 |
표 1: GSE210248 단일 세포 검증 데이터셋의 기본 정보. 이 표는 단일 세포 폐동맥 검증 분석의 데이터셋 액세션 번호, 시퀀싱 플랫폼, 조직 출처, 샘플 구성 및 분석 목적을 요약합니다.
8. qRT-PCR을 이용한 유전자 발현 검증
qRT-PCR 검증에는 PH/PAH 환자로부터 얻은 20개의 생물학적으로 독립된 PAH 폐 조직 샘플과 20개의 생물학적으로 독립된 대조군 폐 조직 샘플이 포함되었습니다. Total RNA Extraction Kit를 사용하여 총 RNA를 추출하였습니다. 분광광도계를 사용하여 RNA 농도와 순도를 측정하였으며, 아가로스 겔 전기영동을 통해 RNA 무결성을 평가하였습니다. A260/280 값이 1.8에서 2.1 사이이며 가시적인 분해가 없는 RNA 샘플만 포함되었습니다.
Solarbio Universal RT-PCR Kit(AMV; 카탈로그 번호 RP1200)를 사용하여 동일한 양의 RNA를 상보적 DNA로 역전사하였습니다. CXCL10, JUN, IFIH1, MX1 및 TLR7에 대한 정량적 PCR은 Real-Time PCR System에서 SYBR Green PCR Master Mix를 사용하여 수행하였습니다. 각 생물학적 시료는 템플릿 미포함 및 역전사 효소 미포함 대조군과 함께 3회씩 기술적 반복 분석을 실시하였습니다. 3회 기술적 반복 분석의 평균 Ct 값을 후속 분석에 사용하였으며, 기술적 반복 시료를 독립적인 관찰값으로 취급하지 않았습니다. 엑손-엑손 접합부를 포함하며 80–200 bp 크기의 앰플리콘을 생성하는 프라이머를 사용하였습니다(표 2). 프라이머 특이성은 NCBI Primer-BLAST 및 멜팅 커브 분석을 통해 검증하였습니다22.
대상 유전자의 발현 수준을 정규화하기 위해 β-actin (ACTB)을 내부 참조 유전자로 사용하였다. 상대적 발현량은 2-ΔΔCt 방법23을 이용하여 계산하였다. 데이터 분포에 따라 그룹 간 비교에는 양측 Mann-Whitney U 검정을 사용하였으며, 5개 유전자에 대해 Benjamini-Hochberg 허위발견율(false-discovery-rate) 보정을 적용하였다. 단일 유전자 ROC 곡선은 DeLong 95% 신뢰구간과 함께 생성되었으며, Youden 지수를 사용하여 최적 컷오프 값을 선정하였다. 5개 유전자 로지스틱 회귀 모델은 처음에 동일한 40개의 생물학적 샘플에서 적합 및 평가되었으며, 따라서 이 추정치는 겉보기 샘플 내 성능(apparent in-sample performance)으로 정의되었다. 잠재적인 과적합을 평가하기 위해 L2-정규화 로지스틱 회귀 모델을 사용하여 100회의 층화 5-겹 교차 검증(stratified five-fold cross-validation) 반복을 수행하였으며, 통합 외적-폴드(out-of-fold) ROC 성능을 계산하였다.
| 유전자 | RefSeq accession | 정방향 프라이머 (5′–3′) | 역방향 프라이머 (5′–3′) | 생성물 크기 (bp) | Tm (°C) | 엑손 스패닝 (Exon-spanning) |
| CXCL10 | NM_001565.4 | GTCAAGCCAT AATTGTTC | ATAGTGCCAG GGTAGAGT | 141 | 46.1 | 예 |
| JUN | NM_002228.4 | ACAAGTGGCA GAGTCCCG | CGCCCAAGTT CAACAACC | 152 | 54.5 | 예 |
| IFIH1 | NM_022168 | GCACAGAGCG GTAGACCCT | GCCCTGAAGC ACGAGATG | 182 | 54.7 | 예 |
| MX1 | NM_002462.5 | TTAGCCGTGG TGATTTAGC | CAAGGTGGAG CGATTCTG | 156 | 52.3 | 예 |
| TLR7 | NM_016562.4 | ATTGCCCTCGT TGTTATA | TTCCTGGAGTT TGTTGAT | 179 | 48.1 | 예 |
| ACTB | NM_001101.3 | CTCACCATGGAT GATGATATCGC | AGGAATCCTTCT GACCCATGC | 194 | 56.2 | 예 |
표 2: 정량적 역전사 PCR에 사용된 프라이머 서열. 이 표는 qRT-PCR에 사용된 프라이머의 표적 유전자, RefSeq accession 번호, 정방향 및 역방향 프라이머 서열, 산물 크기, 해리 온도 및 엑손 스팬(exon-spanning) 여부를 나타냅니다.
9. 후보 화합물 스크리닝 및 분자 도킹
PH 관련 발현 프로파일을 역전시킬 것으로 예측되는 저분자 화합물을 식별하기 위해, 상향 조절 및 하향 조절된 핵심 유전자 시그니처를 Connectivity Map 데이터베이스에 제출하였습니다7. 후보 물질들은 Logit 점수와 예측 확률에 따라 순위가 매겨졌습니다.
BRD-K91900765/VX-745의 3차원 구조는 PubChem의 CID 3038525에서 얻었습니다24. 화합물 관련 약리학적 정보는 공개 약물 데이터베이스에서 큐레이션하였으며, 구조 기술어는 DrugBank와 SwissADME를 사용하여 계산하였습니다25,26. 단백질 구조는 RCSB Protein Data Bank에서 다음의 PDB 식별자를 사용하여 확보하였습니다: CXCL10, 1LV9; JUN, 1JUN; IFIH1, 3B6E; MX1, 5GTM; TLR7, 7CYN; 그리고 MAPK14/p38α, 1OUK27. 블라인드 캐비티 탐색 및 분자 도킹은 AutoDock Vina v1.2.0 스코어링 엔진이 탑재된 CB-Dock2 v2.0을 사용하여 수행하였습니다28,29. 단백질 및 리간드 파일을 CB-Dock2에 업로드하여 후보 캐비티를 자동으로 탐색하였고, 서버에서 생성된 캐비티 특이적 박스 내에서 도킹을 수행하였습니다. 각 단백질에 대해 캐비티 식별자, Vina score, 캐비티 부피, 도킹 박스 중심, 도킹 박스 크기 및 단백질-리간드 복합체 파일을 기록하였습니다. Vina score가 가장 낮은 포즈를 최상위 예측 컨포메이션으로 선택하였습니다. MAPK14/p38α는 VX-745의 기확립된 약리학적 표적 및 양성 대조군 도킹 단백질로 포함되었습니다. CXCL10, JUN, IFIH1, MX1 및 TLR7에 대한 도킹은 탐색적 연구였으며, 이를 직접적인 약리학적 표적화, 결합, 억제 또는 효능의 증거로 해석하지 않았습니다.
10. 통계 분석 및 재현성 제어
별도로 명시되지 않는 한 모든 통계 분석은 R에서 수행되었습니다. 양측 P 값 < 0.05을 통계적으로 유의한 것으로 간주하였다. 위에서 명시한 바와 같이 차등 발현, 농축, 외부 검증 및 qRT-PCR 분석에 다중 검정 보정을 적용하였다. 머신러닝 및 결합 qRT-PCR 모델의 안정성을 평가하기 위해 교차 검증을 사용하였다.
결과
공공 전사체 데이터 전처리와 차등 발현 유전자 식별
GSE22356, GSE33463 및 GSE48149의 통합과 ComBat 보정을 통해 데이터셋 간의 계통적 차이를 줄였습니다. 박스플롯을 통해 보정 후 샘플 발현 분포가 더 일관되게 변했음을 확인했습니다. 주성분 분석 결과, 보정 전에는 샘플들이 주로 데이터셋 출처에 따라 군집을 이루었으나 보정 후에는 더 많이 혼합되어 나타났으며, 이는 배치 효과가 효과적으로 감소했음을 나타냅니다(그림 1).
절대 log2 fold change >0.585 및 보정된 P value < 0.05의 임계값을 사용하여, 상향 조절된 44개 유전자와 하향 조절된 34개 유전자를 포함하여 총 78개의 차등 발현 유전자가 확인되었습니다(그림 2A). 히트맵 분석 결과, XAF1, MX1, IFI44L, EPSTI1, PARP9, IFIH1, CXCL10, GBP1, STAT1, SAMHD1, TNFSF10 및 TLR7을 포함한 인터페론 관련 유전자들이 PH 관련 샘플에서 전반적으로 상향 조절되었음을 보여주었습니다. 반면, HBG1, HBD, ALAS2, CA1 및 SLC4A1을 포함한 적혈구 관련 유전자들은 하향 조절되는 경향을 보였습니다(그림 2B).
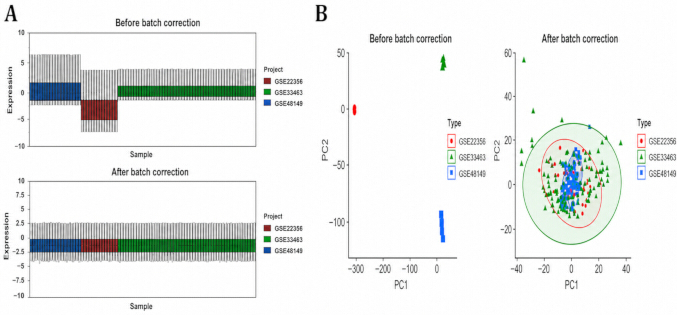
그림 1: 배치 효과 보정. (A) ComBat 보정 전후 통합 발현 행렬의 박스 플롯. (B) 배치 효과 보정 전후의 샘플 분포를 보여주는 주성분 분석(PCA) 도표. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
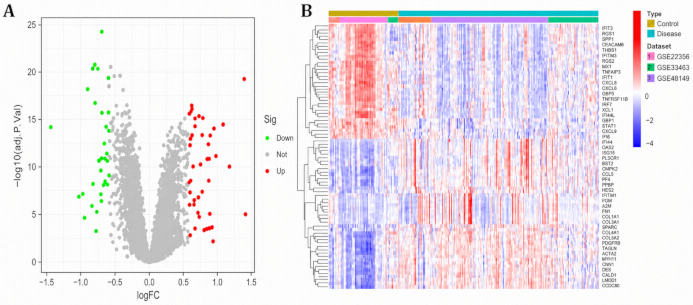
그림 2: 차별 발현 유전자. (A) PH 관련 샘플에서 상향 조절 및 하향 조절된 유전자를 보여주는 화산 도표. (B) 대조군과 질환군 간의 차별 발현 유전자를 보여주는 히트맵. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
가중 유전자 공동 발현 네트워크 구축 및 기능적 풍부도 분석
샘플 클러스터링 결과, 뚜렷한 이상치 없이 전반적으로 안정적인 클러스터링이 나타났다(그림 3A). 척도 없는 토폴로지 적합도 지수는 power가 9일 때 0.8에 근접하였으며, 네트워크 구축을 위해 β = 9를 선택하였다(그림 3B). 유전자 클러스터링 및 동적 모듈 식별을 통해 다수의 공발현 모듈이 도출되었다(그림 3C). blue 모듈은 PH 상태와 가장 강력한 연관성을 보였으며(r = 0.55, P = 1 × 10⁻¹⁹), turquoise 및 grey 모듈 또한 PH와의 상관관계를 보였다(그림 3D).
가중 유전자 공동 발현 네트워크 분석(WGCNA) 모듈 유전자와 차등 발현 유전자의 교집합을 통해 얻은 합의 유전자들은 항바이러스 면역 방어, NF-κB 및 JAK-STAT 조절, 염증 인자 반응, 사이토카인 및 케모카인 수용체 결합, 그리고 전사 조절에 농축되어 있었다(그림 4A). Kyoto Encyclopedia of Genes and Genomes(KEGG) 농축 분석 결과, 사이토카인-사이토카인 수용체 상호작용, 케모카인 신호 전달, NOD 유사 수용체 신호 전달, Toll 유사 수용체 신호 전달, 종양 괴사 인자 신호 전달 및 인터루킨-17 신호 전달이 확인되었으며(그림 4B), 이는 면역-염증성 조절 장애가 폐혈관 리모델링의 분자적 기초임을 뒷받침한다.
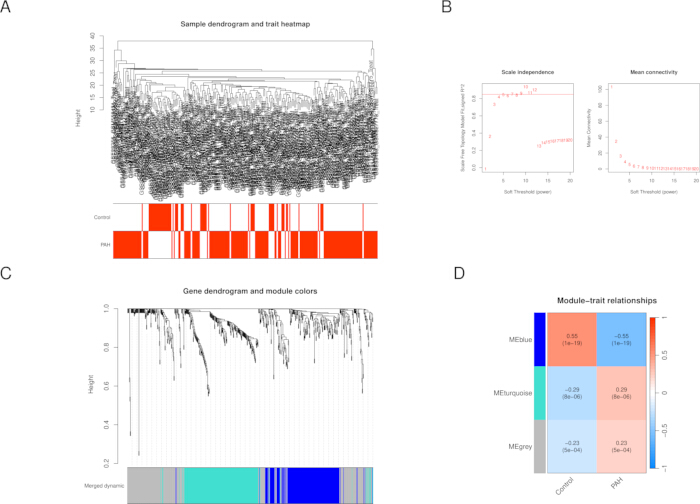
그림 3: 가중 유전자 공동발현 네트워크 분석. (A) 샘플 클러스터링 트리 및 형질 히트맵. (B) 소프트 임계값 선택 플롯. (C) 유전자 덴드로그램 및 모듈 색상. (D) 모듈-형질 관계 히트맵. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
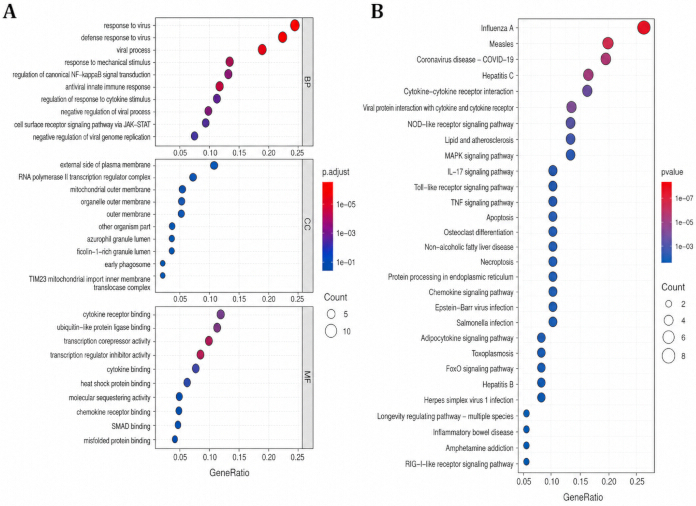
그림 4: 기능적 농축 분석. (A) 합의 유전자에 대한 Gene Ontology 농축 결과. (B) 합의 유전자에 대한 Kyoto Encyclopedia of Genes and Genomes 경로 농축 결과. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
단백질-단백질 상호작용 네트워크 및 허브 유전자 스크리닝
합의 유전자를 통해 구축한 STRING 단백질-단백질 상호작용 네트워크는 서로 연결된 면역-염증 네트워크를 보여주었다(그림 5A). Degree 기반의 CytoHubba 랭킹 결과, FN1, CD44, JUN, TGFB1, CXCL8 및 BCL2가 높은 연결성을 나타냈다(그림 5B). 이러한 허브 유전자들은 염증 신호 전달, 세포 부착, 세포외 기질 재구성 및 폐혈관 구조 재구성에 관여할 수 있다.
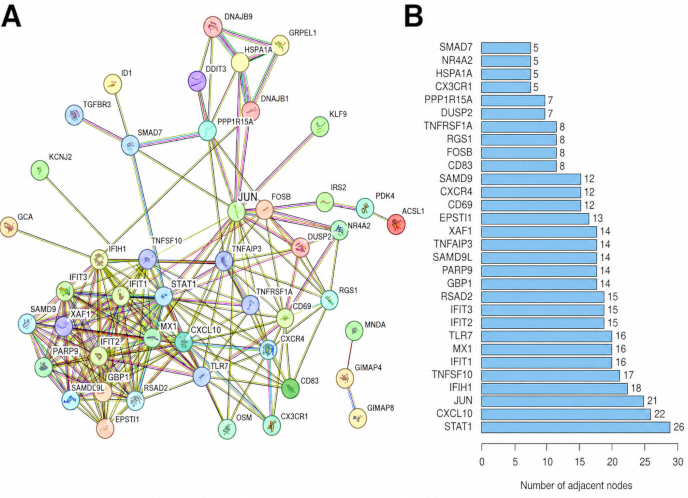
그림 5: 단백질-단백질 상호작용 네트워크 및 허브 유전자. (A) 합의 유전자들의 STRING 단백질-단백질 상호작용 네트워크. (B) CytoHubba를 사용하여 식별한 차수 기반 순위 허브 유전자. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
머신러닝 특성 선택 및 진단 성능
교차 검증 후 Lasso(Least absolute shrinkage and selection operator) 회귀 분석을 통해 계수가 0이 아닌 6개의 후보 유전자를 식별하였습니다(그림 6A, B). 서포트 벡터 머신-재귀적 특성 제거(Support vector machine-recursive feature elimination)를 통해 8개의 유전자가 유지되었으며, 교차 검증 정확도는 0.883, 오차는 0.117로 나타났습니다(그림 7A). 랜덤 포레스트의 Out-of-bag 오차는 결정 트리 수가 100개 이상일 때 안정화되었으며, 중요도 점수에 따라 IFIH1, JUN, TLR7이 상위 유전자로 선정되었습니다(그림 7B).
LASSO(최소 절대 수축 및 선택 연산자), SVM-RFE(서포트 벡터 머신-재귀적 특성 제거) 및 랜덤 포레스트 결과의 교집합을 통해 CXCL10, JUN, IFIH1, MX1 및 TLR7의 5가지 핵심 유전자가 식별되었습니다 (그림 8A). 단일 유전자 수신자 조작 특성 분석 결과, 곡선 아래 면적 값이 IFIH1의 경우 0.842, JUN의 경우 0.833, TLR7의 경우 0.827, CXCL10의 경우 0.814, MX1의 경우 0.759로 나타나 중간에서 양호한 수준의 진단 판별력을 보였다(그림 8B).
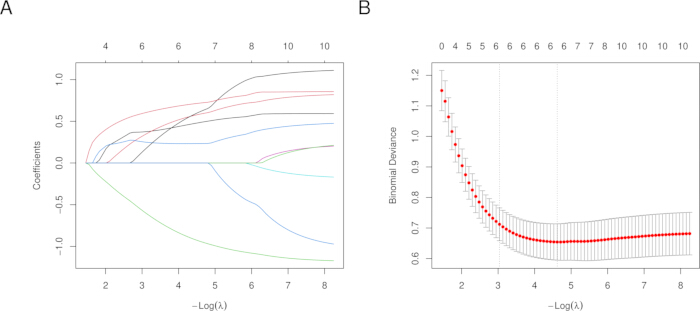
그림 6: 최소 절대 수축 및 선택 연산자(Lasso) 회귀 분석. (A) 최소 절대 수축 및 선택 연산자 회귀에 의해 생성된 계수 경로. (B) 교차 검증 오차 도식. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
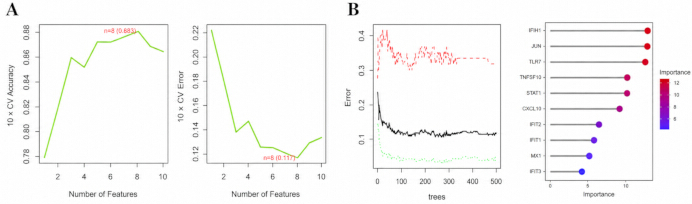
그림 7: 서포트 벡터 머신-재귀적 특성 제거 및 랜덤 포레스트 분석. (A) 서포트 벡터 머신-재귀적 특성 제거 특성 선택 플롯. (B) 랜덤 포레스트 모델 및 유전자 중요도 순위. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
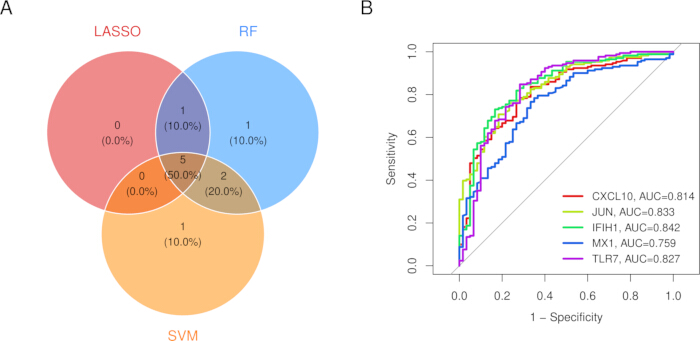
그림 8: 머신러닝 요약. (A) 세 가지 특성 선택 알고리즘의 교집합을 보여주는 벤 다이어그램. (B) 5개 핵심 유전자에 대한 수신자 조작 특성 곡선. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
GSE117261에서의 외부 검증
GSE117261은 독립적인 폐 조직 검증 코호트로 사용되었으며, 차등 발현 스크리닝, 가중 유전자 공동 발현 네트워크 구축 또는 머신러닝 특성 선택에 포함되지 않았습니다(표 3). 완료된 검증 결과, 5가지 유전자 전반에 걸쳐 불균일한 재현성이 나타났습니다(표 4). CXCL10은 증가하였으며(log₂ fold change = 0.677; P = 0.0410; FDR = 0.144), 컷오프 6.245, 민감도 0.724, 특이도 0.600에서 AUC 0.639 (95% CI, 0.491–0.786)를 기록했습니다. JUN은 증가하였으며(log₂ fold change = 0.463; P = 0.00248; FDR = 0.0194), 컷오프 8.708, 민감도 0.707, 특이도 0.720에서 AUC 0.714 (95% CI, 0.593–0.835)를 기록했습니다.
IFIH1 (log2 fold change = 0.107; P = 0.371; FDR = 0.591; AUC = 0.543, 95% CI, 0.398–0.687), MX1 (log2 fold change = 0.109; P = 0.488; FDR = 0.690; AUC = 0.475, 95% CI, 0.337–0.614) 및 TLR7 (log2 fold change = -0.050; P = 0.543; FDR = 0.733; AUC = 0.546, 95% CI, 0.414–0.679)은 미리 지정된 외부 지원 기준을 충족하지 못했다. TLR7은 또한 qRT-PCR 결과와 반대되는 방향성을 보였다. GSE117261 내에서 적합 및 평가된 탐색적 5-유전자 모델은 0.740의 겉보기 AUC를 나타냈으나, 반복 중첩 교차 검증에서는 0.656의 AUC를 나타냈다. 따라서 JUN이 가장 강력한 독립적 지원을 받았고, CXCL10은 방향성적으로 일치하는 제한적인 증거를 보였으며, IFIH1, MX1 및 TLR7의 재현성은 낮거나 불일치했다.
| 항목 | 설명 |
| 데이터셋 등록 번호 | GSE117261 |
| 데이터 출처 | Gene Expression Omnibus (GEO) |
| 시료 유형 | 인간 폐 조직 전사체 마이크로어레이 데이터 |
| 시료 크기 | PAH 시료 58개 및 기증 실패 대조군 시료 25개 |
| 플랫폼 | GPL6244 / Affymetrix Human Gene 1.0 ST Array |
| 검증 목적 | CXCL10, JUN, IFIH1, MX1, TLR7에 대한 발현 차이, 단일 유전자 ROC 분석 및 탐색적 5개 유전자 결합 ROC 모델링 |
| 본 연구에서의 역할 | 독립적 외부 검증 데이터셋; 기존 훈련, WGCNA 또는 특성 선택 분석에 포함되지 않음 |
표 3: GSE117261 독립 외부 검증 데이터셋의 기본 정보. 이 표는 데이터셋 출처, 샘플 유형, 샘플 크기, 플랫폼, 검증 목적 및 본 연구에서 GSE117261의 역할을 요약하여 나타낸 것이다.
| 유전자/모델 | 다환방향족탄화수소(PAH) | 대조군 n | log2 배수 변화 | p 값 | 허위 발견율 | 곡선 아래 면적(AUC) | AUC 95% 신뢰구간 | 유덴 절단값 | 민감도 | 특이도 |
| CXCL10 | 58 | 25 | 0.677 | 0.041 | 0.144 | 0.639 | 0.491–0.786 | 6.245 | 0.724 | 0.6 |
| JUN | 58 | 25 | 0.463 | 0.00248 | 0.019 | 0.714 | 0.593–0.835 | 8.708 | 0.707 | 0.72 |
| IFIH1 | 58 | 25 | 0.107 | 0.371 | 0.591 | 0.543 | 0.398–0.687 | 5.3 | 0.759 | 0.44 |
| MX1 | 58 | 25 | 0.109 | 0.488 | 0.69 | 0.475 | 0.337–0.614 | 6.833 | 0.724 | 0.4 |
| TLR7 | 58 | 25 | -0.05 | 0.543 | 0.733 | 0.546 | 0.414–0.679 | 4.065 | 0.138 | 1 |
| 5-유전자 모델 (겉보기/표본 내) | 58 | 25 | / | / | / | 0.74 | 0.621–0.859 | 0.613 | 0.845 | 0.6 |
| 5-유전자 모델 (반복 중첩 교차 검증) | 58 | 25 | / | / | / | 0.656 | 0.517–0.795 | 0.655 | 0.845 | 0.52 |
표 4: GSE117261에 대한 실제 발현 차이 및 ROC 검증 결과. 이 표는 5개의 유전자 및 탐색적 결합 모델에 대한 PAH 및 대조군 샘플 크기, log₂ fold change, P 값, 허위 발견율(FDR) 조정 값, AUC, 95% 신뢰 구간, Youden-index 컷오프, 민감도, 특이도 및 해석을 나타냅니다.
정량적 역전사 PCR 검증
정량적 역전사 PCR 검증에는 20개의 생물학적으로 독립적인 PAH 폐 조직 샘플과 20개의 생물학적으로 독립적인 대조군 샘플이 포함되었으며, 각 생물학적 샘플당 3회의 기술적 반복 실험 결과의 평균값을 사용하였다. CXCL10, JUN, IFIH1, MX1 및 TLR7은 PAH에서 유의하게 상향 조절되었다(표 5; 그림 9A). 평균 상대 발현 값은 CXCL10의 경우 약 3.470, JUN은 2.560, IFIH1은 2.760, MX1은 2.650, TLR7은 2.580이었다. 이에 해당하는 P 값/FDR 값은 각각 1.43 × 10⁻7/7.15 × 10⁻7, 4.17 × 10⁻5/4.17 × 10⁻5, 1.10 × 10⁻5/1.38 × 10⁻5, 1.58 × 10⁻6/2.63 × 10⁻6, 및 1.37 × 10⁻6/2.63 × 10⁻6였다.
qRT-PCR 발현 기반의 단일 유전자 ROC 분석 결과, AUC는 CXCL10의 경우 0.988 (95% CI, 0.961–1.000), JUN은 0.880 (95% CI, 0.758–1.000), IFIH1은 0.908 (95% CI, 0.820–0.995), MX1은 0.945 (95% CI, 0.874–1.000), 그리고 TLR7은 0.948 (95% CI, 0.886–1.000)로 나타났다(그림 9B; 표 5). 5개 유전자 로지스틱 회귀 모델은 민감도와 특이도가 1.000이며 1.000의 겉보기 AUC(DeLong 95% CI: 1.000–1.000)를 달성하였다(그림 9C). 정량적 역전사 PCR 검증과 GSE117261 사이의 발현 방향 일관성은 히트맵을 통해 시각화하였다(그림 9D). 동일한 40개 샘플이 모델 피팅과 평가에 모두 사용되었기 때문에, 이는 겉보기 표본 내 성능을 반영한다. L2 정규화 로지스틱 회귀 모델을 사용한 100회 반복 층화 5겹 교차 검증에서, 통합 out-of-fold AUC 또한 1.000 (95% CI, 1.000–1.000)으로 유지되었으며, 모든 반복 실험에서 1.000의 AUC가 산출되었다. 이러한 내부적 안정성에도 불구하고, 코호트 규모가 작으므로 독립적인 전향적 검증이 여전히 필요하다. GSE117261과의 방향성 비교 결과, CXCL10, JUN, IFIH1, MX1은 일관된 증가를 보였으나, TLR7은 불일치하는 방향성을 나타냈다(그림 9D).
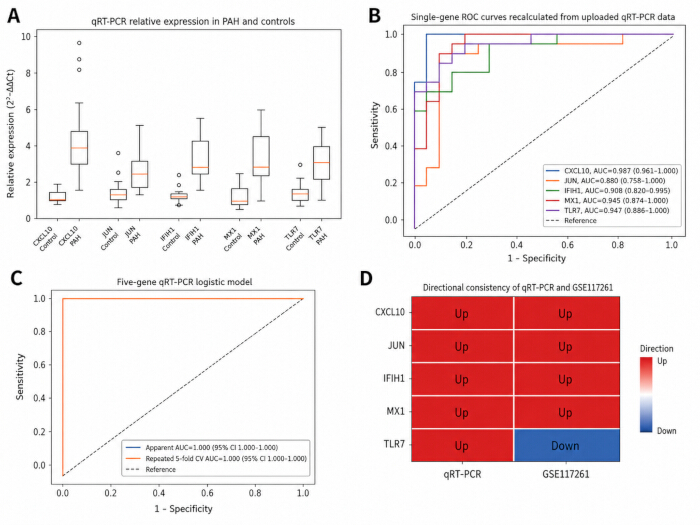
그림 9: 정량적 역전사 PCR 검증. (A) 20개의 생물학적으로 독립적인 PAH 폐 조직 샘플과 20개의 생물학적으로 독립적인 대조군 샘플에서 CXCL10, JUN, IFIH1, MX1 및 TLR7의 상대적 발현을 나타내는 박스 플롯. 각 생물학적 샘플은 3회의 기술적 반복 측정되었으며, 평균 Ct 값을 분석에 사용하였다. 각 박스 플롯에서 중앙선은 중앙값을, 박스는 사분위수 범위를 나타내며, 수염은 사분위수 범위의 1.5배까지 연장되고 수염 바깥의 개별 점은 이상치를 나타낸다. (B) qRT-PCR 발현 값을 기반으로 한 단일 유전자 ROC 곡선; AUC 및 DeLong 95% 신뢰 구간이 표시되어 있다. (C) 5개 유전자 로지스틱 회귀 모델에 대한 ROC 곡선으로, 겉보기/샘플 내 성능과 100회 반복된 층화 5겹 교차 검증 분석의 통합 외부 폴드 성능을 모두 보여준다. (D) qRT-PCR과 GSE117261 사이의 발현 방향 일관성을 보여주는 히트맵; CXCL10, JUN, IFIH1 및 MX1은 일관되게 증가한 반면, TLR7은 불일치하였다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 유전자/모델 | 다환방향족탄화수소(PAH) | 대조군 n | 대조군 2^-ΔΔCt, 평균 ± 표준편차 | PAH 2^-ΔΔCt, 평균 ± 표준편차 | 방향 | p-값 | 허위 발견율 | 곡선하 면적 | AUC 95% 신뢰구간 | 유든 지수 컷오프(Youden cutoff) | 감도- 활성 | 특이- 도시 | 밸리데이션 유형 | ||||
| CXCL10 | 20 | 20 | 1.099 ± 0.502 | 3.470 ± 1.043 | 발현 증가된 | 1.43E-07 | 7.15E-07 | 0.987 | 0.961–1.000 | 2.028 | 1 | 0.95 | 단일 유전자 qRT-PCR 분석 | ||||
| JUN | 20 | 20 | 1.158 ± 0.738 | 2.560 ± 1.609 | 상향 조절된 | 4.17E-05 | 4.17E-05 | 0.88 | 0.758–1.000 | 1.423 | 0.85 | 0.9 | 단일 유전자 qRT-PCR 분석 | ||||
| IFIH1 | 20 | 20 | 1.091 ± 0.440 | 2.760 ± 1.398 | 상향 조절된 | 1.10E-05 | 1.38E-05 | 0.908 | 0.820–0.995 | 1.579 | 0.8 | 0.85 | 단일 유전자 qRT-PCR 분석 | ||||
| MX1 | 20 | 20 | 1.132 ± 0.582 | 2.650 ± 1.085 | 상향 조절된 | 1.58E-06 | 2.63E-06 | 0.945 | 0.874–1.000 | 1.779 | 0.9 | 0.9 | 단일 유전자 qRT-PCR 분석 | ||||
| TLR7 | 20 | 20 | 1.080 ± 0.444 | 2.580 ± 1.284 | 상향 조절된 | 1.37E-06 | 2.63E-06 | 0.947 | 0.886–1.000 | 1.764 | 0.85 | 0.9 | 단일 유전자 qRT-PCR 분석 | ||||
| 5유전자 모델 (겉보기/표본 내) | 20 | 20 | 해당 없음 케이블 | 해당 사항 없음 케이블 | 해당 없음 | / | / | 1 | 1.000–1.000 | 0.998 | 1 | 1 | 모델 피팅 및 평가에 사용된 동일한 40개의 생물학적 시료 | ||||
| 5-유전자 모델 (100회 반복 5-겹 교차 검증) | 20 | 20 | 해당 없음 케이블 | 해당 없음 케이블 | 해당 없음 | / | / | 1 | 1.000–1.000 | 0.716 | 1 | 1 | L2 정규화 로지스틱 회귀를 이용한 내부 교차 검증 | ||||
표 5: CXCL10, JUN, IFIH1, MX1 및 TLR7에 대한 전체 qRT-PCR 발현 및 ROC 결과(5개 유전자 결합 모델 분석 포함). 이 표는 개별 유전자 및 결합 모델에 대한 PAH 및 대조군 표본 크기, 상대적 발현 값, 발현 방향, P 값, 허위 발견율 보정 값, AUC, 95% 신뢰 구간, Youden 지수 컷오프, 민감도, 특이도 및 검증 유형을 나타냅니다.
GSE210248의 단일 세포 전사체 검증
GSE210248은 PAH 폐동맥 리모델링 시 면역 세포와 혈관 구조 세포 간의 통신 변화가 동반됨을 보여줌으로써 세포 수준의 기전적 근거를 제공하였습니다. 이러한 관찰 결과는 염증 반응, 케모카인 신호 전달, Toll-like 수용체 신호 전달 및 종양 괴사 인자 신호 전달의 벌크 전사체 농축 결과와 일치하였습니다.
단일 세포 분석 결과, PAH 폐동맥 신호 전달 네트워크가 평활근 세포와 섬유아세포를 포함한 구조 세포 쪽으로 이동했음을 시사했습니다. 평활근 세포는 산소 감지/pericyte 유사, 수축성, 합성성 및 섬유아세포 유사 상태를 포함한 여러 상태를 보였습니다. 이러한 결과는 면역-염증 활성화와 혈관 구조 세포 재형성이 공동으로 PH/PAH 진행을 유도한다는 질환 모델을 뒷받침합니다.
후보 화합물 스크리닝 및 분자 도킹
Connectivity Map 스크리닝 결과, Logit 점수 10.13 및 예측 확률 0.085로 상위 10개 히트 화합물 중 BRD-K91900765가 가장 높은 순위의 후보 화합물로 확인되었습니다(그림 10). 화합물 큐레이션을 통해 BRD-K91900765가 PubChem 화합물 식별 번호 3038525, 분자량 436.27 g/mol인 선택적 p38α/MAPK14 억제제 VX-745/neflamapimod에 해당함을 확인하였습니다(표 6).
5가지 바이오마커 관련 단백질과 BRD-K91900765/VX-745의 탐색적 도킹 결과, 최고 Vina 점수는 CXCL10의 경우 -7.5 kcal/mol, JUN은 -7.6 kcal/mol, IFIH1은 -7.5 kcal/mol, MX1은 -8.7 kcal/mol, 그리고 TLR7은 -8.1 kcal/mol로 나타났다(표 7–11; 그림 11A–E). 이러한 결과는 예측된 구조적 적합성만을 나타내며, 해당 5가지 단백질이 직접적인 약리학적 타겟임을 입증하는 것은 아니다. 예비 흡수, 분포, 대사, 배설 및 독성(ADMET) 예측 결과, 해당 화합물은 여러 약물 유사 특성을 가진 것으로 시사되었으나, 계산된 cLogP 값이 상대적으로 높아 추가적인 평가가 필요하다(표 12). 기설정된 VX-745 타겟인 MAPK14/p38α (PDB ID: 1OUK)에 대한 도킹이 양성 대조군 분석으로 포함되었다. 최상위 MAPK14 공동(cavity)인 C1은 Vina 점수 -7.9 kcal/mol, 공동 부피 3560 Å3, 도킹 박스 중심 (2, 22, 34), 그리고 크기 (22, 31, 31)를 나타냈다(표 13; 그림 11F).
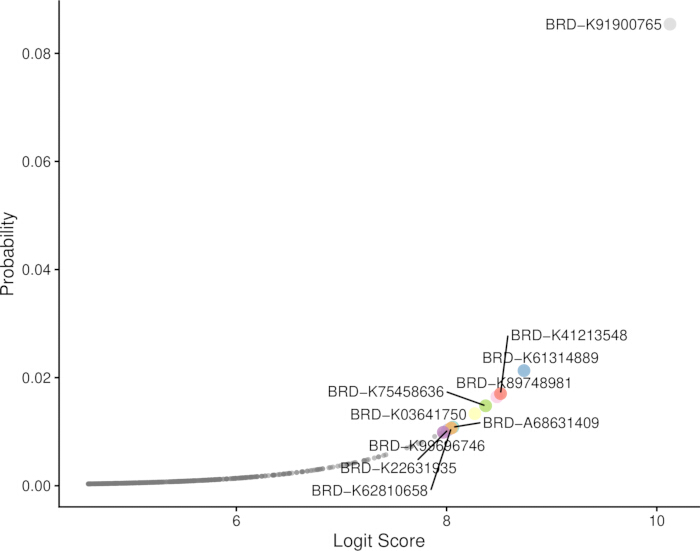
그림 10Connectivity Map 후보 화합물 순위 산정. Connectivity Map 스크리닝을 통해 식별된 후보 화합물의 순위. BRD-K91900765가 Logit 점수 10.13 및 예측 확률 0.085로 가장 높은 순위를 기록한 화합물이었다. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
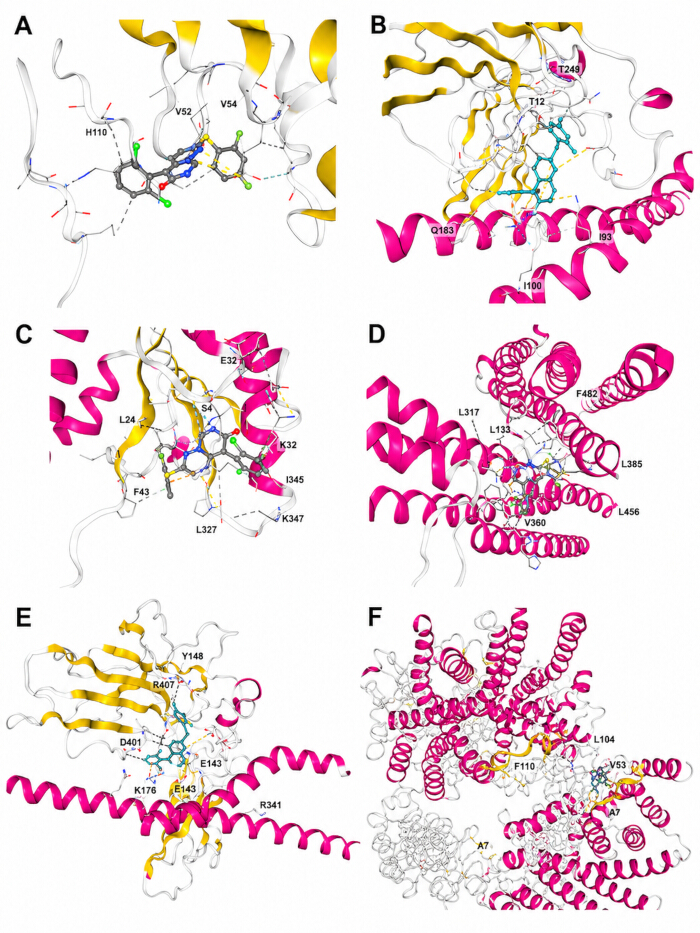
그림 11: BRD-K91900765/VX-745의 3차원 분자 도킹 도식. (A) CXCL10과의 탐색적 도킹. (B) JUN과의 탐색적 도킹. (C) IFIH1과의 탐색적 도킹. (D) MX1과의 탐색적 도킹. (E) TLR7과의 탐색적 도킹. (F) 기성 약리학적 표적인 MAPK14/p38α (PDB ID: 1OUK)를 이용한 양성 대조군 도킹. 패널 A–E는 예측된 구조적 적합성을 나타내며, 직접적인 약리학적 표적화를 입증하는 것은 아님. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 항목 | 설명 |
| CMap/Broad ID | BRD-K91900765 (일반 배치 형식: BRD-K91900765-001-xx-x) |
| 일반명/별칭 | VX-745; 네플라마피모드; VRT-031745; VD-31745 |
| 화학명 | 5-(2,6-디클로로페닐)-2-(2,4-디플루오로페닐)설파닐피리미도[1,6-b]피리다진-6-온 |
| PubChem CID | 3038525 |
| CAS 등록 번호 | 209410-46-8 |
| 분자식 / 상대 분자량 | C19H9Cl2F2N3OS; 436.27 g/mol |
| 정준 SMILES | C1=CC(=C(C(=C1)Cl)C2=C3C=CC(=NN3C=NC2=O)SC4=C(C=C(C=C4)F)F)Cl |
| InChIKey | VEPKQEUBKLEPRA-UHFFFAOYSA-N |
| 기존의 주요 약리학적 표적 | MAPK14/p38α; p38β 억제 또한 p38α보다 낮은 선택성을 보이는 것으로 보고되었습니다. |
표 6: BRD-K91900765/VX-745의 화학 및 약리학적 정보. 이 표는 BRD-K91900765/VX-745의 화합물 식별자, 별칭, 화학명, 분자식, 분자량, 구조 기술자 및 확립된 약리학적 표적을 요약하여 보여줍니다.
| CurPocket ID | Vina 점수 (kcal/mol) | 공공 부피(ų) | 중심 (x, y, z) | 도킹 크기 (x, y, z) |
| C1 | -7.5 | 7568 | 49, 15, 4 | 34, 33, 35 |
| C4 | -7 | 160 | 46, 0, 4 | 22, 22, 22 |
| C3 | -6 | 208 | 34, 15, 9 | 22, 22, 22 |
| C2 | -5.8 | 465 | 45, -6, 19 | 22, 22, 22 |
| C5 | -5.1 | 150 | 63, 0, 20 | 22, 22, 22 |
표 7: CXCL10 (PDB ID: 1LV9)과 BRD-K91900765/VX-745의 예측 도킹 포켓. 이 표는 CB-Dock2에 의해 생성된 순위별 캐비티 식별자, Vina 점수, 캐비티 부피, 도킹 박스 중심 및 도킹 박스 크기를 나타냅니다.
| CurPocket ID | Vina 점수 (kcal/mol) | 캐비티 부피 (ų) | 중심 (x, y, z) | 도킹 크기 (x, y, z) |
| C3 | -7.6 | 1593 | 26, 35, 70 | 22, 22, 22 |
| C2 | -7.5 | 1927 | 25, 21, 60 | 35, 22, 22 |
| C1 | -7.4 | 5420 | 32, 37, 48 | 35, 22, 31 |
| C5 | -6 | 464 | 26, 5, 48 | 22, 22, 22 |
| C4 | -5.3 | 683 | 59, 32, 39 | 22, 22, 22 |
표 8: JUN (PDB ID: 1JUN)에 대한 BRD-K91900765/VX-745의 예측 도킹 포켓. 이 표는 CB-Dock2에 의해 생성된 순위별 공동 식별자, Vina 점수, 공동 부피, 도킹 박스 중심 및 도킹 박스 크기를 나타냅니다.
| CurPocket ID | Vina 점수 (kcal/mol) | 공동 부피 (ų) | 중심 (x, y, z) | 도킹 크기 (x, y, z) |
| C1 | -7.5 | 583 | 15, 4, 17 | 22, 22, 22 |
| C3 | -7.2 | 146 | 19, 21, 24 | 22, 22, 22 |
| C4 | -6.6 | 141 | 31, 19, 15 | 22, 22, 22 |
| C2 | -6.2 | 273 | 38, 9, 24 | 22, 22, 22 |
| C5 | -6.2 | 125 | 27, -7, 10 | 22, 22, 22 |
표 9: IFIH1 (PDB ID: 3B6E)에 대한 BRD-K91900765/VX-745의 예측 도킹 포켓. 이 표는 CB-Dock2에 의해 생성된 순위별 캐비티 식별자, Vina 점수, 캐비티 부피, 도킹 박스 중심 및 도킹 박스 크기를 나타냅니다.
| CurPocket ID | Vina 점수 (kcal/mol) | 캐비티 부피 (ų) | 중심 (x, y, z) | 도킹 크기 (x, y, z) |
| C1 | -8.7 | 523 | -18, -14, -5 | 22, 22, 22 |
| C4 | -7.3 | 262 | -13, -6, -9 | 22, 22, 22 |
| C3 | -7 | 306 | 12, 12, -7 | 22, 22, 22 |
| C2 | -6.9 | 408 | -3, 1, -12 | 22, 22, 22 |
| C5 | -6.2 | 179 | 24, 25, 13 | 22, 22, 22 |
표 10: MX1 (PDB ID: 5GTM)과 BRD-K91900765/VX-745의 예측 도킹 포켓. 이 표는 CB-Dock2에 의해 생성된 순위별 공동 식별자, Vina 점수, 공동 부피, 도킹 박스 중심 및 도킹 박스 크기를 나타냅니다.
| CurPocket ID | Vina 점수 (kcal/mol) | 캐비티 부피 (ų) | 중심 (x, y, z) | 도킹 크기 (x, y, z) |
| C2 | -8.1 | 7347 | 112, 137, 148 | 33, 28, 35 |
| C3 | -8.1 | 2604 | 124, 124, 176 | 30, 22, 22 |
| C1 | -8 | 7676 | 137, 112, 148 | 34, 29, 35 |
| C5 | -6.9 | 1976 | 117, 157, 88 | 22, 22, 22 |
| C4 | -6.6 | 2040 | 132, 92, 91 | 22, 22, 22 |
표 11: TLR7 (PDB ID: 7CYN)과 BRD-K91900765/VX-745의 예측 도킹 포켓. 이 표는 CB-Dock2에 의해 생성된 순위별 공동 식별자, Vina 점수, 공동 부피, 도킹 박스 중심 및 도킹 박스 크기를 나타냅니다.
| 카테고리 | 매개변수 | 결과 | 해석 |
| 물리화학적 특성 | 분자량 | 436.27 g/mol | 500 Da 미만으로, 리핀스키 분자량 임계값을 충족함 |
| 물리화학적 성질 | 계산된 지질친화도(cLogP) | 약 5.49 | 5보다 약간 높은 수치이며, 이는 높은 지질친화성을 시사하므로 용해도와 비특이적 결합을 고려해야 함을 나타냅니다. |
| 물리화학적 성질 | 극성 표면적 (TPSA) | 약 47.26 Ų | 낮은 극성 표면적으로, 이는 잠재적으로 유리한 막 투과성과 일치함 |
| 약물 유사성 | HBA/HBD | 5월 00일 | 수소 결합 수용체 및 공여체에 대한 리핀스키(Lipinski) 임계값을 충족함 |
| 약물 유사성 | 회전 가능 결합 | 3 | 낮은 구조적 유연성으로 안정적인 결합 구조 형성에 유리함 |
| 구조적 경고(Structural alerts) | PAINS/Brenk 알람 | 검출되지 않음 | 공통 범-분석 간섭(pan-assay interference) 또는 반응성 구조 경고(reactive structural alerts)가 검출되지 않음 |
| 독성 예측 | 에임스 돌연변이원성 시험 | 예측된 비-에임스 독성 | 예측된 돌연변이 유발 위험이 낮음을 시사하며, 여전히 실험적 검증이 필요함 |
| 독성 예측 | 발암성 | 비발암성으로 예측됨 | 예측된 장기 발암 위험이 상대적으로 낮음을 시사하며, 여전히 실험적 검증이 필요함 |
| 약동학 노트 | 경구 이용률/뇌 투과성 | 문헌 및 데이터베이스에 따르면, 경구 투여가 가능하고 뇌 투과성이 있는 저분자 화합물이 있음이 나타납니다. | p38α 억제제로서의 개발 배경과 일치하며, 폐고혈압(PH) 적응증에 대해서는 여전히 재평가가 필요함 |
표 12: BRD-K91900765/VX-745에 대한 예비 물리화학적 성질, 약물 유사성, ADMET 및 독성 예측. 이 표는 예측된 물리화학적 특성, 약물 유사성 척도, 구조적 경고, 독성 종점 및 약동학적 특성을 요약한 것입니다. 이러한 컴퓨터 기반 예측은 예비 결과이며 실험적인 약동학적 또는 독성학적 검증을 대체하지 않습니다.
| CurPocket ID | Vina 점수 (kcal/mol) | 캐비티 부피 (ų) | 중심 (x, y, z) | 도킹 크기 (x, y, z) |
| C1 | -7.9 | 3560 | 2, 22, 34 | 22, 31, 31 |
| C5 | -7.5 | 254 | -9, 28, 60 | 22, 22, 22 |
| C3 | -7.4 | 351 | 12, 7, 37 | 22, 22, 22 |
| C2 | -6.3 | 827 | 18, 5, 28 | 22, 22, 22 |
| C4 | -6.3 | 334 | -16, 17, 38 | 22, 22, 22 |
표 13: 양성 대조군 분석으로 포함된 BRD-K91900765/VX-745와 기설정된 약리학적 표적인 MAPK14/p38α (PDB ID: 1OUK)의 예측 도킹 포켓. 이 표는 5가지 바이오마커 관련 단백질에 적용된 것과 동일한 도킹 워크플로우를 사용하여 생성된 순위별 공동 식별자, Vina 점수, 공동 부피, 도킹 박스 중심 및 도킹 박스 크기를 나타냅니다.
종합적으로, 디스커버리 분석 및 qRT-PCR 결과는 CXCL10, JUN, IFIH1, MX1, TLR7이 면역 염증성 조절 장애 및 폐혈관 리모델링과 관련된 PH/PAH 후보 바이오마커임을 뒷받침하지만, 독립적인 GSE117261 재현성 분석에서는 JUN이 가장 강력하게 나타났으며 다른 유전자들은 가변적이었습니다. BRD-K91900765/VX-745는 MAPK14/p38α 억제라는 타당한 기전을 가진, 전산적으로 우선순위가 지정된 약물 재창출 후보 물질이며, 치료적 해석에 앞서 표적 결합, 세포, 약동학, 독성 및 동물 모델 검증이 필요합니다.
데이터 가용성:
본 연구에 사용된 모든 공개 전사체 데이터셋은 Gene Expression Omnibus 데이터베이스의 등록 번호 GSE22356, GSE33463, GSE48149, GSE117261 및 GSE210248을 통해 이용 가능합니다. 모든 코딩 파일, 처리된 데이터셋, 비식별화된 qRT-PCR 원시 데이터 및 분석 데이터, 모델 출력값, 그리고 분자 도킹 입력/출력 파일은 구조화된 Zenodo 저장소로 통합되었습니다. 해당 저장소에는 각 파일, 소프트웨어 및 패키지 버전, 스크립트 실행 순서, 그리고 전체 재현 단계가 설명된 README 파일이 포함되어 있습니다 - https://zenodo.org/records/21682282
토론
공개 전사체 데이터, 가중 유전자 공동 발현 네트워크 분석, 기능적 농축 분석, 단백질-단백질 상호작용 네트워크 분석, 세 가지 머신러닝 알고리즘, 외부 검증, 단일 세포 전사체 해석, 정량적 역전사 PCR 확인, Connectivity Map 스크리닝 및 분자 도킹을 결합하여 PH/PAH 관련 분자 바이오마커와 후보 치료 화합물을 식별하기 위한 통합적이고 재현 가능한 워크플로우를 개발하였습니다. CXCL10, JUN, IFIH1, MX1 및 TLR7이 핵심 특징 유전자로 일관되게 우선순위가 지정되었으며, 이들은 종합적으로 면역-염증 및 인터페론 관련 분자 축으로 매핑되었습니다. 이러한 결과는 PH/PAH가 단순한 혈역학적 장애일 뿐만 아니라 면역 활성화, 염증 신호 전달, 선천적 핵산 감지, 그리고 구조적 및 세포 표현형 변화를 포함하는 복잡한 혈관 리모델링 질환이라는 개념을 뒷받침합니다2,5,6.
5개 유전자의 진단적 잠재력은 다중 알고리즘 특성 선택 및 발견 코호트 ROC 분석을 통해 뒷받침되었습니다. GSE117261에서의 독립적 검증 결과는 균일하기보다 이질적이었습니다. JUN은 사전 지정된 FDR 및 AUC 기준을 충족했고, CXCL10은 전사체 전체의 FDR 유의성은 없었으나 방향성적으로 일관된 명목상 증가를 보였으며, IFIH1과 MX1은 제한적인 재현성을 나타냈고, TLR7은 상충하는 방향성을 보였습니다. 이러한 결과는 5개 유전자 모두가 독립적으로 검증되었다는 주장을 뒷받침하지 않으며, 코호트 구성, 조직의 이질성, 플랫폼 차이 및 질병 중증도의 영향 가능성을 시사합니다. 이와 대조적으로, 20개의 PAH 및 20개의 대조군 폐 조직 샘플을 대상으로 한 qRT-PCR에서는 5개 유전자 모두의 유의미한 상향 조절과 양호한 단일 유전자 ROC 성능이 확인되었습니다.
5개 유전자 qRT-PCR 로지스틱 모델은 1.000(95% CI, 1.000–1.000)의 겉보기 AUC를 달성했으며, 100회 반복한 층화 5-겹 교차 검증 분석에서도 통합 out-of-fold AUC는 1.000으로 유지되었습니다. 그럼에도 불구하고, 해당 모델은 단 40개의 생물학적 샘플로 개발되었으며, 소규모 회고적 코호트에서의 완전 분리는 낙관적이고 불안정한 성능 추정치를 생성할 수 있습니다. 따라서 이 패널은 임상적으로 검증된 진단 도구가 아닌 탐색적 분자 시그니처로 간주되어야 합니다. 임상 적용을 위해서는 더 큰 규모의 다기관 코호트, 사전 정의된 고정 모델 계수, 단백질 수준의 검증, 면역조직화학 및 전향적 테스트가 필요합니다.
다섯 가지 핵심 유전자 중 CXCL10은 폐혈관 미세환경 내에서 면역 세포 모집과 국소 염증 증폭을 촉진할 수 있습니다. IFIH1과 TLR7은 선천적 핵산 감지에 관여하며, 항바이러스 유사 염증 경로의 활성화를 반영할 수 있습니다. MX1은 전형적인 인터페론 자극 유전자로, 제1형 인터페론 경로 활성화의 하위 마커를 나타낼 수 있습니다. JUN은 염증 자극을 세포 증식, 세포 사멸 및 조직 리모델링과 연결하는 스트레스 반응성 전사 인자입니다. 종합적으로, 이 유전자들은 선천적 면역 활성화와 인터페론 관련 신호 전달이 PH/PAH의 혈관 리모델링 과정과 상호작용하는 생물학적으로 일관된 모델을 시사합니다. 이러한 해석은 염증, 면역 및 인터페론 관련 경로가 PAH 병태생리에 기여한다는 이전의 증거들과 일치합니다2,5,6.
단일 세포 검증을 통해 벌크 분석 기반 결과에 대한 기전적 맥락을 제공하였다. GSE210248 데이터는 PAH 폐동맥 리모델링이 평활근 세포, 섬유아세포, 혈관 내피세포 및 단핵구/대식세포를 포함한 혈관 구조 세포와 면역 세포 간의 변화된 통신을 동반한다는 것을 시사했다. 수축성, 합성성, 산소 감지/pericyte 유사 및 섬유아세포 유사 상태를 포함한 다중 평활근 세포 표현형 상태의 존재는 면역 활성화와 세포의 구조적 리모델링이 동시에 일어나는 질환 모델을 뒷받침한다. 이러한 세포 수준의 근거는 벌크 전사체 신호가 세포 비율의 변화, 면역 세포 침윤 또는 상주 혈관 세포의 전사 변화로 인해 발생할 수 있기 때문에 중요하다. 따라서 단일 세포 분석은 CXCL10, JUN, IFIH1, MX1 및 TLR7을 단일 세포 유형의 프로세스가 아닌 다세포성 폐혈관 리모델링 생태계 내에 위치시킨다18,19,20,21.
약물 재창출 분석 결과, VX-745/neflamapimod에 해당하는 BRD-K91900765가 계산상 가장 순위가 높은 후보 물질로 식별되었습니다. VX-745는 선택적 p38α/MAPK14 억제제이며, 염증성 스트레스 경로와의 연관성으로 인해 PH/PAH 관련 염증 맥락에서 기전적으로 타당성이 있습니다30. 따라서 MAPK14/p38α에 대한 도킹 분석을 기전적으로 유의미한 양성 대조 분석으로 포함하였습니다. 반면, CXCL10, JUN, IFIH1, MX1 및 TLR7에 대한 도킹은 탐색적 분석이었으며, 이는 예측된 구조적 적합성만을 나타냅니다. 즉, 이러한 바이오마커 관련 단백질들이 VX-745의 직접적인 표적임을 입증하거나, 직접적인 결합, 표적 억제 또는 치료 효능을 확립한 것은 아닙니다. 보다 생물학적으로 타당한 가설은 VX-745가 MAPK14를 억제함으로써 식별된 면역-염증 및 인터페론 관련 전사 시그니처를 간접적으로 조절할 수 있다는 것입니다. Connectivity Map 예측, 도킹 점수 및 ADMET 추정치는 여전히 계산적 근거에 해당합니다. 향후 연구에는 생화학적 표적 결합 분석, 폐동맥 내피 및 평활근 세포 실험, 염증 자극 모델, 약동학 및 독성학적 평가, 그리고 동물 모델 검증이 포함되어야 합니다.
저산소성 폐고혈압에 관한 최근의 실험적 연구들은 호중구와 폐혈관 세포 간 통신의 중요성을 강조해 왔습니다. 호중구와 폐동맥 평활근 세포 간의 HCK 매개 상호작용 및 호중구와 내피세포 간의 SERPINB3 매개 상호작용이 폐혈관 리모델링의 기여 요인으로 보고된 바 있습니다31˒32. 전사체 분석에서 인터페론 관련, STAT1 및 JAK–STAT 신호가 확인되었기 때문에, SERPINB3–STAT1/3 축은 본 연구 결과와 특히 밀접한 관련이 있습니다. 종합하면, 이러한 관찰 결과들은 면역 세포의 활성화 및 혈관 구조 세포와의 통신이 PH/PAH 진행에 기여할 수 있다는 해석을 뒷받침합니다.
본 연구는 몇 가지 강점을 가지고 있습니다. 데이터셋 특유의 편향을 줄이기 위해 여러 공공 데이터셋과 배치 효과 교정이 사용되었습니다. 특성 강건성을 향상시키기 위해 차별 발현 분석, 가중 유전자 공동 발현 네트워크 분석, 단백질-단백질 상호작용 분석 및 세 가지 머신러닝 알고리즘이 결합되었습니다. 독립적인 벌크 검증, qRT-PCR 확인 및 단일 세포 근거는 상호 보완적이지만 서로 다른 층위의 근거를 제공하였습니다. 불균질한 GSE117261 결과와 소규모 qRT-PCR 코호트는 불완전한 외부 재현성, 잠재적인 조직 및 플랫폼 특이적 효과, 과적합 위험을 포함한 중요한 한계점 또한 보여줍니다. 바이오마커 발굴은 후보 화합물 스크리닝까지 확장되었으나, 도킹 분석은 여전히 가설 생성 단계에 머물러 있습니다. 향후 연구에서는 공간 전사체학, 단백질체학, 면역 조직 화학 염색, 오가노이드 또는 혈관-온-칩 모델을 사용하여 더 큰 독립적 코호트에서 5개 유전자를 검증해야 합니다. 종합적으로, CXCL10, JUN, IFIH1, MX1, TLR7은 면역 염증 및 인터페론 관련 혈관 리모델링과 연관된 PH/PAH 후보 바이오마커로 남아 있으며, BRD-K91900765/VX-745는 치료적 관련성에 대한 실험적 검증이 필요한 전산적 약물 재창출 후보 물질입니다.
공개 사항
저자들은 상충하는 이해관계가 없음을 선언합니다.
감사의 글
본 연구는 Hunan 혁신 주 건설 프로젝트(No. 2022JJ30465)의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 2× SYBR Green PCR 마스터믹스 | Beijing Solarbio Science & Technology Co., Ltd. | 카탈로그 번호 SR1110 | 염료 기반 정량적 실시간 PCR 증폭 및 형광 검출 |
| AI21.msvmRFE.R 및 e1071 | CRAN e1071 패키지를 이용한 사용자 정의 R 스크립트 | AI21.msvmRFE.R; e1071 v1.7-17 | 서포트 벡터 머신-재귀적 특성 제거 |
| 아가로스 | Beijing Solarbio Science & Technology Co., Ltd. | 카탈로그 번호 A8201; CAS 9012-36-6 | 아가로스 겔 전기영동을 이용한 총 RNA 무결성 평가 |
| 아가로스 겔 전기영동 장치 | Beijing Liuyi Biotechnology Co., Ltd. | 모델 DYCZ-24DN | RNA 무결성의 전기영동 평가 |
| AutoDock Vina 스코어링 엔진 | 컴퓨터 구조 생물학 센터, 스크립스 연구소 | v1.2.0; RRID: SCR_011958 | CB-Dock2 워크플로우 내의 단백질-리간드 포즈 스코어링 |
| CB-Dock2 | Cao 연구실, CB-Dock2 웹 서버 | v2.0; 2026년 7월 접속 | 선택된 단백질 구조를 이용한 VX-745의 블라인드 캐비티 탐색 및 분자 도킹 |
| CellChat | CellChat R 패키지 | v2.1.2 | 단일 세포 발현 행렬을 이용한 세포 간 통신 추론 및 시각화 |
| CellChatDB.human | CellChat R 패키지와 함께 제공됨 | CellChatDB.human; 분비 신호 전달 하위 집합; 최소 세포 임계값 = 10 | CellChat을 위한 인간 리간드-수용체 상호작용 데이터베이스 |
| clusterProfiler | Bioconductor R 패키지 | v4.20.0; Bioconductor 릴리스 3.23 | 유전자 존재론(Gene Ontology) 및 교토 유전자 및 게놈 백과사전(Kyoto Encyclopedia of Genes and Genomes) 풍부도 분석 |
| 커넥티비티 맵 (Connectivity Map (CMap/CLUE)) | Broad Institute | L1000/CLUE 리소스; RRID: SCR_016204; 2026년 7월 접속 | 컴퓨터 기반 약물 재창출 분석 |
| 맞춤형 올리고뉴클레오타이드 프라이머 | Beijing Solarbio Science & Technology 주식회사 | 맞춤 합성; 프라이머 서열은 표 2에 제시됨 | ACTB, CXCL10, JUN, IFIH1, MX1 및 TLR7의 증폭 |
| cytoHubba | Cytoscape 앱 스토어 | v0.1 | 단백질-단백질 상호작용 네트워크에서의 연결도 기반 허브 유전자 순위 지정 |
| Cytoscape | Cytoscape 컨소시엄 | v3.10.4; RRID: SCR_003032 | 단백질-단백질 상호작용 네트워크 시각화 및 분석 |
| DrugBank | DrugBank 지식베이스 | v6.0; RRID: SCR_002700 | 화합물 식별 및 약리학 정보 큐레이션 |
| 겔 문서화 시스템 | Beijing Liuyi Biotechnology Co., Ltd. | 모델 WO-9413B | 아가로스 겔 RNA 무결성 결과의 시각화 및 기록 |
| 유전자 발현 옴니버스 (GEO) | 국립생물정보센터 | GSE22356, GSE33463, GSE48149, GSE117261, GSE210248; RRID: SCR_005012 | 벌크 및 단일 세포 전사체 데이터셋의 검색 |
| GEOquery | Bioconductor R 패키지 | v2.80.0; Bioconductor 릴리스 3.23 | GEO 발현 및 표현형 데이터의 프로그래밍 방식 다운로드 및 임포트 |
| glmnet | CRAN R 패키지 | v5.0 | 최소 절대 수축 및 선택 연산자(LASSO) 로지스틱 회귀 및 정규화 로지스틱 모델링 |
| limma | Bioconductor R 패키지 | v3.68.0; Bioconductor 릴리스 3.23; RRID: SCR_010943 | 차별 발현 분석 및 경험적 베이즈 통계 분석 |
| NanoDrop 분광광도계 | Thermo Fisher Scientific | NanoDrop ND-1000; 소프트웨어 v3.8 | RNA 농도 및 A260/280 및 A260/230 순도 비율 측정 |
| NCBI Primer-BLAST | 국립생물공학정보센터 | 웹 도구; RRID: SCR_003095; 2026년 7월 접속 | 프라이머 특이성 검증 |
| pROC | CRAN R 패키지 | v1.19.0.1; RRID: SCR_024286 | 수신자 조작 특성 분석, DeLong 신뢰 구간 및 Youden 지수 절단값 |
| 단백질 구조 데이터은행 (Protein Data Bank, PDB) | RCSB 단백질 구조 은행 | CXCL10: 1LV9; JUN: 1JUN; IFIH1: 3B6E; MX1: 5GTM; TLR7: 7CYN; MAPK14/p38α: 1OUK; RRID: SCR_012820 | 분자 도킹을 위한 실험적 결정 단백질 구조의 검색 |
| PubChem | 국립생물공학정보센터 | PubChem CID 3038525; RRID: SCR_004284 | BRD-K91900765/VX-745의 3차원 구조 및 화학 식별자 검색 |
| R | R Foundation for Statistical Computing | v4.6.1; RRID: SCR_001905 | 통계 컴퓨팅, 데이터 처리, 머신 러닝 및 시각화 |
| 랜덤 포레스트 | CRAN R 패키지 | v4.7-1.2 | 랜덤 포레스트 특징 선택 및 변수 중요도 순위 지정 |
| 실시간 PCR 시스템 | Stratagene(현재 Agilent Technologies) | Mx3000P 실시간 PCR 시스템 | qRT-PCR 증폭, 형광 획득, 멜팅 커브 분석 및 Ct 값 내보내기 |
| Seurat | CRAN R 패키지; Satija Laboratory | v5.5.1; RRID: SCR_016341 | 단일 세포 RNA 시퀀싱 품질 관리, 정규화, 차원 축소, 클러스터링 및 어노테이션 |
| 제공된 텍스트가 없습니다. 번역할 소스 텍스트를 입력해 주세요. | STRING 컨소시엄 | v12.0; RRID: SCR_005223 | 단백질-단백질 상호작용 네트워크 구축 |
| sva (ComBat) | Bioconductor R 패키지 | v3.60.0; Bioconductor 릴리스 3.23 | 데이터셋 간 배치 효과의 보정 |
| SwissADME | 스위스 생물정보학 연구소 | 웹 서버; 2026년 7월 접속 | 약물 유사성, 물리화학적 성질 및 ADME 사전 스크리닝 |
| 총 RNA 추출 키트 | Beijing Solarbio Science & Technology 주식회사 | 카탈로그 번호 R1200 | 폐 조직 샘플로부터의 총 RNA 추출 및 정제 |
| 범용 RT-PCR 키트 (AMV) | 베이징 솔라바이오 사이언스(Beijing Solarbio Science) & Technology Co., Ltd. | 카탈로그 번호 RP1200 | 총 RNA의 상보적 DNA로의 역전사 |
| 가중 유전자 공발현 네트워크 분석(WGCNA) | CRAN R 패키지 | v1.74 | 가중 유전자 공동 발현 네트워크 구축 및 모듈-형질 분석 |
참고문헌
- Simonneau G, et al. Haemodynamic definitions and updated clinical classification of pulmonary hypertension. Eur Respir J. 2019;53(1):1801913. doi: 10.1183/13993003.01913-2018.
- Rabinovitch M, Guignabert C, Humbert M, Nicolls MR. Inflammation and immunity in the pathogenesis of pulmonary arterial hypertension. Circ Res. 2014;115(1):165–175.
- Humbert M, et al. 2022 ESC/ERS Guidelines for the diagnosis and treatment of pulmonary hypertension. Eur Heart J. 2022;43(38):3618–3731.
- Galiè N, et al. 2015 ESC/ERS Guidelines for the diagnosis and treatment of pulmonary hypertension. Eur Respir J. 2015;46(4):903–975.
- Soon E, et al. Elevated levels of inflammatory cytokines predict survival in idiopathic and familial pulmonary arterial hypertension. Circulation. 2010;122(9):920–927.
- George PM, et al. Evidence for the involvement of type I interferon in pulmonary arterial hypertension. Circ Res. 2014;114(4):677–688.
- Subramanian A, et al. A next-generation Connectivity Map: L1000 platform and the first 1,000,000 profiles. Cell. 2017;171(6):1437–1452.e17.
- Leek JT, et al. The sva package for removing batch effects and other unwanted variation in high-throughput experiments. Bioinformatics. 2012;28(6):882–883.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47. doi: 10.1093/nar/gkv007.
- Langfelder P, Horvath S. WGCNA: an R package for weighted correlation network analysis. BMC Bioinformatics. 2008;9:559. doi: 10.1186/1471-2105-9-559.
- Yu G, Wang LG, Han Y, He QY. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 2012;16(5):284–287.
- Kanehisa M, Goto S. KEGG: Kyoto Encyclopedia of Genes and Genomes. Nucleic Acids Res. 2000;28(1):27–30.
- Szklarczyk D, et al. The STRING database in protein–protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 2023;51(D1):D638–D646.
- Friedman J, Hastie T, Tibshirani R. Regularization paths for generalized linear models via coordinate descent. J Stat Softw. 2010;33(1):1–22.
- Guyon I, Weston J, Barnhill S, Vapnik V. Gene selection for cancer classification using support vector machines. Mach Learn. 2002;46:389–422.
- Breiman L. Random forests. Mach Learn. 2001;45(1):5–32.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77. doi: 10.1186/s12859-011-0077-8.
- Stearman RS, et al. Systems analysis of the human pulmonary arterial hypertension lung transcriptome. Am J Respir Cell Mol Biol. 2019;60(6):637–649.
- Crnkovic S, et al. Single-cell transcriptomics reveals skewed cellular communication and phenotypic shift in pulmonary artery remodeling. JCI Insight. 2022;7(20):e153471. doi: 10.1172/jci.insight.153471.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184(13):3573–3587.e29.
- Jin S, et al. Inference and analysis of cell–cell communication using CellChat. Nat Commun. 2021;12(1):1088. doi: 10.1038/s41467-021-21246-9.
- Bustin SA, et al. MIQE 2.0: revision of the Minimum Information for Publication of Quantitative Real-Time PCR Experiments guidelines. Clin Chem. 2025;71(6):634–651.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCt method. Methods. 2001;25(4):402–408.
- Kim S, et al. PubChem 2023 update. Nucleic Acids Res. 2023;51(D1):D1373–D1380.
- Knox C, et al. DrugBank 6.0: the DrugBank Knowledgebase for 2024. Nucleic Acids Res. 2024;52(D1):D1265–D1275.
- Daina A, Michielin O, Zoete V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness, and medicinal chemistry friendliness of small molecules. Sci Rep. 2017;7:42717. doi: 10.1038/srep42717.
- Burley SK, et al. RCSB Protein Data Bank: powerful new tools for exploring 3D structures of biological macromolecules for basic and applied research and education. Nucleic Acids Res. 2021;49(D1):D437–D451. doi: 10.1093/nar/gkaa1038.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891–3898. doi: 10.1021/acs.jcim.1c00203.
- Liu Y, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking, and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164. doi: 10.1093/nar/gkac394.
- Duffy JP, et al. The discovery of VX-745: a novel and selective p38α kinase inhibitor. ACS Med Chem Lett. 2011;2(10):758–763.
- Sheng Y, et al. Crocin inhibits neutrophil migration and activation to treat hypoxic pulmonary hypertension through targeting HCK. Phytomedicine. 2025;148:157334. doi: 10.1016/j.phymed.2025.157334.
- Cui H, et al. Leonurine ameliorates hypoxic pulmonary hypertension by inhibiting cross-talk between neutrophils and endothelial cells via SERPINB3 targeting. Int Immunopharmacol. 2026;176:116467. doi: 10.1016/j.intimp.2026.116467.