본 연구에서는 제2형 당뇨병 환자의 혈청 miR-3619-5p 발현 수준을 조사하고, 췌장 β-세포 기능에서 이 분자의 조절 역할을 연구하였습니다. miR-3619-5p는 T2DM에서 발현이 감소하며, MTA3를 표적으로 하여 췌장 β-세포 기능 조절에 관여할 수 있습니다.
이 논문에서
요약
초록
제2형 당뇨병(T2DM)의 핵심 병리적 특징은 췌장 β-세포의 기능 부전입니다. 따라서 췌장 β-세포의 항상성을 조절하는 효과적인 혈중 바이오마커와 분자 표적을 규명하는 것은 매우 중요한 실질적 의미를 갖습니다. 유전자 발현의 핵심 조절 분자인 miRNA는 췌장 β-세포의 증식, 세포 사멸 및 인슐린 분비에서 중요한 역할을 합니다. 본 연구의 목적은 T2DM 환자의 혈청에서 miR-3619-5p의 발현 패턴과 임상적 가치를 조사하고, 췌장 β-세포 증식에서의 조절 역할을 규명하는 것입니다. RT-qPCR을 사용하여 miR-3619-5p와 MTA3의 발현을 검출하였으며, 진단 성능을 평가하기 위해 ROC 곡선을 이용하였습니다. 생물정보학 분석과 이중 루시퍼레이스 분석(dual-luciferase assay)을 통해 표적-리간드 관계를 검증하였습니다. 세포 증식은 CCK-8 분석으로 측정하였고, 세포 사멸은 유세포 분석법을 통해 확인하였습니다. 인슐린 분비 수준은 ELISA를 사용하여 측정하였습니다. 연구 결과, T2DM 환자와 췌장 β-세포에서 miR-3619-5p와 MTA3의 발현이 감소되어 있음을 확인하였습니다. miR-3619-5p는 T2DM 진단을 위한 바이오마커가 될 수 있으며, miR-3619-5p의 과발현은 세포 증식을 촉진하고 세포 사멸을 억제하며 인슐린 분비를 강화합니다. miR-3619-5p는 MTA3를 표적으로 하여 조절하며, 이 둘은 유의미한 양의 상관관계를 보였습니다. miR-3619-5p mimic은 si-MTA3로 인해 유발된 췌장 β-세포 기능 손상을 회복시킬 수 있습니다. 요약하면, miR-3619-5p는 T2DM에서 발현이 감소되어 있으며 진단적 가치를 지닙니다. miR-3619-5p는 MTA3를 표적으로 함으로써 췌장 β-세포 기능 조절에 관여할 수 있습니다.
서론
만성 대사 질환인 제2형 당뇨병(T2DM)은 주로 인슐린 저항성과 더불어 인슐린 분비 기능의 점진적인 상실로 나타나며, 전체 당뇨병 사례의 80% 이상을 차지합니다1. 그 병인 기전은 복잡하며, 유전적 및 환경적 요인의 결합뿐만 아니라 세포 및 분자 조절의 이상이 관여합니다2,3. 췌장 β-세포가 인슐린 분비를 담당하는 주요 세포라는 점을 고려할 때, 이들의 증식 능력의 비정상적인 감소는 T2DM에서 인슐린 분비 부족의 핵심 원인이 됩니다4. 현재 T2DM의 임상 진단은 주로 혈당 및 당화혈색소(HbA1c)와 같은 전통적인 지표에 의존하고 있으나, 조기 스크리닝 및 질병 진행 예측에 대한 민감도는 제한적입니다5. 따라서 T2DM의 정밀 진단 및 치료를 위한 새로운 전략을 제공하기 위해 민감하고 특이적인 바이오마커와 핵심 조절 표적을 식별하는 것이 시급합니다.
장기간의 고혈당으로 유발된 당독성의 영향 아래, 췌장 β-세포의 증식은 제한되고 세포사멸(apoptosis)이 증가하여, 결과적으로 포도당 의존적 인슐린 분비가 점진적으로 소실되며, 이 과정은 질환의 지속적인 진행을 가속화하는 핵심 요인이 됩니다6,7. 마이크로RNA(miRNAs)는 세포 내의 다양한 생리적 과정에 관여하며8, 췌장 섬세포의 증식, 세포사멸 및 인슐린 분비를 포함한 생리적 과정에 중요한 조절 효과를 행사합니다9,10. 여러 연구를 통해 제2형 당뇨병(T2DM)에서 다양한 miRNA가 비정상적으로 발현되며, 질환의 병태생리와 밀접하게 연관되어 있음이 입증되었습니다11,12,13. miR-3619-5p는 세포 증식 및 세포사멸을 포함한 생물학적 과정에 참여하며, 이에 대한 현재의 연구는 주로 종양학 분야에 집중되어 왔습니다14,15. miR-3619-5p의 비정상적인 발현은 피부 편평세포암, 폐암, 대장암 및 위암을 포함한 악성 종양에서 관찰되었으며, 여기서 표적 유전자를 조절하여 종양 세포의 증식, 전이 및 세포사멸에 영향을 미칩니다16,17,18,19. 그러나 T2DM에서 miR-3619-5p의 임상적 발현 특성, 임상적 관련성 및 췌장 기능 조절 기전에 관한 연구에는 여전히 분명한 공백이 존재합니다.
MTA 가족의 주요 구성원인 MTA3는 단백질-단백질 상호작용과 유전자 전사 조절을 매개하며, 세포 증식, 세포 사멸 및 대사를 포함한 핵심 생리 과정에 광범위하게 관여합니다20. MTA3에 대한 현재 연구는 주로 종양학에 집중되어 왔으며21,22,23, 대사 질환, 특히 T2DM에서의 역할에 대한 연구는 제한적이었습니다. 일부 연구에서는 당뇨병 관련 유전자인 MTA3가 고혈당으로 유도된 간 섬유화 조절에 참여한다는 것을 발견했습니다24. 이는 MTA3가 T2DM의 진행에 관여할 수 있음을 시사하지만, T2DM 상황에서 miR-3619-5p에 의해 조절되는지 여부는 아직 확인되지 않았습니다.
요약하자면, miR-3619-5p에 관한 기존 연구는 주로 종양 및 염증 모델에 국한되어 왔으며, T2DM에서의 임상적 발현 양상과 췌장 β-세포 항상성 및 포도당 대사 장애에서의 역할은 아직 밝혀지지 않았습니다. 따라서 본 연구는 T2DM 환자의 혈청 내 miR-3619-5p의 발현과 임상적 유의성을 평가함으로써 miR-3619-5p와 MTA3 사이의 표적 관계를 검증하고, 췌장 β-세포 증식에 미치는 조절 역할을 조사하여 T2DM의 발병 기전 연구와 임상 진단 및 치료를 위한 새로운 이론적 근거를 제공하고자 합니다.
프로토콜
본 연구는 TongzhouBay 인민병원 의료윤리위원회의 승인을 받았습니다(승인 번호 2024122001). 본 연구에 사용된 절차는 헬싱키 선언의 원칙을 준수합니다. 연구에 참여한 모든 개별 대상자로부터 고지된 동의를 얻었습니다. 연구에 포함된 모든 개인의 데이터에 대해 출판 동의를 얻었습니다.
연구 대상
본 연구에서는 2022년 1월부터 2023년 6월 사이에 본원에서 진단받은 T2DM 환자 102명을 후향적으로 선정하였다. 선정 대상자는 공복 혈당 ≥7.0 mmol/L 및 식후 2시간 혈당 ≥11.1 mmol/L를 포함한 T2DM 진단 기준을 충족하고, 이전 3개월 이내에 인슐린 또는 신세대 당뇨병 치료제로 치료받은 적이 없으며, 심장, 간, 신장 또는 기타 장기를 침범하는 중증 합병증이 없고 악성 종양, 자가면역 질환 또는 감염성 질환의 병력이 없으며, 임상 기록이 완전한 환자로 하였다. 제1형 당뇨병 또는 기타 특수 유형의 당뇨병 환자, 중증 감염, 외상, 수술 또는 기타 원인으로 인해 스트레스 상태에 있는 자, 이전 3개월 이내에 글루코코르티코이드, 면역억제제 또는 유사 약물을 사용한 자, 그리고 임산부 또는 수유부는 제외하였다. 동일 기간 동안 본원에서 정기 건강검진을 받은 80명으로 구성된 대조군도 포함하였다.
시료 수집
모든 연구 참여자는 최소 8–12시간 동안 금식하였습니다. 아침 일찍 정맥혈 5 mL를 채취하여 RNase-free EP 튜브에 분주하고, 원심분리(3000 × g, 10분)하여 혈청을 분리한 후, 향후 사용을 위해 -80 °C에서 보관하였습니다.
세포 배양 및 처리
쥐 췌장 islet β-세포주인 INS-1을 10% FBS와 1% penicillin-streptomycin이 포함된 RPMI 1640 배지에서 배양하였다. 고혈당(HG) 유도 세포 손상 모델을 구축하기 위해 INS-1 세포를 25 mM glucose가 포함된 배지에서 배양하였다25. 무처리군의 경우, INS-1 세포를 RPMI 1640 배지(11.1 mM glucose 포함)에서 배양하였다.
miR-3619-5p mimic, miRNA 공백 대조군(miR-NC), si-MTA3 및 공백 대조군(si-NC)이 포함된 transfection kit를 사용하여 형질전환을 수행하였다. miR-3619-5p mimic, miR-3619-5p inhibitor, siRNA 및 해당 음성 대조군들은 모두 RiboBio에서 구입하였다. miRNA mimic 농도는 50 nM, miRNA inhibitor 농도는 100 nM, siRNA 농도는 50 nM로 설정하였다. 후속 실험은 형질전환 48시간 후에 진행되었다. 관련 서열은 다음에서 확인할 수 있다. 부록 표 1.
정량적 역전사 중합효소 연쇄반응 (RT-qPCR)
혈청에서 총 RNA를 추출하기 위해 TRIzol 시약을 사용하였으며, 세포에서 총 RNA를 추출하기 위해 miRNeasy Mini Kit를 사용하였다. miR-3619-5p 검출을 위해 역전사 키트를 사용하여 역전사를 수행하였고, cDNA 합성 후 miRNA 정량 키트를 이용하였으며, 내부 대조군으로는 U6를 사용하였다. MTA3 검출을 위해 mRNA 역전사 키트를 사용하여 cDNA로의 역전사를 수행하였으며, mRNA 정량 키트를 사용하여 RT-qPCR을 실시하였고, 내부 대조군으로는 GAPDH를 사용하였다. miR-3619-5p 및 MTA3의 발현 변화는 2-ΔΔCt 방법으로 분석하였다. 프라이머 서열은 부록 표 1(Supplementary Table 1)에 제시되어 있다.
이중 루시페레이스 리포터(DLR) 분석
miR-3619-5p 결합 부위를 포함하는 MTA3의 야생형(WT) 및 돌연변이형(MUT) 3'-UTR을 pmirGLO 벡터에 클로닝하였다. 해당 벡터를 miR-3619-5p mimic 및 miR-3619-5p inhibitor와 함께 트랜스펙션 시약을 사용하여 293T 세포에 공동 트랜스펙션하였다. 트랜스펙션 대조군으로는 공벡터 리포터 플라스미드군(Control)과 miRNA 음성 대조군 트랜스펙션군(miR-NC)을 포함하였다. 48시간 후, Renilla 루시페레이스 활성을 내부 대조군으로 하여 이중 루시페레이스 리포터 시스템으로 상대적 루시페레이스 활성을 측정하였다. 각 군은 3회의 독립적인 생물학적 반복 실험으로 구성되었으며, 각 생물학적 반복 실험은 3회의 기술적 반복 실험으로 수행되었다.
세포 증식 분석
형질전환된 세포를 96-well 플레이트에 분주합니다. 각각 0 h, 24 h, 48 h, 72 h 동안 배양한 후, 각 웰에 CCK-8 시약 10 μL를 첨가하고 37 °C에서 2 h 동안 배양한 다음, 마이크로플레이트 리더를 사용하여 450 nm에서 흡광도를 측정합니다.
세포 사멸 분석
PBS로 세포를 3회 세척한 후, Annexin V-FITC 10 μL와 PI 5 μL가 포함된 결합 버퍼 200 μL에 다시 현탁합니다. 암소 상태의 상온에서 15분 동안 배양합니다. 결합 버퍼 300 μL를 추가한 다음, 즉시 유세포 분석기를 사용하여 세포를 분석하고 세포 사멸률을 계산합니다.
효소 결합 면역 흡착 분석법 (ELISA)
형질전환된 세포를 96-well plate에 분주하고 37 °C에서 하룻밤 동안 기아 상태로 두었다. 배양액을 25 mM glucose가 포함된 용액으로 교체하고 세포를 1시간 동안 배양한 후, 처리된 INS-1 세포의 배양액을 수집하여 인슐린 분비량을 측정하였다. INS-1 세포를 산성 메탄올에 재현탁시킨 후 초음파 처리를 하여 상층액을 수집함으로써 총 인슐린 함량을 결정하였다. Rat Insulin ELISA Kit를 사용하였으며, 제조사의 지침에 따라 분석을 수행하였다. 본 분석에서는 테스트 키트와 함께 제공된 표준 물질을 사용하여 검정 곡선을 작성하였으며, 시료의 흡광도 값을 기반으로 인슐린의 절대 농도를 계산하였다. 이때 절대 농도의 단위는 μIU/mL로 하였다. 최종적으로, 배양액에서 측정된 인슐린 수준을 총 세포 내 인슐린 함량으로 정규화하여 인슐린 분비 능력을 평가하였다. 통계 그래프의 데이터는 대조군 대비 계산된 배수 변화(fold change)로 나타내었다.
웨스턴 블롯
각 군의 형질전환된 세포를 수확하고 RIPA lysis buffer를 첨가하였다. BCA법을 사용하여 총 단백질 농도를 측정하였다. 50 μg의 총 단백질을 5× loading buffer와 혼합하고 10분간 가열하였다. 10% SDS-polyacrylamide gel electrophoresis를 수행한 후, 단백질을 polyvinylidene fluoride membrane으로 전이시켰다. 5% skimmed milk로 1시간 동안 블로킹한 후, 1차 항체인 MTA3 (1:1000)와 GAPDH (1:1000)를 첨가하여 4 °C에서 하룻밤 동안 배양하였다. membrane을 TBST로 세척한 다음, HRP-labeled goat anti-rabbit IgG 2차 항체 (1:1000)를 첨가하여 실온에서 1시간 동안 배양하였다. ECL chemiluminescence법을 사용하여 시각화하였다.
통계 분석
정량적 데이터는 평균 ± 표준편차로 표시하였다. 통계 분석을 수행하기 전, 데이터의 정규성을 확인하기 위해 Shapiro–Wilk 검정을 사용하였고, 분산의 동질성을 평가하여 모수 검정의 적합성을 결정하기 위해 Levene 검정을 사용하였다. 이러한 검정 결과, 본 연구의 모든 정량적 데이터는 정규 분포를 따르며 분산의 동질성 가정을 충족하는 것으로 나타났으므로, 통계 분석에 모수 검정을 적용하였다. 두 그룹 간의 데이터 분석에는 독립 표본 t-검정을 사용하였으며, 여러 그룹 간의 비교에는 Tukey 사후 검정을 포함한 일원 분산 분석(ANOVA)을 사용하였다. 변수 간의 선형 관계를 평가하기 위해 산점도를 사용하였다. 정규성과 선형성 가정이 충족되는 경우 Pearson 상관 분석을 적용하였다. Pearson 상관 분석에는 102명의 모든 참가자가 포함되었으며, 이상치는 제외하지 않았다. 산점도에서 관찰되는 점들의 군집 현상은 샘플 관측치의 중첩으로 인한 것이다. 모든 실험은 3개의 반복 샘플을 포함하였으며, 각 실험은 3회 반복 수행되었다. p-value <0.05인 경우를 통계적으로 유의미한 것으로 간주하였다.
결과
연구 참여자 간의 인구통계학적 특성 및 임상적 대사 지표 비교
비교 결과, T2DM 환자에서 FBG 및 HbA1c 수치가 현저하게 증가한 것으로 나타났으며 (P < 0.001), 다른 파라미터에서는 유의미한 차이가 없었습니다 (P > 0.05) (표 1).
miR-3619-5p의 발현 및 임상적 의의
RT-qPCR 분석 결과, T2DM 환자의 혈청 내 miR-3619-5p 발현이 유의하게 감소한 것으로 나타났다(P < 0.001; 그림 1A). ROC 곡선 분석 결과, T2DM 진단에 있어 miR-3619-5p의 AUC는 0.871(95% CI: 0.820–0.922)이었다(그림 1B). 또한, 102명의 T2DM 환자를 대상으로 실시한 Pearson 상관관계 분석 결과, miR‑3619‑5p 발현은 FBG(그림 1C) 및 HbA1c(그림 1D)와 뚜렷한 음의 상관관계를 보였다.
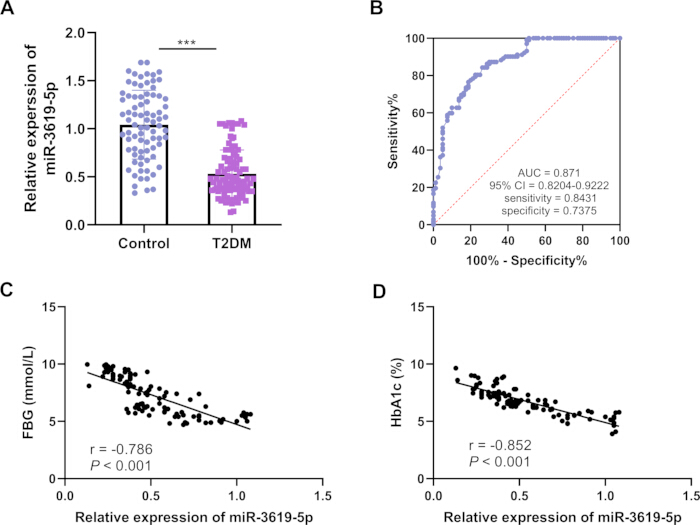
그림 1: miR-3619-5p의 발현 및 임상적 유의성. (A) T2DM 환자의 혈청 내 miR-3619-5p 발현에 대한 RT-qPCR 분석. (B) miR-3619-5p를 이용한 T2DM 진단의 ROC 곡선. (C) miR-3619-5p의 상대적 발현량과 공복 혈당(FBG) 간의 Pearson 상관 분석. (D) miR-3619-5p의 상대적 발현량과 HbA1c 간의 Pearson 상관 분석. 오차 막대는 표준 편차(SD)를 나타내며; 대조군, n = 80; T2DM, n = 102. ***P < 0.001 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
miR-3619-5p가 췌장 β-세포 기능에 미치는 영향
제2형 당뇨병(T2DM)의 진행을 모방하기 위해 HG를 처리한 INS-1 췌장 β-세포를 대상으로 세포 기능 분석을 수행하였습니다. 분석 결과, HG 처리 후 miR-3619-5p의 발현이 유의하게 감소한 반면(P < 0.001), miR-3619-5p mimic을 형질전환 시켰을 때 그 발현이 현저히 상향 조절되었습니다(P < 0.01; Figure 2A). 세포 증식 및 세포사멸과 관련하여, HG 처리는 세포 증식을 현저히 억제하고 세포사멸을 촉진하였으나(P < 0.001), miR-3619-5p mimic은 HG 처리 후 증식을 촉진하고 세포사멸을 억제하였습니다(P < 0.01; Figure 2B,C). ELISA 결과, HG 처리 후 인슐린 분비가 유의하게 감소하였으나(P < 0.001), miR-3619-5p mimic은 HG 처리 후 인슐린 분비를 증가시켰습니다(P < 0.01; Figure 2D).
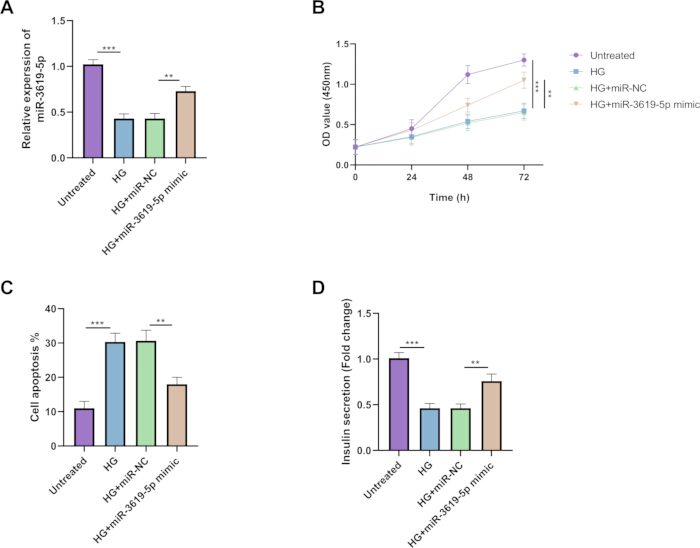
그림 2: 췌장 β-세포 기능에 미치는 miR-3619-5p의 영향. T2DM의 진행을 모사하기 위해 INS-1 췌장 β-세포를 HG로 처리하였다. (A) RT-qPCR을 사용하여 세포 내 miR-3619-5p의 발현을 검출하였다. (B) CCK-8 분석을 통해 세포 증식을 평가하였다. (C) 유세포 분석법을 사용하여 세포 사멸을 평가하였다. (D) ELISA를 사용하여 인슐린 분비 수준(총 세포 내 인슐린 함량으로 정규화)을 측정하였다. 오차 막대는 표준 편차(SD)를 나타내며, n = 3이다. ***P < 0.001; **P < 0.01 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
miR-3619-5p 표적의 검증
생물정보학 예측 결과, 4개의 데이터베이스에서 총 174개의 표적 유전자가 확인되었으며(그림 3A), MTA3 결합 부위는 높은 보존성을 나타냈습니다(Context++ 점수: -0.31, Context++ 점수 백분위: 98). miR-3619-5p와 MTA3의 3'-UTR 영역 사이의 상보적 결합 부위가 확인되었습니다(그림 3B). DLR 결과, miR-3619-5p mimic 그룹에서 MTA3 WT의 상대적 루시퍼레이스 활성이 유의하게 증가하여, miR-3619-5p가 MTA3에 결합할 수 있음을 나타냈습니다(그림 3C).
T2DM 환자의 혈청에서 MTA3의 발현이 현저하게 감소되었습니다(그림 3D). 또한 HG로 처리한 INS-1 세포에서도 MTA3의 발현이 유의하게 감소한 반면, miR-3619-5p mimic은 MTA3의 발현을 상향 조절하였습니다(그림 3E). Western blot 결과, miR-3619-5p mimic은 MTA3의 단백질 수준을 상향 조절하였으나, miR-3619-5p inhibitor는 그 발현을 유의하게 하향 조절하였습니다(부록 그림 1). Pearson 상관관계 분석 결과, 102명의 T2DM 환자 혈청 내 miR-3619-5p와 MTA3 수준 사이에 유의한 양의 상관관계가 있음이 밝혀졌습니다(그림 3F). 이러한 결과는 MTA3에 대한 miR-3619-5p의 긍정적인 조절 역할을 더욱 입증합니다.
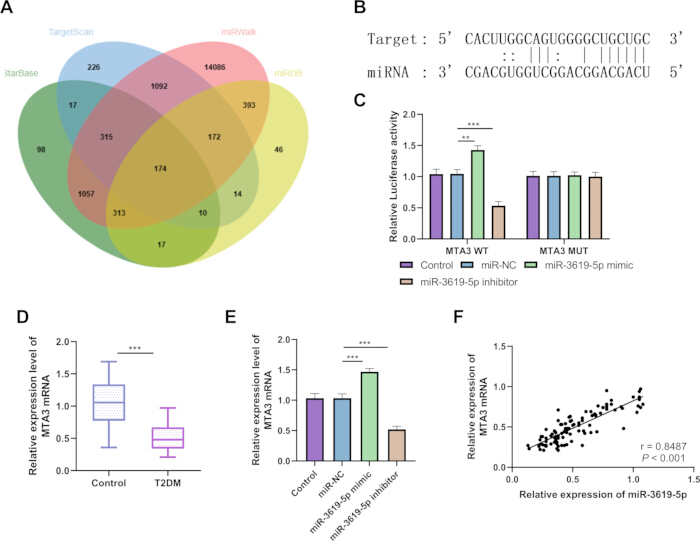
그림 3: miR-3619-5p 표적의 검증. (A) TargetScan, miRWalk, StarBase 및 miRDB의 4가지 데이터베이스에서 확인된 miR-3619-5p의 공통 표적 유전자. (B) MTA3의 3’-UTR에 대한 miR-3619-5p의 결합 부위. (C) DLR 분석 (n = 3). (D) T2DM 환자 혈청 내 MTA3 발현의 RT-qPCR 분석 (Control, n = 80; T2DM, n = 102). (E) 세포 내 MTA3 발현의 RT-qPCR 분석 (n = 3). (F) T2DM 환자 혈청 내 miR-3619-5p와 MTA3 발현의 Pearson 상관관계 분석 (Control, n = 80; T2DM, n = 102). 오차 막대는 표준 편차(SD)를 나타냄. ***P < 0.001; **P < 0.01 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
MTA3가 췌장 β-세포 기능에 미치는 영향
결과에 따르면 si-MTA3는 HG 처리 후 MTA3 발현을 더욱 감소시킨 반면, miR-3619-5p mimic을 함께 형질전환하면 이러한 효과가 역전되었습니다(그림 4A). si-MTA3는 HG 처리된 세포의 증식을 추가적으로 억제하고 세포 사멸을 촉진하며 인슐린 분비 장애를 악화시켰으나, miR-3619-5p mimic의 공동 형질전환은 si-MTA3에 의해 매개된 앞서 언급한 세포 표현형들을 역전시켜 세포 증식을 회복시키고 세포 사멸을 줄이며 인슐린 분비 억제를 완화했습니다(그림 4B–D).
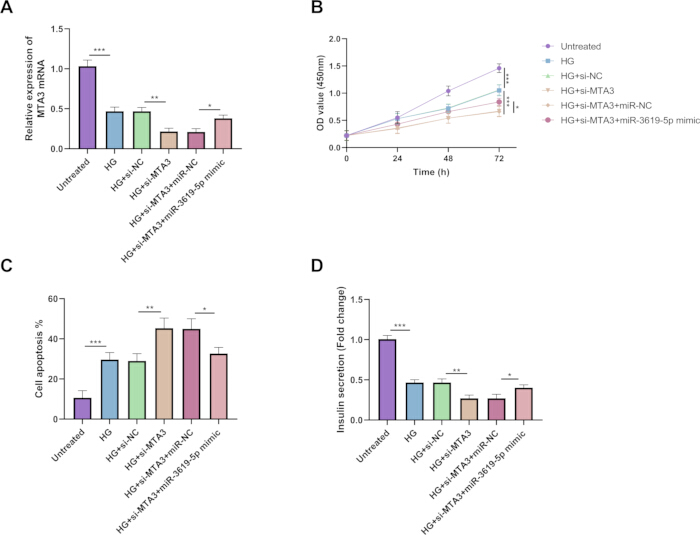
그림 4: 췌장 β-세포 기능에 미치는 MTA3의 영향. 췌장 β-세포 기능에 대한 MTA3의 영향을 추가로 조사하기 위해 세포에 si-MTA3 및 miR-3619-5p mimic을 형질전환하였다. (A) 세포 내 MTA3 발현의 RT-qPCR 분석. (B) CCK-8 분석을 이용하여 세포 증식을 평가하였다. (C) 유세포 분석법으로 세포 사멸률을 측정하였다. (D) ELISA를 통해 인슐린 분비 수준(총 세포 내 인슐린 함량으로 정규화함)을 측정하였다. 오차 막대는 표준 편차(SD)를 나타내며, n = 3이다. ***P < 0.001; **P < 0.01; *P < 0.05 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
요약하자면, 임상 시료 분석 결과 T2DM 환자의 혈청 내 miR-3619-5p 발현이 유의하게 감소되어 있으며, miR-3619-5p가 FBG 및 HbA1c와 유의한 상관관계가 있음을 보여줍니다. 세포 기반 실험을 통해 miR-3619-5p가 MTA3를 특이적으로 조절함으로써 INS-1 쥐 췌장 β-세포의 생존력과 인슐린 분비 기능에 영향을 미칠 수 있음을 확인하였습니다. 종합적으로, 이러한 결과는 miR-3619-5p가 췌장 β-세포 기능 조절에 관여함을 시사하며, 이를 통해 제2형 당뇨병에서 miR-3619-5p의 역할과 잠재적인 조절 기전을 조사하고자 한 본 연구의 목적을 예비적으로 달성하였습니다.
데이터 가용성:
본 연구의 결론을 뒷받침하는 모든 원시 및 가공 데이터 세트는 보충 파일 1(Supplementary File 1)로 업로드되었습니다.
| 지표 | 대조군 (n = 80) | T2DM군 (n = 102) | P 값 |
| 연령 (years) | 51.41 ± 9.70 | 52.29 ± 7.03 | 0.478 |
| 성별 (남성/여성) | 43/37 | 54/48 | 0.914 |
| BMI (kg/m2) | 24.04 ± 3.10 | 24.81 ± 3.04 | 0.093 |
| TC (mmol/L) | 4.60 ± 0.64 | 4.78 ± 0.65 | 0.068 |
| TG (mmol/L) | 1.61 ± 0.18 | 1.67 ± 0.26 | 0.093 |
| HDL-C (mmol/L) | 1.43 ± 0.13 | 1.38 ± 0.18 | 0.085 |
| LDL-C (mmol/L) | 2.55 ± 0.29 | 2.63 ± 0.31 | 0.067 |
| FBG (mmol/L) | 4.96 ± 0.97 | 7.16 ± 1.64 | <0.001 |
| HbA1c (%) | 4.42 ± 0.49 | 6.77 ± 1.16 | <0.001 |
표 1: 대상자 간 임상 파라미터 비교. T2DM, 제2형 당뇨병; BMI, 체질량 지수; TC, 총 콜레스테롤; TG, 중성지방; HDL, 고밀도 지질단백질; LDL, 저밀도 지질단백질; FBG, 공복 혈당; HbA1c, 당화혈색소.
보충 표 1: 본 연구에 사용된 프라이머 및 시약 서열.이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 1: MTA3의 단백질 발현. MTA3 단백질 수준의 웨스턴 블롯 분석. (A) MTA3 단백질 수준. (B) MTA3의 원본 웨스턴 블롯 이미지. (C) GAPDH의 원본 웨스턴 블롯 이미지. 오차 막대는 표준 편차(SD)를 나타내며, n = 3임. ***P < 0.001; **P < 0.01이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 1: 원시 데이터.이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
제2형 당뇨병(T2DM)의 핵심 병리적 특징은 인슐린 저항성과 췌장 β-세포 기능 장애이며, 췌장 β-세포의 증식 능력 저하와 세포 수 감소가 비정상적인 인슐린 분비의 핵심 요인이자 질병 진행의 주요 동력이 됩니다26. 췌장 β-세포의 증식을 조절하고 그 기능을 개선할 수 있는 핵심 분자를 식별하는 것은 T2DM의 정밀 진단 및 치료에 있어 매우 중요합니다.
유전자 발현의 핵심 조절 분자인 miRNA는 췌장 β-세포의 증식, 세포 사멸 및 인슐린 분비에서 결정적인 기능을 수행합니다. 수많은 miRNA가 제2형 당뇨병(T2DM)의 발병 기전과 밀접하게 연관되어 있습니다27,28,29. Song 등은 miR-3619-5p의 넉다운이 대장암에서 세포 이동을 억제한다는 것을 발견했습니다30. 다른 연구들에서는 복막 투석을 받는 당뇨병 환자에서 miR-3619-5p가 하향 조절되어 있음을 발견했습니다31. 그러나 T2DM에서 miR-3619-5p의 역할과 기전에 대해서는 아직 보고된 바 없습니다. 본 연구에서는 T2DM 환자의 혈청 miR-3619-5p 발현이 건강한 대조군보다 유의하게 낮았으며, 이는 Costa 등의 결과와 일치하여31 miR-3619-5p 발현의 감소가 T2DM의 발생 및 진행과 밀접하게 연관되어 있을 수 있음을 나타냅니다. 상관관계 분석 결과, miR-3619-5p 발현은 FBG 및 HbA1c와 음의 상관관계를 보였으며, 이는 miR-3619-5p 발현이 낮을수록 환자의 혈당 조절 상태가 더 좋지 않음을 시사합니다. 이는 miR-3619-5p가 T2DM의 대사 조절 장애 과정에 관여할 수 있으며, 그 발현 수준이 질환의 중증도를 반영할 수 있음을 추가로 확인시켜 줍니다. 이는 차등 발현된 RNA가 지질 대사, 인슐린 분비 및 포도당 조절에 관여할 수 있다고 보고한 Chen 등의 결과와 일치합니다32. ROC 곡선 분석 결과는 miR-3619-5p가 T2DM 진단을 위한 바이오마커가 될 수 있으며, 기존 혈당 지표들의 조기 진단 민감도 부족을 보완할 수 있음을 시사합니다.
췌장 β-세포 증식 능력의 비정상적인 감소는 T2DM에서 췌장 섬 부전의 핵심 요소이며, 췌장 β-세포의 증식을 촉진하고 세포 수를 증가시키는 것은 인슐린 분비 기능을 개선하는 핵심입니다33,34. 본 연구는 세포 실험을 통해 miR-3619-5p가 INS-1 세포 증식을 현저히 촉진하고 세포 사멸을 억제함으로써 인슐린 분비를 증가시킨다는 것을 입증하였습니다. 이는 miR-3619-5p가 췌장 β-세포의 증식을 촉진하고 세포 사멸을 억제함으로써 인슐린 분비 기능을 개선할 수 있으며, 이를 통해 T2DM의 병생리에 관여할 수 있음을 시사합니다. 이는 표적 유전자의 발현을 조절하여 췌장 β-세포의 증식과 분화를 촉진하는 miR-26a-5p 및 miR-765와 같이, 이전 연구에서 설명된 췌장 β-세포 증식에 대한 miRNA의 조절 기전과 일치합니다35,36.
본 연구에서는 생물정보학적 예측과 DLR 분석을 활용하여 MTA3가 miR-3619-5p의 표적 유전자임을 확인하였다. 전이 관련 단백질인 MTA3는 세포 증식, 세포 사멸 및 대사와 같은 주요 생리학적 과정에 광범위하게 관여한다20. 기존 연구에 따르면 MTA3는 고혈당 유도 간 섬유화 조절에 참여하는 것으로 밝혀졌다24. T2DM으로 인한 MTA3의 억제는 고환 내 산화 스트레스 증가와 연관이 있다37. 본 연구에서 HG 처리된 세포의 MTA3 발현은 하향 조절되었다. 세포 증식 분석 결과와 종합해 볼 때, si-MTA3는 췌장 β-세포 증식을 억제함으로써 T2DM의 병인에 기여할 수 있는 반면, miR-3619-5p는 MTA3 발현을 조절하여 이러한 억제를 완화함으로써 췌장 β-세포 기능을 개선할 수 있을 것으로 가설을 세웠다. 이러한 메커니즘의 규명은 췌장 β-세포 증식에 대한 miRNA 조절의 분자 네트워크를 더욱 정교화하며, T2DM의 병인 연구에 새로운 관점을 제공한다.
본 연구의 결과는 잠재적인 임상 및 중개적 가치를 지닙니다. 혈청 miR-3619-5p는 말초 정맥혈에서 검출될 수 있으며, 향후 대규모 코호트 연구를 통해 검증된다면 임상의가 췌장 β-세포 기능 장애 위험이 있는 개인을 식별하여 더 조기에 위험 성층화를 수행하는 데 도움을 주는 보조적인 생물학적 마커로서 유망합니다. miR-3619-5p는 MTA3 경로를 표적화하고 조절함으로써 β-세포의 생존과 인슐린 분비를 유지하여 고혈당으로 인한 췌장 β-세포 손상을 완화할 수 있습니다. 이는 miR-3619-5p/MTA3 축이 당뇨병에서 섬 보호를 위한 새로운 표적으로 활용될 가능성이 있음을 시사하며, 향후 섬 기능을 보호하기 위한 핵산 기반 약물 또는 소분자 억제제 개발을 위한 기초적인 실험적 통찰을 제공합니다.
본 연구에서는 몇 가지 제한 점을 고려해야 합니다. 첫째, 본 연구는 단일 센터에서 수행되었으므로 선택 편향이 존재할 수 있으며, 참가자 간의 개인차 변동성이 상대적으로 제한적입니다. 향후 연구에서는 표본 크기를 확대하고 다기관 연구를 수행하여 miR‑3619‑5p의 발현 프로파일과 임상적 가치를 검증해야 합니다. 둘째, 본 연구는 췌장 β-세포 증식에 대한 miR-3619-5p의 조절 기능을 세포 수준에서만 검증하였으며, 동물 실험을 통한 추가 검증을 수행하지 않았습니다. 향후 연구에서는 T2DM 동물 모델을 구축하여 체내 작용 기전을 더욱 심층적으로 탐구해야 합니다. 셋째, miRNA는 일반적으로 다기능적 특성을 나타내며, miR-3619-5p 또한 다양한 관련 유전자를 조절할 수 있습니다. 동시에, miRNA mimics 또는 inhibitors를 이용한 인비트로(in vitro) 형질전환 시스템은 잠재적인 오프타겟 효과(off-target effects)의 영향을 받을 수 있습니다. 고농도의 인위적 개입은 여러 신호 전달 경로를 비특이적으로 활성화하거나 억제할 수 있어, 생리적 조건에서 관찰되는 작용 방식을 완전히 재현하는 데 어려움이 있을 수 있습니다. 향후 연구에서는 특이적 표적 조절과 오프타겟 효과로 인한 비특이적 생물학적 효과를 구별하기 위해 더 종합적인 전전사체(whole-transcriptome) 표적 스크리닝이 필요합니다. 넷째, 본 연구의 인비트로 고당 모델에서는 25 mM glucose 개입을 활용하였으나, mannitol 삼투압 대조군을 설정하지 않았습니다. 따라서 glucose 특이적 대사 효과와 삼투압 스트레스로 인한 효과를 완전히 구분하는 것이 불가능했습니다. 향후 실험에서는 삼투압 대조군을 포함하여 고농도 glucose가 INS-1 세포에 영향을 미치는 기전을 더욱 명확히 규명해야 합니다. 마지막으로, 임상 시료와 인비트로 세포 모델 사이에 종 간 불일치가 존재합니다. INS-1 세포는 췌장 β-세포의 기능적 성숙을 연구하기 위한 전형적인 인비트로 모델이지만, 쥐 세포에서 관찰된 조절 기전을 인간의 실제 생물학적 과정과 직접적으로 동일시할 수는 없습니다. 따라서 본 연구의 인비트로 세포 수준에서 확인된 miR-3619-5p/MTA3 조절 관계를 임상 응용에 해석할 때는 주의가 필요합니다. 향후 연구에서는 인간 췌장 β-세포 모델이나 인간 일차 췌도(primary islets)를 활용하여 이 경로의 종 간 보존성을 추가로 검증해야 할 것입니다.
miR-3619-5p는 제2형 당뇨병(T2DM) 환자의 혈청 및 췌장 β-세포에서 발현이 감소되어 있습니다. miR-3619-5p는 MTA3를 표적으로 하여 고혈당으로 유발된 췌장 β-세포 기능 장애를 완화하고, 췌장 β-세포 증식을 촉진하며, 세포 사멸을 억제하고, 인슐린 분비를 개선할 수 있습니다. 본 연구는 miR-3619-5p가 당뇨병 위험 층화화에 도움이 될 수 있으며, miR-3619-5p/MTA3 축이 췌도 보호를 위한 잠재적 표적이 될 수 있음을 시사합니다. 향후 더 대규모의 코호트 연구를 수행하여 임상적 가치를 검증하고, 당뇨병 동물 모델을 이용한 in vivo 기능 검증을 실시할 예정입니다. 동시에, 췌도 기능의 변화를 매개하는 MTA3 하위 신호 전달 경로에 대한 심층 분석을 수행하여 췌도 보호 치료제로서 이 표적의 중개 연구 잠재력을 추가적으로 평가할 것입니다.
공개 사항
저자들은 공개해야 할 관련 재정적 또는 비재정적 이해관계가 없습니다.
감사의 글
본 연구는 당뇨병 및 요로감염 환자를 위한 예방 전략(No. MSZ2025119)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Annexin V-FITC/PI 세포사멸 검출 키트 | Roche, 스위스 | 11684795910 | Annexin V-FITC (10 µL) 및 PI (5 µL염색; 암실에서 15분간 배양 |
| 세포 계수 키트-8 (CCK-8) | Dojindo, 일본 | CK04 | 세포 생존율 측정을 위한比色 분석법; 10 µL 웰당, 2시간 배양, OD450 측정 |
| D-포도당 | Sigma-Aldrich | G7021 | 고당(HG) 유도 세포 손상 모델을 구축하기 위해 배양 배지에 25mM 농도로 첨가함 |
| 이중 루시페레이스 리포터 분석 시스템 | Promega, 미국 | E1910 | 반딧불이 및 Renilla 루시페레이스 활성의 순차적 측정 |
| 소태아혈청 (FBS) | Gibco, USA | 10437028 | 최종 농도가 10%가 되도록 보충하십시오. |
| 유세포 분석기 | Beckman Coulter, 미국 | CytoFLEX | 세포 사멸률 계산을 위한 유세포 분석 |
| GAPDH 항체 | Abcam, 영국 | ab181602 | 웨스턴 블롯 |
| GAPDH 프라이머 | Sangon Biotech, 중국 | 맞춤 합성 | mRNA 정규화를 위한 하우스키핑 유전자 |
| 염소 항-토끼 IgG H&L (HRP) | Abcam, 영국 | ab6721 | 웨스턴 블롯 |
| HEK293T 세포주 | ATCC, USA | CRL-3216 | 사람 배아 신장 세포; 루시페라제 분석을 위한 높은 형질전환 효율 |
| INS-1 세포주 | Sunncell, 중국 | SNL-332 | 쥐 인슐리노마 세포주; 10% FBS 및 1% 페니실린-스트렙토마이신이 포함된 RPMI 1640에서 배양됨 |
| LightCycler 480 II 실시간 PCR 시스템 | Roche, 스위스 | 5015278001 | 실시간 PCR 증폭; 96-웰 또는 384-웰 플레이트 형식 |
| Lipofectamine 3000 | Invitrogen, USA | L3000001 | 지질 기반 형질전환 시약 |
| 마이크로플레이트 리더 | BioTek, Agilent | 시너지 H1 | 흡광도 측정; 표준 곡선으로부터 보간된 시료 농도 |
| miR-3619-5p 억제제 | RiboBio, 중국 | miR20017999-1-5 | miR-3619-5p 기능을 억제하기 위해 화학적으로 합성된 단일 가닥 RNA |
| miR-3619-5p 모방체 | RiboBio, 중국 | miR10017999-1-5 | miR-3619-5p 과발현을 위한 화학적으로 합성된 이중 가닥 RNA |
| miR-3619-5p 프라이머 | Sangon Biotech, 중국 | 맞춤 합성 | miR-3619-5p 검출을 위한 특이적 프라이머 |
| miR-NC (miRNA 공백 대조군) | RiboBio, 중국 | miR2N0000001-1-5 | miRNA mimic/inhibitor 실험을 위한 비표적 음성 대조군 |
| miRNeasy Mini Kit | Qiagen, 독일 | 217004 | 세포 시료로부터의 총 RNA 추출 |
| miScript II RT Kit | Qiagen, 독일 | 218160 | miRNA의 역전사; poly(A) 꼬리 달기 및 oligo-dT 프라이밍 사용 |
| miScript SYBR Green PCR Kit | Qiagen, 독일 | 218073 | miRNA 검출을 위한 SYBR Green 기반 qPCR |
| MTA3 항체 | Invitrogen, USA | PA5-100022 | 웨스턴 블롯 |
| MTA3 프라이머 | Sangon Biotech, 중국 | 맞춤형 합성 | MTA3 mRNA 검출을 위한 특이적 프라이머 |
| NanoDrop 2000 분광광도계 | Thermo Fisher Scientific, 미국 | ND-2000 | RNA 농도 및 순도 평가 |
| 페니실린-스트렙토마이신 | Gibco, 미국 | 15140122 | 세균 오염을 방지하기 위한 1% 항생제 용액 |
| pmirGLO 이중 루시페라제 miRNA 표적 발현 벡터 | Promega, 미국 | E1330 | miRNA 표적 검증을 위한 이중 루시페라제 리포터 벡터; 반딧불이 및 Renilla 루시페라제 유전자 포함 |
| gDNA Eraser가 포함된 PrimeScript RT 시약 키트 | TaKaRa, 일본 | RR047A | 게놈 DNA 제거 단계가 포함된 역전사 |
| 쥐 인슐린 ELISA 키트 | Invitrogen, USA | ERINS | INS-1 세포가 배양액으로 분비하는 인슐린의 정량적 검출 |
| RPMI 1640 배지 | Gibco, 미국 | 11875093 | 기초 배양 배지; 10% FBS 및 1% 페니실린-스트렙토마이신 첨가 |
| si-MTA3 | RiboBio, 중국 | siB170209084646-1-5 | 유전자 넉다운을 위해 MTA3를 표적으로 하는 소간섭 RNA |
| si-NC (siRNA용 공백 대조군) | RiboBio, 중국 | 죄송합니다. 번역할 원문 텍스트가 제공되지 않았습니다. 번역이 필요한 텍스트를 제공해 주시면 요청하신 지침에 따라 전문적인 한국어 학술 번역을 진행하겠습니다. | 비표적 siRNA 대조군 |
| SYBR Green 마스터 PCR 믹스 | TaKaRa, 일본 | RR820A | SYBR Green 기반 qPCR 증폭 |
| TRIzol 시약 | Invitrogen, USA | 15596026 | 혈청 시료에서의 총 RNA 추출 |
| U6 프라이머 | Sangon Biotech, 중국 | 맞춤형 합성 | miRNA 정규화를 위한 내인성 참조 물질 |
참고문헌
- Wang L, et al. Associated factors and principal pathophysiological mechanisms of type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2025;16:1499565.
- Wan Z, et al. The role of systemic inflammation in the association between serum 25-hydroxyvitamin D and type 2 diabetes mellitus. Clin Nutr. 2021;40(6):3661–7.
- Okamoto A, et al. Efficacy and safety of semaglutide in glycemic control, body weight management, lipid profiles and other biomarkers among obese type 2 diabetes patients initiated or switched to semaglutide from other GLP-1 receptor agonists. J Diabetes Metab Disord. 2021;20(2):2121–8.
- Aguayo-Mazzucato C, et al. β Cell Aging Markers Have Heterogeneous Distribution and Are Induced by Insulin Resistance. Cell Metab. 2017;25(4):898–910.e5.
- Goshrani A, Lin R, O'Neal D, Ekinci EI. Time in range-A new gold standard in type 2 diabetes research Diabetes Obes Metab. 2025;27(5):2342–62.
- Niu F, et al. β-cell neogenesis: A rising star to rescue diabetes mellitus. J Adv Res. 2024;62:71–89.
- Zhang Y, et al. THADA inhibition in mice protects against type 2 diabetes mellitus by improving pancreatic β-cell function and preserving β-cell mass. Nat Commun. 2023;14(1):1020.
- Ho PTB, Clark IM, Le LTT. MicroRNA-Based Diagnosis and Therapy. Int J Mol Sci. 2022;23(13).
- Poy MN, et al. A pancreatic islet-specific microRNA regulates insulin secretion. Nature. 2004;432(7014):226–30.
- Karagiannopoulos A, Cowan E, Eliasson L. miRNAs in the Beta Cell-Friends or Foes Endocrinology. 2023;164(5).
- Hu H, et al. Plasma miR-193b-3p Is Elevated in Type 2 Diabetes and Could Impair Glucose Metabolism. Front Endocrinol (Lausanne). 2022;13:814347.
- Benko J, et al. MiR-126 and miR-146a as markers of type 2 diabetes mellitus: a pilot study. Bratisl Lek Listy. 2023;124(7):527–33.
- Liu C, Gao Y, Wu J, Zou J. Exosomal miR-23a and miR-192, Potential Diagnostic Biomarkers for Type 2 Diabetes. Clin Lab. 2021;67(2).
- Liu Y, Li J, Wang S, Song H, Yu T. STAT4-mediated down-regulation of miR-3619-5p facilitates stomach adenocarcinoma by modulating TBC1D10B. Cancer Biol Ther. 2020;21(7):656–64.
- Ma J, et al. M2 macrophage facilitated angiogenesis in cutaneous squamous cell carcinoma via circ_TNFRSF21/miR-3619-5p/ROCK axis. Kaohsiung J Med Sci. 2022;38(8):761–71.
- Zhang M, Luo H, Hui L. MiR-3619-5p hampers proliferation and cisplatin resistance in cutaneous squamous-cell carcinoma via KPNA4. Biochem Biophys Res Commun. 2019;513(2):419–25.
- Ge L, Tan W, Li G, Gong N, Zhou L. Circ_0026134 promotes NSCLC progression by the miR-3619-5p/CHAF1B axis. Thorac Cancer. 2022;13(4):582–92.
- Sun Z, Li X, Shi Y, Yao Y. LncRNA PVT1 facilitates the growth and metastasis of colorectal cancer by sponging with miR-3619-5p to regulate TRIM29 expression. Cancer Rep (Hoboken). 2024;7(6):e2085.
- Wu C, et al. Long Noncoding RNA Plasmacytoma Variant Translocation 1 Regulates Cisplatin Resistance via miR-3619-5p/TBL1XR1 Axis in Gastric Cancer. Cancer Biother Radiopharm. 2020;35(10):741–52.
- Tang Y, et al. Mechanisms of MTA3 in cancer and related diseases and its clinical applications. Front Oncol. 2025;15:1731799.
- Lau P, et al. Sphingosine kinase 1 promotes tumor immune evasion by regulating the MTA3-PD-L1 axis. Cell Mol Immunol. 2022;19(10):1153–67.
- Du L, et al. MTA3 Represses Cancer Stemness by Targeting the SOX2OT/SOX2 Axis. iScience. 2019;22:353–68.
- Liu Y, et al. Discovery of Jaspamycin from marine-derived natural product based on MTA3 to inhibit hepatocellular carcinoma progression. Sci Rep. 2024;14(1):25294.
- Li Q, et al. High glucose promotes hepatic fibrosis via miR‑32/MTA3‑mediated epithelial‑to‑mesenchymal transition. Mol Med Rep. 2019;19(4):3190–200.
- Pu M, Kong L, Li J, Su L, Chen Y. LncRNA NBR2 affects pancreatic β-cell function in type 2 diabetes mellitus by targeting miR-646. Diabetol Metab Syndr. 2025;17(1):454.
- Galicia-Garcia U, et al. Pathophysiology of Type 2 Diabetes Mellitus. Int J Mol Sci. 2020;21(17).
- Wang J, et al. Extracellular vesicles mediate the communication of adipose tissue with brain and promote cognitive impairment associated with insulin resistance. Cell Metab. 2022;34(9):1264–79.e8.
- Rosado JA, Diez-Bello R, Salido GM, Jardin I. Fine-tuning of microRNAs in Type 2 Diabetes Mellitus. Curr Med Chem. 2019;26(22):4102–18.
- Taheri M, Eghtedarian R, Ghafouri-Fard S, Omrani MD. Non-coding RNAs and type 2 diabetes mellitus. Arch Physiol Biochem. 2023;129(2):526–35.
- Song B, et al. LINC00882 Plays a Tumor-promoter Role in Colorectal Cancer by Targeting miR-3619-5p to Up-regulate CTNNB1. Arch Med Res. 2022;53(1):29–36.
- Costa NA, et al. Peritoneal dialysis influences microRNA expression and pro-inflammatory response: results from a cross-sectional study. J Bras Nefrol. 2026;48(1):e20240218.
- Chen J, et al. Identification of the LncRNA PRNCR1/miR-642a-5p/SSTR3 CeRNA network and its diagnostic value in type 2 diabetes mellitus. Diabetol Metab Syndr. 2025;18(1):39.
- Elizabeth MM, et al. Pancreatic β-Cells and Type 2 Diabetes Development. Curr Diabetes Rev. 2017;13(2):108–21.
- Kerper N, Ashe S, Hebrok M. Pancreatic β-Cell Development and Regeneration. Cold Spring Harb Perspect Biol. 2022;14(5).
- Yang F, Zhao S, Zhang X, Ding S, Xu Y. RNF6 Targeted by miR-26a-5p Protects Pancreatic β-Cell Function Against Type 2 Diabetes. Diabetes Metab Syndr Obes. 2022;15:93–102.
- Zheng L, et al. miR-765 targeting PDX1 impairs pancreatic β-cell function to induce type 2 diabetes. Arch Physiol Biochem. 2023;129(6):1279–88.
- Liu F, et al. T2DM-elicited oxidative stress represses MTA3 expression in mouse Leydig cells. Reproduction. 2022;163(5):267–80.