본 프로토콜은 인간 유도만능줄기세포를 이용하여 혈관 오가노이드를 생성하는 방법을 제시합니다.
이 논문에서
요약
초록
인간 다능성 줄기세포(hPSCs) 유래 혈관 오가노이드는 혈관 발달, 질환 기전 및 약물 반응을 연구하기 위한 강력한 3차원 모델로 부상했습니다. 기존의 혈관 오가노이드 프로토콜은 자가 조직화된 내피세포-pericyte 네트워크 형성을 가능하게 하지만, 배치 간 변동성, 일관성 없는 오가노이드 형성 및 불충분한 pericyte 피복률이 재현성과 확장성을 저해할 수 있습니다. 본 연구에서는 재현성과 구조적 일관성이 개선된 인간 유도 다능성 줄기세포(hiPSCs) 기반 혈관 오가노이드 생성 최적화 프로토콜을 제시합니다. 주요 개선 사항으로는 정교해진 배아체(embryoid body) 형성 조건, 중배엽 유도 및 혈관 분화 과정에서의 성장 인자 농도와 타이밍 최적화, 그리고 강력한 pericyte 모집 및 내피세포-pericyte 상호작용을 촉진하는 3차원 배양 조건의 개선이 포함됩니다. 최적화된 오가노이드는 PDGFR-β 양성 pericyte가 일관되게 감싸고 있는 고도로 분지된 CD31 양성 내피 네트워크를 나타내며, 기존 프로토콜 대비 배치 간 변동성이 유의미하게 감소했습니다. 오가노이드 생성, 전체 마운트 면역형광 특성 분석 및 품질 관리 평가를 위한 상세한 단계별 절차가 제공됩니다. 이 최적화된 방법은 혈관 세포 상호작용 연구, 질환 모델링 및 화합물 스크리닝에 적합한 고품질 혈관 오가노이드의 확장 가능한 생산을 가능하게 하여, 이 모델 시스템을 도입하려는 연구실의 기술적 진입 장벽을 낮춰줍니다.
서론
3차원(3D) 오가노이드는 기존의 2차원 세포 배양 모델에 비해 우수한 구조적 생체 모사 능력과 병태생리학적 관련성을 제공하여, 인간 장기의 발달 및 질환을 in vitro에서 모델링하는 강력한 도구로 부상했습니다1,2. 최근 몇 년 동안 인간 다능성 줄기세포(hPSC) 유래 오가노이드는 장3, 뇌4,5, 신장6, 간7,8, 망막9을 포함한 여러 조직 유형에 대해 성공적으로 구축되었습니다. 하지만 오가노이드 기반 연구의 주요 과제는 장기 배양 중 혈관 형성 부족으로 인해 저산소증 및 괴사가 발생하여 오가노이드의 확장과 분화가 저해될 수 있다는 점입니다10,11. 이러한 한계를 해결하기 위해 혈관 네트워크 형성을 촉진하기 위해 내피세포나 중간엽 줄기세포를 통합하는 등 다양한 공배양 전략이 도입되었습니다12,13. 그러나 기존의 2차원 배양 및 동물 모델은 인간의 혈관 생물학을 완전히 재현하지 못하며, 공배양 방식은 실험적 복잡성을 가중시킵니다14. 따라서 자율적인 혈관 형성이 가능한 혈관 오가노이드는 인간과 밀접한 관련이 있는 유망한 대안을 제시합니다15.
혈관 네트워크 형성은 혈관 신생(vasculogenesis)과 혈관 생성(angiogenesis)을 모두 포함하며, 이는 내피세포와 주세포(pericytes) 및 혈관 평활근 세포와 같은 벽세포(mural cells) 간의 상호작용을 통해 조절되고, VEGF (vascular endothelial growth factor), TGF-β (transforming growth factor-β), PDGF (platelet-derived growth factor) 및 angiopoietins를 포함한 여러 신호 분자에 의해 엄격하게 조절됩니다16. 2019년, Wimmer과 동료들은 hPSC로부터 직접 자가 조립되는 3D 혈관 오가노이드를 생성하는 방법을 확립했습니다17,18. 이 시스템은 내피세포와 주세포를 동시에 생성하여, 루멘 형성 및 기저막 피복이 이루어진 미세혈관 네트워크를 만들어냅니다. 이러한 플랫폼을 기반으로, 고혈당 및 염증성 사이토카인 자극(TNF-α 및 IL-6) 하에서 당뇨성 혈관병증을 모델링하는 데 혈관 오가노이드가 사용되었으며, 이 오가노이드들은 당뇨성 미세혈관 병증의 특징인 기저막 증후를 재현합니다17. 또한, 이 모델은 유전성 혈관 질환을 연구하고 혈관 독성 스크리닝을 위한 플랫폼으로 활용되어 왔습니다19. 최근에는 혈관 오가노이드 생성을 최적화하기 위한 여러 방법론적 연구들이 수행되었습니다. 예를 들어, 단일 세포 RNA 시퀀싱의 발전으로 MECOM 및 LEF1과 같은 핵심 조절 인자들이 확인되었으며, 이를 통해 인간 혈관 오가노이드 형성의 특성화 및 최적화를 위한 분자적 틀이 제공되었습니다. 또한, Xu 등은 균질한 배아체(embryoid body) 형성을 촉진하기 위해 마이크로웰을 도입하고, 세포 생존력을 향상시키기 위해 CEPT 칵테일을 포함함으로써 배치 간 변동성을 효과적으로 줄였습니다20.
혈관 오가노이드 생성의 균질성, 재현성 및 처리량을 개선하기 위해, Wimmer 등이 설명한 기존 프로토콜17,18의 여러 핵심적인 한계점을 해결하고자 체계적인 최적화를 수행하였습니다. 첫째, 기존 프로토콜은 배아체 형성을 위해 저부착 플레이트에서 자연 응집 방식을 사용하는데, 이는 응집체 크기의 상당한 배치 간 변동을 초래하여 결과적으로 분화 효율의 불균질성을 유발할 수 있습니다. 최적화된 프로토콜에서는 응집체 형성 과정 중 폴리비닐 알코올(PVA)과 궤도 흔들기(orbital shaking)를 결합하여 균일한 세포 응집을 촉진하고 배아체 크기의 일관성을 개선하였습니다. 둘째, 기존 프로토콜은 혈관 네트워크 형성 단계에서 배지를 완전히 교체하는데, 이는 성장 인자 농도의 상당한 변동을 일으켜 지속적인 혈관 발아와 혈관주위세포(pericyte) 모집을 저해할 수 있습니다. 이와 대조적으로, 최적화된 프로토콜에서는 매 배지 교체 시 조건화 배지의 3분의 1을 유지하여 내인성 혈관 형성 촉진 인자를 보존하고 배양 환경을 안정화하였습니다. 셋째, 기존 프로토콜은 오가노이드 분리 및 성숙 과정에서 여러 번의 플레이트 전이가 필요하여, 핸들링 요구 사항이 많고 오가노이드 손실 위험이 큽니다. 최적화된 프로토콜에서는 분리된 오가노이드를 96-웰 저부착 플레이트의 각 웰로 개별 전이함으로써 이러한 단계를 생략하여 절차를 간소화하고 처리량을 높였습니다. 종합적으로, 본 최적화된 프로토콜은 상세한 단계별 절차와 핵심 품질 관리 체크포인트를 제공함으로써 이 모델 시스템 도입의 기술적 장벽을 낮추고, 혈관 발달, 질병 메커니즘 및 고처리량 약물 스크리닝 연구에서 혈관 오가노이드의 광범위한 활용을 촉진합니다.
프로토콜
본 연구에서의 hPSC 사용은 안후이 대학교 생명의학 윤리 위원회(BECAHU_2026-010)의 승인을 받았습니다.
1. 인간 유도만능줄기세포의 유지 및 관리
참고: 인간 유도 만능 줄기세포(hiPSCs)를 무피더(feeder-free) 조건에서 배양하십시오. 모든 과정은 무균 조작법을 사용하여 Class II 생물안전작업대 내에서 수행하십시오.
- 기저막 매트릭스 코팅 배양 플레이트 준비
- −20 °C에서 기저막 매트릭스 바이알을 꺼내 4 °C에서 약 12–16시간 동안 하룻밤 동안 해동합니다. 반복적인 동결-해동 주기를 피하십시오.
- 해동된 기저막 매트릭스를 멸균 조건에서 충분히 혼합하고 1회용 분주량(예: 튜브당 1 mL)으로 나눕니다. 분주된 액체는 −20 °C에서 최대 2년 동안 보관합니다.
참고: 조기 응고를 방지하기 위해 취급 중 기저막 매트릭스, 피펫, 팁 및 튜브를 차갑게 유지하십시오. 공기 방울이 생기지 않도록 주의하십시오. - 필요한 기저막 매트릭스 분주량을 얼음 위에서 해동합니다. 기저막 매트릭스를 미리 냉각된 DMEM에 1:200 비율로 희석합니다(DMEM 1 mL당 기저막 매트릭스 5 µL; 최종 농도 약 5 µg/mL).
- 가시적인 입자가 남지 않을 때까지 피펫팅하여 용액을 부드럽게 혼합합니다.
- 12-웰 플레이트의 각 웰에 희석된 기저막 매트릭스 0.5 mL를 넣습니다. 플레이트를 부드럽게 기울이고 회전시켜 바닥 표면 전체를 코팅합니다.
- 코팅된 플레이트를 5% CO₂ 배양기 내 37 °C에서 최소 2시간 동안 또는 4 °C에서 하룻밤 동안 배양합니다.
참고: 밀봉된 코팅 플레이트는 4 °C에서 1–2주 동안 보관하십시오. 사용 직전에 플레이트를 상온으로 평형화하고 코팅 용액을 흡입하여 제거합니다.
- hiPSC 해동
- 액체 질소에서 냉동된 hiPSC 크라이오바이알을 꺼내 즉시 37 °C 항온수조에 넣습니다. 바이알을 부드럽게 흔들어 주고 소량의 작은 얼음 결정만 남았을 때 1분 이내에 꺼냅니다.
참고: 37 °C에서 dimethyl sulfoxide(DMSO)에 장시간 노출되거나 불완전하게 해동되면 세포 생존율이 감소할 수 있으므로 주의하십시오. - 크라이오바이알 외부를 70% 에탄올로 소독하고 생물안전작업대(BSC) 내부에서 엽니다.
- 미리 데워진 화학 조성 정의 hPSC 유지 배지 또는 이에 상응하는 화학 조성 정의 유지 배지 3 mL가 담긴 15 mL 원뿔형 튜브에 세포 현탁액을 천천히 한 방울씩 옮깁니다. 옮기는 동안 부드럽게 혼합하여 DMSO를 점진적으로 희석하고 삼투압 스트레스를 최소화합니다.
- 스윙 버킷 로터를 사용하여 상온(22–24 °C)에서 300 × g로 3분 동안 원심분리합니다.
- 세포 펠렛이 흐트러지지 않도록 상층액을 조심스럽게 흡입합니다. 펠렛을 미리 데워진 화학 조성 정의 hPSC 유지 배지 1 mL에 부드럽게 재현탁합니다.
참고: 기계적 전단력과 기포 형성을 최소화하기 위해 P1000 피펫을 사용하여 2–3회 부드럽게 피펫팅하십시오.
- 액체 질소에서 냉동된 hiPSC 크라이오바이알을 꺼내 즉시 37 °C 항온수조에 넣습니다. 바이알을 부드럽게 흔들어 주고 소량의 작은 얼음 결정만 남았을 때 1분 이내에 꺼냅니다.
- hiPSC 파종 및 배양
- 배양기에서 미리 코팅된 12-웰 플레이트를 꺼내 코팅 용액을 흡입하여 제거합니다. 웰을 세척하지 마십시오.
- 해동 후 일반적인 회복을 위해 웰당 약 1 × 10⁵–2 × 10⁵개의 생존 세포를 파종합니다. hiPSC 라인과 실험 요구 사항에 따라 밀도를 조정하십시오.
- 피펫 팁이 코팅된 표면에 닿지 않도록 각 웰의 벽면을 따라 세포 현탁액을 천천히 분주합니다.
- 해동 후 세포 생존 및 부착을 촉진하기 위해 Y-27632를 최종 농도 5 µM이 되도록 첨가합니다.
참고: Y-27632는 초기 파종 배지에만 사용하십시오. 다음 날 Y-27632가 없는 화학 조성 정의 hPSC 유지 배지로 교체하십시오. - 세포를 37 °C, 5% CO₂ 및 포화 습도 조건에서 배양합니다.
- 약 16–24시간 후 세포 부착 및 형태를 확인합니다. 배지를 흡입하여 제거하고 Y-27632가 없는 신선하고 미리 데워진 화학 조성 정의 hPSC 유지 배지로 교체합니다.
- 계대 배양 또는 분화를 위해 세포가 약 70%–80% 합치도(confluency)에 도달할 때까지 매일 또는 격일로 배지를 교체합니다.
참고: 매일 배양 상태를 확인하십시오. 경계가 뚜렷하고 조밀하며, 핵-세포질 비율이 높고 자발적 분화가 최소화된 콜로니를 사용하십시오.
2. hiPSC 응집체의 생성 및 분화
참고: hiPSC는 기저막 매트릭스로 코팅된 플레이트 위에서 화학적으로 정의된 hPSC 유지 배지를 사용하여 무피더(feeder-free) 조건으로 유지하십시오. 0.02% EDTA를 사용하여 4~5일마다 세포를 계대 배양하십시오. 혈관 분화 효율을 극대화하기 위해 적절한 파종 밀도와 콜로니 크기를 갖추고 자연 분화가 최소화된 배양물을 사용하십시오.
- 단일 세포 현탁액 준비
- 화학적으로 정의된 hPSC 유지 배지를 흡입하여 제거하고, 6-well 플레이트의 웰당 0.5 mL의 DMEM으로 hiPSC를 세척한다.
- DMEM을 흡입하여 제거하고 웰당 0.02% EDTA 0.5 mL를 첨가한다. 실온에서 2–4분 동안 배양하며 세포가 둥글게 변하기 시작하는지 확인한다.
- P1000 피펫을 사용하여 세포를 떼어낸다. 피펫팅을 2–3회 부드럽게 하여 응집체를 단일 세포 현탁액으로 해리시킨다.
- 세포를 5 mL의 화학적으로 정의된 hPSC 유지 배지에 재현탁하고, 현탁액을 15 mL 원추형 튜브로 옮긴다.
- 세포 현탁액 10 µL와 0.1% Trypan blue 용액 10 µL를 혼합한다. 혼합액 10 µL를 카운팅 챔버에 넣고 생존 세포 수를 측정한다.
- 웰당 5 × 10⁵개의 생존 세포를 얻는 데 필요한 세포 현탁액의 부피를 계산한다.
- 세포를 실온(22–23 °C)에서 300 × g로 5분 동안 원심 분리한다. 상층액을 흡입하여 제거한다.
- 50 µM Y-27632가 포함된 신선한 화학적으로 정의된 hPSC 유지 배지를 웰당 3 mL의 부피로 하여 세포를 재현탁한다.
- 응집체 형성
- 저부착 6-well 플레이트의 각 웰에 세포 현탁액 3 mL를 첨가한다. PVA를 최종 농도가 0.25%가 되도록 첨가한다.
- 플레이트를 50 rpm의 궤도형 셰이커(orbital shaker)에 놓고 37 °C에서 1일 동안 배양한다.
- 다음 단계로 진행하기 전, 경계가 매끄럽고 직경이 약 50–100 µm 이상인 응집체가 형성되었는지 확인한다.
- 참고: 개별 hiPSC 라인에 맞게 응집 기간을 최적화한다. 원하는 크기의 응집체를 얻기 위해 필요한 경우 배양 기간을 2–3일로 연장한다.
- 중배엽 유도
- 0일 차에, 멸균된 10 mL 일회용 피펫을 사용하여 응집체를 15 mL 원추형 튜브로 옮긴다. 재배양을 위해 기존의 저부착 플레이트를 보관한다.
- 중력에 의해 응집체가 가라앉도록 약 15–20분 동안 둔다.
- 참고: 기계적 손상을 최소화하기 위해 응집체를 조심스럽게 다루고, 원심 분리 대신 중력 침강법을 사용한다.
- 응집체가 가라앉은 후 상층액을 조심스럽게 흡입하여 제거한다.
- 12 µM CHIR99021과 30 ng/mL BMP-4가 보충된 N2B27 배지를 웰당 3 mL로 하여 응집체를 재현탁한다.
- 응집체를 다시 저부착 플레이트로 옮기고 37 °C에서 배양한다.
- 응집체의 과도한 융합을 최소화하기 위해 P1000 피펫으로 하루에 한 번 부드럽게 피펫팅한다. 중배엽 유도를 3일 동안 지속한다.
- 혈관 계통 유도
- 3일 차에, 응집체를 15 mL 원추형 튜브로 옮기고 중력에 의해 가라앉도록 둔다. 기존의 6-well 플레이트를 보관한다.
- 응집체가 가라앉은 후 상층액을 조심스럽게 흡입하여 제거한다.
- 100 ng/mL VEGF-A와 2 µM forskolin이 보충된 N2B27 배지를 웰당 3 mL로 하여 응집체를 재현탁한다.
- 응집체를 다시 저부착 6-well 플레이트로 옮기고 2일 더 배양한다.
3. 혈관 네트워크 및 오가노이드 생성
- 콜라겐 I-기저막 매트릭스 준비
- 하나의 12-웰 플레이트에 임베딩하기 위해 6-웰 플레이트 하나에서 생성된 응집체를 수집합니다. 웰당 약 40–60개의 응집체를 사용하십시오.
- 12-웰 플레이트의 각 웰에 0.5 mL 층을 두 번 추가할 수 있도록 충분한 양의 콜라겐 I-기저막 매트릭스 혼합물을 준비합니다.
- 12-웰 플레이트 하나당 12 mL의 매트릭스를 준비합니다. 모든 구성 성분은 얼음 위에 보관하고, 혼합물은 사용 직전에 준비하며, 기포가 유입되지 않도록 주의하십시오.
- 12-웰 플레이트의 각 웰에 0.5 mL의 매트릭스를 추가합니다. 플레이트를 부드럽게 돌려 매트릭스를 고르게 분산시킵니다.
- 첫 번째 매트릭스 층이 응고될 수 있도록 플레이트를 37 °C에서 2시간 동안 배양합니다.
- 응집체 임베딩
- 멸균된 10 mL 일회용 피펫을 사용하여 응집체를 15 mL 원추형 튜브로 옮기고 중력에 의해 가라앉도록 둡니다.
- 상층액을 흡입하고 1 mL의 N2B27 배지로 응집체를 두 번 세척합니다. 마지막 세척 후에는 잔류 배지를 최대한 제거하십시오.
- 신선한 콜라겐 I-기저막 매트릭스 혼합물을 준비하여 얼음 위에 보관합니다.
- 세척된 응집체를 갓 준비한 매트릭스에 부드럽게 재현탁합니다.
- 첫 번째 층이 응고된 12-웰 플레이트를 배양기에서 꺼냅니다.
- 각 웰에 응집체가 포함된 매트릭스 0.5 mL를 추가합니다.
- 응집체가 고르게 분산되도록 플레이트를 1분 이내로 부드럽게 흔들어 줍니다.
- 두 번째 층이 응고될 수 있도록 즉시 플레이트를 37 °C에서 2시간 동안 배양합니다.
- 혈관 발아 유도
- 15% FBS, 100 ng/mL VEGF-A 및 100 ng/mL FGF-2가 보충된 N2B27 배지를 37 °C로 예열합니다.
- 혈관 분화를 유도하기 위해 예열된 보충 배지를 각 웰에 추가합니다.
- 향후 1–3일 동안 혈관 발아가 일어나는지 배양물을 모니터링합니다.
- 참고: 겔 매트릭스의 불안정화를 최소화하기 위해 배지를 배양물에 추가하기 전 37 °C로 예열하십시오.
- 배지 교체 및 배양 유지
- 임베딩 3일 후에 첫 번째 배지 교체를 수행합니다.
- 그 이후에는 15% FBS, 100 ng/mL VEGF-A 및 100 ng/mL FGF-2가 포함된 신선한 N2B27 배지를 사용하여 격일로 배지를 교체합니다.
- 각 배지 교체 시 조건화 배지의 3분의 1을 남기고, 나머지 3분의 2를 신선한 보충 배지로 교체합니다.
- 10일 차에 혈관 오가노이드 분리를 진행하십시오.
4. 혈관 오가노이드 구축 및 염색 준비
- 개별 혈관 네트워크의 분리
- 멸균된 스패튤라의 둥근 끝부분을 웰 가장자리를 따라 삽입하고 겔 매트릭스를 바닥에서 조심스럽게 떼어냅니다.
- 전체 겔 매트릭스가 자유롭게 뜰 때까지 스패튤라를 웰 가장자리에서 중심 방향으로 계속 움직여 줍니다.
- 두 개의 멸균 바늘을 사용하여 겔에서 개별 혈관 네트워크를 절제합니다. 혈관 네트워크를 손상시키지 않으면서 가능한 한 많은 여분의 매트릭스를 제거합니다.
- 분리된 오가노이드의 배양
- 멸균 일회용 피펫을 사용하여 분리된 각 오가노이드를 저부착 96-웰 플레이트의 개별 웰로 직접 옮깁니다.
- 각 웰에 15% FBS, 100 ng/mL VEGF-A 및 100 ng/mL FGF-2가 첨가된 N2B27 배지 100 µL를 추가합니다.
- 오가노이드를 5일 동안 추가로 배양하며, 첨가제가 포함된 배지를 매일 교체합니다.
- 성숙 5일 차에 오가노이드가 둥글고 완전히 캡슐화된 형태를 보이는지 확인합니다.
- 혈관 오가노이드의 고정
- 형태적으로 성숙한 오가노이드를 2 mL 마이크로원심분리 튜브로 옮깁니다. 튜브당 약 60개 이하의 오가노이드만 처리합니다.
- 배지를 조심스럽게 흡입하여 제거하고 PBS에 희석된 4% 파라포름알데히드(PFA)를 추가합니다.
- 실온에서 1시간 동안 오가노이드를 고정합니다.
주의: PFA는 독성이 있으며 발암 의심 물질입니다. 적절한 개인 보호 장구를 착용하고 화학 흄 후드 내에서 PFA를 취급하십시오. - PFA를 흡입하여 제거하고 PBS로 교체합니다.
일시 정지 지점: 고정된 혈관 오가노이드를 4 °C의 PBS에 최대 1개월 동안 보관할 수 있습니다.
5. 혈관 오가노이드의 염색 및 공초점 이미징
- 블로킹 및 투과화
- 고정된 혈관 오가노이드가 포함된 각 튜브에 블로킹 버퍼 2 mL를 추가합니다.
- 튜브를 오비탈 쉐이커에 수직으로 세우고 실온에서 2시간 동안 교반하며 배양하여 오가노이드를 블로킹 및 투과화합니다.
- 1차 항체 배양
- 블로킹 버퍼를 흡입하여 제거하고, 블로킹 버퍼에 1:100으로 희석한 1차 항체 50–100 µL를 추가합니다.
- 튜브를 쉐이커에 수직으로 세우고 4 °C에서 하룻밤 동안 교반하며 배양합니다.
- 세척 및 2차 항체 배양
- PBST로 샘플을 3회 세척하며, 회당 10–15분씩 진행합니다. 각 세척 단계에서 수직으로 세운 튜브를 교반합니다.
- 블로킹 버퍼에 1:300으로 희석한 형광 2차 항체를 추가합니다.
- 샘플을 실온에서 2시간 동안 배양합니다.
- 핵 대조 염색 및 최종 세척
- PBST로 샘플을 2회 세척하며, 회당 10–15분씩 진행합니다.
- PBS에 1:5,000으로 희석한 Hoechst 용액을 추가하고 실온에서 10–15분 동안 배양합니다.
- PBS로 샘플을 10–15분 동안 세척합니다.
- 공초점 이미징
- 염색된 오가노이드를 공초점 이미징 디쉬로 옮깁니다.
- 실험군 전체에 걸쳐 동일한 이미징 파라미터를 사용하여 공초점 이미지를 획득합니다.
- 혈관 오가노이드의 정량적 이미지 분석
참고: Fiji/ImageJ 및 AngioTool을 사용하여 정량적 이미지 분석을 수행하십시오. 모든 실험군에서 동일한 현미경 획득 설정을 유지하십시오.- 응집체 직경 측정
- 교정된 스케일이 있는 도립 현미경을 사용하여 0일 차 hiPSC 응집체의 명시야 이미지를 획득합니다. 잘 분리된 응집체를 촬영하고 스케일 바를 포함합니다.
- 각 이미지를 Fiji/ImageJ로 불러옵니다. Straight Line 도구를 사용하여 스케일 바를 따라 선을 긋고 Analyze > Set Scale을 선택합니다.
- 알려진 거리와 단위(예: 100 µm)를 입력하고 Global을 선택하여 세션의 모든 이미지에 교정을 적용합니다.
- Straight Line 도구를 사용하여 각 응집체의 가장 넓은 직경을 가로지르는 선을 긋습니다. Analyze > Measure를 선택하거나 Ctrl+M을 눌러 직경을 µm 단위로 기록합니다.
- 배치당 최소 30개의 응집체를 측정합니다.
- 비구형 응집체의 경우, Oval 또는 Polygon Selection 도구를 사용하여 각 응집체의 외곽선을 그립니다. Analyze > Set Measurements > Feret's diameter를 선택하고 측정값을 기록합니다.
- Results 테이블에서 측정값을 내보내어 스프레드시트에 데이터를 정리합니다.
- 각 배치에 대해 평균, 표준 편차(SD) 및 변동 계수(CV = SD/평균 × 100%)를 계산합니다.
- 오가노이드 직경 측정
- 교정된 스케일이 있는 도립 현미경을 사용하여 15일 차 성숙한 혈관 오가노이드의 명시야 이미지를 획득합니다. 각 이미지에 스케일 바를 포함합니다.
- 각 이미지를 Fiji/ImageJ로 불러오고 단계 5.6.1.2에서 설명한 대로 스케일을 교정합니다.
- Straight Line 도구를 사용하여 각 오가노이드의 가장 넓은 직경을 가로지르는 선을 긋습니다. Analyze > Measure를 선택하거나 Ctrl+M을 눌러 직경을 µm 단위로 기록합니다.
- 배치당 최소 30개의 오가노이드를 측정합니다.
- 불규칙한 모양의 오가노이드의 경우, 가장 긴 직경과 가장 짧은 직경을 측정하여 평균을 계산하거나 단계 5.6.1.6에서 설명한 대로 Feret's diameter를 결정합니다.
- 측정값을 내보내어 각 배치의 평균, SD 및 CV를 계산합니다.
- CD31 양성 혈관 영역 정량화
- CD31로 염색된 15일 차 전장 오가노이드의 공초점 z-stack 이미지를 획득합니다. 모든 샘플에 대해 동일한 레이저 출력, 게인, 오프셋 및 핀홀 설정을 사용합니다.
- 현미경 소프트웨어 또는 Fiji/ImageJ를 사용하여 z-stack으로부터 최대 강도 투영(MIP) 이미지를 생성합니다.
- 강도 임계값을 적용하여 배경 신호를 제외하고 CD31 양성 혈관 네트워크를 분할합니다.
- Process > Noise > Remove Outliers를 선택하고 2–5 픽셀의 반경을 사용하여 작은 아티팩트를 제거합니다. Process > Binary > Fill Holes를 선택하여 혈관 네트워크 내의 작은 틈을 채웁니다.
- Analyze > Set Measurements를 선택하고 Area와 Area fraction을 활성화합니다. Analyze > Measure를 선택하여 혈관 영역을 결정합니다.
- 전체 오가노이드 면적 대비 CD31 양성 혈관 면적의 백분율을 계산합니다.
- 3개의 독립적인 배치에서 배치당 최소 3개의 오가노이드를 분석합니다. 통계 분석을 위해 측정값을 내보냅니다.
- PDGFR-β 양성 주변세포 피복도 정량화
- CD31 및 PDGFR-β로 염색된 15일 차 전장 오가노이드의 공초점 z-stack 이미지를 획득합니다. z-stack으로부터 MIP를 생성합니다.
- CD31 및 PDGFR-β MIP를 Fiji/ImageJ로 불러와 이미지 정렬을 확인합니다.
- CD31 채널에 임계값을 적용하여 혈관 네트워크를 정의하는 이진 마스크를 생성합니다.
- 동일한 분할 방식을 사용하여 PDGFR-β 채널에 임계값을 적용하고 주변세포 신호의 이진 마스크를 생성합니다.
- Process > Image Calculator를 선택하고 CD31 및 PDGFR-β 마스크에 AND 연산을 적용하여 겹치는 픽셀을 식별합니다.
- 겹치는 신호의 면적을 측정합니다.
- 주변세포 피복도를 (CD31 양성 혈관 내 PDGFR-β 양성 면적/전체 CD31 양성 혈관 면적) × 100%로 계산합니다.
- 3개의 독립적인 배치에서 배치당 최소 3개의 오가노이드를 분석합니다. 통계 분석을 위해 측정값을 내보냅니다.
- AngioTool을 이용한 분지 지수 분석
- CD31로 염색된 15일 차 전장 오가노이드의 공초점 z-stack 이미지를 획득합니다. z-stack으로부터 MIP를 생성합니다.
- AngioTool을 실행하고 MIP 이미지를 불러옵니다.
- 이미지에서 관찰되는 일반적인 혈관 직경에 따라 혈관 직경을 설정합니다.
- 강도 임계값을 조정하여 배경 신호를 제외하고 혈관 네트워크를 분할합니다. 작은 아티팩트를 제외하기 위해 최소 혈관 크기를 설정합니다.
- 분석을 실행하고 혈관 면적, 혈관 밀도, 총 혈관 길이, 접합점 수 및 분지 지수를 기록합니다.
- 혈관 체계는 노란색으로, 혈관 골격은 빨간색으로 표시되고 분지점은 파란색 점으로 표시되었는지 확인하여 출력 이미지를 검증합니다.
- AngioTool에서 정량적 결과를 내보냅니다.
- 3개의 독립적인 배치에서 배치당 최소 3개의 시야를 분석하고 통계 분석을 위해 데이터를 정리합니다.
- 응집체 직경 측정
6. 혈관 오가노이드의 정량적 실시간 PCR 분석
참고: 모든 RNA 분리 및 후속 절차는 RNase-free 조건에서 수행하십시오.
- RNA 추출
- 1.5 mL RNase-free 마이크로원심분리 튜브에 15일 차의 성숙한 혈관 오가노이드 5~10개를 수집합니다. 잔류 배지를 완전히 제거합니다.
참고: 충분한 RNA를 얻기 위해 필요한 경우 여러 개의 오가노이드를 통합하십시오. - 추가하십시오 350 µL 1%가 첨가된 용해 버퍼의 β-메르캅토에탄올.
- 오가노이드가 완전히 용해될 때까지 샘플을 10~15회 피펫팅하십시오.
- 용해물을 수집 튜브에 장착된 게놈 DNA 제거 스핀 컬럼으로 옮기십시오. 11,000에서 원심분리하십시오. × g 실온에서 30초 동안.
- 컬럼은 폐기하고 통과액은 보관하십시오.
- 약 70% 에탄올을 동일한 부피로 추가하십시오. 350 µL, 유출액에 넣고 피펫팅하여 충분히 섞어줍니다.
- 최대 ~까지 옮기십시오 700 µL 혼합물을 수집 튜브에 장착된 RNA 스핀 컬럼에 옮깁니다. 11,000에서 원심분리합니다. × g 30초 동안 원심분리하고 상층액은 버립니다.
- 추가하십시오 350 µL 세척 완충액 1을 컬럼에 넣습니다. 11,000에서 원심분리합니다. × g 30초 동안 처리하고 통과액은 버립니다.
- 다음을 혼합하여 DNase I 혼합물을 준비하십시오. 10 µL DNase I과 함께 70 µL 시료당 DNase 소화 완충액의.
- 추가하십시오 80 µL DNase I 혼합물을 컬럼 막에 직접 가하고 실온에서 15분 동안 배양한다.
- 추가하십시오 350 µL 세척 완충액 1을 컬럼에 넣습니다. 11,000에서 원심분리합니다. × g 30초 동안 유지하고 통과액은 버립니다.
- 추가하십시오 500 µL 컬럼에 세척 버퍼 2를 넣습니다. 11,000rpm에서 원심분리합니다. × g 30초 동안 수행하고 통과액은 버립니다.
- 다음으로 세척을 반복하십시오. 500 µL 세척 버퍼 2의.
- 빈 컬럼을 11,000에서 원심 분리하십시오. × g 막을 건조시키기 위해 2분 동안 둡니다.
- 컬럼을 새로운 1.5 mL RNase-free 마이크로원심분리 튜브로 옮깁니다. 30–50 µL RNase-free water를 멤브레인에 직접 가하고 실온에서 1분 동안 배양한다.
- 11,000에서 원심분리하십시오. × g RNA를 용출시키기 위해 1분 동안 처리합니다. RNA를 −에서 보관하십시오.80 °C 사용 전까지.
참고: 분광 광도법으로 RNA 농도와 순도를 측정하십시오. A260/A280 비율의 허용 범위를 1.8~2.1로 설정하십시오.
- 1.5 mL RNase-free 마이크로원심분리 튜브에 15일 차의 성숙한 혈관 오가노이드 5~10개를 수집합니다. 잔류 배지를 완전히 제거합니다.
- cDNA 합성
- 역반응 혼합물을 얼음 위에서 준비하십시오.
- 600 ng의 총 RNA를 다음 항목과 결합하십시오. 4 µL 역전사 효소, 완충액, dNTP 및 랜덤 프라이머가 포함된 RT 마스터 믹스의. 최종 부피가 될 때까지 RNase-free water를 추가하여 20 µL.
- 반응물을 다음 온도에서 배양하십시오. 37 °C 15분 동안 처리한 후, 이어서 85 °C 5초 동안.
- 결과물인 cDNA를 −에 보관하십시오.20 °C 사용 전까지.
- 정량적 실시간 PCR
- 준비하십시오 9 µL 혼합하여 반응당 qPCR 마스터 믹스의 5 µL 2 중의× SYBR Green 마스터 믹스, 3 µL RNase-free-water의, 그리고 1 µL 혼합된 정방향 및 역방향 프라이머의 10 µM 각각.
- 분주하다 9 µL 96-웰 qPCR 플레이트의 각 웰에 마스터 믹스를 분주합니다.
- 추가하십시오 1 µL 최종 반응 부피가 ~가 되도록 각 웰에 cDNA를 추가하여 10 µL.
- 광학 접착 필름으로 플레이트를 밀봉하고 1,000rpm에서 원심 분리하십시오. × g 1분 동안.
- 초기 변성을 다음 온도에서 수행하십시오. 95 °C 30초 동안.
- 다음의 40회 증폭 사이클을 수행하십시오. 95 °C 5초 동안 수행한 후 이어서 60 °C 30초 동안.
- 증폭 산물의 특이성을 확인하기 위해 용해 곡선 분석을 수행하십시오.
참고: 각 시료를 2회 또는 3회 반복 측정하십시오. - 2^-ΔΔCt 방법을 사용하여 표적 유전자의 상대적 발현량을 계산하십시오.−ΔΔ임계값 (Ct) 방법. Ct 값을 하우스키핑 유전자(예: GAPDH)로 정규화하고, 미분화 hiPSC 샘플에 대비하여 발현량을 보정합니다.
7. 통계 분석
- 정량적 데이터는 조건당 최소 3회 이상의 독립적인 생물학적 반복 실험(n ≥ 3)에서 얻은 평균 ± 표준편차(SD)로 표시하십시오.
- 응집체 및 오가노이드 직경 측정 시 각 독립적인 배치를 하나의 생물학적 반복으로 처리하고, 각 배치 내에서 측정된 30개 개별 구조물의 평균을 내어 단일 배치 수준의 평균값을 구하십시오.
- 각 배치 내의 여러 오가노이드 또는 시야에서 측정된 혈관 면적, 주변세포(pericyte) 피복도 및 분지 지수 측정값의 평균을 내어 단일 배치 수준의 값을 구하고, 통계적 비교를 위해 이 배치 수준의 값들을 사용하십시오.
- 비쌍측 꼬리 Student's t-검정을 사용하여 최적화된 프로토콜을 기존의 Wimmer 프로토콜과 비교하십시오.
- 통계적 유의성은 p < 0.05로 정의하십시오. 해당되는 경우 유의 수준을 p < 0.05, p < 0.01, p < 0.001로 표시하십시오.
- 모든 통계 분석은 통계 분석 소프트웨어 버전 10을 사용하여 수행하십시오.
결과
여기에 설명된 최적화된 프로토콜은 단계별 분화 전략을 사용하여 약 15일 이내에 hiPSC로부터 성숙한 혈관 오가노이드를 생성할 수 있게 합니다 (그림 1A). 간단히 설명하면, 0.25% PVA가 첨가된 저부착 플레이트에서 오비탈 쉐이커를 사용하여 hiPSC 응집체를 생성했습니다 (Day −1). Day 0에 CHIR99021 (12 µM)과 BMP-4 (30 ng/mL)를 사용하여 3일 동안 중배엽 유도를 시작했으며, 이어서 VEGF-A (100 ng/mL)와 forskolin (2 µM)을 사용하여 2일 동안 혈관 계통 분화를 유도했습니다 (Days 3–5). Day 5에 응집체를 collagen I-기저막 매트릭스에 매립하고, 혈관 발아를 촉진하기 위해 VEGF-A (100 ng/mL), FGF-2 (100 ng/mL) 및 15% FBS가 첨가된 N2B27 배지에서 배양했습니다. Day 10에 개별 혈관 네트워크를 겔에서 분리하여 저부착 96-well 플레이트에 웰당 하나의 오가노이드씩 옮겨 추가로 성숙시켰습니다. Day 15가 되면 둥글고 완전히 캡슐화된 형태를 가진 성숙한 혈관 오가노이드를 얻을 수 있었습니다 (그림 1B).
분화된 세포의 혈관 정체성을 확인하기 위해, 내피 세포 마커인 CD31에 대한 전장 면역형광 염색과 Hoechst 핵 대조 염색을 수행하였다. 공초점 현미경 관찰 결과, 가지를 친 관상 구조를 형성하는 광범위한 CD31 양성 내피 네트워크가 나타났다. z-스택 이미지의 3차원 재구성 결과, 오가노이드 내 혈관 네트워크의 복잡성이 더욱 명확히 입증되었다(그림 1C). 분화 효율은 혈관 계통 특이적 유전자의 정량적 실시간 PCR 분석을 통해 평가되었다. 15일 차 오가노이드에서는 분화되지 않은 hiPSC와 비교하여 내피 세포 마커인 CD31, CDH5 및 주세포 마커인 PDGFR-β의 발현이 유의하게 상향 조절되었다. 반면, 다능성 마커인 OCT4, SOX2, NANOG의 발현은 현저히 하향 조절되어 혈관 계통으로의 성공적인 분화가 확인되었다(그림 1D). CD31과 PDGFR-β의 공동 염색 결과, PDGFR-β 양성 주세포가 CD31 양성 내피 관과 밀접하게 연관되어 이를 감싸고 있는 것으로 나타났으며, 이는 주세포가 피복된 혈관 구조의 형성을 나타낸다(그림 1E). 종합적으로, 이러한 결과는 최적화된 프로토콜이 복잡한 3차원 혈관 네트워크 내에 내피 세포와 주세포를 모두 포함하는 혈관 오가노이드를 안정적으로 생성함을 입증한다.
최적화된 프로토콜을 통해 달성한 개선 사항을 체계적으로 평가하기 위해, 여러 개의 독립적인 배치에 걸쳐 기존 Wimmer 프로토콜로 생성된 오가노이드와 최적화된 프로토콜로 생성된 오가노이드를 비교하는 정량적 형태 분석을 수행하였습니다. 명시야 현미경 관찰 결과, 분화 전 과정에 걸쳐 두 프로토콜 사이에 뚜렷한 형태학적 차이가 나타났습니다. 기존 프로토콜은 여러 단계에서 크기가 불균일하고 모양이 불규칙한 응집체 및 오가노이드를 생성한 반면, 최적화된 프로토콜은 Day 0부터 경계가 매끄럽고 일관되게 균일한 응집체를 생성하였으며, 이는 이후 Day 15까지 더 둥글고 크기가 균일한 성숙한 혈관 오가노이드로 발달하였습니다(그림 2A).
0일 차의 응집체 직경에 대한 정량 분석 결과, 최적화된 프로토콜이 기존 프로토콜(112.2 ± 34.7 µm, CV = 30.93%; n = 3 independent batches; t = 6.159, df = 4, p = 0.004; 그림 2B)보다 훨씬 더 균일한 응집체(120.3 ± 5.4 µm, CV = 4.47%; 배치당 30개 응집체 측정; n = 3 independent batches)를 생성함을 확인하였습니다. 이러한 균일성의 개선은 분화 종점까지 유지되었습니다. 최적화된 프로토콜을 사용하여 생성한 15일 차 오가노이드는 기존 프로토콜을 사용하여 생성한 오가노이드(615.4 ± 270.9 µm, CV = 44.0%; n = 3 independent batches; t = 8.430, df = 4, p = 0.001; 그림 2C)에 비해 크기 변동성이 상당히 감소한 것으로 나타났습니다(670.8 ± 63.5 µm, CV = 9.47%; 배치당 30개 오가노이드 측정; n = 3 independent batches).
다음으로 CD31 양성 내피세포 피복도와 PDGFR-β 양성 혈관주위세포 피복도를 정량화하여 혈관 네트워크 형성을 평가하였습니다. 세 차례의 독립적인 배치 실험 전반에서, 최적화된 프로토콜은 기존 프로토콜보다 유의하게 더 높은 내피세포 피복도를 나타냈습니다 (40.1 ± 2.9% vs. 28.0 ± 7.0%; t = 2.856, df = 4, p = 0.05; 그림 2D). 혈관주위세포 피복도 또한 최적화된 프로토콜에서 유의하게 더 높았습니다 (36.2 ± 2.5% vs. 17.5 ± 5.2%; t = 6.636, df = 4, p = 0.003) (그림 2E). AngioTool을 이용한 분지 지수(branching index) 분석 결과, 최적화된 프로토콜로 생성된 오가노이드가 더 복잡한 혈관 네트워크를 형성함을 확인하였습니다 (50.2 ± 3.8 vs. 24.1 ± 6.9 points/mm2; t = 6.163, df = 4, p = 0.004; 그림 2F). 마지막으로, 15일 차까지 성숙한 혈관 오가노이드로 발달한 초기 응집체의 비율을 통해 전반적인 오가노이드 형성 효율을 평가하였습니다. 세 차례의 독립적인 배치 실험 전반에서, 최적화된 프로토콜은 기존 프로토콜 (41.3 ± 10.8%; n = 3; t = 3.433, df = 4, p = 0.03)보다 유의하게 높은 형성 효율 (64.3 ± 3.8%; n = 3)을 달성하였으며, 이는 오가노이드 수율이 약 1.6배 증가한 것에 해당합니다 (시작 세포 1 × 10⁶개당 오가노이드 60–67개 vs. 29–50개; 그림 2G). 또한 최적화된 프로토콜은 배치 간 변동성(SD, 3.8% vs. 10.8%)을 상당히 감소시켜 재현성이 향상되었음을 추가로 입증하였습니다.
응집체 및 오가노이드 직경, 오가노이드 수율 및 형성 효율, 혈관 면적, 페리사이트 피복률, 분지 지수, 실패율, 배치 간 변동성을 포함한 기존 프로토콜과 최적화된 프로토콜의 정량적 결과가 표 1에 요약되어 있습니다. hiPSC 유지 및 혈관 오가노이드 분화에 사용된 배지와 매트릭스 용액의 조성은 표 2에 제공되며, 전체 마운트 면역형광 염색에 사용된 블로킹 버퍼 제형은 표 3에 제공됩니다. 정량적 실시간 PCR 분석에 사용된 프라이머 서열은 표 4에 나열되어 있습니다. 혈관 오가노이드 생성 및 특성 분석 중에 사용된 주요 시약의 작동 농도 및 조제 조건은 부록 표 1에 제공됩니다.
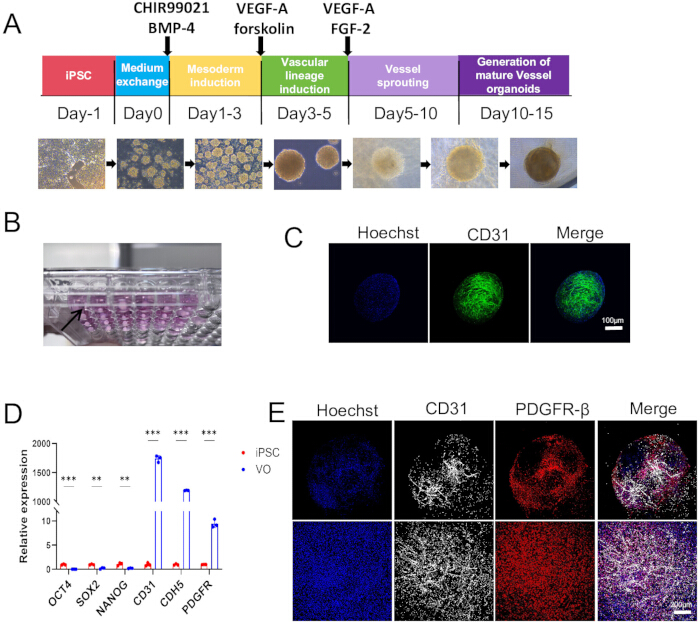
그림 1: 인간 유도만능줄기세포 유래 혈관 오가노이드의 생성 및 특성 분석. (A) 단계별 혈관 오가노이드 분화 프로토콜의 모식도. hiPSC 응집체는 CHIR99021 및 BMP-4를 통해 중배엽 유도를 거친 후, VEGF-A 및 forskolin을 통해 혈관 계통 유도, VEGF-A 및 FGF-2 존재 하에 혈관 발아(sprouting) 과정을 거쳐 최종적으로 혈관 오가노이드로 성숙한다. 대표적인 명시야 이미지는 Day −1부터 Day 15까지의 분화 과정 중 발생하는 형태학적 변화를 보여준다. (B) 96-well 플레이트에서 개별적으로 배양된 성숙한 혈관 오가노이드의 대표적인 거시 이미지. (C) CD31 (녹색)로 염색하고 Hoechst (청색)로 대조 염색한 Day 15 혈관 오가노이드의 대표적인 공초점 이미지로, 오가노이드 내의 내피 세포 네트워크를 보여준다. 스케일 바 = 100 µm. (D) 미분화 hiPSC와 비교한 Day 15 혈관 오가노이드 (VO) 내 만능성 마커인 OCT4, SOX2, NANOG 및 혈관 계통 마커인 CD31, CDH5, PDGFR-β의 정량적 real-time PCR 분석 결과. 데이터는 3회의 독립적인 실험으로부터 얻은 평균 ± SD로 표시되었다. 통계적 유의성은 unpaired two-tailed Student's t-test를 사용하여 결정되었다. (E) CD31 (백색), PDGFR-β (적색) 및 Hoechst (청색)로 염색한 Day 15 혈관 오가노이드의 대표적인 whole-mount 면역형광 이미지로, PDGFR-β 양성 주변세포(pericytes)가 CD31 양성 내피 네트워크와 연관되어 있음을 보여준다. 스케일 바 = 200 µm. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
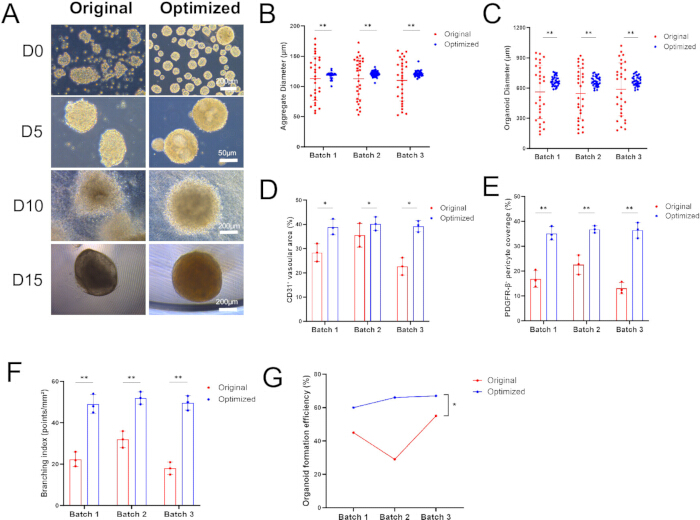
그림 2: 기존 Wimmer 프로토콜과 최적화된 프로토콜을 사용하여 생성된 혈관 오가노이드의 정량적 비교. (A) Day 0 (D0), Day 5 (D5), Day 10 (D10), Day 15 (D15)에서 기존 및 최적화된 프로토콜을 사용하여 생성된 응집체와 혈관 오가노이드의 형태를 보여주는 대표적인 명시야 이미지. 스케일 바 = 200 µm (D0), 50 µm (D5), 200 µm (D10), 200 µm (D15). (B) 세 개의 독립적인 배치에서 Day 0의 응집체 직경 정량화. 배치당 및 조건당 30개의 응집체를 측정하였으며, 그 결과를 평균하여 배치 수준의 평균값을 구하였다. (C) 세 개의 독립적인 배치에서 Day 15의 오가노이드 직경 정량화. 배치당 및 조건당 30개의 오가노이드를 측정하였으며, 측정값을 평균하여 배치 수준의 평균값을 구하였다. (D) 세 개의 독립적인 배치에서 기존 및 최적화된 프로토콜로 생성된 오가노이드 내 CD31 양성 혈관 영역의 정량화. (E) 세 개의 독립적인 배치에서 PDGFR-β 양성 혈관주위세포(pericyte) 피복률의 정량화. (F) 세 개의 독립적인 배치에서 AngioTool을 이용한 혈관 분지 지수(vascular branching index)의 정량화. (G) 세 개의 독립적인 배치에서 오가노이드 형성 효율을 산출하였으며, 이는 Day 15까지 성숙한 혈관 오가노이드로 발달한 초기 응집체의 백분율로 계산되었다. 데이터는 세 개의 독립적인 배치 수준 평균의 평균 ± SD로 표시되었다 (조건당 n = 3 독립 배치). 통계적 유의성은 배치 수준 평균에 대해 비쌍을 이룬 양측 Student's t-test를 사용하여 결정하였다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
표 1: 기존 Wimmer 프로토콜과 최적화된 프로토콜을 이용한 혈관 오가노이드 생성의 정량적 비교. 0일차의 응집체 직경 및 크기 변동성, 15일차의 오가노이드 직경 및 크기 변동성, 오가노이드 수율, 오가노이드 형성 효율, CD31 양성 혈관 면적, PDGFR-β 양성 혈관주위세포 피복도, 혈관 분지 지수, 실패율 및 배치 간 변동성을 비교함. 값은 해당되는 경우 평균 ± SD로 표시됨. 응집체 및 오가노이드 측정값은 조건당 3개의 독립적인 배치에서 배치당 30개의 구조물을 통해 얻음. 혈관 면적, 혈관주위세포 피복도 및 분지 측정값은 3개의 독립적인 배치에서 배치당 최소 3개의 오가노이드 또는 시야에서 얻음. 약어: CV = 변동 계수; SD = 표준 편차. 이 표를 다운로드하려면 여기를 클릭하십시오.
표 2: hiPSC 유지 및 혈관 오가노이드 분화를 위한 배지 및 매트릭스 용액의 조제. hiPSC 유지, 분화, 혈관 네트워크 형성 및 오가노이드 배양에 사용되는 화학적으로 정의된 hPSC 유지 배지(PGM1), 기저막 매트릭스 코팅 용액, 0.02% EDTA 계대 세척 용액, N2B27 기초 배지, N2B27 완전 분화 배지 및 collagen I 용액의 조성과 조제 방법. 해당되는 경우 보관 조건과 조제 요구 사항이 제공됨. 약어: DMEM = Dulbecco's modified Eagle medium; EDTA = ethylenediaminetetraacetic acid; FBS = fetal bovine serum; FGF-2 = fibroblast growth factor 2; hiPSC = human induced pluripotent stem cell; NEAA = non-essential amino acids; PGM1 = Pluripotency Growth Master 1; VEGF-A = vascular endothelial growth factor A. 이 표를 다운로드하려면 여기를 클릭하십시오.
표 3: 혈관 오가노이드의 전체 마운트 면역형광 염색을 위한 블로킹 버퍼 준비. 전체 마운트 면역형광 염색에 사용되는 블로킹 및 투과화 버퍼의 조성과 보관 조건. 약어: BSA = bovine serum albumin; FBS = fetal bovine serum; PBS = phosphate-buffered saline. 이 표를 다운로드하려면 여기를 클릭하십시오.
표 4: 정량적 실시간 PCR 분석에 사용된 프라이머 서열. 혈관 계통 마커인 CD31, CDH5, PDGFR-β와 다능성 마커인 OCT4, SOX2, NANOG, 그리고 하우스키핑 유전자인 GAPDH의 발현을 평가하기 위해 정방향 및 역방향 프라이머 서열이 사용되었습니다. 프라이머 서열은 5′→3′ 방향으로 표시되었습니다. 약어: qPCR = quantitative real-time PCR. 이 표를 다운로드하려면 여기를 클릭하십시오.
보충 표 1: 혈관 오가노이드 생성 및 특성 분석에 사용된 주요 시약의 작동 농도 및 제조 조건. Y-27632, CHIR99021, BMP-4, VEGF-A, forskolin, FGF-2, PVA, 1차 및 2차 항체 희석액, Hoechst 작동 용액, PBST 세척액, 4% PFA 고정액의 작동 농도, 희석 배수, 제조 또는 보관 조건. 이 시약들은 hiPSC 회복 및 응집, 중배엽 및 혈관 계보 유도, 혈관 네트워크 형성, 전체 마운트 면역형광 염색, 그리고 오가노이드 고정 과정 중에 사용된다. 약어: BMP-4 = bone morphogenetic protein 4; FGF-2 = fibroblast growth factor 2; PFA = paraformaldehyde; PVA = polyvinyl alcohol; PBST = phosphate-buffered saline containing Tween 20; VEGF-A = va 이 표를 다운로드하려면 여기를 클릭하십시오.
토론
본 문서에서 설명하는 최적화된 프로토콜은 Wimmer 등이 처음 구축한 혈관 오가노이드 분화 시스템18에 몇 가지 핵심적인 개선 사항을 도입하여, 혈관 오가노이드 생성의 균질성, 재현성 및 구조적 무결성을 향상시키는 것을 목표로 합니다. 기존 프로토콜과 비교하여 최적화된 방법은 다음과 같은 측면에서 상당한 개선을 제공합니다. 첫째, 응집체 형성 조건을 최적화하여 배아체(embryoid bodies)의 균질성을 실질적으로 개선했습니다. 기존 프로토콜에서는 저부착 6-well 플레이트에서 자연 응집 방식을 사용하여 hiPSC 응집체를 생성했으며, NC8 라인의 경우 웰당 2 × 10⁵ cells, H9 라인의 경우 웰당 5 × 10⁵ cells를 분주하고 중력에 의존하여 세포 응집을 유도했습니다. 이 접근 방식은 분주 밀도와 배양 시간의 경험적 제어에 크게 의존하므로, 응집체 크기에서 배치 간 변동성이 발생합니다. 최적화된 프로토콜에서는 응집을 위해 저부착 6-well 플레이트를 그대로 유지하면서, 응집체의 균일성을 개선하기 위해 세 가지 수정 사항을 도입했습니다: (1) 안정적인 응집에 충분한 세포 수를 제공하기 위해 웰당 5 × 10⁵ cells를 분주하고, (2) 비특이적 세포-기질 접착을 줄이고 동종 세포-세포 응집을 촉진하기 위해 0.25% polyvinyl alcohol (PVA)을 첨가하였으며, (3) 플레이트를 37 °C의 궤도 쉐이커(orbital shaker)에서 배양하여 지속적인 부드러운 교반을 통해 균일한 세포 분포와 동기화된 응집을 촉진했습니다. 이러한 수정은 더 규칙적인 구형 형태와 매끄러운 경계를 가진 응집체 생성으로 이어졌으며, 이는 후속 중배엽 유도 및 혈관 분화를 위한 더 균질한 시작 재료를 제공합니다 (Figure 2A,B).
응집체가 지나치게 작거나 취약하거나, 또는 매끄러운 경계가 형성되지 않는 경우, 세포 상태가 좋지 않으면 응집 효율이 떨어지는 일반적인 원인이 되므로 파종 전 세포 생존율을 먼저 확인하십시오. 응집 능력이 낮은 hiPSC 라인의 경우, 파종 밀도를 웰당 1 × 10⁶ cells로 높이거나 배양 기간을 1일에서 2~3일로 연장하십시오. 반대로, 응집체가 지나치게 큰 경우는 일반적으로 여러 응집체가 융합되어 발생합니다. 응집체 융합을 최소화하려면 배양 기간 동안 부드럽게 피펫팅하는 빈도를 높이십시오. 크기 불균일성은 혈관 분화 효율의 가변성과 직접적으로 연관되어 있으므로, 이 초기 단계에서 균일한 응집체 크기를 유지하는 것이 매우 중요합니다.
둘째, 배지 교체 전략의 최적화를 통해 혈관 분화 동안 배양 환경을 더 잘 유지할 수 있습니다. 혈관 네트워크 형성 단계에서, 본 프로토콜은 매 배지 교체 시 조건화 배지의 1/3을 남기고 나머지 2/3를 동일한 보충제가 포함된 신선한 N2B27 완전 분화 배지로 교체합니다. 이와 대조적으로, 기존 프로토콜은 배지를 완전히 교체하는 방식을 사용했습니다. VEGF-A와 FGF-2는 37 °C의 배양 조건에서 불안정하기 때문에, 배지를 완전히 교체하면 성장 인자 농도에 상당한 변동이 생겨 내피 세포의 지속적인 증식과 혈관 발아(sprouting)가 저해될 수 있습니다. 조건화 배지의 일부를 유지함으로써 세포가 분비한 혈관 형성 촉진 인자와 세포외 성분을 보존하는 동시에 배양 환경의 급격한 변화를 최소화할 수 있습니다. 이러한 전략은 더 견고한 혈관 네트워크 형성 및 더 높은 pericyte 피복률과 관련이 있었습니다(그림 2D,E).
배지 추가 후 겔 매트릭스가 불안정해지거나 붕괴되는 경우, 차가운 배지는 겔 수축을 유발할 수 있으므로 먼저 배지를 37 °C로 충분히 예열했는지 확인하십시오. 또한, collagen I 용액의 pH가 약 7.4인지 확인하고, 사용한 collagen I 및 basement membrane matrix 배치가 안정적인 겔을 형성하는지 확인하여 콜라겐 중합 상태를 검증하십시오. 매트릭스가 계속 취약하거나 응고되지 않는 경우, 새로운 배치의 basement membrane matrix 또는 collagen I을 사용하고 배지를 추가하기 전 37 °C에서 2 h 동안 완전히 인큐베이션하십시오. 필요하다면 중합 기간을 최대 3 h까지 연장하십시오.
셋째, 혈관 오가노이드의 분리와 성숙 과정을 단순화하여 처리량과 일관성을 향상시켰습니다. 기존 프로토콜에서는 10일까지 12-well 플레이트에서 배양한 혈관 네트워크를 6-well 저부착 플레이트로 개별적으로 옮겨 1일간 배양(11일 차)한 후, 다시 96-well 초저부착 플레이트로 옮겨 15일까지 계속 배양하였습니다. 이러한 두 번의 플레이트 전이 단계는 작업의 복잡성을 높이고 오가노이드 손실 위험을 증가시킵니다. 최적화된 프로토콜에서는 세 가지 중요한 단순화 과정을 도입하였습니다: (1) 분리된 오가노이드를 well당 하나씩 96-well 초저부착 플레이트로 직접 전이함으로써 중간 단계인 6-well 배양 과정을 없애고 취급 및 기계적 손상을 줄였습니다. (2) 부유 배양 중 융합을 방지하고 각 오가노이드의 독립성을 유지하기 위해 well당 하나의 오가노이드를 배양하였습니다. (3) 5일 동안 매일 배지를 교체하여 영양분과 성장 인자를 지속적으로 공급함으로써 오가노이드가 둥글고 완전히 캡슐화된 구조로 성숙할 수 있도록 하였습니다. 이러한 수정 사항은 오가노이드 배양을 단순화하고 처리량을 개선하며, 향후 고처리량 약물 스크리닝 응용을 용이하게 합니다.
분리 과정 중 오가노이드 손실을 최소화하려면, 절단 전에 collagen I–basement membrane matrix가 웰 바닥에서 완전히 분리되었는지 확인하십시오. 멸균된 스파출라를 웰 가장자리에서 중심 방향으로 바닥을 따라 조심스럽게 움직여 겔 전체가 자유롭게 떠오르게 합니다. 분리된 오가노이드를 옮길 때는 기계적 스트레스를 줄이고 오가노이드의 전단 응력을 최소화하기 위해 P1000 피펫 팁 대신 멸균 일회용 피펫을 사용하십시오. 핸들링 중에 오가노이드가 조각나면, 초기 세포 생존율과 VEGF-A 및 FGF-2와 같은 주요 성장 인자의 활성을 포함하여 분화 품질을 재평가하십시오. 현탁 배양 중 오가노이드가 서로 융합된 경우, 두 개의 P200 피펫 팁을 사용하여 조심스럽게 분리하십시오. 하지만 성숙 단계 시작부터 각 웰에 오가노이드를 하나씩 배양하는 것이 융합을 방지하는 가장 효과적인 방법입니다.
넷째, 배양 배지 시스템을 통합함으로써 프로토콜을 단순화하고 배치 간 편차를 줄였습니다. 기존 프로토콜에서는 CHIR99021 및 BMP-4를 이용한 중배엽 유도 단계와 VEGF-A 및 forskolin을 이용한 혈관 계보 유도 단계 동안 N2B27 배지를 사용하였으나, 혈관 네트워크 형성 단계에서는 FBS, VEGF-A 및 FGF-2가 포함된 무혈청 조혈 세포 배양 배지로 교체하였습니다. 이와 대조적으로, 최적화된 프로토콜에서는 혈관 네트워크 형성 및 이후의 오가노이드 성숙 전 과정에 걸쳐 15% FBS, VEGF-A 및 FGF-2가 보충된 N2B27 완전 분화 배지를 사용하여 동일한 N2B27 기초 제형을 유지합니다. 이러한 통합 전략은 배지 교체와 관련된 추가 변수를 줄이고 시약 준비를 단순화합니다. N2B27 배지에서 정의된 B27 및 N2 보충제를 사용하는 것 또한 배치 간 일관성 향상에 기여할 수 있으나, 다른 프로토콜 변경 사항과 분리하여 이 수정 사항만이 갖는 상대적 기여도는 본 연구에서 실험적으로 분리하여 검증되지 않았습니다. 최적화된 프로토콜의 효과는 15일 차 오가노이드에서 혈관 계보 마커의 발현 증가와 다능성 마커의 발현 감소를 통해 확인되었습니다 (그림 1D). 또한, 전체 마운트 면역형광 염색 결과, 광범위한 CD31+ 내피 네트워크와 밀접하게 연관된 PDGFR-β+ 주변세포(pericytes)가 관찰되어, 벽세포(mural cell) 층을 갖춘 혈관 구조의 형성이 확인되었습니다 (그림 1C,E). PDGFR-β는 이전 연구들21에서 입증된 바와 같이 인간 혈관 오가노이드 내 주변세포의 잘 알려진 마커입니다.
혈관 발아(vascular sprouting)가 제대로 이루어지지 않거나, 내피 네트워크 없이 크고 분화되지 않은 응집체가 형성되는 경우, 불충분한 중배엽 유도가 근본적인 원인일 수 있습니다. CHIR99021과 BMP-4가 활성 상태이며 적절한 농도로 사용되었는지 확인하십시오. CD31+ 내피 튜브 주변에 PDGFR-β+ 세포가 드문드문 관찰되어 나타나는 불량한 혈관주위세포(pericyte) 모집은 VEGF-A 또는 FGF-2의 활성이 최적화되지 않았음을 반영할 수 있습니다. 서로 다른 성장 인자 배치를 테스트하고, 혈관 오가노이드 형성을 지원하는 능력을 확인하기 위해 FBS 배치를 기능적으로 검증함으로써 벽세포(mural cell)의 피복률을 개선할 수 있습니다. 위에 설명한 네 가지 방법론적 개선 사항의 효과를 체계적으로 검증하기 위해, 최적화된 프로토콜과 기존의 Wimmer 프로토콜을 비교하는 정량적 형태 분석을 수행하였습니다(그림 2; 표 1). 명시야 현미경 관찰 결과, 분화 전 과정에 걸쳐 두 프로토콜 사이에 뚜렷한 형태학적 차이가 나타났습니다. 기존 프로토콜은 모든 단계에서 크기가 불균일하고 모양이 불규칙한 응집체와 오가노이드를 생성한 반면, 최적화된 프로토콜은 0일째부터 경계가 매끄럽고 균일한 응집체를 일관되게 생성했습니다. 이러한 응집체들은 이후 15일째까지 더 둥글고 크기가 균일한 성숙한 혈관 오가노이드로 발달하였습니다(그림 2A).
정량적 분석 결과, 최적화된 프로토콜을 통해 생성된 Day 0의 응집체(120.3 ± 5.4 µm, CV = 4.47%, n = 3개 독립 배치)가 기존 프로토콜(112.2 ± 34.7 µm, CV = 30.93%, n = 3개 독립 배치; 그림 2B)보다 실질적으로 더 균일한 것으로 확인되었습니다. 이러한 균일성의 개선은 분화 종점까지 유지되었으며, 최적화된 프로토콜을 사용하여 생성된 Day 15 오가노이드 또한 크기 변동성이 실질적으로 감소한 것으로 나타났습니다(그림 2C). 이러한 결과는 PVA 보조 응집과 궤도 진탕을 결합함으로써 기존 프로토콜에 비해 응집체 크기의 불균질성을 줄여, 이후의 중배엽 유도 및 혈관 분화를 위한 더 균질한 시작 물질을 제공함을 시사합니다. 다만, 최적화된 프로토콜은 여러 가지 수정을 동시에 적용하였으므로, 관찰된 개선 사항에 대한 각 개별 변경 사항의 구체적인 기여도는 본 연구에서 실험적으로 분리하여 분석하지 않았습니다.
최적화된 프로토콜은 혈관 네트워크 형성을 유의미하게 향상시켰으며, CD31+ 내피세포 피복률(40.1 ± 2.9% vs. 28.0 ± 7.0%; t = 2.856, df = 4, p = 0.05; 그림 2D) 및 PDGFR-β+ 혈관주위세포 피복률(36.2 ± 2.5% vs. 17.5 ± 5.2%; t = 6.636, df = 4, p = 0.003; 그림 2E)을 증가시켰습니다. AngioTool을 이용한 분지 지수(Branching index) 분석 결과, 최적화된 프로토콜이 더 복잡한 혈관 네트워크를 생성했음을 추가로 입증하였습니다(50.2 ± 3.8 vs. 24.1 ± 6.9 points/mm2; t = 6.163, df = 4, p = 0.004; 그림 2F). 이러한 개선은 두 가지 상보적인 요인에 의한 결과일 수 있습니다. 첫째, 균질한 응집체는 혈관 발아(vascular sprouting)를 위한 보다 일관된 시작 조건을 제공합니다. 둘째, 조건화 배지의 1/3을 유지함으로써 보충된 혈관 형성 촉진 인자들을 유지하는 동시에, 혈관주위세포의 이동 및 내피세포 튜브와의 결합을 지원할 수 있는 세포 분비 인자들을 보존하는 데 도움이 될 수 있습니다.
결과적으로, 최적화된 프로토콜은 약 1.6배 더 높은 오가노이드 형성 효율(64.3 ± 3.8% 대 41.3 ± 10.8%; t = 3.433, df = 4, p = 0.03)을 나타냈으며, 이는 기존 프로토콜을 사용하여 얻은 29~50개의 오가노이드와 비교하여 1 × 10⁶개의 시작 세포당 60~67개의 성숙한 오가노이드에 해당한다(Figure 2G). 특히, 최적화된 프로토콜은 배치 간 변동성을 상당히 감소시켜 배치 평균이 60.0%에서 67.0%(SD = 3.8%) 범위였던 반면, 기존 프로토콜은 배치 평균이 29.0%에서 50.0%(SD = 10.8%) 범위로 현저하게 더 큰 배치 간 변동성을 보였다.
그림 2와 표 1에 제시된 정량적 데이터는 최적화된 프로토콜을 통해 총체적 균질성, 혈관 네트워크 형성, 혈관주위세포 모집, 혈관 복잡성 및 오가노이드 수율 측면에서 체계적인 개선이 이루어졌음을 뒷받침합니다. 이러한 개선 사항은 재현성 및 확장성과 관련된 기존 프로토콜의 주요 한계점을 직접적으로 해결합니다.
요약하자면, 본 최적화된 프로토콜은 응집체 형성의 최적화, 배지 교체 전략의 수정, 오가노이드 분리 및 성숙 워크플로우의 단순화, 그리고 배양 배지 시스템의 통합이라는 네 가지 주요 개선 사항을 통해 기존 방법의 핵심적인 한계점들을 해결하였습니다. 이러한 수정 사항들을 통해 혈관 오가노이드 생성의 효율성, 재현성 및 확장성을 높였으며, 혈관 발달 연구, 질환 모델링 및 약물 스크리닝을 위한 더욱 신뢰할 수 있는 in vitro 플랫폼을 제공하게 되었습니다. 그럼에도 불구하고, 기존 방법과 마찬가지로 현재의 프로토콜은 기저막 매트릭스와 FBS를 포함한 동물 유래 성분에 계속해서 의존하고 있습니다. 따라서 향후에는 이 플랫폼의 중개 연구 잠재력을 더욱 높이기 위해 화학적으로 정의된 합성 매트릭스와 무혈청 배양 시스템을 개발하는 데 집중할 수 있을 것입니다.
최적화된 프로토콜에 PVA 보충, 궤도 진동(orbital shaking), 조건화 배지 유지, 효율화된 성숙 워크플로우, 통일된 배양 배지 시스템 등 여러 가지 동시적인 수정 사항이 도입되었으며, 현재의 데이터로는 응집체 균질성, 내피 세포 피복, 주세포 피복 또는 오가노이드 수율에서 관찰된 개선 사항 중 어떤 개별 수정 사항이 결정적인 역할을 했는지 확립하지 못했다는 점에 유의해야 합니다. 본 연구는 각 개별 구성 요소의 기여도를 분석하기보다는, 이러한 최적화 사항들을 하나의 완성된 프로토콜로서 적용했을 때의 누적 효과를 평가하기 위해 설계되었습니다. 각 수정 사항의 구체적인 역할을 결정하고 프로토콜을 더욱 정교화하기 위해서는 향후 요인 설계 실험이나 제거(ablation) 실험이 필요할 것입니다.
이러한 한계에도 불구하고, 현재의 프로토콜은 혈관 오가노이드 생성을 위한 실용적이고 재현 가능한 기초를 제공합니다. 혈관 오가노이드 분야의 몇 가지 신흥 방향은 프로토콜의 추가적인 개선과 응용 확대의 기회를 제공합니다. 합성 및 동물성 성분 없는 하이드로젤의 최근 발전은 기저막 매트릭스와 콜라겐 I의 유망한 대안이 되었으며, 특히 동적 하이드로젤은 혈관 신생을 촉진하고 혈관 오가노이드가 세동맥으로 분화하도록 유도하는 것으로 나타났습니다.22세포의 무결성을 유지하면서 재현성과 자동화 호환성을 향상시키기 위해, 단층 "시팅 드롭(sitting drop)" 배양법에 기반한 강력한 동물 유래 성분 배제 방법 또한 개발되었습니다.23단일 세포 멀티오믹스 연구는 인간 혈관 오가노이드 발달 과정 중의 세포 이질성에 대해 전례 없는 해상도를 제공하며, 분화 프로토콜의 표적 최적화를 유도할 수 있는 핵심적인 세포 운명 및 상태 전이를 밝혀냈다.24미세유체 플랫폼의 통합을 통해 관류 가능한 모세혈관 네트워크를 갖춘 기능적 혈관화 오가노이드-온-칩 개발이 가능해졌으며, 이는 혈관 내 관류를 통해 오가노이드의 성장, 성숙 및 기능을 향상시킵니다.25또한, 특수 혈관 오가노이드 온 칩 시스템이 약물 스크리닝 및 질환 모델링을 위한 유망한 플랫폼으로 부상하고 있으며, 재생 의학과 재건 외과 분야에서의 잠재적 응용 가능성을 보여주고 있습니다.26본 연구에서 제시한 최적화된 분화 프로토콜과 더불어, 이러한 상호 보완적인 접근 방식은 질병 모델링 및 치료제 스크리닝 분야에서 혈관 오가노이드의 중개 연구 적용을 가속화할 수 있을 것입니다.
본 프로토콜은 단일 iPSC 라인을 사용하여 검증되었으나, 여러 독립적인 배치를 통해 일관된 결과가 도출됨으로써 분화 방식의 강건함이 입증되었습니다. 그럼에도 불구하고, 일반화 가능성을 더욱 확립하기 위해서는 추가적인 iPSC 및 ESC 라인에 대한 평가가 필요할 것입니다. 최적화된 조건, 특히 PVA 보충, 궤도 흔들림(orbital shaking) 및 조건화 배지 유지 등은 응집 균일성, 물질 전달 및 파라크라인 지원을 포함한 오가노이드 배양의 기본적 측면을 해결하도록 설계되었으므로, 서로 다른 세포주 배경에서도 유사한 이점을 제공할 수 있습니다.
공개 사항
저자들은 상충되는 재정적 이해관계가 없음을 밝힙니다.
감사의 글
본 연구는 중국 국가자연과학재단(NSFC)의 젊은 과학자 기금 (C) (No. 32200655) 및 일반 프로그램 (No. 32270847)의 지원을 받았습니다. 저자들은 또한 안후이 대학교 공공 서비스 플랫폼의 지원에 감사드립니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.22 μm 보틀 탑 필터 | Nalgene | FPE204030 | 배지 및 버퍼의 멸균 여과용 |
| 15 mL 원뿔형 튜브 | SparkJade | GD0001 | 멸균됨 |
| 2 mL 마이크로원심분리 튜브 | Eppendorf | 22363204 | 멸균됨 |
| 2-Mercaptoethanol (1000×) | Gibco | 21985023 | 흄 후드 내 사용 |
| Alexa Fluor 488 AffiniPure F2 Fragment Donkey Anti-Rabbit IgG (H+L) | Lablead | Y1104 | 2차 항체; 1:300으로 희석 |
| Alexa Fluor 594 AffiniPure F(ab′)2 Fragment Donkey Anti-Goat IgG (H+L) | Lablead | Y1007 | 2차 항체; 1:300으로 희석 |
| Anti-CD31 항체 | Cell Signaling | 3528s | 1차 항체; 블로킹 버퍼에서 1:100으로 희석 |
| Anti PDGFR β 항체 | Zenbio | 347269 | 1차 항체; 블로킹 버퍼에서 1:100으로 희석 |
| 자동 세포 계수기 | Life Technologies | Countess™ II | 계수 챔버 슬라이드 포함 |
| B27 보충제 (50×) | Gibco | 17504044 | N2B27 배지용; 4ºC에서 해동, 소분하여 −20ºC에 보관, 동결-해동 반복 피함 |
| 벤치탑 원심분리기 | Zonkia | SC-3610 | 스윙 버킷 로터 포함 |
| 생물안전작업대 (Class II) | Thermo Fisher | NA | 해당 없음 |
| BMP4 | Proteintech | HZ-1045 | 멸균 ddH2O로 100 ng/μL 농도로 재구성, 소분하여 −20 °C에 보관 |
| 소 혈청 알부민 (BSA) | Biosharp | 9048-46-8 | 블로킹 버퍼용 |
| CHIR99021 | MCE | HY-10182 | DMSO에서 10 mM 스톡으로 제조, −20ºC에서 최대 1년 동안 보관 |
| CO2 배양기 | Fisher Scientific | LS-CO150 | 37 ºC, 5% CO2, 습윤 상태 |
| 공초점 이미징 디쉬 | Biosharp | BS-20-GJM | 염색 후 이미징용 |
| 공초점 현미경 | LEICA | NA | 10×, 20×, 63× 대물렌즈 및 ZEN 소프트웨어 장착 |
| DMEM | Vivacell | C3113-0500 | Matrigel 희석 및 콜라겐 I 용액용 |
| DMEM/F-12, GlutaMAX 보충제 | Gibco | 10565018 | Matrigel 희석 및 N2B27 배지용 |
| EDTA (0.5 M, pH 8.0) | Invitrogen | AM9260G | 계대 배양을 위해 PBS로 0.02%까지 희석 |
| 소 태아 혈청 (FBS) | Gibco | 10270-106 | N2B27 완전 분화 배지용 (최종 15%) |
| FGF-2 | Novoprotein | C046 | 멸균 PBS에서 1 mg/mL 스톡으로 제조, 소분하여 −20ºC에 보관 |
| Forskolin | R&D Systems | 1099 | DMSO에서 10 mM 스톡으로 제조, −20ºC에 보관 |
| HEPES (1M) | Gibco | 15630080 | 콜라겐 I 용액용 |
| Hoechst | Beyotime | C1071S-4 | 탈이온수로 1 mg/mL 스톡으로 제조, 소분하여 −20ºC에 보관 |
| 도립 현미경 | LEICA | DMIL LED | 일상적인 세포 관찰용 |
| Matrigel (성장 인자 감소) | STEEMA | BM05 | 소분 후 −20ºC에 보관, 동결-해동 반복 피함, 얼음 위에서 취급 |
| MEM 비필수 아미노산 용액 (NEAA, 100×) | Gibco | 11140035 | N2B27 배지용 |
| N2 보충제 (100×) | Gibco | 17502048 | N2B27 배지용; 차광하여 −20ºC에 보관 |
| Neurobasal 배지 | Gibco | 21103049 | N2B27 배지용 |
| Nuclease-Free Water (DNase/Rnase Free) | Lablead | Doo55WJ | RNA/cDNA 준비 및 qPCR용 |
| 오비탈 쉐이커 | Joan Lab | NA | 세척 단계용 |
| 파라포름알데히드 (4% 용액) | Servicebio | G1101 | 고정을 위해 PBS로 4%까지 희석; 흄 후드 내 사용 |
| Penicillin-Streptomycin (100×) | Gibco | 15140122 | N2B27 배지용 |
| PGM1 배지 | Cellapy | A1517001 | hiPSC 증식 배지; 차광하여 4ºC에 보관, 2주간 안정적 |
| PGM1 보충제 (25×) | Cellapy | A1517101 | PGM1 기본 배지와 함께 사용 |
| 폴리비닐 알코올 (PVA) | Sigma-Aldrich | P8136 | 응집 촉진을 위해 PGM1에 0.25% (w/v)로 용해 |
| PureCol (Bovine Type I Collagen, 3 mg/mL) | Advanced BioMatrix | 5005 | 콜라겐 I-Matrigel 혼합물용; 배치별 중합 능력 테스트 |
| qPCR 열 순환기 | Thermo Fisher | StepOnePlus™ | 멜팅 커브 기능 포함; 실시간 PCR 검출용 |
| 역전사 키트 | Accurate Biology | AG11706 | 총 RNA로부터 cDNA 합성을 위해 사용; 역전사 효소, 버퍼, dNTP 및 랜덤 프라이머가 포함된 RT 마스터 믹스 포함 |
| RNA 추출 키트 | Yeasen | 19221ES50 | 혈관 오가노이드의 총 RNA 분리용; gDNA 제거 컬럼 및 RNase-free DNase I 포함 |
| 탄산수소나트륨 (7.5%) | Gibco | 25080094 | 콜라겐 I 용액용 |
| 소듐 데옥시콜레이트 | Sigma-Aldrich | D6750 | 블로킹 버퍼용으로 탈이온수에 1% (w/v) 용액으로 제조 |
| 수산화나트륨 (1.0 N) | Sigma-Aldrich | S2770 | 콜라겐 I 용액의 pH 조절용 |
| 멸균 일회용 피펫 (10 mL) | Bkmamlab | 110205007 | 개별 포장, 멸균됨 |
| 멸균 필터 피펫 팁 (1000, 200, 20 μL) | Biozym | VT0270/VT0250/VT0220 | 멸균됨, 필터 포함 |
| 멸균 바늘 (30 G) | NA | NA | 혈관 네트워크 해부용 |
| 멸균 스패튤라 (라운드 엔드) | Fisher Scientific | 21-401-5 | 스테인리스 스틸 |
| SYBR Green 마스터 믹스 | Accurate Biology | AG11733 | qPCR용 2× 농도; 핫스타트 DNA 폴리머라제, 버퍼, dNTP 및 SYBR Green 염료 포함 |
| 조직 배양 처리 12-웰 플레이트 | BD Falcon | 353043 | 겔 임베딩 및 혈관 네트워크 배양용 |
| 조직 배양 처리 6-웰 플레이트 | Eppendorf | 30720113 | 표준 TC 처리됨 |
| Triton X-100 | Sigma-Aldrich | T9084 | 블로킹 버퍼용 |
| 트리판 블루 (0.4%) | Thermo Fisher | 15250061 | 세포 계수용 |
| Tween 20 | Sigma-Aldrich | P7949 | 0.05% PBS-T 세척 용액용 |
| 초저부착 6-웰 플레이트 | Corning | 3471 | 응집체 형성 및 분화용 |
| 초저부착 라운드 바텀 96-웰 플레이트 | Beyotime | FULA962-6pcs | 혈관 오가노이드의 현탁 배양용 |
| VEGF-A | Proteintech | HZ-1038 | 멸균 PBS에서 1 mg/mL 스톡으로 제조, 소분하여 −20ºC에 보관 |
| 항온수조 | Blue pard | HWS-24 | 37ºC |
| Y-27632 | MCE | HY-10071 | 멸균 PBS 또는 DMSO에서 10 mM 스톡으로 제조, −20ºC에 보관; 작동 농도: 5 μM (해동 시), 50 μM (응집체 형성 시) |
참고문헌
- Lancaster MA, Knoblich JA. Organogenesis in a dish: modeling development and disease using organoid technologies. Science. 2014;345:1247125.
- Clevers H. Modeling development and disease with organoids. Cell. 2016;165:1586-1597.
- Spence JR, et al. Directed differentiation of human pluripotent stem cells into intestinal tissue in vitro. Nature. 2011;470:105-109.
- Lancaster MA, et al. Cerebral organoids model human brain development and microcephaly. Nature. 2013;501:373-379.
- Quadrato G, et al. Cell diversity and network dynamics in photosensitive human brain organoids. Nature. 2017;545:48-53.
- Takasato M, et al. Kidney organoids from human iPS cells contain multiple lineages and model human nephrogenesis. Nature. 2015;526:564-568.
- Takebe T, et al. Vascularized and functional human liver from an iPSC-derived organ bud transplant. Nature. 2013;499:481-484.
- Huch M, et al. Long-term culture of genome-stable bipotent stem cells from adult human liver. Cell. 2015;160:299-312.
- Nakano T, et al. Self-formation of optic cups and storable stratified neural retina from human ESCs. Cell Stem Cell. 2012;10:771-785.
- Mansour AA, et al. An in vivo model of functional and vascularized human brain organoids. Nat Biotechnol. 2018;36:432-441.
- Ham O, et al. Blood vessel formation in cerebral organoids formed from human embryonic stem cells. Biochem Biophys Res Commun. 2020;521:84-90.
- Sun XY, et al. Generation of vascularized brain organoids to study neurovascular interactions. eLife. 2022;11:e76707.
- Grebenyuk S, Ranga A. Engineering organoid vascularization. Front Bioeng Biotechnol. 2019;7:39.
- Parikh M, Pierce GN. Considerations for choosing an optimal animal model of cardiovascular disease. Can J Physiol Pharmacol. 2024;102:75-85.
- Krug A, et al. Three-dimensional spheroid models for cardiovascular biology and pathology. Mechanobiol Med. 2025;3:100144.
- Carmeliet P. Angiogenesis in health and disease. Nat Med. 2003;9:653-660.
- Wimmer RA, et al. Human blood vessel organoids as a model of diabetic vasculopathy. Nature. 2019;565:505-510.
- Wimmer RA, et al. Generation of blood vessel organoids from human pluripotent stem cells. Nat Protoc. 2019;14:3082-3100.
- Naderi-Meshkin H, et al. Vascular organoids: unveiling advantages, applications, challenges, and disease modelling strategies. Stem Cell Res Ther. 2023;14:292.
- Xu C, et al. Vascular organoid generation from human-induced pluripotent stem cells. J Vis Exp. 2024;214:e67125.
- Frenz-Wiessner S, et al. Generation of complex bone marrow organoids from human induced pluripotent stem cells. Nat Methods. 2024;21:868-881.
- Sun D, et al. Matrix viscoelasticity controls differentiation of human blood vessel organoids into arterioles and promotes neovascularization in myocardial infarction. Adv Mater. 2025;37:e2410802.
- Hoffmann A, et al. Animal-origin-free method for generating blood vessel organoids. Sci Rep. 2026;16:12096.
- Nikolova MT, et al. Fate and state transitions during human blood vessel organoid development. Cell. 2025;188:3329-3348.e31.
- Quintard C, et al. A microfluidic platform integrating functional vascularized organoids-on-chip. Nat Commun. 2024;15:1452.
- Sun L, Wang P, Lin X, Qiu Y. Microfluidic vascular organoids-on-chips: a promising platform for advancing plastic and reconstructive surgery. Chinese Journal of Plastic and Reconstructive Surgery. 2025.