본 연구에서는 쌍을 이룬 인간 조직, 두 종류의 폐 편평 세포 암종 세포주, RNA 및 단백질 안정성 분석, 유전적 구조 실험, 그리고 FOXD1-녹다운 이종이식 모델을 결합하여 METTL3와 관련된 FOXD1 조절을 조사하고, 전사 후 발암 기전을 연구하기 위한 재현 가능한 프레임워크를 제공합니다.
연구 논문
METTL3 관련 FOXD1 조절을 통한 폐 편평세포암 진행 촉진: 다중 모델 실험적 접근법
* These authors contributed equally
이 논문에서
요약
초록
폐 편평 세포 암종(LUSC)은 치료 옵션이 제한적이어서 종양 세포 성장을 지원하는 분자 경로에 대한 연구가 절실합니다. 짝을 이룬 조직과 세포주에서 유전자 발현 프로파일링 상호작용 분석(GEPIA), 정량적 역전사 중합효소 연쇄 반응(qRT-PCR), 웨스턴 블로팅 및 면역조직화학법을 사용하여 Forkhead box D1(FOXD1)의 발현을 평가했습니다. LUSC 세포에서 FOXD1 또는 메틸전이효소 유사 3(METTL3)를 결핍시킨 후 세포 생존력, 세포 사멸, 이동, 전반적인 N6-methyladenosine(m6A), 전사체 안정성 및 단백질 안정성을 평가했습니다. FOXD1-넉다운 이종이식 모델을 통해 FOXD1의 in vivo 역할을 테스트했으며, 동물 모델에서 METTL3는 조작하지 않았습니다.
FOXD1 발현은 대조군에 비해 LUSC 조직 및 세포에서 더 높게 나타났습니다. FOXD1 넉다운은 세포 생존력과 이동을 감소시키고, 세포 사멸을 증가시키며, 제노그라프트 성장을 억제했습니다. METTL3 발현은 쌍을 이룬 LUSC 조직에서 FOXD1과 상관관계를 보였습니다. 배양 세포에서 METTL3 넉다운은 전체적인 m6A 및 FOXD1 함량을 낮춘 반면, FOXD1 재발현은 관련된 표현형을 부분적으로 회복시켰습니다. Actinomycin D, cycloheximide 및 MG132 분석 결과는 METTL3와 관련된 FOXD1 RNA 및 단백질 안정성 변화와 일치했습니다.
이러한 데이터는 LUSC 세포 내에서 METTL3와 FOXD1 사이의 기능적 연관성을 뒷받침합니다. In vivo 실험에서, FOXD1 넉다운은 제노그라프트 성장을 억제하고 Ki-67 염색을 감소시켜, FOXD1이 제노그라프트 성장의 촉진제임을 입증했습니다. METTL3-FOXD1의 직접적인 결합, 부위 특이적 m6A 수식, 리더(reader) 의존성 및 전체 METTL3-FOXD1 경로의 in vivo 검증은 향후 과제로 남아있습니다.
서론
폐암은 전 세계적으로 암 사망의 주요 원인으로 남아 있습니다1,2. 비소세포폐암(NSCLC)의 주요 조직학적 하위 유형인 폐편평상피세포암(LUSC)은 흔히 근치적인 국소 치료가 더 이상 불가능한 시점에 발견됩니다3,4. 전신 치료가 개선되었으나, 여전히 많은 환자가 좋지 않은 예후를 보입니다5. 따라서 LUSC의 성장을 유지하는 분자 프로그램의 정의는 검증 가능한 바이오마커와 치료 가설을 제시할 수 있습니다.
Forkhead box D1 (FOXD1)은 대장암, 두경부암, 위암, 구강 편평 세포암 및 유방암과 관련된 전사 인자입니다6,7,8,9,10. 비소세포폐암(NSCLC)에서 FOXD1 발현은 좋지 않은 예후 및 실험적 세포 성장 및 전이와 연관되어 왔습니다11,12. MicroRNA-30a-5p 또한 FOXD1을 표적으로 하여 폐편평세포암(LUSC) 세포의 증식과 이동을 억제합니다13. 이러한 관찰 결과들은 FOXD1이 LUSC의 유망한 조절 인자임을 보여주지만, 이 질환에서 FOXD1의 발현이 어떻게 유지되는지는 밝혀내지 못했습니다.
N6-methyladenosine (m6A)는 writer, eraser, reader 단백질에 의해 설치, 제거 및 해석되는 가역적인 RNA 수식입니다. 이러한 조절 시스템은 RNA 처리, 번역 및 분해에 영향을 줄 수 있으며, 이 시스템의 붕괴는 악성 표현형 및 치료 반응과 연관되어 왔습니다14,15,16,17. Methyltransferase-like 3 (METTL3)는 m6A writer 복합체의 촉매 성분입니다. 하지만 METTL3와 FOXD1 사이의 상관관계만으로는 직접적인 메틸화 또는 reader 매개 조절을 입증할 수 없습니다.
본 연구진은 METTL3가 m6A 관련 전사 후 조절을 통해 FOXD1 발현을 유지함으로써 LUSC 진행을 촉진한다는 가설을 세웠습니다. 쌍을 이룬 임상 표본, 두 종류의 종양 세포주, 기능 상실 및 회복 분석, 전사체 및 단백질 안정성 분석, 그리고 FOXD1 녹다운 이종이식 모델을 통합함으로써, 본 연구는 단순한 연관성과 직접적인 부위 특이적 메틸화를 구분하는 동시에 METTL3–FOXD1 관계를 조사하기 위한 기능적 체계를 제공합니다.
프로토콜
인체 조직 수집은 헬싱키 선언에 따라 수행되었으며, 길림대학교 제1병원 기관생명윤리위원회(승인 번호 2022-339; 2022년 7월 22일)의 승인을 받았으며, 모든 참여자로부터 서면 동의서를 받았습니다. 동물 실험 프로토콜은 길림대학교 제1병원 동물관리위원회(승인 번호 2022-0015; 2022년 1월 25일)의 승인을 받았으며, 동물 보호 및 사용에 관한 기관 지침에 따라 수행되었습니다.
연구 대상
보관된 검체는 2019년 1월부터 2020년 12월 사이에 수술을 받은 환자로부터 수집한 12쌍의 일차 LUSC 및 인접 비종양 조직으로 구성되었다. 선정 기준은 병리학적으로 확인된 일차 LUSC 환자로서, 기록된 전이가 없고 이전 6개월 동안 LUSC 표적 치료를 받지 않은 환자로 하였다. 난수표를 이용하여 사례를 선정하였으며, 30~65세의 남성 7명과 여성 5명이 포함되었다. 모든 참여자로부터 서면 동의서를 얻었다.
세포주
인간 기관지 상피 BEAS-2B 세포(RRID: CVCL_0168), LUSC SK-MES-1(RRID: CVCL_0630) 및 NCI-H226 세포(RRID: CVCL_1544)를 중국과학원 세포은행으로부터 분양받았다. 세포는 10% 태아 송아지 혈청과 1% 페니실린-스트렙토마이신이 함유된 Dulbecco's modified Eagle 배지에서 유지되었다. 37 °C 5% CO 내에서2상업적 식별자는 첨부된 문서에 통합되어 있습니다. 재료 목록.
소간섭 RNA 스크리닝 및 구조
FOXD1 또는 METTL3를 표적으로 하는 세 가지 개별 소형 간섭 RNA를 SK-MES-1 및 NCI-H226 세포에서 스크리닝하였습니다. 녹다운 효율은 형질전환 48시간 후에 정량적 역전사 PCR(qRT-PCR) 및 웨스턴 블로팅으로 평가하였습니다. FOXD1 siRNA-1은 두 세포주 모두에서 가장 큰 감소 효과를 나타냈으므로 후속 FOXD1 기능 분석에 사용되었습니다. 후속 METTL3 실험에는 스크리닝을 통해 선택된 si-METTL3 시약을 사용하였습니다. 보관된 기록에는 SmartPool 식별 정보가 없으며, 신뢰할 수 있게 지정할 수 있는 서열이나 벤더 식별자 또한 보존되어 있지 않습니다. 구조 실험을 위해 세포에 선택된 si-METTL3 시약, FOXD1 과발현 구성체, 또는 두 가지 모두를 처리하였으며, 형질전환 48시간 후에 발현 및 세포 표현형을 평가하였습니다.
RNA 분리 및 qRT-PCR
페놀-구아니디늄 시약을 사용하여 조직 또는 세포로부터 총 RNA를 분리하였으며, 상용 역전사 키트를 사용하여 역전사하였다. qRT-PCR은 실시간 PCR 시스템(RRID: SCR_018051)에서 TB Green 마스터 믹스를 사용하여 수행하였다. 프라이머 서열은 다음에서 제공된다. 표 1상대적 발현량은 glyceraldehyde 3-phosphate dehydrogenase (GAPDH)를 기준으로 표준화하였다. 반응액 조제 및 열 순환은 사용된 마스터 믹스 제조사의 프로토콜을 따랐다.
웨스턴 블로팅
조직 또는 세포를 프로테아제 억제제가 포함된 radioimmunoprecipitation assay (RIPA) 완충액으로 용해했습니다. 동일한 양의 단백질을 sodium dodecyl sulfate–polyacrylamide gel electrophoresis (SDS-PAGE)로 분리하여 polyvinylidene fluoride (PVDF) 막으로 전이시켰습니다. 막을 4 °C에서 FOXD1 (1:1,000), METTL3 (1:1,000; RRID: AB_2142033) 또는 GAPDH (1:2,000; RRID: AB_10622025) 항체와 함께 하룻밤 동안 반응시킨 후, 실온에서 1시간 동안 horseradish peroxidase-접합 anti-rabbit immunoglobulin G와 반응시켰습니다. GAPDH를 로딩 컨트롤로 사용하여 enhanced chemiluminescence로 신호를 검출했습니다. 재료 표에는 상용 일차 항체가 명시되어 있으며, 이차 시약으로는 anti-rabbit immunoglobulin G 검출 항체가 기록되어 있습니다.
세포 생존율 및 세포 사멸
생존율 측정을 위해, 대조군 및 형질전환된 LUSC 세포를 96-well 플레이트에 웰당 2,000 cells씩 분주하였다. 12시간 간격으로 웰당 10 µL의 cell counting kit-8 시약을 첨가하고, 플레이트를 37 °C에서 1시간 동안 배양한 후, 450 nm에서 흡광도를 기록하였다. 세포사멸 분석을 위해, 6-well 플레이트에 웰당 1 × 10⁵ cells를 분주하고 형질전환 48시간 후에 분석하였다. 수확한 세포는 Annexin V–fluorescein isothiocyanate (FITC)/ propidium iodide (PI) 키트 지침에 따라 처리하였으며, 100 µL의 binding buffer에 재부유시킨 후, 각 시약 5 µL로 실온의 암소에서 30분간 염색하고 4시간 이내에 유세포 분석기로 분석하였다.
트랜스웰 이동 분석
형질전환된 LUSC 세포를 상단 트랜스웰 챔버의 무혈청 배지에 넣었으며, 하단 챔버에는 10% fetal bovine serum이 첨가된 배지 500 µL를 넣었습니다. 24시간 후, 이동한 세포를 4% paraformaldehyde로 고정하고 crystal violet으로 10분 동안 염색했습니다. 상단 막 표면에 이동하지 않은 세포는 면봉으로 제거했습니다. 이동한 세포를 동일한 획득 설정 하에서 현미경으로 촬영하고 ImageJ (RRID: SCR_003070)를 사용하여 정량화했습니다.
m6A 메틸화 변형
전체 m6A 함량은 비색 RNA 메틸화 분석법으로 측정하였습니다. RNA 추출 및 품질 평가 후, 각 분석 웰에 200 ng의 RNA를 분주하였습니다. 캡처 항체(50 µL)를 첨가하여 실온에서 60분 동안 반응시켰습니다. 웰을 3회 세척한 후, 50 µL의 검출 항체를 넣고 30분 동안 배양하였으며, 다시 4회 세척한 뒤 신호 증강 용액으로 30분 동안 배양하였습니다. 흡광도는 450 nm에서 측정하였습니다. 모든 단계는 기재된 키트 지침을 따랐습니다.
mRNA 안정성 검출
LUSC 세포를 6-well 플레이트에 분주하고 음성 대조군 소간섭 RNA (si-NC) 또는 METTL3 표적 소간섭 RNA (si-METTL3)를 형질전환시켰다. 48시간 후, 전사를 중단시키기 위해 actinomycin D를 5 µg/mL 농도로 첨가하였다. 0시간, 2시간, 4시간, 6시간 시점에서 세포를 수집하여 총 RNA를 분리하였으며, qRT-PCR을 통해 FOXD1 전사체의 양을 측정하였다.
Cycloheximide (CHX) 및 MG132 분석
각 저해제 종점 분석(endpoint assay)에서, 처리하지 않은 벡터 대조군 세포, 저해제 처리된 벡터 대조군 세포 및 저해제 처리된 METTL3 과발현 세포를 비교하였다. MG132는 10 µM, CHX는 20 µM 농도로 사용하였으며, 12 h 후에 용해물을 수집하여 western blotting을 수행하였다. CHX 시간 경과 분석(time course)을 위해, si-NC 또는 si-METTL3가 형질전환된 세포에 20 µM CHX를 처리하고 0 h, 3 h, 6 h, 9 h 시점에 수집하였다. FOXD1 단백질 발현량은 western blotting으로 측정하였다.
In vivo 실험
5주령의 athymic BALB/c nude 마우스를 음성 대조군과 FOXD1-knockdown SK-MES-1군으로 배정하였다(군당 n = 8마리). 각 마우스에 약 8 × 10⁶개의 세포를 피하 주사하였다. 이식 1주 후부터 종양 모니터링을 시작하였으며, 20일 동안 4일 간격으로 종양 크기를 기록하였다. 접종 후 27일째에 최종 측정을 마친 직후, 승인된 기관 프로토콜에 따라 마우스를 안락사시키고 종양을 적출하여 무게를 측정하고 사진을 촬영하였다. 이식에는 안정적인 FOXD1-knockdown SK-MES-1 세포 집단과 이에 대응하는 음성 대조군 세포 집단을 사용하였다.
면역화학
절제된 종양은 파라핀에 매립하여 4–5 µm 두께로 절편화하였습니다. 절편을 탈파라핀화하고 재수화시킨 후, 1차 항체와 함께 4 °C에서 하룻밤 동안 배양하였으며, 이어서 적절한 2차 항체와 함께 30분 동안 배양하였습니다. 항원 양성 세포는 diaminobenzidine 기질을 사용하여 시각화하였습니다. 제노그라프트에서 FOXD1 및 Ki-67을 평가하였으며, 쌍을 이룬 절편들을 동일한 염색 배치로 처리하고 동일한 획득 설정 하에서 이미징하였습니다.
통계 분석
분석은 GraphPad Prism version 8 (RRID: SCR_002798) 및 R (RRID: SCR_001905)을 사용하여 수행되었습니다. 두 그룹 간의 비교에는 Student's t-test를 사용하였으며, 세 그룹 이상의 비교에는 분산 분석(analysis of variance)을 사용하였습니다. 쌍을 이룬 인간 조직 분석에는 12쌍의 환자 샘플을 사용하였으며, in vitro 요약 결과는 3회의 독립적인 생물학적 실험을 나타냅니다. 이종이식 분석에는 그룹당 8마리의 마우스를 사용하였습니다. 기술적 반복(Technical replicates)은 독립적인 관찰치로 처리하지 않았습니다. 데이터는 평균 ± 표준편차로 표시되었습니다. 양측 검정 P < 0.05인 경우 통계적으로 유의미한 것으로 간주하였습니다.
결과
인체 LUSC 조직에서 FOXD1 발현이 증가함
유전자 발현 프로파일링 대화형 분석(GEPIA) 쿼리 결과, 정상 폐 샘플보다 LUSC에서 FOXD1 전사체 풍부도가 더 높게 나타난 반면, 폐 선암 비교에서는 유의성에 도달하지 못했습니다(그림 1A). 12쌍의 LUSC 및 인접 비종양 조직을 분석한 결과, qRT-PCR 및 웨스턴 블로팅에서도 동일한 방향의 변화가 확인되었습니다(그림 1B,C). 면역조직화학 염색에서도 인접 조직 쌍보다 종양 절편에서 더 강한 FOXD1 신호가 관찰되었습니다(그림 1D).
FOXD1 넉다운은 LUSC 세포의 생존능력과 이동성을 감소시키고 세포 사멸을 증가시킨다
FOXD1 전사체 풍부도는 BEAS-2B 세포보다 SK-MES-1 및 NCI-H226 세포에서 더 높게 나타났습니다(그림 2A). 세 가지 FOXD1 표적 소형 간섭 RNA를 스크리닝하였으며, qRT-PCR 및 웨스턴 블로팅으로 검출했을 때 감소 폭이 가장 컸던 siRNA-1을 후속 분석을 위해 선정하였습니다(그림 2B,C). 음성 대조군과 비교하여, FOXD1 넉다운은 두 LUSC 세포주 모두에서 Cell Counting Kit-8 신호를 감소시켰고(그림 2D), Annexin V 양성 세포를 증가시켰으며(그림 2E), Transwell 이동을 감소시켰습니다(그림 2F). 단일 선택된 시약만이 사용되었으므로, 기능적 결과가 오프타겟 효과의 서열 독립적 배제를 의미하지는 않습니다.
LUSC 샘플에서 METTL3 발현은 FOXD1과 상관관계가 있음
m6A 메틸화는 진핵생물에 널리 존재하는 역동적이고 가역적인 화학적 수식으로, 메틸전이효소(methyltransferase)와 탈메틸화효소(demethylase)에 의해 조절되며, m6A 결합 단백질에 의해 인식 및 처리됩니다18. 전반적인 m6A 신호는 12개의 LUSC 조직에서 짝을 이룬 인접 조직보다 높게 나타났으며, 두 LUSC 세포주 모두에서 BEAS-2B 세포보다 높았습니다 (그림 3A). METTL3, METTL14, WTAP 및 RBM15를 인코딩하는 전사체는 짝을 이룬 종양 샘플에서 증가했습니다 (그림 3B). GEPIA 데이터와 12개 종양 세트 전반에서 FOXD1은 METTL3와 가장 명확한 양의 상관관계를 보였으며, RBM15와의 상관관계는 더 약했습니다 (그림 3C,D). 웨스턴 블로팅 결과, 종양 조직에서 METTL3의 발현량이 더 높음이 추가로 확인되었습니다 (그림 3E). 이러한 분석은 직접적인 조절이 아닌 공동 변동(co-variation)을 입증하는 것입니다.
METTL3 넉다운은 FOXD1 발현량과 LUSC 세포 표현형을 변화시킨다
qRT-PCR 및 웨스턴 블로팅을 통해 SK-MES-1 및 NCI-H226 세포에서 세 가지 METTL3 표적 소형 간섭 RNA(siRNA)를 스크리닝하였습니다(그림 4A,B). METTL3 넉다운은 전체적인 m6A 신호를 감소시켰습니다(그림 4C). FOXD1 과발현은 METTL3를 증가시키지 않으면서 FOXD1을 증가시켰으며(그림 4D), 4개 군 구제 실험을 통해 METTL3 넉다운 후 FOXD1 발현량이 감소하고 FOXD1 컨스트럭트에 의해 이것이 복구됨을 확인하였습니다(그림 4E,F). METTL3 넉다운은 세포 생존능과 이동성을 감소시키고 세포 사멸을 증가시켰으며, FOXD1 재발현은 이러한 변화를 부분적으로 상쇄하였습니다(그림 4G–I). 따라서 구제 실험 데이터는 배양 세포에서 FOXD1이 METTL3의 하위에서 작용한다는 점과 일치합니다.
METTL3 섭동은 FOXD1 RNA 및 단백질 안정성과 연관되어 있다
m6A mRNA 수식화가 pre-mRNA splicing, 번역, 핵-세포질 수출, 분해 및 splicing을 포함하여 mRNA 사이클의 다양한 측면을 조절한다는 증거가 늘어나고 있습니다19,20. SRAMP를 통해 FOXD1 RNA에서 m6A 모티프 후보를 확인했으며, m6A2Target에서는 H1299 세포 내에서 METTL3를 예측된 FOXD1 관련 writer로 목록화했습니다(그림 5A,B). 이러한 데이터베이스 출력 결과는 가설 생성 단계이며, LUSC 세포 내에서의 결합이나 부위 특이적 메틸화를 입증하는 것은 아닙니다. actinomycin D를 이용한 전사 차단 후, METTL3 녹다운 시 FOXD1 RNA가 대조군 세포보다 더 빠르게 감소했습니다(그림 5C). MG132 처리 시 METTL3 과발현 세포의 FOXD1 양이 MG132 처리 벡터 대조군보다 높았으나, 이러한 패턴은 CHX 처리 후에는 관찰되지 않았습니다(그림 5D,E). CHX 시간 경과 분석 결과, METTL3 녹다운 후 FOXD1 단백질의 소실 속도가 더 빨랐습니다(그림 5F). 종합적으로, 이러한 분석들은 METTL3와 관련된 FOXD1 RNA 및 단백질 안정성의 변화와 일치하지만, 수식화된 아데노신을 식별하거나 직접적인 결합을 입증하거나 m6A reader를 정의하지는 않습니다.
FOXD1 넉다운은 LUSC 제노그라프트 성장을 억제한다
FOXD1의 in vivo 기능을 테스트하기 위해, 대조군 및 FOXD1-knockdown SK-MES-1 세포를 누드 마우스(그룹당 n = 8)에 피하 이식하였습니다. 이식 1주일 후부터 20일 동안 4일마다 종양 크기를 측정하였으며, 접종 후 27일째에 종양을 수거하였습니다. 절제된 종양은 FOXD1-knockdown 그룹에서 더 작았으며(Figure 6A), 성장 곡선은 더 느리게 상승하였고(Figure 6B), 최종 무게 또한 더 낮았습니다(Figure 6C). 또한 knockdown 종양에서 FOXD1 및 Ki-67 염색이 감소하였습니다(Figure 6D). 이 실험들은 FOXD1 knockdown만을 평가한 것이며, METTL3 억제 효과를 in vivo에서 테스트한 것은 아닙니다.
종합적으로, FOXD1은 폐 편평 세포 암종 조직 및 세포에서 과발현되었으며 증식, 이동 및 이종 이식 성장을 지원했습니다. METTL3 넉다운은 전반적인 m6A 수준을 감소시키고 FOXD1 발현을 저하시키며 악성 세포 표현형을 손상시킨 반면, FOXD1의 재발현은 이러한 효과를 부분적으로 반전시켰습니다. 안정성 분석 결과는 METTL3 관련 FOXD1의 전사 후 조절을 뒷받침하지만, 직접적인 부위 특이적 메틸화나 전체 경로의 in vivo 구조(rescue)를 입증하지는 않았습니다. 연구 설계는 그림 7에 요약되어 있습니다.
데이터 가용성:
본 연구에서 분석된 모든 데이터는 논문과 그림에 포함되어 있습니다. 보고된 요약 데이터의 근거가 되는 비식별 수치 데이터는 기관의 관리 지침 및 참여자 보호 요건에 따라, 합당한 요청이 있을 경우 교신 저자를 통해 제공받을 수 있습니다. 시뮬레이션 파일이나 맞춤형 분석 코드는 사용되지 않았습니다.
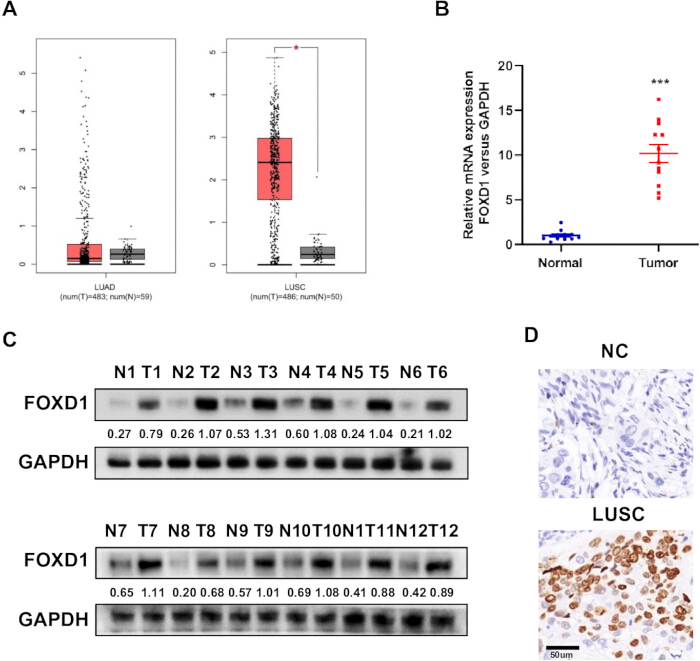
그림 1: 인간 폐암 샘플에서의 FOXD1 발현. (A) 폐선암(LUAD) 및 폐편평세포암(LUSC)과 정상 폐 샘플 간의 FOXD1 전사체 풍부도를 GEPIA로 비교한 결과. (B) 12쌍의 LUSC 및 인접 비종양 조직에서의 FOXD1 전사체 풍부도. (C) 동일한 쌍 조직에서의 FOXD1 단백질 풍부도. (D) 대표적인 FOXD1 면역조직화학 염색 결과. 인간 조직 n = 12쌍; in vitro 방식의 기술적 반복은 환자 수준의 n 값을 변경하지 않음. 패널 D의 스케일 바 = 50 µm. ***P < 0.001. 여기에서 이 그림의 더 큰 버전을 확인하십시오.
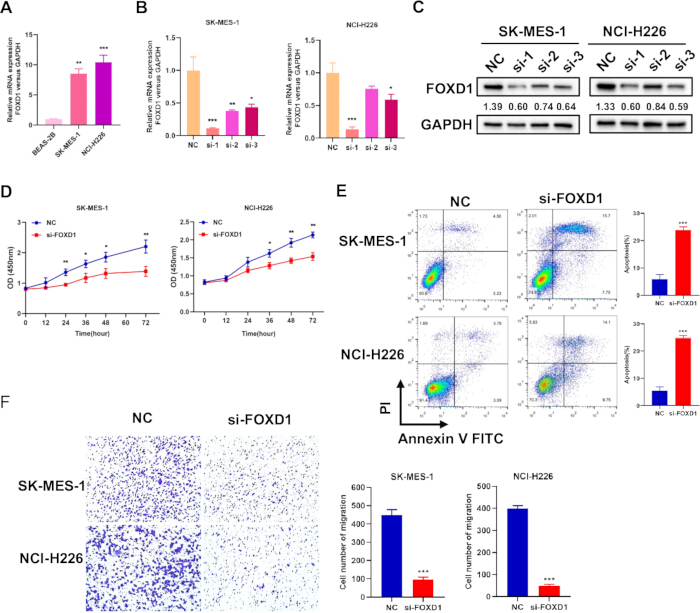
그림 2: SK-MES-1 및 NCI-H226 세포에서 FOXD1 넉다운의 효과. (A) BEAS-2B, SK-MES-1 및 NCI-H226 세포에서의 FOXD1 전사체 풍부도. (B) transfection 48시간 후 세 가지 FOXD1 표적 소형 간섭 RNA(siRNA)의 qRT-PCR 스크리닝. (C) 동일한 세 가지 FOXD1 표적 소형 간섭 RNA의 Western-blot 스크리닝. (D) FOXD1 넉다운 후 Cell counting kit-8 분석. (E) 48시간 시점의 Annexin V–fluorescein isothiocyanate/propidium iodide 세포 사멸 분석. (F) transfection된 세포를 seeding한 24시간 후에 측정한 Transwell 이동; 보관된 시야 이미지는 캘리브레이션 메타데이터를 사용할 수 없으므로 사후 스케일 바 없이 제시되었습니다. 세 번의 독립적인 생물학적 실험이 수행되었습니다. *P < 0.05; **P < 0.01; ***P < 0.001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
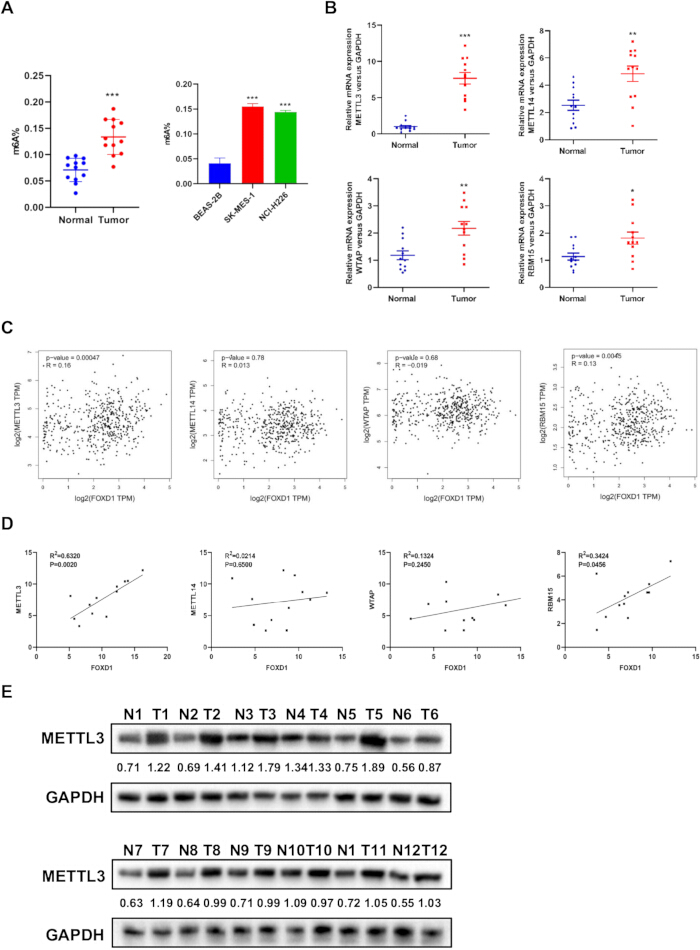
그림 3: 전신 N6-methyladenosine 및 METTL3와 FOXD1의 연관성. (A) 쌍을 이룬 조직 및 BEAS-2B, SK-MES-1, NCI-H226 세포에서의 전신 m6A 신호. (B) 12쌍의 LUSC 및 인접 조직에서의 METTL3, METTL14, WTAP, RBM15 전사체. (C) FOXD1과 각 writer 간의 GEPIA 상관관계. (D) 12개의 LUSC 종양 내 FOXD1과 writer 전사체 간의 상관관계. (E) 쌍을 이룬 LUSC 및 인접 조직에서의 METTL3 단백질. 인체 조직 n = 12쌍; 세포 분석은 3회의 독립적인 생물학적 실험을 나타냄. *P < 0.05; **P < 0.01; ***P < 0.001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
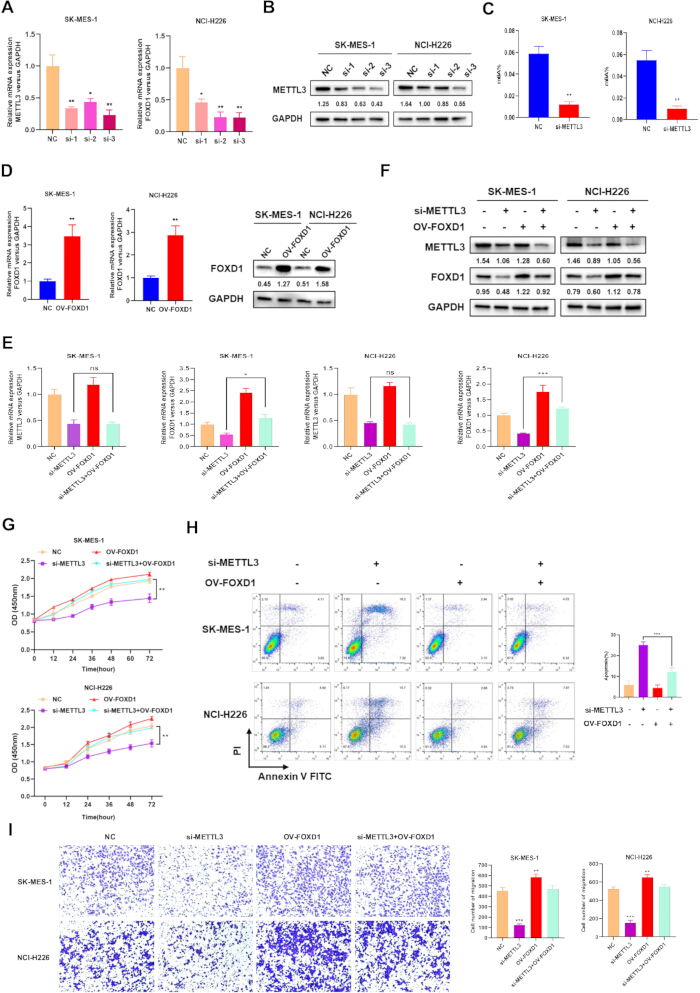
그림 4: METTL3 넉다운, FOXD1 구조, 그리고 LUSC 세포 표현형. (A) 형질전환 48시간 후 세 가지 METTL3 표적 소간섭 RNA(siRNA)에 대한 qRT-PCR 스크리닝. (B) 동일한 세 가지 METTL3 표적 소간섭 RNA에 대한 웨스턴 블롯 스크리닝. (C) METTL3 넉다운 후의 전체 m6A 신호. (D) FOXD1 과발현 후의 FOXD1 전사체 및 단백질 풍부도. (E) qRT-PCR로 측정한 대조군, si-METTL3, ov-FOXD1, 그리고 si-METTL3 + ov-FOXD1 병합 조건에서의 METTL3 및 FOXD1 전사체 풍부도. (F) 웨스턴 블롯으로 측정한 동일한 구조 그룹에서의 METTL3 및 FOXD1 단백질 풍부도. (G) Cell Counting Kit-8 분석. (H) 유세포 분석을 통한 세포 사멸 측정. (I) Transwell 이동 분석. 세 번의 독립적인 생물학적 실험이 수행되었다. 웨스턴 블롯 밴드 아래의 숫자는 정규화된 표적 단백질/GAPDH 비율을 나타낸다. ns, 유의성 없음; *P < 0.05; **P < 0.01; ***P < 0.001. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
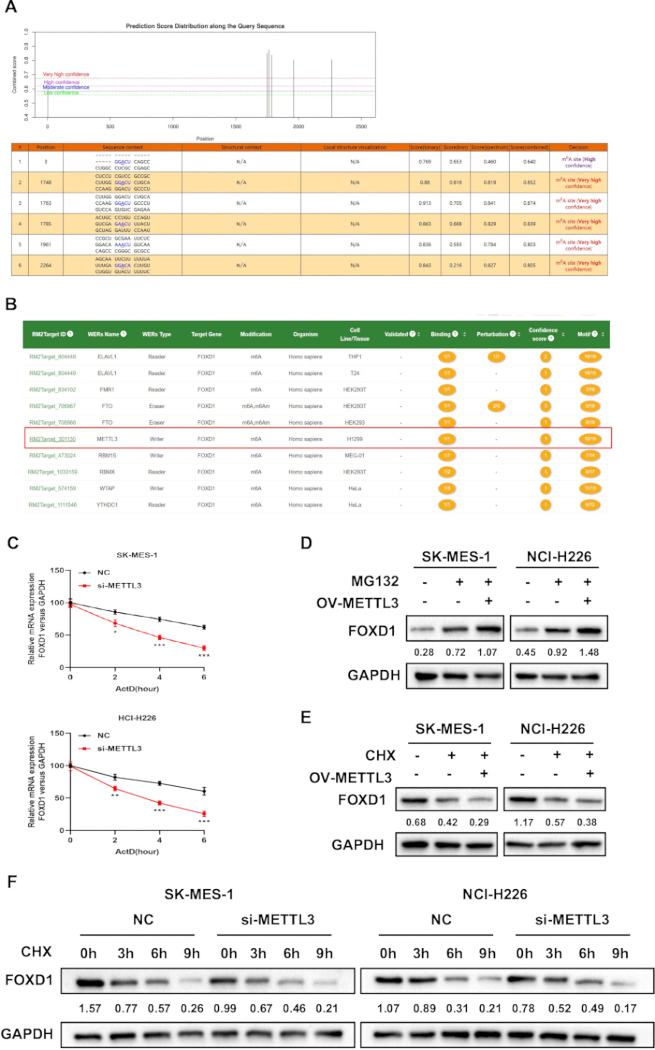
그림 5: METTL3는 FOXD1 전사체 및 단백질 조절과 관련이 있다. (A) FOXD1 전사체 내의 SRAMP 예측 N6-methyladenosine 부위. (B) FOXD1과 관련된 후보 writer로 METTL3를 식별한 m6A2Target 예측. (C) 음성 대조군 및 METTL3-knockdown 세포에서 5 µg/mL의 actinomycin D 처리 후 0 h, 2 h, 4 h, 6 h에서의 상대적인 FOXD1 mRNA 양. (D) 처리하지 않은 vector-control 세포, MG132 처리 vector-control 세포 및 MG132 처리 METTL3-과발현 세포에서의 FOXD1 단백질 양 (10 µM MG132). (E) 처리하지 않은 vector-control 세포, CHX 처리 vector-control 세포 및 CHX 처리 METTL3-과발현 세포에서의 FOXD1 단백질 양 (20 µM CHX). (F) 음성 대조군 및 METTL3-knockdown 세포에서 20 µM의 CHX를 0 h, 3 h, 6 h, 9 h 동안 처리한 후의 FOXD1 단백질 발현. GAPDH를 로딩 대조군으로 사용하였다. 세포 실험은 세 번의 독립적인 생물학적 반복 실험으로 수행되었다. 표시된 블롯은 대표적인 결과이며, 밴드 아래의 숫자는 정규화된 FOXD1/GAPDH 비율을 나타낸다. *P < 0.05; **P < 0.01; ***P < 0.001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
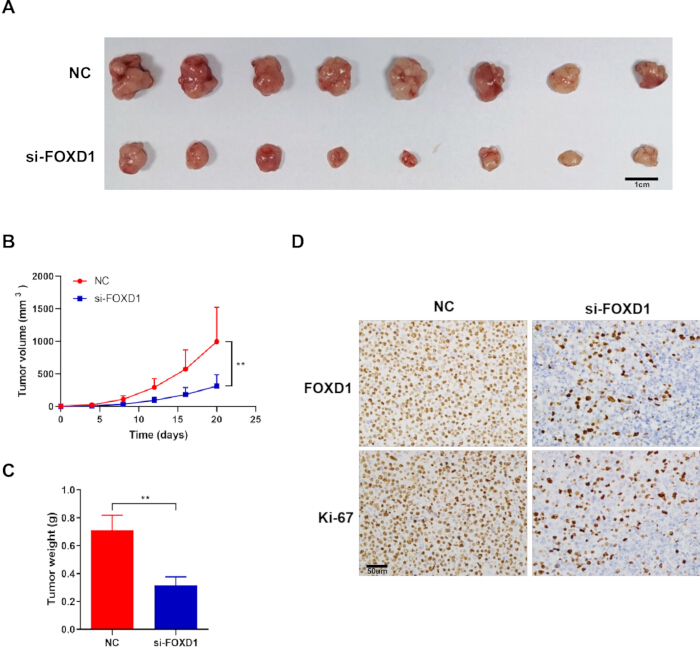
그림 6: FOXD1 넉다운에 의한 SK-MES-1 이종이식 성장 억제. (A) 음성 대조군 및 FOXD1 넉다운 군에서 적출한 종양; 스케일 바 = 1 cm. (B) 이식 1주일 후부터 20일 동안 4일마다 측정한 종양 성장 곡선이며, 접종 후 27일에 수집함. (C) 수집 시 종양 무게. (D) 이종이식 조직 내 FOXD1 및 Ki-67 면역조직화학 염색의 대표 이미지; 스케일 바 = 50 µm. n = 군당 마우스 8마리; **P < 0.01. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
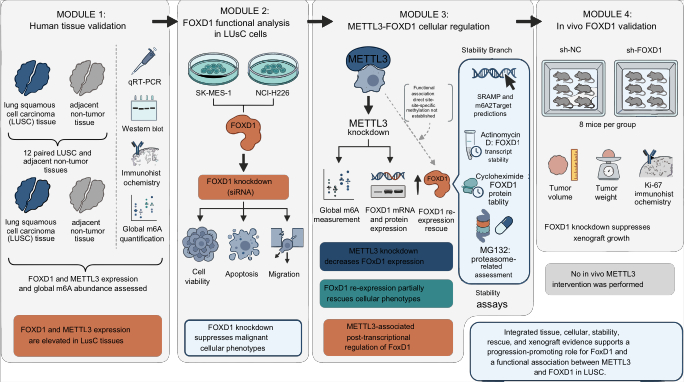
그림 7전체 연구 설계 및 증거 경계쌍을 이룬 LUSC 조직(n = 12쌍)과 세포주를 사용하여 FOXD1, METTL3 및 전반적인 m6A 프로파일링을 수행하였으며, 유전자 섭동 및 회복 후 생존력, 세포 사멸, 이동 및 안정성 분석을 실시하였다. FOXD1-넉다운 제노그라프트 모델(그룹당 쥐 n = 8마리)을 20일 동안 모니터링하였다. 도식은 세포 기반의 METTL3 증거와 FOXD1 특이적 증거를 구분하여 나타낸다. 생체 내 증거를 제공하고 직접적인 결합, 부위 특이적 m6A, 판독 단백질(reader)의 정체 및 생체 내(in vivo) METTL3 활성이 검증되지 않음. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
| 유전자 | 방향 | 서열 (5′–3′) |
| FOXD1 | 전진 | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | 역전 | CGGAATCGGACGCAAGTCTT |
| GAPDH | 서문 | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | 역전 | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | 전방으로 | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | 역전 | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | 전방으로 | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | 역전 | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | 서문 | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | 역전 | CACTTAAAACACCGGCATTGG |
| WTAP | 서문 | GCAACAACAGCAGGAGTCTGCA |
| WTAP | 역전 | CTGCTGGACTTGCTTGAGGTAC |
표 1: 정량적 역전사 중합효소 연쇄 반응 프라이머 서열. 서열은 5′–3′ 방향으로 표시됨.
토론
본 워크플로우는 쌍을 이룬 조직, 두 개의 세포주 및 제노그라프트 모델을 통해 LUSC에서 FOXD1의 역할을 뒷받침합니다. FOXD1은 종양 표본과 LUSC 세포에서 더 높게 나타났으며, FOXD1의 고갈은 세포 생존능과 이동성을 감소시키는 동시에 세포 사멸을 증가시켰습니다. 이러한 결과는 여러 암종에서 FOXD1을 성장, 침습, 치료 저항성 및 불량한 예후와 연결 지은 보고들과 일치합니다 10,11,12,13,21,22,23,24,25,26,27,28. 또한, 세포 기반 표현형을 FOXD1 녹다운 제노그라프트 실험과 연결함으로써 이전의 LUSC 관찰 결과를 확장하였습니다.
쌍을 이룬 조직 및 세포 분석을 통해 FOXD1 풍부도와 METTL3 및 전반적인 m6A 사이의 연관성이 더욱 명확해졌습니다. 12쌍의 종양 샘플에서 4개의 writer 유전자가 증가했으나, METTL3가 FOXD1과 가장 강한 양의 상관관계를 보였습니다. 배양 세포에서 METTL3 결핍은 전반적인 m6A와 FOXD1 풍부도를 감소시켰으며, FOXD1을 재발현시키자 이와 관련된 생존능, 세포 사멸 및 이동 표현형이 부분적으로 회복되었습니다. 이러한 데이터는 테스트된 세포에서 METTL3-FOXD1의 기능적 관계를 뒷받침하며, 이는 악성 표현형에 미치는 m6A 조절의 광범위한 영향과 일치합니다29,30,31,32,33,34,35,36.
재현성을 위해 몇 가지 프로토콜 포인트가 중요합니다. 기능 분석 전 각 세포주에서 넉다운 효율을 확인해야 하며, 구조체를 METTL3 과발현으로 해석하지 않고 FOXD1 복구를 확인하는 레스큐 조건을 검증해야 합니다. Actinomycin D, CHX 및 MG132 처리는 프로토콜에 명시된 농도와 샘플링 시간을 사용해야 합니다. Transwell 분석에서는 세포 밀도, 혈청 구배 및 일관된 이미징 영역을 제어해야 합니다. 연구자가 워크플로우를 조정하는 경우, 장기간의 in vivo 실험에는 안정적인 short hairpin RNA 또는 게놈 편집이 더 적합할 수 있으나, 이러한 대안들은 독립적인 검증이 필요합니다.
본 연구에는 몇 가지 한계점이 있습니다. 인간 코호트는 12쌍의 샘플로 구성되었으며 결과 모델링을 위해 설계되지 않았습니다. 선택된 하나의 소간섭 RNA(small interfering RNA)만이 기능 분석에 사용되었으므로, 서열 독립적인 오프타겟 검증이 이루어지지 않았습니다. 웨스턴 블롯 해석은 그림에 표시된 정규화된 값으로 제한되며, 사후 추론 검정은 수행되지 않았습니다. SRAMP 및 m6A2Target 예측, 전역 m6A 측정 및 안정성 분석은 RNA 면역침전, 메틸화 RNA 면역침전, 부위 특이적 돌연변이 유발 또는 리더 특이적 구조(rescue) 실험을 대체할 수 없습니다. METTL3가 in vivo에서 섭동되지 않았으므로, 이종이식 데이터로 in vivo METTL3 주장을 뒷받침할 수 없습니다.
향후 연구에서는 약물학적 METTL3 억제를 테스트하고, FOXD1 관련 m6A 부위와 직접 결합을 매핑하며, 관련 reader 단백질을 식별하고, in vivo에서 구조 전략을 반복해야 한다. 또한 임상 결과를 평가하기 위해 독립적으로 주석이 달린 더 큰 코호트가 필요할 것이다. 현재의 범위 내에서, 본 연구는 FOXD1이 LUSC의 기능적 조절자임을 뒷받침하며 METTL3가 FOXD1의 양에 영향을 미친다는 세포 기반 증거를 제공하지만, 완전한 METTL3-m6A-reader-FOXD1 경로를 확립하는 것은 아니다.
공개 사항
저자들은 이해 상충이 없음을 선언합니다.
저자 기여:
D.A.와 Q.D.는 데이터 수집 및 임상 정보 획득에 기여하였다. K.W.와 S.F.는 분자 생물학 실험과 데이터 분석을 수행하였다. L.G.는 연구 설계 및 데이터 해석에 참여하였다. H.Z.는 통계 분석을 수행하고 데이터 검증을 도왔다. Y.S.는 동물 실험과 면역조직화학 분석을 수행하였다. Q.P.는 이동능 분석과 실험 자원 확보에 기여하였다. G.L.은 연구를 구상 및 감독하고 원고를 작성하였다. 모든 저자는 원고를 검토, 수정 및 승인하였다.
감사의 글
저자들은 정량적 중합효소 연쇄 반응(quantitative polymerase chain reaction)과 웨스턴 블로팅(western blotting)의 기술적 지원을 각각 제공한 Zhe Tang과 Yan Zhang, 그리고 세포 생존율 및 세포 사멸 분석(apoptosis assays)을 도와준 Yang Li에게 감사를 표합니다. 본 연구는 티베트 자치구 자연과학 재단(Natural Science Foundation of Tibet Autonomous Region, No. XZ202001ZR0040G)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 7500 Fast 실시간 PCR 시스템 | Applied Biosystems | 7500 Fast | qRT-PCR (RRID: SCR_018051) |
| 액티노마이신 D | Sigma-Aldrich | SBR00013 | RNA 안정성 분석, 5 µg/mL |
| Annexin V-FITC/PI 세포사멸 분석 키트 | BD Biosciences | 556547 | 유세포 분석을 통한 세포사멸 분석 |
| 흉선결핍 BALB/c 누드 마우스 | 해당 없음 | 해당 사항 없음 | 피하 이종이식편 |
| BEAS-2B | 중국과학원 세포은행 | 세포주: HeLa 원천: 인간 조직: 자궁경부 질병: 자궁경부암 특성: 암성 성별: 여성 성인: 예 인종: 백인 특징: HPV18 양성 전달: 통과 배양 배양 매질: DMEM 또는 MEM, 10% FBS 보충 배양 조건: 37°C, 5% CO2 세포 형태: 상피세포양 세포주 확인: STR 분석, HPV 분석 교차 오염: 없음 검증: 예 제공자: ATCC, ECACC 및 기타 세포 은행 용도: 암 연구, 바이러스 연구, 세포 생물학, 약물 스크리닝 참고 문헌: HeLa 세포의 기원과 특성에 관한 다수 논문 | 비종양성 기관지 상피 참조; RRID: CVCL_0168 |
| 세포 계수 키트-8 | Beyotime | C0037 | 세포 생존율 |
| 크리스탈 바이올렛 | 해당 사항 없음 | 해당 없음 | Transwell 염색, 10분 |
| 사이클로헥시마이드 | MedChemExpress | HY-12320 | 단백질 안정성 분석, 20 µM |
| DAB 기질 키트 | 해당 없음 | 해당 사항 없음 | 면역조직화학 염색 시각화 |
| Dulbecco's modified Eagle medium | Gibco | 11995065 | 세포 배양 |
| 강화 화학발광 시약 | Thermo Fisher Scientific | A38556 | 웨스턴 블롯 검출 |
| 소태아혈청 | Gibco | 10091148 | 세포 배양, 10% |
| 유세포 분석기 | 해당 사항 없음 | 제공된 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | 세포사멸 측정 |
| FOXD1 항체 | Thermo Fisher Scientific | PA5-27142 | 웨스턴 블롯, 1:1,000; 면역조직화학염색 |
| FOXD1 과발현 구축물 | 해당 사항 없음 | 해당 사항 없음 | FOXD1 구조 |
| GAPDH 항체 | 세포 신호 전달 기술 | 5174 | Western-blot 로딩 컨트롤, 1:2,000 (RRID: AB_10622025) |
| GEPIA | 북경대학교 | http://gepia.cancer-pku.cn/ | 발현 및 상관관계 쿼리; RRID: SCR_018294 |
| GraphPad Prism | GraphPad 소프트웨어 | 버전 8 | 통계 분석; RRID: SCR_002798 |
| horseradish peroxidase-접합 항-토끼 면역글로불린 G | 해당 사항 없음 | 해당 없음 | 웨스턴 블롯, 상온에서 1시간 |
| 이미지제이(ImageJ) | 미국 국립보건원 | https://imagej.nih.gov/ij/ | 이동-이미지 정량화; RRID: SCR_003070 |
| Ki-67 항체 | 해당 없음 | 해당 사항 없음 | 이종이식 조직 면역화학염색 |
| m6A2Target | 웹 리소스 | http://m6a2target.canceromics.org/ | 예측된 m6A 조절자-표적 연관성 |
| Methyltransferase-like 3 항체 | Proteintech | 15073-1-AP | 웨스턴 블롯, 1:1,000; RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | 프로테아좀 억제 분석, 10 µM |
| N6-메틸아데노신 비색 분석법 | Epigentek | P-9005-96 | 전역적 m6A 측정 |
| NCI-H226 | 중국과학원 세포은행 | 세포주 정보: CVCL_1544 세포주 이름: HeLa 다른 이름: HeLa, HeLa-CD10, HeLa-CD10-S 종: Homo sapiens (인간) 조직: 자궁경부 질병: 자궁경부암 배양 상태: 연속 배양 세포주 특성 및 상세 정보: 이 세포주는 자궁경부암 환자로부터 유래한 HeLa 세포의 변형된 버전으로, CD10 (중성 내피펩티다아제)을 발현하도록 설계되었습니다. 배양 조건: 권장 배지: DMEM (Dulbecco's Modified Eagle Medium) 보충제: 10% 소태아혈청 (FBS) 배양 온도: 37°C 분위기: 5% $\text{CO}_2$ 키워드: 자궁경부암, 인간 세포주, CD10 발현, 암 연구, 세포 배양 | LUSC 세포 모델; RRID: CVCL_1544 |
| Olympus 현미경 | Olympus | 모델이 기록되지 않았음 | 트랜스웰 이미징 |
| 페니실린-스트렙토마이신 | Gibco | 10378016 | 세포 배양, 1% |
| 폴리비닐리덴 플루오라이드 막 | Merck | IPVH00010 | 웨스턴 블롯 전이 |
| PrimeScript 역전사 시약 키트 | Takara | RR037A | 상보적 DNA 합성 |
| 통계 계산을 위한 R 프로젝트 | R Foundation | https://www.r-project.org/ | 통계 분석; RRID: SCR_001905 |
| 방사면역침전 분석 용해 완충액 | Beyotime | P0013B | 단백질 추출 |
| RNAiso Plus | Takara | 9108 | RNA 추출 |
| siRNA 시약 | 해당 사항 없음 | 해당 없음 | FOXD1 및 METTL3 넉다운; siRNA-1 선택됨 |
| SK-MES-1 | 중국과학원 세포은행 | https://www.cellosaurus.org/CVCL_0630 | LUSC 세포 및 제노그라프트 모델; RRID: CVCL_0630 |
| SRAMP | 웹 리소스 | http://www.cuilab.cn/sramp | 후보 FOXD1 m6A-부위 예측 |
| TB Green PCR 마스터 믹스 | Takara | RR820A | 실시간 정량 PCR |
| 형질전환 시약 | 해당 사항 없음 | 해당 사항 없음 | siRNA 및 플라스미드 전달 |
| 트랜스웰 인서트 | 해당 사항 없음 | 해당 사항 없음 | 이동 분석법 |
참고문헌
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.