우리는 섭취 분석과 약리학적 섭동을 결합하여, 거의 등방성인 초고해상도로 온전한 Drosophila 날개 성충판 내 막 단백질 수송을 시각화하는 3차원 자극 방출 고갈(3D STED) 워크플로우를 제시합니다.
이 논문에서
요약
초록
초파리 Drosophila melanogaster는 보존된 발달 및 세포 신호 전달 경로를 in vivo에서 연구하는 데 널리 사용됩니다. Wnt 신호를 포함한 많은 신호 전달 경로는 엄격하게 조절되는 분비, 내포 작용 및 세포 내 수송 과정에 의존합니다. 그러나 날개 성충원반(wing imaginal discs)과 같이 온전한 상피 조직 내에서 막 결합 단백질의 역동성을 시각화하는 것은 세포의 크기가 작고 원주형 조직이 조밀하게 구성되어 있어 여전히 어려운 과제로 남아 있습니다. 본 연구에서는 3차원 자극 방출 고갈(3D STED) 나노현미경 기술을 Drosophila 날개 성충원반의 섭취 분석(Uptake assay) 및 약리학적 섭동과 결합한 프로토콜을 제시합니다. 이 워크플로우를 통해 온전한 조직 구조 내에서 막 결합 단백질의 역동성을 거의 등방성(near-isotropic) 해상도로 초고해상도 이미징할 수 있습니다. Wingless 분비 세포를 예로 들어, 정단막(apical membrane)에서의 Wingless (Wg) 위치 및 수송을 시각화합니다. 동적인 수송 과정을 분석하기 위해, 이미징 워크플로우를 특정 시간 창 내에서 분비 및 재내포화되는 단백질을 선택적으로 표지하는 섭취 분석과 결합합니다. 화학적 억제제 및 3D STED 나노현미경 시각화와 결합된 이 접근 방식은 막 수송 역동성의 기능적 분석을 가능하게 합니다. 종합적으로, 이 워크플로우는 Drosophila의 전체 조직 샘플에서 세포 소기관 수준의 해상도로 막 구성과 단백질 수송을 연구할 수 있는 다각적인 프레임워크를 제공합니다.
서론
초파리 Drosophila melanogaster는 발달 생물학, 진화, 행동 및 암과 기타 인간 질병 연구를 포함한 생의학 연구에서 널리 사용되는 모델 생물입니다1,2. 많은 근본적인 세포 신호 전달 경로는 Drosophila와 척추동물 사이에서 매우 잘 보존되어 있어, 이 모델 시스템은 in vivo에서 보존된 생물학적 메커니즘을 조사하는 데 특히 유용합니다.
본 프로토콜에서는 Wingless (Wg)/Wnt 신호 전달 경로 내의 막 관련 역학을 연구하기 위한 모델 시스템으로 Drosophila 날개 성충원반(wing imaginal disc)을 사용합니다. 많은 발달 신호 경로들이 신호 분자의 엄격하게 조절되는 분비, 막 국소화, 내포 작용 및 세포 내 수송에 의존합니다3. 날개 성충원반의 배복측(DV) 경계에서도 마찬가지로, Wg는 생성 세포의 정단막에서 분비되어 글라이피칸(glypicans)과의 상호작용을 통해 인접한 수신 세포로 운송됩니다4,5,6,7. 수신 세포에서 Wg는 Frizzled 수용체와 결합하여 하위 Wnt 신호를 활성화합니다. DV 경계 밖으로 운송되는 Wg 풀 외에도, Wg의 일부는 생성 세포에 의해 다시 내부로 유입되어 엔도좀 시스템을 통해 서로 다른 세포 내 목적지로 수송됩니다8,9,10. 따라서 DV 경계의 Wg 생성 세포는 막 수송, 분비 역학 및 신호 활성을 조절하는 세포 기전을 in vivo에서 조사하기 위한 훌륭한 모델을 제공합니다.
하지만 성충 원반 상피 세포의 매우 강한 원주형 구조로 인해 시각화가 어려우며, 개별 소낭을 분해하기 위해서는 일반적인 공초점 현미경보다 더 높고 등방성인 해상도가 필요합니다. 이러한 한계를 극복하기 위해, 우리는 온전한 Drosophila 조직의 초고해상도 나노스코피를 위한 조직 준비, 염색 및 이미징 조건을 최적화했습니다. 구체적으로, 우리는 상피의 정단-기저축(apical-basal axis)을 따라 막 관련 단백질의 국소화를 직교 시각화할 수 있는 3차원 자극 방출 고갈 (3D STED) 나노스코피 워크플로우를 구축했습니다11,12. 3D STED는 일반적인 공초점 현미경에 비해 개선된 축 방향 해상도를 제공하여 밀집된 조직 내의 미세한 세포 내 구조를 시각화할 수 있으므로 이 응용 분야에 특히 적합합니다13,14. 이 접근 방식을 사용하여 날개 성충 원반의 DV 경계에서 Wg를 분비하는 세포의 정단 막 영역을 분석하였으며, Discs large 1 (Dlg1) 또는 Evenness interrupted/Wntless (Evi/Wls)와 같은 다른 막 관련 단백질과 함께 정단 막에 존재하는 Wg를 검출했습니다.
단백질 이동 역학을 더욱 상세히 조사하기 위해, 본 이미징 워크플로우를 이전에 확립된 섭취 분석법(uptake assay)15과 결합하였다. 이 분석법은 정해진 시간 범위 내에서 분비된 후 다시 내부로 유입된 단백질을 선택적으로 검출할 수 있게 하여, 세포막을 통해 이동하는 단백질의 동적 풀을 시각화한다. 활용도를 높이기 위해, 섭취 분석법을 약리학적 섭동과 결합하여 특정 세포 프로세스가 막 이동 역학에 어떻게 영향을 미치는지 분석하였다. 이러한 접근법들을 종합하면, 고해상도로 실제 조직 환경 내에서 단백질 이동, 분비 및 신호 전달 메커니즘을 연구할 수 있는 강력한 프레임워크가 제공된다.
또한, 본 프로토콜은 표준 면역형광 염색 프로토콜을 포함하여 광범위한 염색 방식과 호환됩니다. 형광 염료의 도입 또한 가능하여, 시각화할 수 있는 세포 구조와 분자 표적의 범위를 더욱 확장할 수 있습니다. 모든 경우에 형광체는 STED 나노현미경과의 호환성을 고려하여 선택해야 합니다. 본 프로토콜은 2색(적색 및 원적색) 3D STED 이미징에 중점을 두고 있지만, 작업 흐름을 추가적인 형광체 및 대체 이미징 구성에 맞게 쉽게 조정할 수 있으므로 다양한 실험적 응용 분야에 유연하게 적용할 수 있습니다.
종합적으로, 본 프로토콜은 온전한 Drosophila 조직 내에서 STED 초고해상도 나노현미경법을 기능적 섭동 접근법과 결합하기 위한 다목적 프레임워크를 구축합니다. 이 워크플로우는 복잡한 조직 환경 내에서 하위 세포 수준의 해상도로 막 조직, 단백질 수송 및 신호 전달 역학을 조사하는 향후 연구의 토대를 제공합니다.
프로토콜
1. 복합 ex vivo 억제제 처리 및 흡수 분석
참고: 사용된 화학 물질 및 재료에 대한 자세한 정보는 재료 표를 참조하십시오.
- 배지 및 용액 조제
- SchM+ 배지를 준비합니다.
- Schneider 곤충 배지에 4% 소태아혈청(FBS)을 첨가하고 잘 혼합한다.
참고: SchM+ 배지는 실험 당일에 새로 조제하여 사용해야 합니다.
- Schneider 곤충 배지에 4% 소태아혈청(FBS)을 첨가하고 잘 혼합한다.
- 준비 1× PBS-T.
- 1에 0.1% Triton X-100을 첨가하십시오.× 인산완충식염수(PBS)를 가하고 잘 혼합합니다.
- 화학 화합물 용액을 조제하십시오.
주의: 다음의 많은 화학 화합물들은 세포 독성이 있는 것으로 간주되므로, 적절한 장비를 갖춘 흄 후드 내에서 주의하여 취급하고 폐기물을 적절히 처리하는 것이 필수적입니다.- Dynasor2-24: 제조사의 지침에 따라 Dynasor2-24(Dyngo-4a로도 알려짐)를 디메틸 설폭사이드(DMSO)에 용해하여 10 mM 스톡 용액을 준비한다. 처리를 위해, 스톡 용액을 SchM+로 1:1000 또는 1:2000 비율로 희석하여 다음과 같은 최종 농도를 얻는다. 10 µM 또는 5 µM각각.
- DMSO 대조군: DMSO를 SchM+에 1:1000 비율로 희석하여 사용한다. 200 µL 각 실험의 음성 대조군으로 사용합니다.
- 흡수 분석(uptake assay)을 위한 산성 완충액을 준비하십시오.
- 증류수(dH2O)에 0.1 M 글리신(Glycine) 용액을 준비하십시오.2O.
- 37% HCl(염산)을 사용하여 pH를 3.5로 조정하십시오.
- SchM+ 배지를 준비합니다.
- 시료 수집
- 초파리를 다음 조건에서 유지하십시오. 25 °C 12시간 명기/12시간 암기 주기로.
- 포셉을 사용하여 바이알에서 L3(3령) 유충을 수집한 후, SchM+가 채워진 12-well 유리 염색 플레이트의 각 웰에 넣습니다.
참고: 각 실험 반복 시마다 항상 대조군 샘플을 포함할 수 있도록 충분한 양의 조직을 준비하십시오. - 유충의 후단부를 절개하여 반전시킵니다.
- SchM+ 용액에 조직을 침지시킨 상태를 유지하면서, 뒤집힌 유충 조직에서 장과 지방체를 최대한 철저하게 제거하십시오.
- 그 다음, 조직을 SchM+가 들어 있는 0.2 mL PCR 튜브로 옮깁니다.
참고: 조직이 완전히 잠기고 자유롭게 움직일 수 있도록 중합효소 연쇄 반응(PCR) 튜브당 6~7마리의 뒤집힌 유충만을 넣습니다.
주의: 염색 과정 중 아티팩트(artifact)가 발생하는 것을 방지하기 위해 튜브에 조직을 과하게 채우지 않도록 주의하십시오. 다음을 참조하십시오. 재료 목록 본 연구에 사용된 화학 물질 및 재료에 관한 자세한 정보입니다.
- 체외(Ex vivo) 억제제 처리 및 섭취 분석
- 샘플에서 SchM+ 배지를 제거하십시오.
- 필요에 따라 미리 준비한 화합물 용액을 추가하십시오. 예제: 200 µL 의 5 µM Dynasor2-24 용액.
주의: 해당 화학 화합물들은 세포 독성이 있는 것으로 간주되므로, 적절한 장비와 폐기물 처리 절차를 갖춘 흄 후드 내에서 주의 깊게 취급하는 것이 필수적입니다. - 추가 200 µL 음성 대조군을 나타내는 대조군 시료에 DMSO (1:1000) 용액을 첨가합니다.
- 섭취 분석을 위해 (Witte et al., 202115), 약물 용액에 1차 항체를 첨가한다. Wg 검출을 위해 anti-Wg 항체는 1:20 희석 배율로 사용하고, 녹색 형광 단백질(GFP) 태그 단백질 검출을 위해 anti-GFP 항체는 1:40 희석 배율로 사용한다.
- 시료를 실온(RT)의 암소에서 90분 동안 배양하십시오.
참고: 섭취 분석(Uptake assay)은 선택 사항이며, 필요하지 않은 경우 프로토콜에서 쉽게 제외할 수 있습니다. 또한, 실험 목적에 따라 다른 화학 화합물을 사용할 수 있습니다. 화합물의 농도를 적정하여 각 개별 응용 분야에 최적의 농도를 찾는 것을 권장합니다. 다음을 참조하십시오. 재료 목록 본 연구에 사용된 화학 물질 및 재료에 관한 자세한 정보입니다.
- 시료 고정
- 배양 시간이 지나면 즉시 1.3단계의 염색액을 제거하십시오.
- (선택 사항) 샘플을 다음으로 2회 세척합니다. 200 µL SchM+의
- 섭취 분석(uptake assay)의 1차 항체를 적절히 제거하기 위해, 실온(RT)에서 산성 완충액으로 조직을 5분 동안 세척하십시오.
- 빠르게 세척 3× SchM+와 함께 3분 동안 처리합니다.
- 4% 포름알데히드(formaldehyde)가 포함된 SchM+ 용액에서 실온(RT)으로 30분간 시료를 고정한다.
- 1차 항체 배양
참고: 섭취 분석(uptake assay)에 사용된 항체 외에 추가적인 1차 항체가 필요한 경우, 이 단계에서 항체를 처리하고 표준 면역조직화학 염색 절차에 따라 진행해야 합니다.- 1% 4% 정상 염소 혈청으로 조직을 블로킹합니다.× 완만한 교반 하에 상온에서 최소 30분 동안 PBS-T로 처리한다.
- 블로킹 용액을 제거하십시오.
- 1에 1차 항체 용액을 추가합니다.× 원하는 농도의 PBS (예: 1:200로 희석한 anti-wg, 1:50로 희석한 anti-dlg1 또는 1:200로 희석한 anti-GFP, 또는 기타 필요한 항체)
- 시료를 다음 조건에서 배양하십시오. 4 °C 완만한 교반 하에 하룻밤 동안 방치한다.
- (선택 사항) 완만한 흔들림을 유지하며 실온에서 최소 1.5시간 동안 1차 항체를 반응시킨다.
- 참고: 다음을 참조하십시오. 재료 표 본 연구에 사용된 화학 물질 및 재료에 관한 상세 정보는 다음과 같습니다.
- 2차 항체 배양
- 1차 항체 용액을 제거합니다.
참고: 1단계에서 사용한 1차 항체 용액을 사용함× PBS는 신선한 1.5 mL 반응 튜브에 넣어 다음의 온도에서 보관할 경우 여러 번 재사용할 수 있습니다. 4 °C. - 조직 세척 3× 1분당 10분× 완만한 진동 하에 PBS-T로 세척합니다.
원하는 2차 항체를 1:200으로 희석하여 1(단위)에 추가하십시오.× 1:2000 비율로 Hoechst33342 핵 대조 염색액을 첨가한 PBS-T. STED용 2차 항체로는 chicken anti-mouse Alexa Fluor 594, goat anti-rabbit Alexa Fluor 594, goat anti-rabbit STAR635P 및 goat anti-mouse STAR635P가 포함됩니다. 다음을 참조하십시오. 재료 목록 본 연구에 사용된 화학 물질 및 재료에 관한 상세 정보입니다. - 2차 항체에서 하룻밤 동안 배양하십시오. 4 °C (선택 사항: 상온에서 완만하게 흔들어주며 최소 1.5시간 동안 배양한다).
- 다음 날 조직을 3회 세척하십시오.× 1분당 10분× 완만한 교반 상태에서 PBS-T로 세척합니다. 이제 시료는 STED 이미징을 위한 마운팅 준비가 완료되었습니다. 전체 워크플로를 확인하십시오. 그림 1.
참고: 현미경 광학계는 일반적으로 다음을 위해 설계됩니다. 23 °C 다른 조건이 요구되지 않는 한 작동하며, 온도 안정성이 매우 중요합니다. 온도의 변동은 열 드리프트(thermal drift)를 유발하여 레이저 타이밍에 영향을 줄 수 있기 때문입니다. 20~의 안정적인 실내 온도가23 °C (≤ ±±1 °C (변동)이 권장됩니다)16., 21.5-22 °C 종종 현미경에서 발생하는 열을 보정합니다. 이미징을 시작하기 전 모든 현미경 구성 요소가 열평형 상태에 도달해야 합니다. 스테이지 탑 인큐베이터(Stage-top incubator)는 정확한 시료 온도 조절을 가능하게 하지만, 인클로저(enclosure)는 열을 가두어 드리프트를 증가시킬 수 있습니다. 능동 냉각은 안정성을 향상시킵니다. 본 연구에서는 맞춤 제작된 인큐베이터(EMBL Heidelberg)를 사용하여 21.5도의 온도를 유지하였습니다. ±± 0.05 °C열 드리프트를 최소화하여 안정적인 3D STED 성능을 보장합니다.
- 1차 항체 용액을 제거합니다.
2. 3D STED 초고해상도 나노현미경 관찰 및 이미징을 위한 시료 준비
- 장비 및 재료 준비:
- 현미경을 설정하십시오.
- 실험에 적합한 현미경을 사용하십시오. 본 실험에서는 Leica Stellaris 8 STED Falcon 현미경이 사용되었습니다.
- 적절한 대물렌즈를 사용하십시오. 본 실험에서는 HC PL APO 86x/1.20 W motCORR STED white 대물렌즈가 사용되었습니다.
- 적절한 이미징을 위해, 이미징 시작 최소 2시간 전에 현미경 장치 전체의 전원을 켜십시오(단계 1.6.4 이후의 참고 사항 참조).
- poly-L-lysine 코팅 플레이트를 준비하십시오.
- dH2O에 poly-L-lysine 0.6%, Photo Flo 0.002%가 포함된 poly-L-lysine 용액을 준비하십시오.2O. 용액을 소분하여 -80°C에서 장기 보관하십시오.20 °C해동 후, 다음의 온도에서 보관하십시오. 4 °C 최대 10회까지 재사용하십시오.
- 추가하십시오 200 µL 1.5H 유리 커버슬립 바닥에 poly-L-lysine 용액을 µ-디쉬 (∅35 mm)
- 디쉬를 건조를 위해 수직으로 기울여 배치하십시오.
- poly-L-lysine 용액이 완전히 건조된 후, 코팅 과정을 한 번 더 반복하십시오.
- 커버슬립 유리 바닥의 양측면에 매니큐어 스페이서를 조심스럽게 추가하십시오.
- 마운팅 후, 샘플을 1.5H 라운드(∅12 mm) 커버슬립(참조 그림 2).
- 현미경을 설정하십시오.
- 3D STED를 위한 마운팅 설정
- 참고: 3D STED 나노현미경(단계 2.2.12 이후의 참고 사항 참조)의 경우, STED 대물렌즈와 마운팅 매질 간의 굴절률을 일치시키는 것이 필수적입니다 (예: 수침 대물렌즈 및 1× PBS 마운팅 용액).
- 샘플을 1이 채워진 작은 페트리 접시에 넣으십시오.× 인산완충식염수
- 추가하십시오 15 µL 1 중의× 사전에 준비된 poly-L-lysine 코팅 디쉬 위에 PBS를 한 방울 떨어뜨립니다.
- 남은 유충 조직에서 날개 성체원판(wing imaginal discs)을 분리하여 다음의 곳에 넣으십시오. 15 µL 1× PBS 액적
- 날개 성충 원반(wing discs)이 코팅된 커버슬립에 부착되어 있는지 확인하고, 떠다니지 않도록 하십시오.
- 디스크를 강하게 누르지 마십시오. 가능한 한 부드럽게 커버슬립 쪽으로 가라앉도록 하십시오. 올바른 방향 설정을 위해, 날개 디스크의 peripodal membrane이 커버슬립을 향해 아래쪽으로 놓이도록 마운팅하십시오.
- 마운팅 후, 샘플을 1.5H 라운드(∅12 mm) 커버글라스.
- 시료가 눌리는 것을 방지하기 위해 커버슬립의 가장자리가 이전에 도포한 매니큐어 스페이서 위에 놓이도록 하십시오.
- 마운팅 매질의 증발을 방지하기 위해 커버 슬립의 모든 면을 매니큐어로 밀봉하십시오.
- 최종 이미징 전까지 배양 접시를 암소에 보관하십시오.
- 현미경 촬영 최소 30분 전에 시료를 배양 챔버에 넣어 시료의 온도를 현미경 배양 챔버의 온도와 맞추십시오.
- 시료의 움직임을 방지하기 위해, 압력 민감성 접착제(예: Blu Tack)를 사용하여 현미경 홀더 내의 디쉬를 고정하십시오.
참고: 2D STED 및 3D STED라는 용어는 해상도 향상의 유형을 나타내며, 단일 이미지 또는 z-스택의 획득 여부를 의미하는 것이 아닙니다.12,172D STED는 일반적으로 가로(x,y) 해상도만을 향상시키며, 보통 다음의 수준까지 개선합니다. <50 nm인 반면, 축 방향(z) 해상도는 공초점 현미경과 유사한 수준(~600 nm)으로 유지됩니다. 이 방식은 비교적 견고하며, 일반적으로 시료와 대물렌즈 침전 매질 사이의 굴절률 정합이 불완전하더라도 이를 허용합니다.123D STED는 수평 및 수직 해상도를 모두 향상시키며, 특히 z축 방향으로 매우 강력한 개선 효과를 보입니다. 형광체와 STED 고갈 조건을 최적화함으로써, 생물학적 시료에서 약 100-120 nm의 거의 등방성인 해상도를 달성할 수 있습니다.17,18그러나 3D STED 고갈 패턴은 구면 수차에 매우 민감합니다. 따라서 성공적인 이미징을 위해서는 세심한 굴절률 매칭과 더불어, 대물렌즈 보정 칼라를 실제 커버슬립 두께에 맞게 정밀하게 조정하는 과정이 필요합니다.
- 나노스코피 요구 사항 및 설정
- 제조사의 지침에 따라 필요한 모든 현미경 장치를 켭니다.
- 아직 레이저 키를 켜지 마십시오.
- 현미경 배양 챔버의 온도를 22–23 °C 영상 촬영 최소 1.5시간 전에.
- 샘플 또한 현미경 챔버에 넣고 최소 30분 동안 온도에 적응하도록 둡니다.
- 컴퓨터를 켜고 LAS X 소프트웨어(버전 4.9.0)를 실행합니다.
- 선택 STED 이미징 시작 창에서 소프트웨어를 실행하십시오.
- 소프트웨어가 로드되면, 두 레이저의 표시등이 녹색으로 켜졌을 때 안전 키를 돌리십시오.
- ~로 이동하십시오. 획득 탭을 눌러 적절한 STED 대물렌즈(HC PL APO 86x/1.20 W motCORR STED)를 선택하십시오.
- ~로 이동하십시오. 구성 탭하고 다음 버튼을 클릭하십시오. 레이저 구성.
- 모든 레이저 슬라이더를 클릭하여 켜십시오. 켜짐.
- ~로 이동하십시오. 구성 탭하고 다음 버튼을 클릭하십시오. STED (자극 방출 고갈 현미경).
- 클릭 빔을 정렬하십시오.
- 최적의 정렬 상태를 유지하기 위해 이미징 시작 후 30분과 2시간 후에 빔 정렬을 다시 수행하십시오. 해상도 저하나 배경 신호 증가가 관찰되는 등 필요한 경우 이후에도 정렬을 반복하십시오.
- 커버슬립 표면의 반사 신호를 이용하여 객체의 보정 칼라(전동식)를 커버슬립 두께에 맞게 정렬하십시오.
- ~로 이동하십시오. 획득 탭을 누르고 motCORR 값을 설정하십시오.
- 내에서 GFP 형광을 위한 새 채널을 생성하십시오. 공초점 모드를 설정하고 표본의 세포에 초점을 맞춥니다.
- ~을(를) 클릭하십시오. 라이브 버튼을 누르고 샘플이 없는 위치로 샘플을 이동시키십시오.
- 라이브 이미징을 중단하십시오.
- 이 채널에는 HyDS 검출기만 사용되었는지 확인하십시오.
- 설정하십시오. 노치 필터 ~로의 구성 반사.
- ~을(를) 클릭하십시오. 오리엔테이션 버튼 및 선택 xyz 방향 설정.
- 시료가 불안정해 보이거나 z축 이동이 나타나는 경우, 고속 라이브 이미징 속도를 100 Hz로 낮추십시오.
- [해당 버튼]을 클릭하여 라이브 이미징을 시작하십시오. 빠른 라이브(Fast Live) 버튼
- 선으로 나타나는 시료의 커버 슬립을 찾으십시오.
- 이 라인의 신호가 최대한 날카롭고 좁게 나타날 때까지 motCORR 값을 조정하십시오.
참고: 1.5H 커버슬립을 사용할 경우, 값은 일반적으로 48~56% 범위에서 나타납니다. - 이제 이미징을 위한 채널을 선택하십시오. 획득 표
- 참조하십시오 표 1 STED 모드에서 Alexa Fluor 594 및 STAR635P 검출을 위한 설정입니다.
- 이미징
- 현미경의 접안렌즈를 통해 이미징 영역을 선택하십시오.
- 시료를 조심스럽게 회전시켜 DV 경계가 수직이 되도록 맞춥니다.그림 2).
- 현미경의 셔터를 닫고 공초점 이미징 모드로 전환한 후, 컴퓨터를 통해 현미경을 작동시키십시오.
- 클릭 패스트 라이브(Fast Live) 버튼을 누르고, 초점을 조절하며, DV 경계의 방향을 확인하십시오.
- 라이브 이미징을 중단하십시오.
- (선택 사항) 나중에 참고할 수 있도록 이 단계에서 공초점 모드(두 채널 모두 STED 레이저를 0%로 설정)로 xyz 방향의 개요 이미지를 촬영하십시오. 개요 이미지 촬영 후 STED 레이저를 켭니다.
- xzy 방향을 선택하고, 직교 영상을 얻기 위해 나타나는 선을 정확한 영역으로 조정하십시오.
- ~을 클릭하십시오. 빠른 라이브 버튼을 누르고 필요 시 초점을 조정하십시오.
- 현미경의 z-Wheel을 사용하여 시료의 x축 위치를 조정하십시오.
- 두 채널 모두 STED 레이저가 켜져 있는지, 그리고 모든 설정이 정확한지 확인하십시오.
- 클릭 실험 시작.
- 픽셀당 강도(광자 계수 모드의 검출기)는 검출된 광자 기준 50에서 300 사이여야 하며, 이는 레이저 출력, 픽셀 체류 시간 및 적용된 라인 누적 횟수(line accumulations)에 따라 달라집니다. 형광 수명 측정(FLIM) 모듈(Falcon)을 사용할 수 있는 경우, 레이저 펄스당 검출되는 광자가 1개 미만인지 확인하십시오.
- 개별 샘플에 따라 필요한 경우 값을 조정하십시오.
- STED 나노현미경의 과제
- 3D STED에서 특정 형태학적 영역을 시각화하려면, XY 뷰에서 XZ 뷰로 전환하기 전에 현미경에서 시료를 회전시키고 방향을 설정하여 조직을 필요한 축에 정확하게 맞추십시오. 실험 요구 사항에 따라 이동 가능한 원형 디시에 장착함으로써 이러한 자유로운 조절이 가능합니다.그림 2).
- xz-스캐닝 중에는 샘플이 z축을 따라 물리적으로 이동하며, 이로 인해 초기에는 수직축 방향의 진동으로 인해 디쉬가 xy 방향으로 약간 움직이는 현상이 발생했습니다. 디쉬의 움직임을 방지하려면 마운팅 퍼티(Blu Tack)를 사용하여 현미경 샘플 홀더에 디쉬를 고정하십시오. 이렇게 하면 수직(z축) 이동은 방지하면서 자유로운 회전은 가능해집니다.
- 봉입제의 증발과 조직의 건조를 방지하기 위해, 커버슬립을 매니큐어로 밀봉하였다.
- 시료와 현미경 사이의 온도 차이로 인한 시료의 표류(drift)를 방지하기 위해, 이미징 시작 최소 30분 전에 시료를 현미경 배양 챔버에 넣어 현미경 온도에 적응시키십시오.16.
- 2차 항체 선택을 위해 다음 단계를 따르십시오.
- 광범위한 형광체가 STED 이미징에 적합하지만, 단일 고갈 레이저(본 실험에서는 775 nm)를 사용하는 이색 STED를 위해 유리한 광물리적 및 분광적 특성을 모두 갖춘 것은 일부에 불과합니다. 두 채널을 동일한 STED 고갈 패턴으로 정의함으로써 고유한 색수차 정렬을 보장하고 색수차 보정의 필요성을 없애기 위해, 두 형광체 모두에 하나의 STED 고갈 파장을 사용하십시오.
- 일반적인 형광체 쌍으로는 STAR RED/STAR635P, ATTO 647N/ATTO 643 등이 있으며, 여기에 Alexa Fluor 594, STAR 580 또는 STAR ORANGE를 조합하여 사용합니다.18,19본 연구에서는 널리 사용되는 Alexa Fluor 594와 STAR635P 조합을 사용하였습니다. 두 형광체의 방출 스펙트럼이 부분적으로 겹치므로, Alexa Fluor 594의 검출 윈도우를 좁게 설정한 라인별(line-by-line) 모드로 형광체를 획득하여 크로스토크(crosstalk)를 최소화하십시오(참조 표 1). 이는 Alexa Fluor 594의 검출 효율을 저하시키므로, 면역염색 강도가 더 강한 시료를 이 채널에 할당하십시오.
결과
날개 성충판의 3D STED 나노스코피를 위한 적절한 이미징 조건을 설정하기 위해, 먼저 Wg와 정단막 결합 단백질인 Dlp에 대해 표준 면역형광 염색을 수행하였습니다. Wg는 Alexa Fluor 594를 사용하여 검출하였고, Dlp는 STAR635P로 표지하였으며, 이 두 형광체는 STED 나노스코피에 적합한 것입니다(그림 3). 이미지는 공초점 수준의 이미지를 얻기 위해 STED 고갈 없이 획득하였으며, 초고해상도 이미징을 위해 단계 2.3에 설명된 설정을 사용하여 STED 고갈 상태에서 획득하였습니다(그림 3).
xz-단면으로 촬영한 동일 조직 영역의 공초점 및 STED 조건 하의 이미지를 직접 비교한 결과, 3D STED 나노현미경이 제공하는 공간 분해능의 실질적인 향상이 입증되었습니다.그림 3A–D′). 공초점 이미지에서 연장된 신호로 나타난 구조물들은 (그림 3A,A′및 그림 C,C′)는 STED 모드에서 여러 개의 뚜렷한 점상 구조(puncta)로 분해되었습니다 (그림 3B,B′, 그리고 그림 D,D′). 이러한 개선 사항은 Alexa Fluor 594 및 STAR635P 채널 모두에서 관찰되었으며, 이를 통해 염색 및 이미징 파라미터를 최적화하여 손상되지 않은 날개 원판 조직에서 가능한 가장 높은 신호 품질과 등방성 해상도를 구현하였습니다.
다음으로, 정단막에서의 Wg 수송 및 클라트린 의존성 엔도사이토시스를 통한 재활용을 조사하기 위해 Wg 흡수 분석15과 약리학적 억제법을 결합하였습니다. 우리는 내성적으로 태그된 Wg::GFP 초파리 라인20을 사용하여, 마우스 유래 추가 항체와의 호환성을 유지하면서 anti-GFP 항체로 세포 외 Wg::GFP를 검출할 수 있도록 하였습니다.
클라트린 및 다이나민 의존적 내세포작용을 표적으로 하는 다이나민 억제제인 Dynasore 2-24로 날개 성체원판을 처리한 후21,22, Wg 섭취 분석(Wg Uptake assay)을 수행하였다. 세포 내 유입을 모니터링하기 위해 세포 외 Wg::GFP를 anti-GFP 항체로 표지하였으며, 조직 형태를 시각화하기 위해 anti-Dlg1 염색을 사용하였다. Wg는 Alexa Fluor 594로 검출하여 STED 모드로 이미징하였고, Dlg1은 STAR635P로 표지하였다(그림 4). DMSO 처리된 대조군 원판은 섭취 분석 전반에 걸쳐 Wg::GFP의 점진적인 내세포작용을 보였으며, 내세포작용된 신호는 약 14 µm 깊이까지 검출되었다(그림 4A,A′). 해당 실험은 섹션 1과 2에 설명된 프로토콜에 따라 독립적으로 2회 반복되었다(그림 4B,C). 첫 번째 반복 실험에서 5 µM Dynasore2-24 처리는 Wg 섭취를 완전히 차단하였다(n = 4; 그림 4B,B′). 두 번째 반복 실험에서는 Wg 내세포작용이 감소하였으나 완전히 제거되지는 않았으며(n = 4; 그림 4C,C′), 최대 침투 깊이는 약 5 µm로 감소하였다.
이러한 변동성은 약리학적 억제 실험에서 흔히 관찰되며, 억제제의 효능이나 처리 시점의 차이를 반영할 가능성이 큽니다. 불완전한 억제, 억제제의 제한적인 조직 침투, 분석 중 엔도시토시스의 회복, 또는 산 세척 및 고정 단계에서 발생하는 지연 등이 모두 잔류 Wg 내재화의 원인이 될 수 있습니다. 그럼에도 불구하고, 두 실험 모두 DMSO 대조군과 비교하여 Wg Uptake 및 침투 깊이가 현저히 감소했음을 일관되게 보여주었으며, 이는 엔도시토시스가 성공적으로 억제되었음을 입증합니다. 이러한 결과는 재현성 있는 결과를 얻기 위해 프로토콜 전반의 정확한 타이밍이 매우 중요하다는 점을 강조합니다.
산 처리 세척(acid stripping) 후에도 막에 결합된 신호가 잔류하는 경우가 가끔 관찰되었으며, 이는 이미 초기 엔도솜 함입부(early endocytic pits)로 진입하여 항체 제거가 불가능해진 Wg::GFP 분자를 나타내는 것으로 보인다23,24,25.
종합적으로, 이러한 실험들은 Wg 섭취 분석(Uptake assay)을 약리학적 섭동 및 3D STED 나노현미경과 결합함으로써 온전한 날개 성판(wing imaginal discs) 내의 막 수송 역동성을 시각화할 수 있음을 보여줍니다. 또한, 적절한 형광 표지자와 항체 조합, 최적화된 억제제 처리, 섭취 분석의 엄격한 시간 준수, 그리고 이미징 전 즉각적인 시료 마운팅을 포함하여 프로토콜의 성공적인 수행을 위한 핵심 매개변수들을 확인하였습니다.
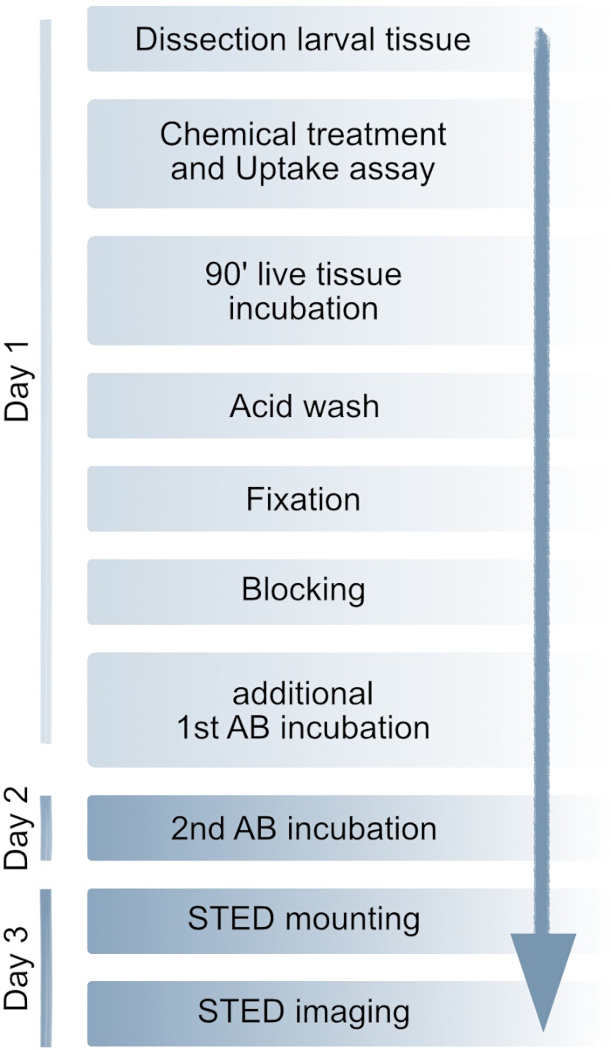
그림 1: 방법 워크플로. 전체 프로토콜은 3일 이내에 완료할 수 있습니다. 선택 사항으로, 2차 항체 배양을 같은 날에 수행할 수 있습니다. 상세 절차는 프로토콜 섹션에 제공되어 있습니다. AB: 항체. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
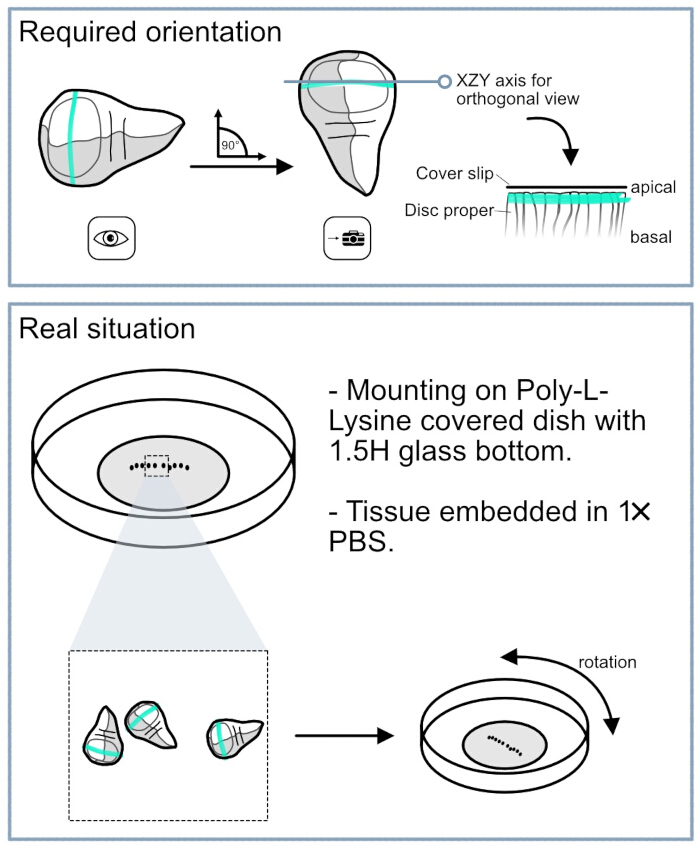
그림 2: 3D STED를 위한 Drosophila 날개 원판 마운팅의 어려움. 상단 패널에는 날개 원판의 필요한 방향이 예시되어 있다. Wg 분비 세포의 분석을 위해서는 접안렌즈 뷰에서 DV 경계가 완전히 수직으로 정렬되는 것이 필수적이다. 이러한 정렬을 통해 카메라 뷰를 직교 평면으로 회전시켜 원하는 세포군을 정확하게 타겟팅할 수 있다. 하단 패널은 이미징 중 날개 원판을 처리하는 데 사용된 실제 설정 방법을 보여준다. 날개 원판은 1.5H 유리 커버슬립 바닥이 있는 원형 페트리 접시에 마운팅되었다. 조직의 부착을 용이하게 하기 위해 커버슬립 표면은 poly-L-lysine으로 코팅되었다. 원형 접시 디자인을 통해 현미경 홀더 내에서 회전이 가능하며, 이를 통해 이미징에 필요한 DV 경계의 정밀한 수직 정렬이 가능하다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
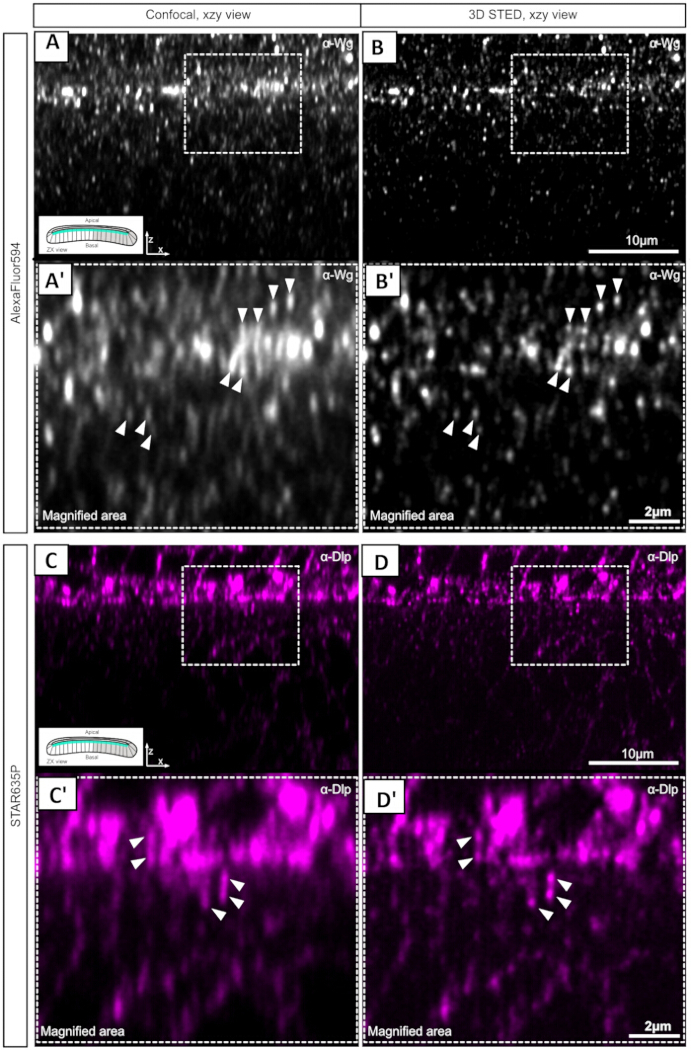
그림 3: Drosophila 날개 성충판의 DV 경계에서 공초점 및 3D STED 이미징 비교. (A) XZ 평면에서 관찰한 DV 경계의 Wg 분비 세포 공초점 이미지. Alexa Fluor 594를 사용하여 Anti-Wg 염색을 검출하였다. (A’) 정단막 영역에서 연장된 신호(화살표 머리)를 보여주는 표시된 영역의 확대도. (B,B’) 3D STED 나노스코피로 촬영한 동일 영역. Alexa Fluor 594 신호를 보여준다. 공초점 이미징과 비교하여, 3D STED는 연장된 신호를 뚜렷한 점들로 분해하며 다수의 개별 신호(화살표 머리)를 드러낸다. (C) A 및 B에서 사용된 동일 표본의 STAR635P 채널 공초점 이미지. 예시로 Dlp를 STAR635P 결합 2차 항체로 검출하여 정단막을 강조하였다. (C’) 공초점 이미지에서 연장된 신호를 보여주는 확대도. (D) C에서 보여준 동일 영역의 3D STED 이미지. (D’) 공초점 현미경으로 관찰된 넓고 연장된 신호들이 3D STED 이미징에 의해 뚜렷한 점들로 분해됨을 보여주는 확대도. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
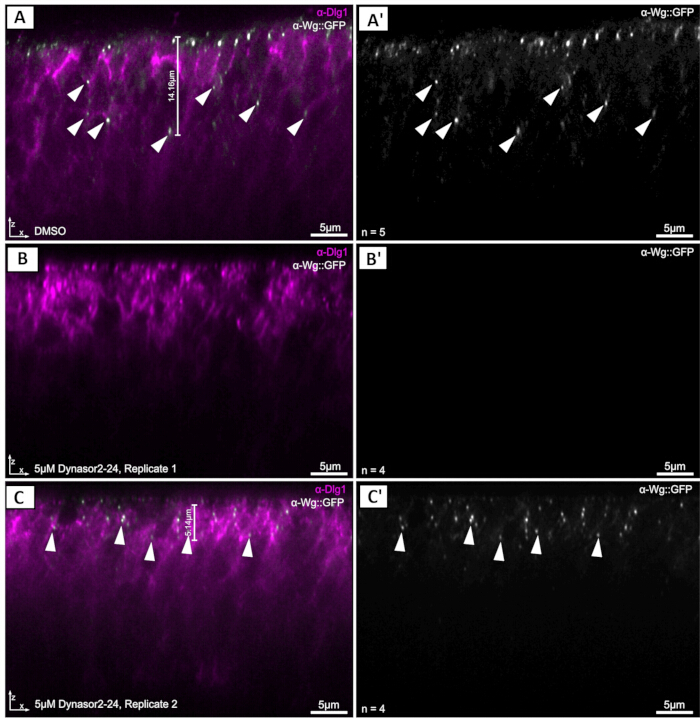
그림 4: 3D STED로 시각화한 Drosophila 날개 성충판에서의 화학적 억제와 Wg Uptake 분석의 결합. (A,A’) 대표적인 DMSO 처리 대조군 성충판 (n = 5). 세포 외 Wg::GFP (회색)가 효율적으로 라벨링되었으며, 내재화된 Wg::GFP가 세포 내에서 검출됨 (화살표 머리). Dlg1 (마젠타색)은 조직 형태와 성충판 본체의 정단 부위를 표시함. (B,B’) 클라트린 및 다이나민 의존적 엔도사이토시스를 억제하기 위해 5 µM Dynasore2-24를 처리한 반복 실험 1의 대표 샘플 (n = 4). Uptake 분석 후 Wg::GFP 신호가 소실됨. (C,C’) 5 µM Dynasore2-24를 처리한 반복 실험 2의 대표 샘플 (n = 4). 잔류 Wg::GFP 신호가 정단 표면 근처에서 검출되지만 (화살표 머리), DMSO 처리 대조군의 약 14 µm와 비교하여 세포 내 신호가 조직의 처음 약 5 µm 범위로 제한됨 (A 및 C의 측정 바). Dlg1 (마젠타색)은 형태학적 참조로 사용됨. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 설정 | Alexa Fluor 594 채널 | STAR635P 채널 |
| 목적 | 86x/1.2 HC PL APO CS2 (수침) | 86x/1.2 HC PL APO CS2 (수침) |
| 픽셀 크기 | 37 nm × 37 nm | 37 nm × 37 nm |
| 확대 | 1.2 | 1.2 |
| 검출 가능 기간 | 3072 × 1536 픽셀 | 3072 × 1536 픽셀 |
| 선 평균 | 1 | 1 |
| 라인 축적 | 16 | 16 |
| 스캔 속도 | 100–200 | 100–200 |
| 핀홀 크기 | 70 μm | 70 μm |
| 들뜸 레이저 라인 | 580 nm | 638 nm |
| 들뜸 레이저 라인 강도 | 4%–10% (시료에 따라 다름) | 8%–10% (시료에 따라 다름) |
| 검출기 | HyD X2, 595–625 nm | HyD X4, 650–740 nm |
| Tau 게이팅 여기 레이저 | 0.5–8 ns | 0.5–8 ns |
| 고갈 레이저 라인 | 775 nm | 775 nm |
| 고갈 레이저 출력 | 65-75% (시료에 따라 다름) | 65-75% (시료에 따라 다름) |
| 수명 기반 이미지 후처리 (τ-STED) | τ-강도: 10 | τ-강도: 10 |
| τ-배경 억제: 활성화 | τ-배경 억제: 활성화 | |
| 평활화: 0 | 평탄화: 0 |
표 1: STELLARIS SP8 현미경의 형광 색소별 세부 설정. Alexa Fluor 594 및 Star635P 형광 색소에 사용한 설정값을 제공하였습니다.
토론
손상되지 않은 조직 내의 막 수송 및 신호 전달 역동성을 시각화하는 것은 기술적으로 여전히 어려운 과제이며, 특히 Drosophila 날개 성충판(wing imaginal disc)에서 발견되는 것과 같이 고도로 분극화된 상피 세포에서 더욱 그러합니다. 이러한 세포의 좁고 기둥 형태인 형태학적 특성은 일반적인 공초점 현미경을 사용하여 얻을 수 있는 정보에 한계를 가지며, 특히 정단-기저축(apical-basal axis)을 따라 단백질의 위치를 분석할 때 더욱 두드러집니다. 본 프로토콜에서는 3D STED11,12 나노현미경을 항체 기반 섭취 분석 및 약리학적 섭동과 결합하여 이러한 제한점을 해결하였습니다. 이러한 접근 방식을 종합함으로써, 표준 공초점 이미징으로는 달성할 수 없는 공간 해상도로 천연 조직 환경 내의 역동적인 단백질 수송 사건을 시각화할 수 있습니다.
이 워크플로의 주요 장점은 3D STED 나노스코피를 사용하여 전체 조직 내의 막 관련 프로세스를 조사할 수 있다는 점입니다. 공초점 현미경과 STED 이미징을 직접 비교한 결과, 공초점 현미경에서 관찰된 길쭉한 신호가 3D STED 이미징을 통해 뚜렷한 점상 구조(puncta)로 분해될 수 있음이 입증되었으며(그림 3), 이를 통해 정단막(apical membrane)에서의 단백질 시각화 능력이 상당히 향상되었습니다. 이러한 해상도 향상은 개별 소낭과 막 관련 단백질 복합체의 정확한 국소화가 필수적인 분비, 내세포작용(endocytosis) 및 세포 내 수송 경로를 분석하는 데 특히 유용합니다. 또한, 직교 뷰(orthogonal views)를 획득할 수 있는 능력 덕분에 상피 세포의 정단-기저축(apical-basal axis)을 따라 단백질 조직화와 수송을 조사할 수 있습니다.
약리학적 섭동을 섭취 분석(uptake assay)과 통합하면 본 방법의 실험적 가능성을 더욱 확장할 수 있습니다. 섭취 분석은 정해진 시간 범위 내에서 분비 후 재내입(re-internalization) 과정을 거친 단백질만을 선택적으로 표지하는 반면, 약리학적 처리는 특정 수송 경로의 섭동을 가능하게 합니다. 따라서 이러한 접근 방식들의 조합은 세포 프로세스가 생체 내(in vivo) 단백질 수송 역학에 어떻게 영향을 미치는지에 대한 직접적인 통찰을 제공합니다. 입증된 바와 같이, 클라트린 의존성 내포작용(clathrin-dependent endocytosis)을 억제한 상태에서 섭취된 Wg::GFP를 시각화한 결과, 정단막(apical membrane)에서 표지된 단백질의 내입 신호가 소실되거나 세포 내 섭취 신호가 감소하였으며, 이는 본 워크플로우가 생리적 조직 맥락 내에서 수송 메커니즘을 조사하는 데 어떻게 활용될 수 있는지를 보여줍니다. 더 넓게는, 이러한 접근 방식이 고전적인 유전학적 전략을 보완하며, 신호 전달 경로의 메커니즘 연구를 위한 모델 시스템으로서 Drosophila의 유용성을 더욱 강화합니다.
프로토콜을 성공적으로 구현하기 위해서는 몇 가지 요인이 매우 중요합니다. 첫째, 신뢰할 수 있는 신호 검출을 위해서는 강력하고 특이적인 라벨링이 필요하므로 일차 항체의 선택이 결정적입니다. 하지만 내인성 Drosophila 단백질에 대해 검증된 항체의 가용성이 제한적이라는 점이 주요 제약 사항으로 남아 있습니다. 본 프로토콜에서는 흔히 사용되는 많은 Drosophila 항체들이 마우스에서 생성되어 다중 면역 라벨링에 제한이 있기 때문에, 내인성 태그가 부착된 Wg::GFP 라인을 사용해야 했습니다. 형광 염료가 막, 미토콘드리아 또는 기타 세포 소기관과 같은 세포 구조를 라벨링하는 대안이 될 수 있지만, 시판되는 대부분의 염료는 배양 세포에 최적화되어 있어 손상되지 않은 Drosophila 조직에 효율적으로 적용하기 어렵습니다.
또한, 모든 형광체가 STED 이미징 조건에서 충분한 신호 강도, 광안정성 또는 고갈 효율을 제공하는 것은 아니므로, 2차 항체와 형광체는 STED 나노스코피와의 호환성을 신중하게 평가해야 합니다19,26. 여기에 제시된 결과는 시료 준비와 조직 처리의 중요성을 더욱 강조합니다. 마찬가지로, 과도한 약물 농도는 조직의 무결성을 손상시키고 생물학적 신호를 가리는 이미징 아티팩트를 생성할 수 있으므로 약물 처리를 신중하게 최적화해야 합니다. 직교 뷰를 얻고 원하는 세포군을 재현성 있게 이미징하기 위해서는 배背-복腹 경계의 정확한 정렬이 필요하므로, 정확한 조직 방향 설정 또한 매우 중요합니다 (그림 2).
다양한 실험적 요구 사항에 맞춰 워크플로우를 조정하기 위해 다음과 같은 몇 가지 수정 사항을 도입할 수 있습니다. 우선, Uptake 분석 시간은 충분한 단백질 표지와 조직 무결성 유지 사이의 균형을 맞추도록 조정할 수 있습니다. 마찬가지로, 저해제 농도는 조직 유형, 발달 단계 또는 연구 중인 신호 전달 경로에 따라 적정 과정이 필요할 수 있습니다. 또한, 선택한 형광체가 STED 나노현미경에 적합하다면 표준 면역형광법, 세포외 면역형광법 및 형광체 기반 표지 전략을 포함한 다양한 염색 방법과 호환됩니다. 본 워크플로우는 2색 이미지 촬영에 중점을 두고 있지만, 추가적인 형광체와 이미지 촬영 구성을 통해 적용 범위를 더욱 확장할 수 있습니다.
본 프로토콜은 Drosophila 날개 성상판(wing imaginal discs)과 Wg/Wnt 신호 전달 경로를 모델 시스템으로 하여 개발되었으나, 이 접근법이 해당 응용 분야에만 국한되는 것은 아닙니다. 이 워크플로우는 다른 Drosophila 조직에 쉽게 적용할 수 있으며, 조직 크기와 광학적 특성이 유사한 다른 곤충 모델로의 전이가 가능할 것으로 보입니다. 보다 일반적으로, 섭취 분석(Uptake assays), 약리학적 섭동(pharmacological perturbations) 및 3D STED 나노현미경법의 결합은 in vivo에서 막 구조, 단백질 수송, 분비 및 신호 전달 역학을 조사하기 위한 다각적인 프레임워크를 제공합니다. 이러한 역량은 발달 신호 전달 경로에 대한 기초 연구뿐만 아니라, 질병과 관련된 수송 결함을 이해하려는 생의학 연구에서도 가치가 있을 것입니다. 온전한 조직 내에서 세포 하부 해상도로 동적인 단백질 집단을 직접 시각화함으로써, 이 방법은 복잡한 생물학적 시스템에서 신호 전달을 조절하는 세포 기전을 연구하기 위한 강력한 플랫폼을 제공합니다.
공개 사항
저자들은 상충하는 이해관계가 없음을 밝힙니다.
감사의 글
M.B.와 M.H.는 Wnt 신호 전달의 기전 및 기능에 관한 Deutsche Forschungsgemeinschaft 협력 연구 센터 CRC/SFB1324(프로젝트 번호 331351713)의 지원을 받았습니다. 전문 지식과 지원을 제공해 준 DKFZ 광학 현미경 핵심 시설(LMCF)에 감사드립니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.2 mL PCR 반응 튜브 | Biozym | 711068 | |
| 1.5 mL 반응 튜브 | Sarstedt | 72.706.700 | |
| 1.5H 유리 커버슬립 바닥면의 μ-배양 접시, 35 mm | Ibidi | #81158 | |
| 1.5H 원형(12 mm) 커버스립 | Marienfeld | 입력된 텍스트가 없습니다. 번역할 내용을 제공해 주시면 전문적인 학술 한국어로 번역해 드리겠습니다. | |
| 12-웰 유리 염색 플레이트 | 마리엔펠트 | CET6.20 | |
| 37% 포름알데히드 | Merck | F8775 | |
| anti-dlg1 | DSHB | 4F3 | |
| 항-dlp | DSHB | 13G8 | |
| 항-GFP | Invitrogen | A11122 | |
| anti-mouse Alexa Fluor 594 | Invitrogen | A21201 | |
| anti-mouse STAR635P | Abberior | ST635P-1001 | |
| anti-rabbit Alexa Fluor 594 | Invitrogen | A11012 | |
| anti-rabbit STAR635P | Abberior | ST635P-1002 | |
| anti-Wg | DSHB | 4D4 | |
| 블루택 (Blu Tack) | Bostik | 30811745 | 감압 점착제 |
| 디메틸설폭사이드(DMSO) | VWR | SIAL472301 | |
| Dumont 5 핀셋 | Dumaont | 번호 5 | |
| Dynasor2-24 | MCE | HY-13863 | |
| 태아 송아지 혈청 | Sigma-Aldrich | F7524 | |
| 글리신 | 거부 | 10.231.000 | |
| Leica Stellaris 8 STED Falcon 현미경 | Leica Microsystems | 제공된 소스 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | |
| 매니큐어 | 본질 | 입력된 텍스트가 없습니다. 번역할 내용을 제공해 주시기 바랍니다. | |
| 정상 염소 혈청 | 세포 신호 전달 | 5425S | |
| 목적: HC PL APO 86x/1.20 W motCORR STED 화이트 대물렌즈 | Leica Microsystems | 제공된 소스 텍스트가 없습니다. 번역할 내용을 입력해 주세요. | |
| PBS 정제 | 생명공학 기술 | 18912014 | |
| 포토 플로(Photo Flo) | Kodak | 제공된 텍스트가 없습니다. 번역할 소스 텍스트를 입력해 주세요. | |
| 폴리-L-리신 | Sigma-Aldrich | P1524 | |
| 슈나이더 곤충 배지 | 시그마 | S0146 | |
| Triton-X100 | Sigma-Aldrich | T9284 |
참고문헌
- Giansanti MG, Frappaolo A, Piergentili R. Drosophila melanogaster: How and why it became a model organism. Int J Mol Sci. 2025;26(15):7485.
- Tolwinski NS. Introduction: Drosophila—A model system for developmental biology. J Dev Biol. 2017;5(3):9.
- Perrimon N, Pitsouli C, Shilo BZ. Signaling mechanisms controlling cell fate and embryonic patterning. Cold Spring Harb Perspect Biol. 2012;4(8):a005975.
- Grobe K, Guerrero I. Dally-like is unlike Dally in assisting Wingless spread. Dev Cell. 2020;54(5):572-573.
- Han C, Yan D, Belenkaya TY, Lin X. Drosophila glypicans Dally and Dally-like shape the extracellular Wingless morphogen gradient in the wing disc. Development. 2005;132(4):667-679.
- Khare N, Baumgartner S. Dally-like protein, a new Drosophila glypican with expression overlapping with wingless. Mech Dev. 2000;99(1):199-202.
- McGough IJ, et al. Glypicans shield the Wnt lipid moiety to enable signalling at a distance. Nature. 2020;585(7823):85-90.
- Beckett K, et al. Drosophila S2 cells secrete wingless on exosome-like vesicles but the wingless gradient forms independently of exosomes. Traffic. 2013;14(1):82-96.
- Gross JC. Extracellular WNTs: Trafficking, exosomes, and ligand–receptor interaction. Handb Exp Pharmacol. 2021;269:29-43.
- Gross JC, Chaudhary V, Bartscherer K, Boutros M. Active Wnt proteins are secreted on exosomes. Nat Cell Biol. 2012;14(10):1036-1045.
- Eggeling C, Willig KI, Sahl SJ, Hell SW. Lens-based fluorescence nanoscopy. Q Rev Biophys. 2015;48(2):178-243.
- Sahl SJ, Hell SW, Jakobs S. Fluorescence nanoscopy in cell biology. Nat Rev Mol Cell Biol. 2017;18(11):685-701.
- Wu Z, Xu X, Xi P. Stimulated emission depletion microscopy for biological imaging in four dimensions: A review. Microsc Res Tech. 2021;84(9):1947-1958.
- Jiang N, et al. Superresolution imaging of Drosophila tissues using expansion microscopy. Mol Biol Cell. 2018;29(12):1413-1421.
- Witte L, Linnemannstöns K, Honemann-Capito M, Gross JC. Visualization and quantitation of Wg trafficking in the Drosophila wing imaginal epithelium. Bio Protoc. 2021;11(11):e4040.
- Zimmermann T. Setting up a light microscopy core facility: Facility design. J Microsc. 2024;294(3):255-267.
- Hell SW. Microscopy and its focal switch. Nat Methods. 2009;6(1):24-32.
- Bückers J, et al. Simultaneous multi-lifetime multi-color STED imaging for colocalization analyses. Opt Express. 2011;19(4):3130-3143.
- Jeong S, Widengren J, Lee JC. Fluorescent probes for STED optical nanoscopy. Nanomaterials (Basel). 2022;12(1):21.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29):E2967-E2976.
- Preta G, Cronin JG, Sheldon IM. Dynasore - not just a dynamin inhibitor. Cell Commun Signal. 2015;13(1):24.
- Yamada H, et al. Dynasore, a dynamin inhibitor, suppresses lamellipodia formation and cancer cell invasion by destabilizing actin filaments. Biochem Biophys Res Commun. 2009;390(4):1142-1148.
- Brunt L, Scholpp S. The function of endocytosis in Wnt signaling. Cell Mol Life Sci. 2018;75(5):785-795.
- Fabrowski P, et al. Tubular endocytosis drives remodelling of the apical surface during epithelial morphogenesis in Drosophila. Nat Commun. 2013;4(1):2244.
- Fischer JA, Eun SH, Doolan BT. Endocytosis, endosome trafficking, and the regulation of Drosophila development. Annu Rev Cell Dev Biol. 2006;22:181-206.
- Klar TA, et al. Fluorescence microscopy with diffraction resolution barrier broken by stimulated emission. Proc Natl Acad Sci U S A. 2000;97(15):8206-8210.