본 연구는 C3H/HeJ 마우스의 원형 탈모증 모델과 H2O2로 유도된 인간 일차 표피 멜라노사이트 손상 모델에서 아미그달린(amygdalin)의 항산화 및 항염증 효과의 잠재적인 분자 메커니즘을 탐구하는 것을 목표로 합니다.
연구 논문
아미그달린(Amygdalin)이 FOXO3a 신호 전달을 조절하여 산화 스트레스를 억제하고 마우스의 원형 탈모증을 개선함
* These authors contributed equally
이 논문에서
요약
초록
본 논문은 원형 탈모증(AA)에 대한 아미그달린(AMG)의 치료 효과 기전을 탐구하는 것을 목적으로 한다. AMG의 간신독성을 조사하기 위해 헤마톡실린-에오신 염색을 사용하였습니다. C3H/HeJ 마우스의 AA 모델을 구축한 후 H2O2손상된 인간 일차 표피 멜라닌세포(HPEMs)를 사용하였으며, AMG 처치 후 활성 산소종(ROS) 함량과 forkhead box O3A(FOXO3a) 단백질 및 유전자 수준을 모니터링하였다. 생화학 키트 또는 효소 결합 면역 흡착 분석법 superoxide dismutase (SOD), catalase (CAT), glutathione peroxidase 4 (GPX-4), malondialdehyde (MDA), interleukin-15 (IL-15), interferon-gamma (IFN-γ), 그리고 인터루킨-6 (IL-6). MHC I, IL-15, FOXO3a, SOD, CAT, GPX-4, IFN-γ의 수치를 평가하기 위해 웨스턴 블롯을 수행하였다.γ, IL-6 및 IL-15. ChIP-PCR을 수행하여 FOXO3a 내 SOD, CAT 및 GPX-4 프로모터에서 AMG의 농축도를 평가하였다. 한편, FOXO3a 발현이 낮은 HPEM에서 ROS, 세포 사멸, 그리고 FOXO3a, SOD, CAT 및 GPX-4의 단백질 및 유전자 수준을 조사하였다. AMG는 잠재적인 간 또는 신장 독성이 없으며, 피부 내 MHC I 및 IL-15 단백질의 발현뿐만 아니라 혈청 IL-15 수치를 감소시킬 수 있다. AMG는 피부 내 FOXO3a 단백질과 유전자의 발현을 증진시키고 SOD, CAT, GPX-4 수치를 높이는 동시에 ROS와 MDA 수치를 감소시킬 수 있다. AMG는 MHC I, IFN-γ, IL-6 및 IL-15, MDA, HPEM 내 세포사멸 및 ROS 생성을 감소시키고, SOD, CAT 및 GPX-4 함량을 증가시킨다. 중요한 점은, AMG가 FOXO3a, SOD, CAT 및 GPX-4 유전자와 단백질의 발현을 상향 조절할 수 있으며, SOD, CAT 및 GPX-4의 프로모터에서 FOXO3a를 농축시킨다는 것이다. 이러한 데이터는 AMG가 FOXO3a 발현을 촉진하고 산화 스트레스 및 염증 반응을 억제함으로써, C3H/HeJ 마우스의 알레르기성 인후염(AA)을 개선할 수 있음을 시사한다.
서론
갑작스럽고 흉터가 남지 않는 탈모를 특징으로 하는 자가면역 질환인 원형 탈모증(alopecia areata, AA)의 전 세계 유병률은 약 2–3%이며, 중국에는 3,000만 명 이상의 환자가 있습니다1. 역학 데이터에 따르면 이 질환은 모든 연령대의 개인에게 영향을 미칠 수 있지만, 젊은 성인층에서 더 높은 유병률을 보이며, 환자의 약 60%가 20세 이전에 처음 발병하고 남녀 비율은 거의 동일합니다1,2. 전 세계적으로 AA의 연간 발생률은 약 0.2–0.3%이며, 단일 부위 AA가 40%, 다부위 AA가 35%, 전두 탈모가 5%, 전신 탈모가 2%를 차지합니다3,4,5. 합병증 측면에서 환자의 약 30%가 손톱 함몰, 세로 줄무늬 및 기타 손상을 보이며, 갑상선 질환 및 백반증과 같은 자가면역 질환과의 동반 이환율은 일반인 수준을 상회합니다6,7. 위해성 관점에서 AA는 외모에 영향을 줄 뿐만 아니라 우울증 및 불안과 같은 심리적 문제를 일으키기 쉬우며, 신규 발병 환자의 약 70%가 발병 전 3개월 이내에 주요 스트레스 사건을 경험합니다8,9. 장기간 치료하지 않을 경우, 환자는 전두 탈모 또는 전신 탈모로 진행되어 사회적 기능과 삶의 질에 심각한 영향을 받을 수 있습니다10.
현재 서양 의학에서는 AA 치료를 위해 주로 국소 약물, 경구 약물, 물리 치료 및 모발 이식의 병용 요법을 사용합니다11,12. 국소 치료에는 주로 미녹시딜 용액과 코르티코스테로이드(예: fluticasone propionate 크림)가 포함되며, 이는 모낭을 자극하고 국소 면역 반응을 억제하여 모발 성장을 촉진하지만, 장기간 사용 시 피부 위축과 같은 부작용이 발생할 수 있습니다13,14. 진행성 질환 환자의 경우, 경구 면역억제제(예: prednisone 및 cyclosporine)가 전신 면역 반응을 효과적으로 조절할 수 있으나, 정기적인 간 및 신장 기능 모니터링이 필요합니다12,15. 물리 치료에서는 협대역 중파 자외선 조사와 저에너지 레이저 치료가 미세 순환을 개선하여 모발 성장을 돕지만, 여러 차례의 치료가 필요하며 효과는 개인마다 다릅니다16,17. 난치성 사례의 경우, 모발 이식 수술을 통해 건강한 모낭을 탈모 부위로 이식할 수 있으나, 이식 실패의 위험이 있으며 약물 유지가 필요합니다18. 서양 의학 치료의 장점은 빠른 효과 발현과 높은 표준화에 있으며, 특히 초기 국소 AA에 효과적입니다19. 그러나 호르몬제의 경우 리바운드 현상이 나타나기 쉽고, 면역억제제는 부작용이 심하며, 전두 탈모/전신 탈모 환자에게는 효능이 제한적이라는 단점이 있습니다20,21. 또한 치료 주기가 길고(통상 3–6개월), 비용이 많이 들어(예: JAK 억제제, 생물학적 제제의 연간 비용이 100,000 위안을 초과함) 광범위한 적용에 제한이 있습니다19,22. 앞서 언급한 수많은 이유로 인해 저자들은 새로운 표적 약물을 탐구할 긴급한 필요성을 느끼고 있습니다.
산화 스트레스는 AA의 병리 기전에 상당한 영향을 미칩니다. 멜라닌 세포의 색소 합성 과정에서 다량의 과산화수소(H2O2)가 생성됩니다23,24. 정상적인 상황에서는 슈퍼옥사이드 디스뮤타제(SOD) 및 카탈라아제(CAT)와 같은 항산화 효소에 의해 제거될 수 있습니다25. 그러나 AA 환자의 경우 항산화 효소의 활성이 종종 낮아 산화 생성물이 축적되며, 이는 DNA 손상과 세포 사멸을 유발합니다26,27. 이러한 산화 스트레스 상태는 염증 반응을 더욱 활성화하여 TNF-α 및 IFN-γ와 같은 염증성 매개 물질을 방출함으로써 산화 스트레스와 염증의 악순환을 형성합니다28. 염증 반응은 T 림프구를 통해 모낭을 공격하며, 이로 인해 모낭이 휴지기에 진입하고 탈락하게 됩니다29. 임상 시험 결과, AA 환자들은 종종 갑상선 질환과 같은 다른 자가면역 질환을 동반하는 것으로 나타났으며30, 이는 전신 면역 조절 장애가 중요한 유발 요인으로 작용함을 시사합니다. 또한, 산화 스트레스와 염증은 공동으로 모낭 세포의 사멸을 촉진하며, 사멸 신호의 이상은 모낭의 재생 능력을 더욱 손상시켜 모발의 재성장을 방해합니다31. 따라서 AA 치료를 위해서는 이러한 악순환을 끊기 위해 항산화, 항염증 및 세포 사멸 경로의 조절을 고려해야 합니다.
아미그달린(AMG)은 주로 장미과(Rosaceae)에 속하는 식물 종자(살구, 아몬드, 복숭아 씨앗 및 비파 등)에 함유되어 있는 천연 시아노제닉 배당체 화합물입니다32,33,34. 이전 연구들에 따르면 AMG는 피부 장벽 기능을 강화함으로써 건선 증상을 개선할 수 있는 것으로 나타났습니다35. 한편, AMG의 항-세포사멸 및 항-산화 스트레스 효과는 백반증(AA) 치료에 활용될 가능성을 보여줍니다36,37. 또한, AMG가 염증 반응을 억제하여 C3H/HeJ 마우스의 AA 증상을 완화할 수 있다는 근거가 확인된 바 있습니다38. 하지만 AMG가 염증을 억제하고 산화 스트레스를 완화하여 AA를 경감시키는 분자적 기전은 아직 충분히 보고되지 않았습니다. 본 연구는 C3H/HeJ 마우스의 AA 모델과 H2O2로 유도된 인간 일차 표피 멜라닌 세포(HPEMs) 손상 모델에서 AMG 처치에 의한 forkhead box O3A (FOXO3a) 신호 전달 매개 산화 스트레스 사건을 주로 입증하였습니다.
프로토콜
윤리 승인 및 참여 동의
동물 관련 실험 절차는 ARRIVE 2.0 및 NIH 실험동물의 관리 및 사용을 위한 지침을 준수하여, 사이언티스트 바이오테크놀로지 유한회사 윤리위원회(윤리 승인 번호: SYST-2024-014)의 승인을 받았습니다. 또한 쓰촨성 인민정부 인민병원 윤리위원회의 승인도 받았습니다.’s 병원은 인체 임상 시료의 윤리적 사용에 대해 승인을 부여하였다. 시험관 내 실험(윤리 승인 번호: 2024103). 모든 조직 기증자로부터 서면 동의를 획득하였다. 본 연구에서 사용된 시약 및 장비의 모든 상업적 정보는 다음에 제공되어 있다. 자재 목록.
C3H/HeJ 마우스에서 AA 모델의 제작 및 AMG 투여
이전 문헌을 기반으로, C3H/HeJ 마우스에서 AA 모델을 유도하고 AMG로 치료하였다.38,39. 간략히 말해, 30마리의 수컷 C3H/HeJ 생쥐(6–8주령 생쥐는 무작위로 대조군, AA군, AMG-L군, AMG-M군, AMG-H군의 다섯 개 군으로 분류되기 전에 1주일간 적응 기간을 거쳤다. 대조군을 제외한 나머지 네 군에는 AA 모델을 유도하기 위해 마우스 등부 피부에 0.05 g의 이미퀴모드 크림을 주 3회, 총 9회 도포하였다. 도포 면적은 1.5 cm²였다. × 1.5 cm. 대조군 및 AA 코호트의 생쥐에게는 매일 0.02 mL/g의 생리식염수를 게이브 투여하였다. AMG 그룹의 생쥐에게는 매일 60, 90, 120 mg/kg을 경구 투여하였다. 투여 기간은 21일이다. AA 모델의 일반적인 관찰 및 평가를 위해 명확하게 정의된 원형 탈모 병변 ≥ 지름 1 cm, 흉터나 심한 염증이 없으며, 끊어진 모발이 있는 부위가 필요하다. 마우스에서 전신적인 탈모, 심한 피부 궤양, 또는 자발적인 급속한 모발 재생이 나타나는 경우 제외한다.
HPEMs
이전 방법에 따름40, 병원에서 포경수술을 받은 환자로부터 채취한 건강한 피부 조직을 선택하여 75% 알코올에 5분 동안 침지시켰다. 이후 피부 조직을 암피실린(100 U/mL)과 스트렙토마이신 설페이트(100 mg/mL)가 포함된 PBS로 반복 세척한 후, 디스페이스 II 용액에 넣어 4도에서 배양하였다°C에서 소화를 위해 밤새 방치한다. 분리 및 단리된 표피층을 잘게 다지고 멸균 막을 통해 여과하여 세포 현탁액을 얻었다. 원심분리 후, 침전된 하층 세포를 채취하여 혈청이 없는 멜라노사이트 254 배지에 다시 현탁시키고 약 5의 밀도로 재접종하였다. × 105 배양 플라스크에서 배양하고 CO₂ 인큐베이터에서 배양함2 배양기. 3회 계대 배양 후, 순수한 흑색세포를 후속 실험에 사용하였다.
H의 확립2O2-유도 인간 멜라닌세포 산화 스트레스 손상 모델 및 AMG 중재
융합도 60%에서 80%인 인간 흑색세포를 대조군과 다양한 농도의 H를 포함하는 군으로 나누었다2O2 (200, 400, 600, 800 및 1000 µM). 24시간 배양 후, 세포 생존율을 측정하였다. 평가됨 CCK-8 방법에 의해. 이후, H의 최적 농도를2O2 멜라노사이트의 산화 스트레스 모델을 구축하기 위해 사용하였으며, 다양한 농도의 AMG(0.1, 0.25, 0.5, 1, 2.5, 5 및 10 mg/mL)를 첨가하여 24시간 동안 배양하였다. 이후 세포 생존율을 측정하여 AMG의 농도를 평가하고 선별하였다.
HE 염색 검사
마우스의 간 및 신장 조직을 4% 파라포름알데히드에 24시간 동안 고정한 후 파라핀에 포매하고, 탈수 과정을 다음 단계에 따라 수행함: 70% 에탄올에서 4시간, 80% 에탄올에서 2시간, 90% 에탄올에서 2시간, 95% 에탄올에서 2시간, 무수 에탄올에서 각각 1시간씩 두 차례, 자일렌에서 각각 30분씩 두 차례38,39,41. 다음으로, 4-µm 파라핀 절편을 H&E 염색 후 탈수, 투명화 및 중성검을 이용한 마운팅을 수행하였다. 3D HISTECH 스캐너를 사용하여 조직 절편을 디지털화하고, 20배의 이미지를 획득하였다.× 및 40× 배율을 촬영하였다.
효소면역측정법(ELISA) 및 생화학적 검출
피부 조직을 1:9(w/v) 비율로 버퍼 용액에 넣어 균질화한 후, 1006 g에서 원심분리하였다.–1789 × g 10분 동안 반응시킨다. BCA를 이용하여 혈청, 피부 조직 추출물 및 세포 상층액의 단백질 정량 후, MDA, IL-6, IL-15 및 IFN-γ 대응하는 ELISA 키트를 사용하여 평가하였다. 또한 SOD, CAT 및 GPX-4의 효소 활성은 각각의 생화학 키트에 첨부된 설명서에 따라 측정하였다.
반응성 산소종(ROS) 검출을 위한 유세포분석법
무혈청 배지로 10을 희석하였다µM DCFH-DA를 1:1000 비율로 처리한 후, 마우스 피부 조직 또는 인간 멜라노사이트를 세포 현탁액으로 준비하였다.–20×106 세포/mL, 10을 사용하여µM DCFH-DA. 세포는 37도에서 배양하였다.°20분 동안 C에서 반응시킨다. 이 기간 동안 세포는 매 3분마다 흔들어 혼합한다.–5분 후, 무혈청 배지로 세 번 세척하고 세포 내 ROS 수준을 유세포분석법으로 정량화하였으며, 여기 및 방출 파장은 각각 488nm 및 525nm로 설정하였다.42,43.
면역형광 측정
FOXO3a (1:1000) 1차 항체를 4-와 함께 품온하였다.µm 피부 조직 절편 또는 고정된 HPEM을 4도에서 하룻밤 동안 처리°C. 그리고 난 후, 시료에 알렉사 플루오르 형광물질이 표지된 2차 항체로 처리하고 DAPI 용액으로 대조 염색하였다. 마지막으로 형광 현미경을 통해 절편을 관찰하고 이미지를 촬영하였다. 활성산소종(ROS)에 대한 형광 이미징을 위해, 4-µ피부 조직의 냉동 절편 또는 HPEM 슬라이드를 실온에서 재가온한 후 건조시켰다. 조직 주위로 히스토케미컬 펜을 사용하여 원을 그렸다. 슬라이드를 오토플루오레선스 억제제로 5분 동안 처리한 후 흐르는 물에서 10분간 세척하였다. ROS 염색 용액을 적신 후 어두운 곳에서 37도에서 반응시켰다.°30분 동안 C에서 반응시킨 후, 탈색용 진탕기에서 PBS로 5분씩 세 차례 세척하였다. 그 후 DAPI 염색 용액을 첨가하고 반응시켰다 어두운 조건에서 상온으로 10분 동안 반응시킨 후, 슬라이드에 형광 소거 매체를 사용하여 봉제하였다. 시료는 형광 현미경을 통해 관찰하였으며 이미지를 촬영하였다. 여기/방출 파장 프로파일은 330이다–380/420 nm(DAPI) 및 510–Cy3의 경우 560/590 nm
웨스턴 블롯
마우스 피부 조직 또는 인간 흑색소세포의 경우, 50 mg의 피부 조직 또는 2 × 10⁵ 세포와 1 mL의 프로테아제 억제제가 첨가된 RIPA 용해 버퍼를 1.5-mL 마이크로원심 튜브에 넣었다. 얼음 위에서 30분 동안 반응시킨 후, 12,000 g에서 5분간 원심분리하여 상등액을 회수하였다. BCA 방법으로 단백질 농도를 측정한 후, 단백질 용액과 5× SDS 로딩 버퍼를 4:1의 부피 비율로 혼합한 후, 95도의 메탈 베이스에서 끓였다. °5분 동안 C에서 반응시킨다. 시료를 80 V 또는 120 V에서 10% SDS-PAGE 전기영동한 후, 단백질을 0.22-µ상수 전류 200 mA에서 1시간 동안 PVDF 막을 전기영동44,45. 그 후 멤브레인을 원심 진탕기에서 상온으로 1시간 동안 5% 탈지분유(TBST 버퍼로 제조)로 차단하였다. 이후 멤브레인을 특정 1차 항체에 노출시켰다. 주조직적합성복합체 1형 (MHC I) (1:1000), IFN-γ (1:1000), IL-6 (1:1000), IL-15 (1:1000), β-액틴(1:1000), SOD(1:1000), CAT(1:1000), 글루타티온 퍼옥시다제 4(GPX-4)(1:1000) 및 FOXO3a(1:1000)를 4도에서 °C에서 하룻밤 동안 반응시킨 후, 막을 실온에서 1시간 동안 2차 항체(1:10000 희석)로 처리하였다. ChemiScope 6100을 사용하여 ECL 발광 시약으로 현상하고 이미지를 촬영하였다.
정량적 역전사-중합효소 연쇄 반응(qRT-PCR)
먼저, 마우스 피부 조직 또는 인간 흑색세포에서 시료 RNA를 제조업체의 지침에 따라 추출하였다.’총 RNA 추출 키트의 설명서에 따라 진행하였다. 역전사 키트의 작동 설명서에 따라 PCR 기기의 파라미터를 25로 설정하였다.°10분 동안 42°C°15분 동안 C에서 반응한 후 85°5분 동안 C에서 반응하여 cDNA 시료를 획득하였다. 마찬가지로, 충분한 DNA 복제 수를 얻기 위해 PCR 기기 설정 조건은 다음과 같았다: 사전 변성: 95°5분 동안 C, 1회 사이클; 변성: 95°10초 동안 95°C, 40회 사이클; 증폭 및 신장: 60°C°30초 동안 C, 40회 반복. 관심 유전자의 정규화된 발현량은 다음 공식을 사용하여 계산한다: 2‑ΔΔCq (ΔΔCq = Cq표적‑Cqβ‑액틴)46,47qRT-PCR을 위한 유전자 프라이머 서열 정보는 다음에 제시되어 있다. 표 1.
ChIP-PCR 분석
ChIP-PCR 분석은 이전의 실험 절차에 따라 수행하였다.48. 먼저, 세포를 1% 포르말데히드로 10분간 교차결합한 후, 글리신 용액을 첨가하여 교차결합 반응을 종결시켰다. PMSF이 포함된 냉각된 PBS로 세척한 후, SDS 용해 버퍼(PMSF 포함)를 이용하여 세포를 용해시켰다. 이후 초음파 세포분쇄기를 사용하여 염색질 DNA를 주로 200~1,000 bp 크기의 조각들로 절단하였으며, 아가로스 겔 전기영동을 통해 절단된 조각의 크기를 확인하였다. 절단된 염색질 시료는 PMSF이 포함된 ChIP 희석 버퍼에 재현탁시켰고, 20µ시료의 L을 입력 대조군으로 사용하였다. 나머지 시료는 Protein A+G Agarose/연어 정자 DNA로 전처리하였다. 그 후, 0.5µ1차 항체 g을 적용한 후, 4도에서 하룻밤 동안 배양함°느린 진탕 조건에서 C. 음성 대조군은 동일한 양의 토끼 IgG로 처리하였다. 다음 날, 항원-항체 복합체를 포획하기 위해 Protein A+G agarose 비드를 첨가하였으며, 복합체는 차례로 저염 농도의 면역복합체 세척 버퍼, 고염 농도의 면역복합체 세척 버퍼, LiCl 면역복합체 세척 버퍼 및 TE 버퍼로 세척하였다. 면역침전된 복합체는 용출 버퍼로 용출하였고, 용출 산물과 input 대조군의 시료 모두 65도에서 열처리를 진행하였다.°4시간 동안 65°C에서 가열하여 교차결합을 해제한 후, 단백질 분해 효소 K에 의한 단백질 소화를 진행하였다. 이후 페놀-클로로포름 추출과 에탄올 침전을 통해 DNA를 분리하였다. 정제된 DNA는 TE 버퍼에 용해시켜 후속 qRT-PCR 분석에 사용하였다. ChIP-PCR에 사용된 유전자 서열 정보는 다음과 같다. 표 2.
ChIP-PCR 후보 게놈 부위는 JASPAR 데이터베이스(https://jaspar.elixir.no/)를 이용한 인 실리코 예측을 통해 선정하였다. 구체적으로, 연구자들은 전사 개시 지점(TSS) 상류 2000 bp 범위에 해당하는 프로모터 서열을 추출하였다. CAT, SOD, 및 GPX4 유전자. 이러한 서열들은 해당 위치 가중치 행렬을 사용하여 FOXO3a 결합 모티프에 대해 분석되었다. 감수성과 특이성을 균형 있게 유지하기 위해 저자들은 상대적 프로파일 점수 임계값을 설정하였다. >80%. 이 기준을 충족하는 모든 예측된 모티프 중에서 저자들은 각 유전자에 대해 점수가 가장 높은 상위 두 개의 가설적 부위를 ChIP-PCR 검증을 위한 후보 영역으로 선정하였다. 예를 들어, CAT 유전자에서 선택된 부위는 전사 시작 지점(TSS)을 기준으로 -733 bp 및 -1259 bp 위치에 있었다. 본 연구에서 사용한 항-FOXO3a 항체는 상업적으로 공급되는 ChIP 등급 항체이다. 특이성을 확보하기 위해 저자들은 모든 ChIP-PCR 분석에 대해 이형성 IgG와 음성 유전체 부위라는 두 가지 독립적인 음성 대조군을 적용하였다. 이형성 IgG 대조군은 동일한 종에서 유래한 비면역 IgG를 사용하여 평행 면역침전을 수행함으로써 실시하였다. 음성 유전체 부위의 경우, FOXO3a의 예측된 합의 모티프가 존재하지 않는 비결합 영역을 표적으로 하는 특이적 프라이머 쌍을 설계하였다. 이 대조 영역을 통해 저자들은 무작위적인 크로마틴 절단 또는 비특이적 PCR 증폭으로 인한 부유도를 배제할 수 있었다. 상대적 부유도는 세 단계 정규화 전략을 사용하여 계산하였다.
1단계: 정규화된 입력 ΔCt, Δ정규화된 IP의 Ct = IP의 Ct - (Input의 Ct - log₂(DF) (1)
Δ정규화된 IgG의 Ct 값 = Ct[IgG] - (Ct[Input] - log₂(DF) (2)
DF = 입력 희석 인자; 실험에서 DF는 10% 입력을 사용했으므로 DF = 10이다.
2단계: ΔΔIP와 IgG 간의 Ct 값
ΔΔCt [IP/IgG] =Δ정규화된 IP의 Ct값Δ정규화된 IgG의 Ct 값 (3)
3단계: 폴드 증폭 = 2(-ΔΔCt [IP/IgG]. (4)
통계 분석
데이터는 평균으로 표시한다 ± 최소한 세 번의 독립된 실험을 기반으로 한 표준편차. 통계 분석은 GraphPad Prism 소프트웨어(버전 6.0)를 사용하여 수행하였다. 정규 분포 및 분산의 동질성을 따르는 여러 집단 간 데이터 비교는 일원분산분석(one-way analysis of variance, ANOVA)을 사용하여 평가하였으며, 이후 Tukey 검정을 수행하였다.’사후 검정. 통계적 유의성은 다음 기준에서 확립되었다. p < 0.05.
결과
AMG는 정상 C3H/HeJ 마우스에서 간신독성을 나타내지 않음
실험적 관점에서 AMG의 잠재적인 간 및 신장 독성을 명확히 확인하기 위해, 연구진은 이전에 연구된 세 가지 용량(60, 90, 120 mg/kg)의 AMG를 정상 C3H/HeJ 마우스에 경구 투여(gavage)하였다 38. 그림 1에 나타난 바와 같이, 세 가지 용량의 AMG를 21일 동안 위내 투여한 후, 간소엽의 구조는 뚜렷하였으며 간세포는 질서 있게 배열되어 있었다. 신장의 피질 및 수질 조직은 정상이었으며, 사구체나 신세뇨관에서 손상 또는 병변이 관찰되지 않았다. AMG 투여 기간 동안 마우스 중 어느 개체에서도 비정상적인 행동 징후가 나타나지 않았다. 실제로 본 논문에서는 생화학적 독성 및 체중 데이터가 측정되지 않았으며, 이는 AMG의 간신독성 부재에 대한 합리성에 영향을 미칠 수 있다. 그러나 간과 신장의 조직병리학적 검사 결과에 기반할 때, 이러한 데이터는 저자들이 설정한 용량으로 AA를 치료하기 위한 AMG 투여가 타당함을 부분적으로 시사한다.
AMG는 AA의 발생과 진행뿐만 아니라 ROS의 생성을 억제한다.
먼저, 그들은 다음과 같은 MHC I 및 IL-15 지표를 측정하였습니다. 발생 및 진행과 본질적으로 연관된 AA의. ~에서 보여지는 바와 같이 그림 2A–CAA 모사 병리 조건 하에서, C3H/HeJ 마우스의 피부 조직 내 MHC I 및 IL-15 단백질의 양이 유의미하게 증가하였다(p < 0.001). 반면, AMG-M 및 AMG-H 처리는 이 두 단백질의 발현 수준을 유의하게 하향 조절하였다(p < 0.01 또는 p < 0.001). 마찬가지로, 세 가지 용량의 AMG 처리는 혈청 내 IL-15 수치를 유의하게 억제하였습니다(p < 0.001, 그림 2D). 또한, 면역형광 염색 결과 AA군 마우스의 피부에서 다량의 ROS가 관찰된 반면, AMG 처치는 AA군과 비교하여 ROS 발현을 유의미하게 감소시켰다 (p < 0.001, 그림 2E 및 F). 일관되게, 유세포 분석 결과 AA 그룹의 피부 조직 내 ROS 수준이 ~에 비해 유의하게 상승한 것으로 나타났다. 대조군. 그러나 AA군과 비교했을 때, AMG 중재는 ROS의 증가를 역전시켰다(p < 0.001, 그림 2G 및 H).
AMG는 FOXO3a의 단백질 및 유전자 발현을 촉진했다.
AMG가 FOXO3a에 미치는 영향을 조사하기 위해, 저자들은 단백질과 유전자 수준 모두에서 그 발현 수준을 테스트하였습니다. 면역형광 결과, AA 군에서는 FOXO3a 단백질 발현이 현저히 감소한 반면, AMG는 C3H/HeJ 마우스의 피부 조직에서 FOXO3a 단백질 수준을 자극하는 것으로 나타났습니다.p < 0.001, 그림 3A 그리고 B). 추가적인 qRT-PCR 데이터는 AMG가 FOXO3a 유전자 발현을 유의하게 증가시켰음을 나타낸다(p < 0.001; 그림 3C). 마찬가지로, 웨스턴 블롯 실험 결과 AMG 상당히 증가된 FOXO3a의 단백질 발현(p < 0.05 또는 p < 0.001, 그림 3D 및 E).
AMG는 AA 마우스의 피부 조직에서 산화 스트레스 반응을 억제함
산화 스트레스에 의해 자극된 AA의 병리적 진행은 상태 악화로 이어진다. 그림 4의 생화학적 테스트 결과에 따르면, 대조군과 비교하여 AA군 마우스 피부 조직의 항산화 지표인 SOD, CAT 및 GPX-4는 유의하게 억제되었으며(p < 0.001, 그림 4A 및 B), 산화 촉진 지표인 MDA는 크게 증가하였다(p < 0.001, 그림 4C). 예상대로, 연구진은 AMG 처리 후 항산화 지표는 유의하게 증가하고 산화 촉진 지표는 유의하게 감소함을 확인하였다(p < 0.001; 그림 4A–C). 마찬가지로, Western blot 데이터 또한 AMG 중재가 항산화 지표인 SOD, CAT 및 GPX-4의 단백질 발현 수준을 유의하게 증가시켰음을 시사하였다(p < 0.001; 그림 4D 및 4E).
AMG는 H2O2에 의해 유도된 HPEM의 세포사멸 및 염증 반응을 감소시켰다
그림 5A에 제시된 결과는 H2O2 농도가 증가함에 따라(200–1000 µM) HPEM의 생존율이 점진적으로 저하되었음을 나타낸다 (p < 0.001). 그 중 600 µM H2O2가 HPEM의 세포 생존율을 감소시키는 데 가장 적합한 농도였다 (p < 0.001). 또한, 저자들은 600 µM H2O2로 자극된 HPEM 세포 조건에서 0.1–10 mg/mL의 AMG가 세포 생존율을 유의하게 증가시킬 수 있음을 발견하였다 (p < 0.05 또는 p < 0.001, 그림 5B). 동물 실험 결과와 일관되게, 저자들은 그림 5C 및 D의 세포사멸 검출을 위한 유세포 분석 결과에서 나타난 바와 같이 AMG가 HPEM에서 H2O2로 유도된 세포사멸을 유의하게 억제함을 확인하였다 (p < 0.001). MHC I 지표의 경우, Western blot 분석을 통해 AMG가 H2O2 유도 손상을 입은 HPEM의 단백질 발현을 현저히 억제함을 추가로 입증하였다 (p < 0.05 또는 p < 0.01; 그림 5E 및 5F). 염증 인자 검출을 위해 ELISA를 수행한 결과, AMG가 H2O2로 유도된 HPEM 내 IFN-γ, IL-6, IL-15를 포함한 전염증성 사이토카인의 양을 유의하게 감소시켰음을 나타냈다 (p < 0.001; 그림 5G). 나아가, AMG에 의한 이 세 가지 전염증성 단백질의 억제 효과는 그림 5H 및 I에 제시된 Western blot 분석을 통해 추가로 검증되었다 (p < 0.01 또는 p < 0.001).
AMG는 H2O2로 유도된 HPEM의 ROS 수준을 낮추었다
H2O2와 AMG를 처리하지 않은 HPEM 세포와 비교했을 때, 600 µM H2O2 자극은 면역형광법(p < 0.001, 그림 6A 및 B)과 유세포 분석 실험(p < 0.001, 그림 6C 및 D)의 결과에서 확인된 바와 같이 ROS 생성을 유의하게 촉진하였다. 흥미롭게도, AMG는 ROS 양을 유의하게 감소시켰다(p < 0.001, 그림 6).
AMG는 H2O2에 의해 유도된 인간 폐 상피세포(HPEMs)의 산화적 스트레스 반응을 억제했다.2O2
마찬가지로, 저자들은 H2O2에 의해 유도된 인간 폐 상피 세포(HPEM)의 산화 스트레스에 AMG가 어떤 영향을 미치는지 평가하였습니다.2O2대조군과 비교하여, H2O2 자극으로 인해 SOD, CAT 및 GPX-4의 기능이 감소하였다(p < 0.001, 그림 7A 그리고 B), 반면 MDA 수치는 유의하게 증가시켰다 (p < 0.001, 그림 7C). 놀랍게도, AMG 중재는 SOD, CAT 및 GPX-4의 활성을 유의하게 향상시켰다(p < 0.001, 그림 7A 및 B), 동시에 MDA 수치를 감소시켰다(p < 0.001, 그림 7C). 또한, 웨스턴 블롯 결과에서도 AMG 중재가 SOD, CAT 및 GPX-4의 단백질 발현을 유의하게 증가시켰음이 입증되었다(p < 0.05 또는 p < 0.01, 그림 7D 및 E).
AMG는 H2O2에 의해 유도된 HPEMs의 FOXO3a 수준 및 FOXO3a 조절 SOD, CAT, GPX-4를 촉진하였다
대조군과 비교하여, H2O2 자극은 FOXO3a 유전자 발현의 현저한 감소를 초래했으나(p < 0.001, 그림 8A), AMG 처치는 이러한 효과를 유의하게 완화시켰다(p < 0.05, 그림 8A). 추가적인 Western blot (p < 0.05, 그림 8B 및 C) 및 면역형광(p < 0.05, 그림 8D 및 E) 분석을 통해 AMG 적용이 FOXO3a의 단백질 발현을 실질적으로 증가시켰음을 확인하였다. ChIP-PCR 실험 결과, 그림 8F–I에 나타난 바와 같이 AMG가 SOD (p < 0.001), CAT (p < 0.01) 및 GPX-4 (p < 0.01)의 발현 수준을 높일 수 있으며, SOD (p < 0.001), CAT (p < 0.001) 및 GPX-4 (p < 0.001) 프로모터에서의 FOXO3a 농축 수준 또한 향상시킴을 확인하였다(그림 8J–L).
AMG는 H2O2에 의해 유도된 HPEMs의 FOXO3a 조절 산화적 스트레스 및 세포사멸 현상을 억제하였다
초기에 연구진은 FOXO3a의 단백질 발현(p < 0.001, Figure 9A 및 B)과 유전자(p < 0.001, Figure 9C) 발현 수준이 상당히 감소한 특성을 가진 FOXO3a 저발현 HPEM 세포주를 확립하였다. 유세포 분석 결과, H2O2 처리군과 비교하여 AMG는 FOXO3a 저발현 HPEMs에서 ROS 수치와 세포사멸을 현저히 감소시켰다(p < 0.001, Figure 9D–G). 한편, AMG는 FOXO3a 저발현 HPEMs에서 FOXO3a 단백질 및 유전자 발현(p < 0.01, Figure 9H–J)과 FOXO3a에 의해 조절되는 SOD, CAT 및 GPX-4 단백질(p < 0.05, p < 0.01 또는 p < 0.001, Figure 9H, K–O) 및 유전자의 발현 수준을 유의미하게 증가시켰다.
데이터 가용성:
모든 원시 데이터는 다음 URL의 공공 데이터 저장소에서 확인할 수 있습니다 https://doi.org/10.5281/zenodo.22090466.
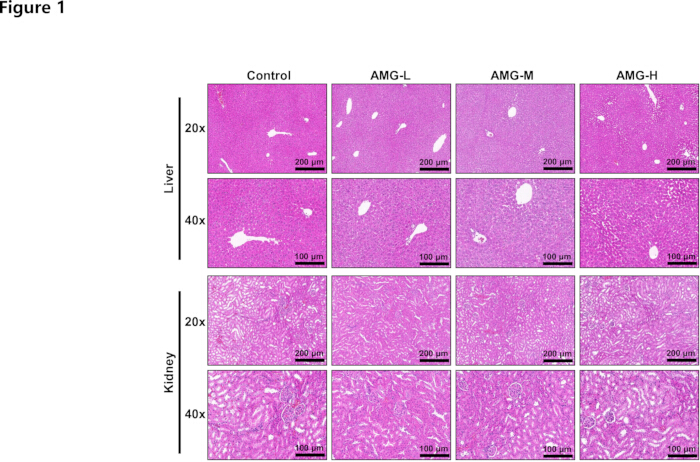
그림 1: HE 염색. 정상 C3H/HeJ 마우스의 간과 신장에 대한 AMG (60, 90, 120 mg/kg)의 용량 의존적 독성을 평가하기 위해 HE 염색을 수행하였다. 20× (200 µm) 및 40× (100 µm) 배율에서 간과 신장의 특이적인 병리학적 손상은 관찰되지 않았다. n = 6. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
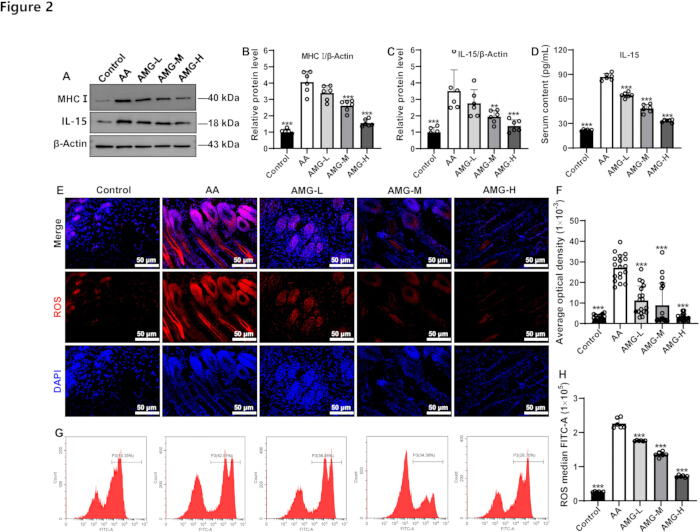
그림 2AA 마우스의 피부 시료 내 MHC I, IL-15 및 ROS에 미치는 AMG의 영향. (A–C), Western blot으로 평가한 결과, AMG는 MHC I 및 IL-15의 단백질 발현 수준을 감소시켰다. (D), AMG 감소됨 마우스 혈청 내 IL-15 수치.E 및 F), IF 분석으로 검출한 결과, AMG는 마우스 피부 샘플의 ROS 수치를 감소시켰다. (G 그리고 H), 유세포 분석 결과, AMG는 생쥐 피부 샘플의 ROS 수치를 감소시켰다. 실험 결과는 평균값의 형태로 제시되었다. ± 표준편차 **p < 0.01 및 ***p < 0.001 vs. AA 군; n = 6. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
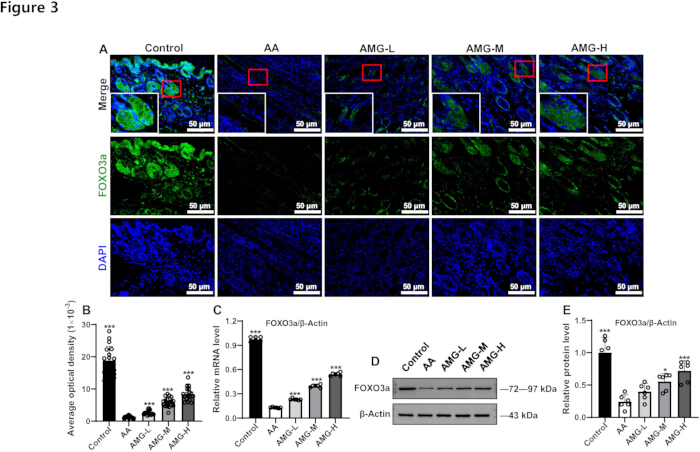
그림 3: AA 마우스의 피부 샘플에서 FOXO3a 단백질 및 유전자 수준에 미치는 AMG의 영향. (A) IF 분석으로 평가한 결과, AMG가 FOXO3a 단백질 수준을 증가시켰다. (B) IF의 정량적 결과. (C) AMG가 FOXO3a 유전자 발현을 증가시켰다. (D) Western blot으로 검출한 결과, AMG가 FOXO3a 단백질 발현을 증가시켰다. (E) Western blot의 정량적 결과. 실험 결과는 평균 ± SD 형태로 표시되었다. *p < 0.05 및 ***p < 0.001 vs. AA 그룹; n = 6. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
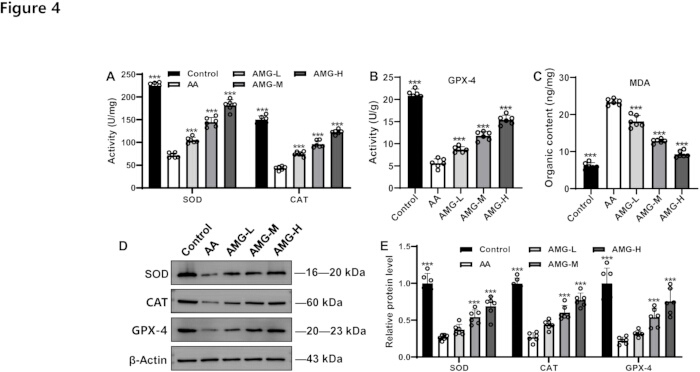
그림 4: AA 마우스의 피부 샘플 내 산화 스트레스 지표에 미치는 AMG의 영향. (A>) 생화학 테스트 키트를 사용하여 평가한 결과, AMG가 SOD 및 CAT 수준을 자극하였다. (B) 및 (C)에서 AMG는 GPX-4 수준을 증가시키고 MDA 수준을 억제하였다. (D>) SOD, CAT 및 GPX-4의 대표적인 단백질 밴드. (E>) SOD, CAT 및 GPX-4 단백질 발현의 정량적 결과. 실험 결과는 평균 ± SD 형태로 표시되었다. ***p < 0.001 vs. AA 군; n = 6. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
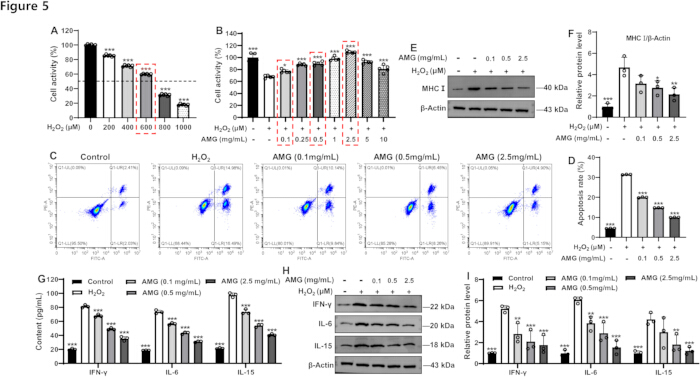
그림 5: H2O2에 의해 유도된 HPEMs의 세포사멸 및 염증 지표에 미치는 AMG의 영향. (A) 다양한 농도의 H2O2가 HPEMs 생존율에 미치는 영향 (n = 6). (B) H2O2 자극으로 유도된 HPEMs의 생존능에 미치는 다양한 농도의 AMG의 영향 (n = 6). (C) H2O2 자극으로 유도된 HPEMs에서 AMG 매개 세포사멸을 평가하기 위해 유세포 분석법을 사용하였다. (D) 세포사멸의 통계적 결과. (E) MHC I의 Western blot 밴드. (F) MHC I 단백질 상대적 발현의 정량적 결과. (G) H2O2 자극으로 유도된 HPEMs의 IFN-γ, IL-6 및 IL-15에 미치는 AMG의 영향. (H) IFN-γ, IL-6 및 IL-15의 Western blot 밴드. (I) IFN-γ, IL-6 및 IL-15 단백질 상대적 수준의 정량적 결과. 실험 결과는 평균 ± SD 형태로 나타냈다. *p < 0.05, **p < 0.01 및 ***p < 0.001 vs. H2O2 군; n = 3. 여기에서 이 그림의 확대 버전을 확인하십시오.
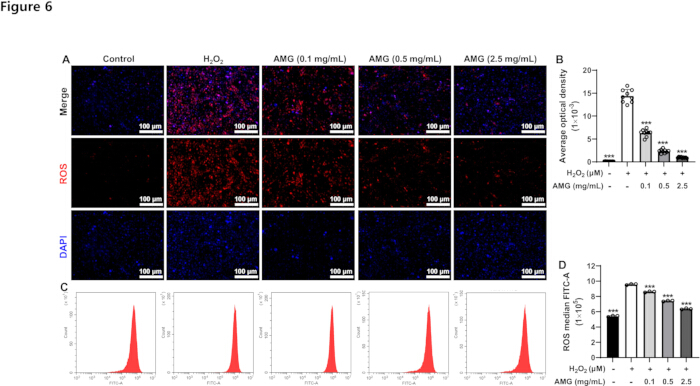
그림 6: H2O2로 유도된 HPEMs의 ROS에 미치는 AMG의 영향. (A) ROS의 형광 이미지. (B) ROS의 형광 정량 통계 결과. (C) ROS의 유세포 분석 이미지. (D) ROS의 유세포 분석 정량 통계 결과. 실험 결과는 평균 ± SD 형태로 표시됨. ***p < 0.001 vs. H2O2 군; n = 3. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
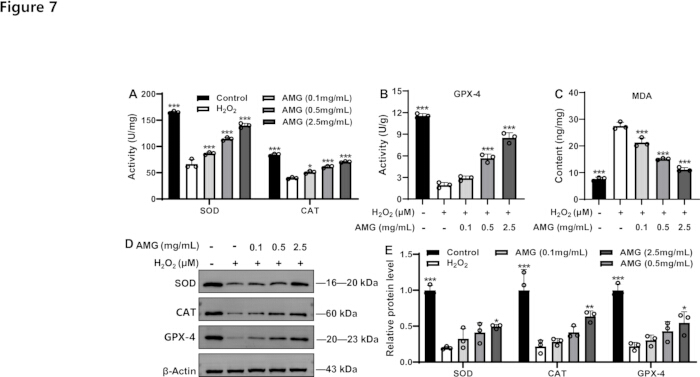
그림 7: H2O2로 유도된 HPEMs의 산화 스트레스 지표에 미치는 AMG의 효과. HPEMs 내의 SOD (A), CAT (B), GPX-4 (C) 및 MDA 수준을 생화학적 방법 또는 ELISA 키트를 사용하여 측정하였다. SOD, CAT 및 GPX-4의 Western blot 밴드(D)와 정량적 결과(E). 실험 결과는 mean ± SD로 표시되었다. *p < 0.05, **p < 0.01 및 ***p < 0.001 vs. H2O2 군; n = 3. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
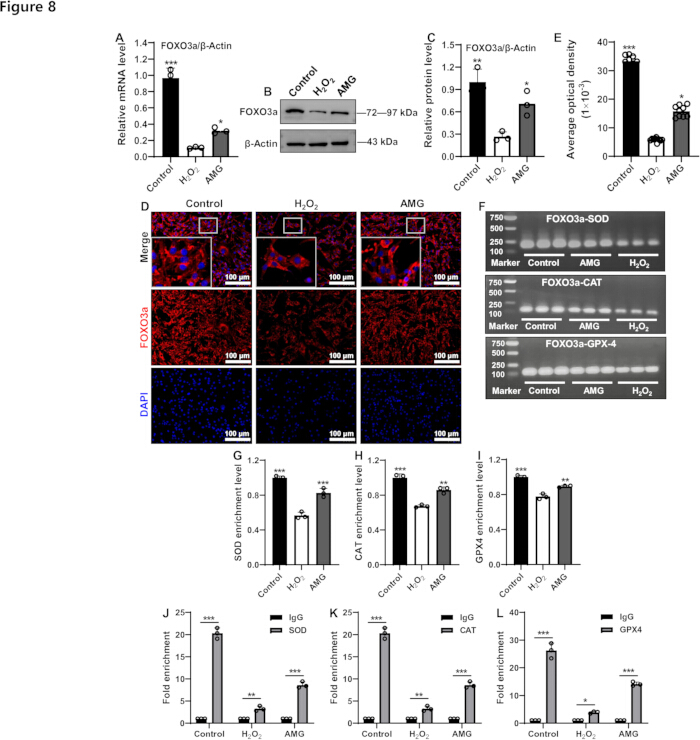
그림 8H₂O₂로 유도된 HPEM에서 FOXO3a에 미치는 AMG의 영향2O2. (A) FOXO3a 유전자의 발현 수준. FOXO3a의 웨스턴 블롯 밴드(B) 및 정량적 결과 (C). FOXO3a의 형광 이미지(D) 및 이에 대한 형광 정량 통계 결과(E). (F) FOXO3a-SOD, FOXO3a-CAT 및 FOXO3a-GPX-4에 대한 ChIP-PCR의 대표적인 전기영동 패턴. SOD(G), CAT(H), 그리고 GPX-4 (I). SOD의 프로모터에서 FOXO3a의 농축 수준(J), CAT (K), 그리고 GPX-4 (L)가 ChIP-PCR로 검출되었습니다. 실험 결과는 평균값의 형태로 제시되었습니다. ± 표준편차 *p < 0.05, **p < 0.01 및 ***p < 0.001 대 H₀2O2 그룹, 또는 표시된 그룹; n = 3. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
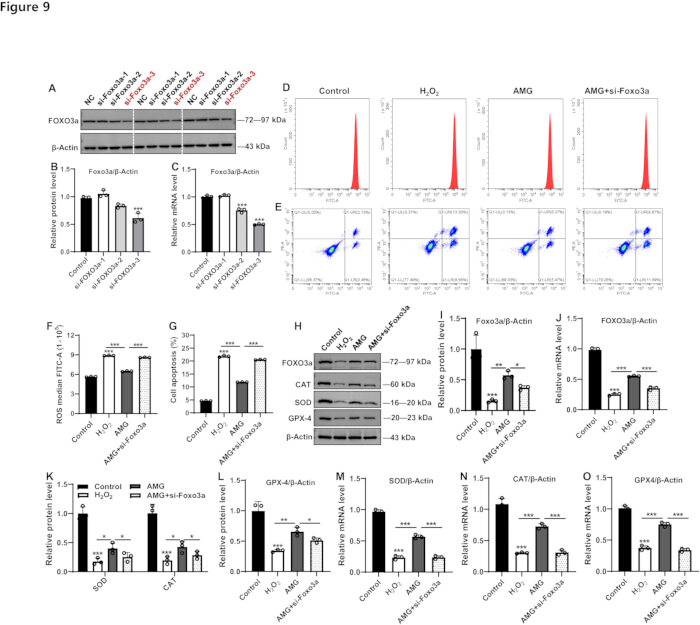
그림 9: FOXO3a 발현이 낮은 H2O2 자극 HPEMs 세포에서 oxidative stress 및 apoptosis에 미치는 AMG의 영향.(A) FOXO3a의 Western blot 밴드 및 정량 결과(B). (C) FOXO3a mRNA 발현의 정량 결과. (D) ROS 및 세포 apoptosis의 유세포 분석 그래프(E). 그리고 관련 통계 분석 결과(F 및 G). (H) FOXO3a, SOD, CAT 및 GPX-4의 Western blot 밴드. (I) FOXO3a 단백질 발현의 정량 결과. (J) FOXO3a mRNA 발현의 정량 결과. (K 및 L) SOD, CAT 및 GPX-4 단백질 발현의 정량 결과. SOD(M), CAT(N) 및 GPX-4(O) 유전자 발현의 정량 결과. 실험 결과는 mean ± SD 형태로 표시됨. *p < 0.05, **p < 0.01, ***p < 0.001 vs. 대조군 또는 표시된 군; n = 3. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
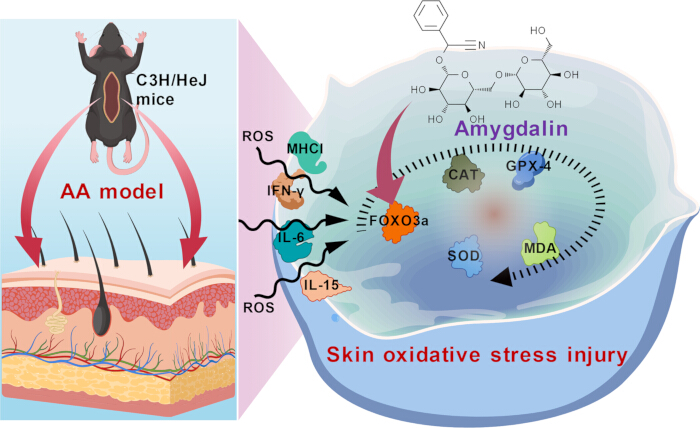
그림 10: 모식도 이 도식은 AMG가 FOXO3a 발현을 자극하여 산화 스트레스와 염증을 억제하고 AA를 개선하는 기전을 보여줍니다. 저자들이 다음을 사용하여 제작하였습니다. BioGDP.com이며, 저작권 관련 문제는 없습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
| 유전자 | 종 | 서열 (5' - 3') | 길이 (bp) |
| FOXO3a | 마우스 | 정방향: GCAAGCCGTGTACTGTGGA | 116 |
| 역방향: CGGGAGCGCGATGTTATCC | |||
| FOXO3a | 사람 | 정방향: CGGACAAACGGCTCACTCT | 150 |
| 역방향: GGACCCGCATGAATCGACTAT | |||
| SOD | 사람 | 정방향: AAAGATGGTGTGGCCGATGT | 167 |
| 역방향: CAAGCCAAACGACTTCCAGC | |||
| CAT | 사람 | 정방향: CTATCCTGACACTCACCGCC | 129 |
| 역방향: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | 사람 | 정방향: GCAAGGGCATCCTGGGAAAT | 84 |
| 역방향: GTTCTTGTCGATGAGGAACTGTG | |||
| β-Actin | 사람 | 정방향: AATCTGGCACCACACCTTCTACAA | 172 |
| 역방향: GGATAGCACAGCCTGGATAGCAA | |||
| β-Actin | 마우스 | 정방향: GTGCTATGTTGCTCTAGACTTCG | 174 |
| 역방향: ATGCCACAGGATTCCATACC |
표 1: qRT-PCR을 위한 유전자 서열 정보. qRT-PCR에 사용된 프라이머.
| 유전자 | 종 | 서열 (5' - 3') | 길이 (bp) |
| 초과산화물 불균등화 효소(SOD) | 인간 | 정방향: TGCCAGAAGAGGGACAGAACAGG | 173 |
| 역방향: ATCCGCCCACAGACACGAGAG | |||
| 컴퓨터 단층촬영(CT) | 인간 | 정방향: GGGAAGCAGATTTCTCCAGTG | 141 |
| 역방향: GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | 인간 | 정방향: TGGCACATTTTGGGGTTGGAAC | 103 |
| 역방향: TGAACGCTCCTCCTCCTTAAACG |
표 2: ChIP-PCR을 위한 유전자 서열 정보. ChIP-PCR에 사용된 프라이머.
토론
AMG 자체는 직접적인 독성이 없습니다. 이는 장내 미생물 효소 또는 위산에 의해 가수분해되어 매우 독성이 강한 시안화수소를 생성 및 방출합니다49. 시안화수소는 이후 소화관을 통해 혈류로 빠르게 흡수되어 전신 조직으로 퍼지며, 신경계, 심혈관계 및 호흡계 조직에 저산소증을 유발합니다50. 메커니즘 측면에서 시안화수소는 시토크롬 산화효소의 철 이온과 결합하여 세포 호흡 사슬을 차단하며, 이는 조직 저산소증과 세포 대사 장애를 초래하여 급성 중독을 일으킵니다51. 독성 증상으로는 두통, 메스꺼움, 구토 및 호흡 곤란이 포함됩니다49,52. 심한 경우 호흡 부전 및 사망에 이를 수 있습니다49,52. 따라서 AMG의 안전한 용량 범위를 확보하는 것은 약리 효과 연구의 전제 조건입니다. 본 연구에서 저자들은 병리 검사를 통해 사용된 용량(60, 90 및 120 mg/kg)이 정상 C3H/HeJ 마우스에서 간 또는 신장 독성을 유발하지 않았음을 먼저 확인하였으며, 이는 AMG를 이용한 원형 탈모증 치료에 관한 추가 연구의 기초가 됩니다.
IFN-γ는 주로 활성화된 CD4+/CD8+ T 세포에 의해 분비되며, AA의 발생 과정에서 염증의 핵심적인 동력원으로 작용합니다53,54,55. 이는 (MHC I의 낮은 발현을 억제하는 것과 같이) 모낭의 면역 특권을 파괴하여 자가 반응성 T 세포가 모낭의 멜라닌 세포를 공격하도록 유도하며, 그 결과 모모세포의 공포화 및 모구의 비정상적인 각질화를 초래합니다56,57. 동물 실험을 통해 IFN-γ 유전자가 결핍된 생쥐가 AA에 대한 저항성을 보인다는 것이 입증되었습니다58. IL-6와 IL-15는 JAK/STAT 신호 전달 경로를 활성화하고 IFN-γ의 방출을 촉진함으로써 Th1 유형의 면역 반응을 강화할 수 있습니다59. 또한, IL-15는 NK 세포와 T 세포의 증식을 자극하여 모낭 구조 주변의 염증성 침윤을 악화시킵니다60. 정상적인 모구는 MHC I의 낮은 발현을 통해 면역 감시를 회피하지만, AA 환자의 경우 MHC I이 비정상적으로 상향 조절되어 모낭의 멜라닌 세포가 T 세포 공격의 표적이 됩니다61. 본 연구에서 저자들은 AMG 처리가 C3H/HeJ 생쥐 피부의 MHC I 및 IL-15 단백질 수준을 유의하게 하향 조절했음을 확인했습니다. 이전의 동물 실험에서도 AMG가 AA 생쥐의 IFN-γ 및 IL-6 수준을 억제할 수 있음이 확인되었습니다38. H2O2로 유도된 HPEMs 손상 모델에서 MHC I뿐만 아니라 IFN-γ, IL-6, IL-15를 포함한 전염증성 사이토카인이 AMG 처리 후 상당히 제한되었습니다. 이러한 데이터는 AA 치료에 있어 AMG의 잠재력이 면역과 염증 사이의 균형을 유지하는 것과 관련이 있을 수 있음을 시사합니다.
항산화 효소 시스템(SOD, CAT 및 GPX-4)과 지질 과산화 마커인 MDA 및 ROS 사이의 불균형은 AA의 병인에서 중요한 역할을 합니다62. SOD는 O2·⁻를 H2O2로 전환하는 것을 촉매하여 산화 스트레스를 감소시키며, CAT와 GPX-4는 H2O2를 H2O로 추가 분해하여 ROS의 축적을 방지합니다. 과도한 ROS는 지질 과산화를 유발하여 MDA 수치를 높이고 모낭 세포를 직접적으로 손상시킬 수 있다는 증거가 있습니다63. AA 환자의 경우, 모낭 내 ROS 제거 능력이 감소하고 MDA의 축적이 모유두 세포의 세포사멸성 죽음을 악화시켜 모낭이 조기에 휴지기로 진입하게 됩니다63. 또한, 산화 스트레스는 염증 유발 인자인 IFN-γ의 방출을 촉진하여 면역 공격과 모낭 퇴행을 더욱 심화시킬 수 있습니다64. 본 연구에서 연구진은 AMG 중재가 AA 마우스의 피부와 H2O2로 유도된 HPEM 세포 손상에서 과발현된 ROS를 감소시켰음을 밝혔습니다. 동시에, in vivo 및 ex vivo 실험 조사는 모두 AMG 처리가 항산화 지표(SOD, CAT 및 GPX-4)를 유의하게 증가시키는 반면, 산화 촉진 지표인 MDA는 약화시켰음을 보여주었습니다. 이러한 증거들은 산화 스트레스의 균형을 유지하는 것이 AMG가 AA에 기여하는 바임을 나타냅니다. GPX-4 활성 저하가 억제되지 않은 MDA 생성을 초래하여 페로토시스(ferroptosis) 과정을 유발할 수 있다는 점을 고려할 때, 이러한 분자적 과정 또한 AA의 악화에 기여하며 AMG 치료의 잠재적 기전으로 작용할 수 있습니다. 이 모든 사항은 향후 추가적인 실험적 검증이 필요합니다.
핵심 전사 인자인 FOXO3a는 산화 스트레스 및 면역 조절 경로 모두를 통해 AA 발병 기전에 관여할 수 있다.65FOXO3a는 산화적 스트레스 조건에서 핵 내로 이동하여 SOD 및 CAT와 같은 주요 항산화 효소의 발현을 상향 조절함으로써, 과도한 ROS를 제거하고 두피 조직의 산화적 손상을 감소시킬 수 있습니다. FOXO3a는 국소적인 산화적 부담을 완화함으로써 모낭의 면역 특권을 안정화하고, 비흉터성 탈모를 유발하는 자가면역 공격을 억제할 수 있습니다. 산화적 스트레스 조절과 관련하여, FOXO3a의 활성화는 SOD 및 CAT와 같은 항산화 효소의 발현을 상향 조절하고 ROS의 축적을 억제할 수 있습니다.65하지만 FOXO3a 기능의 손상은 주요 지질 과산화 생성물인 MDA 생성을 증가시켜 세포 사멸을 악화시킬 수 있습니다 66. 면역 조절 수준에서 FOXO3a는 MHC I 제한 항원을 조절함으로써 자가면역 공격을 유발합니다.67본 연구는 AMG가 C3H/HeJ 마우스의 피부 조직 및 H2O2로 유도된 HPEM 세포에서 FOXO3a 단백질과 유전자 수준을 현저히 증가시켰음을 보고하였다. 또한, AMG는 FOXO3a 발현이 낮은 HPEM 세포에서 FOXO3a 발현과 FOXO3a에 의해 조절되는 SOD, CAT 및 GPX-4 수준을 높이는 동시에, ROS 수준과 세포 사멸을 감소시켰다. 종합하면, 이러한 결과들은 AA에 대한 AMG의 치료 효과가 FOXO3a에 의해 매개되는 산화 스트레스와 세포 사멸 사이의 조절 균형과 밀접하게 연관되어 있음을 나타냅니다. AMG에 의해 매개되는 FOXO3a가 AA를 개선하는 인과 관계를 고려할 때, 향후 연구에서는 AMG 처치 하에서 FOXO3a의 과발현 또는 약리학적 억제를 수행할 필요가 있습니다. 또한, AMG로 매개된 FOXO3a가 산화 스트레스를 완화하고 염증 반응을 조절함으로써 모낭 줄기세포를 ROS 유발 손상 및 면역 매개 파괴로부터 보호할 수 있는지 여부는 여전히 조사되어야 할 과제로 남아 있습니다. 또 다른 주목할 점은 AMG가 H2O2의 독성을 직접적으로 상쇄함으로써 항산화 효과를 발휘하는지 여부입니다.₂O₂ 또는 세포 내 신호 전달을 조절함으로써 수행되는지는 이 연구에서 여전히 해결되지 않은 과제로 남아 있습니다.
결론적으로, 본 연구는 우선 테스트된 용량에서 AMG가 간과 신장에 잠재적인 독성이 없음을 확인하였습니다. 또한, 분자 수준에서 AMG가 FOXO3a의 발현을 촉진함으로써 SOD, CAT 및 GPX-4의 발현을 전사적으로 활성화하고, 염증 반응과 세포 사멸 과정을 억제하여 AA를 치료할 수 있음을 입증하였습니다(그림 10). 그러나 본 연구에 존재하는 몇 가지 한계점들은 향후 연구를 통해 더욱 탐구되고 명확히 규명될 필요가 있습니다. 첫째, AA 동물 모델에서 AMG의 장기 독성 및 약동학적 특성을 규명하는 것은 약리학적 효과와 분자적 기전에 대한 심층 연구의 기초이자 전제 조건이 됩니다. 둘째, AA 치료에 있어 AMG의 약리학적 효과는 여전히 다양한 동물 모델을 이용한 대규모 연구와 임상 시험을 통한 확인이 필요합니다. 분자 기전 측면에서는, AMG의 약리학적 효과를 매개하는 것이 FOXO3a인지 추가로 확인하기 위해 구조 실험(rescue experiments)을 수행할 필요가 있습니다. AMG의 직접적인 항산화 활성인지, 아니면 AMG에 의해 매개된 FOXO3a에 의한 항산화 효과인지에 대해서는 추가적인 탐구가 필요합니다.
공개 사항
저자들은 신고할 만한 이해충돌이 없습니다.
저자 기여도:
헌 쉰: 조사, 방법론, 글쓰기 – 원안 작성. 징쑹 류, 지아웨이 왕, 체 다이: 데이터 관리. 유강 공, 웨이 루, 샤오웨이 샤: 소프트웨어, 시각화, 검증. 헌 쉰: 개념화, 글쓰기 – 검토 &편집, 기금 취득, 감독
감사의 글
이 연구는 Sichuan Provincial Cadres Healthcare Committee (2024-221)의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 5×올인원 마스터믹스 (AccuRT genomic DNA removal kit 포함) | Applied Biological Materials Inc., 중국 장쑤성 | G492 | |
| β-액틴 항체 | Affinity Biosciences Co., Ltd., 중국 우한 | AF7018 | |
| 아미그달린 | Chengdu Herbpurify Co., Ltd., 중국 청두 | K-001-181216 | |
| 카탈라아제 항체 | Proteintech, 중국 우한 | 66765-1-Ig | |
| 카탈라아제 키트 | Elabscience, 중국 우한 | E-BC-K031-M | |
| C3H/HeJ 마우스 | Chengdu Yaokang Biotechnology Co., Ltd., 중국 청두 | N000190 | |
| ChIP 분석 키트 | Beyotime Biotechnology, 중국 상하이 | P2078 | |
| 254 배양 배지 | Gibco, Thermo Fisher Scientific, 미국 | M-254-500 | |
| DAPI 염색 시약 | Servicebio, 중국 우한 | G1012 | |
| Dispase II | Shanghai Yuanye Bio-Technology Co., Ltd., 중국 상하이 | S25046 | |
| EvaGreen Express 2×qPCR 마스터믹스-염료 미포함 | Applied Biological Materials Inc., 중국 강쑤성 | MasterMix-ES | |
| Fast black HB | Sangon Biotech Co., Ltd., 중국 상하이 | A602008-0025 | |
| 우태아혈청 | 에브리 그린 | 13011-8611 | |
| 형광 현미경 | SOPTOP | CX40 | |
| FOXO3a 항체 | Proteintech, 중국 우한 | 10849-1-AP | |
| 동결절편기 | Thermo | 크라이오톰 E | |
| 글루타치온 퍼옥시다제 4 항체 | Proteintech, 중국 우한 | 67763-1-Ig | |
| 글루타치온 퍼옥시다제 4 키트 | Elabscience, 중국 우한 | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., Rockville, MD, USA | —— | |
| 이미퀴모드 크림 | Sichuan Mingxin Pharmaceutical Co. Ltd., 중국 청두 | H20030129 | |
| 인터페론 감마 항체 | Proteintech, 중국 우한 | 15365-1-AP | |
| 인터페론 감마 키트 | Elabscience, 중국 우한 | E-EL-H0108 및 E-EL-M0048 | |
| 인터루킨 6 항체 | Proteintech, 중국 우한 | 21865-1-AP | |
| 인터루킨 6 키트 | Elabscience, 중국 우한 | E-EL-H6156 및 E-EL-M0044 | |
| 인터루킨 15 항체 | Affinity Biosciences Ltd., 중국 우한 | DF2521 | |
| Interleukin 15 키트 | Elabscience, 중국 우한 | E-EL-H0222 및 E-EL-M0728 | |
| 말론디알데하이드 키트 | Elabscience, 중국 우한 | E-EL-0060 | |
| MHC 항체 | Affinity Biosciences Ltd., 중국 우한 | DF8558 | |
| 광학 현미경 | ZEISS | Primo Star | |
| 파라핀 절편기 | Thermo Scientific | HM325 | |
| 병리 스캐닝 소프트웨어 | 3DHISTECH (헝가리) | 슬라이드 뷰어 2.5.0 | |
| 페니실린-신스로이드 용액 | Biosharp, 중국 베이징 | BL505A | |
| 토끼 IgG | Beyotime Biotechnology, 중국 상하이 | A7016 | |
| ROS 분석 키트 | Beyotime Biotechnology, 중국 상하이 | S0033M | |
| Superoxide dismutase 1 항체 | Proteintech, 중국 우한 | 10269-1-AP | |
| 조직 매립기 | Wuhan Junjie Electronics Co., Ltd., 중국 우한 | JB-P5 | |
| 조직 수분 추출기 | Thermo Scientific | STP420 ES | |
| 전체 RNA 분리 키트 | Foregene, 중국 청두 | RE-03014 | |
| 총 슈퍼옥사이드 디스뮤타제 키트 | Elabscience, 중국 우한 | E-BC-K020-M | |
| 화이트 바세린 | Shanghai Aladdin Biochemical Technology Co., Ltd., 중국 상하이 | P434227 |
참고문헌
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.