본 연구에서는 고해상도 이미징을 위해 발달 중인 및 성체 Drosophila 시각계를 해부하고, 면역 염색 및 마운팅하는 상세하고 재현 가능한 프로토콜을 제공합니다. 이러한 방법들을 통해 신경모세포 패턴 형성, 뉴런 분화, 광수용기 축삭 타겟팅 및 성체 신경망 조직화를 시각화할 수 있으며, 이는 시각계 발달 연구를 위한 다각적인 프레임워크를 제공합니다.
이 논문에서
요약
초록
Drosophila 시각계는 신경세포의 다양성이 어떻게 생성되고 기능적인 신경 회로로 통합되는지를 탐구하는 강력한 모델이며, 이는 발달 신경과학의 핵심 질문입니다. 시각계는 망막과 네 개의 뚜렷한 신경절(neuropil)인 lamina, medulla, lobula, lobula plate로 구성되며, 이들은 함께 고도로 조직화된 구조를 형성하여 망막으로부터의 시각적 입력을 처리하고 이를 뇌의 고위 중추로 전달합니다. 발달 과정 동안 시각계는 상당한 재구성 과정을 거칩니다. 유충 발달 단계에서 신경모세포(neuroblasts)는 신경상피에서 점진적으로 생성되며, 공간적 및 시간적 패턴 형성 프로그램을 통합함으로써 비대칭 분열을 통해 다양한 신경세포 하위 유형을 생성합니다. 이후 이러한 신경세포들은 분화하여 성체 시각계의 기능적 회로를 구축하는 정밀한 시냅스 연결을 형성합니다. 이러한 역동적인 과정은 유충, 번데기 및 성체 단계를 가로지르는 면역염색을 통해 안정적으로 연구될 수 있습니다. 본 논문에서는 발달 중인 Drosophila 시각계와 성체 시각계를 해부하고 면역염색하는 상세하고 재현 가능한 프로토콜을 제공합니다. 우리는 주로 유충 신경모세포의 대표적인 이미징에 집중하여 시공간적 패턴 형성 및 신경세포 특이화를 강조하고, 성체 신경절의 형태를 시각화합니다. 이는 발달 중인 Drosophila 시각계를 시각화하기 위한 견고한 프레임워크를 제공합니다.
서론
The Drosophila melanogaster visual system serves as an important developmental model for exploring the cellular and molecular mechanisms underlying nervous system development. Its highly stereotyped structures, extensive genetic toolkit, and conserved developmental processes have advanced our understanding of neural stem cell development, neuronal specification, circuit assembly, and brain organization. The fly visual system consists of the compound eye retina and four optic neuropils - lamina, medulla, lobula, and lobula plate - arranged in a complex hierarchical circuit1. The sensory photoreceptor cells in the retina detect light and convert it into neural signals2,3,4. These signals pass through local interneurons and projection neurons that interconnect the four optic neuropils, where successive processing stages extract visual features such as contrast, motion, and colour4,5. The processed visual information is then transmitted to higher brain centers via visual projection neurons for further integration4,5,6.
The developing optic lobe undergoes a series of precisely timed developmental events that transform a proliferative neuroepithelium (NE) into a complex neural circuit network7,8 . The NE originates from the optic placode during embryogenesis7,8. During larval stages, neuroepithelial cells initially proliferate through symmetric divisions to expand the progenitor pool. Subsequently, they gradually transition to neuroblasts, which divide asymmetrically to generate neurons and glial cells of the adult visual system9,10,11,12,13. Spatio-temporal patterning mechanisms diversify neuronal identities, with newly generated neurons forming concentric layers within the developing medulla and subsequently differentiating into functional circuits during pupal development14,15,16,17,18,19. Integration of spatiotemporal cues activates cell-type-specific neuronal transcription factors, whose sustained expression specifies neuronal cell types14,15,20,21,22. Similar mechanisms exist in the lamina and lobula to specify neuronal identities14,23,24,25,26.
Immunofluorescence imaging of the developing visual system has become the method of choice for visualizing the cellular and molecular events underlying its development. Successful visualization depends not only on the preparation of high-quality tissue samples and reliable immunostaining reagents, but also on careful dissection and accurate sample orientation during mounting27,28. Different developmental structures and cellular processes require samples to be oriented in specific ways to reveal the brain's anatomical features. Several articles and protocols have described in detail the dissection and immunostaining of the Drosophila brain28,29,30,31,32. However, only a few have addressed this in the context of a widely studied developmental process in the visual system27.
Here we present a comprehensive protocol for the dissection, immunostaining, and mounting of larval and adult visual systems. A simple, cost-effective larval brain dissection method uses widely available syringe needles, making the procedure readily accessible for laboratories and teaching settings with limited specialised dissection tools. We demonstrate the protocol through representative examples, including visualisation of the larval neuroepithelium-to-neuroblast (NE to NB) transition, concentric neuronal organisation within the developing medulla, and the adult optic lobe neuropils. We also provide examples illustrating analyses of spatial and temporal patterning and photoreceptor targeting in the developing and adult visual system. Together, these procedures and defined mounting orientations provide a practical framework for obtaining reproducible, high-quality images of the developing and mature Drosophila visual system for neurodevelopmental studies.
프로토콜
1. 시약 및 장비 준비
Drosophila 시각 시스템의 성공적인 해부 및 면역 염색을 위해서는 실험 시작 전 모든 시약과 장비를 준비해야 합니다. 모든 용액을 미리 준비하면 조직 취급 시간을 최소화할 수 있으며, 절차 전반에 걸쳐 조직의 형태를 보존하는 데 도움이 됩니다. 다음 시약들을 준비하여 가까이 두어야 합니다:
- 인산완충생리식염수 (1x PBS): 조직 해부, 세척 및 시약 조제를 위해 10x 스톡 솔루션으로 1x PBS를 준비한다. PBS는 취급 중 조직의 무결성을 유지하는 등장성 환경을 제공한다. 1x PBS는 4 °C에서 보관한다.
- 해부 배지: 해부를 위해 얼음처럼 차가운 Schneider's insect medium을 사용한다. Schneider's medium은 곤충 혈림프의 이온 조성을 밀접하게 모방하여 Drosophila 조직을 지원하도록 구성되었으며, 장시간의 해부 작업에 권장된다.
- 고정액 (Triton X-100이 포함된 1x 인산완충생리식염수(PBST) 내 4% 포름알데히드): 최적의 고정과 조직 보존을 위해 16% 포름알데히드 스톡을 1x PBST로 희석하여 신선한 4% 포름알데히드 솔루션을 준비한다.
주의: 포름알데히드는 반응성이 매우 높으며 흡입, 섭취 또는 피부 흡수 시 독성이 있다. 적절한 개인 보호 장구(PPE)를 착용하고 화학 흄후드 내에서 취급하며, 전용 포름알데히드 유해 폐기물 함에 폐기한다. - 세척 완충액 (1x PBST): 세척 및 투과화제로 사용하기 위해 PBST (0.3% Triton X-100이 포함된 1x PBS)를 준비한다.
- 블로킹 용액: 5% bovine serum albumin (1x PBST 내 30% BSA로 조제) 또는 5% normal goat serum (1x PBST 내 5% NGS)을 블로킹 용액으로 사용한다. 이는 항체의 비특이적 결합을 줄이는 데 도움이 된다. 장기 보관 시 4 °C에서 보관한다.
- Sylgard 코팅 플레이트 준비: Sylgard 코팅 해부 접시는 조직을 고정시키고 미세 핀셋 팁을 보호하는 부드러운 표면을 제공한다. Sylgard 184 베이스와 경화제를 10:1 비율로 완전히 혼합될 때까지 섞는다. 페트리 접시에 부어 균일하게 코팅한 후, 마를 때까지 37 °C에서 2~4일 동안 경화시킨다. 실온(22–25 °C)에서 촉매제가 첨가된 Sylgard 184의 가용 시간(pot life)은 약 2시간이므로, 이 시간 내에 혼합물을 사용해야 한다.
- 조직의 형태를 보존하고 분해를 줄이기 위해 모든 해부 배지와 완충액을 미리 냉각하고, 시료 준비, 해부 및 면역 염색 동안 얼음 위에 보관한다. 프로토콜을 시작하기 전, 모든 해부 도구, 현미경 슬라이드, 커버슬립, 마운팅 용액, 핀셋 또는 해부용 바늘이 준비되어 즉시 사용할 수 있는지 확인한다. 적절한 발달 단계의 파리 또는 유충을 수집하여 해부 준비를 마친다.
Drosophila melanogaster를 이용한 연구에 별도의 윤리적 승인이나 지침은 필요하지 않았다.
2. 유충 뇌의 해부, 면역염색 및 마운팅
- 해부:
- 습한 붓을 사용하여 바이알 내부에서 8–10마리의 방랑기 3령 Drosophila 유충을 수집하고, 얼음처럼 차가운 1X PBS가 담긴 유리 스폿 플레이트에서 세척하여 잔류 음식 찌꺼기를 제거합니다.
- 포셉이나 작은 붓을 사용하여, 유리 스폿 플레이트에서 유충 한 마리를 150 mm 페트리 접시(Sylgard 없음) 중앙의 얼음처럼 차가운 1X PBS 또는 Schneider's medium 한 방울 위로 옮깁니다.
- 비우세손으로 1 mL 주사 바늘을 사용하여 유충의 몸통 중간 부분을 잡습니다. 우세손으로 동일한 위치에 주사 바늘로 횡단 절개를 하여 유충을 두 반으로 나눕니다 (그림 1A–B).
주의: 주사 바늘은 날카로워 부상을 입힐 수 있습니다. 사용한 날카로운 도구는 지정된 폐기물 전용 용기에 버리십시오. - 비우세손으로 검은색 구강 갈고리(mouth hooks)로 식별 가능한 유충의 앞부분 절단면을 잡습니다. 우세손의 주사 바늘로 양말을 뒤집어 씌우듯 구강 갈고리를 체강 안쪽으로 부드럽게 밀어 넣습니다. 이 동작을 통해 유충의 큐티클이 외반되어 뒤집힌 표본이 만들어집니다. 이 'inside-out' 해부법은 시간이 더 적게 걸리며 뇌와 눈 성반(eye discs)의 손상을 방지하는 데 도움이 됩니다 (그림 1C–D).
- 큐티클이 외반되면 뇌가 성반 및 구강 갈고리에 부착된 것을 볼 수 있습니다. 주사 바늘을 사용하여 장, 타액선, 지방체 등 불필요한 조직을 제거합니다 (그림 1E).
- 해부된 뇌를 얼음 위에 보관된 300 µL의 얼음처럼 차가운 1X PBS가 담긴 유리 스폿 플레이트로 옮깁니다 (그림 1F).
- 충분한 수의 뇌가 해부될 때까지 또는 20분이 경과할 때까지 단계 2.1.2–2.1.6을 반복합니다.
참고: 높은 조직 품질을 유지하기 위해 해부 시간은 20분을 초과해서는 안 됩니다. - 200 μL 피펫을 사용하여 뇌가 잠겨 있을 정도의 양만 남기고 버퍼의 대부분을 흡입하여 제거합니다.
- 고정: 해부 접시의 뇌에 차가운 고정액(4% formaldehyde) 200 μL를 추가하고 현미경용 유리 슬라이드로 덮은 후, 접시를 벤치탑 로커에 올리고 흔들림 속도 28, 흔들림 각도 8°에서 20분 동안 둡니다.
참고: 조직의 붕괴를 막기 위해 높은 흔들림 속도는 피하십시오.
주의: Formaldehyde는 위험 물질입니다. Formaldehyde가 포함된 용액을 취급할 때는 장갑, 실험복, 안면 마스크 및 보안경을 포함한 적절한 개인 보호 장구(PPE)를 착용하십시오. - 고정액을 흡입하여 제거한 후, 200 μL 세척 버퍼(0.3% Triton X-100 함유 1X PBS)를 추가합니다. PBST로 빠르게 두 번 헹군 후, 20분씩 두 번 세척합니다.
참고: Triton X-100은 조직 샘플을 투과성 있게 만들어 항체 침투를 용이하게 하는 핵심 계면활성제입니다. - 블로킹: PBST를 흡입하여 제거하고 뇌에 블로킹 용액(1x PBST 내 5% Normal Goat Serum 또는 5% BSA)을 추가합니다. 실온에서 40분 동안 배양합니다.
참고: 블로킹 용액에서의 배양은 조직 내 비특이적 결합 부위를 포화시켜 배경 염색을 줄이고 항체 특이성을 높입니다. 항체 염색이 특이적이고 배경이 최소화된 경우에는 이 단계를 생략할 수 있으나, 일반적으로 권장됩니다.
- 면역염색
- 권장 희석 배수로 약 50 μL의 세척 PBST에 1차 항체 칵테일을 준비합니다.
참고: 항체의 안정성과 활성을 유지하기 위해 준비 과정 중 항체 분주액(aliquots)을 얼음 위에 보관하십시오. - 유리 웰에서 뇌를 1.5 mL 마이크로원심분리 튜브로 옮깁니다. 뇌가 잠겨 있을 정도의 양만 남기고 과도한 블로킹 용액을 제거합니다.
- 항체 칵테일 용액을 준비하여 뇌가 든 튜브에 추가합니다. 항체가 고르게 분포되도록 20 µL 피펫 팁으로 부드럽게 피펫팅하여 섞습니다.
참고: 50 µL의 1차 항체 용액에서 뇌를 배양하면 염색 품질을 저하시키지 않으면서 항체 소모량을 줄일 수 있습니다. - 뇌가 든 튜브를 스탠드에 꽂아 4 °C에서 16시간 동안 배양합니다.
참고: 일부 경우에는 염색을 강화하기 위해 4 °C에서 48–72시간 동안 1차 항체 배양을 수행할 수 있습니다. 1차 항체는 염색 품질 저하 없이 최소 3회 재사용 가능합니다. - 200 μL의 PBST를 추가합니다. 빠르게 두 번 세척한 후, 20분씩 두 번 길게 세척합니다.
- 권장 희석 배수로 약 250 μL의 세척 PBST에 2차 항체 칵테일을 준비합니다.
참고: 광퇴색(photobleaching)을 일으킬 수 있는 빛 노출을 피하기 위해, 2차 항체 추가 후의 모든 배양은 암소에서 수행하십시오. - 과도한 PBST를 제거한 후, 뇌에 2차 항체 칵테일을 추가합니다. 암소 상태를 유지하기 위해 판지 상자로 덮은 채로 로커 위에서 실온(22–25 °C)에서 2시간 또는 4 °C에서 16시간 동안 배양합니다.
- PBST를 사용하여 위의 세척 단계(빠르게 2회 헹굼 후 20분씩 2회 길게 세척)를 반복합니다.
중단 지점: 뇌는 4 °C의 PBST에서 최대 1주일 동안 보관할 수 있습니다. 다만, 조직 분해나 형광체 감쇄로 인한 신호 손실을 최소화하기 위해 마운팅 후 가능한 한 빨리 이미징하는 것을 권장합니다.
- 권장 희석 배수로 약 50 μL의 세척 PBST에 1차 항체 칵테일을 준비합니다.
- 유충 시각엽(optic lobes) 마운팅
- 현미경 슬라이드를 70% 에탄올로 닦아 준비하고 5분 동안 말립니다 (그림 2E).
- 현미경 슬라이드 중앙에 두 개의 양면테이프 조각을 평행하게 붙이며, 조각 사이에 5–10 mm의 간격을 둡니다.
- 팁 끝을 자른 200 µL 피펫을 사용하여 뇌를 다른 깨끗한 현미경 슬라이드로 옮기고, 이미징 시 관심 영역을 가릴 수 있는 다리 성반과 같은 불필요한 조직을 제거합니다.
참고: 이미징 시 관심 영역을 가리지 않는 작은 조직들은 마운팅 중에 그대로 두어도 무방합니다. - 뇌를 양면테이프가 붙은 현미경 슬라이드로 옮깁니다.
참고: 뇌가 마르지 않도록 항상 1x PBST 버퍼에 잠겨 있게 하십시오. - 입체 현미경 하에서 뇌의 특징적인 돌출된 형태와 복측 신경삭(VNC)의 위치를 해부학적 지표로 사용하여 각 유충 뇌의 전-후 방향을 식별합니다 (그림 2A–D).
- 전면 마운팅: 돌출된 쪽이 슬라이드에서 멀어지도록 위를 향하게 하고, VNC가 슬라이드를 향하도록 뇌를 배치합니다 (그림 2A, 그림 3A).
- 후면 마운팅: 돌출된 쪽이 슬라이드를 향하고 VNC가 슬라이드에서 멀어지도록 뇌를 배치합니다 (그림 2B, 그림 3F).
- 측면 마운팅: 1 mL 주사 바늘이나 가는 텅스텐 바늘을 사용하여 전면 마운팅된 뇌와 VNC를 중앙선을 따라 이분하여 두 개의 반구로 나눕니다 (그림 2C). 각 반구를 90° 회전시켜 측면의 lobula-plug 쪽이 커버슬립을 향하고, 내측 절단면이 이미징 평면에서 멀어지도록 배치합니다 (그림 2D, 그림 3K).
참고: 원하는 방향을 얻기 위해 입체 현미경 하에서 뇌의 위치를 필요에 따라 조정하십시오. 배치하는 동안 뇌를 계속 잠겨 있게 유지하십시오. - 뇌가 잠겨 있을 정도의 양만 남기고 버퍼의 대부분을 흡입하여 제거합니다.
- 뇌가 있는 부위에 20–40 μL의 마운팅 용액(SlowFade Gold Antifade)을 추가하고 20 μL 피펫으로 고르게 폅니다.
- 커버슬립이 두 테이프 조각 위에 놓이도록 조심스럽게 덮고 가장자리를 매니큐어로 밀봉합니다.
참고: 커버슬립을 덮은 후 큰 기포가 생기면, 기포가 사라질 때까지 커버슬립과 슬라이드 사이의 틈에 마운팅 용액을 더 추가하십시오.
3. 성체 뇌의 해부, 면역 염색 및 마운팅
- 해부: 성체 뇌 해부는 기술적으로 더 까다로우며 세심한 취급이 필요합니다. 성체 뇌 해부 시에는 날카로운 스테인리스강 핀셋을 사용할 것을 강력히 권장합니다.
- 필요한 연령의 성체 초파리를 충분한 수만큼 CO2 패드 위에서 마취시킨 후, 해부 과정 동안 마취 상태를 유지할 수 있도록 아이스 버킷 위에 놓인 젖은 티슈 와이프로 옮깁니다.
참고: 마취 후 해부 과정 동안 조직 와이프로 초파리를 적신 상태에서 얼음 위에 두면, CO2를 계속 공급할 필요가 없습니다.2 패드를 부착하여 핸들링을 용이하게 합니다. - 미세 핀셋을 사용하여 성체 초파리의 다리 부분을 조심스럽게 집어 Sylgard가 코팅된 페트리 접시에 옮깁니다.
- 뇌 영역에서 떨어진 흉부 중앙을 통해 위에서 핀을 삽입하여 초파리를 Sylgard 코팅 플레이트에 고정하십시오. 초파리를 얼음처럼 차가운 1X PBS 버퍼/Schneider's Media 한 방울에 잠기게 하고, 초파리를 자신 쪽으로 회전시키거나 플레이트를 이동하여 해부를 위해 초파리의 머리 위치를 잡으십시오.
주의: 해부 핀은 날카로우므로 부상을 입을 수 있습니다. 지정된 손상성 폐기물 전용 용기에 폐기하십시오. - 우세손에 포셉을 사용하여 주둥이와 양 눈 사이의 전두 큐티클을 조심스럽게 제거하여 뇌를 부분적으로 노출시킵니다. 이렇게 하면 망막 큐티클 아래에 틈이 생겨, 이후 포셉을 이용한 뇌 해부 과정이 용이해집니다.
- 미세 핀셋을 사용하여 망막의 가장 바깥쪽 가장자리를 조심스럽게 잡고 양쪽으로 당겨 분리합니다. 망막을 벗겨낼 때 시엽을 찌르지 않도록 주의하십시오.
- 뇌에 부착된 기관이나 전장 같은 잔존 조직을 조심스럽게 제거하십시오.
- 세척된 뇌를 다음이 포함된 유리 스팟 플레이트로 옮깁니다. 200 µL 얼음 위에 보관한 1X PBS.
- 충분한 양의 뇌가 수집될 때까지 또는 30분이 경과할 때까지 해부 단계 3.1.2에서 3.1.7을 반복한다.
- 사용하십시오 200 µL 피펫을 사용하여 뇌 조직에서 PBS를 흡입하되, 조직이 잠겨 있을 정도의 최소량만 남깁니다.
- 고정: 추가 200 μL 분리된 성체 뇌가 담긴 유리 스팟 플레이트에 차가운 고정액(1X PBS 내 4% 포름알데히드)을 넣은 다음, 현미경용 유리 슬라이드로 덮은 플레이트를 벤치탑 로커(benchtop rocker)에 올리고 흔들림 속도 28로 30분 동안 반응시킨다.
주의: 포름알데히드는 위험 물질입니다. 포름알데히드가 함유된 용액을 취급할 때는 적절한 장갑, 실험복 및 보안경을 착용하십시오. - 고정액을 흡입하여 뇌가 잠길 정도의 양만 남긴 후, 다음을 추가하십시오. 200 µL PBST. 3회의 짧은 세척과 2회의 긴 세척(각 20분)을 반복한다.
- 블로킹: PBST를 제거하고 뇌 조직을 블로킹 용액(5% NGS 또는 5% BSA)에서 45분 동안 배양합니다.
- 뇌 조직을 1.5 mL 튜브로 옮긴 후, 뇌 조직이 잠길 정도의 양만 남기고 블로킹 용액의 대부분을 제거하십시오.
- 필요한 연령의 성체 초파리를 충분한 수만큼 CO2 패드 위에서 마취시킨 후, 해부 과정 동안 마취 상태를 유지할 수 있도록 아이스 버킷 위에 놓인 젖은 티슈 와이프로 옮깁니다.
- 면역염색
- 적절한 희석 배율로 1차 항체 칵테일을 준비하십시오. 50 µL PBST의.
- 뇌가 들어 있는 튜브에 1차 항체 칵테일을 추가하고 12~16시간 동안 다음 온도에서 배양합니다. 4 °C.
- 항체 용액을 흡입하여 제거한 후, PBST를 가해 빠르게 2회 헹구고 20분씩 2회 충분히 세척합니다.
- 권장 희석 배율에 따라 2차 항체 칵테일을 준비하십시오. 250 µL PBST의.
- PBST를 제거한 후 2차 항체 칵테일을 첨가합니다. 상온(22–25 °C)로 2시간 동안 또는 12~16시간 동안 유지하십시오. 4 °C 암실에서.
- 세척 과정을 반복합니다(빠른 세척 3회 및 긴 세척 2회, 각각 20분 동안 수행).
중단 지점: 이 단계에서 중단하고 뇌 조직을 PBST에 담가 다음 온도로 유지하십시오. 4 °C 일주일 동안.
- 성체 시각엽의 마운팅
- 70% 에탄올로 현미경 슬라이드를 세척하여 준비합니다.
- 뇌를 배치할 수 있도록 두 개의 18 x 18 mm 커버슬립을 소량의 다목적 접착제 위에 놓아, 슬라이드 사이에 공간(1 mm 미만)이 생기게 하여 커버슬립 브릿지를 준비합니다.그림 2F).
- ~을 사용하여 200 µL 팁 끝을 자르고, 세척된 뇌를 슬라이드로 옮긴 후, 이미징 시 시야를 가릴 수 있는 기도나 머리 큐티클과 같은 조직을 제거하십시오.
- 세척된 뇌를 단계 3.3.2에서 준비한 마운팅 슬라이드로 옮깁니다.
참고: 마운팅 과정 전반에 걸쳐 뇌 조직이 1x PBST에 잠겨 있도록 유지하고, 조직이 마르지 않도록 하십시오. - 실체현미경 하에서 전체적인 형태를 이용하여 각 성체 뇌의 전후 방향을 확인하십시오. 볼록한 표면은 전측에 해당하며, 오목한 표면은 후측에 해당합니다.
- 전방 고정: 뇌의 전면과 촉각엽이 커버슬립을 향하도록 배치합니다.그림 4A).
- 후면 고정: 뇌의 후면이 커버스립을 향하게 하고, 촉각엽은 커버스립 반대 방향을 향하도록 배치합니다(그림 4D).
- 측면 고정: 시각 신경절(visual neuropils)이 이미징 평면과 평행하도록 뇌를 배치합니다. 뇌를 전방 위치에 놓고 회전시킵니다. 90°, 그리고 이를 스페이서 커버슬립의 가장자리에 대어 지지합니다 (그림 4G).
- 뇌가 잠겨 있을 정도의 충분한 양만 남기고 1x PBST 버퍼의 대부분을 흡입하여 제거한다.
- 추가하십시오 40 μL 마운팅 용액(가급적 VECTASHIELD Antifade Mounting Media 사용)을 뇌가 포함된 영역 위에 떨어뜨린 후, 다음을 사용하여 고르게 펴줍니다. 20 μL 피펫을 사용하십시오. 필요한 경우 봉입제를 더 추가하십시오.
참고: VECTASHIELD Antifade Mounting Media는 점도가 높아 커버슬립 사이의 공간에 잘 유지되므로, 커버슬립 브릿지 슬라이드와 함께 사용하기에 적합합니다. - 22 x 22 mm 커버슬립을 다른 두 개의 커버슬립 위에 놓이도록 조심스럽게 배치하십시오. 틈새에 마운팅 용액을 더 추가하여 기포를 제거하십시오.
- 매니큐어로 가장자리를 밀봉합니다 (그림 2F).
4. 이미지 획득 및 이미지 처리
- Leica STELLARIS 8 공초점 현미경의 40x (NA = 1.3) 및 63x 오일 침수(NA = 1.4) 대물렌즈를 사용하여 1024 × 1024 픽셀 해상도로 이미지를 획득한다.
- 스캔 속도 200 Hz에서 z-step 1 µm 간격으로 Z-stack을 수집한다.
- 시료에 따라 0.75–1.0x의 줌 범위 내에서 양방향 스캔(bidirectional scanning)을 사용하여 이미징한다.
- 각 형광체에 적합한 검출기를 사용하고 게인(gain) 설정을 100으로 하여 검출을 수행한다.
참고: 405, 488, 555 및 647 nm의 들뜸 파장을 사용하며, 이미징하는 항체와 형광체에 따라 레이저 출력 세기를 조절한다. - Leica 획득 소프트웨어를 사용하여 이미지를 얻고, Fiji/ImageJ2 버전 2.16.0/1.54p를 사용하여 처리한다.
결과
성공적인 해부, 면역 염색 및 정확한 마운팅 방향 설정은 발달 중인 시엽의 전체 구조를 보존하고, 해부학적 특징, 발달 과정의 전환 및 세포 유형을 정확하게 포착하는 데 필수적입니다. 서로 다른 마운팅 방향은 유충 및 성체 Drosophila 시각 시스템의 상보적인 뷰를 제공하며, 이를 통해 다양한 해부학적 영역과 뉴런의 특징을 시각화할 수 있습니다.
유충 고정 방향:
이 섹션에서는 발달 중인 유충의 시각엽(optic lobe) 이미징을 용이하게 하는 대표적인 마운팅 방향을 설명합니다(그림 3). 유충 뇌의 모식도는 OPC, medulla, lamina를 포함한 주요 시각엽 구조를 강조하여 보여줍니다(그림 3A). 전방 마운팅(anterior mount)에서는 OPC, 신경상피-신경모세포(NE-to-NB) 전이 영역, medulla 신경모세포 밴드 및 발달 중인 lamina를 관찰할 수 있습니다. Deadpan (Dpn), E-Cadherin (ECad), Dachshund (Dac)로 염색된 전방 마운팅 뇌에서 이러한 구조들이 명확히 드러납니다(그림 3B). 또한 이 방향에서는 Hth, Opa, Erm, Ey의 순차적 발현을 통해 알 수 있듯이 medulla 신경모세포에서의 시간적 전사 인자 폭포(temporal transcription factor cascade)를 확인할 수 있습니다(그림 3C). lamina 뉴런 사이에 섞여 있는 anti-Chp 항체로 라벨링된 광수용체 축삭 또한 전방 방향에서 시각화할 수 있습니다(그림 3D, E). 후방 마운팅(posterior mounting)은 내부 증식 중심(IPC)과 OPC의 끝부분을 노출시켜, 발달 중인 시각엽의 상보적인 뷰를 제공합니다(그림 3F, G-H). lamina 뉴런 사이에 분포된 광수용체 축삭(Chp-양성) 또한 후방 방향에서 시각화가 가능합니다(그림 3I, J). 전방 마운팅과 더불어 이 방향은 발달 중인 유충 시각 시스템의 서로 다른 영역에 대한 상보적인 접근을 가능하게 합니다. 측방 마운팅(lateral mounting)은 뉴런의 동심원적 조직과 함께 OPC의 공간적 패턴을 보여줍니다(그림 3K). 측방 마운팅을 통해 medulla 뉴런의 동심원적 조직을 동시에 관찰할 수 있습니다(그림 3L). 대표적인 뉴런 집단으로는 공간 도메인에 구애받지 않는 Bsh-양성 medulla 내재 뉴런(Mi1)과 TfAP-2-양성 transmedullary 뉴런(Tm1, Tm2, Tm4, Tm6), 그리고 Dm8, DRA-Dm8, Dm11과 같은 영역 특이적 뉴런 서브타입이 포함됩니다(그림 3L). Vsx와 Optix (Optix-GAL4>GFP)는 신경상피(NE)에 존재하지만 신경모세포(NB)에는 없으며, Rx는 NE와 NB 모두에서 발견됩니다19. 또한, Vsx와 Rx는 각각의 공간 도메인에 해당하는 특정 분열 후 뉴런에서 발현됩니다19 (그림 3M). lamina와 medulla를 표적으로 하는 광수용체 축삭은 측방 방향에서 시각화할 수 있습니다(그림 3N, O). 이러한 마운팅 방향들을 통해 medulla 신경모세포의 공간적 및 시간적 패턴이 어떻게 서로 다른 뉴런의 정체성을 형성하는지 분석할 수 있습니다14,22.
성체 마운팅 방향: 이 섹션에서는 성체 Drosophila 시각엽 이미징을 위한 마운팅 방향의 도식과 대표적인 예를 제시합니다. 전면 마운팅(Anterior mounting)은 시각엽의 정면 뷰를 제공하여 층판(lamina), 수질(medulla), 그리고 소엽(lobula) 및 소엽판(lobula plate)의 전면부를 보여줍니다(그림 4A). Anti-Bruchpilot (Brp)는 시각 신경절을 표지하며, Bsh는 수질 피질의 Mi1 뉴런을 표지합니다(그림 4B). 동일한 방향에서 anti-Chaoptin (Chp)은 층판과 수질로 투사되는 광수용기 축삭을 표지합니다(그림 4C). 후면 마운팅(Posterior mounting) 방향은 시각엽의 더 깊은 영역을 노출시켜, 수질 신경절을 깊이 있게 시각화할 수 있게 합니다(그림 4D, E). 이 방향에서 Chp 염색은 수질 내의 광수용기 말단을 구분해 냅니다(그림 4F). 측면 마운팅(Lateral mounting)은 시각엽의 측면 뷰를 제공하여 층판, 수질, 소엽, 소엽판을 동시에 시각화할 수 있게 합니다(그림 4G, H). Bsh는 수질 내인성 뉴런(Mi1)과 함께 층판 뉴런(L4 및 L5)을 표지하며, Brp는 신경절 경계를 정의합니다. 광수용기 투사는 층판과 수질 내를 타깃으로 하며(그림 4I), 이를 통해 성체 시각 시스템의 조직 구성에 대한 개요를 제공합니다.
전면, 후면 및 측면의 장착 방향을 종합적으로 활용하면 발달 중인 시각 체계와 성숙한 시각 체계를 상호 보완적인 관점에서 관찰할 수 있으며, 이를 통해 연구자는 실험 목적에 따라 서로 다른 해부학적 영역, 발달 특성 및 뉴런 집단을 조사할 수 있습니다.
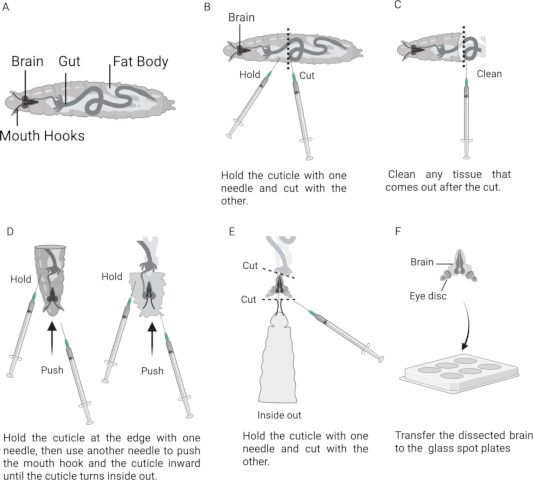
그림 1: 주사바늘법을 이용한 Drosophila 유충 뇌의 해부. (A) 뇌의 위치와 관련 해부학적 구조를 보여주는 3령 후기 유충의 모식도. (B) 두 개의 주사바늘 사이에 위치한 유충의 모습이며, 점선은 횡단 절단 부위의 대략적인 위치를 나타냄. (C) 주변 조직을 제거한 후의 유충 앞부분. (D) 주사바늘을 사용하여 유충 큐티클을 반전시키는 순차적 단계. (E) 뇌, 성충원반(imaginal discs) 및 구강 갈고리(mouth hooks)가 노출된 외반 표본. (F) 유리 스팟 플레이트에 분리된 유충 뇌. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
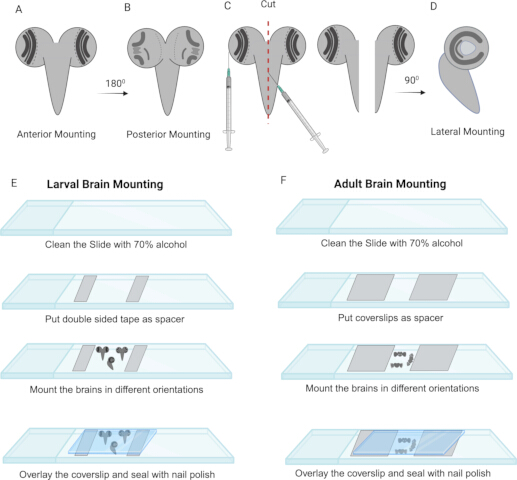
그림 2: Drosophila 유충 및 성체 시각엽의 마운팅 단계. (A) 유충 뇌의 전면 마운팅 방향. (B) 유충 뇌의 후면 마운팅 방향. (C) 주사 바늘을 이용한 전면 마운팅 뇌의 양측 이분할. (D) 반분할된 뇌의 측면 마운팅 방향. (E) 유충 뇌 마운팅의 대표 단계. (F) 성체 뇌 마운팅의 대표 단계. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
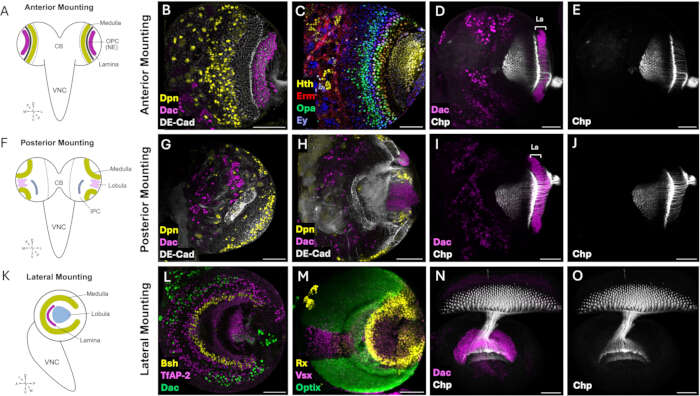
그림 3: Drosophila 유충 시각 시스템 이미징을 위한 마운팅 방향. (A) 전방 표면이 커버슬립을 향하도록 한 3령 유충 뇌의 전방 마운팅 방향을 보여주는 모식도. (B) 전방으로 마운팅된 유충 뇌의 대표적인 공초점 이미지로, anti-DE-Cadherin(DE-CAD, 회색)으로 표지된 외측 증식 중심(OPC), anti-Deadpan(Dpn, 노란색)으로 표지된 메둘라 신경모세포, 그리고 anti-Dachshund(Dac, 마젠타색)로 표지된 발달 중인 라미나가 보임. (C) 신경모세포 발달 과정 중 시간적 전사 인자인 Homothorax(Hth), Odd-paired(Opa), Earmuff(Erm), Eyeless(Ey)를 순차적으로 발현하는 메둘라 NBs의 이미지. (D-E) 안구 성충판(eye imaginal disc)에서 발달 중인 라미나와 메둘라로 투사되는 광수용기 축삭의 대표 이미지. (F) 후방 표면이 커버슬립을 향하도록 한 유충 뇌의 후방 마운팅 방향을 보여주는 모식도. (G) 시각엽의 표층 후방 표면의 공초점 이미지로, 내측 증식 중심(IPC)과 OPC의 끝부분(tOPC)에 위치한 메둘라 신경모세포가 보임. (H) 후방 시각엽 더 깊은 곳에서 획득한 광학 단면으로, IPC와 발달 중인 로불라가 강조됨. (I-J) 발달 중인 시각엽으로 투사되는 광수용기 축삭의 후방 뷰. (K) 절단된 내측 표면이 커버슬립을 향하도록 하여 라미나 및 로불라 플러그와 함께 발달 중인 메둘라의 동심원적 구조를 시각화한 반분된 유충 뇌의 외측 마운팅 방향 모식도. (L) 메둘라 뉴런 집단의 동심원적 배치를 보여주는 대표 공초점 이미지로, Brain-specific homeobox(Bsh)로 표지된 Mi1 뉴런, TfAP-2로 표지된 Tm1, Tm2, Tm4, Tm6 뉴런, 복측 메둘라의 Dachshund(Dac)-양성 Dm8 뉴런, 그리고 배측 가장자리 영역(dorsal rim area)의 DRA-Dm8 및 Dm11 뉴런이 포함되어 메둘라 뉴런 서브타입의 공간적 조직화를 보여줌. (M) 발달 중인 시각엽에서 전사 인자인 Vsx, Optix (Optix-GAL4>GFP), Rx에 의해 정의되는 공간적 패턴 영역을 보여주는 외측 증식 중심의 최대 강도 투사(maximum intensity projection) 이미지. (N-O) 외측 마운팅 방향에서 광수용기 축삭의 대표 이미지로, 발달 중인 라미나와 메둘라 내에서의 투사와 타겟팅을 보여줌. 스케일 바 = 50 µm. 약어: La = Lamina. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
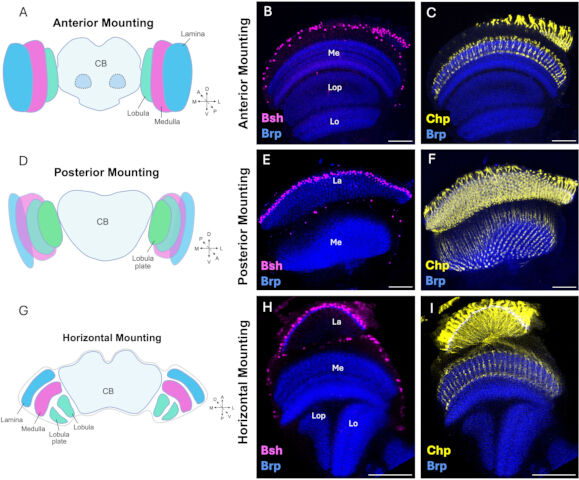
그림 4: 성체 Drosophila 시각계 이미징을 위한 마운팅 방향. (A) 성체 뇌의 전면(anterior) 마운팅 방향을 보여주는 모식도로, 전면 표면이 커버슬립을 향하고 있다. (B) 전면으로 마운팅된 성체 뇌의 대표적인 공초점 이미지로, medulla cortex 내의 Brain-specific homeobox (Bsh)-양성 Mi1 뉴런(magenta)과 anti-Bruchpilot (Brp, blue)로 라벨링된 neuropils를 보여준다. 이 방향은 주변부 lamina, medulla, lobula 및 lobula plate의 전면 뷰를 제공한다. (C) lamina 및 medulla neuropils로 투사되는 anti-Chaoptin (Chp, yellow) 라벨링된 광수용기 축삭의 대표 이미지. (D) 성체 뇌의 후면(posterior) 마운팅 방향을 보여주는 모식도로, 후면 표면이 커버슬립을 향하고 있다. (E) 후면으로 마운팅된 성체 시각계의 대표 공초점 이미지로, anti-Brp로 라벨링된 medulla neuropil의 더 깊은 층을 강조한다. (F) anti-Chaoptin (Chp, yellow)으로 라벨링된 광수용기 축삭의 후면 뷰로, medulla neuropil 내의 타겟팅을 보여준다. (G) 성체 뇌의 측면(lateral) 마운팅 방향을 보여주는 모식도로, 시각계의 전반적인 조직을 시각화하기 위해 한쪽 optic lobe가 커버슬립과 평행하게 배치되어 있다. (H) 성체 optic lobe의 대표적인 측면 뷰로, Bsh-양성 lamina 뉴런 (L4 및 L5)과 medulla Mi1 뉴런 (magenta), 그리고 anti-Brp (blue)로 라벨링된 neuropils를 함께 보여주며, lamina, medulla, lobula 및 lobula plate의 공간적 조직을 나타낸다. (I) anti-Brp (blue)로 라벨링된 lamina 및 medulla neuropils로 투사되는 anti-Chaoptin (Chp, yellow) 라벨링된 광수용기 축삭의 대표 이미지. 스케일 바 = 50 µm. 약어: Me = Medulla; La = Lamina; Lo = Lobula; Lop = Lobula plate. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
본 프로토콜은 고해상도 공초점 이미징을 위해 Drosophila 유충 및 성체 시각 시스템을 박리하고 면역 염색 및 마운팅하는 신뢰할 수 있는 방법을 제공합니다. 이 절차는 발달 중인 시각엽과 성숙한 시각엽의 구조적 무결성과 형태를 유지하는 동시에, 주요 발달 과정, 신경세포군 및 신경망 구조를 최적으로 시각화할 수 있는 마운팅 방향을 제공합니다. 설명된 대표적인 예로는 신경상피-신경모세포(NE-to-NB) 전이, 메둘라(medulla) 내의 시공간적 패턴 형성, 시각엽 내의 광수용기 축삭 타겟팅, 그리고 성체 시각 시스템 신경망의 조직화 등이 포함됩니다9,10,13,14,23. 따라서 본 프로토콜은 모든 발달 단계에서 다른 과정이나 세포 유형을 시각화하는 데 쉽게 적용할 수 있는 유연한 프레임워크를 제공합니다.
이 프로토콜은 이전에 발표된 방법들과 비교하여 유충 및 성체 Drosophila 시각 시스템 모두에 최적화된 절차를 결합하였으며, 다양한 실험적 질문에 맞춘 여러 마운팅 방향을 제공합니다. Drosophila 뇌 해부 및 면역 염색을 설명하는 여러 발표된 프로토콜들이 있지만28,29,30,31,32, 발달 과정의 관점에서 시각 시스템에 특별히 초점을 맞춘 경우는 상대적으로 적습니다27. 본 프로토콜에서는 특수 미세 핀셋 대신 쉽게 구할 수 있는 1 mL 주사기를 사용하는 대체 유충 해부 방법을 설명합니다. 이 접근 방식은 숙련되는 데 더 많은 시간이 필요하지만, 깨끗하고 저렴하며 신속한 대안을 제공하므로 특수 해부 장비에 대한 접근성이 제한적인 교육 실험실 및 연구 그룹에 특히 유용할 수 있습니다. 저희가 파악한 바로는, 이 해부 방법은 해부 중에 뇌를 잡아당겨 종종 손상을 일으키는 핀셋 방법에 비해 뇌에 가해지는 부담이 적습니다. 또한, 저희의 면역 염색 프로토콜은 염색 품질을 저하시키지 않으면서 감소된 부피의 항체 칵테일을 신중하게 사용하여, 흔히 고가인 상용 항체를 절약합니다. 이러한 특징들은 접근성, 해부 및 마운팅 측면에서 실질적인 이점을 제공하며, 동시에 다양한 실험적 요구 사항에 맞게 프로토콜을 쉽게 조정할 수 있게 합니다.
프로토콜을 성공적으로 구현하려면 몇 가지 핵심 단계에 주의를 기울여야 합니다. 일반적인 문제들은 일반적으로 해부, 고정, 염색 또는 마운팅 과정을 조정함으로써 해결할 수 있습니다. 해부, 로킹(rocking) 또는 피펫팅 과정 중 과도한 기계적 스트레스가 가해지면 조직 손상이나 파편화가 발생할 수 있습니다. 따라서 해부는 얼음처럼 차가운 PBS에서 빠르게 수행하고, 주변 조직을 제거할 때와 이후의 로킹 및 피펫팅 과정에서 부드러운 동작을 사용하십시오. 조직의 왜곡, 형태 손실 또는 불균일한 염색으로 나타나는 불충분한 고정은 고정 시간이 부족하거나 고정액이 부적절할 때 발생할 수 있습니다. 갓 조제한 포름알데히드 용액을 사용하고 고정 중에 조직을 완전히 침전시키면 조직의 형태와 염색 일관성을 유지하는 데 도움이 됩니다. 약하거나 불균일한 염색은 투과화(permeabilization) 부족, 항체 침투 불충분 또는 최적화되지 않은 항체 배양으로 인해 발생할 수 있습니다. 투과화 또는 항체 배양 시간을 늘리고, 적절한 경우 4 °C에서 1차 항체 배양 시간을 연장하면 항체 침투와 염색이 개선될 수 있습니다. 높은 배경 염색은 불충분한 블로킹(blocking)이나 세척, 또는 과도한 항체 농도로 인해 발생할 수 있습니다. 적절한 블로킹과 세척을 수행하고 항체 농도를 적절히 조정하면 비특이적 염색을 줄이는 데 도움이 됩니다. 잘못된 마운팅 방향은 관심 영역을 가리거나 커버슬립에서 너무 멀리 위치하게 만들 수 있습니다. 프로토콜에 설명된 해부학적 지표에 따라 뇌의 방향을 다시 설정하고 관심 영역을 커버슬립 가까이에 배치하면 정확한 해부학적 특징의 이미징이 용이해집니다.
이 프로토콜은 다용도로 활용 가능하지만, 특정 조직, 발달 단계, 항체 및 이미징 요구 사항에 따라 조정이 필요할 수 있습니다. 예를 들어, 일부 조직은 얼음 위에서 고정 시간을 단축하는 것이 유리할 수 있는 반면, 특정 항체는 4 °C에서 최대 일주일 동안 장시간 배양하거나, 반대로 22–25 °C에서 짧게 배양해야 할 수도 있습니다. 고정 품질은 뇌와 시엽(optic lobe)의 전반적인 형태 보존 상태, 뚜렷한 조직 경계, 그리고 왜곡, 파편화 또는 분리가 최소화되었는지 여부로 평가할 수 있습니다. 마찬가지로, 적절한 투과화 여부는 조직 전반에 걸쳐 항체 염색이 비교적 균일하게 나타나는지로 평가할 수 있으며, 이는 항체가 충분히 침투했음을 나타냅니다. 이러한 고려 사항을 통해 Drosophila 시각 시스템을 보존하면서 특정 실험 응용 분야에 맞게 고정, 투과화, 염색 및 마운팅 조건을 유연하게 조정할 수 있습니다.
공개 사항
저자들은 이해 상충 관계가 없음을 밝힙니다. 저자들은 모든 최종 수정본을 검토하고 승인하였습니다.
언어 교정 도구(Grammarly)를 사용하여 철자를 수정하고 문장 구조를 재구성하였습니다.
감사의 글
Brp, Dac, DE-Cad 및 Chp 단클론 항체는 NIH의 NICHD가 생성하고 아이오와 대학교 생물학과(Iowa City, IA 52242)에서 관리하는 Developmental Studies Hybridoma Bank로부터 입수하였습니다. A.B., A.R. 및 C.S.는 NYU Abu Dhabi Center for Genomics and Systems Biology (ADHPG-CGSB)에 수여된 NYU Abu Dhabi Research Institute Award를 통해 Tamkeen의 지원을 받았으며, C.D.는 NIH RO1 EY017916의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Austerlitz 곤충 고정 핀, 0.15mm | Fine Science Tools | 26002-15 | |
| 항체: Mouse anti-Brp | Developmental Studies Hybridoma Bank | nc82 | 희석 배수 1:50 |
| 항체: Mouse anti-Chp | Developmental Studies Hybridoma Bank | 24B10 | 희석 배수 1:50 |
| 항체: Rat anti-DE-CAD | Developmental Studies Hybridoma Bank | DCAD2 | 희석 배수 1:20 |
| 항체: Mouse anti-Dac | Developmental Studies Hybridoma Bank | mAbdac1-1 | 희석 배수 1:100 |
| 항체: Sheep anti-GFP | BioRad | 4745-1051 | 희석 배수 1:200 |
| 항체: Rabiit anti-Bsh | Desplan lab | - | 희석 배수 1:1000 |
| 항체: Guinea pig anti-Hth | Desplan lab | - | 희석 배수 1:100 |
| 항체: Guinea pig anti-TfAP-2 | Desplan lab | - | 희석 배수 1:500 |
| 항체: Rabbit anti-Ey | Desplan lab | - | 희석 배수 1:200 |
| 항체: Rat anti-Erm | Desplan lab | - | 희석 배수 1:100 |
| 항체: Guinea pig anti-Rx | Desplan lab | - | 희석 배수 1:300 |
| 항체: Rabbit anti-Vsx | Desplan lab | - | 희석 배수 1:100 |
| 항체: Alexa Fluor 405 결합 Donkey anti-mouse IgG | Abcam | ab175658 | 희석 배수 1:250 |
| 항체: Alexa Fluor 488 결합 Donkey anti-mouse IgG | Jackson ImmunoResearch | 715-547-003 | 희석 배수 1:400 |
| 항체: Alexa Fluor 555 결합 Donkey anti-mouse IgG | ThermoFisher Scientific | A31570 | 희석 배수 1:500 |
| 항체: Alexa Fluor 647 결합 Donkey anti-mouse IgG | Jackson ImmunoResearch | 715-605-151 | 희석 배수 1:250 |
| 항체: Alexa Fluor 405 결합 Donkey anti-guinea pig IgG | Jackson ImmunoResearch | 706-475-148 | 희석 배수 1:250 |
| 항체: Alexa Fluor 555 결합 Donkey anti-guinea pig IgG | Sigma-Aldrich | SAB4600297-5OUL | 희석 배수 1:500 |
| 항체: Alexa Fluor 647 결합 Donkey anti-guinea pig IgG | Jackson ImmunoResearch | 706-605-148 | 희석 배수 1:250 |
| 항체: Alexa Fluor 405 결합 Donkey anti-rabbit IgG | Abcam | ab175651 | 희석 배수 1:250 |
| 항체: Alexa Fluor 555 결합 Donkey anti-rabbit IgG | Invitrogen | A31572 | 희석 배수 1:500 |
| 항체: Alexa Fluor 555 결합 Donkey anti-rat IgG | Abcam | Ab150154 | 희석 배수 1:500 |
| 항체: Alexa Fluor 488 결합 Donkey anti-sheep IgG | Jackson ImmunoResearch | 713-545-147 | 희석 배수 1:400 |
| BD 1ml 주사기 (25g x 16mm 바늘 포함) x 120개입 | BD | 303175 | |
| Bovine Serum Albumin (BSA), 30% | Sigma-Aldrich | A7284-50ML | |
| 커버글라스 18 x 18 mm | VWR | 631-0120 | |
| 커버글라스 24 x 24 mm | VWR | 631-0126 | |
| 양면 테이프 19mm x 33m | Scotch | AMS12354 | |
| 초파리: Canton S | BDSC | 64349 | |
| 초파리: Optix-GAL4 | Kyoto | 104266 | |
| 초파리: nls-GFP/CyO-YFP | BDSC/ Desplan lab | 4775 | |
| Flystuff Drosophila Ultimate Flypads | Genesee Scientific Corporation | 59-172B | |
| 뚜껑付き 원형 아이스 버킷, 4L, Blue | Corning | 432123 | |
| 이미지 분석 소프트웨어 (FIJI) | (National Institutes of Health, Bethesda, MD, USA) | Fiji/ImageJ2 version 2.16.0/1.54p | |
| Kimtech Science 정밀 와이프 | Kimberly-Clark Professional | 05511 | |
| 실험실 밀봉 필름 | Parafilm M | PM-996 | |
| 현미경 슬라이드 | VWR | 8037/1 | |
| 미니 원심분리기 | VWR | 521-2848 | |
| 매니큐어 | Mumuso | 2023/11/05 | |
| 정상 염소 혈청 | Sigma-Aldrich | G9023 | |
| 페인트 붓 | Camlin | S-66 | |
| 파라포름알데히드 (PFA) | Sigma | P6148 | |
| 페트리 접시 100mm x 15mm | Falcon | 351029 | |
| 인산 완충 식염수 (PBS) | Sigma | P5493 | |
| PYREX® 9홈 오목 유리 스팟 플레이트 | Corning | 7220-85 | |
| 로커 (벤치탑) | Fisherbrand | 8861025 | |
| Safelock 튜브 1.5mL | Eppendorf | O219706H | |
| Schneider's 곤충 배지 | Sigma | S0146 | |
| Slowfade gold 항퇴색제 | Invitrogen | S36936 | |
| Sylgard 184 실리콘 엘라스토머 | Dow | 4019862 | |
| TritonX-100 | Sigma | 93426 | |
| 텅스텐 바늘 0.25 mm | Fine Science Tools | 10130-10 | |
| 텅스텐 바늘 0.5 mm | Fine Science Tools | 10130-20 | |
| UHU 다목적 접착제 | UHU | 40815 | |
| 초정밀 핀셋 | WPI | 500235 | |
| Vectashield 항퇴색 마운팅 용액 | Vector | H-1000 | |
| 볼텍스 믹서 | VWR | VM-3000 |
참고문헌
- Nériec N, Desplan C. From the Eye to the Brain: Development of the Drosophila Visual System. Curr Top Dev Biol. 2016;116:247–71.
- Montell C. Drosophila visual transduction. Trends Neurosci. 2012;35(6):356–63.
- Currier TA, Pang MM, Clandinin TR. Visual processing in the fly, from photoreceptors to behavior. Genetics. 2023;224(2),1–28.
- Fischbach KF, Dittrich APM. The optic lobe of Drosophila melanogaster. I. A Golgi analysis of wild-type structure. Cell Tissue Res. 1989;258(3):441–75.
- Dorkenwald S, et al. Neuronal wiring diagram of an adult brain. Nature. 2024;634(8032):124–38.
- Matsliah A, et al. Neuronal “parts list” and wiring diagram for a visual system. bioRxiv: The Preprint Server for Biology. Preprint posted online April 2024.
- Younossi-Hartenstein A, Nassif C, Green P, Hartenstein V. Early neurogenesis of the Drosophila brain. J Comp Neurol. 1996;370(3):313–29.
- Zhang Y, Li X. Development of the Drosophila Optic Lobe. Cold Spring Harb Protoc. 2024;2024(3):108156.
- Apitz H, Salecker I. A Challenge of Numbers and Diversity: Neurogenesis in the Drosophila Optic Lobe. J Neurogenet. 2014;28(3-4):233–49.
- Egger B, Gold KS, Brand AH. Notch regulates the switch from symmetric to asymmetric neural stem cell division in the Drosophila optic lobe. Development. 2010;137(18):2981–7.
- Sato M, Yasugi T, Minami Y, Miura T, Nagayama M. Notch-mediated lateral inhibition regulates proneural wave propagation when combined with EGF-mediated reaction diffusion. Proc Natl Acad Sci U S A. 2016;113(35):E5153–62.
- Wang W, et al. Notch signaling regulates neuroepithelial stem cell maintenance and neuroblast formation in Drosophila optic lobe development. Dev Biol. 2011;350(2):414–28.
- Yasugi T, Sugie A, Umetsu D, Tabata T. Coordinated sequential action of EGFR and Notch signaling pathways regulates proneural wave progression in the Drosophila optic lobe. Development. 2010;137(19):3193–203.
- Bakshi A, Ben El Kadhi K, Desplan C. Decoding neuronal diversity: Mechanisms governing neural cell fate in Drosophila. Curr Opin Neurobiol. 2025;93.
- Holguera I, Desplan C. Neuronal specification in space and time. Science (1979). 2018;362(6411):176–80.
- Konstantinides N, et al. A complete temporal transcription factor series in the fly visual system. Nature. 2022;604(7905):316–22.
- Li X, et al. Temporal patterning of Drosophila medulla neuroblasts controls neural fates. Nature. 2013;498(7455):456–62.
- Suzuki T, Kaido M, Takayama R, Sato M. A temporal mechanism that produces neuronal diversity in the Drosophila visual center. Dev Biol. 2013;380(1):12–24.
- Chen YC, et al. Single-locus chromatin memory enables flexible spatial fate specification in the Drosophila visual system. bioRxiv. Published online August 21, 2026:2026.08.09.743789.
- Erclik T, et al. Integration of temporal and spatial patterning generates neural diversity. Nature. 2017;541(7637):365–70.
- Simon F, et al. Spatial, temporal and Notch determination of terminal selector expression controls neuronal cell fate in the Drosophila optic lobe. Nat Neurosci. 2026;29(5):1068–78.
- Bhattacharya A, Rao H, Sen SQ. Chromatin priming and Hunchback recruitment integrate spatial and temporal cues in Drosophila neuroblasts. eLife15:RP110150.
- Bostock MP, Prasad AR, Donoghue A, Fernandes VM. Photoreceptors generate neuronal diversity in their target field through a Hedgehog morphogen gradient in Drosophila. Elife. 2022;11:e78093.
- El-Danaf RN, et al. Morphological and functional convergence of visual projection neurons from diverse neurogenic origins in Drosophila. Nat Commun. 2025;16(1):1–15.
- Pinto-Teixeira F, et al. Development of Concurrent Retinotopic Maps in the Fly Motion Detection Circuit. Cell. 2018;173(2):485–98.
- Xu C, Ramos TB, Rogers EM, Reiser MB, Doe CQ. Homeodomain proteins hierarchically specify neuronal diversity and synaptic connectivity. Elife. 2023;12:RP90133.
- Arain U, Valentino P, Islam IM, Erclik T. Dissection, Immunohistochemistry and Mounting of Larval and Adult Drosophila Brains for Optic Lobe Visualization. J Vis Exp. 2021;(170):e61273.
- Zhang Y, Li X. Immunostaining of Drosophila Brains to Study Optic Lobe Development. Cold Spring Harb Protoc. 2024;2024(3):108157.
- Daul AL, Komori H, Lee CY. Immunofluorescent staining of Drosophila larval brain tissue. Cold Spring Harb Protoc. 2010;2010(7):pdb.prot5460.
- Sweeney ST, Hidalgo A, de Belle JS, Keshishian H. Dissection of adult Drosophila brains. Cold Spring Harb Protoc. 2011;2011(12):1472–4.
- Tito AJ, Cheema S, Jiang M, Zhang S. A Simple One-step Dissection Protocol for Whole-mount Preparation of Adult Drosophila Brains. J Vis Exp. 2016;(118):55128.
- Wu JS, Luo L. A protocol for dissecting Drosophila melanogaster brains for live imaging or immunostaining. Nat Protoc. 2006;1(4):2110–5.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공