Drosophila 배아를 사용하여 관심 유전자의 돌연변이 표현형을 평가하고 근아세포 융합에서의 역할을 결정하는 상세한 방법이 설명되어 있습니다. 이 접근법을 통해 배아 근육 발달 과정 중 유전자 기능을 체계적으로 특성화할 수 있습니다.
이 논문에서
요약
초록
단핵 근아세포가 다핵 합포체로 융합되는 것은 골격근 발달의 근본적인 과정입니다. Drosophila melanogaster는 이 과정에 관여하는 후보 유전자의 기능을 빠르고 효율적으로 평가할 수 있는 강력하고 유전적 조작이 용이한 모델입니다. 본 논문에서는 Drosophila 배아에서 근아세포 융합 표현형을 분석하기 위한 단계별 지침이 포함된 종합적인 프로토콜을 설명합니다. 이 방법에는 후보 유전자에 대한 돌연변이 라인 선택, 배아 수집 및 고정, 전체 마운트 면역 염색, 발달 단계 지정, 공초점 이미징 및 표현형 분석이 포함됩니다. Myosin heavy chain (MHC) 염색은 전반적인 근육 형태를 시각화하고 융합되지 않은 단핵 근아세포를 식별하는 데 사용됩니다. 이와 병행하여, Even-skipped (Eve) 염색은 특정 근섬유 내의 핵을 표지하여, 해당 섬유에 통합된 핵의 수를 세어 융합 정도를 정량적으로 분석할 수 있게 합니다. 종합적으로, 이 프로토콜을 통해 독자는 관심 있는 모든 유전자의 돌연변이 표현형을 평가하고 근아세포 융합에서 이들의 역할을 분석할 수 있습니다. 이러한 접근 방식은 근아세포 융합의 새로운 조절 인자를 식별하고 특성화하기 위한 견고한 틀을 제공합니다.
서론
골격근은 인체에서 가장 풍부한 조직으로, 전체 체중의 30% 이상을 차지합니다. 배아 발달 과정에서 골격근 섬유는 근모세포(myoblasts)라고 알려진 단핵 근세포들이 융합하여 다핵 합포체 근섬유(multinucleated syncytial myofibers)가 됨으로써 생성됩니다1,2. 이 과정은 적절한 근육 형성, 성장 및 기능에 필수적이며, 이 과정의 장애는 많은 근육 질환과 관련이 있습니다3,4. 척추동물의 골격근과 유사하게, Drosophila melanogaster의 배아 및 유충 체벽 근육을 구성하는 다핵 근섬유 또한 단핵 근모세포의 융합을 통해 형성됩니다5,6,7,8. Drosophila에서는 비대칭 융합 시냅스(asymmetric fusogenic synapse)에서 근육 창시 세포(muscle founder cells)와 융합 가능 근모세포(fusion-competent myoblasts, FCMs)라는 두 종류의 근세포 사이에 융합이 일어납니다9,10,11,12,13. 중요한 점은 근모세포 융합을 조절하는 세포적 사건과 분자적 기전이 Drosophila와 척추동물 사이에서 매우 잘 보존되어 있다는 것이며14,15,16, 이는 Drosophila를 근모세포 융합의 유전적 및 세포적 기초를 연구하기 위한 강력한 모델 생물로 만들어 줍니다.
Drosophila 모델은 또한 여러 실험적 이점을 제공합니다. 첫째, Drosophila의 짧은 생애 주기(25 °C에서 약 10일) 덕분에 신속한 유전적 교배와 효율적인 돌연변이 라인 생성이 가능합니다. 둘째, Drosophila 배아는 크기가 작고 고정 후 항체 투과성이 뛰어나, 조직 절개 없이도 근육 발달의 전장 면역염색 및 고해상도 이미징이 가능합니다. 셋째, Drosophila 배아의 근육 발달은 매우 정형화된 패턴을 따르며, 대부분의 복부 반절(hemisegments)에 30개의 근섬유가 존재합니다. 각 근섬유는 3개에서 30개 사이의 정해진 수의 FCM과 융합하는 단일 창시 세포(founder cell)에 의해 지정되므로17, 근아세포 융합에 대한 재현 가능하고 정량적인 분석이 가능합니다. 마지막으로, 염색체 결실을 포함하는 유전자 돌연변이 및 결핍 라인의 공개 컬렉션을 통해, 시간이 많이 소요되는 de novo 돌연변이 생성 과정 없이 거의 모든 유전자의 기능 상실 분석을 신속하게 수행할 수 있습니다.
Drosophila 배아에서 근아세포 융합 표현형을 평가하기 위한 상세 프로토콜이 제시되어 있습니다(그림 1). 본 프로토콜에는 적절한 돌연변이 대립유전자 선택, 배아 수집 및 고정, 전체 마운트 면역염색, 배아 이미징, 그리고 융합 표현형의 정량적 분석 전략이 포함되어 있습니다. 종합적으로, 이러한 절차들은 근아세포 융합에 관여하는 후보 유전자의 유전적 분석을 위한 신속하고 효율적인 워크플로우를 제공합니다.
프로토콜
1. 근아세포 융합의 유전적 분석을 위한 돌연변이 계통 선택
- FlyBase에서 관심 유전자의 돌연변이 라인을 검색합니다. 해당 유전자 보고서 페이지를 열고 “Alleles, Insertions, Constructs, and Aberrations” 항목 아래에 나열된 돌연변이 대립유전자를 검토합니다.
- 각 대립유전자에 대해 보고된 분자적 병변을 조사하여 null 또는 강력한 기능 상실(loss-of-function) 대립유전자를 선택합니다. 유전자 기능을 저해하는 넌센스 돌연변이, 프레임시프트 돌연변이, 결실 또는 삽입을 포함하는 대립유전자를 우선적으로 선택합니다.
- 동형접합 돌연변이 배아를 밸런서(balancer)를 가진 형제 배아와 구별하기 위해, 형광 마커가 포함된 밸런서 염색체 위에 선택한 돌연변이 대립유전자를 배치합니다. 돌연변이 대립유전자가 위치한 염색체에 따라 적절한 형광 밸런서를 선택하십시오(표 1).
2. Drosophila 배아 수집 및 고정
- 25 G 바늘을 사용하여 100 mL 플라스틱 비커의 측면과 바닥에 여러 개의 통기 구멍을 만들어 배아 수집 컵을 준비한다(그림 1).
- 한천 15 g과 증류수(dH₂O) 400 mL를 혼합한 후 121 °C에서 21분 동안 오토클레이브하여 포도당 한천(grape juice agar)을 준비한다. 녹은 한천이 손으로 만졌을 때 따뜻한 정도가 될 때까지 식힌다.
- 100% 포도즙 100 mL를 손으로 만졌을 때 따뜻한 정도로 데운 후, 녹은 한천과 충분히 섞는다. 60 mm 배양 접시에 약 10 mL씩 분주하고, 상온에서 응고시킨 후 4 °C에서 보관한다.
- 건조 효모 10 g을 15 ml dH₂O에 섞어 부드럽게 펴 바를 수 있는 상태가 될 때까지 섞어 신선한 효모 페이스트를 준비한다. 포도당 한천 플레이트 중앙에 페이스트를 도포하고 플레이트를 25 °C로 예열한다(그림 1).
참고: 준비된 효모 페이스트는 4 °C에서 최대 2주 동안 보관할 수 있다. - 돌연변이 대립유전자와 적절한 형광 밸런서의 이형접합체인 3~7일 된 성체 파리를 수집 컵으로 옮긴다.
참고: w1118와 같은 야생형 파리를 대조군으로 사용한다. 수집 컵 하나당 암컷 약 50~80마리와 수컷 40~50마리면 충분하다. - 예열된 포도당 한천 플레이트를 수집 컵 위에 놓고 고무줄로 고정한다(그림 1). 수집 컵을 25 °C에서 12시간 동안 배양한다.
- 수집 컵을 가볍게 두드려 파리를 떨어뜨리고, 플레이트를 신선한 예열 플레이트로 교체한다. 파리를 적응시키기 위해 2일 동안 12시간마다 플레이트 교체를 반복한다.
참고: 차가운 플레이트에서는 산란량이 감소하므로, 사용 전 각 플레이트를 25 °C로 예열해야 한다. - 2일간의 적응 기간 후, 플레이트를 신선한 예열 플레이트로 교체한다. 파리가 하룻밤 동안 14~15시간 동안 알을 낳도록 둔다.
- 1.5 mL 마이크로원심분리 튜브에 증류수로 희석한 0.1% (v/v) Triton X-100을 채운다. 0.1% Triton X-100에 미리 적신 붓을 사용하여 플레이트에서 배아를 수집한 후 튜브로 옮긴다.
- 튜브를 세게 흔들어 배아를 재부유시키고 잔류 효모 페이스트를 제거한다. 배아가 가라앉을 때까지 기다린 후, 0.1% Triton X-100으로 최소 3회 또는 용액이 투명해질 때까지 세척한다(그림 1).
- 최종 차아염소산나트륨 농도가 2.85%가 되도록 약 50% 가정용 표백제 1.5 mL를 첨가한다. 뉴테이터(nutator)에서 3분 동안 회전시켜 배아의 난막을 제거(dechorionate)한다.
참고: 과도한 난막 제거는 배아에 손상을 주고 후속 면역염색을 저해할 수 있으므로, 표백제에 장시간 노출되는 것을 피한다. - 배아가 가라앉도록 둔 후, 표백제를 제거하고 0.1% Triton X-100으로 3회 세척한다.
- 남은 세척액을 제거하고, 인산염 완충 식염수(PBS)에 희석한 3.7% 포름알데히드 700 µL와 헵탄 700 µL를 첨가한다.
주의: 포름알데히드와 헵탄은 흄후드 내에서 취급하고, 적절한 화학 안전 절차에 따라 폐기한다. - 튜브 캡을 단단히 닫고 30초 동안 세게 흔든다. 뉴테이터에서 30분 동안 회전시켜 고정을 완료한다.
- 상층의 헵탄 층과 하층의 수용액 층 사이의 계면에 배아가 모이게 한다(그림 1). 배아가 흐트러지지 않도록 주의하며 수용액 층을 조심스럽게 제거한다.
- 메탄올 약 700 µL를 첨가하고 30초 동안 세게 흔들어 배아의 난황을 제거(devitellinize)한다.
참고: 난황 제거가 성공적으로 된 배아는 튜브 바닥으로 가라앉으며, 분리된 난황막은 계면에 남아 있다(그림 1).
주의: 메탄올은 흄후드 내에서 취급하고, 적절한 화학 안전 절차에 따라 폐기한다. - 배아가 소량의 메탄올에 잠겨 있도록 유지하면서 헵탄과 메탄올을 제거한다. 메탄올로 배아를 2회 세척한다.
- 뉴테이터에서 PBST(0.1% Triton X-100 in PBS)로 1회당 5분씩 3회 세척하여 배아를 재수화한다. 이 단계와 이후의 모든 단계에서 배아를 빛으로부터 보호한다.
참고: 탈수 현상을 방지하고 배아의 형태를 보존하기 위해 난황 제거 후에는 배아가 항상 용액에 잠겨 있게 한다. 형광 단백질과 형광체 결합 항체를 보존하기 위해 주변광 노출을 최소화한다.
3. 전체 마운트 면역염색 수행
- PBST를 제거하고 배아를 1.5 mL PBSBT (PBST 내 0.5% BSA (w/v) 및 5 mM NaN3)에 담가 실온의 너타이터(nutator)에서 최소 1시간 동안 반응시킨다.
- 피펫 팁의 끝을 잘라 입구를 넓게 만들어 배아 이동 시 기계적 손상을 최소화한다.
- 블로킹 처리가 된 배아를 0.5 mL 마이크로원심분리 튜브로 옮기고 블로킹 용액을 제거한다. anti-MHC 항체 (1:500)18 및/또는 anti-Eve 항체 (0.5 µg/mL)가 포함된 신선한 PBSBT 200−300 µL를 첨가한다.
- 1차 항체가 포함된 배아를 4 °C의 너타이터에서 하룻밤 동안 반응시킨다.
참고: 근모세포 융합 표현형을 확인한 후 정량 분석을 위해 anti-Eve 공동 염색을 수행한다. Drosophila 배아 근육 조직을 시각화하기 위해 토끼 또는 쥐 유래 anti-MHC 항체를 사용할 수 있다. - 1차 항체 용액을 제거하고 너타이터에서 PBST로 배아를 10분씩 3회 세척한다.
참고: 1차 항체 용액은 적절한 경우 재사용을 위해 4 °C에 보관한다. 해당 용액은 일반적으로 1개월 이내에 최대 3회까지 재사용할 수 있다. - 1:500으로 희석한 적절한 형광 2차 항체가 포함된 300 µL PBSBT에 배아를 넣고 실온의 너타이터에서 2시간 동안 반응시킨다.
- 2차 항체 용액을 제거하고 PBST로 배아를 10분씩 3회 세척한다.
- 마지막 PBST 세척액을 제거하고 마운팅 용액 약 80 µL를 첨가한다. 배아를 현미경 슬라이드 위로 옮기고 샘플 위에 커버슬립을 조심스럽게 덮은 뒤 가장자리를 밀봉한다 (그림 1).
참고: 준비된 슬라이드는 빛이 차단된 4 °C에 보관하며, 최적의 형광 신호를 얻기 위해 가능한 한 빨리 이미징한다.
4. 배아 단계 설정 및 이미지 촬영
- 명시야 조명 하에서 중장의 특징적인 심장 모양 형태학적 특성을 이용하여 stage 15 후기 배아를 식별합니다19.
참고: MHC 단백질 발현은 stage 14 또는 그 이전의 배아에서는 검출되지 않습니다. stage 16 배아에서는 심장 모양의 중장이 수축되어 4개의 방으로 나누어집니다19. - 형광 마커의 부재를 통해 동형접합 돌연변이 배아를 식별합니다.
참고: 동형접합 돌연변이 배아는 형광 표지된 밸런서를 보유하지 않으므로 형광 단백질을 발현하지 않습니다. 야생형 대조군 배아의 경우 이 단계는 생략합니다. - anti-MHC 항체로 표지된 전체 체성 근육계를 시각화하기 위해 측면을 향한 배아를 선택합니다.
참고: 배측 또는 복측을 향한 배아는 주로 해당 부위의 근육계만 보여줍니다. 근모세포 융합 결함을 종합적으로 평가하려면 측면을 향한 배아를 사용하십시오. - 신호 포화 없이 선명한 MHC 형광을 얻을 수 있도록 레이저 출력과 검출기 게인을 조정하고, 각 실험 내의 모든 샘플에 대해 이 설정을 유지합니다. 체성 근육계의 전체 깊이를 포함하도록 z-stack의 상한 및 하한 범위를 설정합니다.
- 이미지 해상도는 1024 × 1024 pixels, 핀홀은 1 Airy unit, 라인/프레임 평균은 1, 줌 배율은 1로 설정하고, 각 실험 내의 모든 샘플에 대해 이 설정을 유지합니다. 40× 오일 침수 렌즈를 사용하여 1.0 µm 간격으로 공초점 z-stack 이미지를 획득합니다.
- 표형의 재현성을 평가하기 위해 유전자형당 약 6−10개의 배아를 촬영합니다.
참고: 동형접합 돌연변이 유전자형의 확인이 필요한 경우, MHC 채널과 동시에 형광 밸런서-마커 채널을 획득하십시오.
5. 융합 정량을 위한 DA1 근육 이미지 촬영
- 측면 방향으로 놓인 배아에서 근세포 융합 결함을 확인한 후, MHC 및 Eve 공동 염색을 수행합니다.
- 이미징을 위해 등쪽으로 놓인 15단계 돌연변이 배아와 대조군 배아를 선택합니다.
참고: Even-skipped (Eve)는 등쪽 급성 근육 1 (DA1) 핵에서 특이적으로 발현됩니다20. DA1 근육에 통합된 Eve 양성 핵의 수를 결정하여 근세포 융합 정도를 정량화합니다. - 신호 포화 없이 선명한 MHC 및 Eve 형광을 얻을 수 있도록 이미징 파라미터를 조정합니다. Eve 신호를 바탕으로 DA1 근육의 전체 깊이를 포함하는 z-stack 범위를 설정합니다.
- 위에서 설명한 이미징 파라미터를 사용하여 공초점 z-stack 이미지를 획득합니다. 융합 정량화를 위해 유전자형당 약 6−10개의 배아를 촬영합니다.
6. 핵 정량화 및 통계 분석 수행
- 정형화되고 반복적인 근육 패턴에 따라 복부 반절(hemisegments) A1−A7을 식별합니다.
- MHC로 표지된 DA1 근육 내에서 Eve 양성 핵을 식별합니다. 전체 z-스택을 검토하여 각 DA1 근육 내의 서로 다른 초점 평면에 위치한 모든 Eve 양성 핵의 수를 셉니다.
참고: 각 복부 반절에는 단일 DA1 근육이 포함되어 있습니다. 따라서 특정 반절 내의 모든 Eve 양성 핵은 해당 DA1 근육의 수치로 집계됩니다. - 각 배아에 대해 A2−A5와 같이 동일한 복부 반절 세트 내의 DA1 핵 수를 정량화합니다.
참고: 복부 반절 A1−A7의 DA1 근육 모두 정량화에 적합하지만, 7개 반절 전체를 분석할 필요는 없습니다. 대신, 배아당 A2−A5와 같이 여러 개의 반절을 정량화하고, 일관성을 유지하기 위해 모든 배아에서 동일한 반절 세트를 분석하십시오. - 각 배아의 DA1 근육당 평균 핵 수를 계산하고, 이 평균값을 하나의 독립적인 데이터 포인트로 사용합니다. 개별 배아의 데이터 포인트를 통계 분석 소프트웨어에 입력하여 분석 및 그래프 작성을 수행합니다.
- 두 조건의 비교에는 양측 Student’s t-test를 사용합니다. 세 가지 이상의 조건을 비교할 때는 일원 분산 분석(one-way ANOVA) 후 Dunnett’s test를 수행하며, p < 0.05인 경우를 통계적으로 유의미한 것으로 간주합니다.
결과
적절한 돌연변이 대립유전자의 선택 방법을 설명하기 위해 spook (spo)의 FlyBase 유전자 보고 페이지를 예시로 제시합니다. spo는 스테로이드 호르몬 생합성에 관여하는 효소를 인코딩하는 “Halloween” 유전자 중 하나이며21,22 근모세포 융합을 촉진하는 것으로 밝혀졌습니다23. spo FlyBase 유전자 보고 페이지의 “Alleles” 섹션에는 문헌에 보고된 12개의 spo 돌연변이 대립유전자가 나열되어 있으며, 그중 4개는 BDSC에 기탁되어(그림 2A) 쉽게 구할 수 있습니다. 원하는 대립유전자를 BDSC를 통해 구할 수 없는 경우, 해당 돌연변이 라인을 처음 보고한 연구 그룹에 직접 요청할 수 있습니다.
BDSC에서 구할 수 있는 4가지 돌연변이 대립유전자 중, spo1 은 미스센스 돌연변이(G481E)를 가지고 있는 반면, spoMI06810은 코딩 서열 내에 MiMIC 삽입이 있어 아미노산 Y341에서 프레임시프트가 발생합니다(그림 2B,C). Spo 단백질은 543개의 아미노산으로 구성되므로, spoMI06810 (Y341fs)은 전체 길이의 약 40%가 결손된 절단된 단백질을 생성할 것으로 예측되며, 따라서 강력한 기능 상실 대립유전자를 나타낼 가능성이 높습니다. 그러므로 근모세포 융합의 표현형 분석에는 spo1 보다 spoMI06810이 더 선호됩니다.
근아세포 융합은 배아 단계 12(산란 후 [AEL] 7.3−9.3 h)에 시작되어 단계 15(11.3−13.3 h AEL) 말까지 대부분 완료됩니다24. 따라서 융합 표현형은 체성 근육 패턴이 형성되고 대부분의 융합 사건이 완료된 단계 15 후기 배아에서 일반적으로 평가합니다.
15단계 배아는 두 가지의 두드러진 형태학적 특징으로 식별할 수 있는데, 이는 등쪽 폐쇄의 완료와 중장의 특징적인 하트 모양 형태 획득입니다(그림 3A–C)19. 14단계 배아는 진행 중인 머리 함입으로 구별할 수 있는 반면(그림 3A), 15단계 배아는 특징적인 하트 모양의 중장을 나타냅니다(그림 3B). 16단계 배아는 중장의 수축과 4개의 방(위맹장; 그림 3C) 형성로 식별할 수 있습니다19. 또한, MHC 단백질 발현은 14단계를 포함한 초기 단계에서는 검출되지 않으나, 15단계 및 그 이후 단계부터 강하게 나타납니다(그림 3A–C).
배아기 후기 15단계에서, 야생형 (w1118) 배아의 체벽 근육 조직화는 완전히 이루어지며, 대부분의 복부 반절(hemisegments)은 측면 뷰에서 동일하고 정형화된 근육 패턴을 나타냅니다 (그림 3B). 이러한 정형화된 근육 패턴은 토끼 또는 쥐 anti-MHC 항체를 사용하여 시각화할 수 있습니다 (그림 3B,D). 이와 대조적으로, 배아를 등쪽 또는 배쪽 방향에서 촬영하면 보이는 근섬유의 수가 더 적습니다 (그림 3E,F). 따라서 배아를 측면 방향에서 촬영하면 전체 체벽 근육 조직을 시각화할 수 있으며, 근아세포 융합 결함을 평가하기 용이합니다.
근세포 융합 결함을 조사하기 위해, 동형접합 돌연변이 배아의 체벽 근육계를 측면 방향에서 촬영합니다. 동형접합 돌연변이는 GFP 또는 YFP와 같은 형광 밸런서 마커의 부재 여부로 식별합니다. 예를 들어, spoMI06810/TM3, twi>UAS-GFP 부모로부터 유래한 동형접합 spo 돌연변이 배아는 GFP 음성을 나타내는 반면, 밸런서를 보유한 형제 배아는 중배엽에서 GFP를 발현합니다(그림 4B,C). 야생형 및 GFP 양성 형제 배아와 비교했을 때, spo 돌연변이 배아는 융합 능력이 있는 수많은 미융합 근세포(FCMs; 그림 4A–C)가 관찰되는 근세포 융합 결함을 보입니다.
특히, spo 돌연변이 배아의 표면 단면(Z1)보다 더 깊은 광학 단면(Z3 및 Z4)에서 더 많은 미융합 FCM이 관찰됩니다(그림 4B). 이러한 분포는 배아 근아세포 융합 과정 중 창시 세포(founder cells)와 FCM의 공간적 조직화를 반영합니다. 창시 세포와 성장 중인 근관은 주로 중배엽의 표층에 위치하는 반면, FCM은 성장 중인 근관 쪽으로 이동하여 융합하기 전까지 더 깊은 층에 머무릅니다25. 결과적으로, 특히 부분적인 융합 결함이 있는 배아의 경우 더 깊은 공초점 단면에서 미융합 근아세포가 더 많이 발견됩니다. 따라서 융합 표현형의 심각도를 과소평가하는 것을 방지하기 위해 체벽 근육층의 전체 깊이를 아우르는 z-스택(z-stack)을 획득하는 것이 필요합니다.
측면 방향에서 전체 체벽 근육계를 시각화하면 근모세포 융합 결함의 표현형 평가가 가능하지만, 등쪽 방향에서 DA1 근육을 시각화하여 정량 분석을 수행할 수 있습니다. 야생형 배아에서 DA1 근육은 완전히 형성되어 13.03 ± 0.60개의 Eve 양성 핵을 포함합니다(그림 5A,C). spo 돌연변이 배아의 경우, DA1 근육 내 Eve 양성 핵의 수가 8.16 ± 0.54로 감소하며(그림 5B,C), 이는 더 적은 수의 FCM이 DA1 창시 세포와 융합되는 융합 결함이 있음을 나타냅니다. 일관되고 재현 가능한 정량화를 위해, 동일한 복부 반절편(A2−A5)의 DA1 근육에서 Eve 양성 핵의 수를 세어 배아당 평균을 내며, 각 배아의 평균값을 통계 분석을 위한 단일 데이터 포인트로 사용합니다(그림 5C).
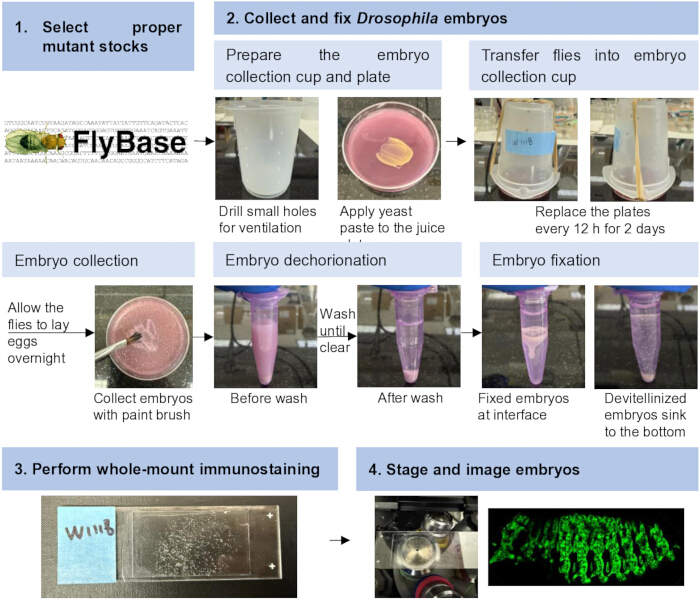
그림 1: Drosophila 배아의 근아세포 융합에 대한 유전적, 표현형 및 정량적 분석 워크플로우. 워크플로우에는 적절한 돌연변이 계통의 선택, 배아 수집 및 고정, 전체 마운트 면역염색 및 마운팅, 그리고 배아 단계 설정 및 이미징이 포함됩니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
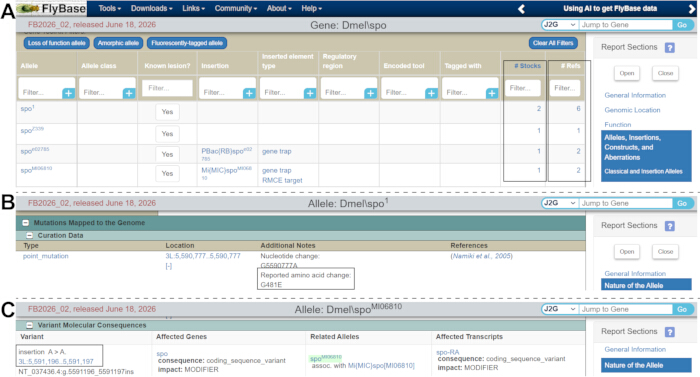
그림 2: FlyBase를 이용한 돌연변이 대립유전자 선택. (A) spo에 대한 FlyBase 유전자 보고서 페이지의 스크린샷. 돌연변이 대립유전자는 “Alleles” 섹션에 나열되어 있다. Stocks 열(상자 표시)은 이용 가능한 계통의 수를 나타내며, Refs 열(상자 표시)은 관련 문헌의 수를 나타낸다. (B,C) 두 가지 대표적인 spo 돌연변이 대립유전자, spo1 (B) 및 spoMI06810 (C)의 분자적 병변. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
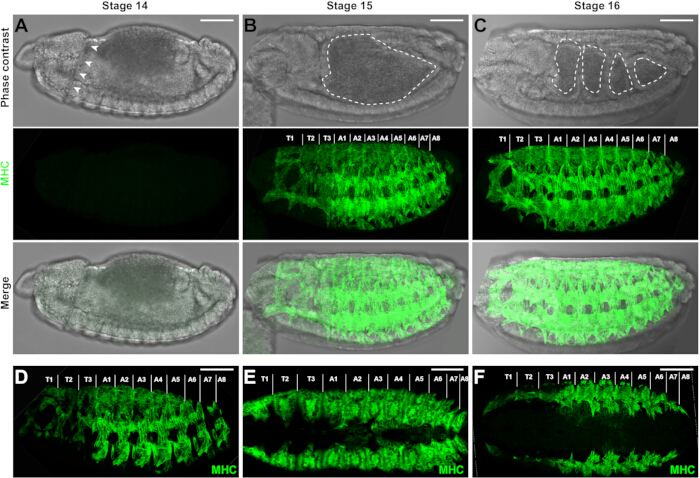
그림 3: 초파리 배아 근육계. (A–C) 단계 14, 15, 16의 야생형(WT) 배아에 대한 위상차 영상, MHC 염색 z-투영 공초점 영상 및 병합 영상. 단계 14 배아에서 머리 함입이 뚜렷하게 관찰됨(화살표) (A). 15단계 배아에서 특징적인 하트 모양의 중장(점선)이 관찰됩니다 (B), 반면 16단계 배아에서는 중장이 4개의 뚜렷한 방(점선)으로 세분화됩니다 (C). 14단계에서는 MHC 단백질 발현이 검출되지 않습니다.A) 하지만 15단계에서 견고해집니다 (B) 및 16 (C). 배아는 측면에서 보이며, 왼쪽이 앞쪽, 오른쪽이 뒤쪽, 위쪽이 등쪽, 아래쪽이 배쪽이다. 흉부(T1–T3) 및 복부(A1–A8) 반분절이 표시되어 있다. (D) 쥐 항-MHC 항체를 사용하여 시각화한 15단계 WT 배아 근육 조직 측면의 공초점 이미지. 다른 패널의 이미지에는 토끼 항-MHC 항체가 사용되었다. (E,F) 배측의 Z-투영 공초점 이미지 (E) 및 복측 (F단계 15 WT 배아의 근육 조직 모습. 등쪽 및 배쪽 방향에서는 가측 방향보다 적은 수의 근섬유가 관찰된다. 스케일 바 = 50 µm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
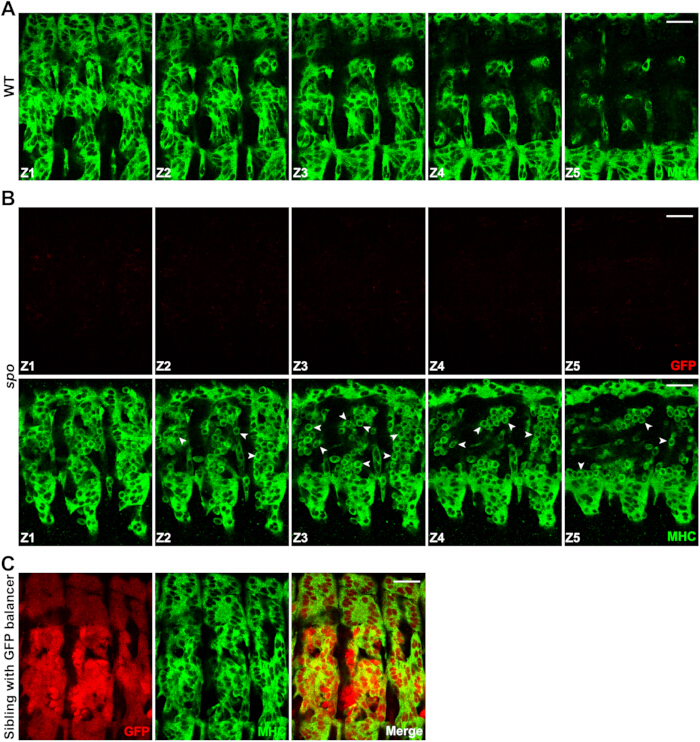
그림 4: 야생형과 spo 돌연변이 배아의 근육 조직 비교. (A) 후기 15단계 WT 배아의 측면에서 본 체벽 근육의 대표적인 공초점 z-stack 이미지. 근아세포 융합이 완료되었으며, 융합되지 않은 근아세포는 관찰되지 않는다. MHC는 녹색으로 표시되었다. (B) spoMI06810/TM3, twi>UAS-GFP 부모로부터 얻은 GFP 음성 spo 돌연변이 배아의 측면에서 본 체벽 근육의 대표적인 공초점 z-stack 이미지. GFP 형광(적색)의 부재는 해당 배아가 spoMI06810 동형 접합체임을 나타낸다. 화살표 머리는 대표적인 미융합 근아세포를 가리킨다. 배아 표면(Z1) 근처보다 더 깊은 광학 단면(Z3 및 Z4)에서 더 많은 미융합 근아세포가 관찰된다. MHC는 녹색으로 표시되었다. (C) 동일한 spoMI06810/TM3, twi>UAS-GFP 부모로부터 얻은 GFP 양성 형제 배아의 측면 공초점 이미지. TM3 밸런서 상의 twi>UAS-GFP 트랜스진에 의해 유도된 중배엽 GFP 발현(적색)을 통해 GFP 양성 형제 배아와 GFP 음성 동형 접합 spo 돌연변이 배아를 구분한다. MHC는 녹색으로 표시되었다. 스케일 바 = 20 µm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
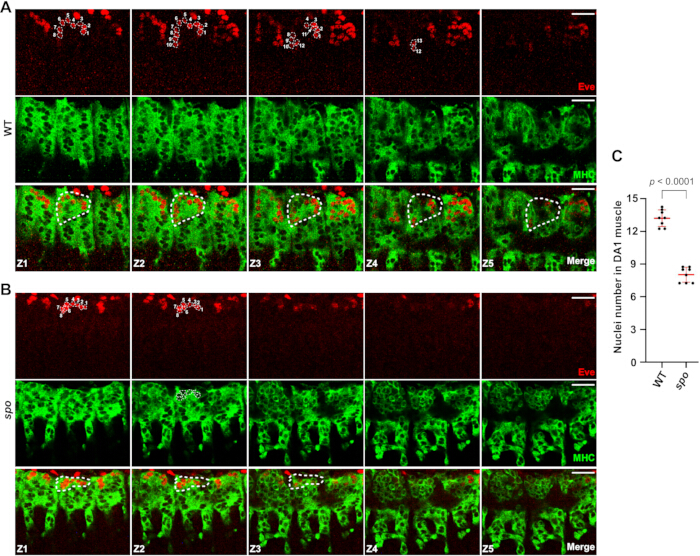
그림 5: DA1 근육의 대표적인 공초점 z-stack 이미지 및 정량 분석. (A,B) anti-MHC(녹색)와 anti-Eve(적색)로 표지한 15단계 후기 WT (A) 및 spo 돌연변이 (B) 배아 등쪽 뷰의 공초점 z-stack 이미지. 근육 내의 모든 핵을 포착하기 위해 Eve 양성 DA1 근육의 전체 깊이에 걸쳐 공초점 z-stack을 획득하였다. Eve 양성 핵은 MHC 신호 내에서 염색되지 않은 영역으로 나타난다. 대표적인 DA1 근육을 점선으로 표시하였으며, DA1 근육 내의 Eve 양성 핵에 번호를 매겼다. (C) WT 및 spo 돌연변이 배아의 DA1 근육 내 Eve 양성 핵의 정량 분석. 각 유전형당 8마리의 배아를 정량화하였다. 각 데이터 포인트는 배아 하나당 A2–A5 반절(hemisegment)의 DA1 근육 내 핵 수의 평균을 나타낸다. 데이터는 평균 ± SD(적색 막대)로 표시되었다. 통계적 유의성은 양측 꼬리 Student’s t-test를 사용하여 결정하였다; p < 0.0001. 스케일 바 = 20 µm. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
| BDSC 스톡 번호 | 유전자형 | 목적 |
| 6873 | N1/FM7c, twi>UAS-GFP | 중배엽의 GFP 발현을 통해 GFP 음성인 동형접합 돌연변이 배아를 식별할 수 있습니다. |
| 6662 | wgGla-1/CyO, twi>UAS-GFP | |
| 6663 | 박사미오(Mio)/TM3, twi>UAS-GFP | |
| 23229 | baz4/FM7c, Dfd-YFP | 머리 특이적 YFP 발현을 통해 YFP 음성인 동형접합 돌연변이 배아를 식별할 수 있습니다. |
| 23230 | snaSco/ CyO, Dfd-YFP | |
| 23232 | 박사1/TM6B, Dfd-YFP |
표 1: 균형 염색체(balancer chromosomes)에 형광 마커 유전자를 보유한 Drosophila 계통.
토론
본 프로토콜은 Drosophila 배아의 근아세포(myoblast) 융합에 대한 유전적, 표현형적 및 정량적 분석을 위한 종합적인 워크플로우를 제공합니다. 중요한 점은, 돌연변이 라인에서 융합 결함이 관찰될 경우, 관심 유전자가 관찰된 표현형의 원인임을 입증하기 위해 추가적인 유전적 분석이 필요하다는 것입니다. 계통 유지 과정에서 자발적인 배경 돌연변이가 축적되어 돌연변이 표현형에 영향을 줄 수 있습니다26. 한 가지 방법은 돌연변이 대립유전자와 관심 유전자가 결실된 염색체 결손(chromosomal deficiency)을 교배하여 생성된 트랜스-이형접합(trans-heterozygous) 배아를 조사하는 것입니다. 이러한 배아에서 동일한 융합 결함이 관찰된다면, 해당 표현형이 무관한 배경 돌연변이가 아닌 후보 유전자의 파괴로 인해 발생했다는 결론을 뒷받침하게 됩니다. GAL4/UAS 시스템27 등을 이용한 유전적 구제(genetic rescue) 실험을 통해 관심 유전자의 발현이 돌연변이 배아에서 정상적인 근아세포 융합을 복구하는지 확인함으로써 추가적인 검증이 가능합니다.
Drosophila 유전자 파괴 프로젝트(Gene Disruption Project)를 통해 Drosophila 유전자의 약 75%를 포괄하는 돌연변이 라인 컬렉션이 공개적으로 제공되고 있지만28, 모든 관심 유전자에 대해 적절한 돌연변이 대립유전자, 특히 강력한 기능 상실(loss-of-function) 대립유전자를 사용할 수 없는 경우가 있을 수 있습니다. 이러한 경우, 염색체 결손 라인을 후보 유전자가 근모세포 융합(myoblast fusion)에 관여하는지 평가하기 위한 대체 자원으로 활용할 수 있습니다. 현재 이용 가능한 결손 라인 컬렉션은 진정염색질(euchromatic) Drosophila 게놈의 98% 이상을 포괄하고 있어29, 거의 모든 유전자에 대한 기능 상실 분석이 가능합니다. 염색체 결손은 FlyBase 유전자 보고서의 “Aberrations” 섹션에서 확인할 수 있습니다. 하지만 각 결손 라인은 여러 유전자를 동시에 제거하므로, 동형접합 결손 배아에서 관찰된 근모세포 융합 결함은 추가 검증 없이는 삭제된 염색체 영역 내의 특정 유전자에 기인한다고 단정할 수 없습니다. 따라서 결손 라인을 사용하여 융합 결함이 확인되면, 단일 유전자 녹아웃 돌연변이를 제작하고 분석하여 근모세포 융합에서 해당 후보 유전자의 구체적인 역할을 규명해야 합니다.
본 프로토콜은 관심 있는 개별 유전자의 돌연변이에 대한 표현형 분석에 중점을 두고 있지만, 이 워크플로우는 이용 가능한 결손 컬렉션29을 사용하여 근아세포 융합의 새로운 조절 인자를 찾는 대규모 결손 스크리닝에도 적용될 수 있습니다. 또한, MHC 항체를 특정 근아세포 융합 조절 인자에 대한 항체로 대체하면 배아 수집, 고정 및 면역 염색을 포함한 일반적인 워크플로우를 융합 시냅스와 관련된 단백질 국소화를 조사하는 데 맞게 조정할 수 있습니다. 마지막으로, 여기에 설명된 방법들은 근아세포 융합 이외의 다른 배아 발달 과정의 표현형 분석에도 적용될 수 있어, 본 프로토콜의 활용 범위를 더 넓은 범위의 발달 연구로 확장할 수 있습니다.
공개 사항
저자들은 상충하는 이해관계가 없음을 밝힙니다. ChatGPT 5 (OpenAI)는 오직 문법 및 언어 교정을 위해서만 사용되었습니다. 과학적 내용, 데이터, 분석 또는 도표를 생성하는 데 사용되지 않았습니다.
감사의 글
초파리 stock을 제공해 준 Bloomington stock center에 감사드립니다. 본 연구는 E.H.C.에게 지급된 NIH grant R01AR085116 및 R35GM136316의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 한천 | Fisher | BP1423-500 | 한천 가루; 고체 배양 배지를 제조하는 데 사용됨. |
| 우혈청알부민 (BSA) | 시그마 | A7906 | 소 혈청 알부민; 면역염색 과정 중 블로킹 용액 조제에 사용됨. |
| 공초점 현미경 | Leica | SP8 | 염색된 시료의 형광 이미징에 사용되는 레이저 주사 공초점 현미경. |
| 공초점 현미경 | Nikon | A1R | 염색된 시료의 형광 이미징에 사용되는 레이저 스캐닝 공초점 현미경. |
| 커버슬립 | Fisher | 12-545-CP | 유리 커버슬립, 40 mm × 22 mm; 현미경 관찰을 위한 시료 마운팅에 사용됨. |
| 배양 접시 | Corning | 430166 | 60 mm 배양 접시; 생물학적 시료의 취급, 배양 또는 처리에 사용됨. |
| 건조 효모 | 시그마 | YSC2 | 생물 배양을 위한 영양원으로 사용되는 건조 효모. |
| 포름알데히드, 37% | Fisher | BP531-500 | 고정액 제조에 사용되는 농축 포름알데히드 용액. 주의: 독성이 있고 휘발성이 강하므로, 적절한 개인 보호 장구를 착용하고 화학 흄 후드 내에서 취급하십시오. |
| 염소 항-마우스 IgG 647 | ThermoFisher | A-21236 | 마우스 1차 항체의 형광 검출을 위한 형광체 접합 염소 항-마우스 IgG 2차 항체. |
| 염소 항-토끼 IgG 568 | ThermoFisher | A-11036 | 토끼 일차 항체의 형광 검출을 위한 형광체 결합 염소 항-토끼 IgG 이차 항체. |
| 헵탄 | Fisher | H350 | 시료 고정 및 투과화 과정에서 사용되는 유기 용매. 주의: 가연성 및 유해 물질이므로, 적절한 개인 보호 장비를 착용하고 화학 흄 후드 내에서 취급하십시오. |
| 배양기 | 퍼시벌 | I36LL | 정해진 환경 조건 하에서 배양물 또는 실험 생물을 유지하는 데 사용되는 온도 조절 인큐베이터. |
| 메탄올 | Pharmco | 해당 텍스트는 식별 코드(339000ACSBK01)로 보이며, 번역할 일반 텍스트가 포함되어 있지 않습니다. 번역이 필요한 본문 내용을 제공해 주시기 바랍니다. | 시료의 고정, 탈수 또는 투과화 과정에서 사용되는 메탄올. 주의: 가연성 및 독성 물질이므로, 적절한 개인 보호 장구를 착용하고 화학 흄 후드 내에서 취급하십시오. |
| 현미경 슬라이드 | Fisher | 12-550-15 | 이미징을 위한 시료 고정용 유리 현미경 슬라이드. |
| 봉입제 | ThermoFisher | P36980 | 형광을 보존하고 현미경 관찰을 위해 염색된 표본을 봉입하는 데 사용되는 항퇴색 봉입제. |
| 마우스 anti-Even skipped (Eve) 항체 | DSHB | 2B8 | Even skipped 단백질을 인식하는 마우스 단클론 1차 항체; 면역형광 염색에 사용됨. |
| 뉴테이터(Nutator) | Corning | 6720 | 세척, 블로킹 또는 항체 배양 단계 동안 시료를 부드럽고 지속적으로 교반하는 데 사용되는 벤치탑 뉴테이팅 믹서. |
| 플라스틱 비커 | 시그마 | Z245380 | 100mL 플라스틱 비커를 사용하여 파리 수집 컵을 제작합니다. |
| 토끼 항-마이오신 중쇄(Myosin heavy chain, MHC) 항체 | — | — | Drosophila myosin heavy chain를 인식하는 토끼 1차 항체; 항체 출처는 Kiehart and Feghali (1986), Journal of Cell Biology 103, 1517에 기술됨–1525. |
| 쥐 항-미오신 중쇄 (MHC) | DSHB | BB7/21.14 | 미오신 중쇄(myosin heavy chain)를 인식하는 랫 단클론 1차 항체; 면역형광 염색에 사용됨. |
| 아지드화 나트륨 (NaN3)3) | 시그마 | S8032 | 항체 또는 완충액의 보존제로 사용되는 아지드화 나트륨. 주의: 독성이 매우 강하므로 섭취, 흡입, 피부 접촉 및 금속과의 접촉을 피하십시오. |
| Triton X-100 | Fisher | AAA16046AP | 세포막 투과화 및 세척 또는 블로킹 버퍼 제조에 사용되는 비이온성 계면활성제. |
| 10× 인산완충생리식염수 (PBS) | Fisher | BP3994 | 1을 제조하는 데 사용되는 농축 인산염 완충 식염수× 세척, 희석 및 완충액 조제용 PBS. |
참고문헌
- Abmayr SM, Pavlath GK. Myoblast fusion: Lessons from flies and mice. Development. 2012;139(4):641-656.
- Petrany MJ, Millay DP. Cell fusion: Merging membranes and making muscle. Trends Cell Biol. 2019;29(12):964-973.
- Wherley TJ et al. Current topics in developmental biology. Vol. 158. Academic Press; 2024:53-82.
- Millay DP. Regulation of the myoblast fusion reaction for muscle development, regeneration, and adaptations. Exp Cell Res. 2022;415(2):113134.
- Dworak HA, Sink H. Myoblast fusion in Drosophila. Bioessays. 2002;24(7):591-601.
- Schejter ED. Myoblast fusion: Experimental systems and cellular mechanisms. Semin Cell Dev Biol. 2016;60:112-120.
- Deng S, Azevedo M, Baylies M. Acting on identity: Myoblast fusion and the formation of the syncytial muscle fiber. Semin Cell Dev Biol. 2017;72:45-55.
- Lee DM, Chen EH. Drosophila myoblast fusion: Invasion and resistance for the ultimate union. Annu Rev Genet. 2019;53:67-91.
- Bate M. The development of Drosophila melanogaster. CSH Laboratory Press; New York; 1993:1013-1090.
- Baylies MK, Bate M, Ruiz Gomez M. Myogenesis: A view from Drosophila. Cell. 1998;93(6):921-927.
- Chen EH, Olson EN. Towards a molecular pathway for myoblast fusion in Drosophila. Trends Cell Biol. 2004;14(8):452-460.
- Sens KL et al. An invasive podosome-like structure promotes fusion pore formation during myoblast fusion. J Cell Biol. 2010;191(5):1013-1027.
- Kim JH et al. Mechanical tension drives cell membrane fusion. Dev Cell. 2015;32(5):561-573.
- Chen EH. Invasive podosomes and myoblast fusion. Curr Top Membr. 2011;68:235-258.
- Kim JH, Jin P, Duan R, Chen EH. Mechanisms of myoblast fusion during muscle development. Curr Opin Genet Dev. 2015;32:162-170.
- Kim JH, Chen EH. The fusogenic synapse at a glance. J Cell Sci. 2019;132(18).
- Haralalka S, Abmayr SM. Myoblast fusion in Drosophila. Exp Cell Res. 2010;316(18):3007-3013.
- Kiehart DP, Feghali R. Cytoplasmic myosin from Drosophila melanogaster. J Cell Biol. 1986;103(4):1517-1525.
- Campos-Ortega JA, Hartenstein V. The embryonic development of Drosophila melanogaster. 2nd ed. Springer Berlin Heidelberg; Berlin, Heidelberg; 1997:9-102.
- De Joussineau C, Bataille L, Jagla T, Jagla K. Diversification of muscle types in Drosophila: Upstream and downstream of identity genes. Curr Top Dev Biol. 2012;98:277-301.
- Namiki T et al. Cytochrome P450 CYP307A1/Spook: A regulator for ecdysone synthesis in insects. Biochem Biophys Res Commun. 2005;337(1):367-374.
- Niwa R, Niwa YS. Enzymes for ecdysteroid biosynthesis: Their biological functions in insects and beyond. Biosci Biotechnol Biochem. 2014;78(8):1283-1292.
- Ruan ZR, Yu Z, Xing C, Chen EH. Inter-organ steroid hormone signaling promotes myoblast fusion via direct transcriptional regulation of a single key effector gene. Curr Biol. 2024;34(7):1438-1452.e6.
- Beckett K, Baylies MK. 3D analysis of founder cell and fusion competent myoblast arrangements outlines a new model of myoblast fusion. Dev Biol. 2007;309(1):113-125.
- Richardson B, Beckett K, Baylies M. Visualizing new dimensions in Drosophila myoblast fusion. BioEssays. 2008;30(5):423-431.
- Huang W et al. Spontaneous mutations and the origin and maintenance of quantitative genetic variation. eLife. 2016;5.
- McGuire SE, Roman G, Davis RL. Gene expression systems in Drosophila: A synthesis of time and space. Trends Genet. 2004;20(8):384-391.
- Bellen HJ et al. The Drosophila Gene Disruption Project: Progress using transposons with distinctive site specificities. Genetics. 2011;188(3):731-743.
- Cook RK et al. The generation of chromosomal deletions to provide extensive coverage and subdivision of the Drosophila melanogaster genome. Genome Biol. 2012;13(3).
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공