8주간의 트레드밀 운동은 당뇨병 쥐에서 심장, 장 장벽 및 Nlrp3 관련 전사 변화와 더불어, 특히 Akkermansia muciniphila의 증가를 포함한 장내 미생물 군집의 변화와 연관이 있었다.
이 논문에서
요약
초록
본 연구에서는 당뇨병 생쥐 모델을 사용하여 운동, 장벽 관련 유전자 발현 및 심장 Nlrp3 인플라마좀 관련 유전자 발현 사이의 연관성을 조사하였습니다. 수컷 C57BL/6J 생쥐에 고지방 식이와 저용량 streptozotocin을 병용 투여하여 대사 조절 장애를 유도한 후, 8주 동안 트레드밀 운동(경사도 5°, 12 m/min, 일일 20–50분, 주 5일)을 실시하였습니다. 운동을 하지 않은 당뇨병 생쥐와 비교하여, 운동을 실시한 생쥐는 공복 혈당, 인슐린 저항성 및 혈청 지질 수치가 더 낮았으며, 결장 Occludin mRNA 발현은 더 높았습니다(상대적 발현량: 당뇨병 생쥐 0.38 ± 0.04 vs. 운동 생쥐 0.79 ± 0.05, P < 0.001). 또한, 심장의 Nlrp3, IL-1β, TNF-α, Col1a1, 및 Tgfb1 mRNA 발현이 더 낮았으며, Bax/Bcl-2 mRNA 비율 또한 더 낮게 나타났습니다(3.06 ± 0.19 vs. 1.48 ± 0.10, P < 0.001). 선택된 6개 분류군에 대한 분변 qPCR 분석 결과, 운동은 Akkermansia muciniphila (0.31 ± 0.04에서 0.84 ± 0.07로) 및 Lactobacillus (0.48 ± 0.05에서 1.01 ± 0.07로)의 상대적 풍부도 증가와 Escherichia coli (3.84 ± 0.33에서 1.68 ± 0.13로, P < 0.01)의 감소와 연관이 있는 것으로 나타났습니다. 운동 생쥐에서 A. muciniphila의 풍부도는 심장 Nlrp3 mRNA 발현과 음의 상관관계를 보였습니다(R = −0.81, P = 0.0046). 이러한 상관관계 분석 결과는 당뇨병 생쥐에서 운동, 심장 및 장의 전사 변화, 그리고 선택된 장내 미생물 분류군 사이의 연관성을 나타내나 인과 관계를 입증하는 것은 아닙니다. 모든 분자 생물학적 결과는 mRNA 수준의 변화에 국한되며, 장벽 기능, 인플라마좀 활성화, 심근 섬유화, 세포 사멸 또는 기타 기능적 또는 단백질 수준의 효과를 입증하는 것은 아닙니다.
서론
당뇨병은 전 세계적으로 증가하는 건강 위협 요소이며, 당뇨병성 심장 합병증은 특이적 치료법이 제한적인 심각한 상태로 남아 있습니다1,2,3,4. 운동 훈련은 당뇨병 동물 모델에서 심장 기능을 개선할 수 있으나5,6, 그 기저 기전, 특히 장내 미생물 군집 및 장 장벽과 관련된 메커니즘은 아직 완전히 밝혀지지 않았습니다.
장내 미생물군은 숙주의 대사와 면역을 조절합니다7. 당뇨병에서는 장내 미생물 불균형과 장벽 무결성 손상으로 인해 리포폴리사카라이드(LPS)의 전위가 증가하고, TLR4 매개 염증이 촉진되며, 심근 손상이 악화될 수 있습니다8,9. 이러한 장 유래 염증 부담은 심기능 부전을 포함한 당뇨병성 합병증의 진행에 기여할 수 있습니다. Akkermansia 및 Faecalibacterium과 같은 유익균은 감소하는 반면, E. coli와 같은 박테리아는 증가할 수 있습니다10,11. 이러한 미생물 군집의 변화는 국소적인 장 염증과 전신성 엔도톡세미아(endotoxemia)를 유발하여 심장을 포함한 원격 장기에 영향을 미칠 가능성이 있습니다. NLRP3 인플라마좀은 당뇨병성 심장 병리에서 심장 염증의 중요한 매개체이며, 그 활성화는 장내 미생물 대사물에 의해 조절될 수 있습니다12,13. 특정 미생물 생성물, 특히 단쇄 지방산과 LPS는 NLRP3 프라이밍(priming) 및 조립에 서로 상반된 영향을 미치며, 이는 장내 미생물 환경과 심근 염증 상태 사이에 잠재적인 연관성이 있음을 시사합니다.
운동은 장내 미생물군집을 변화시키고 장벽 기능을 개선할 수 있으나14,15, 당뇨 모델에서 운동, 장벽 관련 유전자 발현, 그리고 심장의 NLRP3 염증 조절 복합체(inflammasome) 관련 유전자 발현 사이의 연관성은 아직 완전히 밝혀지지 않았습니다. 장 상피는 루멘 내 미생물과 전신 순환계 사이의 인터페이스 역할을 하므로, 장내 미생물군집의 변화와 심장 염증 반응 사이의 연관성에 기여할 수 있습니다. 하지만 당뇨 모델에서 운동으로 유도된 장벽의 변화, NLRP3 염증 조절 복합체의 활성화, 그리고 심장 보호 사이의 인과 관계를 입증하는 직접적인 실험적 증거는 여전히 부족한 실정입니다.
따라서, 트레드밀 운동이 당뇨병 쥐의 심장 전사 변화, 선택된 장내 미생물 분류군의 변화, 장벽 관련 유전자 발현의 보존 및 심장 NLRP3 인플라마좀 관련 유전자 발현의 감소와 연관될 것이라는 가설을 세웠습니다. 고지방 식이와 저용량 streptozotocin을 병용하여 당뇨병 쥐 모델을 구축한 후, 8주간의 트레드밀 운동 중재를 실시하였습니다. 평가 항목에는 대사 지표, 결장 Occludin mRNA 발현, 심장 NLRP3 인플라마좀 관련 유전자 발현, 그리고 염증, 섬유화 및 세포 사멸 관련 유전자 발현 마커가 포함되었습니다. 또한, 운동에 따른 장내 미생물 군집의 변화를 평가하기 위해 선택된 장내 미생물 분류군을 정량화하였습니다. 상관관계 분석을 통해 선택된 장내 미생물 분류군, 장벽 관련 유전자 발현 및 심장 전사 마커 간의 연관성을 조사하였습니다. 이러한 분석은 인과적인 장-장벽-NLRP3 메커니즘을 규명하기보다는 상호 연관성을 확인하기 위해 설계되었습니다.
프로토콜
모든 동물 실험 절차는 국제 실험동물 관리 인증 기관의 인증을 받은 동물 시설에서 수행되었습니다. 해당 프로토콜은 시설의 기관 동물 관리 및 사용 위원회(IACUC; 승인 ID: VS212500103)의 검토 및 승인을 받았습니다. 소속 기관에 해당 특정 모델을 위한 허가된 동물 시설이 없었기 때문에, 실험은 승인된 외부 시설에서 진행되었습니다.
당뇨병 마우스 모델 구축
수컷 C57BL/6J 마우스(8주령, 특정 병원균 부재 등급, 체중 20–22 g)를 조절된 환경(22 ± 2 °C, 상대 습도 50 ± 10%, 12시간 명/암 주기)에서 표준 사료와 물을 자유롭게 섭취하도록 하며 1주일간 순화시켰다.
순화 후, 난수표를 사용하여 마우스를 정상 대조군(Control, n = 10) 또는 당뇨 유도군에 무작위로 배정하였다. 실험 절차 및 결과 측정은 그룹 배정을 알지 못하는 조사자에 의해 블라인드 방식으로 수행되었다. 동물은 특정 병원균 부재(SPF) 조건 하에 보강된 깔짚이 깔린 표준 폴리카보네이트 케이지에 한 케이지당 4마리씩 수용되었다. 발정 주기와 관련된 잠재적 변동성을 최소화하고, 고지방 식이/STZ 모델이 수컷에서 더 일관된 대사 표현형을 나타내기 때문에 수컷 마우스만을 사용하였다.
당뇨 유도를 진행하는 마우스에 4주 동안 고지방 식단(지방 60% kcal)을 급여한 후, 5일 연속으로 streptozotocin(STZ; 30 mg/kg 체중)을 복강 내 주사하였다. STZ는 0.1 mol/L 구연산 완충액(pH 4.5)에 즉석에서 용해하여 빛을 차단한 상태로 준비 후 15분 이내에 투여하였다. 대조군 마우스에는 동일한 부피의 구연산 완충액을 투여하였다. 마지막 주사 1주일 후, 6시간 금식 후 꼬리 끝 혈액에서 공복 혈당(FBG)을 측정하였다. FBG가 11.1 mmol/L 이상인 마우스를 당뇨병으로 간주하였다. 이 마우스들에게 고지방 식단을 4주 더 유지하여 당뇨 관련 유전자 발현 변화가 나타나도록 하였다.
총 35마리의 마우스를 대상으로 모델 유도를 진행하였으며, 그 중 28마리가 당뇨 기준을 충족하였다. 체중과 사료 섭취량을 매주 모니터링하였으나 이를 제외 기준으로 사용하지는 않았다. 모델링 또는 중재 단계 동안 폐사하거나 제외된 동물은 없었다. 성공적으로 모델링된 마우스들은 무작위로 당뇨군(DM, n = 10)과 운동 중재군(DM+Ex, n = 10)으로 나뉘었다. 모든 분석에서 최종 표본 크기는 그룹당 n = 10이었으며, 개별 마우스를 실험 단위로 하였다.
트레드밀 운동 중재
DM+Ex 그룹의 마우스는 5° 경사도와 12 m/min의 속도로 주 5일, 8주 동안 트레드밀 운동을 수행하였다. 모든 운동 세션은 오전 9:00에서 11:00 사이에 진행되었다. 중재 전, 마우스는 0° 경사도에서 6 m/min의 속도로 하루 5분씩 3일 동안 트레드밀 달리기 적응 과정을 거쳤다. 각 운동 세션에는 6 m/min 속도의 5분 웜업과 6 m/min 속도의 5분 쿨다운이 포함되었다. 달리기를 유도하기 위해 가벼운 자극을 주었으며, 전기 자극은 사용하지 않았다.
일일 러닝 시간은 1주 차에 20 min, 2주 차에 25 min, 3주 차에 30 min, 4주 차에 35 min, 5주 차에 40 min, 6주 차에 45 min, 그리고 7~8주 차에 50 min으로 설정하였다. 대조군 및 DM 마우스는 핸들링 및 환경 노출 변수를 제어하기 위해 동일한 시간 동안 정지된 트레드밀 위에 놓였다. 미리 정의된 제외 기준은 처방된 운동 세션의 80% 이상을 완료하지 못한 경우였다. 이 기준에 해당하는 동물은 없었으며, 모든 동물이 처방된 운동 세션을 완료하였고 이상 반응은 관찰되지 않았다.
시료 수집
마지막 운동 세션 12시간 후, 마우스는 6시간 동안 금식시킨 뒤 이소플루레인 흡입 마취(100% O₂ 1 L/min 환경에서 3% 유도 및 1.5–2% 유지)를 실시하였다. 안와정맥총에서 약 500 µL의 혈액을 채취하여 실온에서 30분 동안 응고시킨 후, 4 °C에서 3,000 × g로 15분간 원심분리하였다. 이렇게 얻은 혈청은 −80 °C에서 보관하였다.
마우스는 이후 깊은 마취 상태에서 경추 탈구법으로 안락사시켰다. 심장을 빠르게 적출한 후 얼음처럼 차가운 phosphate-buffered saline (PBS)로 세척하였다. 좌심실 조직을 분리하여, 일부는 액체 질소로 급속 냉동하여 RNA 추출을 위해 −80 °C에 보관하였고, 나머지 조직은 4% paraformaldehyde로 고정하였다. 원위 결장 조직 약 1 cm를 수집하여 PBS로 세척하고 급속 냉동한 후 −80 °C에 보관하였다. 케이지 오염을 최소화하기 위해 오전 9:00에서 10:00 사이에 직장에서 신선한 분변 샘플을 직접 수집하였으며, 이를 멸균 튜브로 옮겨 수집 후 15분 이내에 −80 °C에 보관하였다.
혈청 생화학적 측정
FBG는 혈당 측정 시스템을 사용하여 측정하였습니다. 혈청 인슐린은 효소 결합 면역 흡착 분석법(enzyme-linked immunosorbent assay)으로 결정하였으며, 총 콜레스테롤과 중성지방은 자동 생화학 분석기를 사용하여 측정하였습니다. 인슐린 저항성은 항상성 모델 평가법을 사용하여 계산하였습니다: HOMA-IR = FBG (mmol/L) × insulin (mIU/L)/22.5.
심근 조직의 RNA 추출 및 실시간 정량 PCR
약 30 mg의 좌심실 조직을 페놀-구아니디늄 기반의 RNA 추출 시약으로 균질화하고, 시약 프로토콜에 따라 총 RNA를 추출하였다. RNA 농도와 순도는 분광광도계로 측정하였으며, A260/A280 비율이 1.8–2.0인 경우를 적절한 것으로 간주하였다. 총 RNA (1 µg)를 상보적 DNA (cDNA)로 역전사하였다.
형광 DNA 결합 qPCR 마스터 믹스, 각각 0.4 µmol/L의 정방향 및 역방향 프라이머, 그리고 2 µL의 cDNA 템플릿을 포함하는 20 µL 반응 혼합물에서 정량적 PCR (qPCR)을 수행하였다. 증폭 조건은 95 °C에서 30초간 처리한 후, 95 °C에서 5초, 60 °C에서 34초로 구성된 사이클을 40회 반복하였다. 증폭 특이성을 검증하기 위해 65–95 °C 범위에서 융해 곡선 분석을 수행하였다. 모든 반응은 이중으로 수행되었으며, 템플릿 미포함 대조군과 역전사 미포함 대조군을 포함하였다. 모든 프라이머 쌍의 증폭 효율은 90–105% 범위였다. Tnfa, Il1b, Tgfb1, Col1a1, Nlrp3 및 Gapdh에 사용된 프라이머는 표 1에 나열되어 있다. 상대적 유전자 발현은 2−ΔΔCt 방법으로 계산하였으며, 대조군 대비 배수 변화(fold change)로 표시하였다.
분변 미생물군집 DNA 추출 및 qPCR 정량 분석
분변 DNA 추출 프로토콜을 사용하여 분변 샘플로부터 총 미생물 DNA를 추출하였다. 선택된 6종의 박테리아 분류군—Faecalibacterium prausnitzii, Akkermansia muciniphila, 락토바실러스 속, 비피도박테리움 속, Escherichia coli및 데설포비브리오(Desulfovibrio) 속(genus)은 다음에 나열된 분류군 특이적 프라이머를 이용한 qPCR로 결정되었다. 표 1전체 박테리아 풍부도의 기준으로 유니버설 박테리아 16S rRNA 프라이머를 사용하였습니다.
상대적 풍부도는 전체 박테리아 16S rRNA를 참조로 하여 2−ΔΔCt 방법을 사용하여 계산되었으며, 대조군(Control group)을 기준으로 정규화되었습니다. 증폭 효율을 검증하기 위해 기지 농도의 플라스미드 DNA를 계열 희석하여 각 표적에 대한 표준 곡선을 작성하였습니다. 모든 반응은 융해 곡선 분석(melt-curve analysis)과 함께 이중으로 수행되었습니다. 박테리아 분류군마다 16S rRNA 유전자 복제 수가 다르므로, 결과는 절대적 복제 수가 아닌 2−ΔΔCt 상대적 풍부도로 보고되었습니다.
결장 Occludin 발현 평가
위에서 설명한 대로 약 30 mg의 결장 조직을 사용하여 총 RNA 추출 및 cDNA 합성을 진행하였다. Occludin mRNA 발현은 다음의 프라이머를 이용한 qPCR로 측정하였다: 정방향(forward), 5′-GTCGAATGTCTTTGCTGGTGGT-3′; 역방향(reverse), 5′-GCAGCAGCCATGTACTCTTCAC-3′. Gapdh를 내부 표준 물질로 사용하였으며, 2−ΔΔCt 방법을 이용하여 상대적 발현량을 계산하였다.
통계 분석
데이터는 평균 ± 표준편차(SD)로 표시되었다. 정규성은 Shapiro-Wilk 검정을 사용하여 평가하였으며, 분산의 균질성은 Levene 검정을 사용하여 평가하였다. 모수적 가정을 충족하는 그룹 간 데이터는 일원 분산 분석(one-way ANOVA)으로 분석한 후, 사후 쌍별 비교를 위해 Tukey의 정직 유의차(HSD) 검정을 수행하였다. 두 그룹 간의 비교는 비쌍체 꼬리 양방향 Student's t-test를 사용하여 수행하였다.
변수 간의 연관성을 평가하기 위해 스피어만 서열 상관분석을 사용하였다. 상관관계 히트맵의 경우, 실험군을 통제한 부분 스피어만 상관계수를 산출하였다. P 값은 Benjamini-Hochberg 허위 발견율(FDR) 절차를 사용하여 다중 비교에 대해 보정하였으며, FDR 보정 P < 0.05를 통계적으로 유의한 것으로 간주하였다. 해당되는 경우, 효과 크기(ANOVA의 경우 Cohen's f, 상관관계의 경우 r)와 주요 평균 차이에 대한 95% 신뢰구간을 보고하였다. 모든 통계 분석은 통계 컴퓨팅 소프트웨어(version 4.2.0)를 사용하여 수행되었다.
결과
트레드밀 운동은 당뇨병 생쥐의 대사 이상 개선과 관련이 있었다
대조군과 비교했을 때, 당뇨 쥐는 공복 혈당(18.23 ± 0.61 vs. 6.03 ± 0.21 mmol/L, P < 0.001), 혈청 인슐린(16.30 ± 1.04 vs. 8.23 ± 0.38 mIU/L, P < 0.001), HOMA-IR(13.19 ± 1.18 vs. 2.21 ± 0.17, P < 0.001), 총 콜레스테롤(4.62 ± 0.23 vs. 2.01 ± 0.09 mmol/L, P < 0.001) 및 중성지방(2.12 ± 0.15 vs. 0.80 ± 0.08 mmol/L, P < 0.001) 수치가 유의하게 더 높게 나타났다. 8주간의 트레드밀 운동 중재 후, 이러한 파라미터들은 당뇨 쥐와 비교하여 각각 12.03 ± 0.63 mmol/L, 10.61 ± 0.71 mIU/L, 5.69 ± 0.67, 3.09 ± 0.24 mmol/L 및 1.20 ± 0.14 mmol/L로 감소하였다(P < 0.01 또는 P < 0.001). 그러나 대부분의 값은 대조군보다 여전히 높게 유지되었다(그림 1A–E). 일원 분산 분석(One-way ANOVA) 결과, 모든 파라미터에서 유의미한 군 간 효과가 확인되었다(모두 F(2,27) > 25.0, P < 0.001).
운동 훈련은 더 높은 결장 Occludin mRNA 발현 및 더 낮은 심장 염증조절복합체 관련 유전자 발현과 연관이 있었다
당뇨 쥐의 결장 내 Occludin mRNA 발현은 대조군에 비해 약 62% 낮았습니다 (0.38 ± 0.04 vs. 1.00 ± 0.06, P < 0.001). 동시에 심장의 Nlrp3, Il1b, Tnfa mRNA 발현은 대조군 값의 각각 5.6배, 6.5배, 5.1배로 증가했습니다 (모두 P < 0.001). 운동 중재 후, Occludin mRNA 발현은 0.79 ± 0.05로 증가한 반면 (P < 0.001 vs. 당뇨 쥐), Nlrp3, Il1b, Tnfa mRNA 발현은 각각 2.30 ± 0.21, 2.66 ± 0.25, 2.14 ± 0.17로 감소했습니다 (모두 P < 0.001 vs. 당뇨 쥐; 그림 2A–D).
운동은 심근 섬유화 및 세포사멸 관련 유전자 발현의 감소와 연관이 있었다
당뇨군에서는 대조군과 비교하여 섬유화 관련 유전자인 Col1a1 (4.46 ± 0.29배, P < 0.001) 및 Tgfb1 (4.17 ± 0.24배, P < 0.001)의 심장 내 발현이 증가하였으며, Bax/Bcl2 mRNA 비율 또한 더 높게 나타났다 (3.06 ± 0.19, P < 0.001). 운동 훈련 후, Col1a1 및 Tgfb1 mRNA 발현은 각각 2.02 ± 0.16 및 1.92 ± 0.16으로 감소하였으며 (두 항목 모두 당뇨 쥐 대비 P < 0.001), Bax/Bcl2 mRNA 비율은 1.48 ± 0.10으로 감소하였다 (당뇨 쥐 대비 P < 0.001; 그림 3A–C).
운동은 당뇨병 쥐의 특정 장내 미생물 분류군의 변화와 관련이 있었다
대조군과 비교했을 때, 당뇨 쥐는 선택된 4가지 박테리아 분류군인 F. prausnitzii (0.25 ± 0.03 vs. 1.01 ± 0.07), A. muciniphila (0.31 ± 0.04 vs. 1.00 ± 0.06), Lactobacillus (0.48 ± 0.05 vs. 0.99 ± 0.04), 그리고 Bifidobacterium (0.56 ± 0.06 vs. 1.00 ± 0.06; 모두 P < 0.001)의 상대적 풍부도가 유의하게 낮은 것으로 나타났다. 반면, E. coli (3.84 ± 0.33 vs. 0.99 ± 0.08)와 Desulfovibrio (3.07 ± 0.26 vs. 0.99 ± 0.07)의 상대적 풍부도는 유의하게 더 높았다 (모두 P < 0.001). 운동 중재는 F. prausnitzii, A. muciniphila, Lactobacillus, 그리고 Bifidobacterium의 상대적 풍부도가 유의하게 증가하는 것과 관련이 있었으며 (P < 0.01 또는 P < 0.001), A. muciniphila는 0.84 ± 0.07에 도달했다. 동시에 E. coli와 Desulfovibrio의 상대적 풍부도는 각각 1.68 ± 0.13 및 1.52 ± 0.08로 감소했다 (당뇨 쥐 대비 모두 P < 0.001; 그림 4A–F).
선택된 미생물 변화가 심장 및 결장의 유전자 발현과 상관관계가 있음을 확인하였다
선택된 미생물 분류군과 심장 및 결장 조직의 유전자 발현 마커 사이의 연관성을 평가하기 위해 Spearman 상관관계 분석을 수행하였습니다(그림 5A). A. muciniphila의 상대 풍부도는 심장의 Nlrp3 mRNA(R = −0.81, P = 0.0046) 및 Tnfa mRNA(R = −0.80, P = 0.0054)와 음의 상관관계를 보였습니다. E. coli의 상대 풍부도는 결장의 Occludin mRNA 발현과 양의 상관관계를 보였습니다(R = 0.66, P = 0.036; 그림 5B–D). 이러한 결과는 선택된 장내 미생물 분류군과 심장 및 결장의 전사 마커 사이의 연관성을 보여주지만, 인과 관계를 입증하는 것은 아닙니다.
데이터 가용성:
본 연구 중에 생성 및/또는 분석된 데이터 세트는 합리적인 요청이 있을 경우 교신 저자로부터 제공받을 수 있습니다.
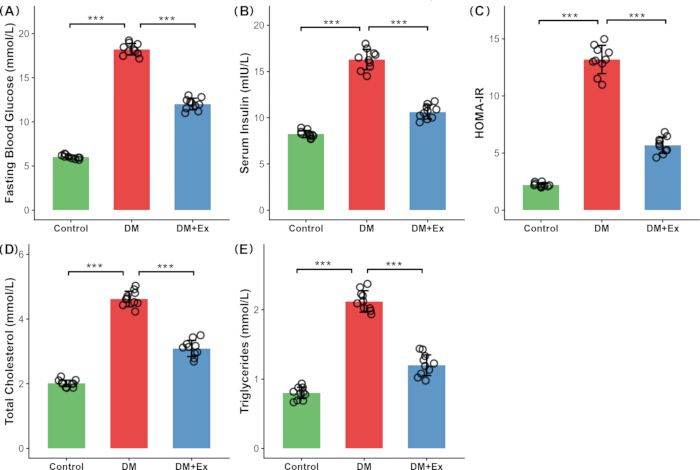
그림 1: 당뇨 쥐의 대사 파라미터에 미치는 트레드밀 운동의 영향. (A) 공복 혈당. (B) 혈청 인슐린. (C) HOMA-IR. (D) 총 콜레스테롤. (E) Control, DM, 및 DM+Ex 그룹의 중성지방. 데이터는 평균 ± SD (n = 그룹당 10)로 표시되었으며, 각 막대 위에 개별 데이터 포인트가 중첩되어 있다. 그룹 간 비교는 one-way ANOVA 후 Tukey's post hoc test를 사용하여 수행되었다. *P < 0.05, **P < 0.01, ***P < 0.001; ns = 유의하지 않음. 약어: DM = 당뇨 모델; Ex = 운동; HOMA-IR = 인슐린 저항성의 항상성 모델 평가; SD = 표준 편차. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
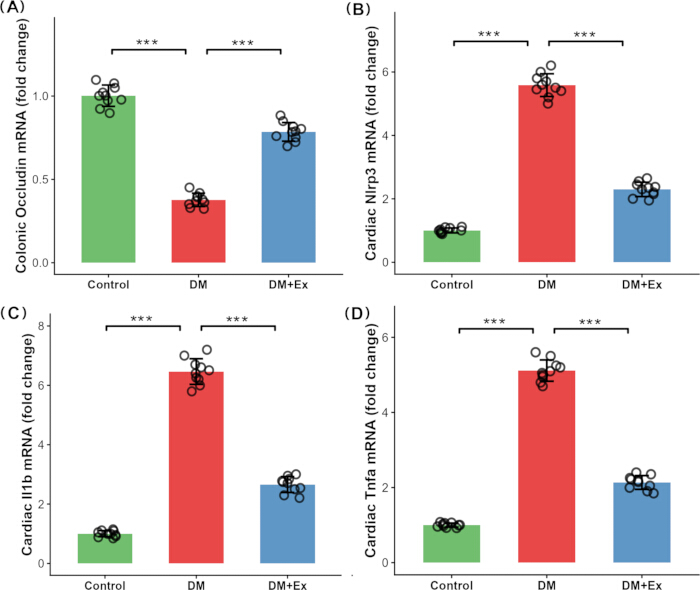
그림 2: 당뇨병 쥐의 장 장벽 관련 및 심장 인플라마좀 관련 유전자 발현에 미치는 트레드밀 운동의 영향. (A) 상대적인 결장 Occludin mRNA 발현. (B) 상대적인 심장 Nlrp3 mRNA 발현. (C) 상대적인 심장 Il1b mRNA 발현. (D) 상대적인 심장 Tnfa mRNA 발현. 유전자 발현은 Gapdh로 정규화되었으며 대조군(Control group) 대비 배수 변화(fold change)로 표시되었다. 데이터는 평균 ± SD (n = 그룹당 10)로 나타냈다. *P < 0.05, **P < 0.01, ***P < 0.001. 약어: IL-1β = interleukin-1β; TNF-α = tumor necrosis factor-α; SD = 표준편차. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
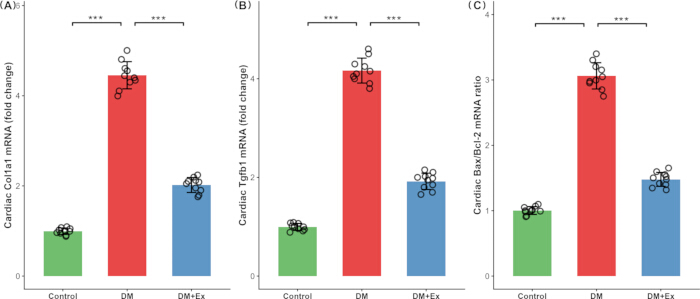
그림 3: 당뇨병 쥐에서 트레드밀 운동이 심근 섬유화 관련 및 세포 사멸 관련 유전자 발현에 미치는 영향. (A) 상대적 심장 Col1a1 mRNA 발현. (B) 상대적 심장 Tgfb1 mRNA 발현. (C) Bax/Bcl2 mRNA 비율. 유전자 발현은 Gapdh를 기준으로 정규화되었으며 대조군 대비 배수 변화로 표시되었다. Bax/Bcl2 비율은 상대적 mRNA 발현 값으로부터 계산되었다. 데이터는 평균 ± SD (n = 그룹당 10)로 표시되었으며, 각 막대 위에 개별 데이터 포인트가 겹쳐져 있다. *P < 0.05, **P < 0.01, ***P < 0.001. 약어: Col1a1 = collagen type I alpha 1; Tgfb1 = transforming growth factor-β1; Bax = BCL2-associated X protein; Bcl2 = B-cell lymphoma 2; SD = 표준 편차. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
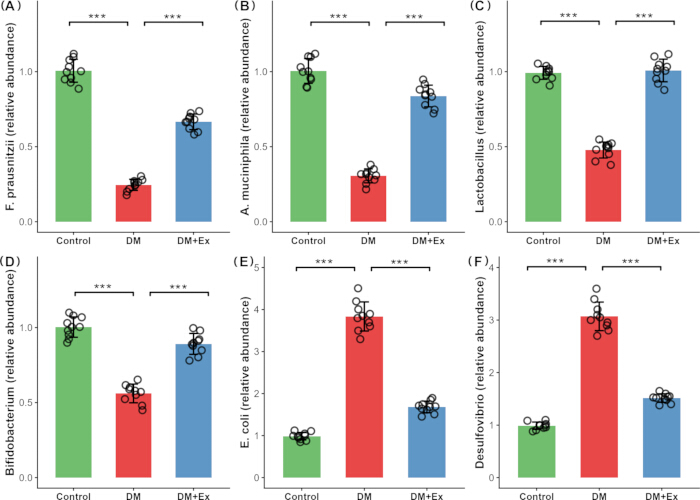
그림 4: 당뇨병 쥐의 선택된 장내 미생물 분류군의 상대적 풍부도에 미치는 트레드밀 운동의 영향. (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) Lactobacillus. (D) Bifidobacterium. (E) Escherichia coli. (F) Desulfovibrio. 상대적 풍부도는 총 세균 16S rRNA 대비 분류군 특이적 16S rRNA 타겟을 이용한 qPCR로 결정하였으며, 대조군(Control group)을 기준으로 정규화하였다. 데이터는 평균 ± SD (n = 그룹당 10)로 표시되었다. *P < 0.05, **P < 0.01, ***P < 0.001. 약어: SD = 표준 편차. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
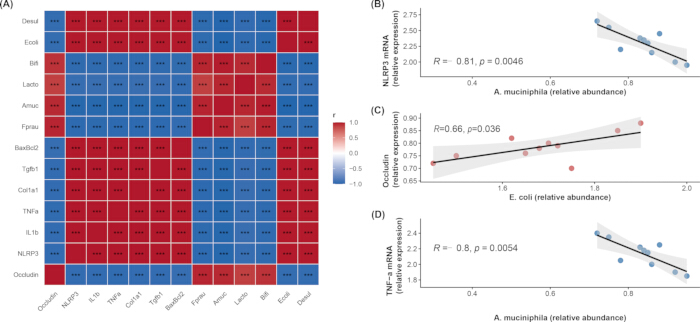
그림 5: 선택된 장내 미생물 분류군과 심장 및 결장 유전자 발현 파라미터 간의 상관관계 분석. (A) 선택된 세균 분류군과 결장 Occludin mRNA, 심장 Nlrp3, Il1b, Tnfa mRNA, Col1a1 및 Tgfb1 mRNA, 그리고 Bax/Bcl2 mRNA 비율 사이의 Spearman 상관 계수를 나타내는 히트맵. 상관관계는 실험군을 통제 변수로 하여 3개 그룹 전체의 데이터(n = 30)를 사용하여 부분 Spearman 상관분석으로 계산되었다. 색상 척도는 음의 상관관계는 파란색, 양의 상관관계는 빨간색으로 표시된다. 히트맵 내의 별표는 FDR 보정 후의 유의성을 나타낸다 (*P < 0.05, **P < 0.01, ***P < 0.001). (B) DM+Ex 그룹 내에서 A. muciniphila 상대 풍부도와 심장 Nlrp3 mRNA 발현 간의 상관관계. (C) DM+Ex 그룹 내에서 E. coli 상대 풍부도와 결장 Occludin mRNA 발현 간의 상관관계. (D) DM+Ex 그룹 내에서 A. muciniphila 상대 풍부도와 심장 Tnfa mRNA 발현 간의 상관관계. 각 점은 개별 마우스를 나타낸다. 시각화를 위해 선형 회귀선과 95% 신뢰 구간이 표시되었다. 약어: DM = 당뇨 모델; Ex = 운동; FDR = 허위 발견율. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 유전자/미생물 | 정방향 프라이머 | 역방향 프라이머 |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| 총 박테리아 (16S rRNA) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
표 1: 실시간 정량 PCR에 사용된 프라이머 서열.
토론
본 연구에서는 고지방 식이와 저용량 STZ를 병행하여 유도한 당뇨병 마우스 모델을 사용하여 운동과 관련된 대사, 장, 심장 및 미생물 변화를 평가하였습니다. 8주간의 트레드밀 운동은 대사 지표의 개선, 결장 내 Occludin mRNA 발현 증가, 심장 내 Nlrp3 인플라마좀 관련 유전자 발현 감소, 그리고 심근 염증, 섬유화 및 세포 사멸 관련 유전자 발현 감소와 연관이 있었습니다. 또한, 운동은 특정 장내 미생물 군집의 상대적 풍부도 변화와도 연관이 있었습니다. 종합적으로, 이러한 결과는 인과관계가 입증되지는 않았으나, 운동과 관련된 심장의 전사적 변화가 장벽 관련 유전자 발현 및 특정 장내 미생물 군집의 변화와 관련이 있을 수 있음을 시사합니다.
당뇨병 모델에서 예상되었듯이, 마우스는 잘 알려진 병리적 패러다임16,17과 일치하게 고혈당, 고인슐린혈증, 인슐린 저항성 및 이상지질혈증을 포함한 뚜렷한 대사 장애를 보였습니다. 8주간의 운동 요법은 공복 혈당의 약 34% 감소 및 HOMA-IR의 57% 감소와 관련이 있었으며, 이는 인슐린 저항성이 부분적으로 개선되었음을 나타냅니다. 심근 수준에서 운동은 염증 유발(Tnfa, Il1b), 섬유화 유발(Tgfb1, Col1a1) 및 세포 사멸 관련(Bax/Bcl2) mRNA 마커의 발현을 40%~60% 감소시켰으며, 이는 유산소 운동을 AMPK 활성화 및 NF-κB 억제와 연결 지은 이전 연구들18,19과 일치하는 결과입니다. 그러나 이러한 파라미터 중 어느 것도 대조군 수준으로 회복되지 않았으며, 이는 8주간의 중재만으로는 이미 형성된 당뇨 관련 전사 표현형을 정상화하기에 불충분했음을 나타내며, 이는 지속적인 혈당 기억 효과20와 관련이 있을 수 있습니다.
당뇨병 쥐에서 결장의 Occludin mRNA 발현이 약 62% 낮게 나타났으며, 이는 장벽 관련 유전자 발현의 감소를 시사한다. 동시에 심장의 Nlrp3, Il1b, 및 Tnfa mRNA 발현은 각각 5.6배, 6.5배, 5.1배 증가했다. NLRP3 인플라마좀은 선천 면역 시스템의 중요한 센서이며 당뇨병성 심장 병리에 관여하는 것으로 알려져 있다. 고혈당은 활성산소종(ROS) 및 thioredoxin-interacting protein(TXNIP) 경로를 통해 심근의 Nlrp3 유전자 발현을 증가시킬 수 있으며, 이는 이후 IL-1β 및 IL-18 관련 염증 신호 전달에 영향을 미친다21,22. 장벽 붕괴에 따른 리포폴리사카라이드(LPS)의 전신 전이 증가는 NLRP3 프라이밍의 상위 자극으로도 설명되어 왔다23. LPS는 TLR4/MyD88/NF-κB 신호 전달축을 통해 Nlrp3 및 pro-Il1b 발현을 증가시켜 인플라마좀 프라이밍에 필요한 첫 번째 신호를 제공할 수 있다24. 본 당뇨병 모델에서는 E. coli의 상대적 풍부도 증가와 함께 결장 Occludin mRNA 발현 감소 및 심장 인플라마좀 관련 유전자 발현 증가가 관찰되었다. 이러한 병행 변화는 장 관련 염증 경로의 가능성과 부합하지만, LPS 전이 증가나 인과적인 장-심장 기전을 입증하는 것은 아니다.
운동 중재는 결장 Occludin mRNA 발현을 대조군 수치의 약 79%까지 증가시킨 반면, 심장의 Nlrp3, Il1b 및 Tnfa mRNA 발현은 대조군 수치 대비 각각 약 2.3배, 2.7배, 2.1배로 감소시켰다. 이러한 결과는 운동 후 장벽 관련 유전자의 발현 증가와 심장 염증 유전자의 발현 감소 사이에 연관성이 있음을 나타낸다. 이전 연구들에 따르면 운동은 점액 생성 강화, 밀착 연접 단백질의 조절 및 장 관류 개선을 통해 장벽 기능을 지원할 수 있다고 제안되었다25,26,27,28. 하지만 본 데이터는 mRNA 측정으로 제한되었으므로 이러한 기능적 기전을 확인하지는 못했다.
표적 장내 미생물 분석 결과, 운동이 특정 분류군의 상대적 풍부도에서 나타나는 당뇨 관련 변화를 부분적으로 되돌리는 것과 연관이 있음이 확인되었으며, 특히 A. muciniphila의 증가와 E. coli의 감소가 관찰되었습니다. 이러한 상반된 변화는 해당 분류군과 장벽 유지 및 내독소 관련 프로세스 사이의 연관성을 기술한 기존 연구 결과들과 일치합니다29,30,31. 다만, 선택된 분류군만을 정량화했으므로, 본 결과는 장내 미생물 군집의 포괄적인 재구성이라기보다 특정 박테리아의 상대적 풍부도에서 나타나는 운동 관련 변화로 해석해야 합니다.
상관관계 분석을 통해 선택된 미생물 분류군과 전사 마커 사이의 연관성을 추가로 확인하였습니다. 운동 중재군 내에서 A. muciniphila의 풍부도는 심장의 Nlrp3 (R = −0.81, P = 0.0046) 및 Tnfa (R = −0.80, P = 0.0054) mRNA 발현과 음의 상관관계를 보였습니다. 반대로, E. coli의 풍부도는 결장의 Occludin mRNA 발현과 양의 상관관계를 보였습니다 (R = 0.66, P = 0.036; Figure 5C). E. coli와 Occludin mRNA 사이의 양의 연관성은 초기 가설과 상반되며, 이는 선택된 장내 미생물 분류군과 장벽 관련 유전자 발현 사이의 관계가 단순한 선형 모델로 설명되지 않음을 나타냅니다. 이러한 상관관계는 운동, 선택된 미생물 분류군 및 숙주 전사 마커 간의 연관성과 일치하지만, 인과 관계를 입증하는 것은 아닙니다. A. muciniphila의 고갈이 장 투과성과 대사성 내독소혈증을 증가시킬 수 있다는 기존의 증거32와 당뇨병성 심장 병증에 NLRP3가 관여한다는 증거33는 이러한 연관성에 대한 생물학적 맥락을 제공합니다. 그럼에도 불구하고, 본 연구는 A. muciniphila의 증가가 점막 장벽 기능을 강화하거나, LPS 전위를 감소시키거나, 또는 TLR4/NLRP3 매개 심장 염증을 완화시킨다는 점을 직접적으로 입증하지는 않았습니다.
본 연구에는 몇 가지 한계점이 있었습니다. 첫째, 16S 앰플리콘 시퀀싱이나 메타게놈 시퀀싱 대신 표적 16S rRNA qPCR을 사용하여 6가지 대표 박테리아 분류군을 정량화하였습니다. 결과적으로 장내 미생물 군집 구조와 기능적 역량에 대한 종합적인 평가가 이루어지지 않았으며, 더 광범위한 군집 변화나 기능적 경로를 평가할 수 없었습니다. 따라서 연구 결과는 장내 미생물 군집의 리모델링보다는 선택된 분류군의 상대적 풍부도 변화로 기술되었습니다. 둘째, 혈중 LPS 수치, 혈장 SCFA 농도 및 장 투과성을 직접 측정하지 않아 기전적 해석에 제한이 있었습니다. 셋째, 본 연구는 주로 mRNA 발현 데이터에 의존하였습니다. 장벽 무결성, 인플라마좀 활성화, 섬유화 및 세포 사멸에 대한 단백질 수준의 검증과 기능적 검증이 수행되지 않았습니다. 이에 따라 결론은 전사 수준의 변화로 제한되었으며, 기능적 또는 단백질 수준의 효과를 확립하지 못했습니다. 넷째, 단 한 가지의 운동 강도 및 기간 요법만을 조사하였으므로, 당뇨 관련 심장 전사 변화에 대한 최적의 운동 처방과 관련된 결론을 내리는 데 한계가 있었습니다. 다섯째, 수컷 마우스만을 대상으로 연구하였기에 그 결과가 암컷에게 일반화되지 않을 수 있습니다. 여섯째, 건강한 운동 대조군이 없어 당뇨병 특이적 반응과 운동의 생리적 효과를 구분하는 능력에 한계가 있었습니다. 일곱째, 심초음파 검사와 심장 조직병리 검사를 수행하지 않았습니다. 따라서 본 모델은 확진된 당뇨병성 심근병증 모델이 아닌 당뇨병 마우스 모델로 기술되었으며, 모든 심장 관련 결과는 전사 수준의 변화로 제한되었습니다. 마지막으로, 그룹을 통제한 부분 상관 분석을 사용하여 이러한 우려를 줄이려 노력했으나, 관찰된 일부 상관관계는 그룹 내 생물학적 관계보다는 그룹 간 분리를 반영했을 가능성이 있습니다.
요약하자면, 당뇨병 쥐에서 8주간의 트레드밀 운동은 대사 개선과 심장 및 결장의 전사 변화와 관련이 있었습니다. 이러한 변화는 특정 장내 미생물 분류군의 상대적 풍부도 변화, 특히 A. muciniphila의 증가와 E. coli의 감소와 함께 나타났습니다. 관찰된 이러한 연관성은 운동, 특정 장내 미생물 분류군, 장벽 관련 유전자 발현 및 심장 염증조절복합체(inflammasome) 관련 전사 사이의 관계에 대한 추가 연구의 근거가 됩니다. 제안된 메커니즘을 검증하고 인과 관계를 규명하기 위해서는 더 광범위한 마이크로바이옴 프로파일링, SCFA 정량 분석, 장 투과성 분석, 그리고 단백질 수준 또는 조직학적 검증을 포함하는 향후 연구가 필요할 것입니다. 관찰된 연관성이 인과적 경로를 반영하는지 확인하기 위해서는 분변 미생물 이식, A. muciniphila 보충 또는 NLRP3 억제를 이용한 추가적인 중재 연구가 필요할 것입니다.
공개 사항
저자들은 본 논문에 보고된 연구에 영향을 미칠 수 있는 재정적 이해관계나 개인적 관계가 없음을 밝힙니다. 본 원고 및 도표 작성 과정에서 AI 도구는 사용되지 않았습니다.
저자 기여도:
H.H.와 G.Z.가 연구를 구상하고 설계하였습니다. H.H., G.Z., Y.X.가 동물 실험 및 시료 수집을 수행하였습니다. H.H.와 G.Z.가 분자 생물학 실험을 수행하고 데이터를 획득하였습니다. H.H.와 Y.X.가 통계 분석을 수행하였습니다. H.H.가 원고를 작성하였습니다. H.W.가 중요한 지적 내용에 대해 원고를 비판적으로 수정하였습니다. 모든 저자가 최종 원고를 읽고 승인하였습니다.
감사의 글
본 연구는 공공, 상업 또는 비영리 부문의 지원 기관으로부터 어떠한 특정 연구비 지원도 받지 않았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Accu-Chek 혈당계 및 시험지 | Roche | Accu-Chek Active | 공복 혈당 측정에 사용 |
| 자동 생화학 분석기 | Hitachi | 7180 | 혈청 생화학 측정에 사용 |
| C57BL/6J 마우스 (수컷, 8주령) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | 당뇨 마우스 모델 구축에 사용된 실험 동물 |
| 시트르산 완충액 (0.1 mol/L, pH 4.5) | Sigma-Aldrich | C8532 | streptozotocin 용액 조제에 사용 |
| 마우스 인슐린 효소결합 면역흡착 분석법 (ELISA) 키트 | Wuhan HuaMei Biotech | CSB-E05070m | 혈청 인슐린 측정에 사용 |
| 고지방 식이 (60% kcal fat) | Research Diets | D12492 | 당뇨 모델의 유도 및 유지에 사용 |
| Isoflurane | RWD Life Science | R510-22-10 | 흡입 마취에 사용 |
| 원심분리기 | Eppendorf | 5424 R | 시료 원심분리에 사용 |
| NanoDrop 2000 분광광도계 | Thermo Fisher Scientific | ND-2000 | RNA 농도 및 순도 평가에 사용 |
| Paraformaldehyde (4%, in PBS) | Servicebio | G1101 | 조직 시료 고정에 사용 |
| 인산염 완충 식염수 (PBS) | Servicebio | G0002 | 조직 시료 세척 및 플러싱에 사용 |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | 실시간 정량 PCR에 사용 |
| PrimeScript RT Reagent Kit (for qPCR) | TaKaRa (Takara Bio) | RR037A | RNA의 cDNA 역전사에 사용 |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | 분변 시료에서 미생물 DNA 추출에 사용 |
| R 소프트웨어 | R Foundation | 4.2.0 | 통계 분석에 사용 |
| 실시간 PCR 시스템 (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | 실시간 정량 PCR 증폭 및 검출에 사용 |
| Streptozotocin (STZ) | Sigma-Aldrich | S0130 | 고지방 식이와 함께 사용하여 당뇨 마우스 모델 유도에 사용 |
| 총 콜레스테롤 (TC) 분석 키트 | Nanjing Jiancheng Bioengineering Institute | A111-1 | 혈청 총 콜레스테롤 측정에 사용 |
| 트레드밀 (전동식, 경사 조절 가능) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | 트레드밀 운동 중재에 사용 |
| 중성지방 (TG) 분석 키트 | Nanjing Jiancheng Bioengineering Institute | A110-1 | 혈청 중성지방 측정에 사용 |
| TRIzol 시약 | Invitrogen (Thermo Fisher) | 15596018 | 조직 시료에서 총 RNA 추출에 사용 |
참고문헌
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.