본 연구는 전기화학 검출기가 결합된 고성능 액체 크로마토그래피(HPLC-ECD)를 이용하여 Drosophila 뇌 내의 생체 발생 아민을 정량화하는 프로토콜을 설명합니다. Drosophila의 유전적 조작 가능성과 HPLC-ECD를 활용하는 이 접근 방식은 연구자들이 뇌 질환에서 생체 발생 아민의 변화를 일으키는 분자 및 유전적 기전을 규명하는 데 도움을 줄 수 있습니다.
방법 논문
고성능 액체 크로마토그래피를 이용한 뇌 질환 Drosophila 모델의 생체 아민 변화 연구
* These authors contributed equally
이 논문에서
요약
초록
많은 신경정신질환 및 신경퇴행성 질환은 생체 아민(BAs)인 도파민(DA)과 세로토닌(5-hydroxytryptamine; 5-HT)의 수준 변화뿐만 아니라 이들의 방출 또는 재흡수 장애를 포함한 뇌 신경전달물질의 교란을 특징으로 합니다. 이러한 신경화학적 변화는 운동 능력 저하, 수면 분절, 스트레스 반응 변화 등과 같은 뚜렷한 핵심 행동 표현형과 상관관계가 있습니다. 주요 BA 시스템들은 서로 상호작용하기 때문에, 질환 모델에서는 단일 신경전달물질의 단독 변화보다는 여러 아민에 걸친 조정된 변화가 빈번하게 나타납니다. 따라서 행동 및 유전적 발견을 해석하기 위해서는 여러 BA의 정확하고 동시적인 정량이 필수적입니다. Drosophila melanogaster는 이러한 질환과 신경전달물질 변화를 모델링하기 위한 유전적으로 다루기 쉬운 시스템을 제공하지만, 초파리 뇌 조직 내 BA는 나노몰(nM)에서 펨토몰(fM) 수준의 매우 낮은 농도로 존재하며, Drosophila 중추신경계의 작은 크기로 인해 이를 검출하는 것은 기술적으로 매우 어렵습니다. 본 연구에서는 전기화학 검출기와 결합된 고성능 액체 크로마토그래피(HPLC-ECD)를 사용하여 초파리 뇌에서 DA, 5-HT 및 옥토파민을 검출하고 정량하는 프로토콜을 설명합니다. HPLC-ECD는 인간 alpha-synuclein의 도파민성 과발현을 기반으로 한 파킨슨병 초파리 모델에서 뇌 DA 및 5-HT의 변화를 검출하는 데 적용되었습니다. 이 프로토콜을 alpha-synuclein 파킨슨병 모델에 적용한 결과, 대조군에 비해 도파민은 유의하게 증가했으나 세로토닌은 변화가 없었으며, 이는 초기 보상성 도파민 작용 기전과 일치하는 결과입니다. 이 접근 방식은 제한된 Drosophila 조직으로부터 다중 BA 정량을 수행할 수 있는 민감하고 저렴하며 접근성이 좋은 방법을 제공합니다. 또한 이는 인간 뇌 질환과 관련된 모노아민 경로를 표적으로 하는 유전적 수정 인자와 후보 치료제의 체계적인 스크리닝을 가능하게 합니다.
서론
생성 아민(BAs)으로도 알려진 모노아민 신경전달물질은 동물의 분류군 전체에 걸쳐 동기 부여 상태, 수면, 학습, 기억 및 기분 조절을 포함하되 이에 국한되지 않는 여러 핵심 신경학적 및 행동적 특징을 조절하는 것으로 알려져 있습니다1,2,3,4. 도파민(DA) 및 세로토닌(5-hydroxytryptamine; 5-HT)과 같은 BAs의 조절 장애는 파킨슨병과 같은 신경퇴행성 질환뿐만 아니라 조현병과 같은 정신 질환의 결정적인 특징입니다3,5. 그러나 질병의 진행과 뇌 영역 및 뉴런 하위 유형에 걸친 특정 신경화학적 변화 사이의 관계는 아직 완전히 규명되지 않았습니다. 이러한 질문에 답하려면 유전적 조작이 가능할 뿐만 아니라 질병 관련 생리학적 및 행동적 표현형을 재현할 수 있는 모델 시스템이 필요합니다. Drosophila melanogaster는 이러한 목적을 위한 강력한 모델 시스템으로 부상했습니다6,7. 초파리는 분리되어 있고 잘 규명된 도파민성 및 세로토닌성 뉴런 집단을 보유하고 있으며7,8, 이러한 시스템을 관장하는 생합성 경로, 운반체 및 수용체 패밀리는 포유류의 해당 시스템과 기능적으로 보존되어 있습니다9. 이러한 보존성은 초파리에서의 신경화학적 발견을 인간 질병의 더 넓은 맥락으로 변환할 수 있는 기전적 근거를 제공합니다.
신경계 및 정신 질환 모델링을 위한 초파리의 유용성은 단순한 유전적 상동성을 훨씬 뛰어넘습니다. 유전적 조작이 용이한 시스템으로서, 초파리 도구들은 세포 특이적인 유전자 및 경로 스크리닝을 가능하게 하여 질병 관련 증상을 악화시키거나 반전시키는 요인들을 밝혀내고, 새로운 치료 표적의 발견을 촉진합니다10. 또한, 이분법적 발현 시스템(binary expression systems)을 통해 특정 모노아민성 신경세포 하위 유형뿐만 아니라 특정 발달 단계까지 표적화할 수 있어11, 매우 정밀한 공간적 및 시간적 조절이 가능합니다. 초파리 모델 시스템은 또한 정량화 가능한 다양한 행동 목록을 제공하여, 질병 관련 증상의 재현성을 평가하고 이를 회복시키기 위한 중재 전략을 테스트하는 데 사용할 수 있습니다7. 예를 들어, 초파리에서 잘 확립된 파킨슨병 유전 모델에는 Pink1 및 parkin 기능 상실 돌연변이를 가진 개체와, 인간 α-synuclein (α-syn), SNCA의 야생형 또는 점 돌연변이 버전을 과발현시킨 초파리가 포함됩니다12,13,14. 이러한 모든 초파리 모델은 운동 능력 저하, 도파민성 신경세포의 퇴행, 미토콘드리아 기능 장애, 그리고 인간 서열을 가진 초파리에서의 α-syn 응집을 포함하여 해당 질병의 가장 중요한 특징들을 보여줍니다15,16,17,18,19. 한편, 신경 발달 장애와 비정상적인 도파민 신호 전달 역시 조현병과 같은 질환의 근본 원인 중 하나로 간주됩니다20. 이에 따라, 성체 초파리에서 과잉 행동, 감각 반응 변화, 각성 수준 감소를 포함한 조현병 유사 증상을 모델링하는 데 Drosophila가 사용되어 왔습니다21,22,23,24,25. 종합하면, 이러한 모델들은 Drosophila가 신경퇴행성 질환의 진행 과정과 정신 질환의 발달적 기원을 모두 포착할 수 있음을 입증합니다.
유전자 모델에서의 행동 변화를 신경화학적 변화와 연관시키기 위해서는 생체아민(BAs)의 정확하고 재현 가능한 정량적 측정이 필요합니다. 또한 여러 질환에서 모노아민 조절 장애는 단일 신경전달물질 시스템에만 국한되지 않습니다. Pink1B9 돌연변이 초파리의 경우, 운동 기능 장애가 나타나기 전에 세로토닌 함량이 감소하고 세로토닌 운반체 활성이 저하됩니다26. 세로토닌성 신호 전달을 조기에 약리학적으로 회복시키면 Pink1B9 돌연변이 초파리에서 이후에 발생하는 도파민성 신경세포의 손실을 방지할 수 있습니다. 따라서 세로토닌성 변화가 도파민성 병증보다 먼저 나타나 인과적으로 기여할 수 있으며, 이는 행동 분석이나 단일 분석물 측정만으로는 확인할 수 없는 관계입니다. 마찬가지로, 조현병 모델에서도 세로토닌성 시스템의 변화가 관찰됩니다22,27,28. 더욱이, Drosophila의 주요 생체아민들은 부분적으로 중복되거나 길항적인 방식으로 상호작용하므로, 한 시스템의 상태만으로는 다른 시스템의 상태를 제대로 대변할 수 없습니다29. 그러므로 이러한 모델에서 개별 생체아민을 정량화하는 것이 매우 중요합니다.
생체 아민(Biogenic amines)은 생체 조직 내에 매우 낮은 나노몰(nanomolar)에서 펨토몰(femtomolar) 농도로 존재하는 전기화학적 활성 모노아민(예: 카테콜아민, 인돌아민)으로, 이들을 동시에 검출하는 것은 기술적으로 매우 까다롭습니다30,31. 따라서 질병 발생 시 생체 아민 변화의 유전적 및 분자적 기초에 관한 의문을 해결하려면 구조적으로 유사한 여러 아민을 분해할 수 있는 분석 방법이 필요합니다. 또한 이 방법은 Drosophila 중추신경계 표본에서 얻을 수 있는 적은 양의 조직 부피 내에서도 생물학적으로 유의미한 농도를 검출할 수 있어야 합니다. 전기화학적 검출(ECD)과 결합된 고성능 액체 크로마토그래피(HPLC)가 이러한 요구 사항을 충족합니다. HPLC는 시료 내 서로 다른 분자들을 물리화학적 특성에 따라 분리할 수 있는 분석 기술입니다. 크로마토그래피 시스템을 전기화학 검출기와 결합하면 생체 아민과 같이 전기화학적으로 활성인 분석물을 신속하고 고감도로 분석할 수 있습니다. 전기화학 검출기는 분석물이 컬럼에서 나올 때 산화를 유도하여 전극 표면에서의 상호작용을 정량화 가능한 전기 신호로 변환함으로써 작동합니다. 질량 분석법과 같은 다른 기술들도 유사한 선택성과 감도를 제공할 수 있습니다32,33. 하지만 시료당 낮은 비용과 HPLC-ECD의 신뢰성 덕분에, 이는 생물학 연구실에서 생체 아민을 일상적으로 편리하게 검출하는 데 이상적입니다. 이 기술을 Drosophila 유전학의 강력함과 결합하면 아민성 시스템 변화의 유전적 및 분자적 기초를 신속하고 간단하게 분석할 수 있습니다.
본 연구에서는 α-syn 과발현 기반의 유전적 파킨슨병 모델을 사용하여 Drosophila 뇌 시료 내 BA 함량의 차이를 결정하는 프로토콜을 제시합니다. 또한, 이 접근 방식이 뇌 질환의 분자적 기반을 연구하는 데 어떻게 활용될 수 있는지 설명합니다.
프로토콜
본 연구에서 제시된 원시 데이터는 https://doi.org/10.6084/m9.figshare.33868519에서 확인할 수 있습니다.
사용된 시약 및 장비는 재료 표에 나열되어 있습니다.
1. 초파리 동조 및 수집
- 수집 3일 전부터 관심 있는 파리들을 25 °C의 일정 온도에서 12시간 명기 및 12시간 암기의 일정 주기 하에 동조시킨다. 유전자형/조건당 충분한 수의 파리가 준비되도록, 파리 5마리씩 포함된 생물학적 반복구 3~9개를 동조시킨다.
- 수집 당일, 1.5 mL 튜브를 드라이아이스 위에 놓는다. 파리 유전자형/조건당 하나의 튜브를 사용한다. 깔때기를 사용하여 파리를 튜브에 직접 부어 급속 냉동시킨다.
참고: 드라이아이스 상에서 직접 수집하면 마취의 잠재적인 유해 효과 없이 하루 중 서로 다른 시간에 수집할 수 있다. 이 시점에서 샘플은 -80 °C에서 무기한 보관하거나 즉시 처리할 수 있다. 하루 시간대 변화에 따른 혼란 변수를 방지하기 위해 실험군과 대조군을 동시에 수집한다. 현재의 대표 결과에서는 점등 전환 3 h 후에 파리를 수집하였다.
2. 뇌 해부 및 시료 준비
- 조직 박리를 준비하기 위해 피펫 팁 박스의 뚜껑과 같이 높이가 낮은 용기를 사용하고 얼음을 채웁니다. 그 위에 30 mm Petri dish를 올려 박리 플랫폼으로 사용합니다. 특히 열이 발생하는 조명이 있는 실체 현미경을 사용할 때, 얼음 위에서 조직 박리를 수행하면 조직의 변성을 방지할 수 있습니다.
- 디쉬 위에 얼음처럼 차가운 1x Phosphate-Buffered Saline (PBS) 200 µL 방울을 떨어뜨리고, 실체 현미경 하에서 정밀하고 날카로운 핀셋을 사용하여 각 파리를 박리합니다.
- 뇌를 박리하려면, 한 쌍의 핀셋으로 파리의 복부를 잡고 PBS 방울 속에 담급니다. 파리를 놓지 않은 상태에서 머리와 몸통의 연결 부위를 잡아 머리를 분리합니다.
- 몸통과 머리 모두 PBS 위에 뜹니다. 방울에서 몸통을 제거하여 버립니다. 핀셋을 사용하여 머리의 구강나비를 잡아 PBS 방울 안쪽으로 밀어 넣습니다.
- 사용하지 않는 다른 핀셋으로 눈의 가장자리를 잡아 머리를 고정하고 구강나비를 제거합니다.
- 구강나비를 제거하여 생긴 구멍 주변의 조직을 잡고 당깁니다. 그러면 뇌가 노출됩니다.
- 남아 있는 조직이 정량 분석에 영향을 줄 수 있으므로, 뇌를 부드럽게 세척하여 머리 파편을 제거합니다. 또한, 시료의 변성을 막기 위해 드라이아이스 위의 튜브에서 파리를 한 마리씩 꺼냅니다.
- 피펫 팁을 사용하여 박리된 뇌가 포함된 소량의 액체를 얼음처럼 차가운 1x PBS가 든 튜브로 직접 옮깁니다. 생물학적 반복구당 총 5개의 뇌가 모일 때까지 이 단계를 반복합니다. 뇌가 피펫 팁에 달라붙는 것을 방지하려면, 먼저 박리 플레이트의 용액으로 여러 번 피펫팅하여 팁을 컨디셔닝합니다.
- 박리가 완료되면, 2,000 x g에서 10초 동안 짧게 원심분리하여 뇌를 튜브 바닥에 모읍니다.
- 1x PBS를 조심스럽게 제거하고 얼음 위에서 0.2 N Perchloric Acid (PCA) 50 µL로 교체합니다.
주의: PCA는 부식성이 매우 강합니다. 분주액은 사전에 흄 후드에서 준비하고, 취급 시 적절한 개인 보호 장구를 착용하십시오. 여기에는 내화학성 고글, 고중량 네오프렌 장갑 및 고무 앞치마가 포함됩니다.
참고: 또는 뇌를 즉시 0.2 N PCA 50 µL에 수집할 수도 있습니다. 이 경우, PBS의 원치 않는 혼입을 피하기 위해 바늘을 사용하여 뇌를 옮기십시오. - 초음파 균질기를 사용하여 조직을 균질화합니다. 열 발생을 피하기 위해 진폭을 조절합니다. 여기서는 10 kHz를 사용하며, 3초의 짧은 펄스 후 3초간 얼음에 두는 사이클을 반복합니다.
- 시료를 15,000 x g, 4 °C에서 15분 동안 원심분리합니다. 상층액 40 µL를 얼음에 보관된 새 튜브에 수집합니다. 시료를 PCA에 보관하면 BA 산화를 방지할 수 있습니다. 이 단계에서 조직이 수집되면 시스템이 막힐 가능성이 높으므로 조직 수집을 피하십시오. 일부 조직이 수집된 경우 시린지 필터를 사용할 수 있으나, 시료 회수율에 부정적인 영향을 미칠 수 있습니다.
- 시료를 분석하기 직전에 1 M Sodium Acetate 8 µL를 첨가합니다. 이렇게 하면 시료의 pH가 이동상의 pH인 3.5에 가까워져, 시료가 검출기를 통과할 때 피크 모양이 유지됩니다. 이제 시료를 주입할 준비가 되었습니다.
3. 이동상 준비
- 유리병에 초순수 870 mL를 넣어 시트르산-아세트산 이동상 1 L를 준비합니다.
- 초순수가 담긴 유리 용기에 sodium acetate trihydrate 5.61 g과 citric acid anhydrous 8.79 g을 넣고 완전히 녹을 때까지 혼합합니다. pH가 3.5인지 확인하고, 그렇지 않은 경우 적절하게 조정합니다.
- 흄 후드 내에서 HPLC 등급의 메탄올 130 mL를 추가합니다.
- sodium 1-octanesulfonate hydrate 130 mg을 넣고 충분히 혼합합니다.
- 1시간 동안 교반하면서 0.2 µm 필터를 사용하여 용액을 진공 여과합니다. 교반은 용액 내에 갇힌 가스를 제거하며, 진공 상태는 가스 제거와 여과 과정을 돕습니다.
- 공기 방울을 제거하기 위해 초음파 세척기(42 kHz)에서 용액을 30분 동안 초음파 처리합니다.
- 용기를 알루미늄 호일로 감싸고 적절하게 라벨을 부착합니다.
참고: 시약의 순도는 머무름 시간에 큰 영향을 미칩니다. HPLC 등급의 시약을 사용하면 분석 간 일관성을 유지하는 데 도움이 됩니다. 이동상을 다시 제조할 때 동일한 시약을 사용하는 것 또한 결과의 일관성을 유지하는 방법입니다.
4. 표준물질 준비
- 표준품을 준비하려면 OA, DA, 5-HT를 각각 10 mg씩 칭량지 위에 잽니다.
- 칭량한 양을 각각 별도의 125 mL 유리 병에 넣어 개별 스톡 용액을 만듭니다. 빈 칭량지의 무게를 다시 재어 병에 들어간 OA, DA 또는 5-HT의 정확한 양을 계산합니다.
- 분석물의 농도가 100 ng/µL가 되도록 추가해야 할 용매의 양을 계산합니다. 10 mg 전체가 투입되었다면 용매 100 mL를 사용합니다. OA와 DA의 경우 0.1 M Hydrochloric acid를 용매로 사용하고, 5-HT의 경우 대신 0.1 M acetic acid를 사용합니다.
- 표준품에 2Na-EDTA를 최종 농도 1 mg/mL가 되도록 첨가합니다. 완전히 용해될 때까지 충분히 혼합합니다. 빛으로부터 보호하기 위해 병을 알루미늄 호일로 감싸고 4 °C에서 보관합니다.
참고: 표준품은 이러한 조건에서 최대 3개월 동안 보관할 수 있습니다.
5. 검정 표준 용액의 준비
참고: 검량선을 작성하려면 서로 다른 농도로 혼합된 BA 표준물질 3종을 준비하십시오. 본 예시에서는 0.03 ng/µL, 0.01 ng/µL, 0.001 ng/µL 농도의 작업 용액을 사용합니다. 10 µL를 주입하면 각각 0.3 ng, 0.1 ng, 0.01 ng의 표준량이 됩니다.
- 각 100 ng/µL BA 스톡 1 µL를 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA 97 µL에 첨가하여 1 ng/µL 스톡 믹스를 준비하는 것으로 시작합니다. 충분히 혼합합니다.
- 1 ng/µL 스톡 2 µL를 취해 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA 64.6 µL에 첨가합니다. 충분히 혼합합니다. 이것이 0.03 ng/µL 작업 용액입니다.
- 1 ng/µL 스톡 2 µL를 취해 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA 18 µL에 첨가합니다. 충분히 혼합합니다. 이것이 0.1 ng/µL 작업 용액입니다. 이 용액은 본 프로토콜에서 주입되지 않으며, 연속 희석용으로만 사용됩니다.
- 0.1 ng/µL 스톡 4 µL를 취해 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA 36 µL에 첨가합니다. 충분히 혼합합니다. 이것이 0.01 ng/µL 작업 용액입니다.
- 마지막으로, 0.01 ng/µL 스톡 4 µL를 취해 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA 36 µL에 첨가합니다. 충분히 혼합합니다. 이것이 0.001 ng/µL 작업 용액입니다.
참고: 이 표준물질들은 빛이 차단된 상자에 보관하십시오. 모든 작업 용액 표준물질은 새로 준비하여 사용해야 합니다.
6. 주입 설정 및 실행
참고: 모든 HPLC 시스템은 동일한 원리로 작동합니다. 하지만 하드웨어의 차이에 따라 머무름 시간과 분석 시간이 크게 달라질 수 있습니다. 또한, ECD의 감도에 따라 검출 한계가 달라지므로, 이는 실험적으로 정의해야 합니다. 본 연구에서는 역상 C18 컬럼이 장착된 고성능 액체 크로마토그래피(HPLC) 시스템을 사용하였습니다.
- 펌프와 전기화학 검출기를 포함한 HPLC 장비를 켭니다. 유속을 100 µL/min으로 설정하고 전기화학 검출기가 안정적인 기선(baseline)에 도달할 때까지 기다립니다. 이 과정은 10분에서 30분 정도 소요됩니다.
- 시료를 주입할 준비가 되면 유속을 500 µL/min으로 설정합니다. 시스템이 5분 동안 안정화되도록 합니다. 그동안 20 µL Hamilton 시린지를 초순수로 3회 세척합니다.
- 시린지에 10–20 µL의 시료를 흡입합니다. 흡입 부피는 시료 루프 용량에 따라 달라집니다. 자세한 내용은 시료 루프 매뉴얼을 참조하십시오.
- 주입 시 시린지에 기포가 없는지 확인합니다. 내부에 갇힌 가스는 이동상의 정확한 펌핑이나 ECD 측정에 간섭을 일으킬 수 있습니다. 기포가 있는 경우 시료를 다시 되돌린 후 시린지 로딩을 다시 시도하십시오.
- 바늘을 주입구에 완전히 삽입합니다. 레버를 load 위치로 설정하고 시린지 플런저를 밀어 모든 액체가 배출될 때까지 시료를 주입합니다. 인젝터 레버를 “inject” 위치로 내립니다. 분석이 시작되었으며, 이 조건에서 분석은 30–35분 내에 완료되어야 합니다.
- 추가로 분석할 시료가 있는 경우, 다음 시료를 주입하기 전 500 µL/min의 유속으로 10–15분 동안 시스템을 가동합니다.
참고: ECD 신호가 지속적으로 변동하는 경우 시스템 압력의 변화를 확인하십시오. 시스템 내에 갇힌 가스는 불균일한 흐름과 정상보다 높은 배경 신호를 유발할 수 있습니다. 이 문제를 해결하려면 ECD를 우회하여 신선한 용액으로 고속으로 시스템을 퍼지(purge)하십시오.
7. 데이터 검색 및 분석
참고: 이러한 유형의 데이터를 수집하고 분석하는 데 사용할 수 있는 아날로그-디지털 변환기와 소프트웨어가 여러 가지 있습니다. 데이터 처리 방식에는 차이가 있을 수 있으나, 일반적인 원리는 동일합니다. 본 연구에서는 각각 데이터 변환 소프트웨어와 크로마토그래피 데이터 획득 및 분석 소프트웨어를 사용하였습니다.
- ECD에 의해 포착된 BA의 산화로 인해 발생하는 전류/전압의 변화는 아날로그-디지털 변환기에 의해 변환됩니다. BA 농도는 전류/전압의 변화량에 비례합니다.
- BA 표준 시료 분석의 전류 대 시간 그래프에서 얻은 곡선 아래 면적을 사용하여 검량선을 추정합니다. 값은 전류/전압(nA 또는 mV) 대 양(ng) 그래프에서 선형 회귀로 표시됩니다.
- 선형 방정식을 사용하여 샘플 내 BA의 농도를 계산합니다.
결과
생물학적 화합물은 서로 다른 전압에서 산화됩니다. 뇌 조직과 같은 복잡한 매트릭스에서는 적절한 ECD 전위(potential)를 선택함으로써 더 깨끗하고 정확한 정량이 가능해집니다. 본 실험에서는 이러한 요인이 Drosophila 뇌 샘플 내 OA, DA 및 5-HT의 식별과 정량에 미치는 영향을 보여주기 위해 두 가지 다른 전압을 선택하였습니다. 950 mV를 사용하면 혼합물 내의 이 3가지 아민을 용이하게 검출할 수 있는 반면(그림 1A), 650 mV에서는 도파민과 세로토닌만 관찰됩니다(그림 1B). 이는 해당 화합물들의 산화 전압인 OA의 경우 900–1000 mV, DA 및 5-HT의 경우 600–700 mV인 것과 일치합니다. OA, DA, 5-HT의 머무름 시간(retention times)은 각각 6분, 11분, 29분입니다. 0.01 ng, 0.1 ng, 0.3 ng의 세 가지 서로 다른 양을 정량한 결과, 950 mV와 650 mV에서 유사한 검정 곡선이 도출되었습니다(그림 1C,D). 이 곡선들은 각 검출 전위에서 테스트된 농도 범위에 따라 각 분석물에 대한 분석법의 선형성과 민감도를 보여줍니다.
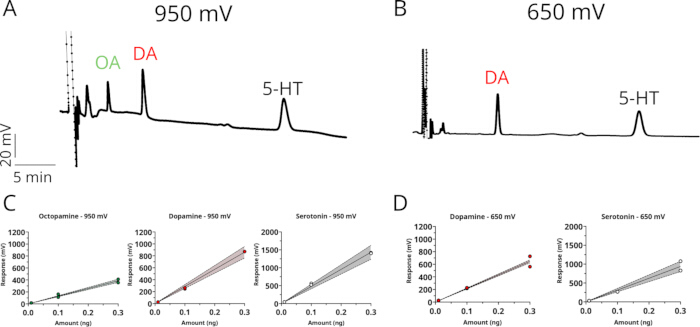
그림 1: 두 가지 산화 전위에서의 HPLC-ECD를 이용한 바이오제닉 아민의 검출 및 정량. (A,B) 인가 전위가 (A) 950 mV 또는 (B) 650 mV일 때 검출된 옥토파민(OA), 도파민(DA) 및 세로토닌(5-HT) 표준물질의 분리를 보여주는 대표 크로마토그램. 세로축: 응답(mV); 가로축: 머무름 시간(스케일 바로 표시된 눈금당 5 min). (C,D) (C) 950 mV 및 (D) 650 mV에서 각 분석물에 대한 검량선으로, 표준물질 양(ng; 0.01–0.3 ng)에 따른 피크 응답(mV)을 도식화함. 실선은 선형 회귀 적합도를 나타내며, 음영 처리된 띠는 95% 신뢰 구간을, 채워진 원과 빈 원은 농도당 2회의 개별 표준물질 주입 결과를 나타냄. 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
뇌 추출물과 같은 복잡한 시료는 보통 상당한 생물학적 배경 잡음을 유발합니다. 본 프로토콜에 따라, 우리는 뇌 시료 내 BA의 검출 및 정량에 전극 전압이 미치는 영향을 결정하고자 했습니다. 2일간의 동조화 후 전등이 켜졌을 때 성체 수컷 초파리를 수집하였으며, 얼음처럼 차가운 PBS에서 뇌를 해부한 후 얼음 위에 놓인 0.2 N PCA에 넣었습니다. 조직 해리 및 원심분리 후, 상층액을 1 M sodium acetate로 평형시킨 뒤 10 µL를 주입했습니다. 전극 전위를 950 mV로 설정하면 각각의 머무름 시간에서 octopamine, dopamine, serotonin의 피크가 나타납니다(그림 2A, 검은색 트레이스). 이들의 정체는 각 BA를 알려진 양(각 0.01 ng)으로 스파이킹한 시료를 분석하여 추가로 확인했습니다(그림 2A, 빨간색 트레이스). 그러나 분석 대상 물질 근처에서 몇 개의 추가 피크가 관찰되어 정량이 복잡해질 수 있습니다. 전극 전위를 650 mV로 설정하면 octopamine 검출을 포기하는 대신 이 문제를 해결할 수 있습니다(그림 2B). 그림 1에서와 마찬가지로, OA는 더 높은 산화 전위와 일치하게 650 mV에서는 분리되지 않습니다.
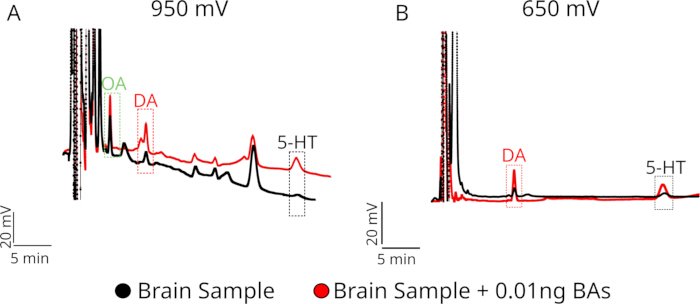
그림 2: 두 가지 산화 전위에서의 피크 강화(spike-in)를 통한 뇌 시료 내 내인성 생체 아민의 확인. (A,B>) (A) 950 mV 또는 (B) 650 mV의 인가 전위에서 HPLC-ECD로 분석한 뇌 조직 추출물의 대표 크로마토그램으로, 표준 물질인 octopamine (OA), dopamine (DA), serotonin (5-HT)을 일정량(0.01 ng) 첨가하기 전(검은색 선, "Brain Sample")과 후(빨간색 선, "Brain Sample + 0.01 ng BAs")의 결과가 나타나 있다. 점선 상자는 각 분석 물질의 머무름 시간 창을 나타낸다. 세로축: 응답(스케일로 표시된 20 mV); 가로축: 머무름 시간(스케일 바로 표시된 5 min). 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
동일한 프로토콜에 따라, HPLC-ECD를 사용하여 다음을 발현하는 초파리 뇌 내의 생성 아민 함량 차이를 검출하였습니다. α도파민성 뉴런 내의 $\alpha$-synuclein (TH-T2A-GAL4) > UAS-SNCA.J34), 파킨슨병의 초파리 모델입니다. 해당 유전자의 돌연변이를 기반으로 한 파킨슨병 모델을 이용한 이전 연구들에서는 Pink1 0~3일령의 어린 초파리에서 도파민 수치에 차이가 있음을 보여주었습니다.35여기서는 도파민과 세로토닌 수치를 비교하기 위해 3~6일 된 파리를 사용하였습니다. 대조군 파리와 비교했을 때, PD 파리에서 도파민 수치가 유의미하게 증가하였습니다.그림 3A), 반면 세로토닌 수치는 변하지 않았다 (그림 3B). 초기 단계의 도파민 수치 상승은 이 모델에서 PD 증상이 나타나기 전의 보상 기전을 반영하는 것일 수 있습니다 (Blesa J 등에서 검토됨). 외.36).
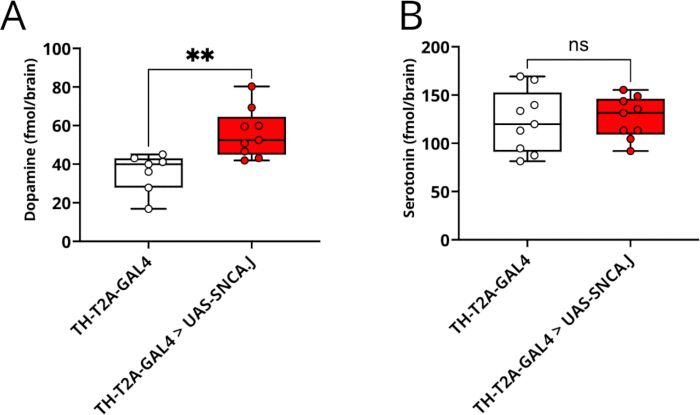
그림 3: HPLC-ECD를 이용한 파킨슨병 Drosophila 모델의 도파민 및 세로토닌 수치 정량화. 대조군(TH-T2A-GAL4, A의 경우 n = 7, B의 경우 n = 9) 및 파킨슨병 모델(TH-T2A-GAL4 > UAS-SNCA.J, n = 9) 초파리의 뇌 전체 조직 내 도파민(A) 및 세로토닌(B) 수치를 fmol/brain으로 표시함. 이 모델에서는 TH-T2A-GAL4 드라이버의 제어 하에 코돈 최적화된 인간 α-synuclein 서열(SNCA.J)이 도파민성 뉴런에서 선택적으로 과발현됨. 데이터는 5개의 뇌를 풀링한 하나의 생물학적 반복구(n)를 나타내는 개별 데이터 포인트가 겹쳐진 박스-위스커 플롯(중앙값, 사분위 범위 및 최솟값-최댓값)으로 표시됨. 통계적 유의성은 비쌍체 t-test로 결정함 (**p < 0.01, ns, 유의하지 않음). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
HPLC는 매우 정밀하게 맞춤 설정이 가능한 분리 기술입니다. 따라서 본 프로토콜의 많은 단계는 수정될 수 있습니다. 신뢰할 수 있는 결과는 이러한 수정 사항에 대한 세심한 주의와 일관성에 달려 있습니다. 고정상과 이동상의 상대적 극성이 분리 모드를 결정합니다. 정상상은 극성 고정상과 비극성 이동상을 조합하는 방식이며, 역상으로는 비극성 고정상과 극성 이동상을 조합합니다. 생물학적 조직 내의 생체 아민 분석에는 일반적으로 역상 조건이 사용됩니다. 본 연구에서는 메탄올을 주 용매로 하는 시트르산-아세테이트 이동상을 사용하였으나, 아세토니트릴을 용매로 하는 인산염 완충액을 사용한 유사한 측정에서도 성공적인 결과가 얻어진 바 있습니다22,26,35. 따라서 완충액 조성은 원하는 피크 해상도와 모양에 따라 변경될 수 있습니다. 이동상 조성을 변경하면 용출 시간이 변경될 가능성이 큽니다37. 이는 피크 중첩을 유발하여 정량을 어렵게 하거나 불가능하게 만들 수 있습니다. 이를 해결하기 위한 가장 효과적인 방법은 pH를 변경하는 것인데, 이는 분석 물질과 컬럼 간의 상호작용이 분석 물질의 pKa에 크게 의존하기 때문입니다38.
아민은 산화적 분해가 일어날 수 있으므로, 조직 수집 및 처리 과정이 프로토콜에서 중요한 지점입니다. 샘플을 드라이아이스에 담아 수집하고 처리 전까지 -80 °C에서 보관하는 것이 중요한 단계입니다. 적출 후에는 샘플을 산성 조건에서 빠르게 균질화해야 합니다. 이는 BA의 분해를 방지하기 위함입니다30,39,40. 이러한 맥락에서 PCA의 사용이 제한적인 경우 다른 산을 사용하는 것이 유용할 수 있습니다. PCA를 대체하는 비폭발성 산화제인 포름산과 메탄올의 조합을 추출에 사용할 수도 있으나, Drosophila 뇌 샘플에서는 이를 테스트하지 않았습니다41.
검출기의 선택에 따라 측정 가능 항목과 감도가 결정되며, 분석 대상물의 특성과 요구되는 감도에 따라 UV/가시광선, 형광 및 질량 분석 검출기와 같은 일반적인 옵션이 사용됩니다. 전기화학적 검출은 DA 및 5-HT와 같은 카테콜아민 및 인돌아민 검출에 특히 적합하며, 이들은 작업 전극에서 직접 산화되어 농도에 비례하는 전류를 생성합니다. ECD는 형광 검출 및 자외선 검출과 같은 다른 검출 방법에 비해 더 간단하고 정확한 기술로 언급되어 왔는데, 이들 방법은 샘플 분석 전 더 많은 단계가 필요한 경우가 많아 더 복잡하거나 시간이 많이 소요되기 때문입니다42,43. HPLC-ECD는 생물학적 샘플 내의 분석물을 펨토몰(femtomolar) 농도까지 검출할 수 있어 매우 뛰어난 감도를 제공합니다44. 단일 Drosophila 뇌는 매우 적은 양의 조직만을 제공하므로, 이러한 수준의 감도는 필수적입니다. 결정적으로, HPLC-ECD는 단일 샘플에서 여러 가지 생성 아민을 동시에 정량할 수 있게 해주며, 이는 Drosophila 중추 신경계 표본의 전체 모노아민 프로파일을 한 번의 분석 실행으로 캡처할 수 있음을 의미합니다.
이 방법은 그 적용 범위를 정의하는 내재적인 한계가 있습니다. 이 방법은 매우 민감하지만, Drosophila 샘플에서 BA를 정량화하려면 뇌를 풀링해야 합니다. 따라서 다른 접근 방식과 마찬가지로45 단일 뇌에서의 검출은 보고된 바 없습니다. 또 다른 단점은 전극 오염입니다. 시간이 지남에 따라 산화 부산물이 표면에 얇은 절연층을 형성하여 전극 오염이 발생할 수 있으며, 이는 민감도에 영향을 주고 신호 표류를 유발합니다46. 이는 더 높은 산화 전압을 사용했을 때의 결과에서 특히 두드러집니다(그림 2). 이러한 변화를 고려하기 위해, 몇 차례의 분석 후 표준 시료 주입을 반복하는 것이 도움이 될 수 있습니다. 또한, 관찰되는 피크의 이동을 고려하여 이동상이나 검출 전압에 변경이 있을 때마다 표준 주입을 반복해야 합니다. 주기적으로 전극을 세척하는 것이 이 문제를 해결하는 데 도움이 됩니다. 또 다른 단점은 HPLC-ECD가 분석에 제출된 조직 전체에 걸쳐 통합된 아민 함량의 벌크 정적 측정을 제공한다는 점입니다. 이는 뇌의 어느 부위에 해당 아민이 위치하는지, 또는 특정 뉴런 집단의 상대적 기여도에 대한 정보를 제공하지 않습니다. GABA 및 글루탐산과 같은 비전기 활성 화합물은 표준 ECD 조건에서 검출되지 않으며 별도의 분석이 필요합니다. 아마도 가장 중요한 점은 HPLC-ECD가 표적 분석 방법이라는 것입니다. 이 방법은 전적으로 알려져 있고 잘 특성화된 표준 물질과 머무름 시간을 비교하는 것에 의존하므로, 행동 표현형과 상관관계가 있을 수 있는 미지의 분자를 식별하는 데 사용할 수 없습니다. 행동의 신경화학적 상관관계에 대한 비표적 발견을 위해서는 LC-MS/MS와 같은 기술이 더 적합하지만 비용이 더 많이 듭니다.
이러한 범위 내에서 HPLC-ECD는 Drosophila 질환 모델에서 생물학적으로 유의미하고 명확하게 정의된 일련의 문제들을 해결합니다. 이 방법은 유전형이나 처리가 정지 상태(steady-state)의 아민 수준을 변화시키는지, 그리고 이러한 변화가 특정 신경전달물질 시스템에 국한되는지 아니면 더 광범위한 모노아민 프로파일에 영향을 미치는지를 결정할 수 있습니다. 또한 발달 단계나 질병 진행에 따른 신경화학적 변화를 추적하여, 감지 가능한 행동 표현형이 나타나기 전의 전조 증상적 생화학 상태에 대한 근거를 제공할 수 있습니다47. 또한 약물학적 또는 유전적 개입이 특정 모델에서 아민 결핍을 정상화하는지, 과도하게 교정하는지, 또는 회복시키지 못하는지를 평가하는 데 매우 적합합니다26. 각 아민이 어느 단계에서 변화하는지, 한 시스템을 수정하는 것이 다른 시스템을 교란하는지, 그리고 발달상의 교란이 지속적인 신경화학적 흔적을 남기는지와 같은 질문을 해결하는 것이 바로 민감한 대량 다중 아민 분석법이 구축된 목적입니다. Drosophila에서 사용 가능한 행동 분석 및 유전학적 도구와 병행하여 사용함으로써, HPLC-ECD는 정량적인 생화학적 층위를 제공하여 이러한 질환 모델의 해석 범위를 실질적으로 넓혀줍니다.
공개 사항
저자들은 이해관계의 충돌이 없음을 밝힙니다.
감사의 글
본 연구는 국립보건원(National Institutes of Health) grant R00NS133470 (S.H.)의 지원을 받았습니다. 본 콘텐츠의 내용은 전적으로 저자들의 책임이며, 국립보건원의 공식 견해를 반드시 대표하는 것은 아닙니다. R.V.Z는 Subvención a la Instalación en la Academia (SIA) N°85250142의 지원을 받았으며, J.M.C.는 칠레 국가 연구개발청(Agencia Nacional de Investigación y Desarrollo)의 FONDECYT 1231556의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| (+-) 옥토파민 염산염 | Sigma Aldrich | 770-05-8 | |
| 500 mL 필터 유닛 | Thermo Scientific | FB12566504 | 0.2 $\mu$m aPES 막, 직경 75 mm |
| 빙초산 | Fisher Scientific | 64-19-7 | |
| 무수 구연산 | USB | 77-92-9 | |
| Clarity 크로마토그래피 소프트웨어 | 데이터 에이펙스 | 버전 10.1 | |
| Colibrick 데이터 변환기 | 데이터 에이펙스 | A/D 변환기 | |
| 도파민 염산염 | Sigma Aldrich | 62-31-7 | |
| Dumont #5 핀셋 (Dumoxel Biology) | Fine Science Tools | 11252-30 | 해부용 핀셋 |
| EDTA, 이나트륨염, 이수화물, 결정 (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | Eicom | 680.060.00 | 역상 분리 컬럼 |
| EMD Milipore Synergy UV-R 초순수 (Type 1) 워터 | Millipore | ||
| Hamilton 시린지 25ul (22s/2)"/3) | 해밀턴 | 80465 | |
| HTEC-600 | Eicom | HPLC 장비 | |
| 염산 | Sigma Aldrich | 7647-01-0 | |
| 경량 조직 와이프 | VWR | 82003-820 | |
| 메탄올 HPLC 등급 | Fisher Scientific | 67-56-1 | 0.2 마이크론 여과된 |
| 과염소산, 70% 수용액 | Fisher Scientific | AC424032500 | 0.2 N PCA에 사용하십시오. |
| 세로토닌 염산염 98% | Fisher Scientific | 153-98-0 | |
| 소듐 1-옥탄설포네이트 하이드레이트, HPLC 등급, 99+% | Thermo Scientific | 5324-84-5 | |
| 아세트산 나트륨 삼수화물, 결정 | J.T Baker | 6131-90-4 | |
| Sonicator 1510 Bransonic 초음파 세척기 | Branson | 모델 번호: 1510R-MT | 초음파 파쇄기 |
| 초음파 처리기 소니케이터 | Fisherbrand | 모델 FB50 | CL18 프로브 사용 시 |
참고문헌
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공