이 프로토콜은 Drosophila 유충 감각 뉴런에서 형광 미세소관 마커를 사용하여 미세소관 역동성을 실시간 공초점 이미징하는 방법에 대한 가이드를 제공합니다.
방법 논문
Drosophila 감각 수상돌기 내 미세소관 동태의 In Vivo 이미징
* These authors contributed equally
이 논문에서
요약
초록
Drosophila 유충의 class IV 감각 뉴런은 큐티클 바로 아래에 위치하며, 유충이 성장함에 따라 2차원적으로 등방성 확장을 하는 고도로 분지된 수지상 돌기 구조를 특징으로 합니다. 이러한 수지상 돌기의 성장은 수지상 말단 팁의 성장, 수축 및 일시 정지를 포함하는 확률적 과정에 의해 추진됩니다. 팁의 역동성이 미세소관의 역동성에 의해 구동된다는 가설을 검증하기 위해, 수지상 돌기 내의 형광 표지된 미세소관을 이미징하는 프로토콜이 개발되었습니다. 이 방법은 공초점 현미경을 사용하여 class IV 감각 뉴런의 미세한 말단 수지상 돌기 내 미세소관 역동성을 시각화할 수 있게 합니다. 본 방법은 이미징 과정 동안 수지상 돌기 구조의 형태를 보존하는 동시에, 막 마커와 함께 미세소관을 시각화할 수 있도록 설계되었습니다. 본 논문에서는 생체 이미징을 위한 Drosophila 유충 준비 절차와 수지상 돌기 내 형광 표지된 미세소관을 시각화하는 과정을 설명합니다. 따라서 이 프로토콜은 막 공동 표지와 호환성을 유지하면서 미세한 말단 수지상 돌기 내의 미세소관 거동을 조사하는 접근 방식을 제공합니다.
서론
뉴런은 세포골격이 그 구조를 결정하는 고도로 편극화된 세포입니다. 뉴런 세포골격의 한 성분인 미세소관은 구조적 지지력을 제공하며, 장거리 화물 운송을 위한 경로 역할을 합니다1,2. 미세소관 세포골격은 수지상 돌기 발달에 매우 중요합니다3. 수지상 돌기는 분지, 신장 및 수축 과정을 통해 확률적으로 성장합니다4. Drosophila 유충의 수지상 돌기 분지(da) 뉴런은 수지상 돌기 형태 발생을 연구하기 위한 강력한 in vivo 모델 시스템입니다. 이 감각 뉴런들은 수지상 돌기의 복잡성 증가 정도에 따라 네 가지 클래스(I-IV)로 분류됩니다3,5. 클래스 IV da 뉴런은 복잡하고 매우 분지된 수지상 돌기를 가지고 있으며, 다중 양식 통각 수용체로 기능합니다6,7,8. 이 뉴런들의 수지상 돌기는 복부 마디를 따라 정형화된 수용 영역을 형성하며 투명한 큐티클 바로 아래에 위치합니다9,10. 이러한 해부학적 특징은 Drosophila의 유전적 조작 용이성과 결합되어, 클래스 IV da 뉴런을 높은 공간 및 시간 해상도로 수지상 돌기 발달을 in vivo에서 시각화하기에 적합한 시스템으로 만들어 줍니다. 발달 과정에서 수지상 돌기가 성장함에 따라, 그 끝단은 성장, 수축 및 정지 상태 사이를 확률적으로 전환합니다11. 끝단의 성장과 수축은 미세소관의 성장 및 수축과 많은 역학적 유사성을 공유합니다12. 따라서 이들 세포에서 미세소관 역동성을 시각화하는 것은 상당한 연구 가치가 있습니다.
Drosophila 유충을 포함한 살아있는 세포 내에서 미세소관 역학을 시각화하는 일반적인 방법은 EB1 및 EB3와 같은 형광 표지된 말단 결합 단백질을 이미징하는 것입니다13,14,15,16,17,18. 그러나 EB-GFP 신호의 해석은 모호할 수 있습니다. 예를 들어, 세포체에서 멀어지며 원위부로 이동하는 EB-GFP 점(punctum)은 외부로 성장하는 미세소관의 플러스 말단이거나, 원위 방향으로 미끄러지듯 이동하는 미세소관의 내부로 성장하는 플러스 말단일 수 있습니다. EB-GFP는 주로 성장하는 미세소관의 플러스 말단을 표지하지만, 성장하는 마이너스 말단을 표지할 수도 있어19 추가적인 모호함이 발생할 수 있습니다. 미세소관을 직접 시각화하면 이러한 모호함을 줄일 수 있습니다.
대안적 접근법 EB-GFP에 대한 대조군은 GFP-튜불린을 이용한 미세소관의 직접 표지법입니다.20,21하지만 형광 튜불린은 근위 수지상 돌기를 강력하게 표지합니다.22단, 원위부 가지돌기를 표지하는 데는 실패한다.23형광 튜불린의 또 다른 문제점은 가용성 튜불린의 농도가 높아 말단 수지상 돌기와 같이 좁은 돌기 내에서 개별 미세소관을 구별하기 어렵다는 점입니다. 따라서 정상적인 생리적 조건의 온전한 뉴런에서 미세소관 역학을 이미징하는 것은 여전히 어려운 과제로 남아 있습니다.
그 초파리 포유류의 Tau, MAP2 및 MAP4의 구조적 상동체인 미세소관 결합 단백질(microtubule-associated protein, MAP) Jupiter는 ~에서 미세소관을 표지하는 데 사용됨 초파리 난소와 배아를 포함한 조직24IV형 수지상돌기에서, 근위부 분지의 미세소관을 정량화하기 위해 mCherry-Jupiter와 sfGFP-Jupiter가 사용되었습니다.22,25,26본 프로토콜은 신경세포 원위부 수지상돌기 내 신경세포 미세소관 거동에 대한 고해상도 타임랩스 관찰이 가능한 라이브 이미징 방법을 설명합니다. 초파리 Jupiter의 형광 표지된 튜불린 결합 도메인을 발현하는 초파리 계통을 이용한 class IV 뉴런.
프로토콜
본 연구에서는 기관 동물 윤리 승인이 필요하지 않은 무척추 모델인 Drosophila melanogaster를 사용하였습니다. 프로토콜에 사용된 도구들은 재료 표에 나열되어 있습니다.
1. 실험용 초파리 계통 구축
- 원하는 부모 계통을 얻기 위해 교배를 설정합니다. ppk 프로모터 하에서 GAL4를 발현하는 class IV dendritic arborization (da) 뉴런에서 mNeonGreen (mNG)-Jupiter를 발현시키기 위해 GAL4/UAS 이원 시스템을 사용합니다.
- 동형접합 UAS-mNG-Jupiter 계통의 처녀 암컷과 동형접합 ppk-GAL4; CD4tdTomato 계통의 수컷을 교배합니다. ppk-GAL4; CD4tdTomato와 UAS-mNG-Jupiter를 모두 보유한 F1 자손을 얻습니다.
참고: ppk-GAL4; CD4tdTomato와 UAS-mNG-Jupiter를 모두 보유한 F1 자손은 class IV da 뉴런에서 mNG와 CD4tdTomato를 강력하게 발현합니다. 최소 3회 이상의 독립적인 유전적 교배에서 유래한 유충을 사용하여 이미징을 수행하며, 교배당 최소 6마리의 유충을 이미징합니다. - 벽면에 효모 페이스트를 소량 도포한 유지 병에 교배 쌍을 넣어 짝짓기를 유도합니다. 25 °C에서 2~3일 동안 배양합니다.
참고: 효모를 급여하면 산란 및 난처리가 촉진됩니다. - 소형 비커에 효모 한 스푼을 넣고 물을 몇 방울 추가하여 효모 페이스트를 준비합니다. 필요에 따라 물을 한 방울씩 추가하면서 페이스트가 반고체 상태가 될 때까지 스파툴라로 충분히 섞습니다.
- 매일 신선한 효모 페이스트가 들어 있는 새로운 유지 병으로 초파리를 옮깁니다.
참고: 효모 페이스트가 너무 무르거나 묽지 않게 주의하십시오. 너무 무르면 초파리가 달라붙을 수 있습니다. 추가적인 방법론적 세부 사항은 Hales et al.27 및 Roote and Prokop28을 참조하십시오.
2. 포도-한천 플레이트 내 산란, 알 수집 및 유충 단계 설정
- 1 L 전자레인지용 비커에 증류수 376 mL, 포도 주스 126 mL, agar 15 g, sucrose 6 g을 혼합하여 약 0.5 L의 grape-agar 배지를 준비합니다.
- agar가 완전히 녹을 때까지 1분마다 흔들어주며 3~5분 동안 전자레인지로 가열합니다. 혼합물을 약간 식힌 다음, ethanol 10 mL와 acetic acid 5 mL를 첨가합니다.
- 충분히 섞은 후 배지를 60 mm Petri dish에 부어 grape-agar 플레이트를 준비합니다. 플레이트를 미리 준비하여 뒤집어 쌓은 뒤 Petri dish 슬리브로 감싸 4 °C에서 보관하고, 2주 이내에 사용합니다. 사용 전 플레이트를 상온으로 예열합니다.
- 사육 병에서 수컷 50마리와 암컷 100마리를 포함하여 약 150마리의 초파리를 산란 케이지로 옮깁니다.
- 효모 페이스트를 소량 도포한 60 mm grape-agar 플레이트로 산란 케이지를 덮습니다.
- 효모 페이스트가 포함된 grape-agar 플레이트 위에서 초파리가 25 °C에서 2시간 동안 알을 낳도록 합니다. 해당 플레이트를 효모 페이스트가 포함된 새 grape-agar 플레이트로 교체하고 다시 2시간 동안 산란시킵니다.
- 효모 페이스트가 포함된 세 번째 60 mm grape-agar 플레이트를 제공하고 초파리가 2시간 동안 알을 낳도록 합니다.
- 배아 연령의 불균일성을 최소화하기 위해 세 번째 플레이트를 실험용 플레이트로 사용하고 처음 두 개의 플레이트는 폐기합니다.
참고: 암컷 Drosophila는 수정란을 산란하기 전 생식관에 몇 시간 동안 보유할 수 있으므로, 초기 알 수집 단계에서는 발달 단계가 서로 다른 배아들이 포함되는 경우가 많습니다. 초기 플레이트를 폐기하면 더 동기화된 알을 얻는 데 도움이 됩니다. - 산란 후(AEL) 단계별 이미징을 위해, 실험용 플레이트의 배아가 원하는 단계에 도달할 때까지 25 °C에서 배양합니다: Stage 1, 24 h; Stage 2, 48 h; Stage 3, 72 h; Stage 4, 96–120 h.
3. 유충 세척
- 표면의 효모 찌꺼기를 제거하고 건조를 방지하기 위해, 유충을 5% sucrose 용액 5 mL로 세척한 후 dH₂O 5 mL로 다시 세척합니다.
- 3/0 붓을 사용하여 일반적으로 3~4마리의 유충을 35 mm 세포 배양 접시의 덮개로 옮깁니다. 실험용 티슈로 유충의 과도한 수분을 닦아 건조시킵니다.
4. 마취
- 마취 전 유충을 세척하고 건조시킵니다.
- 마취 장치를 미리 준비합니다(그림 1). 세포 배양 접시 위에 공기 흐름을 줄여 이소플루란(isoflurane) 마취의 방해를 최소화하기 위해 접시를 판지 상자 외함 안에 배치합니다.
주의: 이소플루란은 휘발성 마취제입니다. 적절한 실험실 환기 시설을 갖추고 기관의 화학 물질 안전 절차에 따라 이소플루란을 취급하고 사용하십시오. 증발 저장소 역할을 하는 35 mm 세포 배양 접시 내부에 덕트 테이프로 고정된 마취용 완드(wand)에 정해진 부피의 이소플루란을 첨가하여 유충을 고정시킵니다. - 세척 및 건조된 유충이 담긴 세포 배양 접시 뚜껑을 세포 배양 접시 위에 올립니다.
- 유충을 2–3분 동안 마취시킵니다.
참고: 이소플루란의 부피와 마취 시간은 유충의 단계와 수에 따라 다릅니다. 적정량을 경험적으로 결정하십시오. 예를 들어, 72 h 유충 3마리를 약 30분 동안 마취시키려면 10–20 µL의 이소플루란을 2분 동안 사용합니다. 유충 단계와 관계없이 고정을 위한 초기 투여량으로 유충 1마리당 분당 5 µL의 이소플루란을 사용하십시오.
5. 마운팅
- 깨끗한 유리 현미경 슬라이드 위에 바셀린으로 직사각형 또는 원형의 구역을 만들고 한쪽 모서리에 작은 틈을 남겨둡니다(그림 1C). 헤나 디스펜서를 사용하여 슬라이드 위에 구역을 그립니다.
- 붓을 사용하여 마취된 유충을 해당 구역으로 옮깁니다. 유충의 등 쪽이 위로 오도록 Halocarbon Oil 700 한 방울 속에 고정합니다.
- 유충 위에 1.5번 커버슬립을 덮습니다. 바셀린이 커버슬립과 슬라이드 사이의 틈을 밀봉하고 유충이 현미경 슬라이드에 약간 눌릴 때까지 부드럽게 압력을 가합니다.
- 5.2단계에서 설명한 이동 단계로부터 최대 30–45분 이내에 즉시 샘플을 촬영합니다. 막 채널에서 블레빙(blebbing)이나 수지상 돌기 파손을 포함한 신경 세포 손상이 관찰되면 촬영을 중단하고, 더 낮은 용량의 마취제를 사용하십시오.
참고: 커버슬립을 덮은 후 Halocarbon Oil 내에 기포가 없는지 확인하십시오. 고품질의 동영상 촬영과 드리프트를 최소화하기 위해서는 기포 제거가 필수적입니다. 기포 형성을 최소화하려면 바셀린 구역의 한쪽 모서리에 작은 틈을 남겨 커버슬립을 덮는 동안 공기가 빠져나갈 수 있도록 합니다. 필요한 경우 가는 붓을 사용하여 틈을 밀봉하십시오.
6. 현미경 관찰 및 이미지 획득
- 50 µm 핀홀과 퍼펙트 포커스 시스템(perfect-focus system)이 장착된 스피닝 디스크 공초점 현미경을 사용하여 유충 샘플의 라이브 이미징을 수행합니다.
- mNG-Jupiter와 같은 미세소관 마커와 막 마커인 CD4tdTomato를 시각화하기 위해, 100 mW 레이저를 기준으로 488 nm 및 561 nm 레이저 라인을 최대 출력의 30%로 설정합니다.
- 노출 시간을 200 ms로 설정합니다. 6.5 µm 센서가 탑재된 sCMOS 카메라와 관련 이미지 획득 소프트웨어를 사용하여 이미지를 캡처합니다.
- 개구수(numerical aperture) 1.25의 40× 수침 대물렌즈와 0.1614 µm의 픽셀 크기를 사용하여 모든 이미지를 획득합니다.
- 투명한 큐티클을 통해 class IV 뉴런에 쉽게 접근할 수 있는 등면의 두 번째, 세 번째 및 네 번째 복부 반절(abdominal hemisegments) 위치를 찾기 위해 샘플의 초점을 수동으로 맞춥니다.
- 각 기록마다 1 µm 간격으로 최대 10 µm 깊이까지 z-stack 세트를 획득합니다. 10초 간격으로 10분 또는 15분 동안 스택을 획득합니다.
참고: 별도로 명시되지 않는 한, 이미징에는 72 h AEL의 유충을 사용합니다.
7. 이미지 처리 및 분석
- Bio-Formats importer를 사용하여 .ND2 형식으로 획득한 타임랩스 영상을 FIJI (Fiji Is Just ImageJ)로 가져옵니다. 후속 분석을 위해 영상을 TIFF 형식으로 변환합니다.
- FIJI의 이미지 안정화 플러그인에서 affine transformation 설정을 사용하여 시료의 표동(drift)을 보정함으로써 영상을 안정화합니다.
- 움직임이 과도한 영상은 분석에서 제외합니다. 분당 1 µm 초과의 움직임은 과도한 것으로 간주하여 분석에서 제외합니다. 또한, 막 마커 채널(CD4tdTomato)에서 블레빙(blebbing)이 관찰되는 영상도 제외합니다.
- FIJI에서 z축 방향으로 최대 강도 투영(maximum-intensity projections)을 생성하여 z-스택을 2차원 시계열 영상으로 변환합니다.
- 팁(tip)과 미세소관의 동적 특성을 정량화하기 위해 FIJI에서 관심 영역(ROI)을 따라 선형 ROI를 그립니다. FIJI의 Multi Kymograph 플러그인을 사용하여 카이모그래프(kymograph)를 생성합니다. ROI를 따라 3-pixel 너비의 라인 스캔을 이용하여 카이모그래프를 생성하고, FIJI의 Multi Kymograph 플러그인을 사용하여 처리합니다.
- 라인 너비 3 pixel의 Plot Profile 도구를 사용하여 강도 프로파일을 추출합니다. 각 라인 스캔의 위치와 강도가 교대로 기록된 다중 열 CSV 파일을 생성합니다.
- 시야 내 빈 영역의 일치하는 ROI에서 배경 강도를 추정합니다. 각 프레임에서 배경 강도를 뺍니다.
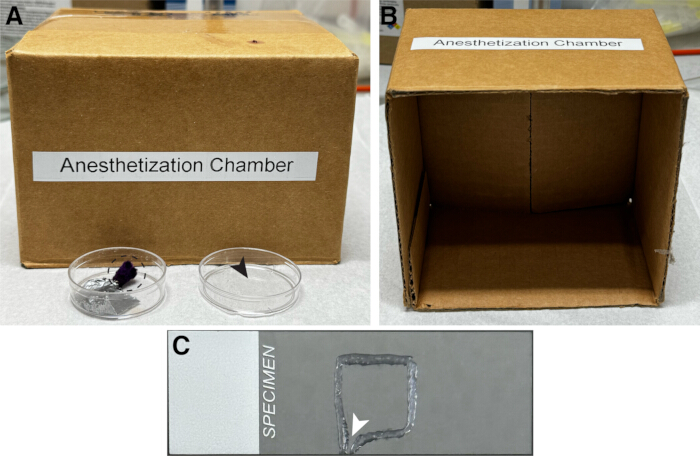
그림 1마취 장치 구성 요소. (A) 덕트 테이프로 고정한 증발 마취봉(검은색 점선 원)이 들어 있는 35 mm 세포 배양 접시를 작은 판지 상자로 덮은 모습. 세포 배양 접시의 뚜껑은 마취 전과 마취 중에 깨끗하고 건조한 유충을 보관하는 데 사용되었다(검은색 화살표 머리). (B) 박스 내부 모습. (C) 이미징 과정 동안 유충 시료를 가두어 두기 위해 헤나 디스펜서를 사용하여 정사각형 바세린 밀폐 구역을 제작한 현미경 슬라이드. 작은 틈(흰색 화살표)은 커버슬립을 덮을 때 공기 제거를 용이하게 한다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
결과
위에 설명된 프로토콜에 따라, mNG-Jupiter와 막 마커 CD4tdTomato를 병용하여 class IV 수지상 돌기(da) 뉴런의 미세소관을 성공적으로 시각화하였다(그림 2A–C). 막 마커는 수지상 돌기 전체의 형태를 나타냈으며, mNG-Jupiter는 수지상 돌기 내의 미세소관 포함 영역을 표지하였다. 말단 수지상 돌기의 원위단에서는 수지상 돌기 팁 근처의 mNG-Jupiter 형광이 약하거나 나타나지 않았으나, 이에 상응하는 말단에서는 CD4tdTomato 형광이 강하게 유지되었다(그림 2D–F).
수지상 돌기 분지 구조는 이전 연구11에서 막 마커만으로 이미징한 유충과 비교했을 때 뚜렷한 형태학적 차이를 보이지 않았습니다. mNG-Jupiter 발현이 형태학적 이상을 유발하는지 정량적으로 평가하기 위해, 72 h AEL에서 mNG-Jupiter를 발현하는 분지와 대조군 분기의 수지상 돌기 끝단(tip) 수를 측정하였습니다. 8마리의 mNG-Jupiter 유충에서 유래한 8개 세포의 분지 1/4 영역 내 끝단 수는 153 ± 25(평균 ± 표준편차)였으며, 대조군 유충의 경우 144 ± 27(평균 ± 표준편차)이었습니다(그림 2G). Welch’s t-검정 결과 유의미한 차이는 검출되지 않았습니다(그림 2 범례 참조). 따라서 mNG-Jupiter 발현은 수지상 돌기 분지 수에 감지 가능한 변화를 일으키지 않았습니다.
타임랩스 이미징을 통해 말단 수지상 돌기 내 mNG-Jupiter 신호의 역동적인 거동을 확인하였습니다. 그림 3A에 제시된 대표 시퀀스에서, 밝게 표시된 mNG-Jupiter 표지 미세소관 끝의 위치가 시간에 따라 변화하는 것을 볼 수 있습니다. 미세소관의 위치와 길이 변화를 시각화하기 위해 mNG-Jupiter 신호의 연속적인 라인 스캔을 시간순으로 배열하였습니다. 그 결과로 얻은 그림 3B의 카이모그래프(kymograph)는 형광 신호의 신장과 수축 단계가 교차되는 양상을 보여주며, 이는 말단 수지상 돌기에서 표지된 미세소관의 성장과 수축 관찰 결과와 일치합니다(비디오 1 및 2). 세포체에 더 가까운 더 굵은 수지상 돌기에서는 미세소관의 수가 더 많아 개별 미세소관의 역동성을 시각화하는 것이 불가능했습니다.
종합적으로, 대표 이미지와 타임랩스 기록은 본 프로토콜을 통해 온전한 Drosophila 유충 감각 뉴런에서 수지상 돌기 형태와 미세소관 관련 형광의 동적인 변화를 모두 시각화할 수 있음을 보여줍니다. 막 마커는 수지상 돌기 구조의 기준을 제공하며, mNG-Jupiter를 통해 수지상 돌기 내 미세소관의 거동을 시간에 따라 관찰할 수 있습니다(그림 2 및 3).
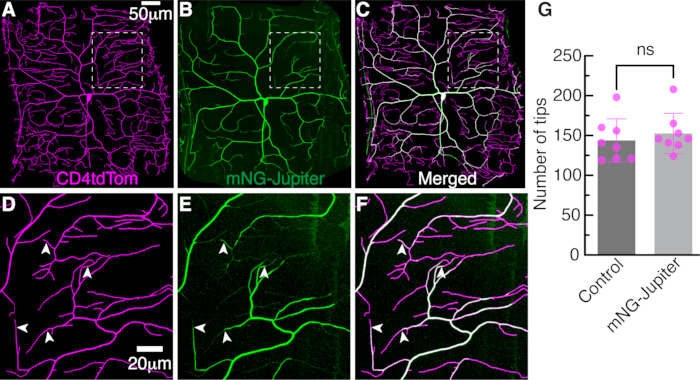
그림 2: IV 클래스 뉴런의 수지상 돌기. 산란 후(AEL) 72시간에 회전 디스크 공초점 현미경으로 촬영한 IV 클래스 수지상 돌기 분지(da) 뉴런의 수지상 돌기 수형 구조. 미세소관은 GAL4/UAS 이진 발현 시스템을 사용하여 시각화하였다. IV 클래스 세포 특이적 드라이버 ppk-GAL4 (pickpocket)는 mNG-태그된 Jupiter (UAS-mNG-Jupiter)의 발현을 촉진한다. 수지상 돌기 막은 CD4 막 마커에 융합된 tdTomato의 직접적인 ppk 프로모터 매개 발현(ppk-CD4tdTomato)으로 표시하였다. (A) 막 마커, CD4tdTomato. (B) 미세소관 마커, mNG-Jupiter. (C) 병합 이미지. (D–F) A-C에서 각각 흰색 점선 상자로 표시된 영역의 확대도로, 미세소관 및 막 마커의 분포를 보여준다. 흰색 화살표 머리는 말단 수지상 돌기에서 mNG-Jupiter의 분포를 나타낸다. (G) 72 h AEL에서 대조군 및 mNG-Jupiter 발현 뉴런의 수지상 돌기 팁 수 정량화. 각 점은 서로 다른 유충의 단일 뉴런의 4분의 1 영역 내에서 계수한 팁 수를 나타낸다. 그룹당 8마리의 독립적인 유충에서 유래한 총 8개의 뉴런을 분석하였다. 오차 막대는 평균 ± SD를 나타낸다. 그룹 간 비교는 양측 비쌍체 Welch t-검정을 사용하여 수행하였다; ns, 유의미하지 않음 (P > 0.05). 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
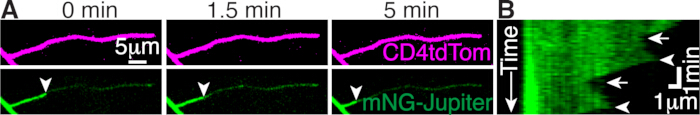
그림 3말단 수지상돌기 내의 미세소관 역학. (A지정된 시점에서의 CD4tdTomato(상단) 및 mNG-Jupiter(하단)를 발현하는 말단 수지상 돌기의 세 이미지. 화살표 머리는 미세소관의 끝부분을 나타냄. 밝은 영역 너머로 희미한 mNG 신호가 보임 미세소관 신호 (B) 미세소관의 성장과 수축을 보여주는 카이모그래프(Kymograph). 화살촉은 성장기를, 화살표는 수축기를 나타낸다. mNG 신호의 3픽셀 너비 라인 스캔을 연속적으로 아래로 배열하였으며, 시간이 경과함에 따라 아래 방향으로 진행된다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
비디오 1: IV형 수지상 분지 뉴런 내 mNG-Jupiter의 타임랩스 이미징. Drosophila 유충의 IV형 수지상 돌기에서 mNG-Jupiter 형광을 보여주는 타임랩스 시퀀스입니다. 이 시퀀스는 수지상 분지 내에서 시간이 경과함에 따라 미세소관 관련 형광이 어떻게 변화하는지 보여줍니다. 이미지는 프로토콜에 기술된 라이브 이미징 조건을 사용하여 획득되었습니다. 스케일 바, 20 µm. 이 파일을 다운로드하려면 여기를 클릭하십시오.
비디오 2: IV형 수지상 돌기 분지 뉴런 내 CD4tdTomato 막 마커의 타임랩스 이미징. 해당 Drosophila 유충 IV형 수지상 돌기 분지에서 CD4tdTomato 형광을 보여주는 타임랩스 시퀀스입니다. 막 마커는 이미징 기간 동안 수지상 돌기 형태에 대한 기준을 제공합니다. 이미지는 프로토콜에 기술된 라이브 이미징 조건 하에서 획득되었습니다. 스케일 바, 20 µm. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
본 프로토콜은 공초점 현미경을 사용하여 Drosophila 감각 뉴런 내 미세소관 역동성의 라이브 이미징을 위해 형질전환 Jupiter 초파리 라인을 사용하는 방법을 보여줍니다. 이 방법은 막 마커를 이용해 평가한 결과, 수지상 돌기의 형태를 유지하면서 온전한 유충 내 미세소관 관련 형광을 시각화할 수 있게 합니다11,29. 유사한 접근 방식이 class IV 뉴런에서 GFP-actin 및 LifeAct-GFP를 이용한 액틴 역동성 이미징에도 사용된 바 있습니다22,30,31,32. 원칙적으로, 동일한 일반적 접근 방식을 class IV 세포 및 다른 등급의 수지상 분지 뉴런(class I, II, III) 내 다른 미세소관 결합 단백질 이미징에도 적용할 수 있습니다. 특히, 형광 미세소관 표지와 EB 표지를 결합하면 미세소관 성장을 해석할 때의 모호함을 줄일 수 있습니다. 예를 들어, EB 코멧(comet)이 없다는 것은 미세소관이 없거나 또는 미세소관이 존재하지만 활발하게 성장하고 있지 않음을 의미할 수 있는데, 미세소관을 직접 시각화하면 이러한 가능성들을 구분하는 데 도움이 됩니다. 따라서 mNG-Jupiter를 형광 EB1과 공동 표지하면 미세소관 조직, 풍부도 및 추정 방향이라는 국소적 맥락 내에서 미세소관 성장 역동성을 해석할 수 있습니다.
적절한 라이브 이미징 데이터를 얻기 위해서는 몇 가지 단계가 매우 중요합니다. 본 프로토콜에서는 정의된 짧은 시간의 고정 체계를 위해 휘발성 마취제인 isoflurane을 사용합니다. 고정 과정 중 isoflurane 용량을 정밀하게 조절해야 하는데, 마취가 불충분하면 유충이 움직일 수 있고, 반대로 마취가 과도하면 신경세포 퇴화로 이어질 수 있기 때문입니다. 또한, 마운팅 시 기포가 생기지 않도록 주의해야 합니다. 기포는 이미지 품질을 저하시키고 샘플 표류(drift)의 원인이 될 수 있습니다. 아울러, 커버스립에 의한 과도한 압력은 수지상 돌기 팽윤(blebbing) 및 이후의 신경세포 손상을 유발할 수 있으므로 피해야 합니다. 이러한 단계들은 이미징 전 과정 동안 샘플의 안정성과 수지상 돌기 형태를 유지하는 데 중요합니다.
본 프로토콜의 중요한 제한 사항은 마취제 노출과 커버슬립에 의한 물리적 구속이 결합된 고정 및 시각화 방법이 미세소관 역학에 영향을 줄 수 있다는 점입니다. 이러한 조건 하에서 미세소관이 교란되는지 확인하기 위해, 다른 고정 방법을 단독으로 사용하거나 본 프로토콜과 병행하여 사용할 수 있습니다. 이러한 접근 방식에는 배아 이미징 및 Shibirets 33와 같은 온도 민감성 돌연변이체의 사용이 포함되며, 이후 성장 속도 및 파열 빈도와 같은 역학적 파라미터를 비교 분석합니다.
이러한 제한 사항 하에서, 본 프로토콜을 통해 유충을 마운팅한 후 약 30분 동안 수지상 돌기의 블레빙(blebbing), 형태학적 퇴화, 또는 검출 가능한 미세소관 및 팁 역동성의 소실 없이 이미징할 수 있습니다. 이 방법은 온전한 유충으로부터 고해상도 타임랩스 데이터를 획득하고 말단 수지상 돌기 내 미세소관의 동적인 거동을 시각화할 수 있게 합니다.
공개 사항
저자들은 공개할 이해상충 사항이 없습니다.
감사의 글
저자들은 미세소관 표지 프로젝트를 시작해 준 Howard 연구실의 모든 구성원, 특히 전 연구원인 Maijia Liao 박사와 Howard 연구실 내에서 Drosophila의 수지상 돌기 역학 시각화 프로토콜을 개발한 Sonal Shree 박사에게 감사를 표합니다. 본 출판물에 보고된 연구는 J.H.에게 부여된 NIH 지원 번호 R35 GM161634 (국립 일반 의생명과학 연구소) 및 지원 번호 R01 NS118884 (국립 신경질환 및 뇌졸중 연구소)의 지원을 받았습니다. 본 내용은 전적으로 저자들의 책임이며, 반드시 NIH의 공식 견해를 대표하는 것은 아닙니다. 본 연구는 또한 J.H.에게 부여된 NSF Grant PHY-2210464 및 PEW Charitable Trusts Award 38044의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 아세트산 (glacial, ACS 시약, ≥99.7%) | Sigma-Aldrich | 695092 | 포도-한천 배지 제조에 사용; 약 0.5 L 제조당 5 mL 사용 |
| 한천 (bactoagar) | Becton Dickinson | 214010 | 포도-한천 배지 제조에 사용; 약 0.5 L 제조당 15 g 사용 |
| 마취용 완드 (Anesthetic wand) | Carolina Biological Supply Co. | 173010 | 유충 마취 중 증발 저장조 내에 이소플루레인(isoflurane)을 유지하는 데 사용 |
| 비커, 1 L, 전자레인지 사용 가능 | Corning Inc. | 1000-1L | 약 0.5 L의 포도-한천 배지 제조에 사용 |
| 비커, 100 mL | Corning Inc. | 1000-100 | 효모 페이스트 제조에 사용 |
| Bio-Formats 임포터 | Open Microscopy Environment Project | Not applicable | .ND2 타임랩스 파일을 가져오는 데 사용되는 FIJI 플러그인 |
| 카메라 (sCMOS, Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | 6.5 µm 센서; 이미지 획득에 사용 |
| 판지 상자 (5 × 5 × 3 in) | Uline | S-4579 | 마취 장치를 덮어 세포 배양 접시 위의 공기 흐름을 줄이는 데 사용 |
| 세포 배양 접시 | Corning Incorporated | 430165 | 35 × 10 mm; 유충 핸들링 및 이소플루레인 증발 저장조로 사용 |
| 커버슬립 | Globe Scientific Inc. | 1404-15 | 22 × 22 mm, No. 1.5; 고정된 유충 위에 배치 |
| Darwin 챔버 | Darwin Chambers | IN030-AA-LT-DA-MP | 25 °C에서 초파리 교배, 산란 및 유충 단계 유지에 사용 |
| 증류수, 실험실 시약 등급 | Research Products International (RPI) | Not applicable | 포도-한천 제조, 효모 페이스트 제조 및 유충 세척에 사용 |
| 덕트 테이프 | Uline | S-6519 | 세포 배양 접시 내부에 마취용 완드를 고정하는 데 사용 |
| 산란 케이지/배아 수집 케이지 | Genesee Scientific | 59-100 | 소형; 60 × 15 mm 페트리 접시에 적합; 제어된 알 수집에 사용 |
| 에탄올 (무수, 200 proof) | Decon Labs Inc. | V1001G | 포도-한천 배지 제조에 사용; 약 0.5 L 제조당 10 mL 사용 |
| FIJI (Fiji Is Just ImageJ) | NIH | Version 2.16.0/1.54p | 이미지 가져오기, 안정화, 최대 강도 투영, ROI 분석, 카이모그래프(kymograph) 생성 및 강도 프로파일 추출에 사용 |
| 초파리 계통: (1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+, UASt-mNeonGreen-Jupiter-RD/CyO | Bloomington Drosophila Stock Center(1); Howard Lab (2) | BDSC# 32078, BDSC# 35845 | class IV 수지상 돌기 분지 뉴런에서 CD4tdTomato 및 mNG-Jupiter를 발현시키는 데 사용 |
| 포도 주스, 100% Concord grape | Welch's | Not applicable | 포도-한천 배지 제조에 사용; 약 0.5 L 제조당 126 mL 사용 |
| Halocarbon oil 700 | Sigma-Aldrich | H8898 | 생체 이미징을 위한 유충 고정에 사용 |
| 헤나 디스펜서 (Henna dispenser) | ZEYER | ZEYER-1005 | 현미경 슬라이드 위에 바세린 밀폐 영역을 형성하는 데 사용 |
| 이미지 안정화 도구 (Image Stabilizer) | Developed by Kang Li | Not applicable | 시료 표류(drift)를 교정하기 위해 아핀 변환(affine transformation) 설정을 사용하여 작동하는 FIJI 플러그인 |
| 이소플루레인 (Isoflurane) | Santa Cruz Biotechnology, Inc. | sc-470926 | 고정 및 이미징 전 유충을 부동화하는 데 사용 |
| 실험실 티슈 (Kimwipes) | Kimberly-Clark Professional | 34120 | 마취 전 세척된 유충에서 과도한 물기를 제거하는 데 사용 |
| 유지용 병 (Maintenance bottle) | Lab Express Inc. | 7001-PBT | 사각 바닥 폴리프로필렌 병, 6 oz; Fly Food B (Bloomington 레시피)를 포함하며 초파리 계통 및 교배 유지에 사용 |
| 전자레인지 | Panasonic | NN-SN686S | 포도-한천 배지 제조 중 한천을 용해하는 데 사용 |
| 현미경, 도립 | Nikon Instruments Inc. | 736228 | 생체 이미징을 위한 퍼펙트 포커스 시스템이 장착된 Ti Eclipse 도립 현미경 |
| 현미경 슬라이드 | Fisherbrand | 12550143 | Superfrost 슬라이드; 이미징을 위한 유충 고정에 사용 |
| Multi Kymograph | Developed by Jens Rietdorf, Arne Seitz, and Johannes Schindelin | Not applicable | 미세소관 역동성의 카이모그래프를 생성하는 데 사용되는 FIJI 플러그인 |
| Nikon Elements 소프트웨어 | Nikon Instruments Inc. | Version 5.21.03 | 타임랩스 현미경 이미지 획득 및 .ND2 파일 생성에 사용 |
| 대물렌즈, 수침 | Nikon Instruments Inc. | MRD77400 | 40×, 1.25 NA; 생체 이미징에 사용 |
| 페인트 브러시 | Dynasty | 2157r | 크기 0 및 3/0; 유충 이동 및 바세린 밀폐 영역 밀봉에 사용 |
| 페트리 접시 | Falcon | 351007 | 60 × 15 mm; 포도-한천 플레이트에 사용 |
| 스파튤라 | VWR | 82027-532 | 22.9 cm (9 in); 효모 페이스트 제조 중 효모와 물을 섞는 데 사용 |
| 스피닝 디스크 공초점 유닛 | Yokogawa CSU-W1 | SBW001 | 50 µm 핀홀; 생체 공초점 이미징에 사용 |
| 자당 (Sucrose) | Sigma-Aldrich | 57-50-1 | 포도-한천 배지에 사용 및 유충 세척을 위한 5% 용액으로 사용 |
| 바세린 | Unilever | Not applicable | 현미경 슬라이드와 커버슬립 사이의 밀폐 영역을 형성하는 데 사용 |
| 효모 (Red Star Active Dry Yeast) | Lesaffre Corporation | Not applicable | 효모 페이스트 제조 및 산란 지원에 사용 |
참고문헌
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공