본 프로토콜은 젊거나 노화된 전구 세포로부터 얻은 Saccharomyces cerevisiae 배아 세포를 타임랩스 현미경으로 관찰하여 미세유체 기반의 수명 분석을 수행하는 방법을 설명합니다.
이 논문에서
요약
초록
Saccharomyces cerevisiae는 비대칭 세포 분열을 통해 점진적으로 노화하며, 모세포에는 노화 관련 손상을 축적하는 반면 젊은 딸세포를 생성합니다. 배우자 형성(Gametogenesis)은 노화된 세포의 복제 수명을 완전히 초기화하여 다음 세대를 위해 노화 시계를 되돌립니다. 효모에서 배우자 형성을 통한 회춘은 이전에도 설명된 바 있으나, 복제 수명의 초기화를 고처리량(high-throughput)으로 정량화하는 기술은 부족했습니다. 배우자 형성 후의 회춘을 정량화하는 기존 방법들은 개별 세포를 수동으로 반복 조작해야 하는 저처리량의 노동 집약적인 방식에 국한되었습니다. 본 논문에서는 S. cerevisiae의 배우자 형성 회춘에 필요한 요인들을 체계적으로 특성화할 수 있는 고처리량 미세유체 기반 현미경 분석법을 상세히 설명합니다. 이 방법은 배우자의 복제 수명을 미세유체 기반으로 평가할 수 있게 하는 두 가지 불활성 유전자 변형을 활용합니다. 연령별 분류 및 4분포자(tetrad) 분리 후, 조건부 불임 배우자를 미세유체 이미징 장치에 로딩하고 배우자 특이적 마커를 사용하여 식별합니다. 장기 타임랩스 이미징을 통해 젊은 전구 세포와 노화된 전구 세포에서 유래한 배우자의 복제 수명을 견고하게 추적하고 비교할 수 있습니다. 본 연구에서는 배우자 수명을 체계적으로 정량화하고 S. cerevisiae의 배우자 형성 세포 회춘을 매개하는 분자 요인들을 고처리량으로 식별할 수 있는 단계별 프로토콜을 제공합니다.
서론
Saccharomyces cerevisiae 세포는 유사분열 중에 비대칭적으로 분열하며, 모세포에 노화 관련 손상을 유지하는 동시에 젊은 딸세포를 생성함으로써 복제 노화를 겪습니다1,2,3,4. 따라서 효모의 복제 수명은 제한적이며, 이는 특정 모세포가 최종 분열 후 노화되어 결국 사망하기 전까지 생성하는 딸세포의 수로 정의됩니다. 놀랍게도, 노화된 S. cerevisiae 세포가 배우자 생성을 완료하면 결과로 생성된 모든 배우자의 복제 수명이 완전히 리셋되어, 젊은 전구 세포에서 유래한 배우자와 구별할 수 없게 됩니다5,6,7,8,9 (그림 1A). 효모에서 배우자 생성에 의한 회춘이 처음 발견된 이후, 배우자 생성 과정 중 노화 관련 손상을 제거하는 여러 중요한 인자들이 확인되었으나, 고처리량 기술의 부재로 인해 이러한 경로가 배우자의 수명에 미치는 영향을 조사하는 데 어려움이 있었습니다6. 배우자의 복제 수명 정량화는 역사적으로 형광 미세절단 현미경을 사용하여 세포 분열을 수동으로 기록하는 방식에 의존해 왔으며, 이 방식은 며칠에 걸쳐 생성된 딸세포를 지속적으로 계수하고 수동으로 제거함으로써 배우자의 복제 수명을 측정합니다7. 이 기술로 배우자의 복제 수명을 분석할 수 있지만, 노동 집약적이고 시간이 많이 소요되는 특성 때문에 지난 10년 동안 해당 분야에서 거의 도입되지 않았습니다10,11. 최초 발견 이후 배우자 생성 회춘에 직접적으로 기여하는 특정 분자 경로가 입증되지 않았다는 점은 현재 기술의 한계와 자동화된 고처리량 분석법의 필요성을 강조합니다7.
최근 몇 년 동안, 딸세포를 수동으로 분리할 필요가 없는 미세유체 기반의 새로운 접근 방식들이 마이크로조작을 통한 복제 수명 정량화 방식을 대체해 왔습니다12. 이미징 챔버 내에서 모세포를 포획하고 유지하기 위해 다양한 트랩이 설계되었으며, 복제 수명 전체 기간 동안 신선한 배지를 지속적으로 흘려줌으로써 새로 형성된 딸세포를 씻어내게 됩니다. 여러 이미징 챔버를 병렬화하면 단일 실험에서 며칠 동안 다양한 유전적 배경을 가진 수백 개의 세포로부터 복제 수명을 획득할 수 있습니다13,14,15,16,17,18,19. 이러한 미세유체 기반 접근 방식은 현재 영양 생장하는 반수체 효모 세포에 선호되고 있지만, 효모 배우자의 복제 수명을 측정하는 데 이 기술을 적용한 사례는 현재까지 보고된 바 없습니다.
미세유체 장치를 사용하여 S. cerevisiae 배우자 복제 수명을 평가하는 데에는 세 가지 주요 기술적 및 생물학적 장애물이 존재합니다. 첫째, 배우자 형성 과정에서 이배체 효모 세포는 두 번의 감수 분열을 거쳐 MATa와 MATα라는 두 가지 교배형이 2:2로 분리된 네 개의 반수체 배우자를 포함하는 조밀한 사분포자를 형성합니다(그림 1A). 따라서 MATa 및 MATα 배우자를 미세유체 장치에 로딩할 때, 분비된 교배 페로몬이 주변 세포의 교배 반응을 유도하여 성장 정지, 비정상적인 세포 형태 및 미세유체 장치의 막힘을 초래합니다. 둘째, 사분포자 포자낭 내의 네 배우자는 발아 과정에서 자연적으로 분리되지 않습니다. 따라서 수동 분리 없이는 전체 사분포자만이 미세유체 챔버에 포집될 수 있습니다. 분리되지 않은 사분포자의 낮은 트랩 유지력과 여전히 연결되어 있는 네 배우자의 개별 분리가 어렵다는 점 때문에 각 개별 배우자의 복제 수명을 평가하는 것이 불가능해집니다. 셋째, 사분포자를 미세유체 장치에 로딩하기 전에 개별 배우자로 분리할 경우, 이들은 영양 성장하는 세포보다 크기가 훨씬 작아 표준 트랩으로 포집되지 않습니다(그림 2A–C).
이러한 한계를 극복하기 위해 Spiri et al. 20269은 불활성 유전적 수정, 4분포자 분리 및 배우자 성장, 배우자 특이적 마커를 결합하여 마이크로플루이딕 기반의 고효율 배우자 복제 수명 정량화 및 S. cerevisiae의 배우자 형성 회춘에 필요한 인자들의 특성 분석을 가능하게 하였다(그림 1B–F). 우선, 표준 유전적 교잡을 방해하지 않으면서 발아 후의 접합을 방지하기 위해 조건부 불임 대립유전자를 제작하였다(그림 3A). 둘째, 4분포자를 단일 배우자로 분리하기 위해 외부 포자 벽을 약화시키는 Zymolyase 처리와 기계적 조작을 병행하였다. 셋째, 분리 후 및 표준 마이크로플루이딕 트랩 사용에 필요한 짧은 성장 기간 이후에도 배우자를 효율적으로 식별할 수 있도록, 수명이 길고 유지력이 좋은 배우자 특이적 형광 리포터를 도입하였다. 이 방법을 사용하여, 이전에 분류된 젊은 전구 세포 및 노화된 전구 세포 유래의 단일 배우자를 분리하여 마이크로플루이딕 장치에 로딩하고 72시간 동안 연속 타임랩스 이미징을 수행함으로써, 젊은 전구 세포와 노화된 전구 세포 유래 배우자의 복제 수명을 정량적으로 분석하고 비교할 수 있었다9. 본 문서에 기술된 상세 프로토콜은 노화된 전구 세포와 젊은 전구 세포 모두에서 배우자 수명 분석의 실현 가능성과 처리량을 실질적으로 향상시켜, 배우자 형성 과정 중 세포 회춘을 매개하는 분자 경로를 직접 식별할 수 있게 한다.
프로토콜
본 프로토콜에 사용된 시약 및 장비의 상세 목록은 재료 표에 나열되어 있습니다.
1. 파운더 세포의 복제 노화
참고: 아래 프로토콜을 사용하는 모든 실험은 pPMA2-PMA2-eGFP, ste5::NATR-pTet07.1-STE5, pRNR2-TetR-TUP1, pTetO7.1-TetR, flo8Δ, amn1D368V의 최소 유전적 배경을 포함하는 SK1 균주 배경의 이배체 S. cerevisiae 세포에서 수행됩니다. 유리 플라스크에서 배양하는 모든 배양액의 경우, 적절한 통풍을 보장하기 위해 배양 부피가 플라스크 부피의 1/5을 초과하지 않아야 합니다.
- 이배체 세포를 yeast extract peptone (YP) glycerol 플레이트에서 해동하고 30 °C에서 하룻밤 동안 배양한다. 이배체 세포를 YP dextrose (YPD) 플레이트로 옮겨 30 °C에서 배양한다(>8 h).
- 갓 해동한 이배체 세포를 5 mL 액체 YPD (2% dextrose)에 접종한다. 상온에서 하룻밤 동안 (>12 h) 배양한다(300 rpm).
- 시작 배양액을 30 mL YPD (2% dextrose)에 희석하여 600 nm에서의 광학 밀도 (OD600)가 0.2가 되게 한다. 배양액의 밀도가 OD600 = 0.6–1에 도달할 때까지 30 °C에서 3~4시간 동안 배양한다(300 rpm).
- 유전자형당 라벨링할 세포가 16 OD600 단위만큼 충분한 양의 배양액으로 시작하는지 확인한다. 각 유전자형에 대해 2 x 8 OD600 단위의 세포를 50 mL 원뿔형 튜브에 옮긴다.
- 권장 사항: 16 OD600 단위를 두 개의 샘플(각 8 OD600 단위)로 나누어 유전자형마다 두 개의 독립적인 founder 세포 배양액을 설정한다. 연령 분류(단계 2.16) 후, 두 founder 세포 배양액의 노화 세포를 결합하여 노화 세포의 전체 수득률을 높인다.
- 50 mL 원뿔형 튜브를 1,900 x g에서 2분 동안 원심분리하고 상층액을 따라낸다. 펠릿을 20 mL phosphate-buffered saline (PBS) (pH 8)로 재현탁한다.
- 단계 1.6을 두 번 더 반복하여 PBS (pH 8)로 총 3회 세척한다. 8 mg/mL biotin 용액을 준비한다(8 OD600 단위의 세포당 500 μL 필요).
- biotin (샘플당 4 mg)을 정량하고 PBS (pH 8)에 완전히 현탁하여 최종 농도가 8 mg/mL가 되게 한다(샘플당 500 μL 필요). 3차 세척 후, 세포를 1 mL PBS (pH 8)에 재현탁한다.
- 초기 2 x 8 OD600 단위를 나누어 세포 현탁액 500 μL를 두 개의 저부착 원심분리 튜브에 분배한다. 각 원심분리 튜브에 500 μL biotin 용액 (8 mg/mL)을 추가하여 총 부피를 1 mL로 맞춘다(그림 1B).
- 뚜껑을 파라필름으로 밀봉하고 1분 동안 볼텍싱한다. 노화된 세포는 기계적 스트레스에 민감하므로, 이것이 세포를 볼텍싱하는 마지막 단계이다. 이후부터는 파이펫팅으로 부드럽게 섞어 세포 펠릿을 재현탁한다.
- 원심분리 튜브를 회전 랙으로 옮겨 4 °C에서 30분 동안 배양한다. 1,900 x g에서 2분 동안 원심분리한 다음, 상층액을 파이펫으로 제거한다. 과잉 biotin을 화학적으로 퀀칭하기 위해 펠릿을 1 mL PBS (pH 8 + 100 mM glycine)에 재현탁한다.
- 단계 1.11을 세 번 더 반복하여 PBS (pH 8 + 100 mM glycine)로 총 3회 세척한다. 세포를 1 mL YPD (2% dextrose)에 재현탁한다.
- 1,900 x g에서 2분 동안 원심분리하고 상층액을 파이펫으로 제거한다. 각 biotin 라벨링 샘플을 위해 500 mL 플라스크에 50 mL YPD (2% dextrose) + ampicillin (100 µg/mL) 배양액을 준비한다.
- biotin 라벨링된 세포를 1 mL YPD (2% dextrose)에 재현탁하여 500 mL 플라스크에 넣는다. 다음 날 세대 수를 추정하기 위해 founder 배양액의 광학 밀도 (OD600)를 측정한다.
- 복제 노화(replicative aging)를 유도하기 위해 founder 배양액을 30 °C에서 하룻밤 동안(16~18 h) 배양한다(300 rpm)(그림 1B). 이를 통해 각 biotin 라벨링된 founder 세포가 약 6~7회 분열하게 된다.
2. 노화된 파운더 세포의 분리
참고: PBS (pH 7.4) + BSA (5 g/L)를 4 °C에 보관하고 실험 중에 얼음에 유지하십시오.
세포 펠릿을 재희석할 때, 컬럼 막힘을 방지하고 분리 효율을 극대화하기 위해 완전히 재현탁 및 혼합되었는지 확인하십시오. 노화된 세포 집단의 순도를 높이기 위해, 첫 번째 분리 컬럼에서 얻은 용출액을 새 두 번째 분리 컬럼에 다시 적용하여 두 번의 연속적인 분리를 수행합니다. 이 절차를 통해 어린 세포의 오염이 최소화된 노화된 세포 집단(순도 90–98%)을 얻을 수 있습니다. 노화된 세포는 기계적 스트레스에 민감하므로, 세롤로지컬 피펫을 사용하여 부드럽게 피펫팅하여 세포 펠릿을 재현탁하십시오.
- 16–18시간 배양 후, 각 파운더 배양액의 광학 밀도(OD600)를 기록한다. 추정 세대 수를 계산한다(평균 연령 = log2(OD600End / OD600Start)).
- 각 배양액을 50 mL 원추형 튜브에 넣고 1,900 x g에서 2분 동안 원심분리한 후 상층액을 따라낸다. 세롤로지컬 25 mL 피펫으로 피펫팅하여 펠릿을 20 mL PBS (pH 7.4 + BSA (5 g/L))로 재현탁한다.
- 단계 2.2를 한 번 더 반복한다. Anti-Biotin MicroBeads 현탁액 바이알을 도립 혼합한다. 팁 끝을 자른 피펫을 사용하여 세포 현탁액에 Anti-Biotin MicroBeads 100 μL를 첨가한다.
- 도립 혼합한다. 4 °C에서 15분 동안 배양한다. 회전 랙에서 배양하거나 5분마다 최소 3–4회 튜브를 뒤집어준다(그림 1C).
- QuadroMACS 자석 스탠드, 컬럼 및 사전 분리 필터(30 µm)를 설치한다. 컬럼 아래에 통과하는 모든 폐액을 수집할 용기를 배치한다.
- 각 필터/컬럼을 3 mL의 PBS (pH 7.4 + BSA (5 g/L))로 프라이밍한다. 각 컬럼과 조건에 대해 두 개의 15 mL 원추형 튜브("노화 세포 용출액"용 하나, "젊은 세포 통과액"용 하나)에 라벨을 붙인다.
- 세포 현탁액을 1,900 x g에서 2분 동안 원심분리하고 상층액을 따라낸다. 펠릿을 20 mL PBS (pH 7.4 + BSA (5 g/L))로 재현탁하고 다시 원심분리한다.
참고: 이 단계는 컬럼을 포화시킬 수 있는 과잉의 유리 Anti-Biotin MicroBeads를 제거하는 데 중요합니다. - 세포 펠릿을 5 mL PBS (pH 7.4 + BSA (5 g/L))에 완전히 재현탁하여 첫 번째 분리 컬럼에 로딩한다(그림 1C). 추적을 위해 적용된 유전자형을 컬럼에 라벨링한다.
- 첫 번째 통과액을 "젊은 세포 통과액"으로 라벨링된 15 mL 원추형 튜브에 수집한다. 세포 현탁액이 컬럼을 모두 통과하면 15 mL 원추형 튜브를 폐액 수집 용기로 교체한다.
- 동일한 유전자형에서 얻은 두 개의 젊은 세포 통과액 현탁액을 하나의 15 mL 원추형 튜브에 합친다. 합쳐진 젊은 세포 통과액 250 μL를 새로운 15 mL 원추형 튜브에 담긴 9.75 mL PBS (pH 7.4 + BSA (5 g/L))로 희석한다. 이후 단계를 위해 "희석된 젊은 세포"라고 라벨을 붙여 따로 보관한다.
- 각 컬럼을 3 mL PBS (pH 7.4 + BSA (5 g/L))로 4회 세척한다. 첫 번째 세척 시, 3 mL의 PBS (pH 7.4 + BSA (5 g/L))를 세포 현탁액이 들어있던 50 mL 원추형 튜브에 다시 분주한다. 이를 해당 컬럼으로 옮겨 남아있는 세포를 모두 컬럼에 적용한다. 신선한 3 mL PBS (pH 7.4) + BSA (5 g/L)로 컬럼을 3회 더 세척한다.
- 두 번째 분리를 위해 새로운 컬럼과 사전 분리 필터(30 µm)를 설치한다. 각 필터/컬럼을 3 mL의 PBS (pH 7.4 + BSA (5 g/L))로 프라이밍한다.
- 첫 번째 컬럼을 자석에서 제거하여 두 번째 분리를 위해 두 번째 컬럼 위에 유지한다. 첫 번째 컬럼에 5 mL의 PBS (pH 7.4 + BSA (5 g/L))를 첨가하고, 제공된 플런저로 일정하게(부드럽지만 단단하게) 밀어 노화 세포를 용출시킨다.
- 용출된 노화 세포를 두 번째 컬럼에 적용한다. 추적을 위해 적용된 유전자형을 컬럼에 라벨링한다.
- 각 컬럼을 3 mL PBS (pH 7.4) + BSA (5 g/L)로 3회 세척한다. 컬럼을 자석에서 제거하여 노화 세포 용출액이라고 라벨링된 15 mL 원추형 튜브에 넣는다. 컬럼에 5 mL의 PBS (pH 7.4) + BSA (5 g/L)를 첨가하고, 제공된 플런저로 일정하게(부드럽지만 단단하게) 밀어 노화 세포를 용출시킨다.
- 노화 세포의 총 수율을 높이기 위해 동일한 유전자형의 두 독립적인 파운더 배양액에서 얻은 두 개의 용출액을 합친다(단계 1.5 참조).
3. 출아 흉터 및 비오틴의 형광 표지
참고: 형광 염료로 라벨링한 경우, 배양 기간 동안 세포를 빛으로부터 보호해야 합니다. 조건화된 생식세포 형성 유도 배지는 표준 생식세포 형성 유도 배지에서 생식세포 형성을 유도한 지 5 h 후에 생식세포 형성 유도 배양액을 필터 멸균하여 얻습니다. 조건화된 생식세포 형성 유도 배지는 파라필름으로 밀봉하여 4 °C에서 보관하십시오.
- 노화된 세포와 희석된 젊은 세포 혼합 현탁액을 1,900 x g에서 2분 동안 원심분리하고 상층액을 제거합니다. 세포를 12 mL PBS (pH 7)에 재현탁합니다.
- 단계 3.1을 두 번 반복하며, 두 번째에는 세포를 4 mL PBS (pH 7)에 재현탁합니다. 각 튜브에 형광 표지된 밀 배아 응집소(wheat germ agglutinin, 1 µg/mL) 4 μL와 형광 표지된 스트렙타비딘(streptavidin, 1 µg/mL) 4 μL를 첨가합니다(그림 1C).
- 상온의 암소에서 15분 동안 배양합니다. 5분마다 3~4회씩 뒤집어 섞어줍니다. 세포를 1,900 x g에서 2분 동안 원심분리한 후 상층액을 제거합니다.
- 12 mL의 배우자 형성 유도 배지에 재현탁합니다. 원심분리 및 재현탁 세척 과정을 세 번 반복합니다. 마지막 세척 후, ampicillin (100 µg/mL)이 포함된 2 mL의 조건화된 배우자 형성 유도 배지에 세포를 재현탁합니다.
4. 배우자 형성 유도 및 연령 분류 분석
주의: 포름알데히드는 독성이 있고 자극적이므로, 적절한 개인 보호 장구(PPE)를 착용한 상태에서 화학 흄 후드 내에서 취급하십시오.
- 재현탁된 세포 현탁액(단계 3.4 참고)의 밀도(OD600)를 측정한다. ampicillin (100 µg/mL)이 포함된 conditioned gametogenesis-inducing medium을 사용하여 배양액을 OD600 0.8로 희석한 후, 유리 플라스크로 옮긴다.
참고: 부피는 노화된 세포의 총 수율에 따라 달라지며, 후속 응용 단계에는 10 mL의 최종 배양 부피면 충분하다. - 희석된 pre-gametogenic 배양액 135 μl를 formaldehyde (37%) 15 μl가 들어 있는 1.5 mL 원심분리 튜브에 분주한다. 회전시키며 실온에서 15분 동안 배양한다. 4 °C에서 보관한다.
- 배양액을 30 °C에서 24시간 동안 흔들어(300 rpm) gametogenesis를 완료시킨다(그림 1C).
일시 정지 지점: formaldehyde로 고정된 세포의 이미징은 가장 편리한 시간에 언제든지 수행할 수 있다. 하지만 프로토콜의 나머지 단계를 진행하기 전에 노화된 세포의 분류 효율을 확인하는 것이 권장된다. 세포는 formaldehyde 고정 배지에서 4 °C로 최대 48시간 동안 보관할 수 있다. 장기 보관 시에는 formaldehyde 함유 용액을 sorbitol (1.2 M)로 교체하여 -20 °C에서 보관한다. - 이미징 전, formaldehyde로 고정된 세포를 1,900 x g에서 2분 동안 원심분리한다. 상층액을 피펫으로 제거하여 전용 formaldehyde 폐기물 용기에 버린다.
- sorbitol (1.2 M) 20 μL에 재현탁한다. 세포 현탁액 3.3 μL를 표준 슬라이드에 추가하고 22 x 22 mm 커버슬립을 덮는다.
- bud scar의 수, biotin 라벨 및 Pma2-GFP를 평가하기 위해 DAPI, mCherry, FITC 및 differential interference contrast (DIC) 채널에서 세포의 전체 부피를 포함하는 z-stack을 획득한다(그림 1C 및 그림 4A; 각각 magenta, yellow, cyan으로 표시됨).
- 조건당 최소 50개의 세포를 계속해서 획득한다.
5. 비오틴 표지 효율 및 출아 흉터 수를 평가하기 위한 이미지 분석
중단 지점: 연령 분리 확인을 위한 이미지 분석은 가장 편리한 시점에 수행할 수 있습니다. 하지만 프로토콜의 나머지 단계를 진행하기 전에 분리 효율을 확인하는 것이 권장됩니다.
참고: 이미지는 사용자 정의 반자동 Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21 매크로를 사용하여 정량화되었습니다. 매크로 입력에 관한 구체적인 사항은 각 매크로의 헤더에 기재되어 있으며, 개별 입력 데이터에 맞게 조정해야 합니다.
- Fiji/ImageJ를 실행하십시오. 매크로 파일을 드래그 앤 드롭하십시오. 수동 관심 영역(ROI) 선택 및 TIFF 내보내기 (보충 파일 1)를 Fiji/ImageJ로 가져와 엽니다.
- 클릭 실행 매크로 창에서 안내에 따라 입력 및 출력 폴더를 선택하고 클릭하십시오. 알겠습니다..
- 관심 세포 주변에 직사각형을 그리고, 수동으로 또는 단축키를 사용하여 각 직사각형을 관심 영역(ROI) 관리자에 추가하십시오. t직사각형 안에 세포 전체가 포함되게 하고, 각 변에 세포 지름의 약 1배 정도의 여백을 둡니다.
- 첫 번째 이미지에서 모든 관심 영역(ROI)을 ROI 관리자에 추가한 후, 클릭하십시오. 준비되었습니다. 번역할 텍스트를 제공해 주십시오. 프롬프트 창에서: 조치 필요 (모든 관심 영역(ROI)이 선택되어 ROI 관리자(t)에 저장되었습니까?) (보충 그림 1). 선택한 모든 관심 영역(ROI)은 자동으로 잘려 저장됩니다. 입력 폴더의 다음 이미지가 자동으로 열립니다.
- 입력 폴더 내의 모든 이미지에 대해 5.3~5.4단계를 반복하십시오. 매크로는 입력 폴더의 모든 이미지를 순회하면 중단됩니다. 매크로를 드래그 앤 드롭하십시오. 단일 세포 3D 및 Z 투영 (보충 파일 2)를 Fiji/ImageJ로 가져와 엽니다.
- 슬라이스 간격을 조정하십시오. 3D 프로젝트… 필요한 경우 명령어를 입력하십시오. 클릭하십시오. 실행 매크로 창에서 안내에 따라 입력 및 출력 폴더를 선택하고 클릭하십시오. 알겠습니다..
참고: 매크로는 자동으로 실행되며, 사용자의 입력이 필요하지 않습니다. 매크로는 폴더 내의 모든 이미지를 순회하면 자동으로 중지됩니다. - ~라고 불리는 모든 이미지를 이동하십시오 Y_투영… 계수를 위해 새로운 입력 폴더로 이동시키십시오. 매크로를 드래그 앤 드롭하십시오. 수동 Budscar 및 Biotin 어노테이션 (보충 파일 3)를 Fiji/ImageJ로 가져와서 엽니다.
- 클릭 실행 매크로 창에서 안내에 따라 입력 및 출력 폴더를 선택하고 클릭하십시오. 준비되었습니다. 번역할 텍스트를 제공해 주십시오.세포를 3D로 회전시켜 싹 흉터(bud scar)의 수를 세십시오.
참고: 각 DAPI 및 mCherry 양성 환상 구조는 서로 겹쳐져 동일한 출아 흉터 사건을 나타내지 않는 한 하나의 출아 흉터로 계산한다. 세포 생성 시점부터 각 세포에 나타나는 크고 채워진 원형의 biotin 양성(mCherry) 표지는 전체 출아 흉터 수에 포함하지 않는다.그림 4A). - 클릭 준비되었습니다. 번역할 텍스트를 제공해 주십시오. 프롬프트 창에서: 조치 필요 (눈 흉터의 수?). 프롬프트 창에서 계산된 눈 흉터의 수를 선택한 다음, 클릭하십시오. 알겠습니다. (보충 그림 2).
- mCherry 신호를 확인하여 세포의 비오틴 표지 여부를 결정하십시오. 비오틴 표지 중에 세포가 존재했다면, 세포 전체가 mCherry 양성으로 나타납니다.그림 4A).
- 클릭 알겠습니다. 프롬프트 창에서: 조치 필요 (비오틴 표지: 아니요 = 0/ 예 = 1?). 세포에 비오틴 표지가 없으면 0을 선택하고, 비오틴 표지가 있으면 1을 선택하십시오. 기타(Other) 프롬프트 창에서 클릭하십시오. 알겠습니다. (보충 그림 3).
- 결과는 로그 창에 자동으로 기록되며 출력 폴더에 .txt 파일로 저장됩니다. 계수하는 동안 로그 창을 닫지 마십시오.
- 다음 이미지가 자동으로 열립니다. 입력 폴더의 모든 이미지에 대해 5.9~5.13단계를 반복하십시오. 입력 폴더의 모든 이미지가 순환되면 매크로가 중지됩니다.
6. 배우자 형성 효율 평가 및 4분포자(tetrad) 연령 분석
참고: 노화된 세포의 배우자 형성 특이적 고갈을 배제하기 위해 사분포자(tetrad)의 연령 분리를 다시 검증하는 것이 중요합니다. 단계 5(비오틴 표지 효율 및 출아 흔적 수를 평가하기 위한 이미지 분석)에서 설명한 배우자 형성 전 세포와 동일한 분석 파이프라인을 사용하되, 배우자 형성 후 조건에서는 사분포자만 크롭하여 분석에 사용한다는 점이 다릅니다. 이는 사분포자 내의 배우자만이 Zymolyase 처리 후 생존하여 배우자 집단에 기여하기 때문입니다. 이미지는 맞춤형 반자동 Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21 매크로를 사용하여 정량화합니다. 매크로 입력에 관한 구체적인 주의 사항은 각 매크로의 헤더에 기재되어 있으며, 개별 입력 데이터에 맞게 조정해야 합니다.
일시 정지 지점: 포자 분리 설정을 마친 후, 초기 배양액의 일부(100 μl)를 원심분리 튜브에 따로 보관하여 포자 형성 효율을 측정할 수 있습니다.
- 광학 현미경을 사용하여 각 배양액에서 300개의 세포에 대해 monad, dyad 및 tetrad의 수를 결정하여 포자 형성 효율을 측정한다.
- 배우자 형성 유도 배지에서 24시간 배양 후, 희석된 배우자 형성 후 배양액(단계 4.3 참고) 135 μL를 formaldehyde (37%) 15 μL가 들어 있는 튜브에 분주한다.
- 실온에서 15분 동안 회전시키며 배양한다. 4 °C에서 보관한다.
일시 중단 지점: 배우자 형성 전 세포에 대해 연령 분류가 평가된 경우, formaldehyde로 고정된 tetrad의 이미징은 가장 편리한 시간에 수행할 수 있다. 세포는 4 °C의 formaldehyde 고정 배지에서 최대 48시간 동안 보관할 수 있다. 장기 보관을 위해서는 formaldehyde 함유 용액을 sorbitol (1.2 M)로 교체하여 -20 °C에서 보관한다. - 이미징 전에 formaldehyde로 고정된 세포를 1,900 x g에서 2분 동안 원심 분리한다. 상층액을 전용 formaldehyde 폐기물 용기에 피펫으로 옮긴다.
- sorbitol (1.2 M) 20 μL에 다시 현탁한다. 세포 현탁액 3.3 μL를 표준 슬라이드에 가하고 22 x 22 mm 커버슬립을 덮는다.
- bud scar의 수, biotin 표지 및 PMA2-GFP를 평가하기 위해 DAPI, mCherry, FITC 및 DIC 채널에서 세포의 전체 부피를 포함하는 z-stack을 획득한다(그림 1D 및 그림 4A; 각각 magenta, yellow, cyan으로 표시됨).
- 조건당 최소 50개의 tetrad에 대해 획득을 계속한다.
일시 중단 지점: 배우자 형성 전 세포에 대해 연령 분류가 평가된 경우, tetrad의 biotin 표지 효율 및 bud scar 수 분석은 가장 편리한 시간에 수행할 수 있다. - 단계 5에 기술된 대로 배우자 형성 후 tetrad의 biotin 표지 효율과 bud scar 수를 분석한다.
7. 4분포자를 단일 배우자로 분리하기
참고: Zymolyase 처리 후 세포는 매우 끈적거리므로, 세포 펠릿을 재현탁할 때 흡입되거나 손실되지 않도록 주의하십시오. 원치 않는 잔해물이나 침전물을 제거하기 위해 실험 당일에 YPD (2% dextrose) + ampicillin (100 µg/mL)을 새로 조제하여 여과 멸균하십시오.
주의: β-mercaptoethanol은 독성이 있고 휘발성입니다. 적절한 개인 보호 장비(PPE)를 착용하고 흄 후드 내에서 취급하십시오.
- 생식세포 형성 유도 배지에서 24시간 배양 후, 배양액(단계 4.3)을 15 mL 원심분리관(conical tube)으로 옮깁니다. 1,900 x g에서 2분간 원심분리하고 상층액을 제거합니다.
- 900 μl의 멸균 탈이온 H2O로 재현탁하여 1.5 mL 저흡착 튜브로 옮깁니다. Zymolyase (1 mg/mL) 100 μL를 첨가합니다.
- 흄 후드 내에서 β-mercaptoethanol 2 μL를 첨가합니다. 튜브를 파라필름으로 밀봉하여 회전 랙에 옮긴 후, 30 °C에서 3시간 동안 배양합니다(그림 1D).
- 3시간 배양 후, 현탁액을 15 mL 원심분리관으로 옮깁니다. 세포의 점성이 매우 강하므로 피펫팅 시 주의하십시오. 샘플을 1,900 x g에서 2분간 원심분리합니다. 점성이 있는 펠렛이 섞이지 않도록 주의하여 상층액을 완전히 피펫으로 제거한 다음, 1 mL의 멸균 탈이온 H2O로 재현탁합니다.
- 단계 7.4를 1회 더 반복합니다. 핸드 소니케이터를 사용하여 샘플을 초음파 처리합니다(그림 1D). 1 pulse/second, 50% duty cycle 조건으로 20초 동안 초음파 처리를 수행합니다. 각 초음파 처리 주기 사이에 샘플을 1분간 얼음에 둡니다.
- 샘플 간에 소니케이터를 70% 에탄올로 세척합니다. 단계 7.5에 설명된 초음파 처리 과정을 5회 더 반복하여 총 6회의 초음파 처리 주기를 완료합니다.
- 광학 현미경을 사용하여 4분포자(tetrad) 분리 여부를 확인합니다(그림 3B). 각 샘플에 YPD (2% dextrose) + ampicillin (100 µg/mL)(실험 당일 여과 멸균됨) 1 mL를 첨가합니다.
- YPD (2% dextrose) + ampicillin (100 µg/mL)을 사용하여 OD600 = 0.8이 되도록 다시 희석합니다. 부피는 분리된 세포의 총 수율에 따라 달라집니다.
참고: 15 mL 원심분리관을 사용하는 경우 최대 부피는 12 mL입니다. - 분리 전 필터를 통해 배양액을 새 15 mL 원심분리관으로 여과합니다. 회전 랙으로 옮겨 30 °C에서 3시간 동안 배양한 후 미세유체 장치에 로딩합니다(그림 1D).
8. 미세유체 장치 준비
참고: 이 섹션에서는 환경 제어 챔버가 장착된 도립 형광 현미경을 사용하여 제조업체의 권장 사항에 따라 미세유체 장치(그림 2A–C)를 설정하는 방법을 설명합니다. 오염 유입 위험을 줄이기 위해 설정 과정 전반에 걸쳐 작업 영역, 가위, 튜빙 및 장갑을 70% Ethanol로 멸균하십시오. 실험 중 세포 응집 및 막힘 위험을 줄이기 위해 배양 배지에 Pluronic F-127을 첨가합니다. 실험 전날 YPD(2% dextrose) 배지 500 mL에 Pluronic F-127 분말 5 g(10 g/L)을 녹이고 ampicillin(100 µg/mL)을 추가한 후, 사용 1–2시간 전에 필터 멸균하십시오. 미세유체 장치 설정 시 배지 시린지와 튜빙 내에 기포가 남아 있지 않도록 주의하십시오.
- Pluronic F-127 분말 5 g(10 g/L)을 YPD(2% dextrose) 500 mL에 녹입니다. 실험 하루 전에 준비하여 밤새 용해시킵니다. 실험 당일에 ampicillin(을/를) 첨가합니다.100 µg/mL) YPD (2% 덱스트로스), Pluronic F-127 (10 g/L)로.
- YPD(2% 덱스트로스) + 암피실린(100 µg/mL) + Pluronic F-127 (10 g/L). 여과 과정에서 발생한 기포를 제거하기 위해, 배지 펌프에 로딩하기 전 1~2시간 동안 그대로 둡니다.
- 커버 글라스의 균열과 같은 손상이 있는지 미세유체 장치를 검사하십시오. 세포 로딩 유입구 포트를 고체 스테인리스강 핀으로 막으십시오.그림 2A,D,E).
주의: 스테인리스강 솔리드 핀을 세포 로딩 포트에 너무 깊게 삽입하지 않도록 주의하십시오. 핀을 너무 깊게 삽입할 경우 세포 로딩 과정에서 제거가 어려울 수 있습니다. - 배지 배출구 포트와 폐액 수집 용기를 연결할 수 있도록 배지 배출구용 튜브를 필요한 길이로 절단하며, 이때 이미징 중 스테이지 이동을 고려하여 여유 길이를 둡니다.그림 2A,G).
- 중공 스테인리스 스틸 핀을 배지 배출 튜브에 연결하십시오. 중공 스테인리스 스틸 핀과 튜브를 배지 배출 포트에 꽂으십시오.그림 2D–F현미경 대물렌즈와 미세유체 장치의 커버글라스에 오일을 도포하십시오.
- 미세유체 장치를 현미경에 장착합니다 (그림 2G). 이미징 장치의 초점 평면을 찾고 폴리디메틸실록산(PDMS) U-트랩 구조의 무결성을 검사합니다(그림 2C).
- 배지 배출구 포트에서 폐기물 용기로 튜브를 직접 연결하십시오 (그림 2G). 배지 배출 튜브를 현미경 스테이지에 테이프로 고정합니다 (그림 2G, 녹색 테이프).
- 배출구 튜브가 폐기물 용기 바닥보다 충분히 높게 위치하도록 하여, 실험 중 축적되는 폐배지가 튜브를 잠기게 함으로써 배압이 발생하는 것을 방지하십시오.
- 필요한 경우 배지 배출 튜빙의 길이를 줄이십시오. 배지 유입 포트와 마이크로펌프에 장착된 배지 시린지를 연결할 수 있도록 배지 유입 튜빙을 적절한 길이로 자릅니다. 이때 이미징 중 스테이지 이동을 고려하여 튜빙에 여유분을 두십시오.
- 중공 스테인리스강 핀을 배지 유입 튜브에 연결하십시오. 20 mL 주사기 패키지를 개봉하고 공기를 완전히 배출하십시오.
- YPD(2% 덱스트로스) + 암피실린(100 µg/mL) + Pluronic F-127 (10 g/L)을 20 mL 주사기에 넣습니다. 배지 주사기 헤드에 주사기 어댑터를 연결합니다.
- 시린지 어댑터가 단단히 조여졌는지 확인하십시오. 배지 유입 튜브를 배지 시린지 어댑터에 연결하십시오. 배지 유입 튜브의 반대쪽 끝을 폐기물 수집 용기에 테이프로 고정하여, 중공 스테인리스 스틸 핀이 용기를 향하게 하십시오.
- 배지 시린지 내에 남아 있는 기포를 주의 깊게 제거하십시오. 배지 시린지를 수직으로 세워 기포가 시린지 헤드 쪽으로 올라오게 합니다. 압력을 가하여 기포와 배지를 튜브를 통해 폐기물 용기로 배출하십시오.
- 주사기를 수직으로 세운 상태에서 테이블 쪽에 가볍게 두드려 남아 있는 기포를 제거한 다음, 모든 기포가 배출될 때까지 다시 압력을 가하십시오. 튜브와 주사기에 남아 있는 기포가 있는지 주의 깊게 확인하십시오.
- 배지 시린지를 마이크로펌프에 장착하십시오. 슬롯이 여러 개인 마이크로펌프를 사용하는 경우, 추가 시린지마다 8.10~8.14단계에서 설명한 시린지 준비 과정을 반복하고, 모든 원하는 슬롯이 채워질 때까지 준비된 각 시린지를 마이크로펌프에 장착하십시오. 마이크로펌프 플런저가 시린지 플런저와 맞물려 모든 시린지의 튜빙을 통해 배지가 배출되기 시작할 때까지 플런저를 앞으로 이동시키십시오.
- 튜브 및 배지 시린지와 연결된 중공 스테인리스강 핀을 장착된 미세유체 소자의 배지 유입구 포트에 삽입하십시오.그림 2A,H,I).
- 다음 유량으로 펌프를 작동시키십시오. 2.4 µL/min 마이크로펌프에 장착된 모든 주사기를 미세유체 장치에 연결한 후, 배지 유입구 포트에 연결된 튜브를 현미경 스테이지에 테이프로 고정합니다.그림 2I, 배경의 녹색 테이프).
- 이미징 중 스테이지가 이동할 수 있도록 튜브 라인에 여유를 둡니다. 환경 챔버의 전원을 켜고 다음과 같이 설정하십시오. 30 °C세포를 로딩하기 전, 이미징 유닛에 배지를 채우기 위해 배지 펌프를 최소 2시간 동안 작동시키십시오.
- 단일 이미징 유닛 전반의 초점 평면 차이를 테스트하기 위해 배지가 약 1시간 동안 흐른 후 ROI의 테스트 이미지를 촬영하십시오.
- 현미경 및 배율에 따라, 각 챔버당 2 x 27개의 이미지와 위치별 3개의 z-슬라이스를 3-8 µm 단일 이미징 유닛 내의 초점 평면 차이를 보정하기 위한 간격 조정.
- 압력을 낮추어 세포 로딩을 용이하게 하기 위해, 세포 로딩 1시간 전에 펌프 작동을 중단하십시오.
9. 미세유체 장치 내 생식세포 주입
참고: 배우자의 조기 세포 분열을 방지하기 위해 모든 조건의 세포 로딩은 1 h 이내에 완료해야 합니다. 이를 준수하지 않을 경우, 새로 생성된 딸세포에 의해 배우체가 희석되어 전체 복제 수명에 대한 부정확한 평가로 이어질 수 있습니다. 각 조건 및 유전자형에 대해, 분석을 위한 두 개의 기술적 반복 시료를 획득하기 위해 두 개의 이미징 유닛에 로딩합니다.
- 세포 로딩을 위한 튜브를 세포 로딩 입구와 시린지를 연결하는 데 필요한 길이로 자릅니다. 중공 스테인리스 스틸 핀을 세포 로딩 튜브에 연결합니다. 5 mL 시린지 헤드에 시린지 어댑터를 연결합니다.
- 세포 로딩 튜브를 5 mL 시린지의 시린지 어댑터에 연결합니다. 3시간의 재성장(단계 7.9) 후, 대부분의 배우자가 성장을 시작했는지 확인합니다. 광학 현미경을 사용하여 비대해진 배우자와 돋아나는 출아를 확인합니다.
- 로딩할 첫 번째 조건의 시료 2 mL를 2 mL 원심분리 튜브에 분주합니다. 각 조건에 대해 단계 9.3-9.15를 순차적으로 수행합니다. 특정 조건의 세포가 로딩될 두 개의 이미징 유닛에서 고체 스테인리스 스틸 핀을 제거하여 압력을 해제합니다.
- 시린지로 흡입하기 직전에 핸드 소니케이터로 분주된 세포를 초음파 처리합니다(1초당 1회 펄스로 5회, 듀티 사이클 50%). 초음파 처리된 세포 현탁액을 사전 분리 필터(30 µm)를 통해 새 2 mL 원심분리 튜브에 통과시킵니다.
- 준비된 5 mL 시린지에 중공 스테인리스 스틸 핀과 연결된 튜브를 통해 세포 현탁액을 로딩합니다. 세포 현탁액이 들어 있는 시린지에서 공기를 배출하여 시린지와 튜브에 공기가 남아 있지 않도록 합니다.
- 중공 스테인리스 스틸 핀 끝에 액체 방울이 작게 맺힐 때까지 시린지 플런저를 밉니다. 중공 스테인리스 스틸 핀을 미세유체 장치의 세포 로딩 입구에 삽입합니다.
- 스테인리스 스틸 핀의 액체 방울을 세포 로딩 입구에 직접 연결하여 공기가 유입되지 않도록 합니다. 말려 있는 보풀 없는 실험실용 와이퍼를 사용하여 미세유체 장치의 과잉 액체를 닦아냅니다.
- 현미경의 라이브 뷰로 이미징 유닛을 직접 관찰하면서 시린지 플런저에 조심스럽게 압력을 가해 세포를 수동으로 로딩합니다. PDMS U-trap 구조가 약간 휘어지기 시작할 때까지 플런저에 압력을 가합니다.
- 압력을 지속적으로 유지하며 세포가 이미징 영역으로 흐르기 시작할 때까지 기다립니다. 과도한 압력을 가하면 과로딩이 발생하거나 PDMS 구조가 커버 글라스에서 떨어져 이미징 유닛을 사용할 수 없게 될 수 있으므로 주의하십시오.
- 세포가 트랩에 로딩되기 시작하면 압력을 해제하고 이미징 유닛 전체의 로딩 효율을 모니터링합니다. 충분한 세포가 트랩될 때까지 로딩 사이클을 반복하기 위해 압력을 다시 가합니다.
- 점유된 트랩이 200개 미만인 경우 로딩 사이클을 반복합니다. 최적으로 로딩된 유닛은 트랩의 2/3가 세포로 점유되어, 충분한 로딩과 과로딩 위험(실험 중 막힘 위험 증가) 사이의 균형을 이룹니다.
- 서로 다른 이미징 유닛에 공유 펌프를 사용하는데 한 이미징 유닛이 과로딩된 경우, 막힘으로 인해 펌프가 멈추는 것을 방지하고 추가 실험 조건의 손실을 피하기 위해 해당 유닛의 튜브를 배지 펌프에서 분리합니다(Figure 2J).
- 충분한 세포가 로딩되면 세포 로딩 입구에서 중공 스테인리스 스틸 핀을 제거합니다. 고체 스테인리스 스틸 핀을 세포 로딩 입구 포트에 천천히 조심스럽게 다시 꽂습니다.
- 고체 스테인리스 스틸 핀을 로딩 포트에 너무 깊게 또는 너무 빠르게 삽입하지 마십시오. 이는 이미징 유닛의 압력을 급격히 상승시켜 트랩된 세포를 손실시킬 수 있습니다. 단계 9.6부터 다시 시작하여 동일한 조건의 두 번째 채널을 로딩합니다.
- 다음에 로딩할 이미징 유닛에서 고체 스테인리스 스틸 핀을 제거한 다음, 단계 9.3부터 다시 시작하여 다음 조건을 로딩합니다. 모든 조건이 로딩될 때까지 반복합니다.
- 현미경의 라이브 뷰를 사용하여 로딩된 모든 이미징 유닛을 검사하여 충분하고 안정적으로 로딩되었는지 확인하고 과로딩되지 않았는지 확인합니다. 마이크로펌프에 연결된 모든 이미징 유닛이 로딩되고 적절한 세포 로딩이 확인되면, 2.4 µL/min의 일정 유속으로 마이크로펌프를 작동시킵니다.
- 배지 흐름이 재개되면 다시 꽂은 로딩 포트에서 누출이 있는지 미세유체 장치를 주의 깊게 검사합니다. 누출이 관찰되면 고체 스테인리스 스틸 핀을 뺐다가 조심스럽게 다시 꽂습니다.
- 누출을 멈출 수 없는 경우, 20 mL 배지 시린지 어댑터에서 튜브를 제거하여 해당 이미징 유닛을 배지 펌프에서 분리합니다(Figure 2J). 이미징 유닛이 과로딩된 경우, 20 mL 배지 시린지 헤드의 시린지 어댑터에서 튜브를 분리하여 이미징 유닛을 배지 펌프에서 분리합니다.
10. 이미지 획득
참고: 펌프가 작동하고 품질 관리가 완료되면, t0 시점에서 각 챔버의 전체 시야(세포가 포획된 영역)를 FITC 및 명시야 채널로 이미징하여 배우자를 식별합니다(그림 1E 및 그림 3D,E). 이미징 조건은 특정 시스템과 실험적 필요에 따라 달라지며 그에 맞게 조정할 수 있습니다. 예를 들어, 단일 유닛 내의 가변적인 초점 평면 차이를 보정하기 위해 40x 대물렌즈를 사용하여 위치당 2 x 27개의 이미지와 3–8 µm 간격의 3개 z-slice를 FITC 및 명시야 채널에서 획득합니다. t0 획득 후, 배우자의 전체 복제 수명을 포괄하기 위해 동일한 시야에 대해 15–20분 간격으로 72시간 동안 타임랩스 이미징을 수행합니다(그림 3D,E). FITC 채널의 반복적인 이미징으로 인한 누적 광독성을 방지하기 위해 타임랩스 이미징은 DIC 채널에서만 수행합니다.
- 마이크로펌프가 작동하면, 로드된 모든 이미징 유닛의 모든 ROI와 초점 평면을 다시 확인합니다. 모든 ROI에 대해 FITC 및 DIC 채널에서 첫 번째 시점(t0) 영상을 획득하여 배우자(GFP 양성)를 식별합니다(그림 1D 및 그림 3C).
- t0 획득 후, DIC 채널에서만 영상을 획득하며 15–20분 간격으로 총 72시간 동안 타임랩스 이미징을 시작합니다(그림 1E 및 그림 3D,E). 실험 도중 장치에 자연 누수가 발생하는지 간헐적으로 모니터링합니다. 누수가 관찰되면, 대규모 펌프 고장이나 현미경 내부로의 배지 유출을 방지하기 위해 해당 시린지를 분리하십시오.
- 타임랩스가 완료되면 데이터를 전송하고 정리 작업을 진행합니다.
11. 정리
- 타임랩스 획득이 완료된 후, 세척 30분 전에 펌프를 정지시킵니다. 마이크로펌프에서 배지 시린지를 제거하고 펌프 전원을 끕니다. 튜브와 배지 시린지에 연결된 중공 스테인리스 스틸 핀을 분리합니다.
- 현미경에서 마이크로유체 장치를 제거하고 모든 스테인리스 스틸 핀을 분리합니다. 현미경 대물렌즈에 묻은 오일을 닦아냅니다.
- 마이크로유체 장치와 스테인리스 스틸 핀을 전용 폐기물 용기에 버립니다. 데이터를 전송하고 현미경 전원을 끕니다.
12. 생식세포의 복제 수명 분석
참고: 타임랩스 실험 완료 후 배우자의 복제 수명을 정량화하기 위해, 이미지를 처리하고 배우자의 복제 수명을 측정합니다(그림 1F). 처리 과정은 현미경 설정 및 필요 사항에 따라 달라집니다. 간단히 설명하면, 각 조건(동일한 이미징 장치)에서 얻은 명시야 타임랩스 이미지를 서로 연결하여 하이퍼스택(hyper-stack)을 형성합니다. 필요한 경우, 명시야 타임랩스 하이퍼스택과 t0 FITC 이미지를 크롭하고 크기를 조정하여 특정 지점의 X-Y 좌표가 이미지 전반에 걸쳐 동일하게 유지되도록 합니다. 이미지는 사용자 정의 반자동 Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21 매크로를 사용하여 정량화합니다. 매크로 입력에 관한 구체적인 사항은 각 매크로의 헤더에 기재되어 있으며, 개별 입력 데이터에 맞게 조정해야 합니다. 복제 수명은 각 유전자형과 조건에 대해 기술적 반복(technical replicate)당 200개의 세포를 대상으로 측정합니다. 두 번의 기술적 반복에서 얻은 측정값을 합산하여 신뢰성 있는 복제 수명 측정값을 얻습니다. 이 실험을 반복하여 개별 생물학적 반복(biological replica)을 확보합니다.
일시 정지 지점: 배우자의 복제 수명을 평가하기 위한 이미지 분석은 프로토콜의 실험 부분이 완료된 후 편리한 시점에 언제든지 수행할 수 있습니다.
- 열기0 특정 미세유체 유닛의 FITC 이미지입니다. 안내에 따라 입력 및 출력 폴더를 선택한 후 클릭하십시오. 준비되었습니다. 번역할 원문을 제공해 주시기 바랍니다..
- 미세유체 트랩에 로딩된 FITC 양성 배우자 주위에 사각형을 그리고, 해당 사각형을 ROI 매니저에 추가하십시오 (단축키 제공된 텍스트가 없습니다. 번역할 내용을 입력해 주세요.). 세포 주위를 너무 좁게 자르지 마십시오. 각 측면에 트랩 너비의 약 1배 정도의 여백을 남겨 두십시오. (그림 1D, 그림 3C, 그리고 부록 그림 4).
- 모든 FITC 양성 생식세포가 ROI 관리자에 추가될 때까지 계속하십시오.부속 그림 5)ROI 관리자로 이동하여 모든 점을 선택하십시오. 다음을 클릭하십시오. 더 보기 및 저장.
- ROI 목록을 출력 폴더에 저장하십시오. 매크로를 드래그 앤 드롭하십시오. 수동 ROI 크롭 및 TIFF 내보내기 - 이미지 열기 (보충 파일 4)를 FIJI/ImageJ로 불러와 엽니다.
- 목록에서 마지막 ROI를 선택하고 클릭하십시오. 실행 매크로 창에서: 수동 ROI 크롭 및 TIFF 내보내기 - 이미지 열기 (보충 파일 4). 프롬프트에 따라 출력 폴더를 선택하여 매크로를 시작하십시오.
- 매크로가 선택된 모든 ROI를 복제하여 지정된 출력 폴더에 저장하기 시작합니다. 모든 ROI의 복제 및 저장이 완료되면 매크로가 종료됩니다.
- 닫기0 FITC 이미지. 동일한 미세유체 장치에 대한 명시야 타임랩스 하이퍼 스택(hyper stack)을 엽니다. 아직 열리지 않았다면, 매크로를 드래그 앤 드롭하십시오. 수동 ROI 크롭 및 TIFF 내보내기 - 이미지 열기 (보충 파일 4)를 Fiji/ImageJ로 불러와 엽니다.
- 아직 열려 있지 않다면, 저장된 ROI 목록을 t에서 드래그 앤 드롭하여 가져오십시오.0 FITC 이미지를 Fiji/ImageJ로 불러옵니다. 목록에서 마지막 ROI를 선택하고 클릭하십시오. 실행 거시적 관점에서: 수동 ROI 크롭 및 TIFF 내보내기 - 이미지 열기 (보충 파일 4).
- 매크로를 시작하기 위한 안내 메시지에 따라 출력 폴더를 선택하고 클릭하십시오. 준비되었습니다. 번역할 소스 텍스트를 제공해 주시기 바랍니다.매크로가 선택한 모든 ROI를 복제하여 지정된 출력 폴더에 저장하기 시작합니다.
- 매크로는 선택한 모든 ROI를 복제하고 저장하면 정지됩니다. 명시야 타임랩스 하이퍼 스택(hyper stack)을 닫으십시오.
- 매크로를 드래그 앤 드롭 하십시오. 수동 GFP, RLS 및 최종 표현형 주석 달기 (보충 파일 5)를 Fiji/ImageJ로 가져와 엽니다. 클릭하십시오. 실행 매크로 창에서.
- 안내에 따라 입력 및 출력 폴더를 선택한 후, 클릭하십시오. 번역할 텍스트를 제공해 주세요. 전문적인 학술적 톤과 정확한 과학 용어를 사용하여 한국어로 번역해 드리겠습니다.검사하십시오.0 생식 세포(GFP 양성 세포)가 로딩되었는지 확인하기 위해 FITC를 사용합니다. 다음을 비교하십시오.0 FITC 이미지 및 t0 동일한 세포가 여전히 t에 로드되어 있는지 확인하기 위한 명시야 타임랩스(brightfield time-lapse)0 명시야 타임랩스 (그림 3C).
- 클릭 번역할 소스 텍스트를 제공해 주십시오. 전문적인 학술적 톤과 정확한 과학 용어를 사용하여 한국어로 번역하겠습니다. 프롬프트 창에서: 조치 필요 (GFP 세포 포획 여부?) (부수 그림 6). 만약 t가0 FITC 세포는 GFP 양성이 아닙니다, 선택하십시오 0 프롬프트 창에
- t0 명시야 타임랩스(brightfield time-lapse)에 로드된 세포가 t0 FITC 이미지에 로드된 세포와 동일하지 않은 경우, 선택하십시오. 0 프롬프트 창에. 만약 t가0 FITC 세포는 GFP 양성이며, t0 명시야 타임랩스에 로드된 세포는 t에 로드된 세포와 동일한 세포입니다.0 FITC 이미지 선택 1 프롬프트 창에서 (부록 그림 7). 클릭하십시오. 알겠습니다. 번역할 소스 텍스트를 제공해 주시기 바랍니다. GFP 세포 결정이 내려지면 프롬프트 창에 입력하십시오.
- 부하된 배우자가 종말 표현형(분열 중단)에 도달하거나 트랩에서 배출(ROI에서 소실)되기 전까지 생성되는 딸세포의 수를 측정하여 복제 수명을 산출하십시오.
- 복제 수명이 측정되면, 클릭하십시오. 제공된 텍스트가 없습니다. 번역할 소스 텍스트를 입력해 주세요. 프롬프트 창에서: 필요 조치 (세포의 RLS?)부록 그림 8)프롬프트 창에서 관찰된 분열 횟수(RLS)를 선택하십시오.그림 3D,E; 부록 그림 9).
- RLS가 보고되면, 클릭하십시오. 번역할 내용을 입력해 주십시오. 전문적인 학술적 톤과 정확한 과학 기술 용어를 사용하여 한국어로 충실하게 번역해 드리겠습니다. 프롬프트 창에서 확인하십시오. 세포가 분열을 멈추기 전에 최종 표현형에 도달했는지 또는 트랩에서 배출되었는지를 판정하십시오.
- 클릭 알겠습니다. 번역할 소스 텍스트를 제공해 주시기 바랍니다. 프롬프트 창에서: 조치 필요 (말단?) (보충 그림 10)프롬프트 창에서 다음을 선택하십시오. 0 최종 표현형이 관찰되기 전, 세포가 여전히 분열 중인 상태에서 배출되는 경우.
- 프롬프트 창에서 선택하십시오 1 최종 표현형이 관찰되었다면 (부록 그림 11)프롬프트 창에서 “를 선택하십시오.?” 불분명한 경우.
- 종말 분화 결정이 내려지면 프롬프트 창에서 확인(OK)을 클릭하십시오. 클릭 번역할 소스 텍스트를 제공해 주십시오. 전문적인 학술적 톤과 정확한 과학 용어를 사용하여 한국어로 번역해 드리겠습니다. 프롬프트 창에서: 조치 필요 (이유?) (보충 그림 12).
- 세포가 최종 표현형에 도달하기 전에 배출된 경우, 배출 세포 운명을 다음과 같이 선택하십시오: “ejected(배출됨)” = 세포가 여전히 분열하는 동안 배출됨. 세포가 최종 표현형에 도달한 경우, 다음의 최종 세포 운명을 선택하십시오: (a) ejected/done(배출됨/완료) = 세포가 최종 형태를 획득했으나 마지막 분열 후 3시간 이내에 배출됨; (b) enlarged(확대됨) = 세포가 확대되고 분열을 중단함; (c) failed division and enlarged(분열 실패 및 확대됨) = 세포가 마지막 분열 중 분리가 되지 않았으며 분열을 중단함; (d) shriveled up(위축됨) = 세포가 더 이상 분열하지 않으며 수축되고 위축된 형태를 보임부수 그림 13); (e) 기타 = 위의 설명에 해당하지 않는 모든 다른 분류.
- 클릭 알겠습니다. 번역할 원문 텍스트를 제공해 주시기 바랍니다. 터미널 세포 운명 결정이 내려지면 프롬프트 창에 입력하십시오. 모든 프롬프트의 결과는 로그 창에 자동으로 기록되며 출력 폴더에 .txt 파일로 저장됩니다.
- 카운팅하는 동안 로그(Log) 창을 닫지 마십시오. 입력 폴더의 다음 이미지가 자동으로 열립니다. 스크립트가 입력 폴더의 모든 이미지를 순환할 때까지 12.12~12.22단계를 반복하십시오.
결과
복제 연령 분리 및 배우자 형성 효율 평가
서로 다른 연령의 전구 세포에서 유래한 배우자의 복제 수명을 비교하기 위해서는, 세포 집단의 충분한 연령 분리 및 순도가 확보되어야 합니다. 획득한 노화 세포 집단의 순도를 90–100%로 높이기 위해, 1차 분리에서 얻은 노화 세포 용출액을 새로운 컬럼에 다시 적용하여 2차 분리를 수행하는 방식으로 표준 연령 분리 프로토콜을 핵심적으로 수정하였습니다9. 이중 분리된 노화 및 젊은 세포 집단의 순도와 연령을 평가하기 위해, 출아 흉터 및 비오틴 염색을 수행하며, 각 조건당 약 50개의 세포를 촬영합니다. Wheat germ agglutinin은 효모 세포벽의 키틴이 풍부한 고리 모양 구조인 출아 흉터에 특이적으로 결합하며, 출아 이벤트가 발생할 때마다 흉터가 하나씩 남기 때문에 이를 통해 세포의 정확한 복제 연령을 확인할 수 있습니다 (그림 1C 및 그림 4A)22. 배우자 형성 전 세포의 이미지는 프로토콜의 5단계에 설명된 이미지 분석 파이프라인에 따라 분석합니다.
여기서 설명하는 연속 정렬 프로토콜을 사용하면 비오틴화된 세포가 약 3.63%에 불과하고 평균 복제 연령이 1.16인 젊은 세포군과, 비오틴화된 세포가 약 96.74%이며 평균 복제 연령이 8.55인 노화 세포군을 일관되게 얻을 수 있습니다 (그림 4B,C)9. 비오틴 염색으로 평가한 노화 세포군 또는 젊은 세포군의 순도가 80% 미만인 경우 실험을 중단합니다. 최적의 실험에서는 젊은 세포군과 노화 세포군 간의 평균 연령 차이가 최소 6회 분열 이상이어야 하며, 이 차이가 4회 분열 미만인 경우 실험을 중단합니다.
생식세포 형성 유도 배지에서 24시간 배양 후 생식세포 형성 효율을 분석합니다. 서술된 조건 하에서, 대조군 유전자형의 경우 어린 세포의 79.8%, 노화된 세포의 78.89%가 육안으로 구분이 가능한 사분포자(tetrads)를 성공적으로 형성합니다(그림 4D)9. 낮은 생식세포 형성 효율이 이 프로토콜의 절대적인 병목 구간은 아니지만, 생식세포 수율을 감소시켜 후속 단계의 난이도를 높이고 재현성을 떨어뜨릴 수 있습니다. 따라서 생식세포 형성 효율이 30% 미만인 경우, 노화된 전구 세포로부터 충분한 수율의 생식세포를 확보하기 위해 분리(sorting)를 위한 세포 투입량을 두 배(4 x 8 OD600)로 늘립니다.
젊은 전구 세포로부터 유래한 배우자 형성 후 사분자 집단은 재현성 있게 13.38%의 비오틴화 세포 순도와 1.31의 평균 복제 연령을 나타내는 반면, 노화된 세포 유래 집단은 97.34%의 비오틴화 세포 순도와 8.17의 평균 복제 연령을 나타낸다(그림 4E,F)9. 특정 유전형에서 분리된 사분자 집단의 순도가 20% 이상 변하거나, 노화된 사분자의 평균 연령이 배우자 형성 전 노화 세포 집단에 비해 3회 분열 이상 감소하는 경우에는 추가 평가를 수행해야 한다(그림 4E,F).
요약하자면, 연속적인 자기 비드 분리를 통해 감수분열 전 세포의 효율적인 연령 분리가 가능하며, 젊은 세포(79.8%)와 노화된 세포(78.89%) 모두에서 유사한 배우자 형성 효율을 보였습니다. 세포 집단의 복제 연령과 순도는 배우자 형성 전과 후, 두 차례에 걸쳐 분석됩니다. 4분포자(tetrads)의 연령 분리를 다시 검증하는 것은 특정 돌연변이가 연령 의존적 방식으로 배우자 형성을 방해하여, 노화된 세포의 배우자 형성 특이적 고갈(de-enrichment)이 일어날 가능성을 배제하기 위해 중요합니다.
생식세포 형성 회춘 평가
생식세포 형성 전의 야생형 세포를 젊은 세포군과 노화된 세포군으로 분리하고, 여기에 기술된 방식대로 생식세포 형성을 유도하였다. 배우자 분리 및 배우자의 복제 수명 획득 전 세포군의 복제 연령을 결정하기 위해 사분체당 출아 흔적의 수를 정량화하였다(그림 5A)9. 타임랩스 이미징 후, 젊은 전구세포와 노화된 전구세포에서 유래한 배우자의 복제 수명을 정량화하여 비교한 결과, 두 군에서 유래한 배우자의 중앙값 복제 수명이 유사한 것으로 나타났다(각각 21회 및 22회 분열; p = 0.982; 그림 5B). 이는 본 프로토콜이 생식세포 형성 과정의 회춘(rejuvenation) 현상을 정확히 포착함을 확인시켜 준다.
이러한 접근 방식을 통해, 우리는 선택적 자가포식(selective autophagy)을 통한 손상된 세포 구성 요소의 분해가 생식세포 형성 과정의 회춘(gametogenic rejuvenation)에 필수적임을 확인했습니다9. 액포를 통해 손상된 구성 요소의 분해를 매개하는 자가포식 경로는 노화에 따라 감소하며, 이는 손상된 세포 구성 요소의 증가로 이어집니다23,24. 특정 화물을 표시하는 선택적 자가포식 수용체로 핵심 자가포식 기구를 모집하는 데 필요한 주요 선택적 자가포식 스캐폴드 단백질인 Atg11은 생식세포 형성 중에 동적으로 상향 조절됩니다9. 선택적 자가포식을 통한 손상 제거가 생식세포 형성 회춘에 중요한지 테스트하기 위해, 생식세포 형성 전의 atg11Δ 세포를 젊은 세포 집단과 노화된 세포 집단으로 분류하고, 여기에 기술된 프로토콜에 따라 생식세포 형성을 유도했습니다. 사분체(tetrad)당 출아 흉터 수를 정량화하여 사분체 집단의 복제 연령을 확인한 후(Figure 5C)9, 사분체를 분리하여 생식세포의 복제 수명을 측정했습니다. 젊은 전구세포와 노화된 전구세포 유래 atg11Δ 생식세포의 중앙 복제 수명을 정량화한 결과, 노화된 전구세포 유래 생식세포는 젊은 atg11Δ 전구세포 유래 생식세포보다 복제 수명이 유의미하고 재현성 있게 짧은 것으로 나타났습니다(Figure 5D, Rep.1, p = 2 x 10⁻⁶, Rep.2, p = 3 x 10⁻⁶, Figure 5B와 비교 시)9. 이 결과는 Atg11을 통한 선택적 자가포식이 노화된 전구세포에서 유래한 생식세포의 완전한 회춘에 결정적인 역할을 한다는 것을 시사하며, 여기에 기술된 워크플로우가 완전히 회춘된 생식세포를 생성하는 데 필요한 구성 요소를 밝혀낼 수 있음을 보여줍니다.
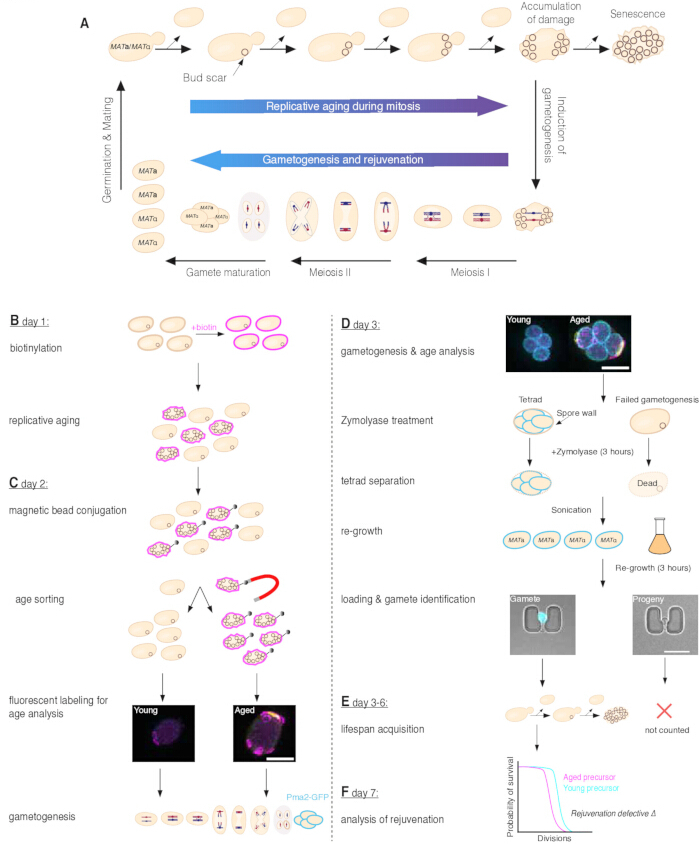
그림 1. 생식세포 형성 기반의 회춘 및 생식세포의 복제 수명 평가 파이프라인. (A) 영양 성장기 동안 출아 효모는 비대칭적으로 분열합니다. 새로 형성된 딸세포는 어린 상태로 태어나는 반면, 모세포는 점진적으로 노화 관련 손상이 축적되어 결국 노화됩니다. 개별 효모 세포의 복제 연령은 각 분열 후 형성되어 모세포 벽에 남아 있는 출아 흉터(bud scar)의 수로 나타냅니다(상단 패널). 생식세포 형성은 영양분 고갈에 의해 유도됩니다(오른쪽 아래 화살표). 이 과정에서 이배체 효모는 대칭적으로 분열하여 두 가지 교배형의 동일하게 어린 4개의 단배체 생식세포를 포함하는 사분포자(tetrad)를 생성합니다. 생식세포의 복제 수명은 복제 연령이 높은 전구세포에서 유래한 생식세포에서도 완전히 초기화됩니다(하단 패널). 영양분이 추가되면 생식세포는 발아하여 유사분열 성장을 재개하고, 두 교배형의 교배를 통해 이배체 세포를 형성합니다(왼쪽 위 화살표). (B) 창시 세포(Founder cells)는 1일 차에 biotin으로 표지되며, 최적 성장 온도에서 풍부 배지(rich medium)로 하룻밤 동안 배양하여 복제 연령이 높은 창시 세포와 어린 딸세포를 생성합니다. (C) 2일 차에 biotin 표지된 창시 세포를 자성 비드에 결합시킨 후, 자성 연령 분류(magnetic age sorting)를 통해 노화된 창시 세포와 어린 딸세포를 분리합니다. 이후 biotin 및 출아 흉터 형광을 평가하여 분류 효율을 결정하고 분리된 집단의 복제 연령을 확인합니다. 그 다음 세포를 생식세포 형성 유도 배지에서 하룻밤 동안 배양하여 Pma2-GFP를 발현하는 사분포자를 생성합니다. (D) 3일 차에 생식세포 형성 효율, biotin 표지 및 출아 흉터를 평가하여 생식세포 형성과 집단의 연령 분포를 확인합니다. 사분포자를 Zymolyase로 3 h 동안 처리하여 포자 벽을 소화시키고 생식세포 형성 과정이 진행되지 않은 세포를 용해시킨 후, 초음파 처리를 통해 기계적으로 분리합니다. 분리된 생식세포를 다시 성장시켜 미세유체 U-트랩(U-trap) 내의 유지력을 높인 후 미세유체 장치에 로딩합니다. 대표 이미지에서는 U-트랩에 포획되어 명시야 및 Pma2-GFP 형광(시안색)으로 시각화된 Pma2-GFP 양성 생식세포(왼쪽)와 Pma2-GFP 음성 생식세포 자손(오른쪽)을 보여줍니다. (E) 생식세포의 복제 수명은 프로토콜 3~6일 차 동안 미세유체 기반의 장기 타임랩스 이미징을 사용하여 측정합니다. (F) 프로토콜 7일 차에 회춘 결함 배경(rejuvenation-defective background)에서 생식세포 복제 수명을 분석한 가상의 결과입니다. 스케일 바 = 5 µm. 이 그림은 Spiri et al.9에서 인용되었습니다. 그림의 확대 버전을 보려면 여기를 클릭하십시오.
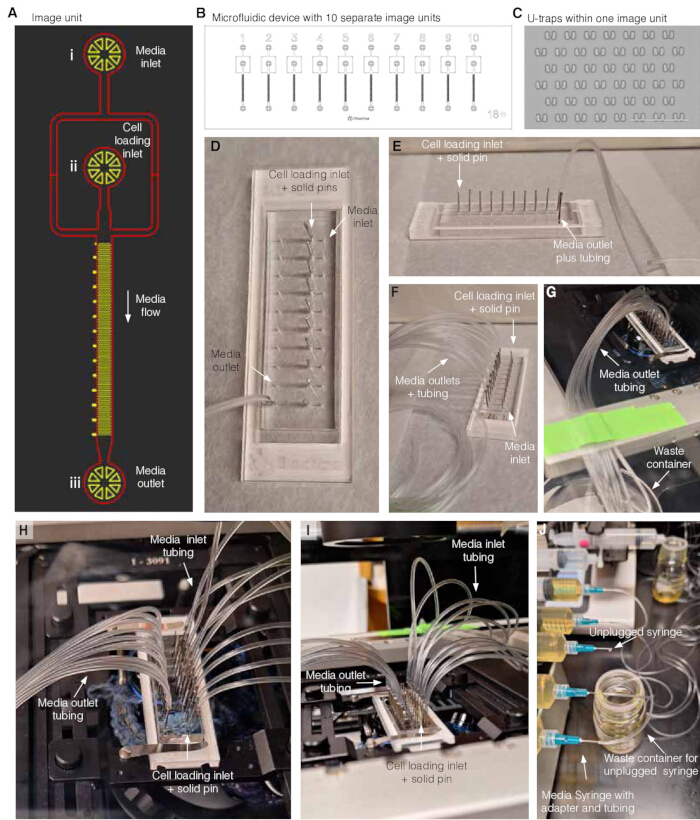
그림 2. 미세유체 장치 준비. (A) 단일 이미징 유닛의 개략도. (i) 배지 입구; (ii) 세포 로딩 입구, 및 (iii) 배지 출구. 실험 중에 신선한 배지는 배지 입구(i)에서 배지 출구(iii)로 흐르며, 이때 세포 로딩 입구(ii)는 고체 스테인리스강 핀으로 막혀 있다. (B) 10개의 독립된 이미징 유닛을 포함하는 단일 미세유체 장치의 개략도. (C) 단일 이미징 유닛 내 PDMS U-트랩 및 간격 이미지, 스케일 바는 100 µm이다. (D) 모든 세포 로딩 입구에 고체 스테인리스강 핀이 꽂혀 있고, 배지 통과 수집을 위해 하나의 배지 출구에 중공 스테인리스강 핀과 튜빙이 연결된 미세유체 장치의 상단 뷰. (E) 모든 세포 로딩 입구에 고체 스테인리스강 핀이 꽂혀 있고, 배지 통과 수집을 위해 하나의 배지 출구에 중공 스테인리스강 핀과 튜빙이 연결된 미세유체 장치의 측면 뷰. (F) 모든 세포 로딩 입구에 고체 스테인리스강 핀이 꽂혀 있고, 배지 통과 수집을 위해 모든 배지 출구에 중공 스테인리스강 핀과 튜빙이 연결된 미세유체 장치. (G) 모든 세포 로딩 입구에 고체 스테인리스강 핀이 꽂혀 있고, 모든 배지 출구에 중공 스테인리스강 핀과 튜빙이 연결된 미세유체 장치가 현미경에 장착된 모습. 배지 통과 수집용 튜빙은 현미경 스테이지에 테이프로 (녹색 테이프) 고정되어 폐기물 수집 용기로 연결된다. (H) 모든 세포 로딩 입구에 고체 스테인리스강 핀이 꽂혀 있고, 모든 배지 출구에 중공 스테인리스강 핀과 튜빙이 연결되어 있으며, 모든 배지 입구에 배지 시린지와 연결된 중공 스테인리스강 핀 및 튜빙이 꽂힌 미세유체 장치가 현미경에 장착된 모습. (I) 모든 세포 로딩 입구에 고체 스테인리스강 핀이 꽂혀 있고, 모든 배지 출구에 중공 스테인리스강 핀과 튜빙이 연결되어 있으며, 모든 배지 입구에 배지 시린지와 연결된 중공 스테인리스강 핀 및 튜빙이 꽂힌 미세유체 장치가 현미경에 장착된 모습. 배지 시린지에서 나오는 튜빙은 현미경 스테이지에 테이프로 고정되어 있다(배경의 녹색 테이프). (J) 누출이 발생하거나 이미징 유닛이 과부하된 경우 미세유체 장치에서 배지 시린지를 분리하는 방법의 예시. 그림 2A–C는 Jo et al.15.에서, 그림 D–J는 Spiri et al.9에서 인용 및 수정되었다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
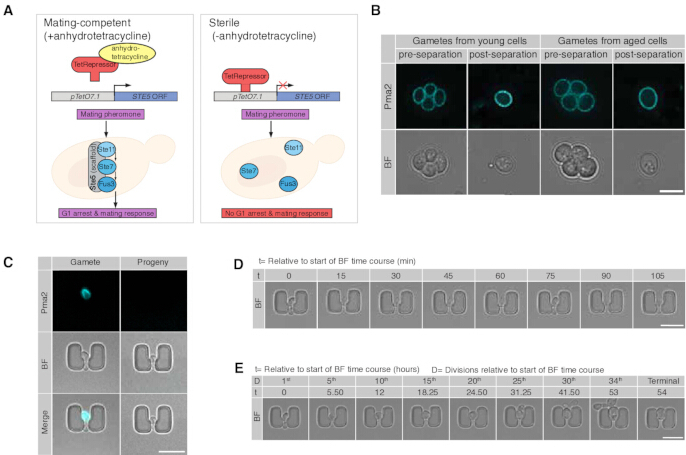
그림 3미세유체 기반의 배우자 복제 수명 측정 분석을 위한 배우자 준비. (A) 조건부 불임(conditional sterility)을 구현하기 위한 유전 체계의 모식도. ~의 내인성 프로모터(endogenous promoter)는 STE5교배 페로몬 감지 시 신호 전달에 필수적인 스캐폴드 단백질인 ,은(는) 다음으로 대체됩니다 pTetO7.1 프로모터 단편. 기저 상태에서, 구성적 프로모터 하에 발현되는 Tet 억제 단백질(Tet Repressor protein, TetR)이 결합하여 pTetO7.1 그리고 이 프로모터로부터의 전사를 억제합니다. anhydrotetracycline을 첨가하여 결합시키면 Tet Repressor의 구조적 변화가 유도되어, 이에 대한 친화력이 감소합니다. pTet07.1 따라서 ~의 전사 억제를 해제하여 STE5. (B) 분리 전후의 젊은(왼쪽 패널) 및 노화된(오른쪽 패널) 4분포자 및 배우자의 대표적인 단일 z-슬라이스로, 각각 명시야 및 Pma2-GFP(시안색)를 시각화한 것이다. (C) 미세유체 기반 장치에 포획된 대표적인 Pma2-GFP 양성 배우자(왼쪽 패널)와 Pma2-GFP 음성 배우자 자손(오른쪽 패널)의 명시야 및 Pma2-GFP(청록색) 시각화 이미지.D) 포획된 대표 생식세포가 2시간 동안 두 번 분열한다.E) 미세유체 이미징 유닛에 포획된 대표 생식세포, 5분마다 시각화함th 말단 34까지 분할th 54시간의 시간 경과에 따른 분열. 스케일 바 = 5 µm이 그림은 Spiri 등의 연구에서 인용되었습니다.9. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
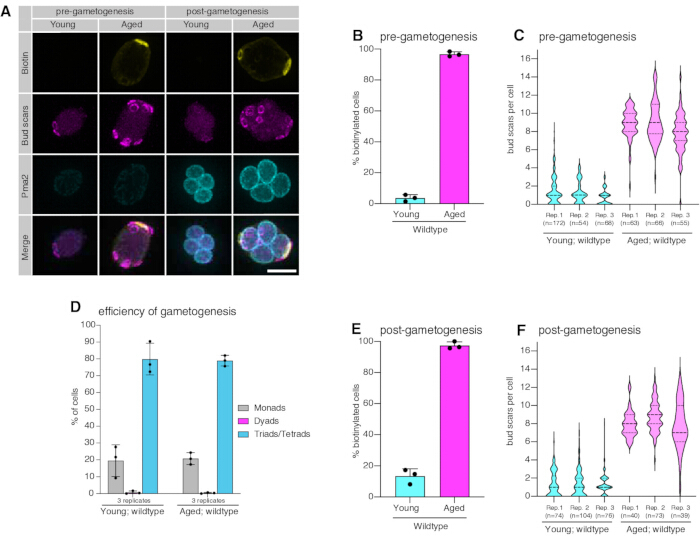
그림 4복제 연령 및 배우자 형성 효율의 정량화. (A) 형광 표지된 streptavidin(노란색)을 사용하여 비오틴을 시각화하고, 형광 표지된 wheat germ agglutinin(마젠타색)으로 키틴 함량이 높은 출아 흉터를 시각화하며, Pma2-GFP(시안색)를 나타낸 대표적인 연령별 분류 전-생식세포 형성기 최대 강도 투영 세포(왼쪽 패널) 및 후-생식세포 형성기 4분포자(오른쪽 패널). (B) 젊은(3.63 ± 2.12 %, 평균 ± 표준편차(SD), 3회 반복 측정, n = 각각 172, 54, 68) 및 고령(96.74 ± 1.58%, 평균 ± SD, 3회 반복, n = 각각 63, 66, 55) 야생형 세포 집단, 오차 막대는 SD를 나타냄. (C어린 세포(1.16)의 출아 흉터 수를 평가하여 복제 연령 측정 ± 0.41, 평균 ± 표준편차, n = 3 반복군, n = 각각 172, 54, 68) 및 노화된 (8.55 ± 0.66, 평균 ± SD, 3회 반복, 각각 n = 63, 66, 55) 야생형 세포 집단. (D) 어린 (79.8 ± 9.43%; 평균 ± SD, 3회 반복, 반복 1 및 3 n = 300, 반복 2 n = 281) 및 노령(78.89 ± 3.17 %, 평균 ± 표준편차(SD, 3회 반복, 각 n = 300)의 배우자 형성 후 야생형 세포 집단, 오차 막대는 SD를 나타냄. (E) 어린 (13.38일령) 개체에서 비오틴화된 4분체 분율의 정량 분석 ± 4.74%, 평균 ± SD, n = 3 반복 시료, 각각 n = 74, 104, 76) 및 노화된 (97.34 ± 2.33%, 평균 ± SD, 3회 반복 측정, n = 각각 40, 73, 39)의 생식세포 형성 완료 후 야생형 집단, 오차 막대는 SD를 나타냄. (F어린 세포(1.31)의 출아 흉터 수를 측정하여 복제 연령을 정량화함 ± 0.04, 평균 ± SD, 3회 반복, n = 각각 74, 104, 76) 및 고령 (8.17 ± 0.54, 평균 ± SD, 3회 반복, n = 각각 40, 73, 39) 야생형 사분포 집단. 스케일 바 = 5 µm신뢰 구간은 Wilson score 방법을 사용하여 계산되었습니다. 바이올린 플롯은 중앙값(실선)과 25th 및 75th 백분위수(점선). 이 그림은 Spiri 등의 연구 내용을 수정하여 인용하였습니다.9. 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
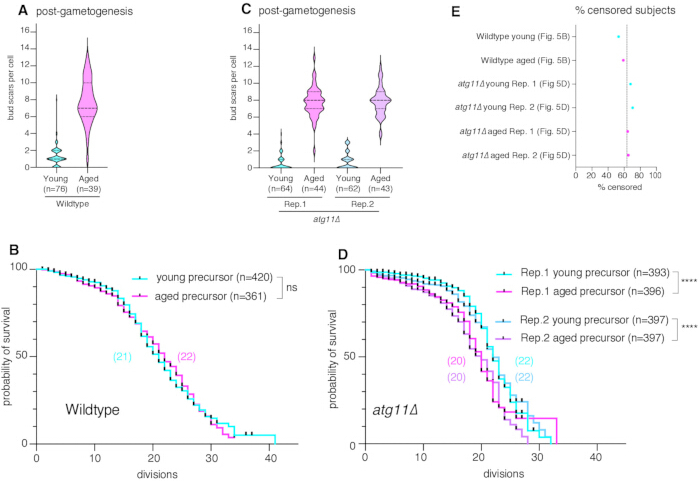
그림 5. 복제 수명 정량화. (A) 젊은(1.3 ± 1.2, mean ± SD, n =76) 및 노화된(7.8 ± 2.6, mean ± SD, n = 39) 야생형 배우자 집단에서 출아 흉터 수를 측정하여 복제 연령을 정량화한 결과이며, Rep. 3에 대해 그림 4F에 표시된 것과 동일한 데이터임. (B) 젊은(중앙값 수명 = 21, n = 420, 검열된 대상 223명) 및 노화된(중앙값 수명 = 22, n = 361, 검열된 대상 213명, 젊은 층 대비 p = 0.982) 야생형 배우자의 복제 수명 정량화. 두 번의 기술적 반복 실험에서 얻은 수치를 통합함. (C) atg11Δ 사분포자 집단에서 출아 흉터 수를 측정하여 복제 연령을 정량화한 결과: Rep. 1 젊은 층(0.53 ± 0.91, mean ± SD, n = 64) 및 노화된 층(7.8 ± 1.8, mean ± SD, n = 44); Rep. 2 젊은 층(0.82 ± 1, mean ± SD, n = 62) 및 노화된 층(7.9 ± 1.7, mean ± SD, n = 43). (D) 두 번의 독립적인 생물학적 반복 실험에 대한 atg11Δ 배우자의 복제 수명 정량화: Rep. 1 젊은 층(중앙값 수명 = 22, n = 393, 검열된 대상 267명) 및 노화된 층(중앙값 수명 = 20, n = 396, 검열된 대상 255명, p = 2 x 10⁻⁶); Rep. 2 젊은 층(중앙값 수명 = 22, n = 397, 검열된 대상 280명) 및 노화된 층(중앙값 수명 = 20, n = 397, 검열된 대상 259명, 젊은 층 대비 p = 3 x 10⁻⁶). 각 독립적인 생물학적 반복 실험에 대해, 두 번의 기술적 반복 실험에서 얻은 수치를 통합함. (E) 모든 수명 실험에서 검열된 이벤트의 백분율. 점선은 n = 6번의 실험에서 얻은 검열된 대상의 평균(63.4% ± 6.2 mean ± SD)을 나타냄. 복제 수명 차이의 통계적 유의성은 Log-rank (Mantel-Cox) 검정을 사용하여 평가하였으며, 생존 곡선의 눈금 표시는 검열된 이벤트를 나타냄. 바이올린 플롯은 중앙값(실선), 25th 및 75th 백분위수(점선)를 나타냄. p 값은 표시됨(ns = p > 0.05, * = p ≤ 0.05, ** = p ≤ 0.01, *** = p ≤ 0.001, **** = p ≤ 0.0001). 이 그림은 Spiri 등9의 연구 내용을 바탕으로 수정됨. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
보조 그림 1: 눈 흉터 분석을 위한 관심 영역 선택. 직사각형 관심 영역(ROI)을 사용하여 선택된 개별 세포가 이후 분석을 위해 ROI 매니저에 추가된 모습을 보여주는 대표 ImageJ 스크린샷. 선택된 ROI는 노란색 상자로 표시된다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 2: 싹 흉터 수의 수동 입력.선택된 각 세포에 대해 확인된 싹 흉터 수를 수동으로 입력하는 데 사용되는 대화 상자를 보여주는 Representative ImageJ 스크린샷. Y-투영 영상을 회전시키고 wheat germ agglutinin 신호를 검토하여 싹 흉터 수를 측정합니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 3: 비오틴 표지의 수동 분류. 선택한 세포가 비오틴 표지에 대해 양성인지 음성인지를 기록하는 데 사용된 ImageJ 스크린샷 대화 상자의 대표 이미지입니다. 값 1은 비오틴 양성 세포를 나타내며, 값 0은 비오틴 음성 세포를 나타냅니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 4: 미세유체 장치 내 관심 영역 선택. 직사각형 ROI를 사용하여 선택하고 ROI Manager에 추가한 개별 미세유체 U-trap을 보여주는 ImageJ 스크린샷. 각 ROI는 후속 분석을 위해 단일 U-trap을 포함합니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 5: 선택된 미세유체 U-트랩 ROI의 시각화. 개별 U-트랩을 선택한 후 미세유체 장치 위에 여러 개의 직사각형 ROI가 중첩되어 나타난 대표적인 ImageJ 스크린샷입니다. ROI Manager의 “Show All” 기능을 사용하여 ROI들을 동시에 표시하였습니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 6: 미세유체 U-트랩 내 GFP 양성 세포의 식별.선택된 U-트랩 내에 GFP 양성 세포가 포획되었는지 판단하는 데 사용된 프롬프트를 보여주는 대표적인 ImageJ 스크린샷. 식별을 용이하게 하기 위해 명시야 이미지와 함께 형광 이미지가 표시된다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 7: GFP 양성 세포의 수동 분류. 선택된 U-trap 내 세포의 GFP 상태를 기록하는 데 사용된 ImageJ 대화 상자를 보여주는 대표 스크린샷. 값 1은 GFP 양성 세포를 나타내며, 값 0은 GFP 음성 세포를 나타냅니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 8: 복제 수명 수동 입력. 타임랩스 이미지 스택을 검토한 후 개별 세포의 복제 수명(RLS)을 입력하는 데 사용되는 대화 상자를 보여주는 Representative ImageJ 스크린샷. RLS는 관찰된 총 세포 분열 횟수로 결정된다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 9: 복제 수명의 수동 입력.명시야 타임랩스 이미지 스택을 검토한 후 개별 세포의 복제 수명(RLS)을 입력하는 데 사용되는 대화 상자를 보여주는 대표적인 Fiji/ImageJ 스크린샷입니다. RLS는 관찰된 총 세포 분열 횟수로 기록됩니다. 여기에서 파일을 다운로드하십시오.
보충 그림 10: 복제 수명 분석 중 최종 상태 평가. 분석 대상 세포가 최종 표현형에 도달했는지 아니면 최종 정지 전에 트랩에서 방출되었는지를 결정하기 위해 사용된 “Terminal?” 프롬프트를 보여주는 Fiji/ImageJ 스크린샷의 대표 예시. 이 파일을 다운로드하려면 여기를 클릭하십시오.
부록 그림 11: 복제 수명 분석 중 최종 상태 기록.최종 표현형의 관찰 여부를 결정한 후 최종 상태 값을 선택하는 과정을 보여주는 대표적인 Fiji 스크린샷. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 12: 최종 세포 운명 선택. 분석된 세포의 검열 사유 또는 최종 운명을 지정하는 데 사용된 프롬프트를 보여주는 대표적인 Fiji 스크린샷입니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 13: 말단 세포 형태의 분류. 분열을 중단하고 수축된 형태를 보이는 세포에 대한 “shriveled up” 분류를 포함하여, 말단 표현형의 선택 과정을 보여주는 대표적인 Fiji 스크린샷. 여기를 클릭하여 이 파일을 다운로드하십시오.
보충 파일 1. 수동 ROI 선택 및 TIFF 내보내기 Fiji 매크로. 개별 세포를 관심 영역(ROI)으로 수동 선택하고, 선택한 ROI를 자른 후, 이후 분석을 위해 자른 이미지를 TIFF 파일로 내보내는 데 사용되는 맞춤형 Fiji/ImageJ 매크로입니다. 여기에서 파일을 다운로드하십시오.
보충 파일 2. 단일 세포 3D 및 Z-투영 Fiji 매크로. 이후의 출아 흉터 및 비오틴 표지 분석을 위해 개별적으로 크롭된 세포의 3차원 투영 및 Z-투영 이미지를 생성하는 데 사용된 맞춤형 Fiji/ImageJ 매크로입니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 3. 수동 Budscar 및 Biotin 어노테이션 Fiji 매크로. bud scar의 수를 수동으로 기록하고 biotin 표지 상태에 따라 개별 세포를 분류하는 데 사용된 맞춤형 Fiji/ImageJ 매크로입니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 4. 수동 ROI 크롭 및 TIFF 내보내기 – Open Images Fiji 매크로. 이후의 배우자 복제 수명 분석을 위해 t0 FITC 이미지 및 명시야 타임랩스 하이퍼스택에서 해당 관심 영역(ROI)을 크롭하고 내보내는 데 사용된 맞춤형 Fiji/ImageJ 매크로입니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 5. 수동 GFP, RLS 및 최종 표현형 주석 Fiji 매크로. 생식세포의 복제 수명 분석 중 GFP 양성 생식세포를 식별하고, 복제 수명(RLS)을 수동으로 기록하며, 최종 상태를 결정하고, 최종 또는 배출 표현형을 분류하는 데 사용된 맞춤형 Fiji/ImageJ 매크로입니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
본 연구에서는 Spiri 등이 도입한 고처리량 미세유체 기반 워크플로우를 사용하여, 서로 다른 연령의 전구 세포에서 유래한 효모 배우자의 복제 수명을 측정하는 상세 프로토콜을 제공합니다9. 이 기술은 다양한 유전적 배경에서 배우자 형성 재생(gametogenic rejuvenation)의 효율성에 관한 조사를 가속화하며, 보존된 과정인 배우자 형성 재생에 대한 기전적 통찰을 얻는 데 활용될 수 있습니다. 배우자 형성이 효모의 복제 수명을 재설정한다는 발견은 처음에 미세해부 분석법을 판독법으로 사용하여 W303 및 A364 균주 배경에서 이루어졌습니다7. 배우자 형성 시 복제 수명의 재설정은 SK1 균주의 경우, 배우자로부터 초기 몇 개의 딸세포를 분리하는 데 어려움이 있어 배우자 형성 연구에 널리 사용됨에도 불구하고 평가할 수 없었습니다7. 이 프로토콜을 개발하는 동안, 우리는 세포 분리를 조절하기 위해 AMN1 유전자 좌위에 D368V 점 돌연변이를 도입하고 응집을 제거하기 위해 FLO8을 결실시켜 SK1 균주 배경을 엔지니어링함으로써 이러한 한계를 극복했습니다25,26. 또한, 교배 반응을 유도하는 데 필수적인 신호 전달 스캐폴드 단백질인 STE5의 발현은 내인성 유전자 좌위에 anhydrotetracycline 유도성 Tet-OFF 시스템을 구현하여 조건부로 제한하였습니다 (그림 3A)27,28,29. 이는 MATa 세포와 MATα 세포 사이의 완전한 조건부 교배 결핍을 유도하여, 실험 중 MATa 및 MATα 배우자 간의 교배 반응 유발을 피하면서 유전적 교배를 가능하게 합니다. 마지막으로, 짧은 성장 후 배우자를 식별하고 영양 세포와 구별하기 위해, 내인성 프로모터 하에 Pma2-GFP 융합 단백질을 운반하는 형질전환 리포터를 도입했습니다. Pma2-GFP는 배우자 형성 후기에 특이적으로 발현되어 배우자의 세포막에 위치하며, 발아 후 여러 번의 세포 분열 동안 유지됩니다 (그림 1D, 그림 3B,C, 및 그림 4A)9. 여기에 설명된 미세유체 기반 분석법은 이전에 배우자 형성 재생을 정량화할 수 있는 유일한 방법이었던 노동 집약적이고 수일이 소요되는 미세해부 분석법에 비해, 배우자 형성 재생 프로그램 연구의 처리량과 가능성을 크게 높여줍니다. 미세해부를 통해 W303 및 A364에서 얻은 결과와 일치하게7, 우리는 SK1 균주 배경에서도 배우자 형성 후 복제 수명이 완전히 재설정됨을 입증합니다. 또한, 이 방법을 적용하여 Atg11 의존적 선택적 자가포식이 배우자의 완전한 재생에 필수적임을 밝혔습니다 (그림 5B,D) (Spiri 등의 데이터에서 유래)9.
미세유체 장치(그림 2A–D)를 기술된 프로토콜(단계 8)에 따라 설정하고 장착합니다. 미세유체 장치를 현미경에 장착하기 전, 커버 글라스에 균열이 있는지 주의 깊게 검사합니다. 미세유체 장치를 취급할 때 커버 글라스가 손상되지 않도록 주의해야 합니다. 균열이 발견되면, 현미경 내부로 배지가 유출되거나 실험 중 압력 불일치가 발생하는 것을 방지하기 위해 해당 이미징 유닛은 사용하지 않습니다. 이론적으로는 동일한 미세유체 장치의 손상되지 않은 이미징 유닛을 계속 사용할 수 있지만, 구조적으로 손상된 커버 글라스는 실험 중 균열이 추가로 확산될 위험이 높으므로 새로운 미세유체 장치로 교체하는 것이 권장됩니다. 다음으로, 현미경 하에서 각 이미징 유닛을 검사하여 PDMS 구조의 무결성과 커버 글라스와의 적절한 접합 여부를 확인해야 합니다. 실험 중 세포 응집 및 막힘 위험을 줄이기 위해 성장 배지에 Pluronic F-127을 첨가하고, 실험 전 배지를 필터 멸균하여 찌꺼기를 제거합니다. 이미징 유닛에 배지가 충분히 채워지도록 세포를 로딩하기 최소 2 h 전에 배지를 미세유체 이미징 유닛으로 흘려보냅니다. 특정 이미징 유닛의 U-trap 영역 상단에 상당한 양의 찌꺼기가 축적되어 세포 로딩 및 배지 흐름을 방해하는 경우, 해당 유닛을 배지 펌프에서 분리하여 실험에서 제외하는 것이 좋습니다(그림 2J). 배지가 모든 이미징 유닛에 완전히 분배되면, 단일 이미징 유닛 내 및 전체 미세유체 장치 전체의 초점 평면 차이를 제어하기 위해 ROI의 테스트 이미지를 획득합니다. 미세유체 장치에 내부 기울기가 있는 경우, 스테이지 기울기를 미세 조정하여 이 문제를 완화할 수 있습니다. 또는, 단일 이미징 유닛 전체의 초점 평면 차이를 보정하기 위해 위치 및 시점당 3–8 µm z-간격으로 3개의 z-슬라이스 이미지를 획득하십시오.
사분포자를 단일 배우자로 분리하기 위해, 배우자 형성 후 연령별로 분류된 배양물을 Zymolyase와 함께 3 h 동안 배양합니다(그림 1D). 이 효소는 효모의 세포벽을 특이적으로 분해하여 배우자를 보호하고 있는 사분포자낭을 약화시키고 비배우자 세포를 용해합니다(그림 1D). 분리된 배우자들은 자체 세포벽에 의해 보호되는데, 이 세포벽은 분해에 더 강해 용해를 방지합니다. 사분포자 분리 후, 분리된 배우자들을 검사하여 사분포자가 충분히 해리되었는지와 배우자의 무결성이 유지되었는지 확인합니다. 30% 이상의 세포가 여전히 온전한 사분포자 형태로 남아 있다면, 추가적인 초음파 처리 주기를 통해 이를 더 분리할 수 있습니다(그림 3B). 30% 이상의 사분포자가 온전하게 남아 있는 경우에는 실험을 중단하고 새로운 batch의 Zymolyase로 처음부터 다시 시작하는 것이 권장됩니다. 이는 세포 성장 과정에서 세포 덩어리가 형성되어 미세유체 시스템의 로딩 및 작동 중에 문제를 일으킬 수 있기 때문입니다. 분리 후, 배우자 배양물은 rich media에서 30 °C로 3 h 동안 성장시킵니다. 이 시간은 배우자가 미세유체 장치에 쉽게 포획될 수 있을 만큼 크기가 커지기에 충분하면서도, 대부분의 세포가 첫 번째 분열을 마치지 않을 정도로 짧은 시간입니다(그림 1D). 성장 후, 광학 현미경으로 세포를 관찰하여 크기 증가와 첫 번째 출아(bud)의 출현을 확인합니다. 특정 유전자형의 배우자가 크기가 커지고 분열을 시작하는 데 시간이 훨씬 더 오래 걸린다면, 배우자가 효율적으로 포획될 수 있도록 시간을 그에 맞게 조정해야 합니다.
그 후, 현미경의 라이브 뷰를 통해 유닛을 관찰하면서 주사기에 조심스럽게 압력을 가해 과성장한 세포를 미세유체 이미징 유닛에 수동으로 주입합니다. 과도한 압력을 가하면 PDMS 구조가 커버 글라스에서 분리되어 이미징 유닛이 손상될 수 있으므로 주의해야 합니다. PDMS 구조가 약간 휘어지기 시작하고 세포가 이미징 영역으로 흘러 들어갈 때까지 지속적으로 압력을 가합니다. 세포가 이미징 장치로 유입되기 시작하면, 세포가 유닛을 통과하며 개별 트랩에 자리 잡을 수 있도록 압력을 줄입니다. 첫 번째 단계에서 포집된 세포가 200개 미만인 경우, 압력을 다시 가해 주입 사이클을 반복합니다. 최적으로 주입된 유닛은 트랩의 최소 66%에 세포가 자리 잡은 상태여야 하며, 이는 충분한 주입과 실험 중 막힘 위험을 높이는 과잉 주입 사이의 균형을 맞춘 것입니다. 과잉 주입된 이미징 유닛은 U-트랩 영역 위와 내부에 세포 및 파편이 과도하게 존재하여 이미징 유닛 전체의 배지 흐름을 방해할 수 있습니다. 서로 다른 이미징 유닛에 공용 펌프를 사용하는 경우, 특정 이미징 유닛이 실수로 과잉 주입되었다면 해당 유닛을 배지 펌프에서 분리하여 막힘으로 인한 펌프 정지를 방지함으로써 다른 실험 그룹의 중단을 막습니다(Figure 2J). 모든 조건의 주입은 1 h 이내에 완료하여 생식세포의 조기 분열로 인한 딸세포 생성 및 그로 인한 생식세포 희석, 그리고 복제 수명(replicative lifespan)의 부정확한 평가를 방지합니다. 모든 조건의 주입이 완료되고 배지 흐름이 재개되면, 다시 연결한 주입 포트에서 배지가 누출되는지 미세유체 장치를 면밀히 검사합니다. 누출이 관찰되면 스테인리스 스틸 핀을 조심스럽게 제거한 후 주입 포트에 다시 꽂아 문제를 해결합니다. 또는 누출을 멈출 수 없는 경우, 실험 중 현미경으로 액체가 쏟아지는 것을 방지하기 위해 이미징 유닛을 배지 펌프에서 분리합니다(Figure 2J). 처음 몇 개의 트랩 주변의 세포 수와 파편으로 보아 이미징 유닛이 과잉 주입된 경우, 배지 흐름 감소로 인한 배압 증가로 실험 중 펌프가 정지되는 것을 방지하기 위해 역시 배지 펌프에서 분리합니다(Figure 2J).
SK1에 맞게 제작된 여기에서 사용된 맞춤형 개방형 U-트랩 미세유체 장치는 다른 트랩 설계에 비해 세포의 공간적 구속이 적어 복제 수명의 광범위한 동적 범위를 캡처할 수 있으며, 이전에 보고된 수명에 미치는 영향30의 가능성을 최소화합니다. 그러나 이러한 개방형 설계는 복제 수명의 마지막 몇 번의 분열 동안 세포 크기가 크게 증가하거나(특히 SK1에서 관찰되며 불가피함), 시간이 지남에 따라 유체 시스템에서 미세한 압력 편차가 발생하여 노화가 관찰되기 전에 세포가 조기에 배출될 수 있다는 단점이 있습니다. 따라서 장치 준비 및 세포 로딩 중에 미세유체 시스템에 공기가 유입되지 않도록 각별한 주의를 기울여야 합니다. 배우자의 복제 수명을 평가할 때 편향을 방지하기 위해, 타임랩스 시작 시 로딩된 모든 배우자를 200개의 배우자가 분석될 때까지 계수합니다. 노화 전에 배출된 세포는 분석 목적으로 엄격하게 중도 절단(censored) 대상으로 분류합니다. 우리는 유전자형 간의 중도 절단율이 유사하며(그림 5E, 중도 절단 대상 = 63.4% ± 6.2, 평균 ± SD), 배출 빈도와 관찰된 수명 표현형 사이에 체계적인 관계가 없음을 확인했습니다. 아직 관찰된 적은 없지만, 분석된 세포 중 배출률이 80%를 초과하는 경우 실험을 반복할 것을 권장합니다. 따라서 세포 배출은 첫 몇 번의 분열 내에 배출되더라도 로딩된 모든 배우자를 계수하기 때문에 이 분석법에 내재된 상당한 중도 절단 원인이 되지만, 유전자형 간의 차별적 배출이 보고된 수명 차이의 원인이 된다는 증거는 보이지 않습니다. 이 접근 방식을 따르면 복제 수명을 일관되고 견고하게 측정할 수 있습니다. 향후 실험에서 배출 사건을 줄이기 위해 새로운 트랩 설계가 적용된 장치가 현재 개발 및 테스트 중에 있습니다.
생식세포 형성 과정에서의 수명 리셋을 정량화하는 처리량은 기존 방법보다 현저히 높지만, 각 생식세포의 세포 분열 횟수를 숙련된 연구자가 수동으로 측정해야 하므로 데이터 분석이 현재 제시된 방법의 한계점으로 남아 있습니다. 효모의 복제 수명 분석을 자동화하기 위한 머신러닝 접근법의 최근 발전은 앞서 언급한 한계를 극복할 수 있는 유망한 전략을 제공합니다31. 특히 최근 발표된 BudFinder라는 접근법이 유망한데, 이는 대규모 효모 이미지 데이터에서 자기 지도 학습 방식으로 사전 훈련된 Masked Autoencoder를 사용하고, 이를 통해 트랜스포머 모델을 정교화하여 세포 분열 이벤트를 직접 검출합니다32. 이 접근법은 이전 방법들과 비교했을 때 모델 정교화에 필요한 수동 주석 처리 분열 이벤트의 수를 크게 줄여줍니다. 고무적인 점은, 본 프로토콜을 통해 이미 생성되고 주석 처리된 방대한 양의 데이터가 향후 생식세포의 복제 수명 분석을 자동화하고 현재의 한계를 극복할 수 있는 유사한 접근법에 매우 적합하다는 것입니다. 나아가, 향후 응용을 위해 본 프로토콜을 기확립된 바이오마커 및 정교한 발현 시스템과 용이하게 결합함으로써 S. cerevisiae의 생식세포 형성 중 세포 회춘을 매개하는 분자 기전과 요인들을 규명할 수 있으며, 이를 통해 이 보존된 과정에 대한 새로운 통찰을 얻을 수 있을 것입니다.
공개 사항
저자들은 이해상충이 없음을 선언합니다.
감사의 글
원고에 대한 비판적 토론과 의견을 제공해 주신 Brar 및 Ünal 연구실의 전현직 구성원들에게 감사드립니다. 본 연구는 S.S.에게 제공된 스위스 국립과학재단(Swiss National Science Foundation)의 mobility fellowship P500PB_214421의 지원을 받았으며, G.A.B.는 국립보건원(National Institutes of Health, R01AG071869)의 지원을 받았습니다. T.L.S.는 Norn Group, Hevolution Foundation 및 Rosenkranz Foundation의 Longevity Impetus Grant 지원을 받았으며, E.Ü.는 국립보건원(National Institutes of Health, R01AG071801)과 Astera Institute의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 1000 mL 진공 여과/보관 병 시스템 | Corning | 431098 | 0.22 µm 기공 54.5 cm2 PES 막, 멸균됨. 실온에서 보관하십시오. |
| 20 mL 주사기 | Becton, Dickinson and Company (BD) | 302830 | 20 mL Luer-Lok 주사기. 실온에서 보관하십시오. |
| 5 mL 주사기 | Becton, Dickinson and Company (BD) | 14-829-45 | 5mL Luer-Lok 주사기, 실온 보관. |
| 암피실린 | Alpha Teknova | A9510 | - 에 보관하십시오20 °C 재구성 후 물 속에서. |
| 항-비오틴 자기 비드 | Miltenyi Biotechnology | 130-097-046 | 보관 온도 4 °C. |
| β-머캅토에탄올 | MilliporeSigma | M625-250mL | 보관 온도 4 °C. |
| 소혈청알부민 | MilliPORE SIGMA | A4503-100G | 보관 온도 4 °C. |
| Clay Adams Intramedic 루어 스터브 어댑터 | Becton, Dickinson and Company (BD) | 427565 | 23 게이지, 상온 보관. |
| 큐벳 | Bio Rad | 2239955 | 반미세용량 일회용 폴리스티렌 큐벳. 실온에서 보관하십시오. |
| 에탄올 | 해당 사항 없음 | 다양한 | |
| EZ-Link Sulfo-NHS-LC-biotin | ThermoFisher Scientific | 21335 | 복제 노화 연구를 위한 창시 세포 표지용 비오틴 |
| Fiji 소프트웨어 | https://fiji.sc/ | 해당 없음 | 버전: Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m) |
| 형광 표지 스트렙타비딘 | ThermoFisher Scientific | S11225 | Alexa Fluor 546 접합체, -에서 보관20 °C 분주하여. |
| 형광 표지 밀배아 응집소 | ThermoFisher Scientific | W11263 | 알렉사 Fluor 350 접합체, -에 보관20 °C 분주하여. |
| 포름알데히드 | ThermoFisher Scientific | F79-1 | 37%, 보관 온도 4 °C. |
| 생식세포 형성 유도 배지 | 해당 없음 | 표준 레시피에 따라 자체 제작됨 | 2% 아세트산 칼륨, 아미노산 보충제 및 암피실린 (40 mg/L 아데닌, 40 mg/L 우라실, 10 mg/L 히스티딘, 10 mg/L 류신 및 10 mg/L 트립토판, 100 μg/mL 암피실린) |
| 글리신 | ThermoFisher Scientific | BP381-1 | 100%, 200 프루프. 상온에서 보관하십시오. |
| 중공 스테인리스강 핀 | iBiochips | HSP-100 | 부품 번호: 0.28”, 광학 밀도, 0.016”, ID, 0.500” 장기 보관 시, 실온에서 보관하십시오. |
| 도립 형광 현미경 | 해당 사항 없음 | 해당 사항 없음 | |
| Legato 200 주사기 펌프 | kdScientific | 788200 | 실온에서 보관하십시오. |
| Legato 200/210 플라스틱 또는 유리 6/10 멀티 랙 | kdScientific | 788300 | 실온에서 보관하십시오. |
| 광학 현미경 | 해당 없음 | 해당 사항 없음 | |
| 저흡착 튜브 | USA Scientific | 1415-2600 | 실온에서 보관하십시오. |
| LS 컬럼 | Miltenyi Biotechnology | 130-042-401 | 실온에서 보관하십시오. |
| 미세유체 장치 | i바이오칩 | ADU-10, (#18++의 AD-칩) | 실온에서 보관하십시오. |
| 비-DEHP 의료 등급 튜브 | iBiochips | MTB-100 | ID = 0.202”, OD = 0.060”, 벽 = 0.20”, 실온에서 보관하십시오. |
| 인산완충식염수 | 해당 없음 | 표준 레시피에 따라 자체 제작됨 | 다음을 각각 1L씩 준비하십시오: pH 7 PBS, pH 8 PBS, pH 8 PBS + 100 mM 글리신 PBS pH 7.4 + 0.5% BSA |
| Pluronic F-127 | MilliPORE SIGMA | P2443 | 실온에서 보관하십시오. |
| 분리 전 필터 | Miltenyi Biotechnology | 130-041-407 | 공극 크기 30 µm |
| QuadroMACS 분리 장치 및 스타터 키트 | Miltenyi Biotechnology | 130-091-051 | 실온에서 보관하십시오. |
| 단단한 스테인리스강 핀 | iBiochips | SSP-200 | 광학 밀도, 0.027”, ID, 0.500”, 실온에서 보관하십시오. |
| 초음파 분쇄기 | Branson | 100-132-1623R & 101-135-066R | |
| 분광광도계 | 해당 사항 없음 | 해당 없음 | |
| 튜브 회전 혼합기 | 해당 없음 | 해당 없음 | |
| Y+A8+2:29+2:31+A8+2+2:33 | 브라르-Ü천연 효모 균주 데이터베이스 | pÜB42275 | trp1::pPma2-Pma2-eGFP::TRP1, ste5::NatR-pTet07.1-STE5, ura3::pRNR2-TetR-Tup1, pTetO7.1-TetR::URA3, flo8Δ, Amn1D368V |
| 효모 균주 2 | Brar-Ü천연 효모 균주 데이터베이스 | pÜB48561 | atg11Δ::KanMX, trp1::pPma2-Pma2-eGFP::TRP1, ste5::NatR-pTet07.1-STE5, ura3::pRNR2-TetR-Tup1, pTetO7.1-TetR::URA3, flo8Δ, Amn1D368V |
| YPD (YEP + 2% 포도당, Trp 및 Ura 보충) | 해당 사항 없음 | 표준 레시피에 따라 자체 제조됨 | YPD (1% 효모 추출물, 2% 펩톤, 2% 포도당, 22.4 mg/L 우라실, 80 mg/L 트립토판). |
| Zymolyase 100T | MP Biomedicals | 8320932 | -에 보관하십시오.20 °C 증류수로 재구성한 후 소분하여 보관하십시오. |
참고문헌
- Denoth Lippuner A, Julou T, Barral Y. Budding yeast as a model organism to study the effects of age. FEMS Microbiol Rev. 2014;38(2):300-25.
- Higuchi-Sanabria R et al. Role of asymmetric cell division in lifespan control in Saccharomyces cerevisiae. FEMS Yeast Res. 2014;14(8):1133-46.
- Hughes AL, Gottschling DE. An early age increase in vacuolar pH limits mitochondrial function and lifespan in yeast. Nature. 2012;492(7428):261-5.
- Nyström T, Liu B. Protein quality control in time and space—links to cellular aging. FEMS Yeast Res. 2014;14(1):40-8.
- Neiman AM. Sporulation in the budding yeast Saccharomyces cerevisiae. Genetics. 2011;189(3):737-65.
- Sing TL, Brar GA, Ünal E. Gametogenesis: exploring an endogenous rejuvenation program to understand cellular aging and quality control. Annu Rev Genet. 2022;56(1):89-112.
- Ünal E, Kinde B, Amon A. Gametogenesis eliminates age-induced cellular damage and resets life span in yeast. Science. 2011;332(6037):1554-7.
- Ünal E, Amon A. Gamete formation resets the aging clock in yeast. Cold Spring Harb Symp Quant Biol. 2011;76:73-80.
- Spiri S et al. A role for selective ER autophagy in gametogenic rejuvenation revealed by high-throughput lifespan profiling. Nat Commun. 2026. doi:10.1038/s41467-026-77993-0.
- Koch BA, Staley E, Jin H, Yu HG. The ESCRT-III complex is required for nuclear pore complex sequestration and regulates gamete replicative lifespan in budding yeast meiosis. Nucleus. 2020;11(1):219-36.
- Lee MB et al. Defining the impact of mutation accumulation on replicative lifespan in yeast using cancer-associated mutator phenotypes. Proc Natl Acad Sci U S A. 2019;116(8):3062-71.
- Mortimer RK, Johnston JR. Life span of individual yeast cells. Nature. 1959;183(4677):1751-2.
- Chen KL, Crane MM, Kaeberlein M. Microfluidic technologies for yeast replicative lifespan studies. Mech Ageing Dev. 2017;161(Pt B):262-9.
- Jin M et al. Divergent aging of isogenic yeast cells revealed through single-cell phenotypic dynamics. Cell Syst. 2019;8(3):242-53.e3.
- Jo MC et al. High-throughput analysis of yeast replicative aging using a microfluidic system. Proc Natl Acad Sci U S A. 2015;112(30):9364-9.
- Li Y et al. A programmable fate decision landscape underlies single-cell aging in yeast. Science. 2020;369(6501):325-9.
- Li Y et al. Multigenerational silencing dynamics control cell aging. Proc Natl Acad Sci U S A. 2017;114(42):11253-8.
- Liu P, Young TZ, Acar M. Yeast Replicator: a high-throughput multiplexed microfluidics platform for automated measurements of single-cell aging. Cell Rep. 2015;13(3):634-44.
- Thayer NH et al. The Yeast Lifespan Machine: a microfluidic platform for automated replicative lifespan measurements. bioRxiv. 2022;2022.02.14.480146.
- Schindelin J et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Spiri S. Fiji macros for microscopy analysis of gametogenic rejuvenation [Internet]. Zenodo; 2026. Available from: [https://doi.org/10.5281/zenodo.22004193](https://doi.org/10.5281/zenodo.22004193)
- Cabib E, Bowers B. Chitin and yeast budding: localization of chitin in yeast bud scars. J Biol Chem. 1971;246(1):152-9.
- Mizushima N, Levine B, Cuervo AM, Klionsky DJ. Autophagy fights disease through cellular self-digestion. Nature. 2008;451(7182):1069-75.
- Rubinsztein DC, Mariño G, Kroemer G. Autophagy and aging. Cell. 2011;146(5):682-95.
- Kobayashi O, Suda H, Ohtani T, Sone H. Molecular cloning and analysis of the dominant flocculation gene FLO8 from Saccharomyces cerevisiae. Mol Gen Genet. 1996;251(6):707-15.
- Fang O et al. Amn1 governs post-mitotic cell separation in Saccharomyces cerevisiae. PLoS Genet. 2018;14(10):e1007691.
- Azizoglu A, Brent R, Rudolf F. A precisely adjustable, variation-suppressed eukaryotic transcriptional controller to enable genetic discovery. eLife. 2021;10:e69549.
- Choi KY, Satterberg B, Lyons DM, Elion EA. Ste5 tethers multiple protein kinases in the MAP kinase cascade required for mating in S. cerevisiae. Cell. 1994;78(3):499-512.
- Bellí G et al. An activator/repressor dual system allows tight tetracycline-regulated gene expression in budding yeast. Nucleic Acids Res. 1998;26(4):942-7.
- Gao Z et al. Comparative analysis of yeast replicative lifespan in different trapping structures using an integrated microfluidic system. Adv Mater Technol. 2020;5(12):2000655.
- Aspert T, Hentsch D, Charvin G. DetecDiv, a generalist deep-learning platform for automated cell division tracking and survival analysis. eLife. 2022;11:e79519.
- Nguyen P et al. BudFinder: a masked auto-encoder vision transformer framework for yeast budding detection and lifespan quantification. PLoS Comput Biol. 2026;22(5):e1013700.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공