본 프로토콜은 수명이 짧은 연례 킬리피시인 Nothobranchius furzeri의 다양한 연령층에서 생존 가능한 심실 심근세포를 안정적으로 분리하는 방법을 제공하며, 이는 연령 관련 심장 리모델링의 whole-cell 패치 클램프 연구에 적합한 세포를 얻을 수 있게 합니다.
방법 논문
전세포 패치 클램프 기록을 위한 연간 킬리피쉬 Nothobranchius furzeri의 심실 심근세포 분리
이 논문에서
요약
초록
분리된 작동 심근세포는 심장 전기생리학 연구를 위한 표준적인 접근 방식으로 남아 있습니다. 단일 세포 표본을 이용하면 온전한 심장 조직의 구조적 복잡성 없이 이온 전류와 활동 전위를 직접 조사하고 정밀하게 측정할 수 있습니다. Nothobranchius furzeri (아프리카 터쿼이즈 킬리피쉬)는 매우 짧은 수명과 인간을 포함한 포유류와의 노화 메커니즘 유사성 덕분에 노년학 연구의 중요한 모델 생물로 빠르게 부상했습니다. 이 종은 작은 크기, 저렴한 사육 비용, 빠른 생애 주기와 같은 실질적인 장점과 중개 연구로서의 관련성을 모두 갖추고 있습니다. N. furzeri 운동 능력, 인지 기능 및 장기 기능의 연령 의존적 저하, 노화의 분자적 특징 축적, 그리고 수명과 건강 수명을 조절하는 약물 치료에 대한 민감성을 나타냅니다. 그러나 노화된 심장의 기능적 저하를 연구하기 위해서는 까다로운 단일 세포 기술에 적합한 고품질의 생존 세포를 얻을 수 있는 신뢰할 수 있는 방법이 필요합니다. 본 연구에서는 다음과 같은 분리를 위해 이전에 설명된 프로토콜을 최적화하였습니다. Danio rerio 젊은 심근세포와 노화된 심근세포 모두에서 건강하게 기능하는 심근세포를 일관되게 회복시키기 위한 심근세포 N. furzeri본 프로토콜에서는 ~로부터 심실 심근세포를 분리하는 방법을 설명합니다. N. furzeri 전세포 패치 클램프(whole-cell patch clamp) 기술에 특화되어 최적화되었습니다. 본 논문은 심장을 효율적으로 적출하고, 역행성 관류를 통해 심근의 효소 분리를 수행하며, 분리된 심근세포를 보관하는 방법을 보여줍니다. 이온 통로 구조를 손상시키지 않으면서 세포외 기질과 세포 간 접합부를 분해하는 데 필요한 효소의 선택에 대해 논의합니다. 갓 분리한 심근세포는 연령대별 활동 전위 기록 및 주요 내향 및 외향 이온 전류 측정을 포함한 고해상도 전기생리학적 분석에 적합합니다. 또한 본 논문에서는 표준 포유류 분리 절차와 다른 어류 심근세포 분리의 특징을 다룹니다.
서론
심장의 연령 의존적 기능 저하는 구조적, 분자적 및 전기생리학적 리모델링에 의해 발생하며, 이는 종합적으로 심장 예비능을 손상시키고 부정맥 유발 감수성을 높입니다1. 세포 수준에서 심장 노화를 유도하는 메커니즘을 이해하기 위해 전세포 패치 클램프(whole-cell patch clamp) 기술은 필수적인 실험 도구로 활용됩니다. 이 기술을 통해 개별 막 관통 이온 전류와 그 역학뿐만 아니라 활동 전위(AP)를 직접적으로 정량 평가할 수 있어, 노화 관련 심근 기능 부전의 기초가 되는 특정 이온 전류 변화에 대한 통찰을 얻을 수 있습니다. 이러한 메커니즘을 조사하려면 신뢰할 수 있는 척추동물 심장 노화 모델이 필요합니다. 최근 몇 년 동안 아프리카 터쿼이즈 킬리피시(Nothobranchius furzeri))는 자연적으로 짧은 수명 덕분에 심장 노화 연구를 위한 유망한 모델로 부상했습니다2,3. 예비 분자 및 조직학적 연구를 통해 Nothobranchius와 포유류 간의 노화 과정에서 유사점이 있음이 밝혀졌습니다. 다른 연구 그룹의 조사에 따르면, N. furzeri는 텔로미어 마모, 미토콘드리아 DNA 함량 및 항산화 효소 발현 감소, 구조적 및 전기생리학적 심근 변화, 그리고 리포푸신(lipofuscin) 축적 및 β-갈락토시데이스(β-galactosidase) 활성 증가와 같은 노화 마커의 축적을 포함하여 포유류 심장 노화의 주요 특징들을 모두 갖추고 있음이 확인되었습니다4,5,6.
하지만 심혈관 연구에서 N. furzeri의 중요성이 커지고 있음에도 불구하고, 단일 세포 수준에서의 상세한 전기생리학적 특성 분석은 지속적인 기술적 문제로 인해 제한적입니다. 고품질의 패치 클램프 기록을 얻기 위해서는 구조적 무결성과 온전한 이온 채널 및 비과수축 형태를 유지하는 기능적인 심근세포를 분리하는 것이 필수적입니다. 포유류 심근세포를 위한 효소 해리 프로토콜은 잘 확립되어 있으나, 어류 심장에서 생존 가능한 심근세포를 분리하는 것은 비포유류 조직 구조, 상대적으로 낮은 세포 수율 및 작은 심장 크기로 인해 여전히 어렵습니다7,8. 이 과정의 주요 제한점은 심장에 캐뉼라를 정확하게 삽입하는 기술적 어려움과 효소 처리의 미세한 변화에 대한 시료의 민감성입니다. 관류 흐름이 조금이라도 중단되면 세포의 품질과 수율 모두 크게 저하됩니다. 또한, 효소 농도나 소화 시간의 약간의 편차만으로도 세포 생존율과 이후의 전기생리학적 기록 품질에 상당한 영향을 미칠 수 있습니다. 동물의 연령 또한 고려해야 합니다. 고령 어류의 심장은 콜라겐 섬유와 섬유아세포 함량이 증가하여 약간 더 높은 효소 농도와 연장된 소화 시간이 필요하지만2, 분리의 일반적인 원칙은 동일하며, 최적의 결과를 얻기 위해 효소 농도와 노출 시간을 10% 범위 내에서 조정합니다.
결과적으로, 어류 모델에서 심장 노화에 관한 전기생리학적 연구를 진전시키기 위해서는 상세하고 재현성이 높은 효소 분리 프로토콜이 필수적입니다. 선형 치수 면에서 일부 형태학적 유사성이 있음에도 불구하고, N. furzeri의 심근세포 분리는 Danio rerio 프로토콜과 비교하여 몇 가지 상당한 수정이 필요합니다. 제브라피시 심장에서 세포를 분리하는 전통적인 절차는 온전한 심장을 비교적 오랜 시간 동안 효소 용액에 담그는 방식을 포함합니다7,8,9. 이러한 접근 방식은 생존 가능한 세포를 얻을 수 있지만, Nothobranchius 심장에는 너무 공격적일 수 있으며 과도한 효소 소화를 유발할 수 있습니다. 본 방법은 심실 내부로 용액이 직접 안정적으로 흐르도록 하여 심장에서 혈액을 더 효율적으로 세척하고, 더 정밀하고 부드러운 효소 처리를 가능하게 합니다. 본 논문은 고품질의 전기생리학적 기록을 보장하기 위해 필요한 핵심 조정 사항을 다루며, N. furzeri로부터 패치 클램프 분석에 적합하고 생존 가능한 심근세포를 분리하기 위한 개선된 방법론을 설명합니다.
프로토콜
본 연구는 GRZ 계통의 N. furzeri를 대상으로 수행되었습니다. 분리된 심실 심근세포에서 활동 전위와 이온 전류를 기록하기 위해, 생후 1.5~2개월 된 암수 모두의 어린 성적 성숙 물고기(N = 19, 체중 = 0.71 g ± 0.36 g)를 사용하였습니다. 물고기는 러시아 과학 아카데미 산하 A.N. Severtsov 생태 및 진화 연구소에서 번식 및 제공하였습니다. 동물은 60–100 L 수조에서 12시간 명/암 주기, 24 °C ± 1 °C의 수조에 보관되었습니다. 사육 밀도는 이전에 발표된 권장 사항10에 따라 수조당 10–20마리로 유지하였습니다.
N. furzeri로부터 심근세포를 분리하는 원리는 이전에 기술되고 소형 어류에 맞게 조정된 고전적인 어류 분리 방법에 기반합니다11,12. 모든 실험은 실험동물 케어 및 사용 가이드(미국 국립보건원) 및 EU 지침 2010/63/EU를 준수하여 수행되었습니다. 실험 프로토콜은 로모노소프 모스크바 국립대학교 생명윤리위원회(신청서 №202-a, 2025년 2월 27일 개최된 생명윤리위원회 회의 №169-d에서 승인됨)의 승인을 받았습니다. 사용된 시약과 장비는 재료 표에 나열되어 있습니다.
1. 용액의 준비
- (mmol L-1) 기준으로 100 NaCl, 10 KCl, 1.2 KH2PO4, 4 MgSO4, 50 taurine, 20 glucose 및 10 HEPES를 포함하는 Ca2+-free 분리 용액을 준비합니다. 실온(24 °C)에서 NaOH를 사용하여 pH를 6.9로 조정합니다. 실온 식염수를 사용하여 분리를 수행합니다. 분리 과정에서 용액의 산소 공급은 필요하지 않습니다.
참고: 분리 용액은 유리 병에 담아 4 °C에서 3~4일 동안 보관할 수 있습니다. - Ca2+-free 용액을 기반으로 0.8 mg mL-1 collagenase type 1A, 0.5 mg mL-1 trypsin 및 0.8 mg mL-1 bovine serum albumin (BSA)을 포함하는 효소 용액 3 mL를 준비합니다. 효소 활성을 유지하기 위해 분리 절차 직전에 효소를 첨가합니다.
참고: 효소 활성은 배치(batch)마다 다르므로 효소 농도 조정이 필요할 수 있습니다. - 냉장고에서 수돗물 50~100 mL를 +4 °C로 미리 냉각합니다. 냉각된 물은 어류의 진통 처리에 필요합니다.
2. 분리 시스템 준비
- 10 mL 주사기 배럴 2개를 스탠드에 약 35 cm 높이로 고정합니다.
- 실리콘 튜브(d = 8 mm)를 배럴에 연결하고, 3방향 수액 조절 콕(3-way infusion stopcock)을 사용하여 튜브의 자유단들을 연결합니다.
- 한쪽 튜브에는 Ca2+-free 분리 용액을, 다른 쪽에는 효소 용액을 채웁니다. 기포는 흐름을 방해하고 분리 품질을 저하시키므로 튜브 내에 기포가 남지 않도록 합니다. 흐름을 차단합니다.
- 바늘 끝에 기포가 생기는 것을 방지하기 위해 1 mL 인슐린 주사기를 사용하여 32 G 디스펜싱 바늘에 Ca2+-free 용액을 채웁니다.
- 용액이 채워진 바늘을 3방향 조절 콕의 자유단에 부착합니다.
- 고정용 퍼티를 사용하여 바늘을 100 mm 페트리 접시 바닥면과 평행하게 고정합니다.
- 관류 시스템에 연결된 페트리 접시를 실체 현미경 아래에 놓고, 스테이지 클립과 고정용 퍼티로 고정합니다(그림 1A).
3. 해부 및 심장 분리
- 수술 기구를 준비합니다: 안과용 미세수술 가위와 포셉 각각 두 쌍, 그리고 의료용 바늘 4개가 담긴 해부 트레이를 준비합니다.
- 냉장고에서 미리 냉각시킨 수돗물을 꺼내어 물고기를 빠르게 담급니다. 아가미 덮개의 움직임이 멈출 때까지 기다립니다.
주의: 다음 단계로 진행하기 전, 아가미 덮개의 움직임이 멈추었는지 확인하여 적절한 진통 효과가 나타났는지 확인하십시오. - 물에서 물고기를 꺼내 등 쪽이 위로 향하도록 해부 트레이에 놓은 후, 안과용 가위로 척수를 절단하십시오.
- 물고기를 등 쪽이 위로 오도록 뒤집은 다음 바늘을 사용하여 트레이에 고정하십시오. 머리, 꼬리, 아가미 덮개를 핀으로 고정하되, 더 많은 공간을 확보할 수 있도록 아가미 덮개를 완전히 열어 뒤로 젖힌 상태에서 고정하십시오.
- 복막을 가로 방향으로 절개하십시오. 핀셋으로 피부를 내장 기관으로부터 조심스럽게 들어 올리며, 절개선을 체축을 따라 세로 방향으로 확장하십시오. 아래턱 가장자리까지 계속 절개한 후, 피부 가장자리를 좌우로 고정하십시오.그림 1B).
- 심실과 동맥구(bulbus arteriosus)의 위치를 확인합니다. 핀셋으로 심실에서 가능한 한 멀리 떨어진 동맥구 부위를 잡고 몸 밖으로 조심스럽게 들어 올립니다. 핀셋을 놓지 않은 상태에서 심실이 손상되지 않도록 심실의 꼬리 쪽(caudal)을 절단합니다.
- 분리된 심장을 실체 현미경 하에서 페트리 접시로 옮깁니다. 캐뉼라 팁을 먼저 동맥구(bulbus arteriosus)에 넣은 다음, 주변 조직을 손상시키지 않도록 주의하며 대동맥판막을 통해 통과시켜 심실에 고정합니다. 캐뉼라 삽입은 다음과 같이 성공적으로 수행될 수 있습니다. > 심장의 90%.
- 결찰사를 사용하여 동맥구(bulbus arteriosus)를 캐뉼라에 고정합니다(그림 1C).
참고: 사람의 머리카락 (d = 50–70 µm)는 표준 봉합사가 작은 심장에는 너무 두껍기 때문에 결찰사로 사용하기에 적합합니다.
4. 심근세포 분리
- Ca가 들어 있는 배럴에서 유체가 흐를 수 있도록 3방향 스톱콕을 엽니다.2+-free 용액. 올바르게 수행되면, 뇌실에 용액이 채워지며 팽창합니다. 유량은 다음과 같이 설정되었습니다. 43 µL 분-1.
- 심실벽이 손상되지 않도록 미세수술용 가위로 심방과 정맥동의 잔해를 다듬어 제거하십시오.
- 균일한 흐름이 유지되는지 모니터링하면서 10~12분 동안 심장을 관류합니다. 실리콘 튜브를 부드럽게 압착하여 용액을 일시적으로 펄스 형태로 주입함으로써 심실 소주를 확장시키고 남아 있는 혈액을 세척합니다. 세척이 성공적으로 이루어지면 실체 현미경 하에서 심정지 상태가 되고 적혈구의 흐름이 중단된 것을 확인할 수 있습니다.
- 스톱콕을 전환하여 효소 용액이 심실로 흐르도록 합니다. 4~6분 동안 관류합니다. 심실벽의 무결성이 파괴되고 작은 심근 조각들이 떨어져 나오는 것을 시각적으로 확인하여 효소 처리를 확인합니다.
주의: 관류액을 샘플링하거나 검사를 위해 도립 현미경으로 옮기는 것을 피하십시오. 이는 세포 물질의 손실이나 기계적 손상을 초래하고 관류 품질의 지속적인 모니터링을 방해할 수 있습니다. 실체 현미경으로 명확하게 확인할 수 있는 위에서 설명한 성공적인 분리 징후들에 의존하는 것이 더 바람직합니다. - 소량의 분주액(300–400 µL)의 Ca2+35 mm 조직 배양 접시에 담긴 무혈청 용액으로 옮깁니다. 심실을 동맥구로부터 잘라내어 접시에 넣습니다.
- 미세 가위로 심실을 잘게 다진 후, 파이펫팅을 반복하여 조직을 부드럽게 마쇄합니다. 100 µL 컷오프 팁이 장착된 마이크로피펫.
- 세포 현탁액을 다음으로 옮깁니다. 1500 µL 튜브. 저배율(10배) 도립 현미경으로 분주액을 확인하십시오.×). 시야 내의 막대 모양의 줄무늬 심근세포 밀도를 시각적으로 추정하십시오. 시야 내에 막대 모양의 세포가 많이 겹쳐 있어 밀집되어 있는 경우(>10당 50× 필드), Ca를 추가하십시오2⁺세포 밀도를 낮추어 기록 챔버 내의 과도한 밀집을 방지하기 위한 무혈청 용액입니다. 세포가 다음과 같은 상태로 가라앉도록 둡니다. 4 °C 기록 전 40~50분 동안.
참고: 세포는 다음 조건에서 보관할 수 있습니다. 4 °C 안정화 기간 동안; 분리 후 8시간 이내에 기록에 사용하십시오.
5. 전체 세포 패치 클램프 기록
- 표 1에 나열된 다양한 이온 전류 및 활동 전위 기록을 위한 세포 외 및 세포 내 용액을 준비합니다.
- 수직 풀러(vertical puller)를 사용하여 박벽 붕규산 유리 모세관(필라멘트 없음)에서 패치 피펫을 뽑아내고 세포 내 용액을 채웁니다. 모든 기록 구성에서 채워진 피펫 저항은 2.0–3.0 MΩ이어야 합니다.
- 관류 저장조에 세포 외 배양액을 채우고, 세포를 기록 챔버에 넣기 전에 라인을 프라이밍하여 모든 기포를 제거합니다.
- 분리된 심근세포 현탁액 소량(30–40 µL)을 유리 바닥 기록 챔버에 넣고 세포가 가라앉을 때까지 5–10분 동안 기다립니다.
- 피펫을 증폭기 헤드 스테이지에 연결합니다. 현미경 유도 하에 마이크로매니퓰레이터를 사용하여 피펫을 대상 심근세포 쪽으로 내리며, 피펫 팁이 막에 닿아 약간의 함몰이 보이고 피펫 저항이 증가할 때까지 조절합니다.
- 부드럽게 음압 흡입을 가하여 GΩ 수준의 고저항 씰(seal)을 형성하며, 이는 보통 수초 내에 형성됩니다.
- 유지 전위를 -80 mV로 설정합니다. 일련의 짧은 흡입 펄스를 가하여 막을 파열시킵니다. 전세포(whole-cell) 구성이 확립되면, 증폭기의 보정 회로를 사용하여 정전 용량 과도 응답을 최소화하고 세포 정전 용량 및 직렬(접근) 저항을 보정합니다.
- 증폭기의 세포 정전 용량(Cell capacitance) 및 직렬 저항(Series resistance) 컨트롤을 사용하여 이러한 정전 용량 전류를 보정합니다. 세포 정전 용량 컨트롤을 조정하여 주요 정전 용량 과도 응답을 최소화한 다음, 직렬 저항 컨트롤을 조정하여 남은 오버슈트가 대부분 상쇄되고 기선 전류가 평탄해질 때까지 줄입니다.
- 활동 전위 및 이온 전류 기록을 위해 보정 후 추정 접근 저항이 ≤10–12 MΩ인 세포만 사용합니다. 활동 전위 또는 이온 전류 기록을 진행하며, 필요한 경우 기록 전 표 2에 나열된 특정 차단제를 추가합니다.
- 각 대상 전류에 대해 사용자 정의 자극 프로토콜 구성이 가능한 패치 클램프 획득 소프트웨어를 사용하여 기록합니다. 본 연구에 사용된 전압 클램프 프로토콜은 그림 2에 나와 있습니다.
결과
본 프로토콜은 고해상도 전체 세포 패치 클램프 기록에 적합한 N. furzeri 유래의 개별 막대 모양 심실 심근세포를 분리하는 방법을 제공합니다. 성공적인 분리 여부는 먼저 세포의 형태와 씰(seal) 품질로 판단하며, 이후 안정적인 활동 전위 및 예상되는 전압 의존성과 진폭을 가진 주요 이온 전류들을 기록할 수 있는지 확인하여 기능적으로 검증합니다. 아래의 대표적인 기록 데이터는 어린 N. furzeri에서 얻은 것으로, 건강하고 패치 클램프가 잘 형성된 세포를 나타내는 기준값을 정의합니다. 이러한 기준치에서 벗어나는 경우는 일반적으로 분리가 최적화되지 않았음을 의미하며, 각 기준과 함께 설명되어 있습니다.
세포 형태 및 씰 형성
생존 가능한 N. furzeri 심실 심근세포는 매끄럽고 형태학적으로 온전한 근초(sarcolemma)를 가진 길쭉한 막대 모양으로 나타난다(그림 3). 일부 세포에서는 광학 현미경으로 희미한 가로무늬(transverse striation)를 식별할 수 있었으나, 모든 세포에서 일관되게 관찰되지는 않았다. 따라서 매끄럽고 온전한 막과 길쭉한 막대 모양의 형태를 기록용 세포 선택의 주요 기준으로 사용하였다. 이러한 세포들은 고저항 씰(>1 GΩ)을 쉽게 형성하며 막 파열(membrane rupture)을 견딜 수 있다. 반면, 둥글거나 수축된 형태, 과립형 또는 부풀어 오른 세포는 과도한 소화나 기계적 손상의 징후이며, 이러한 세포들은 씰 형성이 제대로 되지 않고 빠르게 전위가 감소하므로 폐기해야 한다. 건강한 세포는 안정적인 휴지 막전위를 유지하며 -80 mV 유지 전위에서 누설 전류가 최소화된다.
패치 클램프 기록 특성
전세포 패치 클램프 기록은 패치 클램프 증폭기를 사용하여 22–24 °C에서 수행되었습니다. 신호는 10 kHz로 샘플링되었으며 1–2 kHz에서 저역 통과 필터링되었습니다. 디지타이저의 신호 해상도를 최적화하기 위해 출력 이득(α)은 ×0.5로 설정되었습니다. 직렬 저항은 70%–80%로 보정되었으며, 지연 시간은 10 µs였습니다. 추정된 접근 저항이 10–12 MΩ을 초과하거나 기록 도중 ~10% 이상 변화한 경우 해당 기록은 폐기되었습니다. 활동 전위 및 이온 전류 기록 시 선형 누설 전류 차감은 적용하지 않았습니다.
다음 기준 중 어느 하나라도 해당되는 세포는 분석에서 제외되었습니다: 커런트-클램프 모드에서 휴지 막전위가 −70 mV보다 덜 음전하인 경우, 안정적인 기가실(>1 GΩ)을 형성하지 못한 경우, 보정 후 접근 저항이 >10–12 MΩ인 경우, 기록 중 이온 전류의 급격한 런다운이 발생한 경우, 형태학적 손상(둥글거나 과립상, 또는 과수축된 외관)이 관찰된 경우.
활동 전위(생존능의 양성 대조군)
전류-클램프(current-clamp) 모드에서 기록된 활동 전위는 분리된 심근세포의 전기적 생존력을 가장 직접적으로 평가할 수 있는 지표가 됩니다. 1 ms의 탈분극 전류 펄스(역치보다 약 30% 높은 0.4–1 nA)를 사용하여 활동 전위(AP)를 유도합니다. 자극 빈도는 0.3 Hz로 설정합니다. 파형이 안정적인 정상 상태에 도달할 때까지 약 5분 후 활동 전위를 기록합니다. 어린 N. furzeri에서 잘 분리된 심근세포의 경우, 휴지 막전위(RMP)는 안정적이며 -85 mV에 가깝습니다(그림 4B). 활동 전위는 약 +30 mV까지 오버슈트(overshoot)되어 명확한 실무율(all-or-none) 상승기(upstroke)를 보입니다(그림 4A). 대표적인 활동 전위 특성으로는 APD90 약 530 ms, APD50 약 460 ms, 그리고 최대 상승 속도(dV/dtmax) 약 50 V s-1가 포함됩니다. 탈분극된 휴지 막전위(약 -70 mV보다 덜 음성인 상태), 감소하거나 소실된 오버슈트, 느려진 상승 속도, 또는 대부분의 경우에서 안정적인 진폭과 지속 시간을 가진 반복적인 발화를 유지하지 못하는 현상은 세포가 손상되었거나 클램핑이 제대로 되지 않았음을 나타내며, 이러한 세포는 활동 전위 특성을 평가하는 데 사용할 수 없습니다.
빠른 나트륨 전류 (INa)
빠른 나트륨 전류는 활동전위(AP)의 상승기를 결정하며, 세포막의 무결성과 클램프 품질을 나타내는 민감한 지표가 됩니다. 표 1의 Cs+ 기반 용액을 사용하여 INa를 기록하면, 크고 빠르게 활성화 및 비활성화되는 내향 전류로 나타납니다(그림 5A). 건강한 젊은 심근세포에서 INa는 -60 mV 부근에서 검출되기 시작하여, 약 -30 mV에서 약 -13 pA pF−1의 최대 밀도에 도달하며, +20 mV 부근에서 역전됩니다(그림 5B). 비활성화 시간 상수는 -50 mV에서 ~8 ms, -10 mV에서 ~2 ms로 감소하며, 반-비활성화 전압은 -70 mV 부근에 위치합니다13 (그림 5C,D). 최대 전류 진폭이 실질적으로 감소하거나, 역전 전위가 이동 또는 불분명하거나, 활성화/비활성화 역학이 느려지고 왜곡된 경우는 분리 과정 자체보다는 부적절한 전압 제어(직렬 저항 오차) 또는 세포막 무결성의 손상을 의미합니다.
칼슘 전류 (ICaL 및 ICaT)
칼슘 전류 솔루션(Table 1)으로 기록했을 때, N. furzeri 심근세포는 두 가지 성분으로 구성된 순 내향 칼슘 전류를 나타냅니다. 전류는 약 -60 mV에서 활성화되기 시작하며, 이는 지배적인 L-형 전류(ICaL) 외에 T-형 성분(ICaT)이 존재함을 나타내고, -10 mV에서 0 mV 사이에서 약 -7 pA pF−1의 최대 밀도에 도달합니다(Figure 6B). 성분의 정체는 약리학적으로 확인됩니다. 10 µM nifedipine은 전류를 부분적으로 차단하며, 100 µM은 거의 완전한 억제를 유도합니다(Figure 6A). 100 µM nifedipine 농도는 10 µM nifedipine 처리 후 남은 잔류 전류가 더 높은 농도에 완전히 민감하며, 따라서 ICaT로 식별될 수 있음을 검증하기 위한 특정 대조 실험에서만 사용되었다는 점에 유의하십시오. 일반적인 표준 기록의 경우, 순 ICa 전류를 완전히 차단하는 데 50 µM이면 충분합니다. ICaL 성분은 -50 mV의 유지 전위에서 유도된 전류로 정의되며, ICaT는 -90 mV에서 기록된 전류와 분리된 ICaL 간의 차이로 구합니다(Figure 6C,D). 설명된 활성화 및 최대 전류 전압을 가진, 깨끗하게 분해된 nifedipine 민감성 내향 전류는 칼슘 채널이 잘 보존되었음을 나타냅니다.
지연 정류 칼륨 전류 (IKr 및 IKs)
외향 칼륨 전류의 존재는 분리 후에도 재분극 기전이 기능적으로 온전하게 유지됨을 확인시켜 줍니다. 약리학적 조건(표 2) 하에서, -40 mV 이상의 탈분극은 모든 건강한 세포에서 외향 전류를 유도합니다. 선택적 차단제를 통해 두 가지 성분이 구별되는데, chromanol 293B (20 µM)에 민감한 완만 지연 정류 전류(IKs)와 E4031 (1 µM)에 민감한 급속 지연 정류 전류(IKr)입니다(그림 7A,B). 어린 물고기의 심근세포에서 IKs와 IKr는 강한 탈분극 전위에서 약 1 pA pF−1의 밀도에 도달합니다(그림 7C,D). 인간의 심실 재분극에서 주요한 역할을 하지만 표준 설치류 모델에서는 기여도가 낮은14 두 지연 정류 성분이 모두 존재한다는 점은, 기록된 세포가 재분극 전류가 온전한 N. furzeri 심실 심근세포임을 입증하는 핵심 검증 지표가 됩니다.
배경 내향 정류 전류 (IK1)
배경 내향 정류 전류는 휴지 막전위를 결정하며, +60에서 -120 mV까지의 전압 램프 프로토콜을 통해 편리하게 평가할 수 있습니다(그림 7E). 건강한 세포에서 IK1은 전류 클램프 모드에서 측정된 RMP와 일치하게 -80 mV 근처에서 역전됩니다. 역전 전위보다 양의 전위에서 IK1은 수 pA pF−1에서 정점에 이르는 특징적인 외향성 험프(hump)를 나타냅니다(그림 7F). 역전 전위가 -80 mV에서 크게 벗어나거나 누설 전류가 크게 발생하는 것은 씰(seal) 상태가 불량하거나 막이 손상되었음을 나타냅니다.
종합하면, 길쭉한 막대 모양의 세포가 생성되고, 매끄럽고 손상되지 않은 세포막이 기가옴 씰(gigaohm seal)을 형성하며, 위에서 설명한 참조 활동 전위 파형 및 전류 특성을 나타낼 때 준비 과정이 성공적인 것으로 간주합니다. 하나의 심장에서 이러한 세포를 여러 개 얻었다는 것은 효소 해리 과정이 세포막의 무결성과 이후의 전기생리학적 연구에 필요한 모든 심장 이온 채널을 모두 보존했음을 확인시켜 줍니다.
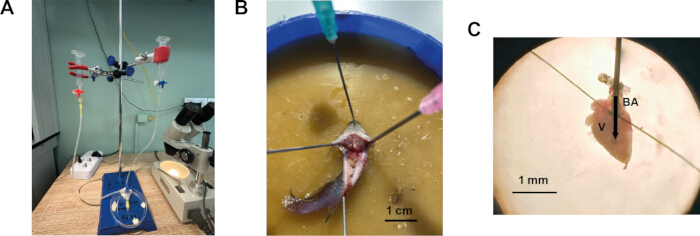
그림 1: N. furzeri의 심장에서 심실 심근세포를 분리하는 절차. (A) 소형 어류에 맞게 수정된 심근세포 분리 시스템. (B) 해부 트레이에 복측이 위로 오도록 고정된 물고기로, 복막이 가로 및 세로 방향으로 절개된 모습. (C) 관류를 위해 캐뉼라를 삽입하고 고정한 N. furzeri의 심장. BA – 동맥구, V – 심실. 화살표는 심실로 유입되는 용액의 흐름 방향을 나타냄. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
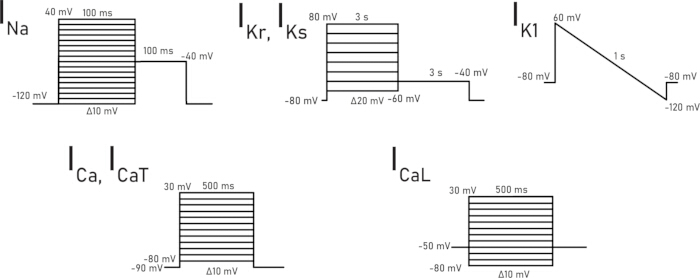
그림 2: 각 특정 이온 전류를 기록하는 데 사용된 전압 클램프 프로토콜. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
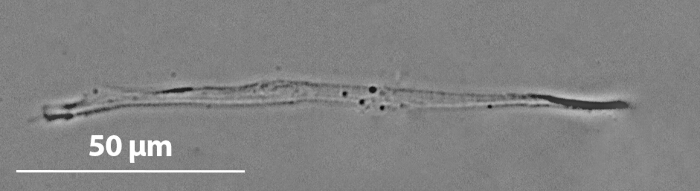
그림 3: 어린 N. furzeri의 심실 심근세포를 촬영한 대표 현미경 사진. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
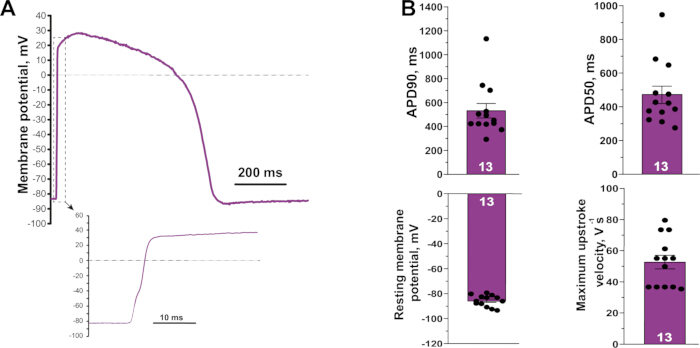
그림 4어린 개체의 심실 심근세포에서 기록된 대표적 활동 전위 N. furzeri. (A) 활동 전위 파형. 삽입도는 확대된 시간 척도에서 나타난 급격한 상승분을 보여준다. (B분리된 어린 심근세포에서 측정된 활동 전위 특성(휴지 막전위, APD50, APD90 및 최대 상승 속도). (N = 7, n = 13). 값은 평균으로 표시됨. ± 주사 전자 현미경 (S.E.M.) 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
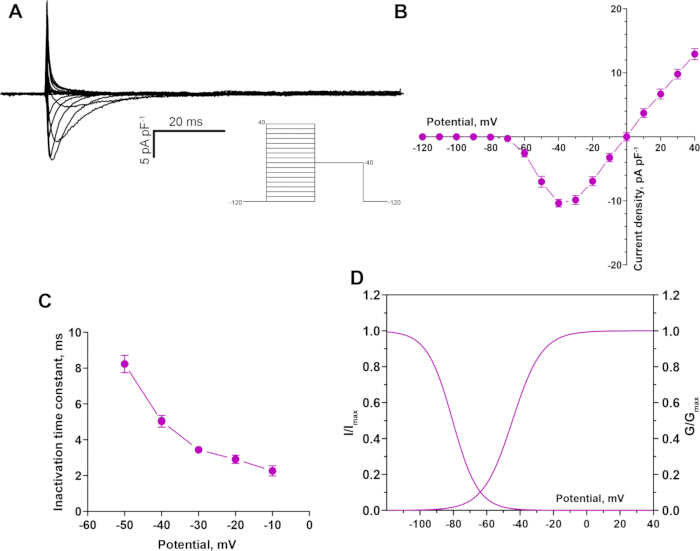
그림 5: 어린 N. furzeri 심실 심근세포에서 기록된 빠른 나트륨 전류 (INa). (A) INa의 대표적인 기록. (B) INa의 전류-전압 관계; -60 mV 근처에서 활성화되어 -30 mV 근처에서 정점에 도달함. (C) 불활성화 시간 상수의 전압 의존성. (D) 정상 상태 활성화 및 불활성화 곡선. (N = 5, n = 11). 값은 평균 ± S.E.M.으로 표시됨. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
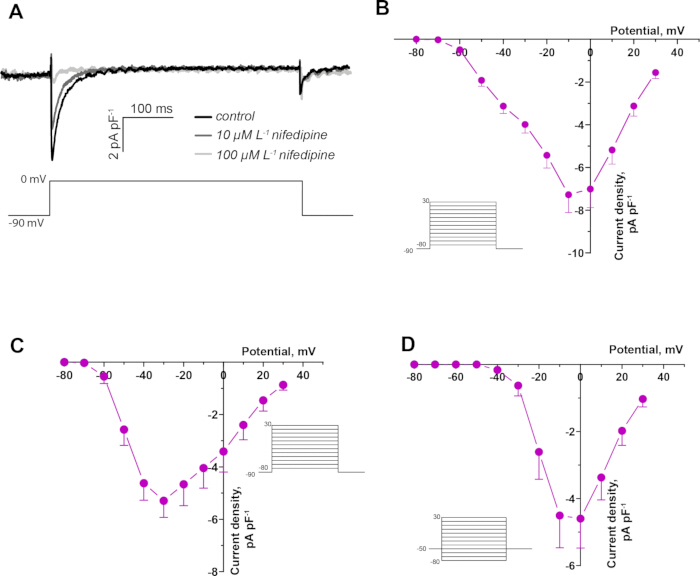
그림 6: 어린 N. furzeri 심실 심근세포의 칼슘 전류. (A) 어린 N. furzeri 심실 심근세포에서 대조군 및 10 µM 및 100 µM nifedipine 처리 시의 순 칼슘 전류의 대표적 기록. (B) 순 칼슘 전류의 전류-전압 관계; -60 mV 부근에서 활성화되어 -10 mV 부근에서 정점을 이룸 (N = 5, n = 11). (C) T-타입 성분 (ICaT)의 전류-전압 관계 (N = 3, n = 6). (D) L-타입 성분 (ICaL)의 전류-전압 관계 (N = 5, n = 7). 값은 평균 ± S.E.M.으로 표시됨. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
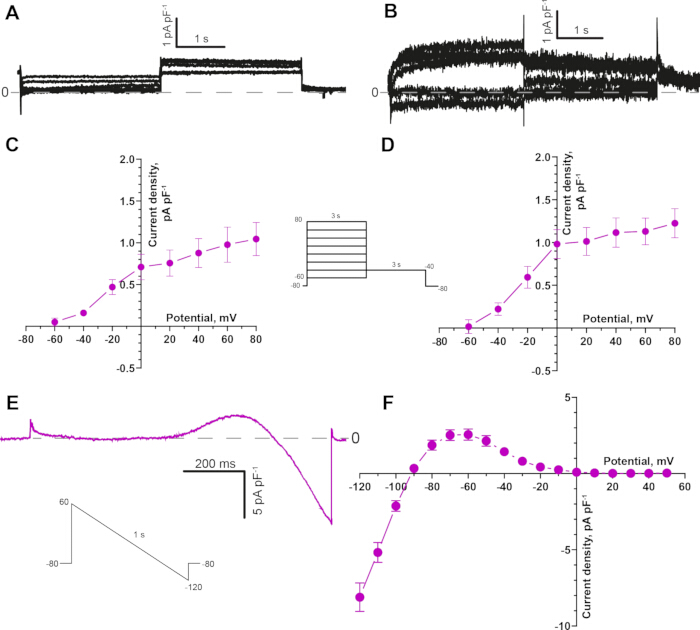
그림 7: 어린 N. furzeri 심실 심근세포의 칼륨 전류. (A) IKr를 차단하기 위해 E4031 (1 µM) 존재 하에 분리하여 기록한 느린 지연 정류 전류(IKs)의 대표적 기록. (B) IKs를 차단하기 위해 chromanol 293B (20 µM) 존재 하에 분리하여 기록한 빠른 지연 정류 전류(IKr)의 대표적 기록. (C) IKs 전류의 전류-전압 관계 (N = 5, n = 9). (D) IKr 전류의 전류-전압 관계 (N = 5, n = 10). (E) +60 mV에서 -120 mV까지 하강 전압 램프 프로토콜로 기록한 대표적인 IK1. (F) 약 -80 mV 근처에서 역전되는 IK1의 전류-전압 관계 (N = 5, n = 18). 값은 평균 ± S.E.M.으로 표시됨. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 용액 이름 | 시약 및 농도 (mM) |
| 활동 전위 및 칼륨 전류 세포외 용액 | 150 NaCl, 3 KCl, 1.2 MgCl2, 1.8 CaCl₂2, 10 glucose, 10 HEPES; NaOH로 pH 7.4 조절 |
| 활동 전위 및 칼륨 전류 세포 내 용액 | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0.03 Na2GTP 및 10 HEPES; KOH로 pH 7.2로 조정됨 |
| 나트륨 전류 세포외액 | 20 NaCl, 123 CsCl, 1 MgCl2, 1.8 CaCl22글루코스 10, HEPES 10; CsOH로 pH 7.2 조절 |
| 나트륨 전류 세포 내 용액 | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP 및 15 TEA; CsOH를 사용하여 pH 7.2로 조정됨 |
| 칼슘 전류 세포외액 | 150 NaCl, 3 CsCl, 1 MgCl2, 1.8 CaCl22, glucose 10 및 HEPES 10; NaOH로 pH를 7.2로 조정함 |
| 칼슘 전류 세포 내 용액 | 130 CsCl, 1 MgCl22, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP 및 15 TEA; CsOH로 pH 7.2 조정. |
표 1: 활동 전위 및 이온 전류의 패치 클램프 기록을 위한 세포 외 및 세포 내 용액의 조성.
| 측정 전류 | 차단제 농도 (μM) | |
| 1. | 활동 전위 | 차단제 필요 없음 |
| 2. | IKr | 50 Nifedipine, 20 Chromanol 293B |
| 3. | IKs | 50 Nifedipine, 1 E4031 |
| 4. | IK1 | 50 Nifedipine, 20 Chromanol 293B, 1 E4031 |
| 5. | INa | 50 Nifedipine |
| 6. | ICaT | 1 Tetrodotoxin |
| 7. | ICaL | 1 Tetrodotoxin |
표 2: 특정 이온 전류의 선택적 기록을 위해 세포외 용액에 첨가한 약리학적 차단제.
토론
N. furzeri로부터 생존 가능한 심실 심근세포를 성공적으로 분리한 것은 세포 수준에서 연령 관련 심장 리모델링의 전기생리학적 특성을 직접 분석할 수 있게 하는 방법론적 진전을 의미합니다. 이러한 해상도는 장기 또는 전체 심장 표본만으로는 구별할 수 없는, 연령 관련 심장 기능 장애의 기저에 있는 구체적인 이온 메커니즘을 규명하는 데 필수적입니다. 천연 심근세포를 연구함으로써 이온 전류 및 활동 전위 특성을 포함한 근본적인 전기생리학적 성질이 노화에 따라 어떻게 변화하는지에 대한 직접적인 통찰을 얻을 수 있습니다.
본 프로토콜의 여러 단계는 N. furzeri로부터 패치 클램프에 적합한 고품질의 심근세포를 얻는 데 매우 중요합니다. 우선, 효소 활성은 배치마다 다르므로 각 준비 과정에서 콜라게나아제(collagenase)와 트립신(trypsin) 농도를 조정해야 합니다. 과도한 소화는 세포막 손상과 이온 채널 기능 상실을 유발하는 반면, 불충분한 소화는 얻어지는 세포 수를 줄이고 피펫과 막 사이의 안정적인 접촉을 방해합니다. 분리된 세포는 매끄럽고 온전한 근초(sarcolemma)를 가진 길쭉한 막대 모양의 형태를 유지하는데, 이는 분리 과정 동안 세포의 무결성이 보존되었음을 나타냅니다. 일부 세포의 경우, 광학 현미경 하에서 희미한 근절 무늬(sarcomeric striation)를 확인할 수도 있습니다. 손상된 세포는 흔히 변형된 이온 채널 기능과 저하된 막 특성을 보이기 때문에, 이러한 보존 상태는 신뢰할 수 있는 전기생리학적 데이터를 얻는 데 필수적입니다. 둘째로, N. furzeri 심장의 작은 크기는 기술적인 어려움으로 작용하여 효소 분리 과정의 세심한 최적화와 정밀한 수동 박리가 필요하며, 심장당 세포 수득률이 포유류 준비물보다 낮습니다. 또한, 캐뉼라를 삽입한 심장에서의 불일치한 관류나 누출은 절차 중 발생할 수 있는 가장 흔한 문제 중 하나입니다. 일관된 접근 각도와 깊이를 익히기 위해 여러 개의 심장으로 캐뉼라 삽입을 연습하십시오. 바늘 끝에 기포가 없는지 확인하고, 조직을 절단하지 않고 심구(bulbus)를 단단히 묶으십시오. 또한, 기록을 진행하기 전에 세포가 매끄럽고 온전한 막을 가진 막대 모양인지 확인하십시오(일부 세포에서는 희미한 무늬가 보일 수 있습니다). 둥글거나 과립형인 세포는 폐기해야 합니다. 모든 용액이 새로 준비되었는지, pH가 정확하게 조정되었는지 확인하십시오. 피펫 저항이 권장 범위(2.0–3.0 MΩ) 내에 있는지 확인하십시오. 기록 중에 위에서 설명한 증폭기 파라미터를 확인하십시오. 보정 후의 접근 저항(access resistance)이 10–12 MΩ을 초과하지 않아야 하며, 전류 클램프(current‑clamp) 모드에서 휴지 막 전위가 −70 mV보다 덜 음수여야 하고, 세포가 안정적인 기가실(gigaseal)을 형성해야 합니다.
그럼에도 불구하고, 이 프로토콜은 패치 클램프 기록 및 잠재적인 다른 응용 분야에 적합한 고품질의 세포를 안정적으로 생성하여, N. furzeri를 세포 심장 노화의 실용적인 모델로 확립합니다. N. furzeri는 심장 노화 연구에 있어 전통적인 포유류 모델보다 분명한 이점을 제공합니다. 사육이 가능한 척추동물 중 수명이 가장 짧기 때문에, 유사한 생물학적 연령에 도달하는 데 18–24개월이 소요되는 마우스 모델과 비교하여 실용적인 시간 범위 내에서 심장 노화의 종단적 연구가 가능합니다15. 짧은 수명에도 불구하고, 이 모델은 전기생리학적 리모델링, 상승 속도가 감소한 상태에서 유지되는 활동 전위 지속 시간, 그리고 중요한 이온 전류의 하향 조절을 포함하여 척추동물 심장 노화의 핵심 특징들을 보여줍니다6.
기존 심근세포 분리 방법과의 비교.
생존 가능한 심실 심근세포의 효소적 분리는 다양한 종의 단일 세포 전기생리학 연구를 위한 잘 확립된 필수 전제 조건입니다. 포유류의 경우, 표준 방식은 온전한 심장의 대동맥을 통해 칼슘이 없는 완충액을 역행성으로 관류시킨 후, 제어된 압력과 온도 조건에서 일반적으로 collagenase와 protease가 포함된 효소 용액을 관류시키는 것입니다. 이러한 전략은 관상혈관을 통해 효소를 균일하게 전달하고 혈액을 효율적으로 세척하며 심근을 비교적 부드럽게 해리시켜, 고해상도 패치 클램프 기록에 적합한 다량의 막대 모양 심근세포를 얻을 수 있게 합니다16,17.
하지만 경골어류의 경우, 심장의 해부학적 구조와 포유류에 상응하는 관상동맥계의 부재로 인해 중요한 수정 사항이 필요합니다. 심혈관 연구에서 가장 널리 사용되는 소형 어류 모델 중 하나인 제브라피시의 경우, 심실 심근세포의 성공적인 분리는 온전한 심장을 효소 용액에서 비교적 장시간 동안 소화시키는 것에 기초합니다8,9. 이러한 프로토콜에서는 적출한 심장을 효소 용액 한 방울 또는 소량의 용액으로 직접 옮겨 실온 또는 해당 종에 적절한 온도에서 배양한 후, 기계적 분쇄를 통해 개별 세포를 방출시킵니다. 이 접근법은 주요 이온 전류의 기록이 가능한 생존 가능한 가로무늬 심근세포를 얻을 수 있음을 보여주었습니다11.
이러한 유용성에도 불구하고, 배치 소화(batch-digestion) 전략을 매우 작거나 특히 취약한 심장에 적용할 때는 몇 가지 한계가 있습니다. 첫째, 효소 노출 제어가 어렵습니다. 심실의 외층이 내층보다 더 높은 유효 효소 농도에 더 오랜 시간 노출되어, 소화 정도가 불균일해지고 저소화 및 과소화된 세포가 혼재될 수 있습니다. 둘째, 효소 용액에 장시간 침지하면 특히 효소 배치의 활성이 다양하거나 심장이 매우 작을 때 과소화의 위험이 증가합니다. 셋째, 혈액 세척이 주로 수동적 확산과 부드러운 수동 헹굼에 의존하므로, 매우 작은 경골어류 심실의 좁은 내강 공간을 완전히 비우기에는 불충분할 수 있습니다.
본 연구에서는 칼슘 제거 처리, 효소 소화 및 부드러운 분쇄라는 일반적인 원칙을 유지하였습니다. 다만, 동맥구(bulbus arteriosus)에 캐뉼라를 삽입하여 심실강에 직접 관류하는 방식으로 용액 전달 방식을 수정하였습니다. 이러한 접근법을 통해 연구자는 소화 전 심실 공간에서 혈액을 세척하고, 심장을 옮기지 않고도 용액을 교체하며, 심실벽이 느슨해지기 시작하는 시점에 효소 처리를 중단할 수 있습니다. 이러한 수정 사항은 작고 섬세한 N. furzeri 심장에 특히 중요하며, 효소 용액에 오래 담가둘 경우 과도한 소화가 일어나 세포 품질이 저하될 수 있기 때문입니다.
향후 응용 분야
본 분리 방법은 향후 연구를 위한 여러 가지 방향을 제시합니다. 첫째, 이 방법은 N. furzeri 심근세포에서 활동 전위 형태, 이온 전류 밀도, 역학 및 전압 의존성의 연령 의존적 변화를 체계적으로 특성화할 수 있게 하여, 이 종의 심장 노화에 관한 최근의 분자 및 조직학적 설명2,3,4,5를 보완합니다. 둘째, 이 프로토콜을 약리학적 도구와 결합하여 수명 또는 건강 수명을 조절하는 중재가 단일 세포 수준의 심장 전기생리학에 어떤 영향을 미치는지 테스트할 수 있습니다. 셋째, 분리된 N. furzeri 심근세포는 패치 클램프 기록 외에도 이온 채널 발현 및 번역 후 변형의 연령 관련 변화에 대한 분자 분석(qPCR, RNA-seq, 프로테오믹스), 면역세포화학 및 근절 구조의 고해상도 이미징 등 다양한 응용 분야에 사용될 수 있습니다. 마지막으로, 여기서 설명한 방법론적 프레임워크는 심장 크기와 해부학적 구조가 유사한 다른 소형 경골어류 모델에 적용될 수 있으며, 이를 통해 심장 노화 연구를 위한 중개 모델로서 N. furzeri의 활용도를 확장할 수 있습니다.
공개 사항
저자들은 상충되는 경제적 이해관계가 없음을 선언합니다.
감사의 글
본 연구는 러시아 과학재단(Grant No. 22-14-00075)의 지원을 받아 수행되었습니다. 저자들은 본 연구에 사용된 Nothobranchius furzeri 개체군의 사육 및 유지 관리를 도와준 Andrei Nikiforov에게 감사를 표합니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 1 mL 인슐린 주사기 | Med Aim | 939863 | |
| 10 mL 주사기 | Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| 100 mm 페트리 접시 | SARSTEDT | 83.3902 | |
| 100 μL 마이크로피펫 | Thermo Scientific | 4640040 | |
| 35 mm 조직 배양 접시 | SPL LIFE SCIENCES | 11035 | |
| 3방향 주입 중단 콕 | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| 500 μL 튜브 | Eppendorf | EP0030124537-500EA | |
| 5-200 μL 팁 | Deltalab | 200009 | |
| 증폭기 | Molecular devices | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| 붕규산 유리 모세관 | Sutter Instrument | B150-110-10 | |
| 소 혈청 알부민 | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| Collagenase 1A Type | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| 분주 바늘 (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| 포도당 | helicon | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| 도립 현미경 | Nikon | - | Eclipse Ti-S |
| KCl | Chimmed | 00000000089 | |
| KH2PO4 | helicon | SRL-90654-500G | |
| KOH | helicon | SRL-38630-1KG | |
| MgATP | MACKLIN | A922363 | |
| MgCl2*6H2O | helicon | Solarbio M8161 | |
| MgSO4*7H2O | helicon | SRL-74440-500G | |
| 마이크로매니퓰레이터 | RWD | MM-500 | |
| 안과용 미세수술 핀셋 | CILITA | F-111T | |
| 안과용 미세수술 가위 | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | helicon | H-1418-1.0 | |
| NaOH | helicon | SRL-13913-500G | |
| 니페디핀 | Sigma-Aldrich | N7634 | |
| 관류 시스템 | Biotechnologies | Bio_4_p | |
| 피펫 풀러 | Narishige Group | PC-10 | |
| 실리콘 튜브 (d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| 스탠드 | NV-lab | 00000034085 | |
| 실체 현미경 | Labkompleks LCC | 10557 | |
| 타우린 | Acros Organics | 166545000 | |
| 테트라에틸암모늄 클로라이드 (TEA) | Merck | 822148 | |
| 테트로도톡신 | Tocris Bioscience | 1078 | |
| 트립신 | Sigma-Aldrich | T0303 | |
| WinWCP 소프트웨어 | University of Strathclyde | - | V5.7.5 |
참고문헌
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공