Hier laten we zien de protocollen voor het uitvoeren van single-molecule fluorescentie microscopie op levende bacteriële cellen in staat te stellen functionele moleculaire complexen worden opgespoord, gevolgd en gekwantificeerd.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Visualiseren Single moleculaire complexen In Vivo Geavanceerde fluorescentiemicroscopie
In dit artikel
Samenvatting
Samenvatting
Volledig inzicht in de mechanismen van levende cellen kan alleen worden bereikt door het onderzoeken van de belangrijkste processen die uitlokken en gebeurtenissen direct op een cellulair niveau. Tot op heden is de schuifspanning complexiteit van biologische systemen heeft veroorzaakt precies single-molecule experimenten te ver veeleisend zijn, in plaats daarvan concentreren op studies van enkele systemen met behulp van relatief ruwe bulk ensemble-gemiddelde van metingen. Echter veel belangrijke processen zich voordoen in de levende cel op het niveau van slechts een of enkele moleculen; ensemble metingen over het algemeen het masker van de stochastische en heterogene karakter van deze gebeurtenissen. Hier, met behulp van geavanceerde optische microscopie en analytische beeldanalyse tools die we laten zien hoe eiwitten binnen een enkel levend bacteriële cel met een precisie van enkele moleculen en hoe we kunnen de dynamiek binnen de moleculaire complexen te observeren in het functioneren van biologische machines te controleren. De technieken zijn direct relevant zijn fysiologisch. Ze zijn minimaal-perturbatieve en niet-invasieve aan het biologische monster onder studie en zijn volledig afgestemd voor het onderzoek in levend materiaal, functies die niet direct beschikbaar zijn voor andere single-molecule benaderingen van biofysica. Daarnaast is de biologische monsters bestudeerde alle fluorescent-gelabelde eiwit te produceren op een niveau dat bijna identiek is aan de ongewijzigde celstammen ("genoom encoding"), in tegenstelling tot de meer gebruikelijke, maar minder ideale aanpak voor het genereren van aanzienlijk meer eiwitten dan zou van nature voorkomen ('plasmide expressie'). Dus de werkelijke biologische monsters die zullen worden onderzocht zijn aanzienlijk dichter bij de natuurlijke organismen, en dus de waarnemingen meer relevant zijn voor echte fysiologische processen.
Protocol
- Om te beginnen deze procedure, 50 ul van bevroren voorraden van fluorescerende eiwitten te drukken Escherichia coli bacteriële cellen worden eerst ontdooid en aëroob gegroeid met schudden in 5 ml LB groeimedia 's nachts bij 37 graden C. In de ochtend, wordt 50 ul van deze verzadigde cultuur onttrokken en sub-gekweekt in de minimal M63 glucose cultuur media, incuberen bij 30 ° C gedurende 4 tot 6 uur. Hier laten we zien met twee verschillende cel-stammen, waarvan er een uitdrukking een elektron-transport van cytochroom gefuseerd met GFP, de andere die een eiwit dat betrokken is in het bacteriële flagellaire motor gefuseerd met GFP uitdrukt.
- Cellen kunnen ofwel rechtstreeks geoogst uit de groeiende sub-cultuur als ze te bekijken als geïmmobiliseerd monsters, of ze kunnen worden geschoren om bacteriële flagella afkappen als het bekijken onder "tethered" voorwaarden.
- Shearing bestaat uit het plaatsen meestal 1-5 ml van de sub-cultuur in een apparaat dat bestaat uit twee steriele spuiten verbonden door steriele leidingen. Het scheren wordt gedaan door afwisselend te drukken in elke spuit pomp naar de cultuur duwen door de smalle buis. Dit wordt gedaan 50-100 keer, afhankelijk van de mate van afschuiving vereist. De cultuur wordt dan gecentrifugeerd om pellet van de cellen, die wordt geresuspendeerd in minimale media flagellen fragmenten te verwijderen.
- Vervolgens hebben we bereiden gereinigd BK7 dekglaasjes door onderdompeling in een verzadigde oplossing van KOH in ethanol voor 20 min, daarna grondig uitspoelen in gedeïoniseerd water en ethanol en het verlaten van te drogen aan de lucht gedurende ten minste 1 uur
- Construeren we een simpele flow-cel naar de cellen huis in de microscoop. Het gaat om lijnen te trekken van de paraffine vet op een BK7 glas microscoopglaasje en vervolgens het maken van een tunnel-sandwich door het plaatsen van een van de gereinigde coverlips op de top, en drukken voorzichtig met een pincet, met een capaciteit celvolume van 5-10 ul .
- Waar te nemen geïmmobiliseerde cellen vullen we de flow-cel door middel van injectie met een 0,1% w / v oplossing van poly-L-lysine, en laat het op kamertemperatuur incuberen gedurende tenminste een minuut. Daarna spoelen met behulp van 100 ui minimale media door het injecteren van de media van het ene uiteinde van de flow-cel en wicking met tissue papier uit de andere.
- Vervolgens hebben we lont tot en met 20 ul van een 1:500 verdunning van 200 nm diameter latex microsferen (Polysciences) in een minimale media om het dekglaasje oppervlak te markeren. De flow-cel is omgekeerd zodanig dat de dekglaasje is naar beneden, op een platform geplaatst uit de buurt van het oppervlak in een eenvoudige vochtkamer geconfronteerd, en geïncubeerd bij kamertemperatuur gedurende 5 minuten. Ongebonden parels worden vervolgens weggespoeld door wicking door middel van 100 pi minimale media.
- Als we willen tethered cellen te observeren we weglaten van de poly-L-lysine voor stap en in plaats daarvan vullen de flow-cel met 5 mg / ml anti-flagelline antilichaam. De flow-cel is plaats in de luchtvochtigheid kamer gedurende 10 min en wordt vervolgens doorgespoeld door wicking.
- 20 ul van de cel cultuur is dan slecht door de flow-cel, hetzij met behulp van de geschoren monster als het observeren van gebonden cellen of de unsheared monster in het bekijken van geïmmobiliseerde cellen.
- De flow-cel is omgekeerd en geplaatst in de luchtvochtigheid kamer voor 20 minuten. Ongebonden cellen worden vervolgens gewassen door wicking door middel van 100 pi minimale media.
- Een druppeltje immersie olie is geplaatst in het midden van de bovenkant van het dekglaasje en de stroom-cel wordt vervolgens voorzichtig op om het monster houder van de op maat gemaakte fluorescentie microscoop, het maken van optische contact met de hoge numerieke apertuur objectief.
- De microscoop elektron-vermenigvuldigen camera is ingeschakeld en de camera ingesteld worden gekoeld tot -70 ° C, is de software ingesteld om beelden te verwerven in een typische frame rate van 25 Hz in frame-transfer mode, aanvankelijk disenabling de winst controle op de camera.
- De helderveld verlichting wordt ingeschakeld en het beeld scherp is gesteld, het selecteren van een geschikte cel of groep cellen af te beelden op basis van hun vast te zitten met hun lange as parallel aan de dekglaasje oppervlak. De focus ligt fijn aangepast om ervoor te zorgen dat de 200 nm latex bolletjes vast aan het dekglaasje oppervlak zijn alleen in focus.
- Een beeld sequentie wordt verkregen in helderveld om de omtrek van het cellichaam te nemen. De helderveld verlichting is uitgeschakeld en de camera te krijgen is ingeschakeld om maximum.
- Voor een standaard acquisitie met behulp van totale interne reflectie fluorescentie (of TIRF) een laserstraal op juiste golflengte (hier, voor groen fluorescerend eiwit excitatie, gebruiken we een 473 nm laser) is zo ingesteld als moet worden geconcentreerd in de rug brandvlak van het objectief, maar zijdelings verplaatst van de optische as naar een evanescente veld voor fluorescentie excitatie in de cel monster te genereren.
- De camera acquisitie wordt gestart en de laser sluiter geopend voor het fluorescerende eiwitten binnen de bacteriën te wekken. De parameters voor laser-intensiteit en snelheid van de overname moeten worden geoptimaliseerd voor de specifieke biologische systeem een onderzoek door te experimenteren met verschillende waarden, maar een typische reeks relevant aan het bestuderen van mobiele eiwitcomplexen in het celmembraan zijn 1-10 mW laser macht over een cirkelvormig gebied met een diameter excitatie ~ 30 micrometer, met een belichtingstijd per frame van 5-40 ms. Monsters worden verlicht tot photobleached, typisch voor ~ 10 s.
- Dit protocol kan gebruikt worden zowel voor aangebonden cellen waarin het lichaam van de cel draait over een punt van de hechting tussen het dekglaasje en een flagellaire stub, en voor de geïmmobiliseerde cellen die stevig zijn bevestigd aan het dekglaasje oppervlak.
- Sommige mobiele stammen die een hoog kopie-aantal van de complexen hebben baat bij een eerste diffractie-beperkte gericht laser bleekwater op een pool van de cel voorafgaand aan de TIRF beeldvorming. Dat bleekmiddel is gelijk aan die gebruikt worden in fluorescentie herstel na fotobleken (of FRAP). Met behulp van onze op maat microscoop enkele van de excitatie laser licht kan worden gevoerd af in een tweede onafhankelijke pad gebruikt voor FRAP-type bleken. Typisch een-10mW laservermogen wordt gebruikt, met een typisch bleekmiddel tijd in het bereik 10-300 ms. Dit resulteert in veel hogere beeldvorming contrast in het gebleekte gebied van de cel waardoor individuele complexen die vervolgens diffuus in dat gebied om meer makkelijk kunnen worden gevisualiseerd worden.
- Voor het visualiseren van complexen in de cel cytoplasma die diffuse veel sneller dan die in de celmembraan een andere belichting modus genaamd "slimfield" is gebruikt. Hier een gerichte laser wordt uitgebreid lateraal om gewoon omvatten een enkele cel. Dit levert een zeer intense veld waardoor veel sneller blootstelling van typisch een milliseconde te worden genomen.
- Na de data-acquisitie, worden de beelden verwerkt in op maat geschreven software (gecodeerd in LabVIEW 8.5). Dit detecteert automatisch de posities van fluorescerende vlekken in de cellen met een precisie van een typisch enkele nanometers en extracten hun grootte en helderheid. De brightnessof de fotobleken te traceren met betrekking tot de tijd van een bijgehouden moleculair complex vervolgens wordt gebruikt om de stoichiometrie schatten, dat wil zeggen hoeveel afzonderlijke fluorescerende eiwitten vormen een enkele moleculaire complex.
Representatieve resultaten:
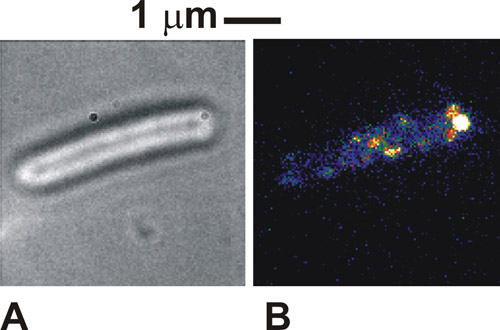
Wanneer het protocol is uitgevoerd juist de beelden van de cellen bekeken in helderveld is zeer duidelijk, met de grenzen van de cellichamen donker tegen een wit / grijs cellichaam (figuur 1a). In fluorescentie met behulp van geïmmobiliseerde cellen, zien we verschillende plekken de intensiteit, van typisch 250 tot 300 nm in de breedte (Figuur 1b). Gezonde, vastgebonden cellen zal worden gezien om te roteren rond het punt van de ketting bijlage in helderveld beelden. Onder fluorescentie excitatie een aantal moleculaire complexen in ons geval zou ook te zien op het moment van bevestiging, wijst op een lokalisatie van de gelabeld eiwit met de flagellaire motor. Deze vlekken zijn individuele moleculaire complexen en het aantal van hen gezien zal afhangen van de gebruikte verlichting mode en hoeveel van de complexen zijn eigenlijk in de cel aanwezig zijn op een bepaald moment. De mobiliteit van de plekken hangt af van de specifieke biologische systeem onder studie. Als de dichtheid van de plekken is aanvankelijk zeer hoog, evenals het geval is met de gelabelde cytochromen hier gebruikt, dan is het uitvoeren van een eerste FRAP bleekwater kan de beeldvorming contrast te verbeteren.

Figuur 1. (A) helderveld en (B) TIRF beeld (valse kleuren) voor een geïmmobiliseerd Escherichia coli cel die een eiwit gefuseerd met green fluorescent protein (GFP), waarvan bekend is dat betrokken is bij de flagellaire motoren van bacteriën. Gelieve Klik hier voor een grotere versie van figuur 1 te zien.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Zorg moet worden genomen om geen "over shear" cel om naar te kijken aangebonden bacteriën, aangezien dit afbreuk doen aan de functionaliteit van de flagellaire motoren. Het is belangrijk om cellen die een keer te gebruiken voor veel langer dan een uur op de microscoop slide, omdat ze kunnen worden zuurstof uitgeput. Aanzienlijke optimalisatie kan nodig zijn om de beste imaging microscoop voorwaarden afgestemd op uw specifieke biologisch systeem in onderzoek. Het kan verstandig zijn om de beeldvorming met behul...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te melden.
Dankbetuigingen
Wij erkennen het soort donaties van bacteriestammen uit de groepen van prof. dr. Judith Armitage (Universiteit van Oxford, Verenigd Koninkrijk) en prof. dr. Conrad Mullineaux (Queen Mary Universiteit van Londen, Verenigd Koninkrijk). IMD wordt gezamenlijk gefinancierd door de Afdeling Biochemie (Oxford University) en OCISB, AR wordt gefinancierd door een Engineering en Exacte Wetenschappen Research Council (EPSRC) DTC studententijd, ND wordt gefinancierd uit de biotechnologie en biologische wetenschappen Research Council (BBSRC); MCL is gefinancierd door een Royal Society Universiteit Research Fellowship.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Referenties
- Leake, M. C., Chandler, J. H., Wadhams, G. H., Bai, F., Berry, R. M., Armitage, J. P. Stoichiometry and turnover in single, functioning membrane protein complexes. Nature. 443, 355-358 (2006).
- Leake, M. C., Greene, N. P., Godun, R. M., Granjon, T., Buchanan, G., Chen, S., Berry, R. M., Palmer, T., Berks, B. C. Variable stoichiometry of the TatA component of the twin-arginine protein transport system observed by in vivo single-molecule imaging. Proc Natl Acad Sci U S A. 105, 15376-15381 (2008).
- Leake, M. C., Wilson, D., Gautel, M., Simmons, R. M., M, R. The elasticity of single titin molecules using a two-bead optical tweezers assay. Biophys. J. 87, 1112-1135 (2004).
- Leake, M. C., Wilson, D., Bullard, B., Simmons, R. M. The elasticity of single kettin molecules using a two-bead laser-tweezers assay. FEBS Lett. , 535-555 (2003).
- Lenn, T., Leake, M. C., Mullineaux, C. W. In vivo clustering and dynamics of cytochrome bd complexes in the Escherichia coli plasma membrane. Mol. Microbiol. 70, 1397-1407 (2008).
- Lenn, T., Leake, M. C., Mullineaux, C. W. Are Escherichia coli OXPHOS complexes concentrated in specialised zones within the plasma membrane. Biochem. Soc. Trans. 36, 1032-1036 (2008).
- Lo, C. J., Leake, M. C., Pilizota, T., Berry, R. M. Single-cell measurements of Membrane Potential, Sodium-Motive Force and Flagellar Motor Speed in Escherichia coli. Biophys. 93, 294-302 (2007).
- Lo, C. J., Leake, M. C., Berry, R. M. Fluorescence measurement of intracellular sodium concentration in single Escherichia coli cells. Biophys. J. 90, 357-3565 (2006).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
