De video demonstreert de in vitro assemblage van virus-specifieke nucleocapsiden vanuit een gezuiverd RNA-vrij nucleoproteïne-fosfoproteïnecomplex, hun zuivering middels grootte-uitsluitingschromatografie en de validatie van full-length viraal RNA binnen de geassembleerde deeltjes.
Methodenartikel
In vitro reconstitutie en zuivering van virale nucleocapside-achtige deeltjes
12 weergaven
⸱
30 september 2026
In dit artikel
Samenvatting
Protocol
1. Moleculaire klonering
OPMERKING: Ligase-onafhankelijke klonering (LIC) werd gebruikt om een bi-cistronisch co-expressie-constructplasmide voor het respiratoir syncytieel virus (RSV) te maken. LIC is een methode die in het begin van de jaren 90 is ontwikkeld en gebruikmaakt van de 3’-5’ exo-activiteit van T4 DNA-polymerase om overhangs te creëren met complementariteit tussen de vector en het DNA-insert. De constructen werden gemaakt met behulp van de 2BT-10 vector-DNA, die bestaat uit een 10x His-tag aan de N-terminus van het open leesraam (ORF) (Afbeelding 1).
- Voer de linearisatie van LIC-vectoren uit met behulp van SSPI-digestie.
- Meng 10 μL SSPI 10X-buffer, 4 μL SSPI-enzym met een concentratie van 5 U/μL, het equivalente volume van 5 μg vector-miniprep-DNA en steriel ddH2O tot een totaalvolume van 100 μL.
- Incubeer het digestaat gedurende 3 uur bij 37 °C.
- Laad het digestaat op een 1,0% agarosegel voor de extractie van vector-DNA.
- Gebruik een gel-extractiekit voor de extractie en purificatie. Suspendeer het uiteindelijke volume vector-DNA in 30 μL ddH2O en bewaar dit bij -20 °C.
Bereid de DNA-inserts voor N1-391 en P1-126 met behulp van de N1-391 Forward Primer, N1-391 Reverse Primer, P1-126 Forward Primer en P1-126 Reverse Primer (Tabel 1).
OPMERKING: Er is voldoende overlap met de gelineariseerde vector om een smelttemperatuur tussen 55 °C en 60 °C te garanderen. Voor de reverse primer is er om dezelfde reden voldoende overlap met de reverse complementaire streng van de gelineariseerde vector.
Tabel 1. Primersequenties.
Primers Sequentie N1-391 Forward 5’-TACTTCCAATCCAATGCAATGGCCCTGAGCAAAGTGAAG-3’ N1-391 Reverse 5’-TTATCCACTTCCAATGTTATTACAGTTCCACGTCGTTGTCCTTGG-3' P1-126 Forward 5’-TACTTCCAATCCAATGCAATGGAAAAGTTCGCCCCCGAG-3' P1-126 Reverse 5’-TTATCCACTTCCAATGTTATTACTGGTCGTTGATTTCCTCGTAGC-3’ - Voer de polymerasekettingreactie (PCR)-amplificatie van de DNA-insert uit volgens de condities in Tabel 2 en Tabel 3.
- Extraheer de geamplificeerde DNA-insert. Laad de PCR-producten uit de vorige stap op een 1,0% agarosegel, en extraheer en purificeer vervolgens de banden via gel-extractie. Suspendeer het uiteindelijke volume geëxtraheerd DNA in 15 μL ddH2O.
Tabel 2. Reagentia voor PCR-amplificatie van DNA-insert.
PCR-amplificatie van DNA-insert 15 μL 10x Pfu polymerase reactiebuffer 3 μL Forward primer (100 μM concentratie) 3 μL Reverse primer (100 μM concentratie) 15 μL Deoxynucleotide-trifosfaat (dNTP) mix met een concentratie van 2,5 mM 6 μL Plasmid-DNA bevat het gen van N of P (100 ng/μL) 7 μL Dimethylsulfoxide (DMSO) 3 μL Pfu polymerase bij 2,5 U/μL Volume tot 150 μL aanvullen Steriel ddH2O Tabel 3. Thermocyclusprogramma voor PCR-amplificatie van DNA-insert.
PCR-amplificatie van DNA-insert Stap Tijd Temperatuur Cycli Denaturatie 4 min. 95 ºC 1 Denaturatie 45 sec. 95 ºC 30 Annealing 30 sec. 62 ºC Extensie* 90 sec. 72 ºC Extensie 10 min. 72 ºC 1 Hold ∞ 4 ºC 1 Het mengsel van 150 μL kan worden uitgevoerd in drie afzonderlijke PCR-reacties (3 x 50 μL). *Voor de Pfu DNA-polymerase is 1 kb/min de aanbevolen snelheid voor de extensiefase. In dit geval zijn zowel de lengtes van het N1-391-gen als het P1-126-gen korter dan 1,5 kb. Daarom werd 90 seconden gebruikt voor de extensiestap. T4 DNA-polymerasebehandeling van vector- en insert-DNA (Tabel 4).
Tabel 4. T4 DNA-polymerasebehandeling.
T4 DNA-polymerasebehandeling 10 x Buffer 2 μL Vector/Insert DNA (0,1 pmol vector of 0,2 pmol insert) 5 μL dNTP* bij 25 mM 2 μL DTT bij 100 mM 1 μL T4 DNA-polymerase (LIC-gekwalificeerd) 0,4 μL (1,25 U) Steriel ddH2O 9,6 μL *dGTP werd gebruikt voor de vector, en dCTP werd gebruikt voor het insert-DNA. OPMERKING: De behandeling moet afzonderlijk worden uitgevoerd voor het vector-DNA en het insert-DNA.
- Incubeer het mengsel gedurende 40 minuten bij kamertemperatuur. Inactiveer vervolgens de polymerase door verhitting bij 75 °C gedurende 20 minuten. Bewaar het reactiemengsel bij -20 °C.
- Anneal de LIC-vector en de insert-vector.
- Stel een negatieve controle op met 2 μL LIC-vector-DNA en 2 μL steriel ddH2O.
- Meng 2 μL insert-DNA en 2 μL LIC-vector-DNA uit de vorige T4 DNA-polymerasereacties in een 0,2 mL buis.
- Voer de annealing-reactie uit bij kamertemperatuur gedurende 10 minuten.
- Stop de reactie met 1,3 μL ethylendiaminetetraazijnzuur (EDTA) met een concentratie van 25 mM.
- Transformeer de reactie in 100 μL Escherichia coli Top10 competente cellen en zaai deze uit op een ampicilline-selectieplaat.
- Identificeer de positieve constructen.
- Bereid de plasmid-miniprep-oplossing. Dit kan door het plukken van kolonies en inoculatie in Luria-Broth (LB) medium. Gewoonlijk zijn 3 kolonies voldoende.
- Incubeer het mengsel overnacht bij 37 °C.
- Centrifugeer het mengsel bij 4.560 x g gedurende 10 minuten en verwijder het supernatant.
- Resuspendeer de pellets in 250 μL P1-buffer en bereid plasmid-minipreps met behulp van een spin-miniprep-kit.
- Voer een digestieanalyse uit van het miniprep-product met behulp van AseI of andere restrictie-enzymen.
- Laad monsters op een 0,8% agarosegel en run het gedigesteerde plasmid. Analyseer de gel onder een UV-lamp.
- Gebruik een sequencing-service om de sequentie van het positieve product te valideren.
Verkrijg de coexpressie-DNA-insert.
- Voer PCR uit om N1-391 en P1-126 te verkrijgen met gebruik van de eerder geconstrueerde 2BT-10 N1-391 en 2BT-10 P1-126 als templates.
- Voer de 1e PCR uit om N1-391 te verkrijgen uit het 2BT-10 N1-391 construct met behulp van de PCR-condities in Tabel 2 en Tabel 3 met de N1-391 Forward-primer en Reverse Primer 5 ́-GTGAAGATCCTGGCTGATGCAATGCGGCGGCGCGCCGCGATCGCGGATCC-3 ́.
- Voer de 2e PCR uit om P1-126 te verkrijgen uit het 2BT-10 P1-126 construct met behulp van de Forward-primer: 5’-CCGCCGCATTGCATCAGCCAGGATCTTCACTGCAGGACTCGAGTTCTAGA-3 ́ en de P1-126 Reverse-primer (gebruik de PCR-condities in Tabel 2 en Tabel 3).
- Voer tot slot overlap-PCR uit op de gemengde producten van de vorige 2 PCR-reacties om N1-391 en P1-126 samen te voegen. Gebruik de N1-391 Forward-primer en P1-126 Reverse-primer. Gebruik de PCR-condities in Tabel 5 en Tabel 6.
Tabel 5. Overlap-PCR-reagentia.
Overlap-PCR 15 μL 10 X Pfu polymerase reactiebuffer 3 μL Forward primer (100 μM) 3 μL Reverse primer (100 μM) 15 μL dNTP Mix (2,5 mM) 3 μL DNA uit 1e ronde PCR dat het gen N1-391 bevat (100 ng/μL ) 3 μL DNA uit 1e ronde PCR dat het gen P1-126 bevat (100 ng/μL ) 7 μL DMSO 3 μL Pfu polymerase (2,5 U/μL) Volume tot 150 μL aanvullen Steriel ddH2O Tabel 6. Thermocyclusprogramma voor overlap-PCR.
Overlap-PCR Stap Tijd Temperatuur Cycli Denaturatie 4 min. 95 °C 1 Denaturatie 45 sec. 95 °C 30 Annealing 30 sec. 62 °C Extensie* 2 min. 72 °C Extensie 10 min. 72 °C 1 Hold ∞ 4 °C 1 Het mengsel van 150 μL kan worden uitgevoerd in drie afzonderlijke PCR-reacties (3 x 50 μL). *Voor de Pfu DNA-polymerase is 1 kb/min de aanbevolen snelheid voor de extensiefase. Hier is de totale lengte van het gen N1-391 en P1-126 korter dan 2,0 kb. Daarom werden 2 minuten gebruikt voor de extensiestap. - Voeg de vector en de DNA-insert samen.
- Behandel het overlap-PCR-product met T4 DNA-polymerase volgens het protocol in stap 1.3.
- Anneal de LIC-vector en het PCR-product volgens het protocol in stap 1.4.
- Identificeer de positieve constructen volgens het protocol in stap 1.5.
2. Proteïne-expressie en -zuivering
OPMERKING: Gebruik E. coli voor het bi-cistronische construct voor de co-expressie van zowel N als P. Kweek de cellen bij 37 °C, maar voer de expressie overnight uit bij een verlaagde temperatuur (16 °C). Zuiver de proteïnecomplexen via een combinatie van kobaltkolom-, ionenuitwisselings- en size-exclusionchromatografie (Afbeelding 2).
- Gebruik de E. coli BL21(DE3)-stam voor de eiwitproductie. Kweek 4 L celculturen bij 37 °C in LB (Luria Broth)-medium totdat de OD600 0,6 bereikt.
- Verlaag de temperatuur naar 16 °C. Induceer een uur later de expressie met 0,5 mM Isopropyl β-D-1-thiogalactopyranoside (IPTG) gedurende de nacht.
- Centrifugeer de cellen bij 4.104 x g gedurende 25 min en verwijder vervolgens het supernatant.
- Resuspendeer de celpellets in 200 mL lysisbuffer A (50 mM natriumfosfaat, pH 7,4, 500 mM NaCl, 5 mM imidazole, 10% glycerol en 0,2% NP40). Gebruik 50 mL lysisbuffer om de celpellets van 1 L celcultuur te resuspenderen.
Lyseer de cellen door sonicatie gedurende 15 min, met intervallen van 3 seconden aan en 3 seconden uit. Centrifugeer de cellen vervolgens bij 37.888 x g gedurende 40 min.
OPMERKING: Het protocol kan worden gepauzeerd door de cellen vóór de sonicatie te bevriezen in een vriezer bij -80 °C.
- Laad het supernatant op een kobalt-gravitatiekolom (diameter x lengte: 2,5 cm x 10 cm) met ~10 mL beads die zijn vooraf geëquilibreerd met 5-10 kolomvolumes (CV) lysisbuffer.
- Was de kolom met 5 CV buffer B (50 mM Tris-HCl pH 7,4, 1 M NaCl, 10% glycerol en 5 mM imidazole) en 5 CV buffer C (50 mM Tris-HCl pH 7,4, 500 mM NaCl, 10% glycerol en 5 mM imidazole).
- Elueer het eiwit uit de beads met 2 CV buffer D (50 mM Tris-HCl pH 7,4, 500 mM NaCl en 250 mM imidazole).
- Verdun het geëlueerde eiwit 5x met QA-buffer (50 mM Tris-HCl pH 8,0, 5% glycerol) voor de Q-kolom.
- Was de 5 mL Q-kolom met QA-buffer om de kolom te equilibreren, en laad vervolgens het verdunde monster in de Q-kolom met behulp van de peristaltische pomp (bijv. Rabbit).
- Plaats de Q-kolom in het HPLC-apparaat samen met QA-buffer en QB-buffer (50 mM Tris-HCl pH 7,4, 1,5 M NaCl, 5% glycerol). Stel de stroomsnelheid in op 1 mL/min.
- Voer het “pump wash”-programma uit om het apparaat te wassen met QB-buffer gevolgd door QA-buffer (elk 1-2 CV). Stel de systeemstroom in op 3 mL/min.
- Stel UV1 in op 280 nm en UV2 op 260 nm. Gebruik een 96-well deep-well plaat om de fracties op te vangen.
- Elueer de eiwitten met een stapsgewijze gradiënt van het elutieagens (QB-buffer) door 3-4 CV van elke concentratie toe te passen, waarbij het percentage telkens met 5% wordt verhoogd, beginnend bij 0% QB. Het N0P-eiwitcomplex zal elueren bij 15% QB-buffer.
- Zodra alle eiwitten zijn geëlueerd, wordt de kolom gewassen met 100% QB-buffer (2 CV).
- Isoleer het eiwit door gelfiltratie met een Superdex 200 Increase 10/300 GL-kolom (diameter x lengte: 1,0 cm x 30 cm) en equilibreer deze met buffer E (20 mM 4-(2-hydroxyethyl)-1-piperazineethansulfonzuur of HEPES pH 7,4 en 200 mM NaCl).
- Analyseer de eiwitbevattende fracties via natriumdodecylsulfaat-polyacrylamidegelelektroforese (SDS-PAGE).
3. In vitro assemblage van het virus-specifieke NC
OPMERKING: De in vitro assemblage van de RSV-specifieke NC (N:RNA) werd uitgevoerd door het voorbereide N0P-complex te incuberen met RNA-oligos. Vervolgens werd grootte-uitsluitingschromatografie (SEC) gebruikt om het assemblagecomplex te scheiden van het N0P en het overmaat aan RNA (Figuur 2).
- Meng het gezuiverde N0P-complex met RNA-oligo in een molaire verhouding van 1:1,5 en incubeer dit gedurende 1 uur bij kamertemperatuur; gewoonlijk is 1 mL van het N0P-eiwit met een concentratie van 1 mg/mL voldoende voor de volgende stap. Stel een controlemonster op dat alleen dezelfde hoeveelheid N0P-eiwit bevat.
- Pre-equilibreer de gelfiltratie Superdex 200 Increase 10/300 GL-kolom met buffer E (20 mM HEPES, pH 7.4, 200 mM NaCl).
- Centrifugeer het monster bij 21.130 x g gedurende 15 min, verwijder eventuele neerslag en breng het supernatant over op de SEC-kolom.
- Vergelijk de SEC-chromatogrammen van het N:RNA-assemblagemonster en het N0P-controlemonster en gebruik de A260/A280-verhouding om te identificeren welke pieken overeenkomen met het geassembleerde N-RNA, N0P en vrij RNA.
- Verzamel de piekfracties, voer een SDS-PAGE-gel uit of maak grids.
- Verzamel voor het geassembleerde N-RNA-complex alle fracties van de N-RNA-piek, voer RNA-extractie uit en run een Urea-PAGE-gel om de lengte van het specifieke RNA te controleren, welke gelijk moet zijn aan het RNA dat in de eerste stap is gemengd en geïncubeerd.
Resultaten
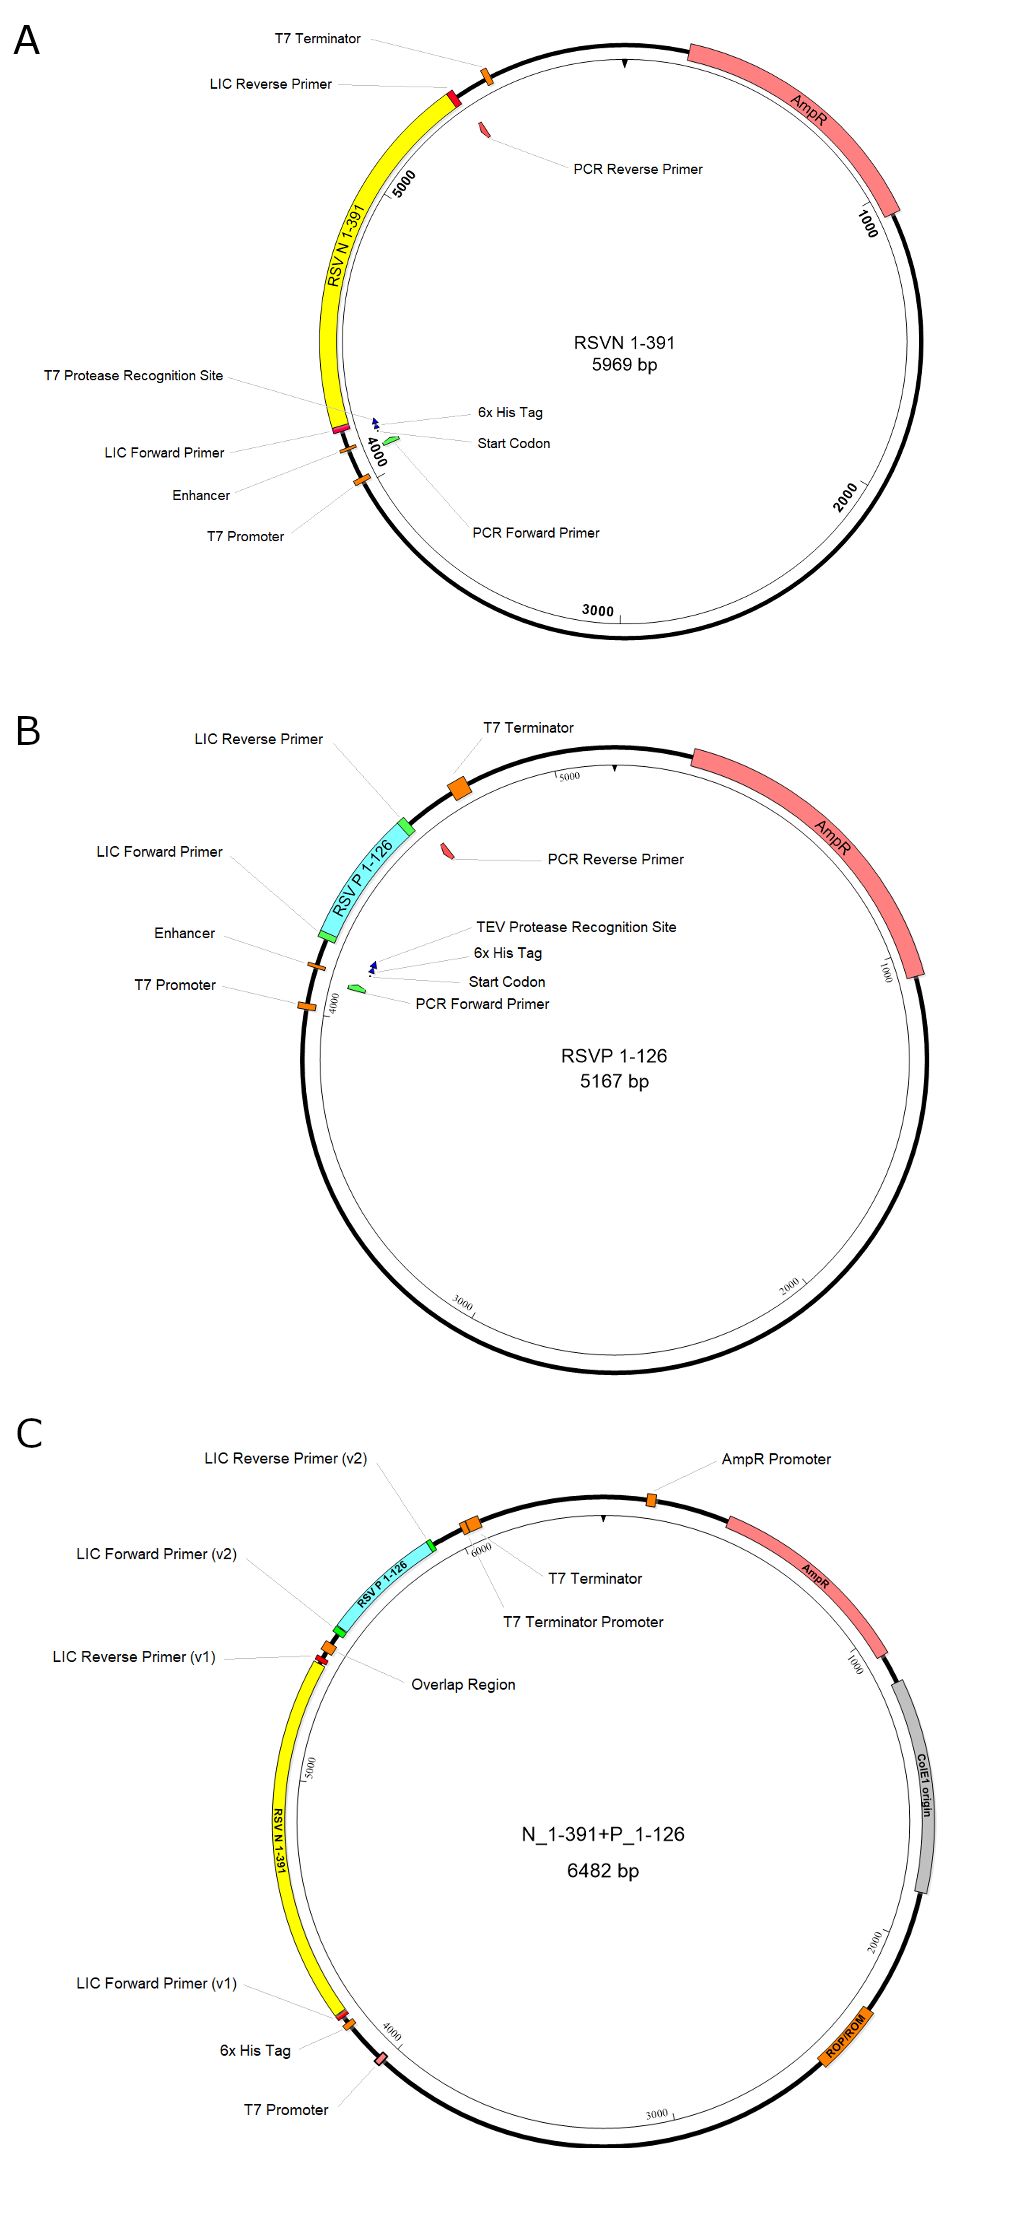
Figuur 1. Illustratie van de plasmidconstructies. A. De constructie van RSV N1-391; B. De constructie van RSV P1-126; C. De bi-cistronische constructie voor de co-expressie van N1-391 en P1-126. Het eerste gen RSV N1-391, het tweede gen RSV P1-126, het antibiotica-resistentiegen (AmpR) en de promotoren zijn respectievelijk gemarkeerd met gele, cyaan, roze en oranje kaders. Samenvattend zijn de geninserten van RSV N1-391 en RSV P1-126 afzonderlijk geconstrueerd en vervolgens geassembleerd.
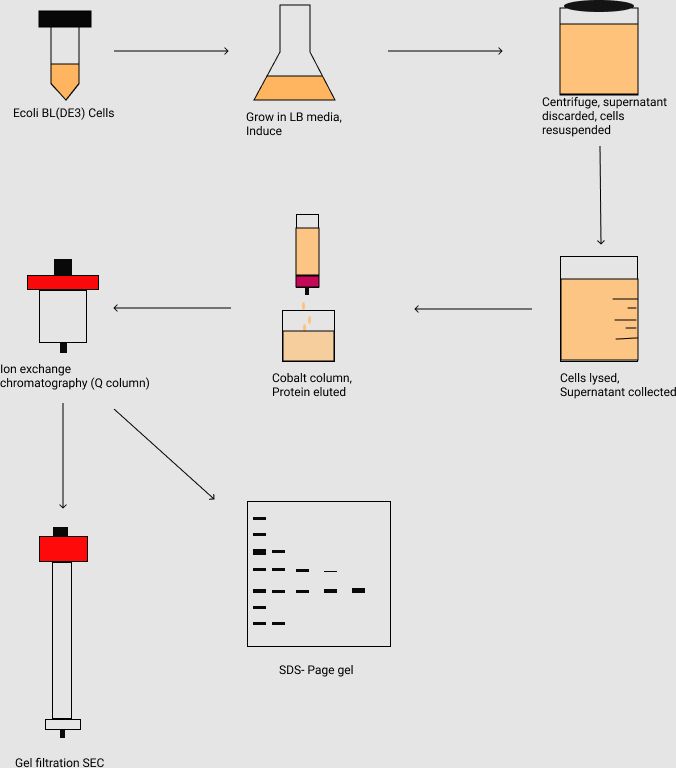
Figuur 2. Het stroomschema van de zuivering van het proteïnecomplex N1-391P1-126. Het schematiseert de inoculatie en grootschalige kweek van de E. coli celcultuur en het oogsten van de cellen door centrifugatie. Na de cellyse worden de proteïnemonsters gezuiverd via affiniteitschromatografie (d.w.z. Co2+-kolom), ionenuitwisselingschromatografie (d.w.z. Q-kolom) en gelfiltratie grootte-uitsluitingschromatografie (SEC). De proteïnemonsters worden vervolgens geanalyseerd met SDS-PAGE gel.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Agarose | SIgma | A9539-500G | maken van construct via LIC-methode |
| Ampicilline natrium | GOLD BIOTECHNOLOGY | 5118.111317A | antibioticum voor celcultuur |
| AseI | NEB | R0526S | maken van construct via LIC-methode |
| Cobalt (High Density) Agarose Beads | Gold Bio | H-310-500 | Voor zuivering van His-tag proteïne |
| Corning LSE Digital Dry Bath Heater | CORNING | 6885-DB | Verwarmen van het monster |
| dCTP | Invitrogen | 10217016 | maken van construct via LIC-methode |
| dGTP | Invitrogen | 10218014 | maken van construct via LIC-methode |
| Glycerol | Sigma | G5516-4L | bereiden van oplossing |
| HEPES | Sigma | H3375-100G | bereiden van oplossing |
| HiTrap Q HP | Sigma | GE29-0513-25 | Proteïnezuivering |
| Imidazole | Sigma | I5513-100G | bereiden van oplossing |
| IPTG (Isopropyl-beta-D-thiogalactopyranoside) | GOLD BIOTECHNOLOGY | 1116.071717A | induceren van proteïne-expressie |
| Microcentrifugebuisjes | VWR | 47730-598 | voor PCR |
| Misonix Sonicator XL2020 Ultrasonic Liquid Processor | SpectraLab | MSX-XL-2020 | sonicator voor cellyse |
| New Brunswick Innova 44/44R | eppendorf | M1282-0000 | Schudmachine voor celcultivatie |
| Nonidet P 40 Substitute | Sigma | 74385-1L | bereiden van oplossing |
| OneTaq DNA Polymerase | NEB | M0480L | PCR |
| QIAquick Gel Extraction Kit | QIAGEN | 28706 | Zuiveren van DNA |
| SSPI-HF | NEB | R3132S | maken van construct via LIC-methode |
| Superose 6 Increase 10/300 GL | Sigma | GE29-0915-96 | Proteïnezuivering |
| T4 DNA polymerase | Sigma | 70099-3 | maken van construct via LIC-methode |
| Thermo Scientific Sorvall RC 6 Plus Centrifuge | Fisher Scientific | 36-101-0816 | Centrifuge, maximale snelheid 20,000 rpm |
| Trizma hydrochloride | Sigma | T3253-250G | bereiden van oplossing |
